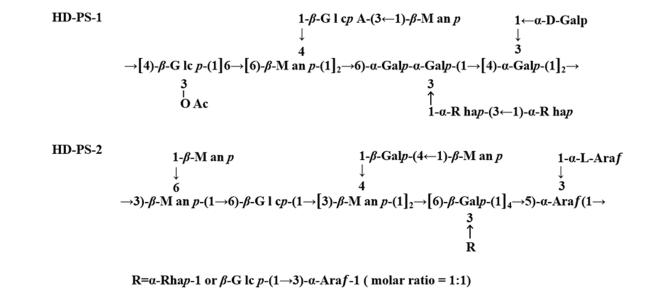综述

白花蛇舌草多糖的提取工艺、生物学功能及在畜禽生产上应用的研究进展

  • 郅可欣 ,
  • 刘峰成 ,
  • 龚番文 ,
  • 贺建华 , *
展开
  • 湖南农业大学动物科学技术学院,长沙 410128
*贺建华,教授,博士生导师,E-mail:

郅可欣(1997—),女,河南郑州人,硕士研究生,研究方向为单胃动物营养。E-mail:

Office editor: 武海龙

收稿日期: 2023-02-21

  网络出版日期: 2023-08-10

基金资助

湖南省重点研发计划(2021NK2010)

Research Progress on Extraction Process, Biological Function and Application in Livestock and Poultry Production of Hedyotis diffusa Polysaccharide

  • ZHI Kexin ,
  • LIU Fengcheng ,
  • GONG Fanwen ,
  • HE Jianhua , *
Expand
  • College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
*professor, E-mail:

Received date: 2023-02-21

  Online published: 2023-08-10

摘要

白花蛇舌草是一种药食同源性植物,对畜禽绿色健康养殖、畜产品安全等都有积极作用。迄今为止从白花蛇舌草中鉴定出180多种化合物,包括环烯醚类、黄酮类、蒽醌类、酚类、挥发油和多糖等。多糖类化合物是白花蛇舌草主要的生物活性成分之一,具有抗氧化、免疫调节、抗肿瘤等多种药理活性。为此,本文对白花蛇舌草多糖的提取工艺、生物学活性的作用机制及其在畜禽生产上的应用进行阐述,并对白花蛇舌草多糖目前存在的问题和在畜禽生产上的前景进行展望,为白花蛇舌草多糖在新型饲料添加剂方面的开发利用提供参考。

本文引用格式

郅可欣 , 刘峰成 , 龚番文 , 贺建华 . 白花蛇舌草多糖的提取工艺、生物学功能及在畜禽生产上应用的研究进展[J]. 动物营养学报, 2023 , 35(8) : 4840 -4849 . DOI: 10.12418/CJAN2023.449

Abstract

Hedyotis diffusa was a medicinal and edible homologous plant, which had a positive effect on the green and healthy breeding of livestock and poultry and the safety of animal products. So far, more than 180 compounds have been identified from Hedyotis diffusa, including cyclic ethers, flavonoids, anthraquinones, phenols, volatile oils and polysaccharides. Polysaccharides were one of the main bioactive components of Hedyotis diffusa, which had many pharmacological activities such as anti-oxidation, immune regulation and anti-tumor. Therefore, the paper elaborates on the extraction process, biological activity mechanism and application in livestock and poultry production of Hedyotis diffusa polysaccharides, and prospects the current problems and prospects of Hedyotis diffusa polysaccharides in livestock and poultry production, providing reference for the development and utilization of Hedyotis diffusa polysaccharides in new feed additives.

白花蛇舌草(Hedyotis diffusa)又称羊草、白花蛇等[1],喜温暖湿润环境,不耐干旱,主要分布在东亚和东南亚地区,如中国、日本和印度尼西亚等国家[2]。白花蛇舌草具有清热解毒、活血化瘀等功效,在临床上广泛应用于治疗各种疾病,常与半枝莲[3]、黄芪[4]、虎杖[5]等搭配,对治疗痈肿疮毒、咽喉肿痛、尿道感染、扁桃体炎等效果良好。
白花蛇舌草营养丰富,含有多糖类、黄酮类、蒽醌类、甾醇类和萜烯类等化合物。大量研究证明白花蛇舌草多糖(Hedyotis diffusa polysaccharide,HDP)是白花蛇舌草的主要活性成分,已有多篇文献报道HDP具有抗氧化、免疫调节、抗肿瘤等多种药理活性[6]。通过DEAE-52纤维素柱和Sephacryl S-300 HR色谱柱分离纯化HDP,HDP分子质量约为89 ku,确定HDP由葡萄糖、半乳糖和甘露糖组成,摩尔比为2∶1∶1[7]。据报道,牛蒡多糖中的甘露糖、葡萄糖和半乳糖含量与抗氧化活性均有显著正相关性[8]。研究表明,膳食是影响机体肠道微生物构成及其代谢的重要因素,添加铁皮石斛多糖有助于改善肠道微生态平衡,促进宿主健康[9]。Ying等[10]研究表明,冬虫夏草多糖对环磷酰胺(Cy)诱导的小鼠肠黏膜免疫抑制和微生物生态失调具有保护作用。此外,黑沙蒿多糖还可以通过刺激核因子E2相关因子2(Nrf2)/Kelch样环氧氯丙烷相关蛋白(Keap1)和Toll样受体4(TLR4)/核因子-κB(NF-κB)信号通路产生相关细胞因子和抗体,缓解脂多糖(LPS)诱导的肉鸡氧化应激反应,从而促进宿主健康[11]。近几十年来,关于植物多糖的研究受到广泛关注,已经成为目前畜牧领域研究的热点之一。因此,探讨HDP的提取工艺、生物学功能及调控机制,对畜禽健康养殖和提高经济效益具有重要意义。

1 HDP的提取工艺

植物多糖作为植物源性制品中重要的成分,已经成为中药活性先导化合物及开发植物饲料添加剂的重要来源,也是无毒和生物相容的载体[12-13]。研究表明,植物多糖具有易溶于水而不易溶于有机溶剂的特性[14-15],因此可以利用乙醇来提取植物多糖。目前HDP的主要提取工艺有水提取法、超声波辅助提取法、微波提取法和酶解辅助提取法等,其中水提取法应用最为广泛[16]。水提取法是我国使用较早的传统的煎出方法,其操作简便且成本低,提取效率高,但提取所需的温度较高、时间较长[17]。叶颖晓等[18]对比了3种提取工艺(水提取法、超声波辅助提取法、酶解辅助提取法),结果发现水提取法提取HDP效果最佳,其次是超声波辅助提取法。水提取法提取植物多糖过程中,料液比、提取所用的时间和温度等条件都对提取植物多糖的含量有显著影响[19]。蒋剑平等[20]利用水提取法提取HDP,发现在液固比31.26∶1、提取温度84.71 ℃、提取时间2.07 h、提取2次的条件下,HDP的提取量为6.721 mg/g。杨新周等[21]利用水浴-回流法提取了产自云南的白花蛇舌草样品中总黄酮、总多酚、总多糖的含量,得到HDP的最佳提取工艺参数为:液料比1∶35、乙醇浓度60%、提取温度80 ℃、提取时间2.5 h,提取率为7.44%,并证明HDP具有较强的抗氧化能力。
超声波辅助提取法和微波提取法虽具有提取时间短、提取温度低、提取率较高、污染较小等特点,但植物多糖分子结构特点极易发生改变,且使用成本高,在实际生产中有一定的局限性[22]。朱智勇[23]采用L9(34)正交试验法得出超声波辅助提取法提取HDP的提取率为3.36%。Shi等[24]采用微波提取法提取HDP,将浓度为60%的乙醇作为溶剂,60 ℃条件下提取2.5 h,HDP的平均提取率为6.31%。
酶具有高效性、特异性和专一性等特点,利用纤维素酶水解法提取HDP,可通过纤维素酶水解细胞壁上的纤维素,使多糖充分溶于乙醇溶液中,但水解过程中影响因子较多,如温度、pH和纤维素酶使用量等均对提取结果有一定影响,需综合考虑各种因素的影响[25]。刘霞等[26]研究了微波辅助酶提取法提取HDP,其提取率可以达到31.02%,证明微波辅助酶提取法可以有效提高多糖的提取率。微波辅助酶提取法提取的植物多糖可以保持较高的活性,但是在天然植物多糖的应用中仍处于发展阶段,有待进一步研究。综上所述,HDP工业化生产主要依赖于水提取法,其优势在于工艺流程简单,易于大规模生产。酶、醇提取效率高,但影响因子较多,难以普遍应用。超声、微波提取则能耗较高,无法形成规模化。因此,未来HDP提取工艺研究方向应从优化、简化提取技术以及降低提取成本方面发展。HDP提取工艺见表1
表1 HDP提取工艺

Table 1 Extraction technology of HDP

项目
Items
提取参数
Extract parameters
提取量/率
Extraction
volume/rate
参考文献
References
水提取法
Water extraction
料液比1∶35(g/mL),提取温度80 ℃,
提取时间80 min
(6.77±0.09)% [18]
料液比1∶31.26(g/mL),提取温度84.7 ℃,
提取时间2.07 min
6.721 mg/g [20]
超声波提取法
Ultrasonic extraction method
料液比1∶35(g/mL),超声功率120 W,
提取1 h,乙醇浓度90%
(6.37±0.01)% [18]
料液比1∶5(g/mL),提取温度70 ℃,
提取时间1 h,乙醇浓度95%
3.36% [23]
微波提取法
Microwave extraction method
料液比1∶40(g/mL),提取温度60 ℃,
提取时间2.5 h,乙醇浓度60%
6.31% [24]
酶解辅助提取法
Enzyme-assisted extraction method
纤维素酶1.2%,酶解温度55 ℃,
乙醇浓度为90%,提取1 h,酶解pH 4.8
(4.81±0.90)% [18]
微波辅助酶提取法
Microwave-assisted enzyme
extraction method
纤维素酶0.9%,酶解温度60 ℃,酶解
时间2.9 h,pH 6.0,乙醇浓度95%
31.02% [26]

2 白花蛇舌草中多糖及其他化合物的生物学功能

2.1 抗氧化能力

研究表明,植物多糖具有较强的抗氧化活性,是一种潜在的天然的抗氧化剂[27]。HDP中所含的有效成分可以通过直接的化学反应消除细胞内过量的活性氧,增强其他抗氧化酶的活性,从而发挥抗氧化作用[28-29]。Huo等[30]报道了白花蛇舌草酸性均一多糖(HD-PS-1)和白花蛇舌草中性均一多糖(HD-PS-2)对1,1-二苯基-2-吡啶酰肼自由基(DPPH·)具有较高的清除活性,且HD-PS-2的清除能力[半抑制浓度(IC50)为(0.677±0.032) mg/mL]强于HD-PS-1[IC50为(1.318±0.087) mg/mL](图1)。蒋剑平等[31]研究发现,HDP对DPPH·的清除率可以达到82.66%,且在波长为695 nm处测得的抗氧化活性(以吸光度表示)为1.641,在波长为700 nm处测得的其还原能力(以吸光度表示)为0.773。高嘉屿等[32]研究表明,HDP具有较强的清除自由基的能力和抗氧化能力,且其以剂量依赖的方式发挥作用,浓度越高,活性越强,与食品加工和工业生产中常用的抗氧化剂丁基羟基甲苯(BHT)相似。
图1 HD-PS-1和HD-PS-2的假定结构

HD-PS-1:白花蛇舌草酸性均一多糖;HD-PS-2:白花蛇舌草中性均一多糖;molar ratio:摩尔比。

Fig.1 Assumed structure of HD-PS-1 and HD-PS-2[30]

植物多糖可以通过激活磷脂酰肌醇3-激酶(PI3K)/蛋白激酶B(AKT)途径来促进Nrf2调控的血红素加氧酶-1(HO-1)和超氧化物歧化酶(SOD)等相关抗氧化酶的表达,从而发挥抗氧化作用[33]。Li等[34]研究发现,白花蛇舌草提取物通过增加SOD和谷胱甘肽过氧化物酶(GSH-Px)活性,在不损害生育能力的情况下降低活性氧(ROS)含量,促进了线虫的健康寿命。Ming[35]研究表明,HDP可以显著降低小鼠血清丙二醛(MDA)含量,提高总超氧化物歧化酶(T-SOD)活性,在体外表现出良好的清除氧自由基和羟基自由基的能力,且清除率随剂量的增加而增加。据报道,从白花蛇舌草中提取一种叫2-羟甲基蒽醌(HMA)的蒽醌衍生物,其可以显著提高LPS诱导的小鼠血清SOD活性和谷胱甘肽(GSH)含量,降低急性肺损伤小鼠血清MDA含量,表现出显著的抗氧化活性,此外,蛋白质印迹分析表明,TLR4的表达和NF-κB的活化被白花蛇舌草拮抗,白花蛇舌草的保护作用可能与NF-κB信号通路的激活有关[36]。NF-κB是氧化应激反应中的关键调节因子,在信号通路中发挥着关键作用[37]。综上所述,HDP可以通过直接清除体内自由基、提升抗氧化相关酶活性和激活抗氧化相关通路来提高机体抗氧化活性,对机体氧化损伤起到保护作用。

2.2 免疫调节作用

免疫是机体对外来物质(抗原)发生的保护性反应,以维持机体生理平衡的功能,由负责免疫的各种细胞和蛋白质构成,包括先天性免疫和适应性免疫,适应性免疫又分为体液免疫和细胞免疫2个分支,二者是紧密联系的[38]。在传统药物中,植物多糖一般被认为是刺激免疫系统的重要成分[39]。植物多糖通过促进巨噬细胞、淋巴细胞、自然杀伤(NK)细胞和其他免疫细胞增殖,在免疫应答和获得性免疫的调节中起关键作用,增加CD4+/CD8+T细胞的比例,下调中性粒细胞的活性,加速血清干扰素-γ(IFN-γ)和白细胞介素-2(IL-2)等细胞因子基因的表达,从而达到免疫调节作用,发挥免疫应答功能[40]。王洪鸽等[41]研究发现,HDP对小鼠外周血淋巴细胞增殖能力、免疫抗体水平、腹腔巨噬细胞吞噬能力、脾脏指数等都有显著影响,证明HDP能够显著提高机体特异性和非特异性免疫功能。
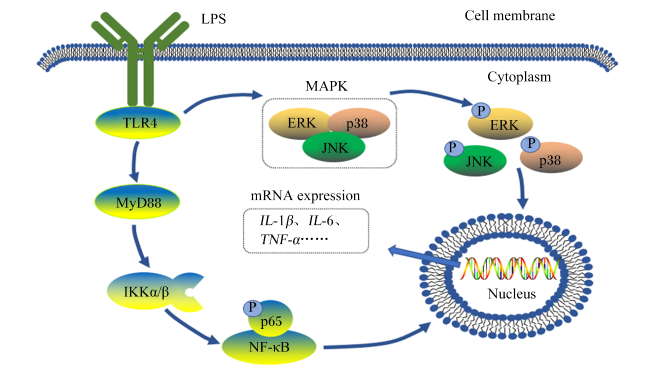
HDP是传统药用植物刺激淋巴细胞和诱导抗原特异性免疫反应所需的主要活性成分[42]。瞿俊勇等[43]研究发现,HDP可显著提高小鼠脾脏巨噬细胞吞噬功能,促进脾脏淋巴细胞代谢及其与刀豆球蛋白A(ConA)或细菌LPS协同诱导的转化作用,在浓度25~200 μg/mL内与小鼠胸腺和脾脏NK细胞活性呈现明显的量效双向作用关系。He等[44]从白花蛇舌草中分离出一种名为鸡屎藤次苷(scandoside,SCA)的环烯醚萜化合物,发现SCA在LPS诱导的RAW264.7巨噬细胞中具有明显的抗炎作用,SCA可通过抑制NF-κB和丝裂原活化蛋白激酶(MAPKs)信号通路来抑制促炎细胞因子和介质释放。LPS与TLR4结合可以引起细胞内炎症信号转导[45],NF-κB、MAPKs等对炎症因子的产生具有严格的控制作用[46]。MAPKs可以被细胞外各种分子激活,诱导许多与细胞增殖、炎症和凋亡相关的关键信号分子的磷酸化,包括p38丝裂原活化蛋白激酶(p38 MAPK)、细胞外信号调节激酶(ERK)1/2和ERK5等[47]。据报道,植物多糖能显著促进ConA和LPS诱导的脾细胞增殖,通过激活RAW264.7小鼠巨噬细胞中的ERK、c-Jun N端激酶(JNK)以及受体激活剂p38、p65的磷酸化,显著增加干扰素-α(INF-α)和白细胞介素-6(IL-6)的分泌,以及一氧化氮合酶(iNOS)、白细胞介素-1β(IL-1β)和IL-6的mRNA表达[48]。综上所述,HDP可能是通过MAPKs和NF-κB信号通路激活巨噬细胞的新型免疫激活剂(图2)。
图2 HDP的免疫调控机制

LPS:脂多糖 lipopolysaccharide;Cell membrane:细胞膜;Cytoplasm:细胞质;Nucleus:细胞核;mRNA expression: mRNA表达;TLR4:Toll样受体4 Toll-like receptor 4;MyD88:髓样分化因子88 myeloid differentiation factor 88;IKKα/β:核因子-κB抑制因子激酶α/β inhibitory nuclear factor-kappa B kinase α/β;MAPK:丝裂原激活蛋白激酶 mitogen-activated protein kinase;ERK:细胞外信号调节激酶 extracellular signal regulated kinase;JNK:c-Jun N端激酶 c-Jun N-terminal kinase;IL-1β:白细胞介素-1β interleukin-1 β;IL-6:白细胞介素-6 interleukin-6;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;P:磷酸化 phosphorylation。

Fig.2 Immune regulation mechanism of HDP[48]

2.3 抗肿瘤作用

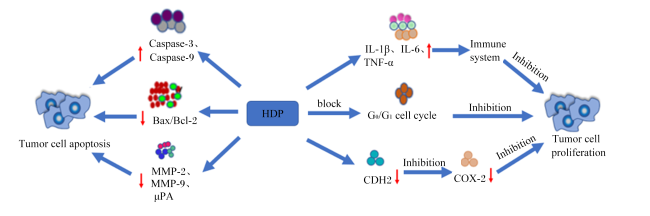
HDP通过调控不同信号通路和靶基因调节相关细胞因子表达,表现出抑制肿瘤细胞增殖、诱导细胞凋亡的作用[49]。Ma等[50]研究表明,HDP显著增加了CD3+、CD56+、IFN-γ和肿瘤坏死因子-α(TNF-α)等含量,且随HDP浓度的增加而增加,另外,试验通过将癌变肝细胞移植到小鼠体内,发现HDP可以显著增强小鼠模型中细胞因子诱导的杀伤细胞(CIK细胞)的抗肿瘤活性。Wu等[51]研究发现,HDP通过抑制基质金属蛋白酶(MMP)-2和抗尿激酶纤溶酶原激活剂(μPA)的表达表现出对喉鳞癌的抗肿瘤作用,从细胞周期分析表明,HDP可导致G0/G1细胞周期阻滞。Lin等[52]研究发现,HDP通过下调MMP-2、MMP-9的表达和上调金属蛋白酶组织抑制剂(TIMP)的表达,以剂量依赖性方式显著抑制A549细胞的黏附、侵袭和迁移。此外,HDP可有效下调上皮间质转化(EMT)标志物(N-钙黏蛋白和波形蛋白)的蛋白表达,上调E-钙黏蛋白的表达,且E-钙黏蛋白通过参与阻断表皮生长因子受体(EGFR)/AKT/ERK信号通路来抑制环氧合酶-2(COX-2)蛋白的表达,从而对肺腺癌A549细胞的增殖、迁移和侵袭发挥显著的抑制作用。Lin等[7]研究发现,HDP可通过诱导细胞凋亡来发挥其对人肺癌细胞A549细胞的生长抑制作用;此外,该试验还发现,经HDP处理后可以抑制A549细胞中B细胞淋巴瘤/白血病-2相关X蛋白(Bax)/B细胞淋巴瘤/白血病-2蛋白比率,抑制促凋亡的蛋白质细胞色素C自线粒体释放到胞质中,阻止胞质中的细胞色素C激活半胱天冬蛋白酶(Caspase)等。Bax/Bcl-2比率是决定对细胞凋亡抑制作用强弱的关键因子[53]。这些结果表明,HDP在体外和体内发挥了抗癌作用,并可作为预防肺癌的有效抗肿瘤剂。综上所述,HDP可以通过直接杀死肿瘤细胞、抑制肿瘤细胞扩散、延长肿瘤细胞分裂时间以及激活相关信号通路和关键蛋白来表达抗癌作用(图3)。
图3 HDP的抗肿瘤调控机制

HDP:白花蛇舌草多糖 Hedyotis diffusa polysaccharide;Caspase-3:半胱天冬蛋白酶-3 cysteinyl aspartate specific proteinase-3;Caspase-9:半胱天冬蛋白酶-9 cysteinyl aspartate specific proteinase-9;Bax:B细胞淋巴瘤/白血病-2相关X蛋白 B-cell lymphoma/leukaemia-2-associated X protein;Bcl-2:B细胞淋巴瘤/白血病-2 B-cell lymphoma/leukaemia-2;MMP-2:基质金属蛋白酶 matrix metalloproteinase 2;MMP-9:基质金属蛋白酶 matrix metalloproteinase 9;μPA:抗尿激酶纤溶酶原激活剂 anti-urokinase plasminogen activator;IL-1β:白细胞介素-1β interleukin-1 β;IL-6:白细胞介素-6 interleukin-6;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;G0/G1 cell cycle:G0/G1细胞周期;CDH2:N-钙黏蛋白 N-cadherin;COX-2:环氧合酶-2 cyclooxygenase-2;Tumor cell apoptosis:肿瘤细胞凋亡;block:阻挡;Immune system:免疫系统;Inhibition:抑制;Tumor cell proliferation:肿瘤细胞增殖。

Fig.3 Antitumor regulation mechanism of HDP[50-52]

3 HDP在畜禽生产中的应用

HDP作为优质的中药材提取物,可以作为一种高效优质的绿色植物添加剂应用在畜禽生产中。邵珊等[54]研究发现,与对照组相比,断奶仔猪注射2 mL猪繁殖与呼吸综合征(PRRS)灭活疫苗+0.1、0.2和0.4 g/次HDP均能显著提高仔猪外周血液中CD3+、CD4+、CD8+细胞的百分比和IL-2的表达水平,增加仔猪特异性抗体滴度水平,且HDP提高免疫的作用与其添加的剂量有关[55]。黄志宏[56]研究表明,饲粮中添加不同浓度(0.4、0.8和1.2 g/kg)的HDP对爱拔益加(AA)肉鸡空肠、十二指肠绒毛长度及隐窝深度均有影响,证明HDP对肉鸡小肠发育有明显的促进作用。范慧芬等[57]研究报道,饲粮中添加0.4、0.8和1.2 g/kg HDP能有效促进AA肉鸡的脾脏、胸腺和法氏囊发育,且其作用效果随剂量的增加而增加。黄志宏[58]研究发现,饲粮中添加0.4 g/kg HDP能显著提高雏鸡小肠上皮内淋巴细胞(IELs)和固有层分泌型免疫球蛋白A(sIgA)阳性细胞的数量,证明HDP能有效促进14~42日龄AA肉鸡小肠黏膜免疫细胞增殖,提高雏鸡小肠黏膜免疫功能。综上所述,HDP能够有效调控机体免疫功能,是一种有效的免疫增强剂,且可促进肠道发育。Wang等[59]研讨了饲粮中添加白花蛇舌草对黄曲霉毒素B1(AFB1)诱导的鸭肝脏损伤的影响,结果发现,补充200 mg/kg的白花蛇舌草显著增加了鸭的体重,缓解了AFB1诱导的肝脏组织病理学改变和肝脏指数,通过增加抗氧化酶活性和降低MDA含量减弱了AFB1诱导的氧化应激。Zhao等[60]探讨了白花蛇舌草对AFB1诱导的雏鸡肝损伤的影响,饲粮中添加500和1 000 mg/kg的白花蛇舌草补充剂可以有效保护肉鸡免受AFB1诱导肝脏毒性的侵害,显著促进Nrf2及相关基因的转录表达,包括HO-1、依赖还原型辅酶Ⅰ(Ⅱ)醌氧化还原酶1(NQO1)、谷氨酸-半胱氨酸连接酶催化亚基(GCLC)。综上所述,HDP可以激活肉鸡的Nrf2通路,降低AFB1驱动的肝脏毒性。因此,HDP作为一种绿色健康动物饲料添加剂,可以改善畜禽免疫应激,提高畜禽生产性能,为解决畜禽健康提供重要思路。

4 小结与展望

综上所述,HDP作为一种新型饲料添加剂,具有提高畜禽免疫力、抗氧化能力和改善畜禽健康的作用。然而关于HDP调节畜禽机体健康的机制及HDP的适宜添加量等还鲜有报道,有待进一步探讨。随着对HDP结构功能的进一步研究,将进一步阐述HDP理化性质、结构表征和潜在机理,但是目前关于HDP的研究并不是很多,仍然具有很大的挑战和难度。HDP的提取、分离纯化、生物学功能等方面还有进一步研究的必要,因此必须积极探索HDP工业原料制备工艺,探索结构和生物学功能的相关性,揭示HDP发挥生物学功能具体的信号通路和重要的靶位点,阐述结构-靶点的分子相互作用,为其开发和利用奠定全面和坚实的基础。
[1]
CHEN R, HE J, TONG X, et al. The Hedyotis diffusa Willd. (Rubiaceae):a review on phytochemistry,pharmacology, quality control and pharmacokinetics[J]. Molecules, 2016, 21(6):710.

DOI

[2]
LI Y L, CHEN X, NIU S Q, et al. Protective antioxidant effects of amentoflavone and total flavonoids from Hedyotis diffusa on H2O2-induced HL-O2 cells through ASK1/p38 MAPK pathway[J]. Chemistry & Biodiversity, 2020, 17(7):e2000251.

[3]
YEH Y C, CHEN H Y, YANG S H, et al. Hedyotis diffusa combined with scutellaria barbata are the core treatment of chinese herbal medicine used for breast cancer patients:a population-based study[J]. Evidence-Based Complementary and Alternative Medicine, 2014, 2014:202378.

[4]
HUANG M, WU H, YU W, et al. Rapid identification of chemical components in Qi-Yu-San-Long decoction by ultra high performance liquid chromatography-quadrupole time-of-flight mass spectrometry[J]. Chinese Journal of Chromatography, 2021, 39(7):730-743.

DOI

[5]
MINH T D, HA T N T, DUY T N, et al. Linh Phu Khang Tue Tinh inhibited prostate proliferation in rats induced benign prostatic hyperplasia by testosterone propionate[J]. Journal of Ethnopharmacology, 2021, 279:114388.

DOI

[6]
XU X, CHEN F, ZHANG L, et al. Exploring the mechanisms of anti-ovarian cancer of Hedyotis diffusa Willd and Scutellaria barbata D.Don through focal adhesion pathway[J]. Journal of Ethnopharmacol, 2021, 279:114343.

DOI

[7]
LIN L, CHENG K, XIE Z, et al. Purification and characterization a polysaccharide from Hedyotis diffusa and its apoptosis inducing activity toward human lung cancer cell line A549[J]. International Journal of Biological Macromolecules, 2019, 122:64-71.

DOI

[8]
JIANG Y, YU J, LI Y, et al. Extraction and antioxidant activities of polysaccharides from roots of Arctium lappa L.[J]. International Journal of Biological Macromolecules, 2019, 123:531-538.

DOI

[9]
SUN Y, ZENG X, LIU Y, et al. Dendrobium officinale polysaccharide attenuates cognitive impairment in circadian rhythm disruption mice model by modulating gut microbiota[J]. International Journal of Biological Macromolecules, 2022, 217:677-688.

DOI

[10]
YING M, YU Q, ZHENG B, et al. Cultured Cordyceps sinensis polysaccharides modulate intestinal mucosal immunity and gut microbiota in cyclophosphamide-treated mice[J]. Carbohydrate Polymers, 2020, 235:115957.

DOI

[11]
XING Y Y, ZHENG Y K, YANG S, et al. Artemisia ordosica polysaccharide alleviated lipopolysaccharide-induced oxidative stress of broilers via Nrf2/Keap1 and TLR4/NF-κB pathway[J]. Ecotoxicology and Environmental Safety, 2021, 223:112566.

DOI

[12]
CHEN F, HUANG G. Antioxidant activity of polysaccharides from different sources of ginseng[J]. International Journal of Biological Macromolecules, 2019, 125:906-908.

DOI PMID

[13]
VISHWAKARMA J, WAGHELA B, FALCAO B, et al. Algal polysaccharide’s potential to combat respiratory infections caused by Klebsiella pneumoniae and Serratia marcescens biofilms[J]. Applied Biochemistry and Biotechnology, 2022, 194(2):671-693.

DOI

[14]
CHENG H, HUANG G. Extraction, characterisation and antioxidant activity of Allium sativum polysaccharide[J]. International Journal of Biological Macromolecules, 2018, 114:415-419.

DOI

[15]
CHEN F, HUANG G, YANG Z, et al. Antioxidant activity of momordica charantia polysaccharide and its derivatives[J]. International Journal of Biological Macromolecules, 2019, 138:673-680.

DOI PMID

[16]
CHEN C, WANG P P, HUANG Q, et al. A comparison study on polysaccharides extracted from Fructus mori using different methods: structural characterization and glucose entrapment[J]. Food Function, 2019, 10(6):3684-3695.

DOI

[17]
LEI J, LI W, FU M X, et al. Pressurized hot water extraction, structural properties, biological effects, and in vitro microbial fermentation characteristics of sweet tea polysaccharide[J]. International Journal of Biological Macromolecules, 2022, 222:3215-3228.

DOI

[18]
叶颖晓, 张朋展, 王丽, 等. 不同提取方法对豫产白花蛇舌草多糖及抗氧化活性的影响[J]. 天然产物研究与开发, 2019, 31(7):1138-1146.

YE X Y, ZHANG P Z, WANG L, et al. Effects of different extraction methods on polysaccharide and its antioxidant characteristics of Hedyotis diffusa Willd in Henan province[J]. Natural Product Research and Development, 2019, 31(7):1138-1146. (in Chinese)

[19]
YANG W, YANG Z, ZOU Y, et al. Extraction and deproteinization process of polysaccharide from purple sweet potato[J]. Chemical Biology & Drug Design, 2022, 99(1):111-117.

[20]
蒋剑平, 许海顺, 卢烨琳, 等. 响应面分析法优化白花蛇舌草水溶性多糖的提取工艺[J]. 浙江中医药大学学报, 2012, 36(2):187-191.

JANG J P, XU H S, LU Y L, et al. Optimization of water-soluble polysaccharide extraction from Hedyotis diffusa Willd by means of response surface analysis[J]. Journal of Zhejiang Chinese Medical University, 2012, 36(2):187-191. (in Chinese)

[21]
杨新周, 田孟华, 杨子仙, 等. 白花蛇舌草中黄酮、多酚、多糖提取工艺及抗氧化研究[J]. 化学研究与应用, 2019, 31(1):22-30.

YANG X Z, TIAN M H, YANG Z X, et al. Study on extraction technology and antioxidation activity of flavonoids, polyphenols,polysaccharide in Hedyotis diffusa Willd[J]. Chemical Research and Application, 2019, 31(1):22-30. (in Chinese)

[22]
ZHENG Y, CUI J, CHEN A H, et al. Optimization of ultrasonic-microwave assisted extraction and hepatoprotective activities of polysaccharides from trametes orientalis[J]. Molecules, 2019, 24(1):147.

DOI

[23]
朱智勇. 超声提取白花蛇舌草多糖的工艺研究[J]. 内蒙古中医药, 2010, 29(14):43.

ZHU Z Y. Study on ultrasonic extraction of Hedyotis diffusa polysaccharide[J]. Inner Mongolia Journal of Traditional Chinese, 2010, 29(14):43. (in Chinese)

[24]
SHI J, LI J. Extraction of polysaccharide from Hedyotis diffusa Willd by microwave pretreatment and their antioxidant stability[J]. China Food Additives, 2015, 4:80-86.

[25]
SHEN J, ZHANG P, ZHANG X, et al. Extraction process and composition identification of anthocyanins from Xinjiang wild Prunus cerasifera fruit peel[J]. Pakistan Journal of Pharmaceutical Sciences, 2021, 34(6):2409-2415.

[26]
刘霞, 李伟, 邓春芳, 等. 微波辅助酶法提取白花蛇舌草多糖的工艺优化[J]. 湖北农业科学, 2016, 55(15):3975-3979.

LIU X, LI W, DENG C F. Optimization of extraction polysaccharide in Hedyotis diffusa Willd.by microwave-assisted enzymatic methods[J]. Hubei Agricultural Sciences, 2016, 55(15):3975-3979. (in Chinese)

[27]
SHEBIS Y, LASKAVY A, MOLAD-FILOSSOF A, et al. Non-radical synthesis of chitosan-quercetin polysaccharide:properties, bioactivity and applications[J]. Carbohydrate Polymers, 2022, 284:119206.

DOI

[28]
GUAN T, WEI X, XU P, et al. Comparison of structural and antioxidant activity of polysaccharide extracted from truffles[J]. Journal of Food Science, 2022, 87(7):2999-3012.

DOI PMID

[29]
CHEN S, HUANG H, HUANG G. Extraction, derivatization and antioxidant activity of cucumber polysaccharide[J]. International Journal of Biological Macromolecules, 2019, 140:1047-1053.

DOI PMID

[30]
HUO J, LU Y, JIAO Y, et al. Structural characterization and anticomplement activity of an acidic polysaccharide from Hedyotis diffusa[J]. International Journal of Biological Macromolecules, 2020, 155:1553-1560.

DOI

[31]
蒋剑平, 徐敏, 卢烨琳, 等. 白花蛇舌草多糖的抗氧化活性研究[J]. 中华中医药学刊, 2012, 30(5):1076-1078.

JANG J P, XU M, LU Y L, et al. Antioxidant Activity of polysaccharide from Hedyotis diffusa Willd.[J]. Chinese Archives of Traditional Chinese Medicine, 2012, 30(5):1076-1078. (in Chinese)

[32]
高嘉屿, 杨櫹, 宋天星, 等. 白花蛇舌草多糖提取的工艺优化及抗氧化活性研究[J]. 辽宁中医杂志, 2016, 43(1):109-111.

GAO J Y, YANG X, SONG T X, et al. Optimization of extraction technology and research of antioxidant activity of Hedyotis diffusa[J]. Liaoning Journal of Traditional Chinese Medicine, 2016, 43(1):109-111. (in Chinese)

[33]
LIAO Z, ZHANG J, LIU B, et al. Polysaccharide from okra (Abelmoschus esculentus L. Moench) improves antioxidant capacity via PI3K/AKT pathways and Nrf2 translocation in a type 2 diabetes model[J]. Molecules, 2019, 24(10):1906.

DOI

[34]
LI J, LIU D, LI D, et al. Phytochemical composition and anti-aging activity of butanol extract of Hedyotis diffusa in caenorhabditis elegans[J]. Chemistry & Biodiversity, 2022, 19(2):e202100685.

[35]
MING L. Anti-fatigue and antioxidation effects of Hedyotis diffusa polysaccharides[J]. Food Science and Technology, 2014, 39(7):190-193.

DOI

[36]
TAN J, LI L, SHI W, et al. Protective effect of 2-hydroxymethyl anthraquinone from Hedyotis diffusa Willd in lipopolysaccharide-induced acute lung injury mediated by TLR4-NF-κB pathway[J]. Inflammation, 2018, 41(6):2136-2148.

DOI PMID

[37]
WANG X, LIU J, ZHANG X, et al. Seabuckthorn berry polysaccharide extracts protect against acetaminophen induced hepatotoxicity in mice via activating the Nrf-2/HO-1-SOD-2 signaling pathway[J]. Phytomedicine, 2018, 38:90-97.

DOI PMID

[38]
BONOLDI V L N, YOSHINARI N H, ANIZ P A E A, et al. Innate and Th1/Th17 adaptive immunity in acute and convalescent Brazilian borreliosis disease[J]. Brazilian Journal of Infectious Diseases, 2021, 25(2):101575.

[39]
LI Z, LI L, ZHOU H, et al. Radix isatidis polysaccharides inhibit influenza a virus and influenza A virus-induced inflammation via suppression of host TLR3 signaling in vitro[J]. Molecules, 2017, 22(1):116.

DOI

[40]
ZHU Y, ZHAO Q, GAO H, et al. Lycium barbarum polysaccharides attenuates N-methy-N-nitrosourea-induced photoreceptor cell apoptosis in rats through regulation of poly (ADP-ribose) polymerase and caspase expression[J]. Journal of Ethnopharmacology, 2016, 191:125-134.

DOI

[41]
王洪鸽, 汤承, 王航, 等. 白花蛇舌草多糖对小鼠免疫功能和生长发育的影响[J]. 中国畜牧兽医, 2013, 40(10):140-143.

WANG H G, TANG C, WANG H, et al. Effects of hedyotis diffusa willd polysaccharide on immune function and growth in mice[J]. China Animal Husbandry and Veterinary Medicine, 2013, 40(10):140-143. (in Chinese)

[42]
SON Y O, KOOK S H, LEE J C. Glycoproteins and polysaccharides are the main class of active constituents required for lymphocyte stimulation and antigen-specific immune response induction by traditional medicinal herbal plants[J]. Journal of Medicinal Food, 2017, 20(10):1011-1021.

DOI

[43]
瞿俊勇, 田梦, 贺建华, 等. 白花蛇舌草多糖体外免疫活性研究[J]. 中兽医医药杂志, 2015, 34(3):17-20.

QU J Y, TIAN M, HE J H, et al. Study on the immunocompetence of polysaccharides from Hedyotis diffusa Willd. in vitro[J]. Journal of Traditional Chinese Veterinary Medicine, 2015, 34(3):17-20. (in Chinese)

[44]
HE J, LI J, LIU H, et al. Scandoside exerts anti-inflammatory effect via suppressing NF-κB and MAPK signaling pathways in LPS-induced RAW 264.7 macrophages[J]. International Journal of Molecular Sciences, 2018, 19(2):457.

DOI

[45]
XU J, YUAN C, WANG G, et al. Urolithins attenuate LPS-induced neuroinflammation in BV2 microglia via MAPK, AKT and NF-κB signaling pathways[J]. Journal of Agricultural and Food Chemistry, 2018, 66(3):571-580.

DOI

[46]
FAURE-DUPUY S, RIEDL T, ROLLAND M, et al. Control of APOBEC3B induction and cccDNA decay by NF-κB and miR-138-5p[J]. JHEP Reports, 2021, 3(6):100354.

DOI

[47]
SHADABI S, DELRISH N, NOROUZI M, et al. Comprehensive high-throughput meta-analysis of differentially expressed microRNAs in transcriptomic datasets reveals significant disruption of MAPK/JNK signal transduction pathway in adult T-cell leukemia/lymphoma[J]. Infection Agents Cancer, 2021, 16(1):1-10.

[48]
SHEN C Y, ZHANG W L, JIANG J G. Immune-enhancing activity of polysaccharides from Hibiscus sabdariffa Linn. via MAPK and NF-kappa B signaling pathways in RAW264.7 cells[J]. Journal of Functional Foods, 2017, 34:118-129.

DOI

[49]
谢冬冰, 郭玉婷. 白花蛇舌草提取物多糖和总黄酮对于结肠癌HT-29细胞的抑制作用[J]. 中国药物与临床, 2021, 21(19):3217-3220.

XIE D B, GUO Y T. Polysaccharides and total flavonoids from Oldenlandia diffusa extract inhibit colorectal cancer HT-29 cells in vitro[J]. Chinese Remedies & Clinics, 2021, 21(19):3217-3220. (in Chinese)

[50]
MA C, WEI Y, LUI Q, et al. Polysaccharides from Hedyotis diffusa enhance the antitumor activities of cytokine-induced killer cells[J]. Biomedicine & Pharmacotherapy, 2019, 117:109167.

DOI

[51]
WU C, LUO H, MA W, et al. Polysaccharides isolated from Hedyotis diffusa inhibits the aggressive phenotypes of laryngeal squamous carcinoma cells via inhibition of Bcl-2, MMP-2, and μPA[J]. Gene, 2017, 637:124-129.

DOI

[52]
LIN L, CHENG K, HE Z, et al. A polysaccharide from Hedyotis diffusa interrupts metastatic potential of lung adenocarcinoma A549 cells by inhibiting EMT via EGFR/Akt/ERK signaling pathways[J]. International Journal of Biological Macromolecules, 2019, 129:706-714.

DOI

[53]
CAHYADI A, UGRASENA I, ANDARSINI M R, et al. Relationship between Bax and Bcl-2 protein expression and outcome of induction phase chemotherapy in pediatric acute lymphoblastic leukemia[J]. Asian Pacific Journal of Cancer Prevention, 2022, 23(5):1679-1685.

DOI PMID

[54]
邵珊, 王贵平, 李春玲, 等. 黄芪多糖和白花蛇舌草多糖对猪繁殖与呼吸综合征灭活疫苗免疫猪T细胞亚群及抗体水平的影响[J]. 中国兽医学报, 2011, 31(8):1196-1199.

SHAO Y, WANG G P, LI C L, et al. Effects of APS and OPS on T subpopulations in the immune response to porcine reproductive and respiratory syndrome inactived virus vaccine[J]. Chinese Journal of Veterinary Science, 2011, 31(8):1196-1199. (in Chinese)

[55]
邵珊, 李春玲, 侯加法, 等. 黄芪多糖和白花蛇舌草多糖对猪高致病性繁殖与呼吸综合征灭活疫苗免疫的影响[J]. 中国兽医学报, 2009, 29(5):542-545.

SHAO S, LI C L, HOU J F, et al. Effects of APS and OPS on porcine reproductive and respiratory syndrome attenuated virus vaccin[J]. Chinese Journal of Veterinary Science, 2009, 29(5):542-545. (in Chinese)

[56]
黄志宏. 白花蛇舌草多糖对雏鸡小肠组织结构的影响[J]. 黑龙江畜牧兽医, 2020(23):106-108.

HUANG Z H. Effect of hedyotis diffusa polysaccharide on the structure of small intestine in chicks[J]. Heilongjiang Animal Science and Veterinary Medicine, 2020(23):106-108. (in Chinese)

[57]
范慧芬, 谢美娜, 刘家卉, 等. 白花蛇舌草多糖对AA鸡免疫器官发育的影响[J]. 畜牧兽医科技信息, 2014, 452(8):19-20.

FAN H F, XIE M N, LIU J H, et al. Effects of hedyotis diffusa polysaccharide on the development of immune organs in AA chickens[J]. Chinese Journal of Animal Husbandry and Veterinary Medicine, 2014, 452(8):19-20. (in Chinese)

[58]
黄志宏. 白花蛇舌草多糖对雏鸡小肠黏膜免疫细胞的影响[J]. 黑龙江畜牧兽医, 2020(21):142-145.

HUANG Z H. Effect of hedyotis diffusa polysaccharide on immune cells of small intestinal mucosa in chicks[J]. Heilongjiang Animal Science and Veterinary Medicine, 2020(21):142-145. (in Chinese)

[59]
WANG P, WANG Y, FENG T, et al. Hedyotis diffusa alleviate aflatoxin B1-induced liver injury in ducks by mediating Nrf2 signaling pathway[J]. Ecotoxicology and Environmental Safety, 2023, 249:114339.

DOI

[60]
ZHAO L, DENG J, XU Z J, et al. Mitigation of aflatoxin B1 hepatoxicity by dietary hedyotis diffusa is associated with activation of NRF2/ARE signaling in chicks[J]. Antioxidants, 2021, 10(6):878.

DOI

文章导航

/