综述

乳酸对炎症的调节作用研究进展

  • 涂瑾秋 ,
  • 陈代文 ,
  • 郑萍 , *
展开
  • 四川农业大学动物营养研究所,教育部、农业农村部、四川省抗病营养重点实验室,成都 611130
*郑 萍,教授,博士生导师,E-mail:

涂瑾秋(1999—),女,河南郑州人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Office editor: 陈鑫

收稿日期: 2023-02-07

  网络出版日期: 2023-08-10

基金资助

国家自然科学基金(31972577)

四川省重大科技专项(2021ZDZX0009)

Research Progress in Regulation of Inflammation by Lactic Acid

  • TU Jinqiu ,
  • CHEN Daiwen ,
  • ZHENG Ping , *
Expand
  • Key Laboratory of Disease-Resistant Nutrition of Sichuan Province, Ministry of Education, Ministry of Agriculture and Rural Affairs, Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
*professor, E-mail:

Received date: 2023-02-07

  Online published: 2023-08-10

摘要

乳酸一直被认为是葡萄糖代谢的副产物,但自从发现乳酸作为信号分子在细胞内和细胞外具有信号转导功能,并在调节各种生理和病理过程中发挥重要作用以来,这种观点发生了变化。近年来国内外的研究积累了大量数据,证明乳酸对炎症过程具有调控作用,但目前是否可以将乳酸视为促炎介质或抗炎介质,尚无定论。在急性炎症性疾病中,乳酸主要通过激活G蛋白偶联受体81(GPR81)及单羧酸转运载体(MCT)、促进巨噬细胞极化、充当组蛋白去乙酰化酶(HDAC)抑制剂等发挥抗炎作用;在慢性炎症性疾病中,乳酸通过激活G蛋白偶联受体4(GPR4)、调节T细胞运动、诱导细胞外信号调节激酶(ERK)和蛋白激酶B(AKT)通路等发挥促炎作用。本文总结了乳酸在炎症过程中的多效性作用的最新研究进展和乳酸信号传导机制,以期为今后炎症调控的研究提供参考。

本文引用格式

涂瑾秋 , 陈代文 , 郑萍 . 乳酸对炎症的调节作用研究进展[J]. 动物营养学报, 2023 , 35(8) : 4860 -4871 . DOI: 10.12418/CJAN2023.451

Abstract

Lactic acid has long been considered a waste product of glucose metabolism, but this view has changed since the discovery that lactic acid acts as a signaling molecule with signal transduction functions both inside and outside the cell and plays an important role in regulating various biological and pathological processes. In recent years, a large amount of evidence has been accumulated in vivo and in vitro to prove that lactic acid plays a regulatory role in the inflammatory process. However, whether lactic acid can be regarded as a pro-inflammatory or anti-inflammatory medium is still uncertain. In acute inflammatory diseases, lactic acid plays an anti-inflammatory role mainly through G protein-coupled receptors (GPR)81, monocarboxylic acid transporter (MCTs), promoting macrophage polarization and acting as an histone deacetylase inhibitor. Lactic acid plays a pro-inflammatory role in chronic inflammation through GPR4, regulation of T cell motility, and induction of extracellular regulated protein kinases 1/2 (ERK1/2)and protein kinase B (AKT)pathways. In this paper, we summarized the recent progress of the polytope of lactic acid in the inflammatory process and the signal transduction mechanism of lactic acid, so as to provide reference for future research.

乳酸自1780年被发现以来,就一直被认为是糖酵解代谢的副产物,并发现其具有多种有害作用[1]。直到乳酸穿梭概念的提出[2],才对乳酸是代谢的副产物和引起酸中毒的问题提出质疑,对乳酸在新陈代谢中的理解发生了改变。乳酸在细胞间和细胞内穿梭描述了乳酸在传递氧化和糖异生底物递送以及细胞信号传导中的作用[2]。乳酸穿梭在生理中起着至关重要的作用,包括作为重要的能量来源、糖异生前体、系统代谢协调的重要调节剂和信号分子[3]。乳酸穿梭是一种正常现象,存在于各种细胞、组织和器官,包括肌肉、心脏和肝脏,现在已经扩展到精子、脂肪组织、大脑和肺,在癌组织中也有类似的代谢过程。一些研究表明,乳酸不仅是中间代谢产物,它还在炎症反应过程中具有免疫调节的多效性作用,可以在肠道和全身各个部位形成先天性和适应性免疫反应,在稳态和炎症条件下控制免疫细胞的分化和功能,能够调节免疫性炎症反应,促进血管生成和纤维化[4-5]。乳酸的作用将取决于代谢状态、细胞表型以及其作用的受体,并且会受到乳酸本身和其他营养素的浓度以及微环境中酸度等因素的影响。例如,乳酸可以抑制肠道炎症[6]、子宫炎症[7]、肝炎和急性胰腺炎[8]等,但在滑膜样细胞中可以促进促炎因子的释放[9]。乳酸作为新型多效性信号分子,在体内发挥的作用机制也不尽相同,可能通过激活G蛋白偶联受体(G protein-coupled receptors,GPRs)、巨噬细胞极化或者Toll样受体4(Toll-like receptor 4,TLR4)信号通路来调节炎症反应。本文总结了乳酸在炎症过程中的多效性作用的最新研究进展和乳酸信号传导机制,希望为炎症调控研究和应用提供参考。

1 乳酸生成以及在体内的代谢

1.1 乳酸生成

乳酸(2-羟基丙酸)分子式为C3H6O3,是一种羟基羧酸,在哺乳动物中存在2种立体异构体,分别是左旋(L-乳酸)和右旋(D-乳酸)形式,而L-乳酸是厌氧糖酵解过程中产生的主要形式[10-11]。动物组织中几乎只产生L-乳酸,而微生物可产生D-乳酸或DL-乳酸[12]
乳酸主要产生于脑、骨骼肌、肠等组织细胞和红细胞,也产生于肺、内脏器官的细胞和应激状态下的白细胞[13]。乳酸来源于糖酵解,在糖酵解过程中,葡萄糖代谢为2个丙酮酸分子[14]。在氧气存在下,丙酮酸在三羧酸循环(tricarboxylic acid cycle,TCA)中被丙酮酸脱氢酶(pyruvate dehydroge,PDH)转化为乙酰辅酶A[2]。在缺氧条件下[15],通过乳酸脱氢酶(lactate dehydrogenase,LDHs)将丙酮酸还原为乳酸[2]。然而,癌细胞和增殖细胞即使在充足的氧气下也可以将大多数葡萄糖分子转化为乳酸,这被称为“有氧糖酵解”或“Warburg效应”[15]

1.2 乳酸转运

1.2.1 乳酸转运蛋白

乳酸是通过特定的pH敏感性转运蛋白穿过细胞膜的,单羧酸转运载体(MCTs)是一类将乳酸、丙酮酸、酮体以及短链脂肪酸等单羧酸类化合物快速转运通过细胞膜的蛋白家族[16]。糖酵解反应增加而产生的过量乳酸是通过MCTs转运来防止细胞内乳酸积累。单羧酸转运蛋白包括MCT1(SLC16A1)、MCT2(SLC16A7)、MCT3(SLC16A8)和MCT4(SLC16A3)和2个钠偶联的乳酸共转运蛋白(SLC5A12、SLC5A8)[17-18]。在生理条件下,MCT1~4的协同活性促进乳酸在糖酵解和使用乳酸的细胞之间穿梭,这是乳酸在不同组织内维持稳态的关键因素[19]。MCT1分布广泛,参与乳酸的输入,MCT4在高度糖酵解的细胞或组织中表达,主要参与乳酸的输出,输出还是输入最终取决于乳酸的梯度[17]。乳酸在牛的瘤胃上皮细胞[20]、牛中性粒细胞[21]和成纤维样滑膜细胞(fibroblast-like synoviocytes,FLS)中都依赖于MCT亚型发挥作用。在哺乳动物中,MCT1~4参与嗜中性粒细胞[21]、心脏、骨骼肌和红细胞的乳酸摄取,在肝脏和肾脏中通过其进行糖异生[22]。乳酸转运过程中,首先是游离质子与MCT的结合,随后与乳酸结合,乳酸在转运体内发生构象变化后与质子一起在膜的另一侧排出,MCT去质子化时会发生构象变化,并在下一次转运时提前恢复初始结构[23]。除MCTs外,其他2个溶质载体家族,即SLC5A8和SLC5A12也可以介导乳酸的跨膜转运,它们通过钠离子偶联转运机制转运乳酸[17]

1.2.2 乳酸受体

乳酸在细胞外的信号转导功能是由GPR的激活介导的[24]。乳酸可以通过GPR132受体[25]和GPR81[26]发出信号。L-乳酸是GPR81的天然配体,GPR81目前也被命名为羟羧酸受体1(hydroxycarboxylic acid receptor 1, HCAR1)[26]HCA1主要在脂肪组织中表达,其他组织和器官也有表达但较少,除了分布于质膜外,HCA1还存在于细胞内的线粒体上,HCA1介导的乳酸信号可能影响脂质代谢、神经元兴奋性变化、细胞发育和存活以及炎症调节等[27]。GPR81主要通过Gai信号,抑制环磷酸腺苷(cyclic adenosine monophosphate,cAMP)-蛋白激酶A(protein kinase A,PKA)途径[28],因此,乳酸作为GPR81激动剂在参与调节各种组织细胞的生理病理过程中发挥着重要的信号分子转导特性。而GPR132在多种组织,例如肺、胃肠道以及免疫细胞中表达,尤其是巨噬细胞。在酸性肿瘤环境中作为关键的乳酸巨噬细胞传感器,GPR132缺失会减少巨噬细胞向M2表型极化[29]。因此,通过GPRs的乳酸信号传导是一种重要的机制,曾经被认为是代谢废物的乳酸在健康和疾病中介导了关键的生物反应。

1.3 乳酸代谢

由于缺氧或有氧糖酵解,乳酸在细胞内的细胞质中产生,并在细胞外空间中积累。而乳酸在人体中的积累比其他分子燃料的积累更危险,且血清乳酸含量的升高会导致乳酸酸中毒[30]。因此,乳酸需要从组织和循环中快速代谢。乳酸在pH为7.35~7.45时几乎全部解离为乳酸盐和氢离子,主要在骨骼肌、肝脏及肾脏等部位被清除[31]。一部分乳酸通过肝脏及骨骼肌细胞中的糖异生途径转化成葡萄糖或糖原以补充机体血糖消耗及糖原储备,再通过丙酮酸脱氢酶催化丙酮酸的形成[32],丙酮酸以乙酰辅酶A的形式进入TCA[33]。另一部分通过乳酸脱氢酶可逆地催化丙酮酸转化为乳酸或将乳酸转化为丙酮酸[34]。丙酮酸进入线粒体后被彻底氧化生成二氧化碳和水,并产生三磷酸腺苷(adenosine triphosphate,ATP)参与细胞和生物体的各项生命活动。可见,乳酸代谢在维持机体正常生命活动过程中具有极其重要的意义。LDH是由2种亚基组成的四聚酶,即LDH-a和LDH-b。LDH-a对丙酮酸具有更高的亲和力,并优先催化丙酮酸为L-乳酸,而LDH-b对乳酸具有更高的亲和力,并将L-乳酸转化为丙酮酸,使细胞可以将乳酸作为氧化代谢的营养物质来源,从而促进了氧化代谢[35]。乳酸的LD立体异构体均通过乳酸脱氢酶产生并代谢为丙酮酸。但是LDH具有立体选择性,D-乳酸的产生和代谢需要D-LDH,而L-乳酸需要L-LDH。L-LDH催化L-乳酸和丙酮酸之间的双向反应,然而D-LDH催化从D-乳酸到丙酮酸的单向转化[36]L-乳酸通过L-LDH在细胞质和线粒体内迅速代谢为丙酮酸,而D-乳酸的代谢仅通过D-LDH在线粒体的内侧发生[37-38]。在动物生产中,奶牛瘤胃内乳酸的代谢途径主要有3条,分别为琥珀酸途径、乙酸和丁酸途径、丙烯酸途径[39]

2 乳酸对炎症的调节作用

炎症反应几乎涉及所有器官的各种急性和慢性疾病,而炎症的特征便是局部组织中的乳酸堆积,积累的乳酸可作为细胞信号分子激活一些途径而调节炎症过程,包括控制细胞因子、趋化因子、黏附因子、免疫反应和代谢反应相关的酶。但是,乳酸在炎症中的作用取决于乳酸产生和代谢的途径,乳酸对炎症的影响与细胞表型、代谢状态及病理过程密切相关。例如:乳酸在T细胞中起到完全不同的作用,CD4+T细胞中乳酸促进白细胞介素-2(interleukin-2,IL-2)的释放,降低调节性T细胞的炎症功能,促进辅助性T细胞17(T helper cell 17, Th17)释放炎性因子;而在CD8+T细胞中乳酸含量降低其增殖脱颗粒,减少其释放细胞炎性物质[40]

2.1 乳酸对急性炎症的抑制作用

急性炎症对宿主具有保护作用,可迅速恢复组织稳态,加强宿主对感染性或无菌性损伤的防御[41]。在炎症开始时,核中性粒细胞迅速积聚以保护宿主。紧接着,单核细胞和巨噬细胞浸润到发炎部位,最终导致组织区域白细胞聚集,并通过吞噬作用清除凋亡的核中性粒细胞和细胞碎片,进而缩短炎症进程[42]。最近的研究证明,乳酸对急性炎症有抑制作用,对急性器官损伤患者来说,乳酸可能是潜在的免疫调节疗法。研究表明,乳酸降低了免疫性肝炎小鼠的炎症和器官损伤,并减轻了急性胰腺炎和急性肝脏损伤的严重程度[8]。对于过敏性疾病和哮喘来说,肥大细胞起着哨兵作用,对细菌、病毒和寄生虫病原体迅速做出反应[43],肥大细胞对过敏原的有害反应是过敏性疾病的核心[44]。体外和体内研究发现,乳酸抑制肥大细胞的炎性细胞因子的产生和脱颗粒。在硫酸葡聚糖钠(dextran sulfate sodium salt,DSS)诱导的仔猪结肠炎模型中,王铭育[45]的研究表明,饲粮补充2%液体乳酸可以降低DSS诱导的炎症对肠道的损伤,从而缓解DSS诱导的结肠炎造成的仔猪免疫系统紊乱、氧化应激和生长发育迟缓,具有改善结肠炎仔猪肠道菌群、促进结肠炎仔猪炎症恢复等作用。Iraporda等[6]研究指出,在三硝基苯磺酸(trinitro-benzene-sulfonic acid,TNBS)诱导的结肠炎小鼠模型中,直肠内灌注乳酸可以防止组织病理学损伤、细菌移位和血清中白细胞介素-6(interleukin,IL-6)含量的升高。Zhou等[46]的研究表明,在DSS诱导的结肠炎小鼠模型中,乳酸促进结肠组织中巨噬细胞的表型转化,抑制TLR4/核因子-κB(nuclear factor-kappa B,NF-κB)信号通路的激活,促进肠黏膜屏障的修复,并在炎症中保护肠组织,降低血清促炎因子水平,增加抗炎因子的表达,减轻结肠炎的严重程度。乳酸还可以通过抑制局部胃炎症反应来减轻胃黏膜损伤,介导胃的保护作用[47]。因此,在胃肠道炎症性疾病中,乳酸可被用作预防和治疗手段之一。脂多糖(lipopolysaccharide,LPS)可以激活巨噬细胞中IL-6和白细胞介素-12P40(interleukin-12P40,IL-12P40)和TNF受体超家族蛋白的表达,Errea等[48]研究表明,使用乳酸可以调节细胞代谢活性,并以剂量依赖性方式消除IL-6等促炎性因子的产生。对于妇科疾病,在女性生殖道中,乳酸会灭活潜在的致病病毒和细菌,并抑制可能损害胎儿发育的炎症[49-50]。分娩过程中产生的高水平乳酸作用于子宫GPR81,可下调关键的促炎基因表达[7]。此外,另一项试验表明,乳酸可以预防脓毒症大鼠的心脏功能障碍,改善微循环,减轻炎症[51-52]。在动脉粥样硬化中,乳酸介导的GPR81激活可显著降低氧化应激并下调炎性因子的表达[53]。在一项由败血症引起的心脏炎症的研究中发现,高渗乳酸钠可以预防心脏功能障碍,减轻败血症时的肠系膜微循环和毛细血管破裂,同时减轻心脏炎症[52]。在小鼠青光眼模型中,当GPR81被足够的乳酸激活时,青光眼视网膜和视神经的炎症减少[54]。综上所述,乳酸可以作为一种调节和治疗炎症的有效药物,且前景广阔。

2.2 乳酸对慢性炎症的促进作用

与急性炎症不同,慢性炎症部位的特征是单核细胞如淋巴细胞、巨噬细胞和浆细胞的浸润[55]。此外已经发现,乳酸通过驱动CD4+T细胞免疫功能障碍和增加炎性细胞因子的产生来促进慢性炎症,它的积累导致类风湿性关节炎(rheumatoid arthritis,RA)等慢性炎症反应恶化[41,56]。研究报道,乳酸可能在免疫介导的慢性炎症性疾病(immune- mediated inflammatory diseases,IMIDs),如RA中充当炎症信号[57-58]。实际上,已经在患有RA的牛滑液中观察到D-乳酸含量显著增加,牛滑液中D-乳酸含量升高导致关节炎,该试验表明D-乳酸盐对牛FLS具有促炎作用,证实了D-乳酸盐在牛滑膜炎和跛行发病中的作用[9]。Haas等[40]的研究证实了乳酸会加剧炎症反应,在腹膜炎的体内模型中,靶向抑制乳酸转运蛋白会促进T细胞从发炎的组织中释放,并且D-乳酸已被证明对牛中性粒细胞具有促炎作用[22]。乳酸促进慢性炎症而慢性炎症会诱导癌症产生、生长和转移。1863年现代病理学之父Virchow观察到肿瘤组织中有白细胞的存在,第1次把炎症和癌症联系在一起[59]。在癌症中,当肿瘤快速增长所需的能量需求超过能量供应时,所需能量便依赖于有氧糖酵解(或Warburg效应),而有氧糖酵解产生大量乳酸,导致细胞微环境酸化,乳酸作为Warburg效应的代谢底物,随着癌细胞增殖而增加[60]。研究表明,与低浓度乳酸肿瘤患者相比,组织标本显示乳酸浓度升高的宫颈癌和头颈部鳞状细胞癌(squamous cell carcinoma of head and neck,SCCHN)患者转移扩散率较高,存活期显著缩短[61]。炎症是诱发原发性肝癌的最主要因素,乳酸介导的肿瘤微环境(tumor micro- environment, TME)酸化可诱导肝脏固有自然杀伤(natural killer,NK)细胞凋亡,促进慢性肝炎,导致转移性癌细胞在肝脏中存活[62]。在前列腺癌(prostatic carcinoma,PCa)模型中,癌相关成纤维细胞(cancer associated fibroblast,CAF)释放的乳酸损害肿瘤免疫监视和诱导局部炎症反应产生[63]。越来越多的研究表明,由癌细胞产生的乳酸通过调节TME包括细胞侵袭、血管生成、信号传导、转移生长和逃避免疫监视等而加速肿瘤生长和转移等[64-65]。乳酸促进肿瘤生长的机制是通过激活白细胞介素-23(interleukin-23,IL-23)/白细胞介素-17(interleukin-17,IL-17)通路,诱导局部炎症反应和增加血管生成[66]。所以,乳酸可能通过增加炎性因子的产生和调节TME来促进慢性炎症。

3 乳酸调节炎症的作用机制及信号通路

3.1 乳酸的抗炎作用机制

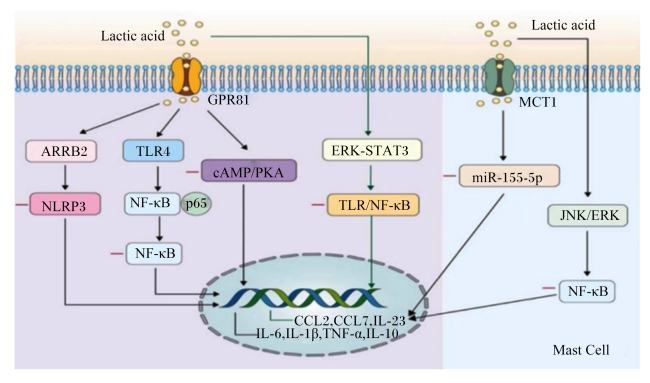
乳酸抗炎作用的可能通过以下4个途径:1)乳酸可能通过乳酸受体GPR81发挥抗炎作用;2)乳酸可能通过巨噬细胞组蛋白进行乳酸酸化和抑制TLR信号转导来促进巨噬细胞的极化,将巨噬细胞从炎症表型转化为抗炎表型;3)乳酸可能依赖MCTs抑制肥大细胞促炎因子的释放;4)乳酸充当组蛋白去乙酰化酶抑制剂发挥抗炎作用(图1)。这些发现进一步支持了乳酸可以作为治疗炎症新方法的观点。因此,靶向乳酸信号通路和巨噬细胞极化可能是治疗炎症的潜在新治疗靶点。
图1 乳酸抗炎作用机制

Lactic acid:乳酸;ARRB2:抑制蛋白β2重组蛋白recombinant arrestin beta 2;NLRP3:炎性小体3 recombinant NLR family, pyrin domain containing protein 3;TLR4:Toll样受体4 Toll-like receptor 4;NF-κB:核因子-κB nuclear factor kappa-B;cAMP:环磷酸腺苷cyclic adenosine monophosphate;PKA:蛋白激酶protein kinase A;ERK-STAT3:细胞外信号调节激酶-信号转导和转录激活因子3 extracellular regulated protein kinases-signal transducer and activator of transcription 3;JNK/ERK:氨基末端激酶/细胞外信号调节激酶c-Jun N-terminal kinase/extracellular regulated protein kinases; CCL2:趋化因子2 C-C motif chemokine 2;CCL7:趋化因子7 C-C motif chemokine 7;IL-6:白细胞介素-6 interleukin-6;IL-1β:白细胞介素-1β interleukin-1β;IL-10:白细胞介素-10 interleukin-10;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-23:白细胞介素-23 interleukin-23。

Fig.1 Lactic acid anti-inflammatory mechanism

3.1.1 乳酸通过GPR81发挥抗炎作用

研究结果表明,GPR81作为乳酸内源受体参与炎症反应。抗炎机制与TLR4介导的白细胞介素-1β(interleukin-1β,IL-1β)的释放、NF-κB的激活和半胱氨酸蛋白酶-1(caspase-1)的裂解有关[8]。在巨噬细胞和单核细胞中乳酸信号传导通过GPR81及其抑制蛋白β2重组蛋白(recombinant arrestin beta 2,ARRB2)[67],来抑制NLRP3炎症小体(recombinant NLR family, pyrin domain containing protein 3,NLRP3),减少IL-1β介导的促炎反应。在DSS诱导的结肠炎小鼠模型中,MCTs介导的乳酸转运增加,进而抑制巨噬细胞中炎症小体NLRP3及其下游caspase-1途径的过度激活来发挥抗炎作用[68]。在调节肠道炎症免疫应答中,GPR81通过抑制促炎细胞因子,例如:IL-6、IL-12P40、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、IL-1β和诱导抗炎细胞因子白细胞介素-10(interleukin-10,IL-10)的分泌来维持肠道稳态[69]。除了免疫调节外,在小鼠限饲试验期间,乳酸可以刺激肠细胞增殖,保护小鼠肠道屏障,并降低肠上皮细胞的TLR表达和IL-1β依赖性NF-κB活化[70]。这些结果表明,乳酸可能是通过抗炎和修复作用来维持肠黏膜健康的。乳酸还可以通过GPR81抑制肝脏、脾脏和胰腺巨噬细胞的炎症信号通路,一方面GPR81表达的增加抑制NLRP3炎症小体的释放,以降低IL-1β介导的炎症;另一方面GPR81抑制NF-κB p65亚基的磷酸化进而降低NF-κB的转录活性;GPR81的激活也导致cAMP和PKA信号的下调[8]。乳酸通过激活单核细胞和巨噬细胞中的这种机制可以减少胰腺炎和肝炎模型中的炎症[71]。此外,在LPS刺激的巨噬细胞中,乳酸通过GPR81途径显著降低TNF-α和IL-6的产生以及NF-κB和yes相关蛋白(yes-associated protein,YAP)的活化和核易位,YAP是LPS刺激巨噬细胞产生NF-κB和TNF-α所必需的[72-73]

3.1.2 乳酸诱导巨噬细胞极化发挥抗炎作用

研究发现,乳酸在调节巨噬细胞极化方面发挥了重要作用,乳酸能抑制TLR介导的单核巨噬细胞活化,延缓AKT的磷酸化和核因子-κB抑制因子α(IκBα)的降解,并抑制细胞因子TNF-α、IL-23和趋化因子2(C-C motif chemokine 2,CCL2)、趋化因子7(C-C motif chemokine 7,CCL7)的分泌[72]。乳酸可作为信号分子诱导巨噬细胞的极化,乳酸抑制炎性巨噬细胞M1表达,促进抗炎巨噬细胞M2表达,释放更多的抗炎因子[74]。一方面,外源乳酸在M1巨噬细胞中通过组蛋白H3的乳酸化、乙酰化和表观遗传机制的代谢重编程来诱导产生M2表型[75-76];另一方面,乳酸通过细胞外信号调节激酶(extracellular signal-regulated kinase,ERK)-信号转导和转录激活因子3(signal transducer and activator of transcription 3,STAT3)信号通路[77]以及缺氧诱导因子1α(hypoxia-inducible factor 1α,HIF1α)介导的乳酸和缺氧组合将M1表型的巨噬细胞转变为M2表型[77],以减轻炎症和器官损伤、抑制TLR4/NF-κB信号通路的激活、降低血清促炎因子水平、增加抗炎因子的表达、促进肠黏膜屏障的修复、减轻结肠炎的严重程度。因此,促进M2巨噬细胞极化提供了一种治疗炎症相关疾病的新型方法,例如局部炎症[78]、肺部炎症[79]、肝炎[80]。因此,乳酸对巨噬细胞极化在炎症性疾病的发生和发展中起着重要作用。

3.1.3 乳酸通过HIF1α/转化生长因子-β(transforming growth factor-β,TGF-β)发挥抗炎作用

乳酸在过敏性和自身免疫性疾病中起着重要的生理学作用。肥大细胞是骨髓谱系中独特的组织驻留免疫细胞,其与过敏性和自身免疫性疾病的发病机理有关[81]。已经证明,乳酸通过MCT1抑制免疫球蛋白E(immunoglobulin E,IgE)介导的肥大细胞中炎性细胞因子的产生和脱颗粒,从而限制了肥大细胞介导的炎症[82]。Abebayehu等[83]证明,乳酸通过MCT1和pH依赖性方式增强了HIF1α表达,降低了促炎miR-155-5p,miR-155-5p被认为是各种系统中的促炎剂。因此乳酸在白细胞介素-33(interleukin-33,IL-33)激活的肥大细胞中抑制了促炎因子的产生,从而抑制了肥大细胞介导的炎症。此外,研究发现,乳酸在肥大细胞中表现出的抗炎作用是通过降低TGF-β激活的激酶和c-Jun氨基末端激酶(c-Jun N-terminal kinase,JNK)/ERK的磷酸化来抑制NF-κB通路[82]。研究发现,乳酸可能有助于抑制哮喘期间肥大细胞介导的炎症,并通过MAS相关G蛋白偶联受体X2(mouse Mas-related G-protein coupled receptor member X2,MRGPRX2)影响肥大细胞活化来降低癌症期间的免疫反应[84]

3.1.4 乳酸通过充当HDAC抑制剂来发挥抗炎作用

体外和体内数据表明,HDAC制剂可能是抗炎的,因为它们通过非组蛋白的乙酰化作用于细胞死亡[85]。有证据表明,细胞内乳酸充当HDAC的内源性抑制剂[86]。HDAC抑制剂表现出抗炎作用,并具有改善免疫细胞介导的炎症性疾病作用[85]。此外,有必要进行深入研究以了解乳酸是否通过抑制HDAC来调节树突状细胞和巨噬细胞中的基因转录。

3.2 乳酸在慢性炎症中的促炎作用机制

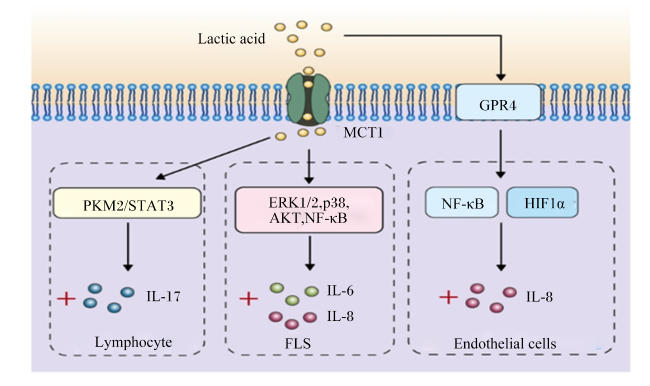
研究发现,乳酸在慢性炎症中起着促炎作用,其可能作用机制包括:1)乳酸调节T细胞运动来促进炎症;2)在FLS中,乳酸通过MCT1诱导ERK1/2、AKT等信号通路来增加促炎因子的产生;3)乳酸通过GPR4来促进炎症;4)乳酸与NDRG家族成员3(NDRG family member 3,NDRG3)结合,导致RaF蛋白激酶(RaF protein kinase)-ERK信号通路的激活(图2)。
图2 乳酸促炎作用机制

Lactic acid:乳酸;Lymphocyte:淋巴细胞;FLS:成纤维细胞样滑膜细胞;Endothelial cells:内皮细胞;PKM2:M2型丙酮酸激酶pyruvate kinase isozyme type M2;STAT3:信号转导和转录激活因子3 signal transducer and activator of transcription 3;ERK1/2:细胞外调节蛋白激酶1/2 extracellular regulated protein kinases 1/2; AKT:蛋白激酶B protein kinase B;NF-κB:核因子-κB nuclear factor kappa-B;HIF1α:缺氧诱导因子-1的调节亚基hypoxia-inducible factor 1α;GPR4:G蛋白偶联受体4 G protein-coupled receptor 4;IL-17:白细胞介素-17 interleukin-17;IL-8:白细胞介素-8 interleukin-8;IL-6:白细胞介素-6 interleukin-6。

Fig.2 Lactic acid proinflammatory mechanism

3.2.1 乳酸通过阻碍T细胞移动发挥促炎作用

乳酸驱动T细胞免疫功能障碍导致炎性因子的产生。例如,在类风湿关节炎中,乳酸充当炎症的放大器,使CD4+T细胞上调。通过抑制CD4+T细胞中的乳酸钠转运蛋白Slc5a12和CD8+T细胞中的乳酸转运蛋白Slc16a1使T细胞滞留在炎症中,阻碍T细胞移动,促进炎性因子的产生,降低CD4+T和CD8+T细胞溶解能力,使T细胞分化为Th-17亚群,延长慢性炎症[87-88]。乳酸通过丙酮酸激酶M2亚型(pyruvate kinase isozyme type M2,PKM2)信号转导和STAT3信号传导促进炎性因子IL-17的产生[56]。这些研究表明了乳酸或乳酸钠调节T细胞功能的复杂机制,但是其病理意义和分子机制需要进一步研究。因此通过靶向代谢途径或乳酸转运蛋白可能是治疗慢性炎症性疾病的新疗法。

3.2.2 乳酸通过激活丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)和ERK1/2途径发挥促炎作用

细胞水平的L-乳酸可通过MAPK和NF-κB途径的细胞内信号传导促进FLS中促炎细胞因子的产生[89]。此外已经发现,TNF-α诱导的类风湿关节炎患者FLS中的IL-6和IL-8的产生依赖于L-乳酸水平[89]。这表明关节中的乳酸可以激活FLS中的细胞内信号传导,促进关节炎症过程中促炎标志物的表达。动物生产中,已有试验证明,D-乳酸和TNF-α在牛FLS中以NF-κB依赖性方式增加IL-8和IL-6的表达和分泌[9],且D-乳酸已被证明对牛中性粒细胞具有促炎作用,因为它诱导基质金属蛋白酶-9(matrix metalloproteinase-9,MMP-9)的释放,降低L-选择素的表达[21]。总而言之,在FLS中,D-乳酸通过MCT1诱导ERK1/2、p38、AKT和NF-κB信号通路,从而促进IL-6和IL-8的表达和分泌。

3.2.3 乳酸通过激活GPR4和NF-κB途径发挥促炎作用

乳酸可以激活内皮细胞中的信号通路并调节炎症反应。在内皮细胞中,乳酸通过MCT1诱导NF-κB和HIF1α的激活[90]。乳酸通过磷酸化和降解IκBα,激活NF-κB来调节多种炎症基因,例如IL-8。并且内皮细胞表达GPR4,其是促炎性GPCR,一方面通过细胞外酸化激活GPR4,另一方面通过内皮细胞中的NF-κB途径增加趋化因子、细胞因子和黏附分子的表达[91]

3.2.4 乳酸通过与NDRG3结合来发挥促炎作用

由乳酸介导的关于长期缺氧的反应与氧调节蛋白NDRG3有关。NDRG3为长时间缺氧反应的氧和乳酸盐依赖性调节提供了关键的遗传元件[92]。NDRG3在常氧中以脯氨酸羟化酶2(proline hydroxylase 2,PHD2)/希佩尔-林道抑癌(von Hippel Lindau disease,VHL)基因依赖性方式降解,类似于HIF1α。然而,在长时间的缺氧条件下,NDRG3可以通过与乳酸结合而免受降解。所以NDRG3水平升高,将导致RAF-ERK信号通路的激活,该信号通路控制缺氧相关的病理生理反应,包括炎症、癌症和血管生成等。所以乳酸可以通过与NDRG3结合的方式来促进炎症。

4 小结

乳酸不仅是机体代谢副产物,而且对机体免疫反应具有调节作用。在急性炎症或慢性炎症条件下,乳酸发挥着完全不同的抗炎或促炎作用。作为多效性生理信号传导剂,乳酸通过调节多种转录因子和信号转导途径来发挥作用。例如,乳酸可以直接通过GPRs和MCTs发挥其作用,也可以通过对细胞外酸化激活NF-κB、ERK/STAT3等信号通路来间接介导其作用,从而激活受体和释放细胞因子来促进或干扰炎症过程。总之,乳酸促进肿瘤生长和慢性炎症。相反,乳酸可能限制肥大细胞和巨噬细胞介导的子宫炎症、肝炎、胰腺炎、急性器官损伤和肠道炎症等。动物生产实践中,在DSS诱导的仔猪结肠炎模型中,通过饲粮中添加乳酸有效缓解和改善了肠道炎症损伤,这意味着乳酸可以作为一种新型的营养干预手段用于治疗炎症性疾病,并且将会是感染性疾病的潜在治疗靶点,这为未来对畜禽炎症的研究提供试验依据。
但是,目前对于乳酸在炎症中发挥作用还有很多不清楚的地方有待进一步研究:1)相关疾病包括病毒感染、肿瘤和炎症的乳酸水平;2)相关疾病中MCTsGPR81的表达;3)乳酸积累和酸中毒激活免疫或炎症途径的机制;4)抑制乳酸病理作用的有效药物。因此,进一步了解乳酸信号传导的途径和作用机制,包括免疫细胞中乳酸代谢和炎症的表观遗传调节等信号通路,将会为人类和动物疾病的药理学方法研究提供新的思路。
[1]
FERGUSON B S, ROGATZKI M J, GOODWIN M L, et al. Lactate metabolism:historical.context,prior misinterpretations,and current understanding[J]. European Journal of Applied Physiology, 2018, 118(4):691-728.

DOI

[2]
BROOKS G A. Lactate as a fulcrum of metabolism[J]. Redox Biology, 2020, 35:101454.

DOI

[3]
CERTO M, TSAI C H, PUCINO V, et al. Lactate modulation of immune responses in inflammatory versus tumour microenvironments[J]. Nature Reviews Immunology, 2021, 21(3):151-161.

DOI

[4]
KIRAN D, BASARABA R J. Lactate metabolism and signaling in tuberculosis and cancer:a comparative review[J]. Frontiers in Cellular and Infection Microbiology, 2021, 11:624607.

DOI

[5]
PUCINO V, BOMBARDIERI M, PITZALIS C, et al. Lactate at the crossroads of metabolism,inflammation,and autoimmunity[J]. European Journal of Immunology, 2017, 47(1):14-21.

DOI

[6]
IRAPORDA C, ROMANIN D E, BENGOA A A, et al. Local treatment with lactate prevents intestinal inflammation in the TNBS-induced colitis model[J]. Frontiers in Immunology, 2016, 7:651.

DOI PMID

[7]
MADAAN A, NADEAU-VALLÉE M, RIVERA J C, et al. Lactate produced during labor modulates uterine inflammation via GPR81 (HCA1)[J]. American Journal of Obstetrics and Gynecology, 2017, 216(1):60.

[8]
HOQUE R, FAROOQ A, GHANI A, et al. Lactate reduces liver and pancreatic injury in Toll-like receptor- and inflammasome-mediated inflammation via GPR81-mediated suppression of innate immunity[J]. Gastroenterology, 2014, 146(7):1763-1774.

DOI PMID

[9]
MANOSALVA C, QUIROGA J, TEUBER S, et al. D-lactate increases cytokine production in bovine fibroblast-like synoviocytes via MCT1 uptake and the MAPK,PI3K/Akt,and NFκB pathways[J]. Animals, 2020, 10(11):2105.

DOI

[10]
CONNOR H, WOODS H F, LEDINGHAM J G. Comparison of the kinetics and utilisation of D(-)- and L(+)-sodium lactate in normal man[J]. Annals of Nutrition and Metabolism, 1983, 27(6):481-487.

DOI

[11]
TALASNIEMI J P, PENNANEN S, SAVOLAINEN H, et al. Analytical investigation:assay of D-lactate in diabetic plasma and urine[J]. Clinical Biochemistry, 2008, 41(13):1099-1103.

DOI

[12]
陈为, 韩宛娜, 刘铎, 等. 乳酸的研究进展[J]. 吉林农业科技学院学报, 2022, 31(3):19-22.

CHEN W, HAN W N, LIU D, et al. Research progress of lactic acid[J]. Journal of Jilin Agricultural Science and Technology College, 2022, 31(3):19-22. (in Chinese)

[13]
REDDY A J, LAM S W, BAUER S R, et al. Lactic acidosis:clinical implications and management strategies[J]. Cleveland Clinic Journal of Medicine, 2015, 82(9):615-624.

DOI

[14]
MA L N, HUANG X B, MUYAYALO K P, et al. Lactic acid:a novel signaling molecule in early pregnancy?[J]. Frontiers in Immunology, 2020, 11:279.

DOI

[15]
WARBURG O. On the origin of cancer cells[J]. Science, 1956, 123(3191):309-314.

DOI PMID

[16]
曾军英, 韩雪峰, 谭支良. 单羧酸转运蛋白家族及其生物学功能[J]. 生命的化学, 2008, 28(4):404-407.

ZENG J Y, HAN X F, TAN Z L. Monocarboxylate transporter family and their biological function[J]. Chemistry of Life, 2008, 28(4):404-407. (in Chinese)

[17]
HALESTRAP A P. The monocarboxylate transporter family-structure and functional characterization[J]. IUBMB Life, 2012, 64(1):1-9.

DOI

[18]
SRINIVAS S R, GOPAL E, ZHUANG L N, et al. Cloning and functional identification of slc5a12 as a sodium-coupled low-affinity transporter for monocarboxylates (SMCT2)[J]. Biochemical Journal, 2005, 392(Pt.3):655-664.

DOI

[19]
HALESTRAP A P. The SLC16 gene family-structure,role and regulation in health and disease[J]. Molecular Aspects of Medicine, 2013, 34(2/3):337-349.

DOI

[20]
GRAHAM C, GATHERAR I, HASLAM I, et al. Expression and localization of monocarboxylate transporters and sodium/proton exchangers in bovine rumen epithelium[J]. American Journal of Physiology-Regulatory,Integrative and Comparative Physiology, 2007, 292(2):R997-R1007.

[21]
ALARCOÓN P, MANOSALVA C, CONEJEROS I, et al. D(-)lactic acid-induced adhesion of bovine neutrophils onto endothelial cells is dependent on neutrophils extracellular traps formation and CD11b expression[J]. Frontiers in Immunology, 2017, 8:975.

DOI

[22]
HALESTRAP A P, MEREDITH D. The SLC16 gene family-from monocarboxylate transporters (MCTs) to aromatic amino acid transporters and beyond[J]. Pflügers Archiv, 2004, 447(5):619-628.

DOI

[23]
LI X L, YANG Y Y, ZHANG B, et al. Lactate metabolism in human health and disease[J]. Signal Transduction and Targeted Therapy, 2022, 7(1):305.

DOI PMID

[24]
KHATIB-MASSALHA E, BHATTACHARYA S, MASSALHA H, et al. Lactate released by inflammatory bone marrow neutrophils induces their mobilization via endothelial GPR81 signaling[J]. Nature Communications, 2020, 11(1):3547.

DOI

[25]
JUSTUS C R, DONG L X, YANG L V. Acidic tumor microenvironment and pH-sensing G protein-coupled receptors[J]. Frontiers in Physiology, 2013, 4:354.

DOI PMID

[26]
WANDERS D, GRAFF E C, JUDD R L. Effects of high fat diet on GPR109A and GPR81 gene expression[J]. Biochemical and Biophysical Research Communications, 2012, 425(2):278-283.

DOI

[27]
帅念念, 周佳秀, 田绍文, 等. 乳酸/HCAR1信号系统的生物学功能研究进展[J]. 临床与病理杂志, 2021, 41(8):1925-1931.

SHUAI N N, ZHOU J X, TIAN S W, et al. Research progress in the biological function of lactate/HCAR1 signaling system[J]. Journal of Clinical and Pathological Research, 2021, 41(8):1925-1931. (in Chinese)

[28]
AHMED K, TUNARU S, TANG C, et al. An autocrine lactate loop mediates insulin-dependent inhibition of lipolysis through GPR81[J]. Cell Metabolism, 2010, 11(4):311-319.

DOI PMID

[29]
CHEN P W, ZUO H, XIONG H, et al. Gpr132 sensing of lactate mediates tumor-macrophage interplay to promote breast cancer metastasis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2017, 114(3):580-585.

DOI PMID

[30]
BENNIS Y, BODEAU S, BATTEUX B, et al. A study of associations between plasma metformin concentration,lactic acidosis,and mortality in an emergency hospitalization context[J]. Critical Care Medicine, 2020, 48(12):e1194-e1202.

DOI

[31]
LEVY B. Lactate and shock state:the metabolic view[J]. Current Opinion in Critical Care, 2006, 12(4):315-321.

DOI

[32]
JHA M K, LEE I K, SUK K. Metabolic reprogramming by the pyruvate dehydrogenase kinase-lactic acid axis:linking metabolism and diverse neuro-pathophysiologies[J]. Neuroscience & Biobehavioral Reviews, 2016, 68:1-19.

DOI

[33]
SOREZE Y, BOUTRON A, HABAROU F, et al. Mutations in human lipoyltransferase gene LIPT1 cause a leigh disease with secondary deficiency for pyruvate and alpha-ketoglutarate dehydrogenase[J]. Orphanet Journal of Rare Diseases, 2013, 8:192.

DOI

[34]
BROWN T P, GANAPATHY V. Lactate/GPR81 signaling and proton motive force in cancer:role in angiogenesis,immune escape,nutrition,and Warburg phenomenon[J]. Pharmacology & Therapeutics, 2020, 206:107451.

[35]
DOHERTY J R, CLEVELAND J L. Targeting lactate metabolism for cancer therapeutics[J]. The Journal of Clinical Investigation, 2013, 123(9):3685-3692.

DOI

[36]
LEVITT M D, LEVITT D G. Quantitative evaluation of D-lactate pathophysiology:new insights into the mechanisms involved and the many areas in need of further investigation[J]. Clinical and Experimental Gastroenterology, 2020, 13:321-337.

DOI

[37]
KORNBERG M D. The immunologic Warburg effect:evidence and therapeutic opportunities in autoimmunity[J]. Wiley Interdisciplinary Reviews:Systems Biology and Medicine, 2020, 12(5):e1486.

[38]
PÅLSSON-MCDERMOTT E M, O’NEILL L A J. Targeting immunometabolism as an anti-inflammatory strategy[J]. Cell Research, 2020, 30(4):300-314.

DOI

[39]
夏光亮, 赵芳芳, 王洪荣. 反刍动物瘤胃内乳酸代谢与瘤胃酸中毒调控的研究进展[J]. 动物营养学报, 2019, 31(4):1511-1517.

XIA G L, ZHAO F F, WANG H G. Advances in lactic acids metabolism in rumen and regulation of ruminal acidosis for ruminants[J]. Chinese Journal of Animal Nutrition, 2019, 31(4):1511-1517. (in Chinese)

[40]
HAAS R, SMITH J, ROCHER-ROS V, et al. Lactate regulates metabolic and pro-inflammatory circuits in control of T cell migration and effector functions[J]. PLoS Biology, 2015, 13(7):e1002202.

DOI

[41]
TANG S, WAN M, HUANG W, et al. Maresins:specialized proresolving lipid mediators and their potential role in inflammatory-related diseases[J]. Mediators of Inflammation, 2018, 2018:2380319.

[42]
MEDZHITOV R. Inflammation 2010:new adventures of an old flame[J]. Cell, 2010, 140(6):771-776.

DOI

[43]
GALLI S J, BORREGAARD N, WYNN T A. Phenotypic and functional plasticity of cells of innate immunity:macrophages,mast cells and neutrophils[J]. Nature Immunology, 2011, 12(11):1035-1044.

DOI

[44]
AMIN K. The role of mast cells in allergic inflammation[J]. Respiratory Medicine, 2012, 106(1):9-14.

DOI

[45]
王铭育. 乳酸对DSS诱导的仔猪结肠炎的缓解作用研究[D].硕士学位论文. 雅安: 四川农业大学, 2022.

WANG M Y. The alleviate effect of lactate on DSS-induced colitis of piglets[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2022. (in Chinese)

[46]
ZHOU H C, YU W W, YAN X Y, et al. Lactate-driven macrophage polarization in the inflammatory microenvironment alleviates intestinal inflammation[J]. Frontiers in Immunology, 2022, 13:1013686.

DOI

[47]
HUANG Y P, ZHANG J L, DONG R J, et al. Lactate as a metabolite from probiotic Lactobacilli mitigates ethanol-induced gastric mucosal injury:an in vivo study[J]. BMC Complementary Medicine and Therapies, 2021, 21(1):26.

DOI

[48]
ERREA A, CAYET D, MARCHETTI P, et al. Lactate inhibits the pro-inflammatory response and metabolic reprogramming in murine macrophages in a GPR81-independent manner[J]. PLoS One, 2016, 11(11):e0163694.

DOI

[49]
TYSSEN D, WANG Y Y, HAYWARD J A, et al. Anti-HIV-1 activity of lactic acid in human cervicovaginal fluid[J]. mSphere, 2018, 3(4):e00055-18.

[50]
WITKIN S S. Lactic acid alleviates stress:good for female genital tract homeostasis,bad for protection against malignancy[J]. Cell Stress and Chaperones, 2018, 23(3):297-302.

DOI

[51]
CASLIN H L, ABEBAYEHU D, ABDUL QAYUM A, et al. Lactic acid inhibits lipopolysaccharide-induced mast cell function by limiting glycolysis and ATP availability[J]. The Journal of Immunology, 2019, 203(2):453-464.

DOI

[52]
BESNIER E, COQUEREL D, KOUADRI G, et al. Hypertonic sodium lactate improves microcirculation,cardiac function,and inflammation in a rat model of sepsis[J]. Critical Care, 2020, 24(1):354.

DOI

[53]
SUN Z R, HAN Y, SONG S B, et al. Activation of GPR81 by lactate inhibits oscillatory shear stress-induced endothelial inflammation by activating the expression of KLF2[J]. IUBMB Life, 2019, 71(12):2010-2019.

DOI PMID

[54]
HARUN-OR-RASHID M, INMAN D M. Reduced AMPK activation and increased HCAR activation drive anti-inflammatory response and neuroprotection in glaucoma[J]. Journal of Neuroinflammation, 2018, 15(1):313.

DOI

[55]
RAJENDRAN P, CHEN Y F, CHEN Y F, et al. The multifaceted link between inflammation and human diseases[J]. Journal of Cellular Physiology, 2018, 233(9):6458-6471.

DOI PMID

[56]
PUCINO V, CERTO M, BULUSU V, et al. Lactate buildup at the site of chronic inflammation promotes disease by inducing CD4+ T cell metabolic rewiring[J]. Cell Metabolism, 2019, 30(6):1055-1074.e8.

DOI

[57]
YANG X Y, ZHENG K D, LIN K, et al. Energy metabolism disorder as a contributing factor of rheumatoid arthritis:a comparative proteomic and metabolomic study[J]. PLoS One, 2015, 10(7):e0132695.

DOI

[58]
LI C, CHEN B, FANG Z, et al. Metabolomics in the development and progression of rheumatoid arthritis:a systematic review[J]. Joint Bone Spine, 2020, 87(5):425-430.

DOI

[59]
张玉勤. 炎症与癌症[J]. 国外医学情报, 2002(1):12-17

ZHANG Y Q. Inflammation and cancer[J]. Foreign Medical Information, 2002(1):12-17. (in Chinese)

[60]
LI L, LI L J, LI W, et al. TAp73-induced phosphofructokinase-1 transcription promotes the Warburg effect and enhances cell proliferation[J]. Nature Communications, 2018, 9(1):4683.

DOI PMID

[61]
APOSTOLOVA P, PEARCE E L. Lactic acid and lactate:revisiting the physiological roles in the tumor microenvironment[J]. Trends in Immunology, 2022, 43(12):969-977.

DOI

[62]
HARMON C, ROBINSON M W, HAND F, et al. Lactate-mediated acidification of tumor microenvironment induces apoptosis of liver-resident NK cells in colorectal liver metastasis[J]. Cancer Immunology Research, 2019, 7(2):335-346.

DOI PMID

[63]
COMITO G, ISCARO A, BACCI M, et al. Lactate modulates CD4+ T-cell polarization and induces an immunosuppressive environment,which sustains prostate carcinoma progression via TLR8/miR21 axis[J]. Oncogene, 2019, 38(19):3681-3695.

DOI

[64]
LU W, KANG Y B. Epithelial-mesenchymal plasticity in cancer progression and metastasis[J]. Developmental Cell, 2019, 49(3):361-374.

DOI PMID

[65]
IPPOLITO L, MORANDI A, GIANNONI E, et al. Lactate:a metabolic driver in the tumour landscape[J]. Trends in Biochemical Sciences, 2019, 44(2):153-166.

DOI

[66]
SHIME H, YABU M, AKAZAWA T, et al. Tumor-secreted lactic acid promotes IL-23/IL-17 proinflammatory pathway[J]. The Journal of Immunology, 2008, 180(11):7175-7183.

DOI

[67]
LERCH M M, CONWELL D L, MAYERLE J. The anti-inflammasome effect of lactate and the lactate GPR81-receptor in pancreatic and liver inflammation[J]. Gastroenterology, 2014, 146(7):1602-1605.

DOI PMID

[68]
SUN S Y, XU X X, LIANG L, et al. Lactic acid-producing probiotic saccharomyces cerevisiae attenuates ulcerative colitis via suppressing macrophage pyroptosis and modulating gut microbiota[J]. Frontiers in Immunology, 2021, 12:777665.

DOI

[69]
RANGANATHAN P, SHANMUGAM A, SWAFFORD D, et al. GPR81,a cell-surface receptor for lactate,regulates intestinal homeostasis and protects mice from experimental colitis[J]. The Journal of Immunology, 2018, 200(5):1781-1789.

[70]
OKADA T, FUKUDA S, HASE K, et al. Microbiota-derived lactate accelerates colon epithelial cell turnover in starvation-refed mice[J]. Nature Communication, 2013, 4:1654.

DOI

[71]
ROLAND C L, ARUMUGAM T, DENG D F, et al. Cell surface lactate receptor GPR81 is crucial for cancer cell survival[J]. Cancer Research, 2014, 74(18):5301-5310.

DOI PMID

[72]
PETER K, REHLI M, SINGER K, et al. Lactic acid delays the inflammatory response of human monocytes[J]. Biochemical and Biophysical Research Communications, 2015, 457(3):412-418.

DOI PMID

[73]
YANG K, XU J J, FAN M, et al. Lactate suppresses macrophage pro-inflammatory response to LPS stimulation by inhibition of YAP and NF-κB activation via GPR81-mediated signaling[J]. Frontiers in Immunology, 2020, 11:587913.

DOI

[74]
ZHOU H C, YAN X Y, YU W W, et al. Lactic acid in macrophage polarization:the significant role in inflammation and cancer[J]. International Reviews of Immunology, 2022, 41(1):4-18.

DOI

[75]
ZHANG D, TANG Z Y, HUANG H, et al. Metabolic regulation of gene expression by histone lactylation[J]. Nature, 2019, 574(7779):575-580.

DOI

[76]
MU X M, SHI W, XU Y, et al. Tumor-derived lactate induces M2 macrophage polarization via the activation of the ERK/STAT3 signaling pathway in breast cancer[J]. Cell Cycle, 2018, 17(4):428-438.

DOI PMID

[77]
ZHAO Y, ZHAO B, WANG X, et al. Macrophage transcriptome modification induced by hypoxia and lactate[J]. Experimental and Therapeutic Medicine, 2019, 18(6):4811-4819.

DOI PMID

[78]
KIM H, KIM B H, HUH B K, et al. Surgical suture releasing macrophage-targeted drug-loaded nanoparticles for an enhanced anti-inflammatory effect[J]. Biomaterials Science, 2017, 5(8):1670-1677.

DOI PMID

[79]
MCMAHAN R S, BIRKLAND T P, SMIGIEL K S, et al. Stromelysin-2 (MMP10) moderates inflammation by controlling macrophage activation[J]. The Journal of Immunology, 2016, 197(3):899-909.

DOI

[80]
MINUTTI C M, JACKSON-JONES L H, GARCÍA-FOJEDA B, et al. Local amplifiers of IL-4Rα-mediated macrophage activation promote repair in lung and liver[J]. Science, 2017, 356(6342):1076-1080.

DOI PMID

[81]
KOLKHIR P, ELIEH-ALI-KOMI D, METZ M, et al. Understanding human mast cells:lesson from therapies for allergic and non-allergic diseases[J]. Nature Reviews Immunology, 2022, 22(5):294-308.

DOI

[82]
ABEBAYEHU D, SPENCE A J, CASLIN H, et al. Lactic acid suppresses IgE-mediated mast cell function in vitro and in vivo[J]. Cell Immunology, 2019, 341:103918.

DOI

[83]
ABEBAYEHU D, SPENCE A J, QAYUM A A, et al. Lactic acid suppresses IL-33-mediated mast cell inflammatory responses via hypoxia-inducible factor-1α-dependent miR-155 suppression[J]. The Journal of Immunology, 2016, 197(7):2909-2917.

DOI

[84]
SYED M, KAMMALA A K, CALLAHAN B, et al. Lactic acid suppresses MRGPRX2 mediated mast cell responses[J]. Cell Immunology, 2021, 368:104422.

DOI

[85]
ADCOCK I M. HDAC inhibitors as anti-inflammatory agents[J]. British Journal of Pharmacology, 2007, 150(7):829-831.

DOI PMID

[86]
LATHAM T, MACKAY L, SPROUL D, et al. Lactate,a product of glycolytic metabolism,inhibits histone deacetylase activity and promotes changes in gene expression[J]. Nucleic Acids Research, 2012, 40(11):4794-4803.

DOI

[87]
GERRIETS V A, RATHMELL J C. Metabolic pathways in T cell fate and function[J]. Trends in Immunology, 2012, 33(4):168-173.

DOI PMID

[88]
HAAS R, MARELLI-BERG F, MAURO C. In the eye of the storm:T cell behavior in the inflammatory microenvironment[J]. American Journal of Clinical and Experimental Immunology, 2013, 2(2):146-155.

[89]
ZOU Y Y, ZENG S, HUANG M C, et al. Inhibition of 6-phosphofructo-2-kinase suppresses fibroblast-like synoviocytes-mediated synovial inflammation and joint destruction in rheumatoid arthritis[J]. British Journal of Pharmacology, 2017, 174(9):893-908.

DOI PMID

[90]
VÉGRAN F, BOIDOT R, MICHIELS C, et al. Lactate influx through the endothelial cell monocarboxylate transporter MCT1 supports an NF-κB/IL-8 pathway that drives tumor angiogenesis[J]. Cancer Research, 2011, 71(7):2550-2560.

DOI PMID

[91]
KREWSON E A, SANDERLIN E J, MARIE M A, et al. The proton-sensing GPR4 receptor regulates paracellular gap formation and permeability of vascular endothelial cells[J]. Science, 2020, 23(2):100848.

[92]
LEE D C, SOHN H A, PARK Z Y, et al. A lactate-induced response to hypoxia[J]. Cell, 2015, 161(3):595-609.

DOI PMID

文章导航

/