研究论文

饲粮添加硝酸钠和单宁对奶山羊产奶性能、甲烷排放和瘤胃微生物区系的影响

  • 任格晗 ,
  • 刘宁 ,
  • 张瑞 ,
  • 雷新建 ,
  • 姚军虎 ,
  • 蔡传江 ,
  • 徐秀容 , *
展开
  • 西北农林科技大学动物科技学院,杨凌 712100
*徐秀容,副教授,博士生导师,E-mail:

任格晗(1998—),女,陕西富平人,硕士研究生,动物营养与饲料科学专业。E-mail:

Office editor: 陈鑫

收稿日期: 2023-02-07

  网络出版日期: 2023-08-10

基金资助

陕西省重点研发计划(2017ZDXM-NY-086)

陕西省技术创新引导计划(基金)资助项目(2022QFY-05)

Effects of Dietary Supplementation with Sodium Nitrate and Tannin on Milk Production Performance, Methane Emission and Rumen Microbiota in Dairy Goats

  • REN Gehan ,
  • LIU Ning ,
  • ZHANG Rui ,
  • LEI Xinjian ,
  • YAO Junhu ,
  • CAI Chuanjiang ,
  • XU Xiurong , *
Expand
  • College of Animal Science and Technology, Northwest A & F University, Yangling 712100, China
*associate professor, E-mail:

Received date: 2023-02-07

  Online published: 2023-08-10

摘要

本试验旨在探索饲粮中适量添加硝酸钠(SN)和单宁(TN)对奶山羊产奶性能、瘤胃发酵、甲烷排放和瘤胃微生物区系的影响。选取24只体重和产奶性能相近的健康关中奶山羊,随机分为4组,每组6个重复,每个重复1只羊。对照组饲喂基础饲粮,SN组在基础饲粮中添加1.5% SN,TN组在基础饲粮中添加3.0% TN,混合组在基础饲粮中添加1.5% SN和3.0% TN。试验期21 d。结果表明:1)与对照组相比,单独或混合添加1.5% SN和3.0% TN对奶山羊的产奶量无显著影响(P>0.05)。2)与对照组相比,饲粮添加1.5% SN可显著提高瘤胃pH(P<0.05);饲粮添加3.0% TN可显著降低瘤胃异丁酸含量(P<0.05),显著提高丁酸含量(P<0.05),且有降低瘤胃氨态氮含量的趋势(P=0.057);饲粮添加1.5% SN和3.0% TN对奶山羊瘤胃发酵性能无显著交互作用(P>0.05)。3)与对照组相比,饲粮添加1.5% SN显著提高了奶山羊血清高铁血红蛋白(MetHb)含量(P<0.05),极显著提高了血清葡萄糖含量(P<0.01),极显著降低了血清亚硝酸盐(Nirite)含量(P<0.01),有提高血清高铁血红蛋白/血红蛋白(MetHb/Hb)的趋势(P=0.084);饲粮添加3.0% TN显著降低了奶山羊血清Nirite含量(P<0.05),极显著降低了血清葡萄糖含量(P<0.01),极显著提高了MetHb含量和MetHb/Hb(P<0.01);二者混合添加对血清Hb、MetHb含量和MetHb/Hb有极显著的交互作用(P<0.01)。4)与对照组相比,单独或混合添加1.5% SN和3.0% TN显著降低奶山羊的甲烷排放比例(P<0.05)。5)与对照组相比,饲粮添加1.5% SN可改变奶山羊瘤胃古菌结构,显著降低奶山羊瘤胃产甲烷菌中甲烷短杆菌属(Methanobrevibacter)的相对丰度(P<0.05),极显著提高念珠菌甲烷原体(Candidatus Methanoplasma)的相对丰度(P<0.01)。综上所述,单独或联合添加1.5% SN和3.0% TN均可降低奶山羊甲烷排放比例,但不改变奶山羊产奶性能,不会导致乳和血清中Nirite积累,同时MetHb/Hb远低于20%,不会影响动物健康。饲粮添加1.5% SN可以通过改变奶山羊瘤胃古菌群落结构,降低甲烷短杆菌属相对丰度,从而降低甲烷排放。

本文引用格式

任格晗 , 刘宁 , 张瑞 , 雷新建 , 姚军虎 , 蔡传江 , 徐秀容 . 饲粮添加硝酸钠和单宁对奶山羊产奶性能、甲烷排放和瘤胃微生物区系的影响[J]. 动物营养学报, 2023 , 35(8) : 5284 -5296 . DOI: 10.12418/CJAN2023.488

Abstract

The objective of this study was to investigate the effects of sodium nitrate (SN) and tannin (TN) on milk production performance, rumen fermentation, methane emission and rumen microbiota of dairy goats. Twenty-four healthy Guanzhong dairy goats with similar body weight and milk production performance were selected and randomly divided into four groups, and six replicates for each group and one sheep for each replicate. The control group was fed a basal diet; the SN group was fed the basal diet with 1.5% SN; the TN group was fed the basal diet with 3.0% TN; and the mixed group was fed the basal diet with 1.5% SN and 3.0% TN. The test period was 21 d. The results showed as follows: 1) compared with control group, supplementation of 1.5% SN and 3.0% TN alone or in combination had no significant effect on milk yield of dairy goats (P>0.05). 2) Compared with control group, dietary 1.5% SN significantly increased rumen pH (P<0.05); dietary 3.0% TN significantly decreased isobutyric acid content and increased butyric acid content in rumen (P<0.05), and tended to decrease rumen ammoniacal nitrogen content (P=0.057); there was no significant interaction between 1.5% SN and 3.0% TN supplementation on rumen fermentation performance of dairy goats (P>0.05). 3) Compared with control group, dietary 1.5% SN significantly increased serum methemoglobin (MetHb) content of dairy goats (P<0.05), significantly increased serum glucose content (P<0.01), and significantly decreased serum Nirite content (P<0.01), had a trend of increasing serum MetHb/Hb (P=0.084); dietary 3.0% TN significantly decreased serum Nirite content of dairy goats (P<0.05), significantly decreased serum glucose content (P<0.01), and significantly increased serum MetHb content and MetHb/Hb (P<0.01); there were very significant interaction effect on serum Hb, MetHb contents and MetHb/Hb (P<0.01). 4) Compared with control group, adding 1.5% SN and 3.0% TN alone or in combination significantly decreased the methane emissions ratio of dairy goats (P<0.05). 5) Compared with control group, diet supplemented with 1.5% SN could change rumen archaea structure, and significantly reduce the relative abundance of Methanobrevibacter in rumen of dairy goats (P<0.05), significantly increased the relative abundance of Candidatus Methanoplasma (P<0.01). In conclusion, adding 1.5% SN and 3.0% TN alone or in combination can reduce the methane emission ratio of dairy goats, but does not change the milk production performance of dairy goats, does not lead to the accumulation of Nitrite in milk and serum, and MetHb/Hb is far lower than 20%, which does not affect animal health. Diet supplemented with 1.5% SN can change rumen archaea community structure, reduce the relative abundance of Methanobrevibacter, and thus reduce methane emission of dairy goats.

反刍家畜甲烷(CH4)排放不仅会导致饲料能量损失,CH4还是造成温室效应的主要气体之一。因此,减少CH4排放是保证反刍动物生产可持续性的重要目标。一些产甲烷古菌在反刍动物瘤胃中定居,在厌氧环境中可将氢气(H2)、二氧化碳(CO2)或甲基类化合物等底物转化成CH4,同时产生ATP。单宁(tannin,TN)是一种常见的植物次生代谢物,可以通过产甲烷古生菌及抑制瘤胃纤维消化抑制瘤胃产CH4[1],还能在瘤胃中与消化酶和蛋白质结合形成沉淀,减少蛋白质在瘤胃内降解,增加小肠对氮的利用率,从而促进反刍动物生产性能[2]。硝酸盐通过提高瘤胃氧化还原电位,竞争氢原子,减少合成CH4所需要的氢,抑制瘤胃产甲烷微生物,从而改变瘤胃微生物结构与发酵类型,降低CH4排放[3-4]。饲粮添加适量硝酸钠(sodium nitrate,SN)可提高水牛瘤胃挥发性脂肪酸(VFA)产量和古菌多样性,但对产奶量及与生物氢化相关的瘤胃产甲烷菌群数量无不利影响[5]。目前,国内外关于SN和TN对奶山羊产奶性能、瘤胃微生物区系等影响的研究多是在饲粮中单独添加或与其他化合物混合添加开展的,而SN和TN的混合添加是否会产生积极影响少有报道。鉴于此,本试验在饲粮中添加适量SN和TN,以探究其对奶山羊产奶性能、血清生化指标、瘤胃发酵、CH4排放及瘤胃微生物区系的影响,并探索二者是否存在交互作用,旨在为SN和TN在奶山羊养殖中的合理应用提供理论依据,为减少反刍动物生产中的CH4排放提供科学依据。

1 材料与方法

1.1 试验设计

选取24只健康、体重均匀、产奶性能相近的奶山羊,随机分为4组,每组6个重复,每个重复1只羊。对照组饲喂基础饲粮,SN组饲喂在基础饲粮中添加1.5% SN的试验饲粮,TN组饲喂在基础饲粮中添加3.0% TN的试验饲粮,混合组饲喂在基础饲粮中添加1.5% SN和3.0% TN的试验饲粮。SN的添加量参考Zhou等[6]的研究结果,TN的添加量参考Yanza等[7]的研究结果。试验期21 d。

1.2 试验饲粮与饲养管理

本试验于西北农林科技大学畜牧教学试验基地开展,试验羊只饲养管理参照基地规程进行。试验基础饲粮参考《山羊饲养标准》[8]及关中奶山羊泌乳期实际需要进行配制,其组成及营养水平见表1。试验饲粮以全混合日粮(TMR)形式饲喂,SN和TN与基础饲粮均匀混合后饲喂奶山羊。所有试验羊分栏单独饲喂,每天分别于07:00和15:00定量各饲喂1次,自由饮水。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
玉米青贮Corn silage 21.3
苜蓿干草Alfalfa hay 30.8
麸皮Wheat bran 8.2
玉米粉Corn meal 22.9
豆粕Soybean meal 6.6
棉籽粕Cottonseed meal 5.0
玉米胚芽粕Corn germ meal 3.2
磷酸氢钙CaHPO4 0.5
碳酸钙CaCO3 0.5
小苏打NaHCO3 0.3
氯化钠NaCl 0.5
预混料Premix1) 0.2
合计Total 100.0
营养水平Nutrient levels2)
干物质DM 47.0
粗蛋白质CP 18.6
粗脂肪EE 4.1
粗灰分Ash 6.7
中性洗涤纤维NDF 36.1
酸性洗涤纤维ADF 20.4

1)每千克预混料含有 One kg premix contained the following: VA 120 000 IU,VD3 45 000 IU,VE 800 mg,烟酸 nicotinic acid 450 mg,Cu 650 mg,Fe 430 mg,Mn 600 mg,Zn 950 mg,I 45 mg,Se 30 mg,Co 20 mg。

2)实测值 Measured values。

1.3 检测指标及方法

1.3.1 产奶量及乳成分分析

每日晨饲后,用手推式集奶器收集羊奶,记录产奶量,并测定乳中尿素氮(UN)和亚硝酸盐(Nirite)含量。

1.3.2 血液采集及血清生化指标测定

试验结束当天晨饲前,将每只奶山羊绑定后从颈静脉采集约10 mL血液样品,分装在乙二胺四乙酸二钾(EDTA-K2)抗凝管中,4 ℃ 3 000 r/min离心10 min,分离得到血清,将血清以200 μL/管进行分装后,一部分-20 ℃保存,用于后续的生化指标测定;一部分4 ℃保存,用于血红蛋白(Hb)和高铁血红蛋白(MetHb)含量测定。
血清样品送至上海派森诺生物科技有限公司,检测血清UN、葡萄糖(GLU)含量;使用酶联免疫吸附法测定血清中Nirite、Hb及MetHb含量等。

1.3.3 瘤胃液采集及瘤胃发酵参数的测定

试验结束第22天07:00结束进食和饮水,使用瘤胃液采集管空腹采集试验羊的瘤胃液,丢弃前50 mL的瘤胃液,以防止唾液干扰。继续采集并迅速用4层无菌脱脂纱布过滤后置于含有1%硫酸50 mL离心管中,立即用便携式pH计测定瘤胃液pH后分装于5 mL冻存管,一部分置于-20 ℃冰箱保存,用于测定瘤胃氨态氮(NH3-N)及挥发性脂肪酸(VFA)含量;另一部分置于-80 ℃冰箱保存备用。其中,瘤胃NH3-N含量的测定参考冯宗慈等[9]的方法,利用比色法测定;瘤胃VFA的含量测定采用气相色谱仪器(Agilent 7890B GC System,Hewlett Packard公司,美国)测定。

1.3.4 瘤胃微生物区系的测定

使用DNA提取试剂盒(E.Z.N.A.® Soil DNA Kit,D5625-01, Omega BIO-TEK,美国)提取奶山羊瘤胃液样本中微生物的总DNA。针对16S rDNA的V3~V4区,使用16S rRNA通用引物515F(5'-GTGCCAGCMGCCGCGGTAA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')设计合成特异引物进行扩增;利用Arch344(5'-ACGGGGYGCAGCAGGCGCGA-3')和Arch806 (5'-GGACTACSGGGTATCTAAT-3')引物扩增了古菌16S rRNA基因的V3~V4区。利用Illumina MiSeq平台(Biozeron,中国)对扩增的DNA样本进行分析。
利用Uparse聚类算法,按97%的序列相似度,对操作分类单元(OTU)数进行归类。利用香农指数、辛普森指数、Chao1指数和Ace指数对样品的α多样性进行评估。基于Unweighted-UniFrac距离的主坐标分析(PCoA)对样本的β多样性进行计算。利用R包中的ANOSIM函数进行排列多变量方差分析,比较整个试验期间各组之间微生物组成的统计差异。

1.4 统计分析

试验数据采用SAS 9.4软件进行双因素方差分析(two-way ANOVA),统计模型为是否添加1.5% SN和3.0% TN以及二者的交互作用(SN×TN)。试验结果用平均值和均值标准误(SEM)表示。P<0.05为差异显著,P<0.01为差异极显著,0.05≤P<0.10为有差异显著趋势。

2 结果

2.1 产奶量与乳成分

表2所示,各组奶山羊的产奶量随时间推移逐渐下降。与对照组相比,饲粮添加1.5% SN对奶山羊产奶量无显著影响(P>0.05),但显著降低了奶山羊乳中UN和Nirite含量(P<0.05);饲粮添加3.0% TN对奶山羊的产奶量和乳中UN及Nirite含量均无显著影响(P>0.05);饲粮添加1.5% SN和3.0% TN对奶山羊的产奶量和乳中UN及Nirite含量无显著交互作用(P>0.05)。
表2 饲粮添加SN和TN对奶山羊产奶量和乳成分的影响

Table 2 Effects of dietary addition of SN and TN on milk yield and composition of dairy goats

项目
Items
组别Groups SEM PP-value
对照
Control
硝酸钠
SN
单宁
TN
混合
Mix
硝酸钠
SN
单宁
TN
硝酸钠×
单宁
SN×TN
产奶量Milk yield/(kg/d)
第1~7天Days 1 to 7 0.69 0.73 0.64 0.58 0.081 0.904 0.249 0.565
第8~14天Days 8 to 14 0.53 0.61 0.55 0.54 0.068 0.600 0.714 0.534
第15~21天Days 15 to 21 0.49 0.60 0.56 0.54 0.062 0.459 0.965 0.364
尿素氮UN/(μmol/L) 292.89a 272.95b 289.04ab 284.96ab 5.420 0.038 0.461 0.159
亚硝酸盐Nirite/(μg/mL) 15.74ab 14.92b 16.54a 15.17b 0.404 0.013 0.210 0.509

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

No letter or the same letter on the shoulder label of peer data indicates no significant difference (P>0.05), different lowercase letters indicate significant difference (P<0.05), and different uppercase letters indicate very significant difference (P<0.01). The same as below.

2.2 血清生化指标

表3所示,与对照组相比,饲粮添加1.5% SN显著提高了奶山羊血清MetHb含量(P<0.05),极显著提高了血清GLU含量(P<0.01),极显著降低了Nirite含量(P<0.01),有提高MetHb/Hb的趋势(P=0.084);饲粮添加3.0% TN显著降低了奶山羊血清Nirite含量(P<0.05),极显著降低了GLU含量(P<0.01),极显著提高了MetHb
含量和MetHb/Hb(P<0.01);饲粮添加1.5% SN和3.0% TN对奶山羊血清GLU含量有显著的交互作用(P<0.05),对血清Hb、MetHb含量和MetHb/Hb有极显著的交互作用(P<0.01),表现为混合添加1.5% SN和3.0% TN提高了奶山羊血清GLU、MetHb含量和MetHb/Hb,但与对照组相比,血清Hb含量并未显著降低(P>0.05)。
表3 饲粮添加SN和TN对奶山羊血清生化指标的影响

Table 3 Effects of dietary addition of SN and TN on serum biochemical indices of dairy goats

项目
Items
组别Groups SEM PP-value
对照
Control
硝酸钠
SN
单宁
TN
混合
Mix
硝酸钠
SN
单宁
TN
硝酸钠×
单宁
SN×TN
尿素氮UN/(μmol/mL) 262.37 273.17 273.50 272.40 7.763 0.539 0.512 0.452
葡萄糖GLU/(μmol/L) 377.36Cc 492.12Aa 369.25Cc 424.44Bb 12.540 <0.001 0.007 0.028
亚硝酸盐Nirite/(μg/mL) 17.51Aa 14.30Bb 16.84Aa 13.82Bb 0.273 <0.001 0.049 0.734
血红蛋白Hb/(μg/mL) 83.81a 77.15b 76.32b 80.53ab 1.748 0.492 0.254 0.006
高铁血红蛋白MetHb/(ng/mL) 52.88Cc 61.87Bb 70.43Aa 67.54Aa 1.358 0.036 <0.001 <0.001
高铁血红蛋白/血红蛋白
MetHb/Hb/×10-3
0.63Cc 0.80Bb 0.93Aa 0.84Bb 0.025 0.084 <0.001 <0.001

2.3 瘤胃发酵

表4所示,与对照组相比,饲粮添加1.5% SN显著提高了瘤胃pH(P<0.05);饲粮添加3.0% TN显著降低了瘤胃异丁酸含量(P<0.05),显著提高了丁酸含量(P<0.05),有降低瘤胃NH3-N含量的趋势(P=0.057);饲粮添加1.5% SN和3.0% TN对奶山羊瘤胃发酵无显著交互作用(P>0.05)。
表4 饲粮添加SN和TN对奶山羊瘤胃发酵的影响

Table 4 Effects of dietary addition of SN and TN on rumen fermentation of dairy goats

项目
Items
组别Groups SEM PP-value
对照
Control
硝酸钠
SN
单宁
TN
混合
Mix
硝酸钠
SN
单宁
TN
硝酸钠×
单宁
SN×TN
pH 6.33b 6.58ab 6.49ab 6.69a 0.096 0.018 0.132 0.791
氨态氮NH3-N/(mg/mL) 10.68 7.44 6.87 6.26 1.236 0.134 0.057 0.299
总挥发性脂肪酸Total VFA/(mmol/L) 141.47 133.46 149.65 135.46 10.161 0.288 0.622 0.764
乙酸Acetate/(mmol/L) 79.31 74.65 73.87 72.03 6.641 0.630 0.551 0.834
丙酸Propionate/(mmol/L) 28.96 29.17 34.58 28.56 3.095 0.359 0.428 0.325
异丁酸Isobutyrate/(mmol/L) 3.73a 3.49ab 2.89ab 3.02b 0.308 0.870 0.047 0.553
丁酸Butyrate/(mmol/L) 25.19ab 22.27b 33.94a 27.93ab 3.287 0.190 0.040 0.643
异戊酸Isopentanoate/(mmol/L) 2.11 1.96 1.69 1.79 0.218 0.916 0.193 0.557
戊酸Pentanoate/(mmol/L) 2.17 1.92 2.68 2.13 0.249 0.121 0.164 0.555

2.4 瘤胃微生物

2.4.1 饲粮添加SN和TN对奶山羊瘤胃微生物α多样性的影响

表5所示,与对照组相比,饲粮添加1.5% SN和3.0% TN对奶山羊瘤胃细菌与古菌的OTU数量、Chao1指数、香农指数和辛普森指数均无显著影响(P>0.05)。
表5 饲粮添加SN和TN对奶山羊瘤胃微生物群落α多样性的影响

Table 5 Effects of dietary addition of SN and TN on α diversity of rumen microbial community of dairy goats

项目
Items
组别Groups SEM PP-value
对照
Control
硝酸钠
SN
单宁
TN
混合
Mix
硝酸钠
SN
单宁
TN
硝酸钠×
单宁
SN×TN
细菌Bacteria
操作分类单元数量Number of OTU 1 946.30 1 945.65 1 606.72 1 941.08 202.280 0.419 0.405 0.417
Chao1指数Chao1 index 2 182.78 2 196.95 1 829.17 2 270.11 225.939 0.326 0.542 0.356
辛普森指数Simpson index 0.99 0.99 0.98 0.99 0.005 0.274 0.946 0.656
香农指数Shannon index 8.74 8.69 8.43 8.90 0.377 0.580 0.894 0.499
古菌Archaea
操作分类单元数量Number of OTU 414.33 460.68 391.12 392.95 26.651 0.377 0.103 0.414
Chao1指数Chao1 index 427.05 476.32 408.81 403.87 27.203 0.425 0.111 0.331
辛普森指数Simpson index 0.88 0.90 0.88 0.88 0.018 0.621 0.537 0.427
香农指数Shannon index 4.52 5.07 4.55 4.56 0.237 0.252 0.327 0.259

2.4.2 饲粮添加SN和TN对奶山羊瘤胃微生物β多样性的影响

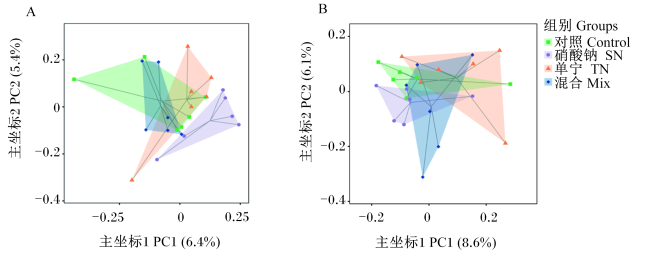
OTU水平上的PCoA显示了不同组的群落结构的变化。如图1所示,SN组的瘤胃微古菌群落与对照组明显分离,表明SN组和对照组古菌结构存在明显差异。
图1 奶山羊饲粮添加SN和TN下瘤胃古菌(A)和细菌(B)群落的主坐标分析

Fig.1 Principal coordinate analysis of rumen archaea (A) and bacterial (B) communities under dietary addition of SN and TN on dairy goats

2.4.3 饲粮添加SN和TN对奶山羊瘤胃细菌组成的影响

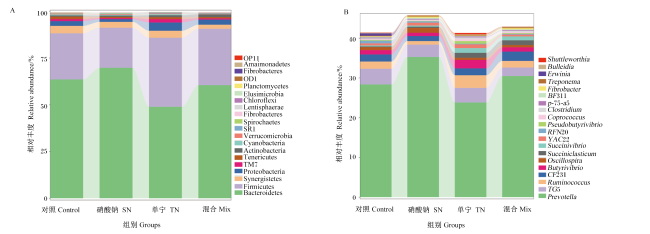
经过分类学比对,各组共得到31个门、47个纲、73个目、94个科与122个属。通过物种差异分析确定各组分别在门水平和属水平上排名前20的显著差异微生物类群。如图2所示,各组的主要优势菌门为拟杆菌门(Bacteroidetes)、厚壁菌门(Firmicutes)、互养菌门(Synergistetes)和变形菌门(Proteobacteria),主要优势菌属有普雷沃菌属(Prevotella)、TG5和CF231。除此之外,对照组的优势菌门(>1%)还有柔膜菌门(Tenericutes)和TM7,优势菌属(>1%)还包括瘤胃球菌属(Ruminococcus)和丁酸弧菌属(Butyrivibrio)。SN组的优势菌属(>1%)还包括颤螺旋菌属(Oscillospira)。TN组的优势菌门(>1%)还有TM7、柔膜菌门和放线菌门(Actinobacteria),优势菌属(>1%)还包括瘤胃球菌属、丁酸弧菌属、琥珀酸菌属(Succiniclasticum)和琥珀酸弧菌属(Succinivibrio)。在混合组中,优势菌门(>1%)还有放线菌门,优势菌属(>1%)还包括瘤胃球菌属、琥珀酸菌属和丁酸弧菌属。
图2 饲粮添加SN和TN条件下奶山羊瘤胃细菌门(A)、属(B)水平的群落组成

Bacteroidetes:拟杆菌门;Firmicutes:厚壁菌门;Synergistetes:互养菌门;Proteobacteria:变形菌门;Tenericutes:柔膜菌门; Actinobacteria:放线菌门;Cyanobacteria:蓝藻菌门; Verrucomicrobia:疣微菌门;Spirochaetes:螺旋体门; Fibrobacteres:纤维杆菌门; Elusimicrobia:迷踪菌门;Lentisphaerae:黏胶球形菌门;Chloroflexi:绿弯菌门;Planctomycetes:浮霉菌门;Prevotella:普雷沃菌属; Ruminococcus:瘤胃球菌属; Butyrivibrio:丁酸弧菌属;Oscillospira:颤螺旋菌属;Succiniclasticum:琥珀酸菌属;Succinivibrio:琥珀酸弧菌属;Pseudobutyrivibrio:假丁酸弧菌属;Coprococcus:琥珀酸菌属;Clostridium:梭状芽孢杆菌属; Fibrobacter:丝状杆菌属;Treponema:密螺旋体属;Erwinia:欧文氏菌属。

Fig.2 Community composition of ruminal bacteria at phylum(A) and genus(B) levels under dietary addition of SN and TN on dairy goats

2.4.4 饲粮添加SN和TN对奶山羊瘤胃古菌组成的影响

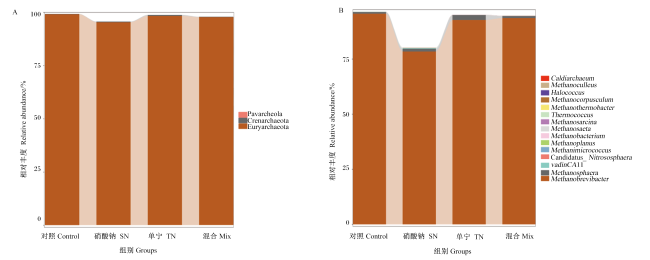
图3所示,显示了各组奶山羊瘤胃古菌优势种在门和属水平的相对分布。在门水平上,各组古菌的主要优势门均为广古菌门(Euryarchaeota)。在属水平上,各组古菌的主要优势属均为甲烷短杆菌属(Methanobrevibacter),除此之外,SN组和TN组的优势属(>1%)还包括甲烷球形菌属(Methanosphaera)。
图3 饲粮添加SN和TN条件下奶山羊瘤胃古菌门(A)、属(B)水平的群落组成

Euryarchaeota:广古菌门;Crenarchaeota:泉古菌门;Methanobrevibacter:甲烷短杆菌属;Methanosphaera:甲烷球形菌属; Methanimicrococcus:甲烷微球菌属;Methanoplanus:甲烷盘菌属;Methanobacterium:甲烷杆菌属;Methanosaeta:鬃毛甲烷菌属;Methanosarcina:甲烷八叠球菌属;Thermococcus:热球菌属;Methanothermobacter:甲烷热杆菌属。

Fig.3 Community composition of ruminal archaea at phylum(A) and genus(B) levels under dietary addition of SN and TN on dairy goats

2.4.5 饲粮添加SN和TN对奶山羊瘤胃微生物优势菌属相对丰度的影响

表6可知,与对照组相比,饲粮添加1.5% SN和3.0% TN对奶山羊瘤胃细菌的拟杆菌门、互养菌门和变形菌门的优势菌属的相对丰度无显著影响(P>0.05);饲粮添加1.5% SN显著降低了奶山羊瘤胃细菌厚壁菌门中瘤胃球菌属、丁酸弧菌属和古菌广古菌门中甲烷短杆菌属的相对丰度(P<0.05),极显著降低了瘤胃细菌厚壁菌门中Anaerostipes的相对丰度(P<0.01);饲粮添加3.0% TN显著提高了奶山羊瘤胃细菌厚壁菌门中丁酸弧菌属、梭状芽孢杆菌(Clostridium)相对丰度(P<0.05),显著降低了RFN20的相对丰度(P<0.05),有降低细菌中厚壁菌门中颤螺旋菌属、提高瘤胃球菌属和古菌广古菌门中甲烷短杆菌属的相对丰度的趋势(P=0.074、P=0.050、P=0.060);饲粮添加1.5% SN和3.0% TN对奶山羊瘤胃细菌优势菌门中优势菌属的相对丰度无显著交互作用(P>0.05),但对古菌广古菌门中优势菌属的相对丰度有显著交互作用(P<0.05)。
表6 饲粮添加SN和TN对奶山羊瘤胃优势细菌属(门>1%,属>0.1%)相对丰度的影响

Table 6 Effects of dietary addition of SN and TN on relative abundance of rumen dominant bacteria (phylum>1%, genus>0.1%) of dairy goats

项目
Items
组别Groups SEM PP-value
对照
Control
硝酸钠
SN
单宁
TN
混合
Mix
硝酸钠
SN
单宁
TN
硝酸钠×单宁
SN×TN
细菌Bacteria
拟杆菌门Bacteroidetes
普雷沃菌属Prevotella 28.36 35.28 23.83 30.50 0.045 0.146 0.312 0.977
CF231 1.78 1.26 1.72 2.36 0.004 0.887 0.234 0.185
YRC22 0.52 0.70 0.94 0.46 0.003 0.582 0.738 0.213
BF311 0.18 0.27 0.15 0.21 0.001 0.228 0.399 0.763
厚壁菌门Firmicutes
瘤胃球菌属Ruminococcus 1.82ab 0.89b 3.17a 1.64ab 0.006 0.039 0.074 0.593
丁酸弧菌属Butyrivibrio 1.08b 0.83b 2.13a 1.08b 0.003 0.034 0.033 0.179
颤螺旋菌属Oscillospia 0.77 1.20 0.55 0.57 0.002 0.290 0.050 0.330
RFN20 0.68a 0.34ab 0.18b 0.17b 0.001 0.230 0.028 0.249
梭状芽孢杆菌Clostridium 0.21b 0.16b 0.45a 0.29ab 0.001 0.168 0.016 0.481
p-75-a5 0.23 0.20 0.24 0.18 0.001 0.489 0.958 0.829
Anaerostipes 0.18Aa 0.06ABbc 0.15ABab 0.02Bc 0.000 0.005 0.388 1.000
互养菌门Synergistetes
TG5 3.95 3.11 3.68 2.13 0.016 0.473 0.707 0.834
变形菌门Proteobacteria
琥珀酸弧菌属Succinivibrio 0.27 0.30 1.20 0.98 0.006 0.872 0.167 0.828
古菌Archaea
广古生菌门Euryarchaeota
甲烷短杆菌属Methanobrevibacter 95.62Aa 78.41Bb 92.75Aa 93.60Aa 0.031 0.016 0.060 0.008
甲烷球形菌属Methanosphaera 0.73b 0.12ab 2.19ab 0.94ab 0.004 0.427 0.209 0.049

2.4.6 饲粮添加SN和TN对奶山羊瘤胃产甲烷菌相对丰度及α多样性的影响

测定了4组山羊瘤胃液的气体排放量和产甲烷菌的相对丰度。如表7所示。与对照组相比,饲粮添加1.5% SN和3.0% TN对奶山羊总产气量和CH4产量均无显著差异(P>0.05),但对CH4排放比例存在显著的交互作用(P<0.05),表现为单独或联合添加1.5% SN和3.0% TN均可降低奶山羊CH4排放比例;饲粮添加1.5% SN显著降低了奶山羊瘤胃产甲烷菌中甲烷短杆菌属的相对丰度(P<0.05),极显著升高了念珠菌甲烷原体(Candidatus Methanoplasma)的相对丰度(P<0.01);饲粮添加3.0% TN显著提高了奶山羊瘤胃产甲烷菌中甲烷短杆菌属的相对丰度(P<0.05),极显著降低了念珠菌甲烷原体的相对丰度(P<0.01),同时极显著提高了广古生菌门中产甲烷菌的Chao1指数(P<0.01);饲粮添加1.5% SN和3.0% TN对奶山羊产甲烷菌的α多样性和优势菌属的相对丰度均无显著的交互作用(P>0.05)。
表7 饲粮添加SN和TN对奶山羊瘤胃产甲烷菌的α多样性及优势菌属(门>1%, 属>0.1%)相对丰度的影响

Table 7 Effects of dietary SN and TN on α diversity and relative abundance of rumen methanogens (phylum>1%, genus>0.1%) of dairy goats

项目
Items
组别Groups 标准误
SEM
PP-value
对照
Control
硝酸钠
SN
单宁
TN
混合
Mix
硝酸钠
SN
单宁
TN
硝酸钠×
单宁
SN×TN
总产气量Total gas production/mL 35.00 42.00 43.33 33.33 9.361 0.687 0.865 0.120
甲烷排放比例
Ratio of methane emissions/%
8.44Aa 4.22Bb 4.73Bb 6.65ABab 0.947 0.785 0.666 0.001
甲烷产气量
Methane gas production/mL
3.23 1.87 2.12 2.07 0.629 0.595 0.524 0.399
广古生菌门中产甲烷菌的相对丰度Relative abundance of Methanogenic archaea in Euryarchaeota/%
甲烷短杆菌属
Methanobrevibacter
88.77a 66.30b 92.63a 89.00a 0.048 0.013 0.012 0.064
念珠菌甲烷原体
Candidatus Methanoplasma
5.87Bb 17.71Aa 0.64Bc 4.44Bb 0.026 0.007 0.002 0.142
甲烷球形菌属Methanosphaera 0.70 0.94 1.25 2.12 0.007 0.402 0.201 0.635
广古菌生门中产甲烷菌的α多样性Alpha diversity of Methanogenic archaea in Euryarchaeota
Chao1指数Chao1 index 220.63Bb 246.40ABab 286.11Aa 307.70Aa 20.595 0.264 0.006 0.920
辛普森指数Simpson index 0.83 0.88 0.84 0.84 0.024 0.212 0.706 0.469
香农指数Shannon index 3.63 4.02 3.79 3.89 0.215 0.275 0.934 0.508

3 讨论

3.1 SN和TN对奶山羊产奶性能的影响

产奶性能是奶山羊重要的经济性状之一,各组乳羊的产奶量随时间逐渐下降,这与奶山羊的季节性发情期相一致。在以往研究中,饲粮添加SN和TN对反刍动物产奶性能的影响多见于奶牛或水牛。Xie等[5]发现添加硝酸盐(0.11~0.44 g/kg BW)对水牛产奶量和乳蛋白含量无显著影响。Meta分析显示,TN对泌乳奶牛的校正产奶量、乳脂肪和乳蛋白含量等无显著影响,但可降低泌乳奶牛乳中UN含量,从而提高氮的利用率[10]。也有研究显示,饲粮添加0.1% TN可提高奶牛产奶量并显著改善乳品质[11]。饲喂添加70 g/d SN可降低泌乳水牛的产奶量及3.5%校正乳产量[12]。本研究中,各组奶山羊产奶量无显著变化,这可能是由于动物品种、SN和TN添加量与来源和生物学效价不同。Guyader等[13]发现乳中Nirite含量与饲粮中的硝酸盐的添加量呈正相关。Lee等[14]发现,反刍动物对硝酸盐的适应会导致乳中Nirite含量的降低。本研究中,SN的添加量仅为1.5%,可显著降低奶山羊乳中UN含量,乳中Nirite含量也相对较低,说明SN的添加量不仅合理,还可提升奶山羊氮的利用率。

3.2 SN和TN对奶山羊血清生化指标的影响

血清生化指标是衡量动物机体健康和生理代谢的重要指标。硝酸盐还原为氨会产生中间产物Nirite,会导致血液中Nirite含量在被瘤胃壁吸收后增加,不仅可能造成动物急性Nirite中毒,Nirite被吸收进入血液后还会将亚铁血红蛋白氧化成MetHb,使Hb失去携氧能力,引起组织缺氧,甚至动物死亡[15]。Cheng等[16]研究表明,随着硝酸盐的添加,奶牛血液中MetHb含量增高。这一结果与本试验的结果一致,但还需要进一步的验证。而饲喂单宁酸增加了绵羊尿中几种代谢物(没食子酸、邻苯三酚和4-O-甲基没食子酸)的含量,且邻苯三酚的含量与血液中MetHb含量显著相关[17]。该发现可能解释了单独或混合添加1.5% SN和3.0% TN均可降低奶山羊血清Hb含量,提高MetHb含量。值得注意的是,二者混合添加后血清Hb的含量并未显著降低,且与对照组中血清Hb含量接近,原因可能是SN还原为氨的过程中产生亚硝酸钠,亚硝酸钠将Hb氧化,而高剂量单宁酸可以改善血液载氧能力[18],导致混合组血清Hb的含量并未显著降低。Yang等[19]认为,当动物血清MetHb/Hb达20%时,可能会导致动物缺氧,当血清MetHb/Hb达35%时,可能会导致动物肝脏损伤。本试验中,各组的MetHb/Hb远低于20%,说明本试验中SN和TN的添加量是合适的,不会影响试验动物健康。

3.3 SN和TN对奶山羊瘤胃发酵的影响

反刍动物主要依赖瘤胃发酵获取营养物质,瘤胃pH的高低影响着瘤胃发酵效率和发酵模式,瘤胃pH主要受到VFA和NH3-N含量的影响[20]。正常瘤胃pH为5.6~7.5,本试验中,pH均处于正常范围。金龙等[3]的研究结果与本试验结果一致,即TN能有效地增加瘤胃蛋白含量,降低瘤胃蛋白降解,从而降低瘤胃液中的NH3-N含量。Sar等[21]则研究发现,硝酸盐的氨化作用可提高瘤胃NH3-N含量,pH也随之升高。本试验发现,饲粮添加1.5% SN显著提高了瘤胃pH,添加3.0% TN可降低瘤胃NH3-N含量,分析造成结果差异的原因可能是饲粮中粗饲料来源和蛋白质类型、硝酸盐的添加量和试验动物等的不同。
VFA是微生物降解饲料的终产物,也是反刍动物能量的重要来源,影响反刍动物对营养物质的消化、吸收和利用。TN可以减少瘤胃微生物数量,影响瘤胃的正常发酵功能。Van Zijderveld等[22]研究表示,添加2.6%的硝酸盐后,瘤胃VFA比例没有变化。但Nolan等[23]研究发现,添加4%硝酸钾导致羊瘤胃不同VFA成分发生变化,硝酸盐作为高亲和力的氢受体取代了二氧化碳,降低丙酸的比例,提高乙酸与丙酸的比例。本研究中,饲粮添加3.0% TN显著降低瘤胃异丁酸含量,显著提高丁酸含量,而添加1.5% SN和混合添加对奶山羊瘤胃发酵并无显著影响。这种差异可能是硝酸盐和TN种类及用量不同导致的。

3.4 SN和TN对奶山羊瘤胃微生物的影响

反刍动物瘤胃微生物群落的相对稳定对反刍动物的生产和健康有重要意义。细菌和古菌群落结构与反刍动物瘤胃内CH4的生成密切相关。以往研究表明,山羊瘤胃微生物主要由拟杆菌门、厚壁菌门和变形菌门组成[24-26]。Zhou等[27]研究发现,添加单宁酸对肉牛瘤胃细菌的相对丰度无显著影响,但增加了细菌群落的多样性。而康劲翮等[28]研究表明,SN虽对瘤胃细菌多样性指数没有显著影响,但影响了微生物的群落结构。Zhao等[29]研究发现,低硝酸盐添加量可以增加非纤维素降解物的相对丰度,而高硝酸盐添加量则抑制了它们的相对丰度。本试验中,各组细菌和古菌的α多样性及拟杆菌门、互养菌门和变形菌门等优势菌门的相对丰度均没有显著差异,说明添加1.5% SN和3.0% TN未显著影响奶山羊瘤胃微生物的群落多样性和物种丰富度。饲粮添加1.5% SN显著降低了奶山羊瘤胃球菌属的相对丰度,瘤胃球菌属能够降解淀粉等可溶性碳水化合物,在硝酸盐还原过程中发挥重要作用[30]。饲粮添加3.0% TN显著降低厚壁菌门中RFN20的相对丰度可能是由于单宁酸可通过与蛋白质结合抑制瘤胃细菌的生长[31],而厚壁菌门中丁酸弧菌属和梭状芽孢杆菌属的相对丰度的增加则与以往的研究结果[32]不同。这是否是由于试验饲粮及动物种类等与本试验不同所造成的,需进一步验证。
大量试验表明,TN和硝酸盐可以抑制反刍动物CH4的产生。板栗单宁可显著降低绵羊的CH4排放[33];饲粮添加4%硝酸钾可显著降低绵羊23%的CH4排放[23];Newbold等[17]饲喂给奶牛硝酸盐补充饲粮(最大添加量为饲粮干物质摄入量的3%)时,发现CH4产量与硝酸盐添加量之间呈负线性关系。这些研究结果均与本试验结果一致。前人研究发现,瘤胃CH4产量可能更受古菌相对丰度的影响[31-32]。CH4的产生主要通过产甲烷菌利用二氧化碳作为碳源,氢离子作为主要的电子供体发酵形成,抑制瘤胃产甲烷古菌的活性,可显著降低瘤胃CH4产量,从而大量减少机体能量损耗[34]。因此,本试验单独分析了瘤胃古菌中产甲烷菌的α多样性和优势菌属的相对丰度。结果显示,甲烷短杆菌属为优势产甲烷菌,与以往研究结果[35-36]相一致。TN的添加显著提高了产甲烷菌属的物种丰富度,与周奕毅[37]的研究结果一致。念珠菌甲烷原体主要以甲胺类化合物或甲醇为底物生成CH4,但不能利用二氧化碳,该菌可作为调控CH4产量的目标菌群[38-39]。本试验研究发现,单独添加1.5% SN极显著降低了奶山羊瘤胃甲烷短杆菌属的相对丰度,增加了念珠菌甲烷原体的相对丰度。因此,SN可能通过改变奶山羊古菌产甲烷菌丰度,降低奶山羊瘤胃CH4气体的产生。

4 结论

① 单独或混合添加1.5% SN和3.0% TN均可降低奶山羊CH4排放比例。
② 饲粮添加1.5% SN不仅不会导致奶山羊的血清和乳中Nirite的积累,还可提高瘤胃pH,改变奶山羊瘤胃古菌群落结构,降低甲烷短杆菌属相对丰度,这可能是CH4排放比例降低的主要原因。
③ 饲粮添加3% TN可显著提高瘤胃丁酸含量,降低奶山羊瘤胃异丁酸和血清GLU、Nirite含量。
④ 二者混合添加对奶山羊的产奶量和瘤胃发酵无显著影响,但提高了奶山羊血清MetHb含量和MetHb/Hb,但MetHb/Hb远低于20%,不会影响动物健康。
[1]
PATRA A K, SAXENA J. Exploitation of dietary tannins to improve rumen metabolism and ruminant nutrition[J]. Journal of the Science of Food and Agriculture, 2011, 91(1):24-37.

DOI PMID

[2]
金龙. 紫色达利菊提取缩合单宁对大肠杆菌和瘤胃氮代谢以及瘤胃微生物的影响[D]. 博士学位论文. 哈尔滨: 东北农业大学, 2011.

JIN L. Effect of condensed tannins from purple prairie clover on fecal shedding of Escherichia coli by beef cattle and on rumen fermentation and rumen bacteria[D]. Ph.D.Thesis. Harbin: Northeast Agricultural University, 2011. (in Chinese)

[3]
IWAMOTO M, ASANUMA N, HINO T. Effects of pH and electron donors on nitrate and nitrite reduction in ruminal microbiota[J]. Nihon Chikusan Gakkaiho, 2001, 72(2):117-125.

[4]
LIU L H, XU X R, CAO Y C, et al. Nitrate decreases methane production also by increasing methane oxidation through stimulating NC10 population in ruminal culture[J]. AMB Express, 2017, 7(1):76.

DOI PMID

[5]
XIE F, TANG Z H, LIANG X, et al. Sodium nitrate has no detrimental effect on milk fatty acid profile and rumen bacterial population in water buffaloes[J]. AMB Express, 2022, 12(1):11.

DOI PMID

[6]
ZHOU Z M, MENG Q X, YU Z T. Effects of methanogenic inhibitors on methane production and abundances of methanogens and cellulolytic bacteria in in vitro ruminal cultures[J]. Applied and Environmental Microbiology, 2011, 77(8):2634-2639.

DOI

[7]
YANZA Y R, FITRI A, SUWIGNYO B, et al. The utilisation of tannin extract as a dietary additive in ruminant nutrition:a meta-analysis[J]. Animals, 2021, 11(11):3317.

DOI

[8]
KNAPKA J. Nutrient requirements of nonhuman primates:second revised edition[J]. Lab Animal, 2003, 32(10):26.

[9]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6):37.

FENG Z C, GAO M. Improvement of the method for determining ammonia nitrogen content in rumen fluid by colorimetry[J]. Animal Husbandry and Feed Science, 2010, 31(6):37. (in Chinese)

[10]
HERREMANS S, VANWINDEKENS F, DECRUYENAERE V, et al. Effect of dietary tannins on milk yield and composition,nitrogen partitioning and nitrogen use efficiency of lactating dairy cows:a meta-analysis[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(5):1209-1218.

DOI

[11]
回海勇, 安文亭, 李占一, 等. 单宁酸对奶牛生产性能、营养物质利用率及免疫力影响[J]. 饲料研究, 2018(6):14-18,24.

HUI H Y, AN W T, LI Z Y, et al. Effects of tannic acid on production performance,nutrient utilization,and immunity of dairy cows[J]. Feed Research, 2018(6):14-18,24. (in Chinese)

[12]
范泽乡. 硝酸钠和蛋氨酸对水牛瘤胃发酵和泌乳性能的影响[D].硕士学位论文. 石河子: 石河子大学, 2021.

FAN Z X. Effects of sodium nitrate and methionine on rumen fermentation and lactation performance of buffalo[D].Master’s Thesis. Shihezi: Shihezi University, 2021. (in Chinese)

[13]
GUYADER J, DOREAU M, MORGAVI D P, et al. Long-term effect of linseed plus nitrate fed to dairy cows on enteric methane emission and nitrate and nitrite residuals in milk[J]. Animal, 2016, 10(7):1173-1181.

DOI PMID

[14]
LEE C, BEAUCHEMIN K A. A review of feeding supplementary nitrate to ruminant animals:nitrate toxicity,methane emissions,and production performance[J]. Canadian Journal of Animal Science, 2014, 94(4):557-570.

DOI

[15]
ALABOUDI A R, JONES G A. Effect of acclimation to high nitrate intakes on some rumen fermentation parameters in sheep[J]. Canadian Journal of Animal Science, 1985, 65(4):841-849.

DOI

[16]
CHENG Y F, MAO S Y, LIU J X, et al. Molecular diversity analysis of rumen methanogenic Archaea from goat in eastern China by DGGE methods using different primer pairs[J]. Letters in Applied Microbiology, 2009, 48(5):585-592.

DOI PMID

[17]
NEWBOLD J R, VAN ZIJDERVELD S M, HULSHOF R B A, et al. The effect of incremental levels of dietary nitrate on methane emissions in Holstein steers and performance in Nelore bulls[J]. Journal of Animal Science, 2014, 92(11):5032-5040.

DOI PMID

[18]
ZHANG Z F, XI Y, WANG S T, et al. Effects of chinese gallnut tannic acid on growth performance,blood parameters,antioxidative status,intestinal histomorphology,and cecal microbial shedding in broilers challenged with aflatoxin B1.[J]. Journal of animal science, 2022, 100(4):skac099.

DOI

[19]
YANG C J, ROOKE J A, CABEZA I, et al. Nitrate and inhibition of ruminal methanogenesis:microbial ecology,obstacles,and opportunities for lowering methane emissions from ruminant livestock[J]. Frontiers in Microbiology, 2016, 7:132.

[20]
CALSAMIGLIA S, CARDOZO P W, FERRET A, et al. Changes in rumen microbial fermentation are due to a combined effect of type of diet and pH[J]. Journal of Animal Science, 2008, 86(3):702-711.

PMID

[21]
SAR C, SANTOSO B, MWENYA B, et al. Manipulation of rumen methanogenesis by the combination of nitrate with β1-4 galacto-oligosaccharides or nisin in sheep[J]. Animal Feed Science and Technology, 2004, 115(1/2):129-142.

DOI

[22]
VAN ZIJDERVELD S M, GERRITS W J J, APAJALAHTI J A, et al. Nitrate and sulfate:effective alternative hydrogen sinks for mitigation of ruminal methane production in sheep[J]. Journal of Dairy Science, 2010, 93(12):5856-5866.

DOI

[23]
NOLAN J V, HEGARTY R S, HEGARTY J, et al. Effects of dietary nitrate on fermentation,methane production and digesta kinetics in sheep[J]. Animal Production Science, 2010, 50(8):801-806.

DOI

[24]
CANAES T S, ZANFERARI F, MAGANHE B L, et al. Increasing dietary levels of citral oil on nutrient total tract digestibility,ruminal fermentation,and milk composition in Saanen goats[J]. Animal Feed Science and Technology, 2017, 229:47-56.

DOI

[25]
CREMONESI P, CONTE G, SEVERGNINI M, et al. Evaluation of the effects of different diets on microbiome diversity and fatty acid composition of rumen liquor in dairy goat[J]. Animal, 2018, 12(9):1856-1866.

DOI PMID

[26]
LEI Z M, ZHANG K, LI C, et al. Ruminal metagenomic analyses of goat data reveals potential functional microbiota by supplementation with essential oil-cobalt complexes[J]. BMC Microbiology, 2019, 19(1):30.

DOI PMID

[27]
ZHOU K, BAO Y, ZHAO G Y. Effects of dietary crude protein and tannic acid on rumen fermentation,rumen microbiota and nutrient digestion in beef cattle[J]. Archives of Animal Nutrition, 2019, 73(1):30-43.

DOI

[28]
康劲翮, 曾波, 谭支良, 等. 苦瓜皂苷和硝酸钠对山羊瘤胃细菌多样性的影响[J]. 基因组学与应用生物学, 2017, 36(9):3819-3825.

KANG J H, ZENG B, TAN Z L, et al. Effects of Momordica charantia saponin and sodium nitrate on rumen bacterial diversity of goats[J]. Genomics and Applied Biology, 2017, 36(9):3819-3825. (in Chinese)

[29]
ZHAO L P, MENG Q X, REN L P, et al. Effects of nitrate addition on rumen fermentation,bacterial biodiversity and abundance[J]. Asian-Australasian Journal of Animal Sciences, 2015, 28(10):1433-1441.

DOI

[30]
陈志远. 硝酸盐对湖羊瘤胃硝态氮消失率、发酵特性及微生物区系的影响[D].硕士学位论文. 扬州: 扬州大学, 2016.

CHEN Z Y. Effect of nitrate levels on nitrate disappearance rate,ruminal fermentation and microbial profile in Hu-sheep[D].Master’s Thesis. Yangzhou: Yangzhou University, 2016. (in Chinese)

[31]
MIN B R, BARRY T N, ATTWOOD G T, et al. The effect of condensed tannins on the nutrition and health of ruminants fed fresh temperate forages:a review[J]. Animal Feed Science and Technology, 2003, 106(1/2/3/4):3-19.

DOI

[32]
JONES G A, MCALLISTER T A, MUIR A D, et al. Effects of sainfoin (Onobrychis viciifolia Scop.) condensed tannins on growth and proteolysis by four strains of ruminal bacteria[J]. Applied and Environmental Microbiology, 1994, 60(4):1374-1378.

DOI

[33]
LIU H, VADDELLA V, ZHOU D. Effects of chestnut tannins and coconut oil on growth performance,methane emission,ruminal fermentation,and microbial populations in sheep[J]. Journal of Dairy Science, 2011, 94(12):6069-6077.

DOI

[34]
DING X Z, LONG R J, ZHANG Q, et al. Reducing methane emissions and the methanogen population in the rumen of Tibetan sheep by dietary supplementation with coconut oil[J]. Tropical Animal Health and Production, 2012, 44(7):1541-1545.

DOI PMID

[35]
FRANZOLIN R, ST-PIERRE B, NORTHWOOD K, et al. Analysis of rumen methanogen diversity in water buffaloes (Bubalus bubalis) under three different diets[J]. Microbial Ecology, 2012, 64(1):131-139.

DOI PMID

[36]
MAO S Y, HUO W J, ZHU W Y. Microbiome-metabolome analysis reveals unhealthy alterations in the composition and metabolism of ruminal microbiota with increasing dietary grain in a goat model[J]. Environmental Microbiology, 2016, 18(2):525-541.

DOI

[37]
周奕毅. 茶皂素抑制湖羊甲烷生成的微生物学机制研究[D].硕士学位论文. 杭州: 浙江大学, 2009.

ZHOU Y Y. The research of microbiology mechanism of tea saponins inhibiting ruminal methane production in Hu sheep[D].Master’s Thesis. Hangzhou: Zhejiang University, 2009. (in Chinese)

[38]
BORREL G, HARRIS H M B, TOTTEY W, et al. Genome sequence of “Candidatus Methanomethylophilus alvus” Mx1201,a methanogenic archaeon from the human gut belonging to a seventh order of methanogens[J]. Journal of Bacteriology, 2012, 194(24):6944-6945.

DOI

[39]
POULSEN M, SCHWAB C, JENSEN B B, et al. Methylotrophic methanogenic Thermoplasmata implicated in reduced methane emissions from bovine rumen[J]. Nature Communications, 2013, 4(1):1428.

DOI

文章导航

/