

防御素是宿主先天免疫的重要组成部分,也是宿主自身产生的抗菌肽,其是由18~45个氨基酸组成的带有正电荷的双亲性多肽,在动植物和微生物中都有表达。在哺乳动物中,根据防御素二硫键的连接方式不同,防御素可分为α-防御素、β-防御素和θ-防御素[1]。不同于其他哺乳动物会表达多种防御素,目前研究表明猪只表达β-防御素。研究发现,猪有29种β-防御素,在消化道、呼吸道、泌尿生殖道、内脏、肌肉和睾丸等组织中广泛表达[2]。防御素的早期研究集中在抗菌功能上,旨在将其开发成新型抗生素。随着对防御素抗微生物活性研究的不断深入,渐渐发现防御素的抗微生物活性在生理盐浓度下或者在宿主其他生理条件下严重受损。过去20年的研究表明,防御素除了具有抗微生物活性外,还具有免疫调节能力,这有助于其抗微生物活性[3⇓-5]。前人也开展了猪β-防御素的免疫调节作用相关研究,例如猪β-防御素129可以降低炎症因子白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-6(interleukin-6,IL-6)和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)的过量产生,增强肠上皮细胞紧密连接蛋白-闭锁小带蛋白-1(zonula occludens-1,ZO-1)的表达,调节B细胞淋巴瘤2(B-cell lymphoma 2,Bcl2)、B细胞淋巴瘤2相关X蛋白(B-cell lymphoma 2-associated X protein,Bax)、半胱氨酸天冬氨酸蛋白酶-3(cysteine-aspartic protease-3,Caspase-3)和半胱氨酸天冬氨酸蛋白酶-9(cysteine-aspartic protease-9,Caspase-9)的表达,降低肠黏膜炎症引起的凋亡[6];猪β-防御素2不仅可以杀灭病原微生物,还能通过抑制Toll样受体4(Toll-like receptor 4,TLR4)/核因子-κB(nuclear factor-κB,NF-κB)信号通路的激活,降低仔猪空肠黏膜炎症因子IL-1β、白细胞介素-8(interleukin-8,IL-8)和TNF-α的过量产生[7]。2006年,前人利用生物信息学方法分析猪的基因组,首次发现了猪β-防御素114(porcine β-defensin 114,PBD114),其在猪的肠道、肝脏、脾脏、肺脏和雄性生殖道中均有表达[8]。前期研究发现,PBD114能够抑制炎性因子表达,缓解脂多糖(lipopolysaccharide,LPS)导致的小鼠肠上皮细胞炎性损伤[9]。巨噬细胞在免疫防御、免疫调节和组织修复中具有重要作用[10],而防御素的生物学功能与其所处的环境和细胞类型有关。防御素可能通过对模式识别信号通路的影响来调节先天免疫和下游的适应性反应[5]。PBD114对猪肺泡巨噬细胞是否具有免疫调节作用,其作用机制如何,尚未报道,有待研究。
1 材料与方法
1.1 试验材料
参照NCBI中NP_001123445.1的成熟肽序列,化学固相合成PBD114并做二硫键修饰,合成纯度达95%,满足试验要求。猪肺泡巨噬细胞3D4/21(ATCC® CRL-2843TM)从美国菌种保藏中心(ATCC)订购。
1.2 猪肺泡巨噬细胞3D4/21的培养与处理
猪肺泡巨噬细胞3D4/21完全培养基使用RPMI 1640基础培养基,包含:2 mmol/L L-谷氨酰胺,1.5 g/L碳酸氢钠,4.5 g/L葡萄糖,10 mmol/L羟乙基哌嗪乙硫磺酸(HEPES),1.0 mmol/L丙酮酸钠,0.1 mmol/L非必需氨基酸,10%胎牛血清。冻存细胞从液氮中取出,迅速在37 ℃水浴锅中解冻,解冻后加4 mL完全培养基,500×g离心2 min。离心结束后倒掉上清,加入1 mL含1%青霉素-链霉素双抗(PS)的完全培养基重悬,重悬后转移到25 cm2培养瓶中,于37 ℃、5%二氧化碳(CO2)条件下培养。将猪肺泡巨噬细胞3D4/21重悬液接种到24培养板中,当融合度达到约80%时,分别用终浓度为0、1、2、4、8、16、32、64、128和256 μg/mL的PBD114处理细胞,并分别在1、3、6和12 h收集细胞培养液,采用酶联免疫吸附试验(enzyme-linked immunosorbent assay,ELISA)法检测TNF-α和白细胞介素-10(interleukin-10,IL-10);将猪肺泡巨噬细胞3D4/21重悬液接种到6培养板中,当融合度达到约80%时,分别用终浓度为0(MOCK组)和100 μg/mL的PBD114(PBD114组)处理细胞12 h,收集细胞培养液,采用ELISA法检测TNF-α和IL-10;同时,收集细胞,用于转录组测序。
1.3 PBD114的最小抑菌浓度(minimal inhibitory concentration,MIC)
参照Bruck[13]的方法,用0.01%乙酸和0.2%牛血清白蛋白(bovine serum albumin,BSA)混合液(pH 7.7)连续2倍稀释PBD114浓度至512、256、128、64、32、16、8、4、2、1和0.5 μg/mL。于96孔板中每孔加入10 μL稀释后的PBD114,每孔加入100 μL重悬在Mueller-Hinton培养基上的2×10⁵~7×10⁵ CFU/mL的金黄色葡萄球菌ATCC29213(Staphylococcus aureus ATCC29213)、金黄色葡萄球菌ATCC43300(Staphylococcus aureus ATCC43300)、产气荚膜梭菌ATCC13124(Clostridium perfringens ATCC13124)、大肠杆菌ATCC25922(Escherichia coli ATCC25922)、铜绿假单胞菌ATCC27853(Pseudomonas aeruginosa ATCC27853)、枯草芽孢杆菌SCK168(Bacillus subtilis SCK168)和毕赤酵母X33(Pichia pastoris X33)菌液,振荡培养至少18 h,读取600 nm吸光度(OD600)值。MIC表示为抑制生长速度超过50%的最小PBD114浓度。所有试验重复3次。
1.4 PBD114的溶血性
溶血性检测方法参照本实验室前期研究[8],用含有肝素钠的采血管静脉采集全血,用10 mmol/L磷酸盐缓冲液(phosphate buffer saline,PBS)(pH 7.3)洗血细胞3次,在4 ℃、1 500 r/min下离心10 min。第3次洗后的上清应该是无色的。将血细胞和PBS稀释成4%,取100 μL与100 μL 2倍稀释的PBD114(1~256 μg/mL)混合,37 ℃恒温箱孵育1 h,然后在4 ℃、1 500 r/min下离心5 min,取上清转移至96孔板中,采用酶标仪检测540 nm吸光度(OD540)值。分别以10 mmol/L PBS和0.1% Triton X-100作为0和100%对照,所有试验重复3次。
1.5 PBD114对猪肺泡巨噬细胞3D4/21的细胞毒性
将猪肺泡巨噬细胞3D4/21接种到96孔板中,每孔加100 μL的1×10⁵的细胞悬液,当细胞融合度达到50%后加入PBD114,使其终浓度达到0、0.5、1、2、4、8、16、32、64、128和256 μg/mL,培养24和48 h。每孔加入10 μL的CCK8溶液,在细胞培养箱中继续培养2 h,然后用酶标仪检测OD540值,以细胞活性高低判断PBD114的细胞毒性。所有试验重复3次。
1.6 ELISA
细胞培养液中的细胞因子TNF-α(PTA00)和IL-10(P1000)的蛋白水平采用ELISA法检测,ELISA试剂盒购于美国R&D Systems公司,具体操作步骤参照说明书进行。采用SpectraMax 190酶标仪检测,根据标准曲线建立方程,计算检测样品中的TNF-α和IL-10浓度。
1.7 转录组测序
采用TRIzol裂解法提取PBD114组和MOCK组样品的总RNA,采用带有Oligo(dT)的磁珠富集有polyA尾巴的mRNA。采用打断buffer把获得的RNA片段化,并采用随机的N6引物进行反转录,再合成cDNA第2链形成双链DNA。把合成的双链DNA末端补平并在5'端磷酸化,在3'端形成突出1个“A”的黏末端,再连接1个3'端有凸出“T”的鼓泡状的接头。连接产物通过特异的引物进行PCR扩增。PCR产物热变性成单链,再用一段桥式引物将单链DNA环化得到单链环状DNA文库。将构建好的文库进行质检,合格后采用DNBSEQ超高通量测序平台进行测序。测序得到的raw data使用SOAPnuke软件进行过滤,过滤掉包含接头的reads、未知碱基N含量大于5%的reads以及低质量的reads,得到clean data。得到的clean data使用HISAT软件比对到参考基因组序列,使用Bowtie2软件比对到参考基因序列,然后使用RESM软件包计算各个样品的基因表达水平。对已知基因进行京都基因与基因组百科全书(Kyoto encyclopedia of genes and genomes,KEGG)和基因本体(gene ontology,GO)功能数据库注释。采用DESeq2进行组内差异表达基因(differentially expressed genes,DEGs)分析,条件为差异倍数(fold change,FC)≥2和校正P值(adjusted P-value)≤0.001。采用PossionDis进行组间差异分析,条件为FC≥2和错误发现率(false discovery rate,FDR)≤0.001。对DEGs集使用pheatmap函数绘制DEGs聚类热图。根据KEGG和GO功能注释结果以及官方分类,将DEGs进行功能分类,使用R软件中的phyper函数进行KEGG功能富集分析,并使用TermFinder包进行GO功能富集分析。以Q值(Q-value)≤0.05为阈值,满足此条件的基因定义为在候选基因中显著富集。
1.8 实时荧光定量PCR(qRT-PCR)
为验证转录组结果,随机挑选8个基因进行qRT-PCR验证。使用NCBI的Pick Primers设计并Blast引物特异性,以β-肌动蛋白(β-actin)作为内参,引物在北京擎科新业生物技术有限公司合成。采用反转录试剂盒Hifair® Ⅲ 1st Strand cDNA Synthesis SuperMix for qPCR (gDNA digester plus)[翌圣生物科技(上海)股份有限公司]构建样品cDNA文库,并用Hieff UNICON® Universal Blue qPCR SYBR Green Master Mix扩增,采用ABI QuantStudio 6 Flex荧光定量PCR仪进行定量检测,每个样品3个平行。采用2-△△Ct法计算目的基因相对表达量。
表1 引物序列Table 1 Primer sequences |
| 基因 Genes | 登录号 Accession No. | 引物序列 Primer sequences (5'—3') | 产物大小 Product size/bp | 退火温度 Tm/℃ |
|---|---|---|---|---|
| β-肌动蛋白 β-actin | XM_003124280.5 | F:TGGAACGGTGAAGGTGACAG R:CTTTTGGGAAGGCAGGGACT | 176 | 59.89 |
| 肿瘤坏死因子-α TNF-α | NM_214022.1 | F:GCCCTTCCACCAACGTTTTC R:CAAGGGCTCTTGATGGCAGA | 97 | 60.00 |
| 白细胞介素-1β IL-1β | NM_214055.1 | F:CCAATTCAGGGACCCTACCC R:GGCGGGTTCAGGTACTATGG | 84 | 59.67 |
| 前列腺素内过氧化物合成酶2 PSTG2 | NM_214321.1 | F:CTCCTGAACACCTCCGCTTT R:CTCCTGAACACCTCCGCTTT | 82 | 59.86 |
| RELA | NM_001114281.1 | F:CGGGGACTACGACCTGAATG R:CTTTCTGCACCTTGTCGCAC | 218 | 59.97 |
| 集落刺激因子2 CSF2 | NM_214118.2 | F:TCCCACTGACAGAGCCAAAC R:GGCAAGTCTGTGCCCCATTA | 88 | 60.11 |
| 白细胞介素-2受体α链 IL-2Rα | NM_213835.1 | F:GAACTGGGAAAGCCGAGGAA R:AACTTCTCCGCGCTGCTTAT | 139 | 60.04 |
| 白细胞介素-10 IL-10 | NM_214041.1 | F:AATCTGCTCCAAGGTTCCCG R:TCTCAGGGGAGAGGTACAGC | 70 | 60.04 |
| C-C基序趋化因子配体2 CCL2 | NM_214214.1 | F:CCAGGACTCCATAAGCCACC R:AATGTGCCCAAGTCTCCGTT | 272 | 59.86 |
1.9 数据统计分析
所有数据先用Excel 2021进行初步整理,采用GraphPad Prism 7.0进行统计分析,2组之间差异比较采用t检验;多组之间统计采用单因素方差分析(one way ANOVA),并采用Dunnett-t检验进行多重比较,结果以平均值±标准误表示,P<0.05为差异显著。
2 结果与分析
2.1 PBD114的生物学特性
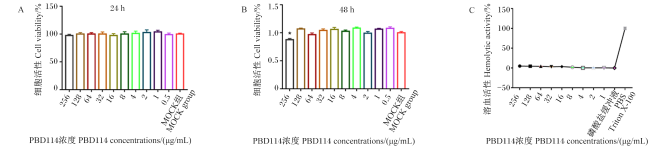
由表2可知,PBD114的抑菌活性比较弱,对金黄色葡萄球菌ATCC29213(Staphylococcus aureus ATCC29213)、金黄色葡萄球菌ATCC43300(Staphylococcus aureus ATCC43300)、产气荚膜梭菌ATCC13124(Clostridium perfringens ATCC13124)、大肠杆菌ATCC25922(Escherichia coli ATCC25922)、铜绿假单胞菌ATCC27853(Pseudomonas aeruginosa ATCC27853)、枯草芽孢杆菌SCK168(Bacillus subtilis SCK168)和毕赤酵母X33(Pichia pastoris X33)的MIC都大于256 μg/mL,对粪肠球菌ATCC29212(Enterococcus faecalis ATCC29212)的MIC也是128~256 μg/mL。体外细胞试验结果(图1-A和图1-B)表明,与MOCK组相比,PBD114与猪肺泡巨噬细胞3D4/21共培养24和48 h基本没有细胞毒性,只有256 μg/mL PBD114与细胞共培养48 h才显著降低细胞活性(P<0.05)。溶血性试验结果(图1-C)表明,PBD114溶血性很低,当PBD114浓度达到256 μg/mL时溶血活性还不到5%,表明PBD114安全性较好,可以开展后续细胞试验。
表2 PBD114对不同微生物的MICTable 2 MIC of PBD114 against different microorganisms μg/mL |
| 项目 Items | PBD114的最小抑菌浓度 MIC of PBD114 |
|---|---|
| 金黄色葡萄球菌ATCC29213 Staphylococcus aureus ATCC29213 | >256 |
| 金黄色葡萄球菌ATCC43300 Staphylococcus aureus ATCC43300 | >256 |
| 粪肠球菌ATCC29212 Enterococcus faecalis ATCC29212 | 128~256 |
| 产气荚膜梭菌ATCC13124 Clostridium perfringens ATCC13124 | >256 |
| 大肠杆菌ATCC25922 Escherichia coli ATCC25922 | >256 |
| 铜绿假单胞菌ATCC27853 Pseudomonas aeruginosa ATCC27853 | >256 |
| 枯草芽孢杆菌SCK168 Bacillus subtilis SCK168 | >256 |
| 毕赤酵母X33 Pichia pastoris X33 | >256 |
2.2 PBD114激活猪肺泡巨噬细胞3D4/21免疫反应
由图2可知,与MOCK组相比,64和256 μg/mL PBD114与猪肺泡巨噬细胞3D4/21共培养3 h后显著提高了培养液中TNF-α的浓度(P<0.05),128 μg/mL PBD114(P<0.05)和256 μg/mL PBD114(P<0.001)与猪肺泡巨噬细胞3D4/21共培养6 h后显著提高了培养液中TNF-α的浓度,64 μg/mL PBD114(P<0.05)、128 μg/mL PBD114(P<0.01)和256 μg/mL PBD114(P<0.000 1)与猪肺泡巨噬细胞3D4/21共培养12 h后显著提高了培养液中TNF-α的浓度;128 μg/mL PBD114(P<0.01)和256 μg/mL PBD114(P<0.001)与猪肺泡巨噬细胞3D4/21共培养1 h后显著提高了培养液中IL-10的浓度,64和256 μg/mL PBD114与猪肺泡巨噬细胞3D4/21共培养3 h后显著提高了培养液中IL-10的浓度(P<0.05),256 μg/mL PBD114与猪肺泡巨噬细胞3D4/21细胞共培养6 h后显著提高培养液中IL-10的浓度(P<0.01),128 μg/mL PBD114(P<0.05)和256 μg/mL PBD114(P<0.001)与猪肺泡巨噬细胞3D4/21共培养12 h后显著提高了培养液中IL-10的浓度。转录组试验选用100 μg/mL PBD114与猪肺泡巨噬细胞3D4/21共培养12 h,与MOCK组相比,细胞培养中TNF-α(P<0.01)和IL-10(P<0.05)浓度显著提高。
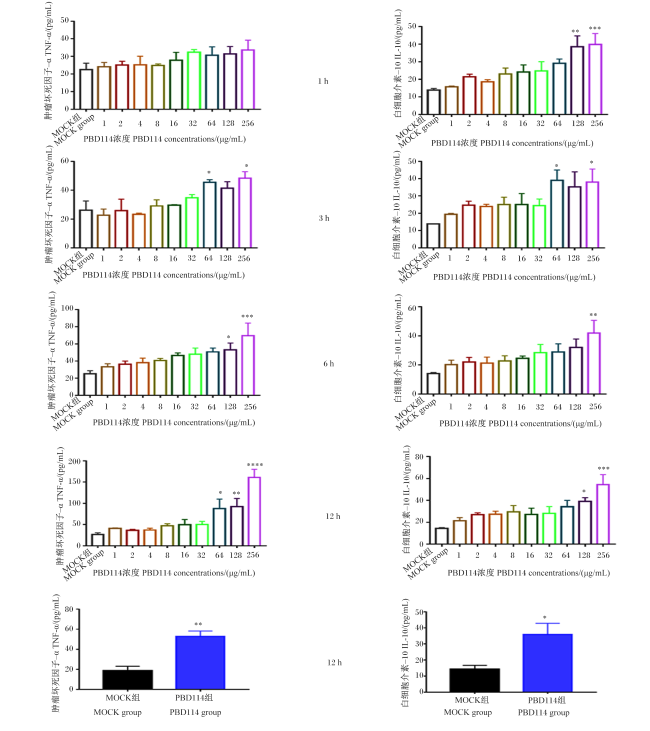
图2 PBD114对猪肺泡巨噬细胞3D4/21培养液TNF-α和IL-10浓度的影响与MOCK组相比,*表示P<0.05,**表示P<0.01,***表示P<0.001,****表示P<0.000 1。图9同。 Fig.2 Effects of PBD114 on concentrations of TNF-α and IL-10 in culture medium of porcine alveolar macrophages 3D4/21 Compared with MOCK group, * mean P<0.05, ** mean P<0.01, *** mean P<0.001, and **** mean P<0.000 1. The same as Fig.9. |
2.3 PBD114激活猪肺泡巨噬细胞3D4/21免疫反应的转录组分析
2.3.1 样品测序质量评估
PBD114能够诱导猪肺泡巨噬细胞3D4/21的TNF-α和IL-10的表达。为进一步分析PBD114对猪肺泡巨噬细胞3D4/21免疫反应的激活作用及其作用机制,试验使用DNBSEQ超高通量测序平台检测MOCK组和PBD114组(100 μg/mL PBD114处理12 h猪肺泡巨噬细胞3D4/21)。由表3可知,所有样本原始序列(raw reads)数据均在22.24×10⁶~23.92×10⁶,去除接头和低质量的reads,最后过滤后的序列(clean reads)数据均在22.15×10⁶~23.83×10⁶,占raw reads的比例为98.89%~99.60%。MOCK组和PBD114组碱基质量值≥20的碱基所占百分比(Q20)和碱基质量值≥30的碱基所占百分比(Q30)分别在97%和92%以上。上述结果表明转录组数据的质量良好。
表3 转录组测序数据质量统计Table 3 Data quality statistics of transcriptome sequencing |
| 组别 Groups | 总原始序列 Total raw reads/×106 | 总过滤序列 Total clean reads/×106 | 总过滤碱基 Total clean bases/Gb | Q20/% | Q30/% | 有效序列比例 Effective reads ratio/% |
|---|---|---|---|---|---|---|
| 23.92 | 23.83 | 1.19 | 97.82 | 93.66 | 99.60 | |
| MOCK组 | 23.92 | 23.83 | 1.19 | 97.86 | 93.73 | 99.60 |
| MOCK group | 23.92 | 23.82 | 1.19 | 97.87 | 93.78 | 99.55 |
| 22.24 | 22.15 | 1.11 | 97.76 | 93.47 | 99.59 | |
| 23.92 | 23.70 | 1.18 | 97.70 | 93.28 | 99.06 | |
| PBD114组 | 23.92 | 23.67 | 1.18 | 97.47 | 92.69 | 98.93 |
| PBD114 group | 23.92 | 23.66 | 1.18 | 97.77 | 93.52 | 98.89 |
| 23.92 | 23.69 | 1.18 | 97.47 | 92.73 | 99.05 |
2.3.2 MOCK组和PBD114组DEGs筛选
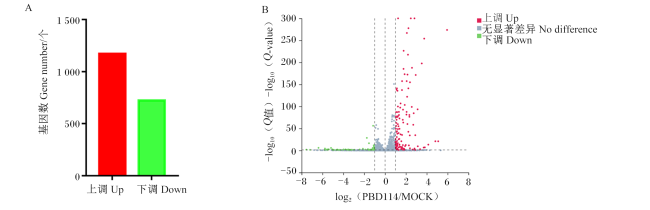
MOCK组和PBD114组DEGs采用DESeq2分析[14],根据log2(PBD114/MOCK)值的大小判定表达量的上调和下调,其值大于1表示PBD114组相对于MOCK组表达上调,其值小于1表示PBD114组相对于MOCK组表达下调。由图3可知,与MOCK组相比,PBD114组CXC基序趋化因子配体2(CXC motif chemokine ligand 2,CXCL2)、IL-1β、集落刺激因子3(colony stimulating factor 3,CSF3)、白血病抑制因子(leukaemia inhibitory factor,LIF)和白细胞介素-1α(interleukin-1α,IL-1α)等1 170个基因显著上调(FC≥2,adjusted P-value≤0.001),B细胞淋巴瘤6β(B-cell lymphoma 6β,Bcl6β)、B细胞淋巴瘤3(B-cell lymphoma 3,Bcl3)、CD2、CD4和CD83等724个基因下调(FC≥2,adjusted P-value≤0.001)。
2.3.3 MOCK组和PBD114组DEGs KEGG功能注释和富集分析
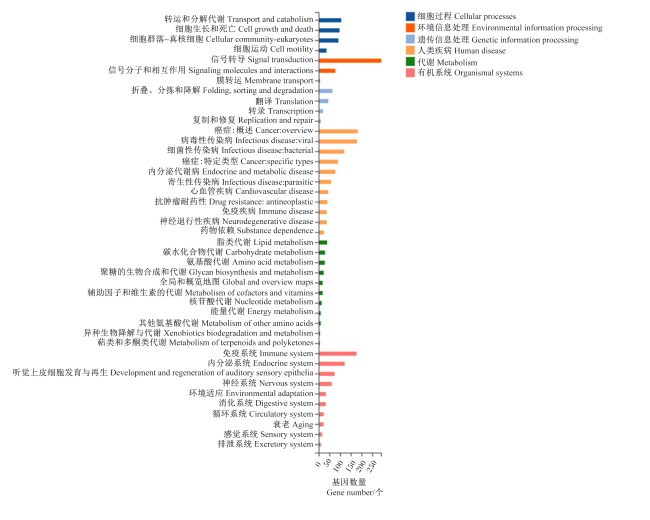
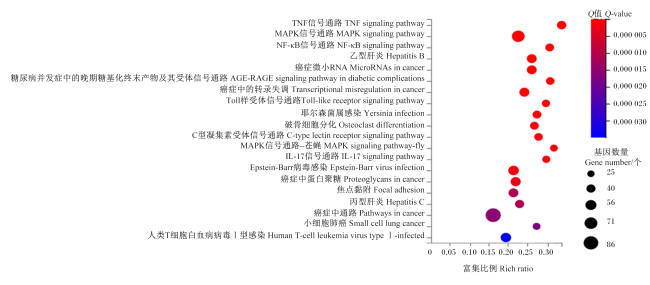
为进一步分析MOCK组和PBD114组DEGs在哪些代谢通路和生物学过程中发生富集,本试验进行了KEGG功能注释分类和富集分析。KEGG代谢通路分为6个分支:细胞过程(cellular processes)、环境信息处理(environmental information processing)、遗传信息处理(genetic information processing)、人类疾病(human disease)、代谢(metabolism)和有机系统(organismal systems)。MOCK组和PBD114组参与在细胞过程、环境信息处理、遗传信息处理、人类疾病、代谢和有机系统的DEGs数量分别是252、332、134、367、154和349个。每一分支下进一步分类统计共43个分支,对DEGs的KEGG功能注释分类结果进行绘图(图4),MOCK组和PBD114组DEGs在猪肺泡巨噬细胞中环境信息处理的信号传导和有机系统的免疫系统中显著增加,DEGs数量分别是291和176个。通过KEGG功能富集分析,共富集到329条信号通路,其中显著富集的KEGG通路共95条(Q≤0.05)。选取富集最显著的前20条通路以气泡图形式展示(图5)。其中,肿瘤坏死因子(tumor necrosis factor,TNF)信号通路、丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)信号通路、NF-κB信号通路、Toll样受体(Toll-like receptor,TLR)信号通路和白细胞介素-17(interleukin-17,IL-17)信号通路等信号通路参与免疫激活,DEGs数量分别是38、66、33、29和27个。
2.3.4 MOCK组和PBD114组DEGs GO功能注释和富集分析
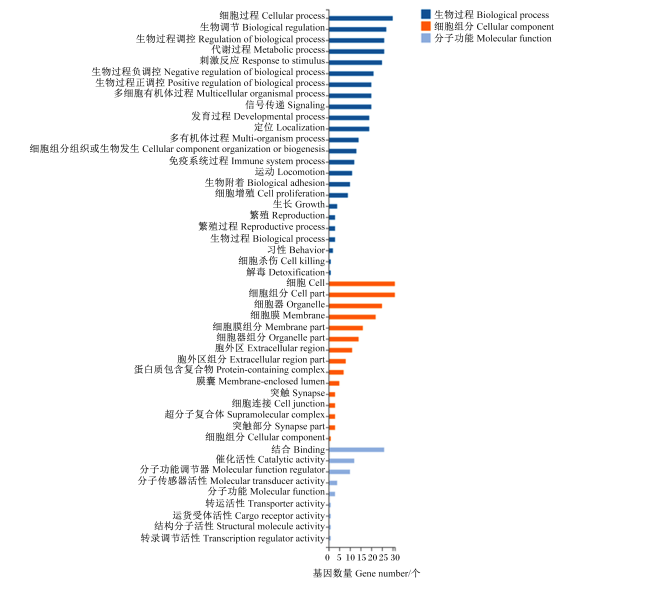
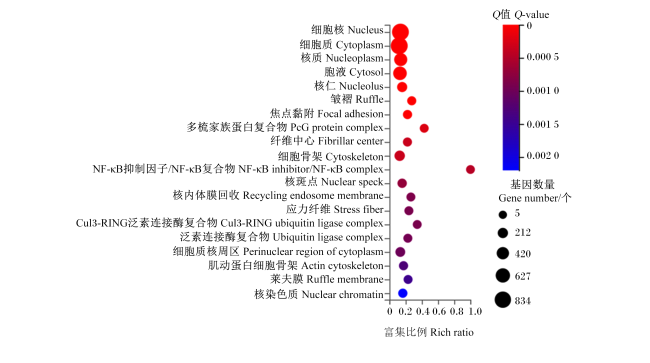
GO功能分为分子功能(molecular function)、细胞组分(cellular component)和生物过程(biological process)三大功能类。MOCK组和PBD114组分类到分子功能、细胞组分和生物过程的DEGs数量分别是1 832、1 844和1 802个。根据三大功能类细分到48个分支类(图6),其中分子功能细分24分支,细胞组分细分15分支,生物过程细分9分支。分子功能分类中DEGs最多的是细胞过程(cellular process)分支,有30个DEGs;细胞组分分类中DEGs最多的是细胞(cell)和细胞组分(cell part),均有31个DEGs;生物过程分类中DEGs最多的是结合(binding),有26个DEGs。MOCK组和PBD114组DEGs GO功能富集共聚集到847个GO term,显著富集的GO term有53个(Q≤0.05),选取前20个显著富集的GO term绘制GO富集气泡图(图7)。其中,显著富集的GO term分别是细胞核(nucleus)、细胞质(cytoplasm)、核质(nucleoplasm)、胞液(cytosol)、核仁(nucleolus)、皱褶(ruffle)、焦点黏附(focal adhesion)、多梳家族蛋白复合物(PcG protein complex)、纤维中心(fibrillar center)和细胞骨架(cytoskeleton)等,DEGs数量分别是822、834、440、489、135、31、42、12、29和166个。
2.3.5 MOCK组和PBD114组DEGs的蛋白质-蛋白质互作(protein-protein interaction,PPI)和关键驱动分析(key driver analysis,KDA)
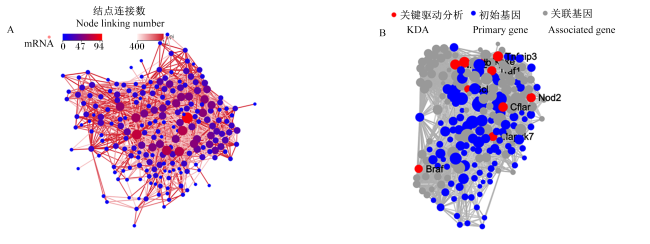
选取KEGG显著富集通路中与免疫相关的通路,共涉及221个DEGs,进行PPI分析,由图8-A可知,结节(node)连接数最多的基因依次是TNF(94个结点)、Kirsten大鼠肉瘤病毒癌基因同源物(Kirsten ratsarcoma viral oncogene homolog,KRAS)(76个结点)、MAPK14(71个结点)、JUN(71个结点)、信号转导和转录激活因子3(signal transducer and activator of transcription 3,STAT3)(70个结点)、SRC(64个结点)和纤连蛋白1(fibronectin 1,FN1)(57个结点)。以这221个DEGs做进一步的KDA,由图8-B所示,起到关键核心基因作用的分别是RELB、BRAF、Bcl3、CASP8和FADD样细胞凋亡调节因子(CASP8 and FADD like apoptosis regulator,CFLAR)、TNF-α诱导蛋白3(TNF-α induced protein 3,TNFAIP3)、TNF受体相关因子1(TNF receptor associated factor 1,TRAF1)、核苷酸结合寡聚化结构域包含2(nucleotide binding oligomerization domain containing 2,NOD2)、丝裂原活化蛋白激酶激酶7(mitogen-activated protein kinase kinase 7,MAP2K7)和NF-κB激酶亚基ε抑制因子(inhibitor of NF-κB kinase subunit ε,IKBKE)。
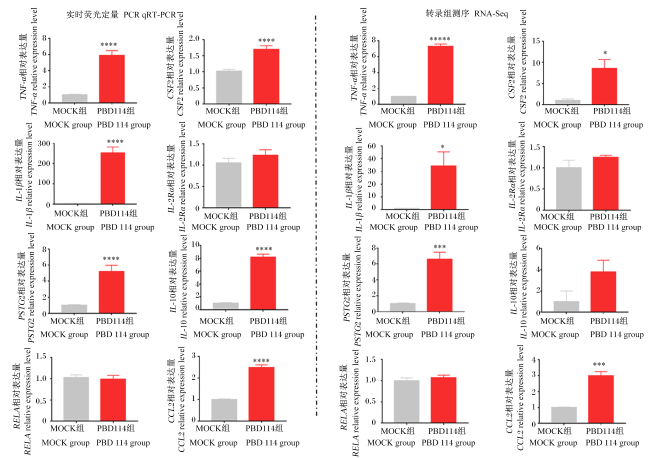
2.4 qRT-PCR验证转录组基因表达量
为验证转录组测序结果的可靠性,从MOCK组和PBD114组DEGs中随机选取TNF-α、IL-1β、前列腺素内过氧化物合成酶2(prostaglandin-endoperoxide synthase 2,PSTG2)、RELA、集落刺激因子2(colony stimulating factor 2,CSF2)、白细胞介素-2受体α链(interleukin 2 receptor α chain,IL-2Rα)、IL-10和C-C基序趋化因子配体2(C-C motif chemokine ligand 2,CCL2)共8个基因进行qRT-PCR验证,结果表明qRT-PCR与转录组基因表达量变化模式一致(图9),说明测序数据可靠。
3 讨论
防御素是哺乳动物在长期进化过程中保留下来的一种古老的宿主防御机制,可作为宿主免疫防御的效应分子预防感染。本研究发现,PBD114具有微弱的抗菌活性,这与前期研究结果[8]一致。防御素虽然只有α-防御素、β-防御素和θ-防御素[1]三大类,但是每一类防御素又包含多种防御素。例如,目前已经发现了29种猪β-防御素[2],且每种防御素的生物学功能相似又不同。本研究团队前期系统综述了猪β-防御素1、2、3和129都具有不同程度的抗细菌、真菌和病毒的活性[15]。其中,猪β-防御素129的抗菌活性比较弱[6],本研究结果与其相似。越来越多的研究发现,防御素的抗菌活性在生理盐浓度下或者在宿主其他生理条件下严重受损,如具有阴离子的多糖、阿朴脂蛋白、DNA、F-肌动蛋白和黏多糖[16];重组人β-防御素114(DEFB114)对分别代表革兰阴性菌、革兰阳性菌和真菌的大肠杆菌K12D31、金黄色葡萄球菌和白色念珠菌表现出剂量依赖性的抗菌活性,且随着氯化钠(NaCl)浓度的升高,重组DEFB114抗菌活性减弱[17]。
大量研究表明,防御素的抗菌活性在体内确实比较弱,但是防御素能够通过免疫调节作用协同防御病原微生物的感染,协同杀菌[3⇓-5]。防御素不仅可通过被诱导表达迅速聚集到感染部位参与防御,还可通过激活细胞因子和趋化因子的产生来吸引具有免疫能力的细胞到达病原体入侵区,从而维持免疫稳态的平衡,实现身体对感染的多层次保护[18-19]。本研究发现,PBD114能够提高巨噬细胞的TNF-α和IL-10浓度,这与人的β-防御素1、2、3能诱导外周血单核细胞分泌IL-10[20],以及人的α-防御素1、2、3能诱导人肺上皮A249细胞分泌TNF-α[21]的作用效应相似。并且,PBD114诱导巨噬细胞分泌TNF-α和IL-10存在剂量效应,这与人的α-防御素1、2、3诱导人肺上皮A249细胞分泌IL-8的结果[21]一致。但是,有些研究表明,防御素能够降低细胞促炎因子的表达,例如,小鼠巨噬细胞RAW264.7过表达或者外源添加猪β-防御素2都能抑制RAW264.7促炎细胞因子的释放[7]。猪β-防御素2能通过转化生长因子β活化激酶1(TGF β-activated kinase 1,TAK1)/NF-κB降低猪回肠上皮细胞IPEC-J2促炎因子IL-6、IL-8、IL-1α和TNF-α以及CXCL2和C-C基序趋化因子配体20(C-C motif chemokine ligand 20,CCL20)的表达[22]。这可能是防御素的生物学功能与其所处的环境和细胞类型有关,因此深入阐明猪β-防御素的生物学功能仍需开展大量研究。TNF-α能够调节巨噬细胞的增生、成熟和活化,并促进其黏附、游走和脱粒,促进细胞因子分泌、诱发炎性反应、调节巨噬细胞的抗原呈递功能,在宿主的防御反应中起着重要的作用[23]。IL-10是由辅助性T细胞Th2亚型细胞分泌的一种细胞因子,能抑制Th1亚型细胞分泌的TNF-γ等细胞因子,是体内最重要的抗炎细胞因子[24]。LPS刺激巨噬细胞,TNF-α等促炎因子会在几十分钟内迅速增加,而IL-10在数小时后才增加,以抑制促炎因子的进一步释放。不同的是,PBD114刺激猪肺泡巨噬细胞后,TNF-α释放增加的同时,IL-10也同时得到增加,这表明PBD114与LPS激活巨噬细胞的炎症反应的机制可能有所不同,有待进一步研究。
先天免疫是一个复杂的生物学过程,病原入侵后,宿主通过组织屏障、先天免疫细胞和免疫分子协同预防感染,其中炎症反应能够通过级联反应迅速扩大信号,及时对入侵病原做出响应。转录组研究能够从整体水平研究基因功能以及基因结构,揭示特定生物学过程以及疾病发生过程中的分子机理。转录组作为一种新的高效、快捷的研究手段已广泛应用于生物学研究、医学研究、临床研究和药物研发等领域[25]。为进一步深入揭示PBD114的免疫调节活性,本研究利用转录组对PBD114的免疫调节作用进行了分析。结果表明,PBD114显著上调了CXCL2、IL-1β、CSF3、LIF和IL-1α等1 170个基因,显著下调了Bcl6β、Bcl3、CD2、CD4和CD83等724个基因,表明PBD114对巨噬细胞的免疫调节是多途径和全方面的。这和前人对人的防御素研究结果一致,人β-防御素1能诱导人外周血细胞分泌IL-6、IL-8、IL-10、单核细胞趋化蛋白-1(monocyte chemoattractant protein-1,MCP-1,亦称CCL2)和表皮生长因子(epidermal growth factor,EGF);人β-防御素2诱导人外周血细胞分泌细胞因子IL-1β、IL-6、IL-8、IL-10、上皮中性粒细胞激活肽78[epithelial-neutrophil activating peptide78,ENA-78,亦称CXC基序趋化因子配体5(CXC motif chemokine ligand 5,CXCL5)]、胰岛素样生长因子结合蛋白-3(insulin-like growth factor binding protein-3,IGFBP-3)、EGF和肝细胞生长因子(hepatocyte growth factor,HGF)[20]。
TLR能够感知病原微生物入侵,它识别微生物成分中存在的特定分子模式,并迅速启动炎症反应,对先天性和获得性免疫反应起着重要调节作用[26]。TNF信号通路、MAPK信号通路和NF-κB信号通路在炎症和趋化反应中起核心作用。IL-17信号通路在宿主防御细胞外细菌感染和真菌感染中发挥重要作用,并参与多种自身免疫性炎症疾病的发病[27]。前期研究表明,PBD114能够通过NF-κB信号通路在肠道起到抗炎作用[9],猪β-防御素2和猪β-防御素129的抗炎活性机制与PBD114相似[6,22]。鸡β-防御素5可通过诱导细胞因子表达和刺激MAPK信号通路调节宿主免疫系统[28]。为深入揭示PBD114调节炎症的机制,本研究利用转录组发现,PBD114能够通过TNF信号通路、MAPK信号通路、NF-κB信号通路、TLR信号通路和IL-17信号通路等信号通路参与免疫激活,这与前人研究结果一致。进一步的PPI和KDA发现,RELB、TNFAIP3和TRAF1等在PBD114调节免疫反应中起着关键作用。RELB是NF-κB家族中比较不寻常的成员之一。NF-κB信号通路调节着一系列细胞类型和生物过程,包括细胞生长、分化和凋亡的调节,以及先天和适应性免疫系统的发育和功能,RELB则主要参与淋巴细胞发育、树突状细胞(dendritic cell,DC)生物学和非典型信号传导[29-30]。RELB在PBD114调节免疫中的关键作用也印证了其不同于LPS对TNF-α和IL-10的诱导,但PBD114激活免疫的作用机制是否不同于病原体还有待进一步研究。
4 结论
① 作为猪先天免疫分子的一员,PBD114虽然抑菌活性弱,但能够激活巨噬细胞免疫反应,迅速分泌TNF-α和IL-10等细胞因子,协助其抗菌功能防御致病源的感染。
② 通过转录组的深入分析发现,PBD114不仅能够诱导TNF-α和IL-10等促炎抗炎细胞因子,还能通过TNF、MAPK、NF-κB、TLR和IL-17等信号通路调节趋化因子和补体等免疫分子激活免疫。
 京公网安备 11010802041926号


