综述

热应激条件下色氨酸调控畜禽肠道免疫功能的研究进展

  • 周敏敏 , 1 ,
  • 齐智利 1 ,
  • MOHAMMED Khaled Abouelezz Fouad 2 ,
  • 陈伟 , 3, *
展开
  • 1 华中农业大学动物科学技术学院、动物医学院,武汉 430070
  • 2 艾斯尤特大学农学院,艾斯尤特 71526
  • 3 广东省农业科学院动物科学研究所,畜禽育种国家重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室,广州 510640
* 陈伟,研究员,硕士生导师,E-mail:

周敏敏(1999—),女,贵州安顺人,硕士研究生,动物营养与饲料科学专业。E-mail:

Copy editor: 菅景颖

收稿日期: 2023-03-17

  网络出版日期: 2023-09-13

基金资助

国家重点研发计划(2018YFE0128200)

广东省水禽产业技术创新团队(2022KJ137)

科技部外专局项目(QNL20200130001)

畜禽育种国家重点实验室开放课题(2021GZ06)

江门市基础研究项目(2020030102870009145)

Research Progress on Tryptophan Regulating Intestinal Immune Function of Livestock and Poultry under Heat Stress

  • ZHOU Minmin , 1 ,
  • QI Zhili 1 ,
  • MOHAMMED Khaled Abouelezz Fouad 2 ,
  • CHEN Wei , 3, *
Expand
  • 1 College of Animal Science and Technology and College of Veterinary Medicine, Huazhong Agricultural University,Wuhan 430070, China
  • 2 College of Agriculture, Assiut University, Assiut 71526, Egypt
  • 3 Guangdong Key Laboratory of Livestock Breeding and Nutrition Research, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Livestock and Poultry Breeding, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
* professor, E-mail:

Received date: 2023-03-17

  Online published: 2023-09-13

摘要

随着全球气候变暖,夏季高温环境下热应激严重影响畜禽健康,降低畜禽生产效率和产品品质,给养殖业造成了极大的经济损失。色氨酸属于芳香族氨基酸,是畜禽的必需氨基酸,同时也是多种生物活性分子的前体物质,可以调节机体肠道屏障和免疫功能,降低动物的应激反应。本文就热应激对畜禽肠道屏障及免疫功能的影响和色氨酸代谢对肠道屏障及免疫功能的调控作用进行综述,并探讨了色氨酸及其代谢产物调控热应激条件下畜禽肠道屏障及免疫功能的作用机制,以期为生产中应用色氨酸缓解畜禽热应激提供参考。

本文引用格式

周敏敏 , 齐智利 , MOHAMMED Khaled Abouelezz Fouad , 陈伟 . 热应激条件下色氨酸调控畜禽肠道免疫功能的研究进展[J]. 动物营养学报, 2023 , 35(9) : 5569 -5577 . DOI: 10.12418/CJAN2023.513

Abstract

With global warming, livestock and poultry are prone to heat stress in summer under high temperature environment, which negatively affects the health of livestock and poultry, and causes great economic losses to the husbandry industry by reducing the production efficiency and quality of livestock and poultry. Tryptophan is an aromatic amino acid, and it is one of the essential amino acids for livestock and poultry. It can also be utilized as a precursor of various bioactive molecules to reduce animal stress response by regulating the intestinal barrier and immune function of livestock and poultry. In this review, the effects of heat stress on intestinal barrier and immune function of livestock and poultry and the regulation of tryptophan metabolism on intestinal barrier and immune function were summarized, and the mechanism of tryptophan and its metabolites regulating intestinal barrier and immune function of livestock and poultry under heat stress was also discussed, in order to provide theoretical basis for the practical application of tryptophan to alleviate heat stress of livestock and poultry.

近年来全球气候变暖,夏季高温环境下的热应激是引起养殖业经济损失的主要原因。畜禽是恒温动物,现代商业养殖畜禽生长快、基础代谢产热量高,在高温环境下易造成产热与散热失衡,从而引起热应激,影响畜禽健康,并降低畜禽生产力和畜禽产品质量。色氨酸(tryptophan,Trp)是畜禽的必需氨基酸,参与多种生理过程,包括调控采食、促进营养物质消化吸收、提高免疫力,并能在应激条件下维持肠道稳态[1]。本文综述了热应激对畜禽肠道屏障及免疫功能的影响和Trp代谢对肠道屏障及免疫功能的调控作用,并探讨了Trp及其代谢物调控畜禽热应激的作用机制,为生产中合理应用Trp缓解畜禽热应激提供参考。

1 热应激对畜禽生产性能、肠道屏障及免疫功能的影响

1.1 热应激的产生

反刍动物、猪和家禽属于恒温动物,当环境温度高于体温调节上限时,动物体温和代谢产热上升,并伴随着出现呼吸频率和出汗率增加、饮水增多等热应激反应,以缓解高温产生的热应激[2]。热应激进一步通过激活下丘脑-垂体-肾上腺轴(hypothalamic-pituitary-adrenal axis,HPA)促进皮质酮分泌,参与动物体温和代谢调节[3]。皮质酮作为一种应激激素可抑制白细胞介素-4(interleukin-4,IL-4)的产生,而IL-4是参与炎症反应的重要抗炎细胞因子,抑制IL-4产生会导致炎症反应的加剧。

1.2 热应激对畜禽生产性能的影响

高温环境引起的热应激降低畜禽生产性能。研究表明,热应激通过损伤蛋鸡排卵前卵泡颗粒细胞,降低蛋鸡的生长性能、繁殖性能和产蛋性能[4]。家禽生长代谢快,但汗腺不发达,体温高于其他动物,在热应激条件下通过降低采食量适应高温环境。持续的能量摄入量减少导致营养失衡,影响卵巢功能、精液质量和胚胎发育,最终降低家禽的繁殖性能和产蛋率[5]。在奶牛中的研究中发现,热应激会导致产奶量下降,并造成乳腺上皮细胞凋亡,破坏血乳屏障,大量病原微生物进入乳腺腺泡内,引起奶牛乳腺炎[6]。Kim等[7]对肉牛展开的研究发现,热应激条件下肉牛的干物质采食量和平均日增重显著下降。猪的皮下脂肪较厚,且汗腺发育不全,在高温环境下也易发生热应激。Da Fonseca De Oliveira等[8]用Meta分析评估了高温(29~35 ℃)与常温(18~25 ℃)对生长肥育猪生产性能的影响,结果显示,与常温相比,高温会降低生长肥育猪的平均日增重和平均日采食量,从而导致生长性能下降。综上可知,热应激通过降低畜禽采食量,危害畜禽健康,最终降低畜禽产品质量。

1.3 热应激对畜禽肠道屏障及免疫功能的影响

肠道负责营养物质的消化、吸收和转运,也是重要的防御屏障。肠上皮细胞由黏附连接蛋白(adherens junction protein,AJ)、紧密连接蛋白(tight junction protein,TJ)和桥粒连接成肠黏膜上皮,构成肠道黏膜屏障[9]。热应激可破坏肠道黏膜屏障的完整性,增加肠黏膜的通透性。在肉鸡上的研究发现,热应激条件下肉鸡肠道黏膜封闭蛋白-1(Claudin-1)、闭合蛋白(Occludin)、闭锁小带蛋白-1(zonula occludens-1,ZO-1)和E-钙黏蛋白(E-cadherin,E-Cad)的mRNA表达水平降低[10]。在奶牛的研究中发现,热应激引起奶牛肠黏膜的通透性增加,同时大量病原微生物进入肠道,触发肠道免疫防御机制[11]。Smith等[12]的研究显示,肠道黏膜屏障的完整性受损时,血液单核细胞被分化为肠道固有层的巨噬细胞,吞噬入侵的有害微生物,同时清除凋亡细胞。Hu等[13]的研究发现,热应激诱导猪结肠机会性致病菌弯曲杆菌的相对丰度增加,打破了结肠的微生物稳态,进而诱发肠道炎症反应和氧化应激。综上可知,热应激破坏畜禽肠道黏膜屏障的完整性,随后导致肠腔内致病菌的渗透,进一步降低肠道免疫防御功能。

2 Trp对畜禽生产性能、肠道屏障及免疫功能的调控

2.1 Trp对畜禽生产性能的调控

Trp是畜禽的必需氨基酸,主要参与体蛋白质和生物活性分子的合成。研究发现,在热应激条件下对7日龄雏鸡腹膜内注射Trp可提高雏鸡采食量,降低热应激期间雏鸡的直肠温度和血清皮质酮水平,减少热应激引起的生长性能下降[14]。而另一项研究发现,饲粮中添加0.5%Trp可显著增加7~21日龄肉鸡的体增重和饲料转化率[15]。由此可见,不论是注射还是口服,Trp对肉鸡的生长都有一定的促进作用。Ma等[16]研究表明,在荷斯坦奶牛饲粮中添加Trp可提高产奶量和乳蛋白含量。而Liu等[17]在猪上的研究发现,饲粮中添加Trp提高了生长肥育猪的饲料利用率。以上研究结果表明,Trp可不同程度缓解畜禽热应激,提高畜禽生产性能。

2.2 Trp对畜禽肠道屏障及免疫功能的调控

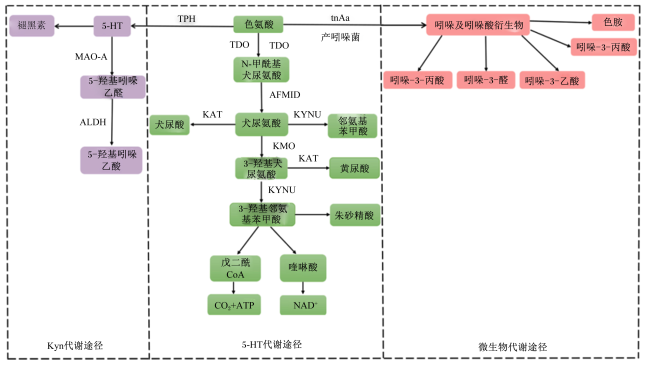
动物机体中的Trp可被宿主细胞或肠道微生物代谢,产生不同类型的代谢物,进而参与炎症反应、免疫应答和共生菌群调节等生理功能[18]。犬尿氨酸(kynurenine,Kyn)、犬尿酸(kynuric acid,KA)和吲哚是Trp的代谢物,并可作为芳烃受体(aryl hydrocarbon receptor,AhR)信号的激动剂调节宿主免疫反应[19]。Kyn代谢途径、5-羟色胺(5-hydroxytryptamine,5-HT)代谢途径和微生物代谢途径是动物肠道中负责Trp代谢的3条主要途径,其中Kyn代谢途径和5-HT代谢途径属于宿主代谢途径。Trp代谢的3条主要途径的具体代谢过程如图1所示。
图1 肠道中Trp的3条主要代谢途径

TDO:色氨酸-2,3-双加氧酶 tryptophan-2,3-dioxygenase;IDO:吲哚胺-2,3-双加氧酶 indoleamine-2,3-dioxygenase;AFMID:犬尿氨酸甲酰胺酶 kynurenine formamidase;KAT:犬尿氨酸转氨酶 kynurenine transaminase;KYNU:2-氨基-4-[3-羟基苯基]-4-羟基丁酸 2-amino-4-[3-hydroxyphenyl]-4-hydroxybutyric acid;KMO:犬尿氨酸3-单加氧酶 kynurenine 3-monooxygenase;NAD+:烟酰胺腺嘌呤二核苷酸 nicotinamide adenine dinucleotide;5-HT:5-羟色胺 5-hydroxytryptamine;Kyn:犬尿氨酸 kynurenine;MAO-A:单胺氧化酶-A monoamine oxidase-A;ALDH:乙醛脱氢酶 acetaldehyde dehydrogenase;TPH:色氨酸羟化酶 tryptophan hydroxylase;tnAa:色氨酸酶 tryptophanase。

Fig.1 Three main metabolic pathways of Trp in intestine[24]

2.2.1 Kyn代谢途径对畜禽肠道屏障及免疫功能的调控

机体摄入的Trp只有不到1%的部分用于合成蛋白质,其余被动物细胞代谢[20],其中超过90%的Trp通过Kyn代谢途径代谢,该途径主要发生在肝脏,其次是大脑和小肠,代谢限速酶主要为色氨酸-2,3-双加氧酶(tryptophan-2,3-dioxygenase,TDO)和吲哚胺-2,3-双加氧酶(indoleamine-2,3-dioxygenase,IDO)[21]。IDO广泛存在于女性胎盘上皮细胞和肺内皮细胞等各种细胞中[22],而TDO主要存在于肝细胞中[23]。Trp被TDO或IDO催化产生3-羟基犬尿氨酸、喹啉酸、黄尿酸等多种代谢产物,经系列生化反应后最终分解为CO2和烟酰胺腺嘌呤二核苷酸(nicotinamide adenine dinucleotide,NAD+),这些代谢产物可参与调节动物肠道屏障和免疫功能[24]。Kyn以NAD+的形式为细胞提供能量,从而满足细胞免疫反应过程中能量的需求,因此Kyn是免疫系统的关键调节因子[25]。NAD+是一种参与DNA损伤修复、细胞生长和新陈代谢的基本辅酶,在肠道黏膜免疫和慢性炎症中也起着关键作用。研究表明,NAD+可提高衰老和炎症中巨噬细胞的免疫功能,降低炎症易感性[26]。Kuc等[27]研究发现,大肠杆菌能通过Kyn代谢途径产生KA,而KA可以改善胃肠道功能,维持肠道屏障完整性。Deng等[28]在慢性束缚应激(chronic restraint stress,CRS)小鼠模型中的研究表明,拟杆菌属可抑制Kyn代谢途径,而其他微生物产生的IDO1则可激活肠道免疫细胞和上皮细胞中Kyn代谢途径。综上所述,Trp经Kyn代谢途径代谢产生的KA维持肠道屏障完整性,Kyn代谢途径产生的终产物NAD+为免疫细胞供能,而Kyn代谢途径虽然是宿主代谢途径,但受到肠道微生物的影响。

2.2.2 5-HT代谢途径对畜禽肠道屏障及免疫功能的调控

5-HT是重要的胃肠道信号分子,5-HT代谢途径的限速酶为色氨酸羟化酶(tryptophan hydroxylase,TPH)。有1%~2%的膳食Trp通过5-HT代谢途径转化为5-HT,5-HT可进一步代谢形成褪黑素,或被单胺氧化酶-A(monoamine oxidase-A,MAO-A)氧化脱氨基,产生5‐羟基吲哚乙醛,并被乙醛脱氢酶(acetaldehyde dehydrogenase,ALDH)进一步代谢,生成5-羟基吲哚乙酸,主要通过尿液排泄。5-HT主要存在于人和动物的胃肠道、血小板和中枢神经系统,而体内大约95%的5-HT存在于胃肠道的肠嗜铬细胞(enterochromaffin cell,EC)中[29]。5-HT在调节肠道炎症中发挥着重要作用,Margolis等[30]在小鼠肠道中的研究发现,用外周TPH抑制剂抑制肠道黏膜5-HT过量产生有利于缓解三硝基苯磺酸(trinitrobenzene sulfonic acid,TNBS)诱导的结肠炎。Shi等[31]研究发现,TPH抑制剂可以治愈由5-HT代谢途径失调引起的胃肠道疾病。因此,胃肠道中适宜的5-HT浓度对维持肠道健康至关重要。此外,5-HT可通过5-羟色胺受体(5-HT receptors,5-HTR)激活T细胞、树突状细胞和巨噬细胞等免疫细胞,诱导免疫应答[32]。Yano等[33]报道,来自小鼠和人类肠道的本地孢子形成细菌促进结肠嗜铬细胞内5-HT的合成,改善胃肠道运动。此外,Reigstad等[34]研究发现,肠道微生物代谢产物短链脂肪酸(short-chain fatty acid,SCFAs)能刺激结肠中5-HT的产生并促进肠道蠕动。5-HT进一步代谢生成褪黑素,且在肠道中产生的褪黑素远高于松果体中,褪黑素对缓解肠黏膜损伤引起的肠黏膜通透性增加起着重要作用。已有研究表明,褪黑素可抑制小鼠氧化应激,减轻睡眠剥夺引起的小肠黏膜损伤[35]。由此可见,5-HT通过激活免疫细胞触发机体免疫应答,其代谢产生的褪黑素可以保护肠道机械屏障,特定的肠道微生物及其代谢产物促进5-HT的生物合成。

2.2.3 微生物代谢途径对畜禽肠道屏障及免疫功能的调控

膳食中5%的Trp通过肠道微生物代谢为吲哚及吲哚酸衍生物。大肠杆菌、霍乱弧菌等众多细菌通过色氨酸酶(tryptophanase,tnAa)代谢Trp生成吲哚。研究发现,吲哚可促进人小肠和大肠交界处肠上皮细胞中ClaudinZO-1的表达,进而维持肠道黏膜屏障的完整性[36]。此外,吲哚是一种重要的天然免疫调节剂,可促进吲哚并[2-b]咔唑(indolo [2-b] carbazole,ICZ)的产生。ICZ是一种葡糖芸苔素衍生的化合物,与AhR具有较强的亲和力[37]。AhR呈螺旋-环-螺旋形状,是一种可结合配体的转录调控因子,在肠道上皮细胞和免疫细胞中广泛表达。因此,吲哚在微生物与宿主免疫系统之间信号传递中发挥着重要作用。研究发现,吲哚-3-乳酸(indole-3-lactic acid,ILA)可由罗伊氏乳杆菌代谢Trp生成,并可作为AhR配体诱导CD4+ T淋巴细胞分化为CD4+CD8αα+TCRαβT细胞[称为双阳性上皮内淋巴细胞(double positive intraepithelial lymphocytes,DPIEL)][38]。研究表明,肠上皮由于血流不畅氧饱和度较低,而DPIEL可通过调节缺氧诱导因子快速适应转基因小鼠肠道组织的缺氧环境,维持肠道健康[39]。吲哚-3-丙酸(indole 3 propanoic acid,IPA)可由梭状芽胞杆菌代谢Trp合成[40],Li等[41]采用Caco-2/HT29细胞共培养模型评价了IPA对肠道屏障的影响,发现IPA不仅增加了跨上皮电阻,降低了细胞旁通透性,而且降低了脂多糖(lipopolysaccharide,LPS)诱导炎症因子的表达。此外,吲哚-3-醛(indole-3-aldehyde,IAld)通过激活AhR分泌白细胞介素-22(interleukin-22,IL-22)发挥抗炎活性[42]。综上可知,Trp微生物代谢物通过促进肠上皮细胞中TJ的基因表达维持肠道黏膜屏障的完整性,并通过激活AhR调节免疫细胞的分化和下游细胞因子的分泌,进一步调控肠道免疫功能。除以上吲哚酸衍生物之外,近年来的研究还发现吲哚-3-乙酸、色胺等也在维持肠道稳态和改善肠道免疫健康方面发挥作用,但具体机制还有待深入探究。

3 Trp及其代谢产物调控热应激条件下畜禽肠道屏障及免疫功能的作用机制

3.1 Trp调控热应激条件下畜禽肠道屏障的作用机制

相邻肠上皮细胞通过蛋白质间互作连接在一起形成肠黏膜,其中TJ和AJ是参与维持细胞极性的关键蛋白。Liu等[43]研究结果表明,Trp能增加猪肠上皮细胞(intestinal epithelial cell,IEC)关键紧密连接蛋白ZO-1、Occludin以及Claudins的含量,降低白细胞介素-8(interleukin-8,IL-8)和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)的含量,维持肠道屏障的完整性。同时,在LPS诱导的Caco-2细胞单层模型中发现,Trp可通过抑制核转录因子-κB(nuclear factor-kappa B,NF-κB)-肌球蛋白轻链激酶(myosin light chain kinase,MLCK)信号通路的传导减轻LPS诱导的TJ损伤,从而保护肠道屏障[44]。刘延祥等[45]研究发现,热应激引起鸡肠道内乳酸杆菌、双歧杆菌等有益菌相对丰度减少,而有害菌相对丰度增加,破坏肠道菌群稳态。而Liang等[46]的研究发现,在断奶仔猪饲粮中补充Trp可降低仔猪小肠病原菌(如梭菌)的相对丰度,并提高Trp代谢细菌(如乳酸杆菌)的相对丰度;该研究还发现补充0.2%~0.4%Trp可提高仔猪空肠中分泌型免疫球蛋白A(secretory immunoglobulin A,sIgA)的含量,提高β防御素2和3的mRNA表达水平。sIgA和β防御素可有效抵抗病原微生物的入侵,表明Trp可改善肠道微环境,提高肠黏膜免疫力。以上研究表明,Trp可能通过调节肠道TJ含量和肠道菌群组成缓解热应激引起的畜禽肠道黏膜通透性增加,进而影响肠道免疫防御功能。

3.2 Trp体内代谢产物调控热应激条件下畜禽肠道免疫功能的作用机制

3.2.1 Trp代谢产物调控热应激条件下畜禽肠道免疫功能的作用机制

热应激破坏畜禽肠上皮屏障的完整性,降低肠道免疫防御功能。而宿主代谢Trp生成的5-HT和Kyn可通过诱导免疫细胞分泌下游细胞因子调节免疫功能。5-HT可结合先天免疫细胞上的5-HTR,继而影响细胞因子的分泌。Mahé等[47]研究发现,5-HT可通过激活人小胶质细胞上的5-羟色胺受体-7(5-HT receptor 7,5-HTR7)分泌白细胞介素-6(interleukin-6,IL-6)调节神经炎症反应。Idzko等[48]研究了人树突状细胞上5-HTR的表达情况,发现5-HT能通过激活5-HTR家族中的5-HTR4和5-HTR7,促进成熟树突状细胞释放细胞因子白细胞介素-1β(interleukin-1β,IL-1β)和IL-8,同时减少白细胞介素-12(interleukin-12,IL-12)和TNF-α的分泌,这表明5-HT可通过调控树突状细胞中不同的信号通路调节先天免疫。Zhang等[49]研究表明,Kyn通过促进AhR核转位增加调节性T细胞(regulatory T cells,Tregs)标志物叉头框蛋白P3(Forkhead box protein P3,Foxp3)的转录,其中Tregs是抑制细胞免疫的一种T细胞功能亚群,在免疫耐受中发挥重要作用,而Foxp3在调节机体免疫稳态中起关键作用。此外,Campesato等[50]发现,Kyn可激活AhR,上调CD8+T细胞中程序性死亡蛋白-1(programmed death protein-1,PD-1)的表达水平,防止因CD8+T细胞耗竭而出现免疫失调。抑制体液免疫的B细胞,被称为调节性B细胞(regulatory B cells,Bregs),在抑制炎症方面起着重要作用。Piper等[51]研究表明,AhR可介导B细胞分化为Bregs,促进抗炎因子白细胞介素-10(interleukin-10,IL-10)生成。而Masuda等[52]发现AhR可抑制巨噬细胞分泌促炎细胞因子IL-6。以上研究表明,5-HT通过结合5-HTR在神经系统和先天免疫系统中起着重要作用,Kyn通过激活AhR调节适应性和先天性免疫反应。虽然5-HT和Kyn对免疫细胞的调节作用已有一定研究,但肠道作为机体最大的免疫器官,存在大量免疫细胞,而目前5-HT和Kyn调节肠道免疫细胞的作用机制仍是研究空白。本实验室推测宿主Trp代谢产物可能通过激活AhR调节Tregs、Bregs、CD8+T细胞、树突状细胞、巨噬细胞等免疫细胞的分化和下游因子的释放,来维持热应激条件下畜禽肠道免疫功能,未来本实验室将设计试验对这一猜想进行验证。

3.2.2 Trp微生物代谢产物调控热应激条件下畜禽肠道免疫功能的可能作用机制
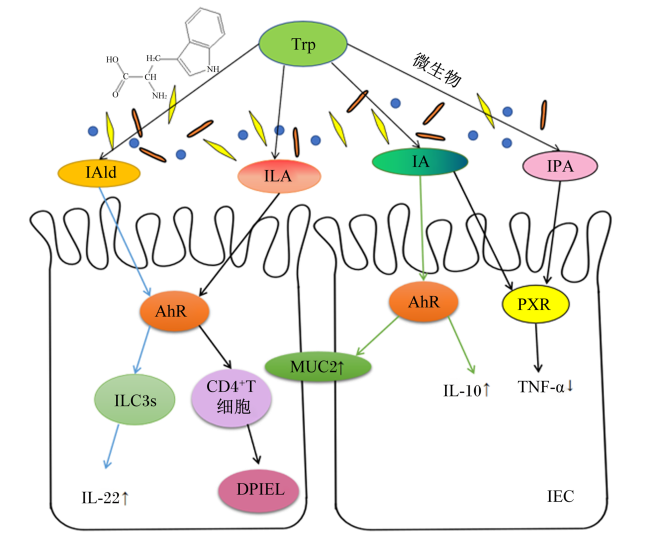
热应激导致肠黏膜损伤,随后肠腔内微生物稳态失衡,有益菌相对丰度减少,有害菌相对丰度增加,降低肠道免疫防御功能。Wlodarska等[53]在葡聚糖硫酸钠(dextran sodium sulfate,DSS)诱导的小鼠结肠炎模型研究中发现,消化链球菌代谢Trp产生的吲哚丙烯酸(indoleacrylic acid,IA)不仅可通过激活孕烷X受体(pregnane X receptor,PXR)降低肠上皮细胞中TNF-α的表达水平,还可激活AhR并产生IL-10,促进黏蛋白2(mucin 2,MUC2)的表达,黏蛋白可以被共生细菌用作能量来源,IL-10可作为抗炎细胞因子缓解肠道炎症,这一结果表明Trp的微生物代谢产物IA可缓解肠道炎症,增强肠上皮屏障功能。Venkatesh等[54]的研究结果显示,产孢梭菌代谢Trp产生的吲哚3-丙酸(indole 3-propionic acid,IPA)可通过激活PXR下调肠上皮细胞中TNF-α的mRNA表达水平,PXR是核受体超家族成员之一,被配体激活后可调节先天免疫反应消灭入侵的病原微生物。如前所述,IAld能够通过激活AhR诱导3型天然淋巴细胞(group 3 innate lymphoid cells,ILC3s)产生IL-22[42],ILC3s是一类不同于T细胞和B细胞的淋巴细胞亚群,位于肠道黏膜表面,可增强肠道黏膜免疫,维持肠道黏膜屏障完整性,而IL-22是维持肠道屏障稳态的一种重要细胞因子。ILA除了可激活AhR诱导CD4+T淋巴细胞分化为CD4+CD8αα+TCRαβT细胞(DPIEL)外,还可抑制CD4+T淋巴细胞分化为Tregs和Th17[55]。机体内Th17和Tregs的平衡对维持自身免疫至关重要。以上研究表明,Trp的微生物代谢产物可能通过激活AhR和PXR并调节ILC3s、CD4+T淋巴细胞和DPIEL等免疫细胞的分化和下游因子的释放调节热应激条件下畜禽肠道免疫功能(图2)。
图2 Trp微生物代谢产物调控热应激条件下畜禽肠道免疫功能的可能作用机制

Trp:色氨酸 tryptophan;IAld:吲哚-3-醛 indole-3-aldehyde;ILA:吲哚-3-乳酸 indole-3-lactic acid;IA:吲哚丙烯酸 indoleacrylic acid;IPA:吲哚3-丙酸 indole 3-propionic acid;AhR:芳烃受体 aryl hydrocarbon receptor;ILC3s:3型天然淋巴细胞 group 3 innate lymphoid cells;MUC2:黏蛋白2 mucin 2;IL-22:白细胞介素-22 interleukin-22;DPIEL:双阳性上皮内淋巴细胞 double positive intraepithelial lymphocytes;PXR:孕烷X受体 pregnane X receptor;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-10:白细胞介素-10 interleukin-10;IEC:肠上皮细胞 intestinal epithelial cell。

Fig.2 Possible mechanism of Trp microbial metabolites regulating intestinal immune function of livestock and poultry under heat stress

4 小结

综上所述,Trp及其代谢产物可能主要通过以下途径缓解热应激条件下畜禽肠道黏膜损伤,从而保证热应激条件下动物肠道健康,维持动物正常生长:1)促进肠道紧密连接蛋白表达,维持肠道屏障完整性;2)降低肠道病原菌相对丰度,并提高Trp代谢细菌相对丰度,改善肠道微生态;3)激活AhR、5-HTR和PXR等受体并调节一系列免疫细胞的分化和下游细胞因子的分泌调控畜禽肠道黏膜免疫功能。
Trp代谢产物通过激活AhR调节肠道免疫,但热应激条件下何种Trp代谢产物对肠道黏膜免疫起主要作用犹未可知。热应激导致畜禽肠道微生物稳态紊乱,尽管目前已明确了部分细菌可代谢Trp并参与肠道黏膜损伤修复,但由于肠道菌群的多样性,还有哪些菌参与了Trp代谢,它们调控畜禽肠道黏膜物理屏障和黏膜免疫功能的具体机制仍是未来需要深入研究的方向;此外,确定不同动物不同生长阶段利用Trp缓解热应激时,Trp的最佳剂量对减少热应激带来的经济损失也至关重要。
[1]
COMAI S, BERTAZZO A, BRUGHERA M, et al. Tryptophan in health and disease[J]. Advances in Clinical Chemistry, 2020, 95:165-218.

DOI PMID

[2]
SEJIAN V, BHATTA R, GAUGHAN J B, et al. Review:adaptation of animals to heat stress[J]. Animal, 2018,12 (Suppl.2):s431-s444.

[3]
WANG Y, SUN W J, WU E Y, et al. Polysaccharides from Abrus cantoniensis Hance modulate intestinal microflora and improve intestinal mucosal barrier and liver oxidative damage induced by heat stress[J]. Frontiers in Veterinary Science, 2022, 9:868433.

DOI

[4]
YAN L Y, HU M D, GU L H, et al. Effect of heat stress on egg production,steroid hormone synthesis,and related gene expression in chicken preovulatory follicular granulosa cells[J]. Animals, 2022, 12(11):1467.

DOI

[5]
CHEN S W, YONG Y H, JU X H. Effect of heat stress on growth and production performance of livestock and poultry:mechanism to prevention[J]. Journal of Thermal Biology, 2021, 99:103019.

DOI

[6]
DU D W, FENG L, CHEN P, et al. Effects of Saccharomyces cerevisiae cultures on performance and immune performance of dairy cows during heat stress[J]. Frontiers in Veterinary Science, 2022, 9:851184.

DOI

[7]
KIM W S, GHASSEMI NEJAD J, PENG D Q, et al. Effects of different protein levels on growth performance and stress parameters in beef calves under heat stress[J]. Scientific Reports, 2022, 12(1):8113.

DOI PMID

[8]
DA FONSECA DE OLIVEIRA A C, VANELLI K, SOTOMAIOR C S, et al. Impacts on performance of growing-finishing pigs under heat stress conditions:a meta-analysis[J]. Veterinary Research Communications, 2019, 43(1):37-43.

DOI

[9]
SHEN L, WEBER C R, RALEIGH D R, et al. Tight junction pore and leak pathways:a dynamic duo[J]. Annual Review of Physiology, 2011, 73:283-309.

DOI

[10]
ZHANG C, ZHAO X H, YANG L, et al. Resveratrol alleviates heat stress-induced impairment of intestinal morphology,microflora,and barrier integrity in broilers[J]. Poultry Science, 2017, 96(12):4325-4332.

DOI

[11]
KOCH F, THOM U, ALBRECHT E, et al. Heat stress directly impairs gut integrity and recruits distinct immune cell populations into the bovine intestine[J]. Proceedings of the National Academy of Sciences of the United States of America, 2019, 116(21):10333-10338.

DOI PMID

[12]
SMITH P D, SMYTHIES L E, SHEN R, et al. Intestinal macrophages and response to microbial encroachment[J]. Mucosal Immunology, 2011, 4(1):31-42.

DOI PMID

[13]
HU C Y, PATIL Y, GONG D L, et al. Heat stress-induced dysbiosis of porcine colon microbiota plays a role in intestinal damage:a fecal microbiota profile[J]. Frontiers in Veterinary Science, 2022, 9:686902.

DOI

[14]
BADAKHSHAN Y, EMADI L, ESMAEILI-MAHANI S, et al. The effect of L-tryptophan on the food intake,rectal temperature,and blood metabolic parameters of 7-day-old chicks during feeding,fasting,and acute heat stress[J]. Iranian Journal of Veterinary Research, 2021, 22(1):55-64.

[15]
MUND M D, RIAZ M, MIRZA M A, et al. Effect of dietary tryptophan supplementation on growth performance,immune response and anti-oxidant status of broiler chickens from 7 to 21 days[J]. Veterinary Medicine and Science, 2020, 6(1):48-53.

DOI

[16]
MA H, YAO S Y, BAI L B, et al. The effects of rumen-protected tryptophan (RPT) on production performance and relevant hormones of dairy cows[J]. PeerJ, 2022, 10:e13831.

DOI

[17]
LIU H N, HU C A A, BAI M M, et al. Short-term supplementation of isocaloric meals with L-tryptophan affects pig growth[J]. Amino Acids, 2017, 49(12):2009-2014.

DOI PMID

[18]
BECKER C, ADOLPH T E. Disentangling tryptophan metabolism in inflammatory bowel diseases[J/OL]. Gut, 2023:gutjnl-gu2022. https://pubmed.ncbi.nlm.nih.gov/36596710/. DOI:10.1136/gutjnl-2022-328853.

DOI

[19]
SUN M G, MA N, HE T, et al. Tryptophan (Trp) modulates gut homeostasis via aryl hydrocarbon receptor (AhR)[J]. Critical Reviews in Food Science and Nutrition, 2020, 60(10):1760-1768.

DOI PMID

[20]
BENDER D A. Biochemistry of tryptophan in health and disease[J]. Molecular Aspects of Medicine, 1983, 6(2):101-197.

PMID

[21]
KENNEDY P J, CRYAN J F, DINAN T G, et al. Kynurenine pathway metabolism and the microbiota-gut-brain axis[J]. Neuropharmacology, 2017, 112(Pt B):399-412.

DOI PMID

[22]
THEATE I, VAN B N, PILOTTE L, et al. Correction:extensive profiling of the expression of the indoleamine 2,3-dioxygenase 1 protein in normal and tumoral human tissues[J]. Cancer Immunology Research, 2020, 8(6):161-172.

DOI

[23]
SALTER M, HAZELWOOD R, POGSON C I, et al. The effects of a novel and selective inhibitor of tryptophan 2,3-dioxygenase on tryptophan and serotonin metabolism in the rat[J]. Biochemical Pharmacology, 1995, 49(10):1435-1442.

DOI PMID

[24]
杨刚, 张云露, 李思明, 等. 色氨酸对肠屏障免疫的调控作用研究进展[J]. 中国畜牧杂志, 2021, 57(4):6-10,16.

YANG G, ZHANG Y L, LI S M, et al. Research progress on the regulatory effect of tryptophan on intestinal barrier immunity[J]. Chinese Journal of Animal Science, 2021, 57(4):6-10,16. (in Chinese)

[25]
SAVITZ J. The kynurenine pathway:a finger in every pie[J]. Molecular Psychiatry, 2020, 25(1):131-147.

DOI

[26]
MINHAS P S, LIU L, MOON P K, et al. Macrophage de novo NAD+ synthesis specifies immune function in aging and inflammation[J]. Nature Immunology, 2019, 20(1):50-63.

DOI

[27]
KUC D, ZGRAJKA W, PARADA-TURSKA J, et al. Micromolar concentration of kynurenic acid in rat small intestine[J]. Amino Acids, 2008, 35(2):503-505.

DOI PMID

[28]
DENG Y Y, ZHOU M F, WANG J F, et al. Involvement of the microbiota-gut-brain axis in chronic restraint stress:disturbances of the kynurenine metabolic pathway in both the gut and brain[J]. Gut Microbes, 2021, 13(1):1-16.

[29]
LIU N, SUN S Q, WANG P J, et al. The mechanism of secretion and metabolism of gut-derived 5-hydroxytryptamine[J]. International Journal of Molecular Sciences, 2021, 22(15):7931.

DOI

[30]
MARGOLIS K G, STEVANOVIC K, LI Z S, et al. Pharmacological reduction of mucosal but not neuronal serotonin opposes inflammation in mouse intestine[J]. Gut, 2014, 63(6):928-937.

DOI PMID

[31]
SHI Z C, DEVASAGAYARAJ A, GU K J, et al. Modulation of peripheral serotonin levels by novel tryptophan hydroxylase inhibitors for the potential treatment of functional gastrointestinal disorders[J]. Journal of Medicinal Chemistry, 2008, 51(13):3684-3687.

DOI

[32]
KOOPMAN N, KATSAVELIS D, HOVE A S T, et al. The multifaceted role of serotonin in intestinal homeostasis[J]. International Journal of Molecular Sciences, 2021, 22(17):9487.

DOI

[33]
YANO J M, YU K, DONALDSON G P, et al. Indigenous bacteria from the gut microbiota regulate host serotonin biosynthesis[J]. Cell, 2015, 161(2):264-276.

DOI PMID

[34]
REIGSTAD C S, SALMONSON C E, RAINEY J F 3RD, et al. Gut microbes promote colonic serotonin production through an effect of short-chain fatty acids on enterochromaffin cells[J]. FASEB Journal, 2015, 29(4):1395-1403.

DOI PMID

[35]
GAO T, WANG Z X, CAO J, et al. Melatonin alleviates oxidative stress in sleep deprived mice:involvement of small intestinal mucosa injury[J]. International Immunopharmacology, 2020, 78:106041.

DOI

[36]
BANSAL T, ALANIZ R C, WOOD T K, et al. The bacterial signal indole increases epithelial-cell tight-junction resistance and attenuates indicators of inflammation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2010, 107(1):228-233.

DOI PMID

[37]
BJELDANES L F, KIM J Y, GROSE K R, et al. Aromatic hydrocarbon responsiveness-receptor agonists generated from indole-3-carbinol in vitro and in vivo:comparisons with 2,3,7,8-tetrachlorodibenzo-p-dioxin[J]. Proceedings of the National Academy of Sciences of the United States of America, 1991, 88(21):9543-9547.

[38]
CERVANTES-BARRAGAN L, CHAI J N, TIANERO M D, et al. Lactobacillus reuteri induces gut intraepithelial CD4+CD8αα+ T cells[J]. Science, 2017, 357(6353):806-810.

DOI

[39]
HARADA Y, SUJINO T, MIYAMOTO K, et al. Intracellular metabolic adaptation of intraepithelial CD4+CD8αα+ T lymphocytes[J]. iScience, 2022, 25(4):104021.

DOI

[40]
WIKOFF W R, ANFORA A T, LIU J, et al. Metabolomics analysis reveals large effects of gut microflora on mammalian blood metabolites[J]. Proceedings of the National Academy of Sciences of the United States of America, 2009, 106(10):3698-3703.

DOI PMID

[41]
LI J J, ZHANG L, WU T, et al. Indole-3-propionic acid improved the intestinal barrier by enhancing epithelial barrier and mucus barrier[J]. Journal of Agricultural and Food Chemistry, 2021, 69(5):1487-1495.

DOI PMID

[42]
ZELANTE T, IANNITTI R G, CUNHA C, et al. Tryptophan catabolites from microbiota engage aryl hydrocarbon receptor and balance mucosal reactivity via interleukin-22[J]. Immunity, 2013, 39(2):372-385.

DOI PMID

[43]
LIU G M, GU K, WANG F, et al. Tryptophan ameliorates barrier integrity and alleviates the inflammatory response to enterotoxigenic Escherichia coli K88 through the CaSR/Rac1/PLC-γ1 signaling pathway in porcine intestinal epithelial cells[J]. Frontiers in Immunology, 2021, 12:748497.

DOI

[44]
CHEN M D, LIU Y Y, XIONG S B, et al. Dietary L-tryptophan alleviated LPS-induced intestinal barrier injury by regulating tight junctions in a Caco-2 cell monolayer model[J]. Food & Function, 2019, 10(5):2390-2398.

[45]
刘延祥, 徐中相. 热应激对鸡肠道微生物的影响及调控研究[J]. 中国畜牧业, 2022(18):115-116.

LIU Y X, XU Z X. Effects of heat stress on chicken gut microbiota and its regulation[J]. China Animal Industry, 2022(18):115-116. (in Chinese)

[46]
LIANG H W, DAI Z L, KOU J, et al. Dietary L-tryptophan supplementation enhances the intestinal mucosal barrier function in weaned piglets:implication of tryptophan-metabolizing microbiota[J]. International Journal of Molecular Sciences, 2018, 20(1):20.

DOI

[47]
MAHÉ C, LOETSCHER E, DEV K K, et al. Serotonin 5-HT7 receptors coupled to induction of interleukin-6 in human microglial MC-3 cells[J]. Neuropharmacology, 2005, 49(1):40-47.

PMID

[48]
IDZKO M, PANTHER E, STRATZ C, et al. The serotoninergic receptors of human dendritic cells:identification and coupling to cytokine release[J]. Journal of Immunology, 2004, 172(10):6011-6019.

DOI

[49]
ZHANG X, LIU X T, ZHOU W, et al. Blockade of IDO-kynurenine-AhR axis ameliorated colitis-associated colon cancer via inhibiting immune tolerance[J]. Cellular and Molecular Gastroenterology and Hepatology, 2021, 12(4):1179-1199.

DOI PMID

[50]
CAMPESATO L F, BUDHU S, TCHAICHA J, et al. Blockade of the AHR restricts a Treg-macrophage suppressive axis induced by L-kynurenine[J]. Nature Communications, 2020, 11(1):4011.

DOI

[51]
PIPER C J M, ROSSER E C, OLEINIKA K, et al. Aryl hydrocarbon receptor contributes to the transcriptional program of IL-10-producing regulatory B cells[J]. Cell Reports, 2019, 29(7):1878-1892.e7.

DOI PMID

[52]
MASUDA K, KIMURA A, HANIEH H, et al. Aryl hydrocarbon receptor negatively regulates LPS-induced IL-6 production through suppression of histamine production in macrophages[J]. International Immunology, 2011, 23(10):637-645.

DOI PMID

[53]
WLODARSKA M, LUO C W, KOLDE R, et al. Indoleacrylic acid produced by commensal Peptostreptococcus species suppresses inflammation[J]. Cell Host & Microbe, 2017, 22(1):25-37.e6.

[54]
VENKATESH M, MUKHERJEE S, WANG H W, et al. Symbiotic bacterial metabolites regulate gastrointestinal barrier function via the xenobiotic sensor PXR and Toll-like receptor 4[J]. Immunity, 2014, 41(2):296-310.

DOI PMID

[55]
WILCK N, MATUS M G, KEARNEY S M, et al. Salt-responsive gut commensal modulates TH17 axis and disease[J]. Nature, 2017, 551(7682):585-589.

DOI

文章导航

/