研究论文

不同蛋白质水平饲粮对舍饲牦牛生长性能、瘤胃发酵参数及菌群结构和功能的影响

  • 甄虎 , 1, 2 ,
  • 庞凯悦 1, 2 ,
  • 李红丽 1, 2 ,
  • 柴沙驼 1, 2 ,
  • 王迅 1, 2 ,
  • 孙武 1, 2 ,
  • 张艳 1, 2 ,
  • 扎西东智 3 ,
  • 董谭琴 1, 2 ,
  • 杨英魁 , 1, 2, * ,
  • 王书祥 , 1, 2, *
展开
  • 1 青海大学农牧学院,西宁 810016
  • 2 青海省畜牧兽医科学院,西宁 810016
  • 3 青海省黄南州尖扎县畜牧兽医站,西宁 810016
* 杨英魁,助理研究员,E-mail: ;
王书祥,研究员,硕士生导师,E-mail:

甄虎(1998—),男,山东德州人,硕士研究生,研究方向为反刍动物营养。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-04-13

  网络出版日期: 2023-09-13

基金资助

青海高海拔地区特色养殖业提质增效关键技术集成与示范(2022YFD1602301)

Effects of Diets with Different Protein Levels on Growth Performance, Rumen Fermentation Parameters and Structure and Function of Bacterial Flora of Housed Yaks

  • ZHEN Hu , 1, 2 ,
  • PANG Kaiyue 1, 2 ,
  • LI Hongli 1, 2 ,
  • CHAI Shatuo 1, 2 ,
  • WANG Xun 1, 2 ,
  • SUN Wu 1, 2 ,
  • ZHANG Yan 1, 2 ,
  • ZAXI Dongzhi 3 ,
  • DONG Tanqin 1, 2 ,
  • YANG Yingkui , 1, 2, * ,
  • WANG Shuxiang , 1, 2, *
Expand
  • 1 College of Agriculture and Animal Husbandry, Qinghai University, Xining 810016, China
  • 2 Qinghai Academy of Animal Husbandry and Veterinary Science, Xining 810016, China
  • 3 Animal Husbandry and Veterinary Station, Jianza County, Huangnan Prefecture, Qinghai Province, Xining 810016, China
* YANG Yingkui, assistant professor, E-mail: ;
WANG Shuxiang, professor, E-mail:

Received date: 2023-04-13

  Online published: 2023-09-13

摘要

本试验旨在研究饲粮不同蛋白质水平对舍饲牦牛生长性能、瘤胃发酵参数及菌群结构和功能的影响。试验选取36头体重为(200±20) kg、健康状况良好的成年公牦牛,随机分为3组,每组3个重复,每个重复4头牦牛。在饲粮代谢能(10.6 MJ/kg)一致的前提下,分别配制低蛋白质水平饲粮(12%,LP组)、中蛋白质水平饲粮(14%,MP组)、高蛋白质水平饲粮(16%,HP组)。预试期15 d,正试期90 d。结果表明:1)MP组牦牛平均日增重显著高于LP组和HP组(P<0.05);LP组干物质采食量显著高于HP组(P<0.05);LP组料重比显著高于MP组和HP组(P<0.05)。2)LP组微生物蛋白浓度显著低于HP组(P<0.05);MP组丙酸浓度显著低于HP组(P<0.05)。3)3个试验组共鉴定出11 989种瘤胃液特征序列,共有1 165种瘤胃液特征序列(ASVs),占总数的9.72%,LP组、MP组和HP组的ASVs数量分别为3 437、4 184和3 903种,其独占种数分别为1 351、1 978和1 790种;LP组Shannon指数显著低于MP组和HP组(P<0.05);LP组Simpson指数显著低于MP组(P<0.05)。4)在门水平上,MP组螺旋体门(Spirochaetota)相对丰度显著高于其他2组(P<0.05);LP组广古菌门(Euryarchaeota)相对丰度显著低于其他2组(P<0.05);在属水平上,LP组与MP组克里斯藤森菌科_R-7(Christensenellaceae_R-7)相对丰度均显著低于HP组(P<0.05)。5)利用PICRUSt2来预测瘤胃细菌的代谢途径及功能,在KEGG2水平上,氨基酸代谢、能量代谢、辅助因子和维生素的代谢在HP组显著富集(P<0.05);碳水化合物代谢、脂质代谢在LP组显著富集(P<0.05);LP组其他氨基酸代谢显著低于HP组(P<0.05)。综上所述,饲喂相同代谢能不同蛋白质水平饲粮对舍饲牦牛生长性能、瘤胃发酵类型、瘤胃细菌丰富度、瘤胃菌群结构和瘤胃细菌代谢功能途径均会产生影响。饲喂14%蛋白质水平饲粮的舍饲牦牛具有较高的平均日增重、较低的料重比与较高的养殖效益,瘤胃微生物蛋白浓度较高,瘤胃菌群丰富度和多样性较高,且具有相对较高的蛋白质消化代谢及能量转化利用能力。综合考虑,当饲粮代谢能为10.6 MJ/kg时,推荐舍饲牦牛饲粮蛋白质水平为14%。

本文引用格式

甄虎 , 庞凯悦 , 李红丽 , 柴沙驼 , 王迅 , 孙武 , 张艳 , 扎西东智 , 董谭琴 , 杨英魁 , 王书祥 . 不同蛋白质水平饲粮对舍饲牦牛生长性能、瘤胃发酵参数及菌群结构和功能的影响[J]. 动物营养学报, 2023 , 35(9) : 5787 -5800 . DOI: 10.12418/CJAN2023.533

Abstract

The aim of this experiment was to investigate the effects of different protein levels of diets on the growth performance, rumen fermentation parameters and the structure and function of bacterial flora of housed yaks. Thirty-six adult male yaks weighing (200±20) kg and in good health were randomly divided into three groups with 3 repetitions in each group and 4 yaks in each repetition. Under the premise of consistent dietary metabolizable energy (10.6 MJ/kg), low protein level diet (12%, LP group), medium protein level diet (14%, MP group) and high protein level diet (16%, HP group) were formulated, respectively. The pre-trial period lasted for 15 days and the experimental period lasted for 90 days The results showed as follows: 1) the average daily weight gain of yaks in the MP group was significantly higher than that in the LP and HP groups (P<0.05); the dry matter intake in the LP group was significantly higher than that in the HP group (P<0.05); the feed-to-weight ratio in the LP group was significantly higher than that in the MP and HP groups (P<0.05). 2) The concentration of microbial protein in LP group was significantly lower than that in HP group (P<0.05); the concentration of propionic acid in MP group was significantly lower than that in HP group (P<0.05). 3) A total of 11 989 characteristic sequences of rumen fluid were identified in the three experimental groups, with a total of 1 165 amplicon sequence variants (ASVs), accounting for 9.72% of the total; the number of species of ASVs in the LP, MP and HP groups were 3 437, 4 184 and 3 903, respectively, and their exclusive species were 1 351, 1 978 and 1 790, respectively; the Shannon index in the LP group was significantly lower than those in the MP and HP groups (P<0.05); the Simpson index in the LP group was significantly lower than that in the MP group (P<0.05). 4) At the phylum level, the relative abundance of Spirochaetota in the MP group was significantly higher than that in the other two groups (P<0.05); the relative abundance of Euryarchaeota in the LP group was significantly lower than that in the other two groups (P<0.05); at the genus level, the relative abundance of Christensenellaceae_R-7 in both the LP and MP groups was significantly lower than that in the HP group (P<0.05). 5) At the level of KEGG2, amino acid metabolism, energy metabolism, cofactor and vitamin metabolism were significantly enriched in the HP group (P<0.05); carbohydrate metabolism and lipid metabolism were significantly enriched in the LP group (P<0.05); other amino acid metabolism was significantly lower in the LP group than in the HP group (P<0.05). In conclusion, feeding different protein levels of the same metabolic energy can affect the growth performance, rumen fermentation type, rumen bacterial richness, rumen flora structure and rumen bacterial metabolic pathways of housed yaks. Feeding diets with 14% protein level has higher average daily gain, lower feed to gain ratio and higher breeding efficiency, higher rumen microprotein (MCP) concentration, higher rumen flora richness and diversity, and relatively higher protein digestion and energy conversion. Therefore, the recommended protein level for housed yak diet is 14% when the metabolic energy of the diet is 10.6 MJ/kg.

牦牛是青藏高原特有物种,是高原牧区重要的生产资源,可以为牧民提供肉、奶、毛、皮、燃料等多种物资。中国牦牛存栏量超过1 500万头,占世界牦牛的95%,主要分布在西藏、青海和四川3省[1]。在高原地区,尤其是寒冷季节,牦牛摄入的营养不足以满足其维持需求,即季节性营养失衡时,通常会引起牦牛生产力降低等负面影响。因此,一些牧民正在逐步改变他们的传统放牧方式,改为冬季室内饲养或补食,牦牛养殖逐渐由全放牧模式向高海拔区全放牧、中海拔区放牧补饲、低海拔区室内育肥等立体养殖模式转变[2]。由于高原的气候因素,能量摄入比起蛋白质对于牦牛而言在维持生命方面显得更为重要,因此,目前的研究大多集中在饲粮能量水平对牦牛的影响,而饲粮蛋白质水平对牦牛影响的研究较少。据报道,牦牛之所以能适应高海拔和极寒地区,在寒冷季节牧草匮乏的情况下也能很好地生存下来,是因为牦牛比其他物种更能有效地利用蛋白质[3]
瘤胃是反刍动物最重要的消化器官之一,在反刍动物的健康和新陈代谢等方面也起着至关重要的作用。瘤胃含有丰富的微生物群,包括细菌、真菌、古细菌和原生动物,它们对于降解和转化饲粮、发酵植物蛋白和多糖等方面起到无可替代的作用。同时,瘤胃微生物产生的各种代谢物,如挥发性脂肪酸、氨基酸和糖可以起到促进宿主生长及微生物繁殖的作用[4]。青藏高原牧场普遍含有高含量的复杂植物多糖,牦牛需要瘤胃微生物提供酶从而将多糖和其他植物成分部分转化为可被宿主利用的挥发性脂肪酸和微生物生物量[5]。牦牛瘤胃液含有最丰富和最多样化的微生物群落,已有研究表明,饲粮营养可以对瘤胃微生物的种类及数量产生一定的影响[6],甚至可能会诱导瘤胃微生物的结构[7]与功能[8]产生一定变化。Zhang等[9]研究发现,饲喂含13.87%蛋白质饲粮的牦牛瘤胃菌群结构与饲喂含9.64%蛋白质饲粮的牦牛存在一定差异,提示饲粮蛋白质水平对于牦牛瘤胃菌群可能存在一定影响,但相关报道较少。鉴于此,本研究通过探讨饲粮蛋白质水平对牦牛生长性能、瘤胃发酵参数、瘤胃菌群丰富度和多样性、结构及代谢的影响,旨在为牦牛舍饲养殖中选择合适的饲粮营养水平提供参考,为进一步了解牦牛瘤胃环境及提高牦牛生产力提供数据支撑。

1 材料与方法

1.1 试验设计与饲养管理

本试验在青海省海北藏族自治州海晏县金银滩牛羊标准化养殖示范牧场进行。从放牧草原中选取36头体重[(200±20) kg]接近、健康状况良好的成年公牦牛,随机分为3组,每组3个重复,每个重复4头牦牛。试验用饲粮蛋白质水平与代谢能参照郝力壮等[10]报道,在饲粮代谢能(10.6 MJ/kg)一致的前提下,分别配制低蛋白质水平饲粮(12%,LP组)、中蛋白质水平饲粮(14%,MP组)、高蛋白质水平饲粮(16%,HP组)。试验期共105 d,其中预试期15 d,正试期90 d。最初所有的牦牛都饲喂其平均体重1%的饲粮,并每天增加,直到第15天采食量达到牦牛体重的1.5%。第15天后,每2周根据体重调整1次饲喂量直至试验结束。牦牛每天08:00和17:00各饲喂1次,每天喂料前将精料、燕麦干草、小麦麦秸和燕麦青贮根据配方比例进行混合,搅拌均匀制成全混合日粮(TMR)之后进行饲喂,并提供自由采食及自由饮水的条件。试验饲粮参考《肉牛饲养标准》(NY/T 815—2004)[11]配制,其组成及营养水平见表1,其中饲粮营养水平参考中国饲料数据库(第32版)[12]中相关数值进行计算。
表1 试验饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis)%

项目
Items
组别 Groups
LP MP HP
原料 Ingredients
玉米 Corn 23.80 16.70 22.00
小麦 Wheat 21.00 23.00 8.30
麸皮 Wheat bran 4.50 1.90 4.50
菜籽粕 Rapeseed meal 4.60 4.60 8.30
豆粕 Soybean meal 7.20 14.50 18.10
石粉 Limestone 0.60 0.60 0.60
磷酸氢钙 CaHPO4 0.40 0.40 0.40
氯化钠 NaCl 0.90 0.90 0.90
预混料 Premix1) 2.10 2.10 2.10
燕麦干草 Oats hay 17.10 10.00 10.00
燕麦青贮 Oats silage 11.80 21.70 21.20
小麦麦秸 Wheat straw 6.00 3.60 3.60
合计 Total 100.00 100.00 100.00
营养水平 Nutrient levels2)
粗蛋白质 CP 11.98 14.00 16.02
代谢能 ME/(MJ/kg) 10.66 10.66 10.66
酸性洗涤纤维 ADF 20.24 19.36 20.62
中性洗涤纤维 NDF 35.32 32.92 34.58
钙 Ca 0.36 0.38 0.40
磷 P 0.30 0.31 0.35

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets: VA 4 000 IU,VD 3 800 IU,VE 40 IU,Cu 15 mg,Fe 60 mg,Zn 30 mg,Mn 40 mg,Se 0.3 mg,I 0.8 mg,Co 0.3 mg。

2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.2 样品采集

试验结束时(第106天),每组选择5头牛于早晨饲喂前用胃管采集牦牛瘤胃液样本。通过4层粗棉布过滤瘤胃样品以获得瘤胃液。在整个样品采集过程中都佩戴一次性无菌手套以避免污染,并将其放置在液氮中冷冻保存于-80 ℃,带回实验室备用。

1.3 生长性能测定

试验期间记录每天投料量和剩料量,计算干物质采食量(DMI)。正式试验第1、90天,晨饲前对3组所有牦牛进行空腹称重,并根据如下公式进行计算:
总增重(TWG)=终末体重-初始体重;
平均日增重(ADG)=总增重/正试期饲喂天数;
料重比(F/G)=干物质采食量/平均日增重。

1.4 营养成分测定

酸性洗涤纤维与中性洗涤纤维含量采用范式洗涤纤维法[13]测定;粗蛋白质含量根据GB/T 6432—2018[14],采用凯氏定氮仪测定;钙含量根据GB/T 6436—2002[15]方法测定;磷含量根据GB/T 6437—2002[16]方法测定。

1.5 瘤胃发酵参数的测定

pH采用台式酸度计(HI221型,意大利HANNA公司)测定;氨态氮浓度采用紫外可见分光光度计(TU-1810型,北京普析通用仪器有限公司),通过比色法[17]测定;微生物蛋白(MCP)浓度参照高雨飞[18]的试验,采用考马斯亮蓝法测定;挥发性脂肪酸浓度采用气相色谱仪,参照郭盼盼等[19]方法测定。

1.6 DNA提取、PCR扩增、测序和测序数据处理

使用十六烷基三甲基溴化铵法从瘤胃液样本中提取细菌DNA,通过1.0%琼脂糖凝胶电泳评估DNA的质量,PCR采用25 μL扩增体系[20]。用QIAquick PCR纯化试剂盒(德国Qiagen公司)纯化回收,瘤胃液样品送至北京奥维森基因科技有限公司分析,测序平台为Mixed PE 300。测序得到的原始数据进行拼接、过滤,得到有效数据,然后基于有效数据通过DADA2进行降噪,并过滤掉丰度小于5的序列,从而获得最终的瘤胃液特征序列(amplicon sequence variants,ASVs)。采用QIIME2的classify-sklearn算法对每个ASV使用预先训练好的Naive Bayes分类器进行物种注释。通过Q1IME2(version 1.9.0)计算α多样性,采用主坐标分析(principal coordinates analysis,PCoA)对各组细菌群落的差异性进行分析。根据ASVs注释结果和各样品特征表,获得门、属水平相对丰度。之后采用PICRUSt 2方法研究了不同饲粮蛋白质水平对舍饲牦牛瘤胃微生物群代谢途径及功能的预测。

1.7 数据分析

使用SPSS 21.0统计软件的one-way ANOVA模型进行方差分析,并用LSD法进行组间多重比较,P<0.05表示显著差异,P>0.05表示差异不显著,结果均以平均值和均值标准误(SEM)表示。

2 结果与分析

2.1 生长性能

表2可知,组间牦牛初始体重无显著差异(P>0.05);经90 d饲养期后,3组间总增重无显著差异(P>0.05);MP组牦牛平均日增重显著高于LP组和HP组(P<0.05);LP组干物质采食量显著高于HP组(P<0.05),而MP组与HP组间无显著差异(P>0.05);LP组料重比显著高于MP组和HP组(P<0.05),并随饲粮蛋白质水平的提高呈现先降低后升高的趋势。
表2 不同蛋白质水平饲粮对舍饲牦牛生长性能的影响

Table 2 Effects of diets with different protein levels on growth performance of housed yaks

项目
Items
组别 Groups SEM P
P-value
LP MP HP
初始体重 IBW/kg 199.80 200.65 200.30 2.57 0.298
终末体重 FBW/kg 265.00 280.60 268.00 2.01 0.173
总增重 TWG/kg 65.20 79.95 67.70 1.98 0.062
平均日增重 ADG/(g/d) 724.44b 888.33a 752.22b 21.25 0.027
干物质采食量 DMI/(kg/d) 6.54a 6.34ab 6.21b 0.04 0.002
料重比 F/G 9.03a 7.14c 8.26b 0.10 0.033

同行数据肩标不同小写字母表示差异显著(P<0.05)。下表同。

Different lowercase letters on the shoulder of the same row of data indicate significant difference (P<0.05). The same as below.

2.2 瘤胃发酵参数

表3可知,LP组瘤胃MCP浓度显著低于HP组(P<0.05),而LP组与MP组之间无显著差异(P>0.05);MP组丙酸浓度显著低于HP组(P<0.05),LP组与MP组之间无显著差异(P>0.05)。
表3 不同蛋白质水平饲粮对舍饲牦牛瘤胃发酵参数的影响

Table 3 Effects of diets with different protein levels on rumen fermentation parameters of housed yaks

项目
Items
组别 Groups SEM P
P-value
LP MP HP
pH 7.43 7.33 7.14 0.06 0.583
氨态氮 NH3-N/(mg/dL) 7.73 9.53 10.79 0.45 0.111
微生物蛋白 MCP/(mg/mL) 2.87b 4.97ab 5.32a 0.33 0.038
乙酸 Acetic acid/(mmol/L) 44.54 45.49 43.96 0.52 0.083
丙酸 Propionic acid/(mmol/L) 18.80ab 15.77b 21.11a 0.66 0.027
异丁酸 Isobutyric acid/(mmol/L) 0.79 0.71 0.64 0.03 0.634
丁酸 Butyric acid/(mmol/L) 8.93 8.88 13.43 0.53 0.995
异戊酸 Isovaleric acid/(mmol/L) 0.64 0.91 0.90 0.03 0.154
戊酸 Valeric acid/(mmol/L) 0.99 1.00 1.13 0.03 0.385
乙丙比 Acetic acid/propionic acid 2.38 3.24 2.19 0.17 0.171
总挥发性脂肪酸 TVFA/(mmol/L) 74.96 73.26 76.62 0.82 0.327

2.3 细菌丰富度与多样性

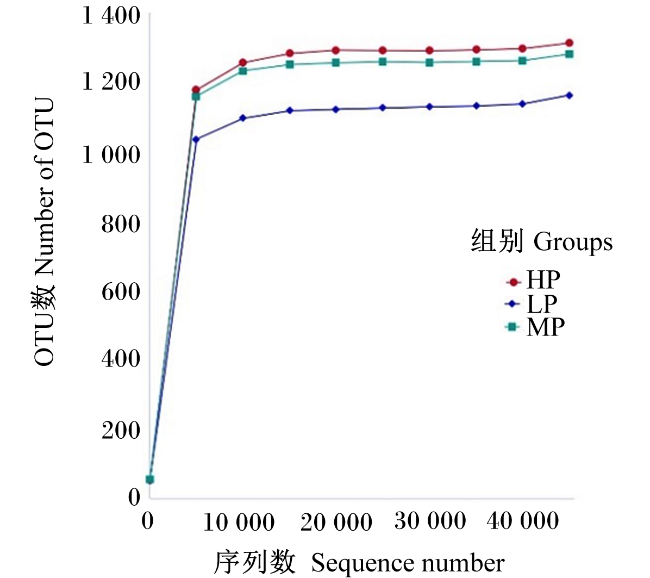
图1可知,随着测序深度的增加,3组瘤胃细菌稀释曲线均趋于平滑,表明测序程度合理,可以覆盖样本中绝大多数细菌的真实情况,能够真实反映出试验瘤胃液菌群的情况。
图1 瘤胃细菌稀释曲线

Fig.1 Ruminal bacterial dilution curve

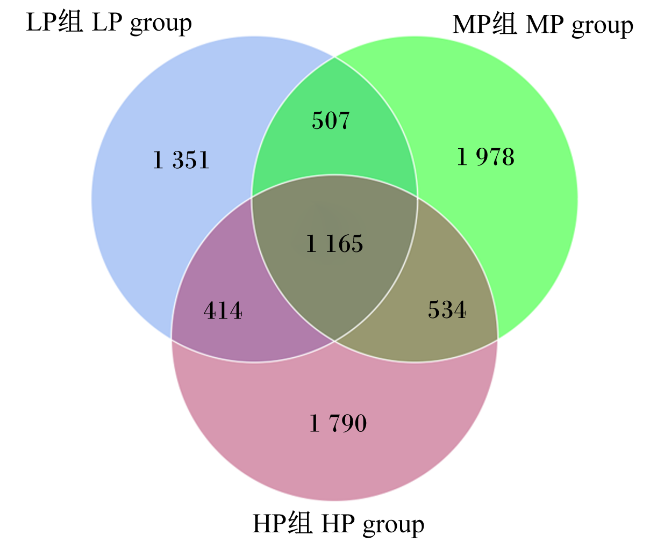
3组牦牛共鉴定出11 989种ASVs,共有1 165种ASVs,占总数的9.72%。LP组、MP组和HP组的ASVs分别为3 437、4 184和3 903种,其独占种数分别为1 351、1 978和1 790种(图2)。
图2 韦恩图

Fig.2 Venn diagram

通过α多样性分析(表4图3)可见,LP组Shannon指数显著低于MP组和HP组(P<0.05);LP组Simpson指数显著低于MP组(P<0.05),且LP组、MP组均与HP组无显著差异(P>0.05)。
表4 不同蛋白质水平饲粮对舍饲牦牛瘤胃alpha多样性的影响

Table 4 Effects of diets with different protein levels on ruminal alpha diversity of housed yaks

项目
Items
组别 Groups SEM P
P-value
LP MP HP
观察到的物种数 Observed species 1 126.40 1 257.20 1 289.20 33.26 0.099
Chao1指数 Chao1 index 1 129.76 1 260.32 1 290.88 33.42 0.106
Shannon指数 Shannon index 8.49b 9.15a 8.99a 0.11 0.018
Simpson指数 Simpson index 0.98b 1.00a 0.99ab 0.01 0.041
覆盖率 Coverage/% 99.98 99.98 100.00 0.01 0.619
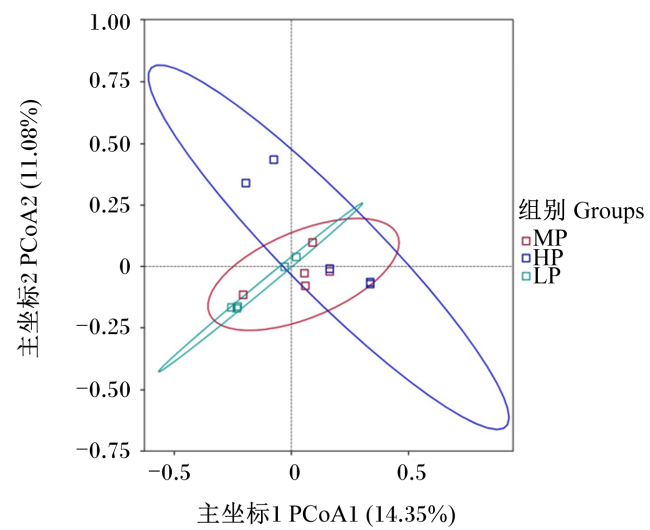
图3 主坐标分析图

Fig.3 PCoA diagram

此外,PCoA(Bray-Curtis距离)(图3)对β多样性的分析结果表现出LP组、MP组和HP组呈分离态。综上所述,饲粮12%、14%和16%蛋白质水平对于牦牛瘤胃细菌丰富度与多样性的影响存在一定差异。

2.4 细菌组成差异

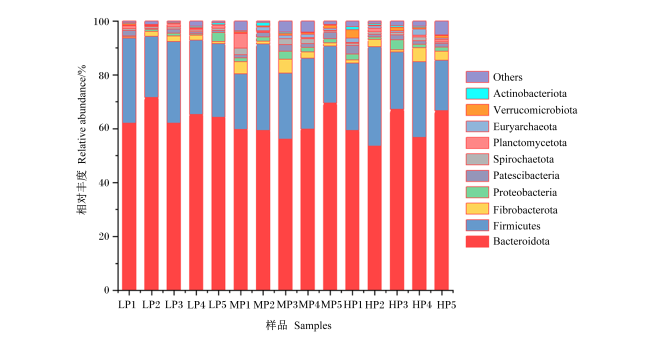
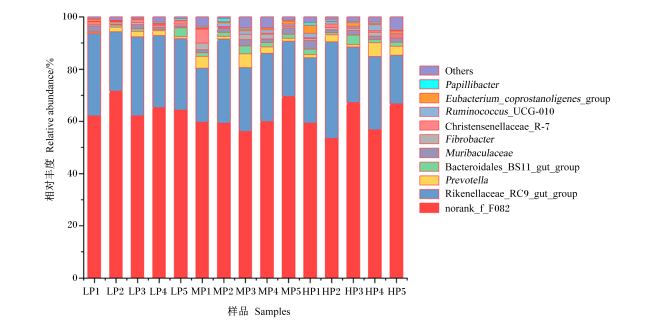
在门水平上优势菌群的相对丰度如图4表5所示,相对丰度最高的是拟杆菌门(Bacteroidota),其次是厚壁菌门(Firmicutes),两者均随着饲粮蛋白质水平的提高而呈现降低趋势,但差异不显著(P>0.05);MP组螺旋体门(Spirochaetota)相对丰度显著高于LP组和HP组(P<0.05);LP组广古菌门(Euryarchaeota)相对丰度显著低于MP组与HP组(P<0.05)。
图4 门水平各组细菌相对丰度

Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Fibrobacterota:纤维杆菌门;Verrucomicrobiota:疣微菌门;Actinobacteriota:放线菌门;Euryarchaeota:广古菌门;Planctomycetota:浮霉菌门;Spirochaetota:螺旋体门;Others:其他。

Fig.4 Relative abundance of bacteria in each group at phylum level

表5 不同蛋白质水平饲粮对舍饲牦牛瘤胃细菌门水平相对丰度的影响

Table 5 Effects of diets with different protein levels on relative abundance of rumen bacteria at phylum level of housed yaks%

项目
Items
组别 Groups SEM P
P-value
LP MP HP
拟杆菌门 Bacteroidota 65.02 60.91 60.70 1.33 0.350
厚壁菌门 Firmicutes 27.91 24.93 25.98 1.30 0.671
纤维杆菌门 Fibrobacterota 1.22 2.82 1.91 0.40 0.273
变形菌门 Proteobacteria 1.33 1.84 2.66 0.31 0.238
Patescibacteria 1.12 1.81 1.76 0.20 0.283
螺旋体门 Spirochaetota 0.48b 1.48a 0.63b 0.18 0.038
浮霉菌门 Planctomycetota 0.14 1.23 1.21 0.38 0.449
广古菌门 Euryarchaeota 0.16b 0.99a 1.21a 0.18 0.021
疣微菌门 Verrucomicrobiota 0.71 0.66 0.90 0.07 0.383
放线菌门 Actinobacteriota 0.82 0.51 0.62 0.11 0.557
在属水平上优势菌群为未明确的F082科(norank_f_F0820)、理研菌科_RC9肠道群(Rikenellaceae_RC9_gut_group)和普雷沃菌属(Prevotella)等(图5)。其中LP组、MP组克里斯滕森菌科_R-7(Christensenellaceae_R-7)相对丰度均显著低于HP组(P<0.05)(表6)。
图5 属水平各组细菌相对丰度

norank_f_F082:未明确的F082科;Rikenellaceae_RC9_gut_group:理研菌科_RC9肠道群;Prevotella:普雷沃菌属;Bacteroidales_BS11_gut_group:拟杆菌目_BS11肠道群;Fibrobacter:纤维杆菌属;Christensenellaceae_R-7:克里斯滕森菌科_R-7;Ruminococcus_UCG-010:瘤胃球菌属UCG-010;Eubacterium_coprostanoligenes_group:产粪甾醇真细菌群;Papillibacter:帕匹杆菌属;Others:其他。

Fig.5 Relative abundance of bacteria in each group at genus level

表6 不同蛋白质水平饲粮对舍饲牦牛瘤胃细菌属水平相对丰度的影响

Table 6 Effects of diets with different protein levels on relative abundance of rumen bacteria at genus level of housed yaks

项目
Items
组别 Groups SEM P
P-value
LP MP HP
未明确的F082科 Norank_f_F082 28.58 22.69 18.46 2.21 0.176
理研菌科_RC9肠道群
Rikenellaceae_RC9_gut_group
13.52 14.23 15.11 0.67 0.656
普雷沃菌属 Prevotella 10.58 9.56 10.81 0.70 0.772
拟杆菌目_BS11肠道群
Bacteroidales_BS11_gut_group
2.13 2.22 5.32 0.82 0.205
Muribaculaceae 2.87 2.30 1.84 0.26 0.274
纤维杆菌属 Fibrobacter 1.20 2.80 1.87 0.39 0.271
克里斯滕森菌科_R-7
Christensenellaceae_R-7
1.50b 1.40b 2.33a 0.16 0.016
瘤胃球菌属UCG-010
Ruminococcus_UCG-010
1.64 1.61 1.79 0.23 0.776
产粪甾醇真细菌群
Eubacterium_coprostanoligenes_group
1.79 1.55 1.57 0.14 0.760
帕匹杆菌属 Papillibacter 1.44 1.38 1.93 0.13 0.195

2.5 细菌代谢途径及功能预测

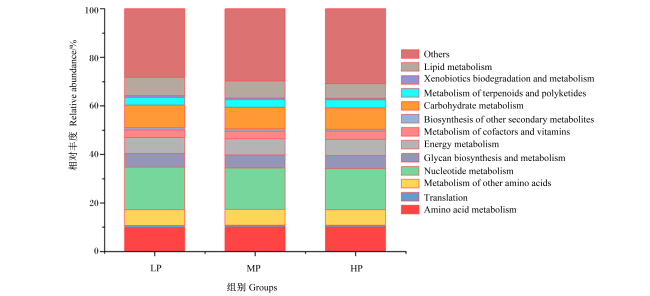
本研究采用PICRUSt2来预测瘤胃细菌的代谢途径及功能,共检测出416条代谢通路,其中LP组与HP组牦牛瘤胃液样本中有60条代谢通路表现出显著差异,LP组与MP组有19条代谢通路表现出显著差异,MP组与HP组有4条代谢通路表现出显著差异。现将丰度较高的代谢通路(相对丰度>0.5%)在KEGG2水平上进行归类,这些代谢通路分别属于核苷酸代谢(nucleotide metabolism)、氨基酸代谢(amino acid metabolism)、碳水化合物代谢(carbohydrate metabolism)、脂质代谢(lipid metabolism)、能量代谢(energy metabolism)、辅助因子和维生素的代谢(metabolism of cofactors and vitamins)、聚糖的生物合成与代谢(glycan biosynthesis and metabolism)、其他氨基酸代谢(metabolism of other amino acids)、萜类和多酮类的代谢(metabolism of terpenoids and polyketides)、翻译(translation)、其他次生代谢产物的生物合成(biosynthesis of other secondary metabolites)、异种生物降解和代谢(xenobiotics biodegradation and metabolism)等(图6)。其中氨基酸代谢、能量代谢相对丰度随饲粮蛋白质水平的升高而呈线性升高(P<0.05);LP组的碳水化合物代谢、脂质代谢的相对丰度均显著高于其他2组(P<0.05);辅助因子和维生素的代谢在HP组相对丰度最高,显著高于其他2组(P<0.05);LP组其他氨基酸代谢显著低于HP组(P<0.05),且与MP组无显著差异(P>0.05)(表7)。
图6 KEGG2水平注释的主要代谢途径

Amino acid metabolism:氨基酸代谢;Translation:翻译;Metabolism of other amino acids:其他氨基酸代谢;Nucleotide metabolism:核苷酸代谢;Glycan biosynthesis and metabolism:聚糖的生物合成与代谢;Energy metabolism:能量代谢;Metabolism of cofactors and vitamins:辅助因子和维生素的代谢;Biosynthesis of other secondary metabolites:其他次生代谢产物的生物合成;Carbohydrate metabolism:碳水化合物代谢;Metabolism of terpenoids and polyketides:萜类和多酮类的代谢;Xenobiotics biodegradation and metabolism:异种生物降解和代谢;Lipid metabolism:脂质代谢;Others:其他。

Fig.6 Main metabolic pathways annotated with KEGG2 level

表7 不同蛋白质水平饲粮对舍饲牦牛瘤胃细菌群落代谢途径的影响

Table 7 Effects of diets with different protein levels on metabolic pathways of rumen bacterial communities of housed yaks

项目
Items
组别 Groups SEM P
P-value
LP MP HP
核苷酸代谢 Nucleotide metabolism 24.52 24.42 24.53 0.023 0.350
氨基酸代谢 Amino acid metabolism 13.67c 14.32b 14.51a 0.037 0.030
碳水化合物代谢 Carbohydrate metabolism 12.96a 12.76c 12.88b 0.015 0.025
脂质代谢 Lipid metabolism 10.62a 9.95b 8.66c 0.115 0.046
能量代谢 Energy metabolism 8.97c 9.32b 9.70a 0.030 0.037
辅助因子与维生素的代谢
Metabolism of cofactors and vitamins
9.15b 9.11c 9.26a 0.022 0.026
聚糖的生物合成与代谢
Glycan biosynthesis and metabolism
7.81 7.69 7.68 0.039 0.402
其他氨基酸代谢
Metabolism of other amino acids
4.55b 4.69ab 4.87a 0.025 0.031
萜类和多酮类的代谢
Metabolism of terpenoids and polyketides
4.49 4.53 4.69 0.044 0.065
翻译 Translation 1.14 1.12 1.12 0.012 0.557
其他次生代谢产物的生物合成
Biosynthesis of other secondary metabolites
1.11 1.10 1.10 0.001 0.274
异种生物降解和代谢
Xenobiotics biodegradation and metabolism
1.01 0.99 0.99 0.001 0.443

3 讨论

3.1 饲粮蛋白质水平对牦牛生长性能及养殖效益的影响

据报道,牦牛在高海拔环境下所表现出较强的适应能力,得益于其拥有较高的蛋白质利用效率。本试验发现,饲粮蛋白质水平由12%提升至14%会导致舍饲牦牛的平均日增重显著升高,这一现象的主要原因可能是提高饲粮蛋白质水平可提高粗蛋白质和中性洗涤纤维的表观消化率[21],从而为机体生长提供更多能量与营养物质。但饲粮蛋白质水平由14%提升至16%会导致平均日增重显著降低,这可能与饲粮蛋白质水平过高从而对抑制瘤胃微生物发酵起到抑制作用,进而影响牦牛机体对蛋白质的吸收利用有关[12]。本研究还发现,HP组干物质采食量显著低于LP组,这可能是HP组蛋白质摄入量可以满足机体需要,从而产生神经反射调控牦牛,使其不再采食。此外,MP组料重比显著低于其他2组,表现出较高的饲粮利用效率。综上所述,牦牛饲喂14%蛋白质水平饲粮较12%蛋白质水平饲粮、16%蛋白质水平饲粮具有更高的生产性能。市场价格、饲料成本以及牦牛日增重是影响养殖效益的主要因素[12]。在本研究中,随饲粮蛋白质水平由12%提升至16%,饲料成本也随之上升,且HP组干物质采食量较低,因此HP组经济效益较差。MP组平均日增重显著高于LP组与HP组,料重比最低,表明10.6 MJ/kg代谢能水平下,牦牛对14%蛋白质水平饲粮的利用效率较高,具有较高的生长性能,进而提高养殖效益。

3.2 饲粮蛋白质水平对牦牛瘤胃发酵参数的影响

pH是评价瘤胃发酵的重要指标,通常在5.5~7.2变动[12]。本研究中,LP组和MP组牦牛瘤胃pH高于这个区间,可能是与LP组、MP组牦牛较高的干物质采食量有关。较高的干物质采食量意味着咀嚼活动量增大,牦牛会产生更多的唾液进入瘤胃从而影响瘤胃pH[22]。HP组具有最高的NH3-N浓度,这与其较高的MCP浓度有关。与Zhu等[2]研究结果相同,本研究发现,HP组瘤胃MCP浓度显著高于LP组,表明高蛋白质水平饲粮可以为牦牛瘤胃提供更多的有机发酵底物。据报道,反刍动物可把饲粮中的碳水化合物降解成挥发性脂肪酸,即乙酸、丙酸等[12]。本研究发现,MP组瘤胃丙酸浓度显著低于HP组,表明牦牛瘤胃随饲粮蛋白质水平的升高转变为丙酸型发酵。由于丙酸盐的形成与反刍动物对氢气的利用有关[23]。因此,丙酸型发酵可以与甲烷菌竞争H2,使能量利用率升高[12]。此外,由于丙酸参与葡萄糖的转化合成,且丙酸浓度的增加会促进瘤胃上皮对挥发性脂肪酸的吸收[24],因此本试验结果提示HP组具有较高的能量利用效率。此外,MP组较高的乙丙比则提示其饲料能量利用效率较低,且总挥发性脂肪酸整体不变可能与瘤胃细菌群落对于饲粮蛋白质水平变化的适应性有关。综上所述,本试验瘤胃发酵参数结果表明,HP组可以为舍饲牦牛提供更多蛋白质以合成菌体蛋白,从而有利于其生长发育;且HP组可能具有更高的饲料能量利用效率,该结论与上述生长性能结论相反,可能是由于高水平蛋白质的摄入导致瘤胃环境变化,从而瘤胃微生物的某些发酵作用及代谢途径被抑制[25],进而影响瘤胃对营养物质的消化与吸收。

3.3 饲粮蛋白质水平对牦牛瘤胃细菌丰富度和多样性的影响

蛋白质是影响反刍动物瘤胃细菌的重要因素,较高的饲粮蛋白质水平会促进瘤胃微生物的合成,且会增加瘤胃细菌数;而低蛋白质水平饲粮使得瘤胃细菌数量偏低,但会衍生复杂的功能[26]。研究发现,饲粮蛋白质水平从124 g/kg提升到219 g/kg,水牛瘤胃细菌总数显著提升[27],提示瘤胃细菌丰富度会随饲粮蛋白质的水平增加而升高。李蒋伟等[28]发现,低蛋白质组(10.08%)藏羊瘤胃细菌ACE指数和Chao1指数均显著高于高蛋白质组(14.97%)。郭凯等[29]报道,低蛋白质组(19%)Chao1指数显著高于高蛋白质组(22%)。在本试验关于牦牛瘤胃细菌α多样性的研究中,发现3组牦牛瘤胃细菌物种数与Chao1指数无显著差异,这可能是由于瘤胃细菌具有随饲粮蛋白质水平变化进行自我调节的能力,从而保持细菌群落处于稳定的状态。Wang等[30]研究发现,绵羊瘤胃细菌Chao1指数随饲粮中蛋白质水平的增加呈先增加后降低的变化趋势,提示不同饲粮蛋白质水平对瘤胃细菌丰度的影响并非简单的线性关系,在一定区间内,饲粮蛋白质水平的提升会提高瘤胃菌群丰度,但规律尚不明确,有待进一步探讨。此外,本研究发现,MP组Shannon指数与Simpson指数显著高于LP组,但较HP组则表现出降低的趋势,这可能与HP组较低的pH有关,据研究低pH环境会抑制瘤胃内相关纤维降解菌的生长与定植,从而影响瘤胃细菌多样性[31]。本研究通过PCoA分析发现,LP组、MP组和HP组之间存在小部分重叠,但整体呈分离态,显示出明显的特异性簇,表明LP组、MP组和HP组形成了不同的瘤胃菌群。综上所述,饲粮蛋白质水平的改变会对牦牛瘤胃细菌丰富度和多样性造成一定的影响,在一定区间内提升饲粮蛋白质水平会提高瘤胃细菌丰富度和多样性,但饲粮蛋白质水平过高则会导致瘤胃细菌丰富度和多样性的降低。

3.4 饲粮蛋白质水平对牦牛瘤胃细菌结构组成的影响

Liu等[32]报道,门水平上拟杆菌门和厚壁菌门是牦牛瘤胃中的主要菌门,本研究结果与之相同。此外,本研究发现,MP组螺旋体门相对丰度显著高于LP组和MP组,据报道螺旋体门在复杂多糖的水解以及瘤胃中B族维生素和蛋白质的降解方面发挥着重要作用[33],提示MP组舍饲牦牛具有较高的饲料转化利用效率。广古菌门在牦牛饲料利用率和甲烷排放等方面发挥重要作用[5],据报道,广古菌门的一些谱系具有代谢甲烷和降解某些碳氢化合物的作用[34]。此外,由于广古菌门的影响,牦牛甲烷排放量通常低于其他品种牛[35]。本研究发现,MP组、HP组瘤胃广古菌门相对丰度均显著高于LP组,表明MP组、HP组可能具有较高的能量利用效率,同时也提示牦牛瘤胃细菌具有随饲粮的变化而在结构组成上进行适应性改变的能力。
在属水平上,本研究发现,试验组舍饲牦牛瘤胃优势菌属是Norank_f_F082、理研菌科_RC9肠道群和普雷沃菌属,这与涂瑞[36]研究结果相似。此外本研究发现,LP组、MP组克里斯藤森菌科_R-7相对丰度显著低于HP组。克里斯藤森菌科_R-7属于克里斯藤森菌家族,研究表明该类菌与动物的消化及健康有关[37],克里斯滕森菌科与动物分解代谢饲粮蛋白质的能力呈正相关关系[38],提示克里斯藤森菌科_R-7相对丰度可能影响牦牛饲粮蛋白质消化利用率。据报道,克里斯藤森菌科_R-7与氨基酸代谢、能量代谢的代谢物之间呈正相关关系[39]。此外,克里斯藤森菌科_R-7含有纤维素酶和半纤维素分泌酶相关基因,可以提高反刍动物降解纤维素等多糖获取能量的能力[40]。Wang等[41]研究发现,克里斯藤森菌科_R-7相对丰度与乙酸、丁酸等短链脂肪酸(short-chain fatty acids,SCFAs)含量呈显著负相关,而乙酰辅酶A可以利用乙酸合成柠檬酸[42],提示较低的克里斯藤森菌科_R-7相对丰度会促进三羧酸循环。综上所述,饲喂低蛋白质水平饲粮导致牦牛瘤胃克里斯藤森菌科_R-7相对丰度降低,这可能会引起碳水化合物代谢途径的变化。饲喂高蛋白质水平饲粮的牦牛瘤胃具有较高的克里斯藤森菌科_R-7相对丰度,可能具有更高的蛋白质消化吸收能力,以及更高的氨基酸与能量代谢能力。

3.5 饲粮蛋白质水平对瘤胃细菌代谢途径及功能的影响

瘤胃中来自饲料的蛋白质可被瘤胃菌群重新降解利用,用于合成微生物核酸。这些微生物核酸通过从头合成等途径降解为嘌呤核苷,然后通过酶作用转化为嘌呤碱基,最后转化为嘌呤降解产物[31]。据Yin等[43]报道,饲喂不同蛋白质水平饲粮会导致细菌嘌呤代谢和嘧啶代谢的差异性变化,但在本研究中随饲粮蛋白水平的变化核苷酸代谢并未表现出显著变化,这可能是由于瘤胃细菌的自适应作用。随饲粮蛋白质水平的提升,氨基酸代谢丰度呈线性升高,表明HP组较多的底物有利于合成更多的微生物蛋白[44],从而为机体生长发育提供更多营养物质。此外,碳水化合物代谢途径在LP组瘤胃中富集。这表明LP组牦牛瘤胃可能会产生更多样化的产物,如丙酮酸、乙酰辅酶A和氢[45]。由于乙酰辅酶A是三羧酸循环最重要的节点物质,这可能表明LP组牦牛瘤胃细菌需要产生更多的ATP以满足生长需要[2]。HP组较高的能量代谢表明高蛋白质摄入有助于牦牛能量代谢通路的上调,瘤胃微生物帮助宿主在纤维素等物质中吸收营养[46],提示饲喂16%蛋白质水平饲粮的牦牛瘤胃细菌会表现出更高的能量利用率。未来对菌群代谢途径及功能的验证将需要整合多组学分析,以确定细菌代谢功能途径在不同营养水平下的变化。

4 结论

在本研究条件下,不同饲粮蛋白质水平会对舍饲牦牛生长性能、瘤胃发酵类型、瘤胃细菌丰富度、瘤胃菌群结构和瘤胃细菌代谢功能途径产生影响。饲喂14%蛋白质水平饲粮的舍饲牦牛具有较高的平均日增重、较低的料重比与较高的养殖效益,瘤胃微生物蛋白浓度较高,瘤胃菌群丰富度和多样性较高,且具有相对较高的蛋白质消化代谢及能量转化利用能力。综上所述,当饲粮代谢能为10.6 MJ/kg时,推荐舍饲牦牛饲粮蛋白质水平为14%。
[1]
SHI F Y, GUO N, DEGEN A A, et al. Effects of level of feed intake and season on digestibility of dietary components,efficiency of microbial protein synthesis,rumen fermentation and ruminal microbiota in yaks[J]. Animal Feed Science and Technology, 2020, 259:114359.

DOI

[2]
ZHU Y B, SUN G M, DUNZHU L S, et al. Effects of different dietary protein level on growth performance,rumen fermentation characteristics and plasma metabolomics profile of growing yak in the cold season[J]. Animals, 2023, 13(3):367.

DOI

[3]
ZHOU J W, ZHONG C L, LIU H, et al. Comparison of nitrogen utilization and urea kinetics between yaks (Bos grunniens) and indigenous cattle (Bos taurus)[J]. Journal of Animal Science, 2017, 95(10):4600-4612.

DOI

[4]
SHABAT S K B, SASSON G, DORON-FAIGENBOIM A, et al. Specific microbiome-dependent mechanisms underlie the energy harvest efficiency of ruminants[J]. The ISME Journal, 2016, 10(12):2958-2972.

DOI

[5]
ZHOU Z M, FANG L, MENG Q X, et al. Assessment of ruminal bacterial and archaeal community structure in yak (Bos grunniens)[J]. Frontiers in Microbiology, 2017, 8:179.

[6]
WANG L J, ZHANG G N, LI Y, et al. Effects of high forage/concentrate diet on volatile fatty acid production and the microorganisms involved in VFA production in cow rumen[J]. Animals, 2020, 10(2):223.

DOI

[7]
PINNELL L J, REYES A A, WOLFE C A, et al. Bacteroidetes and Firmicutes drive differing microbial diversity and community composition among micro-environments in the bovine rumen[J]. Frontiers in Veterinary Science, 2022, 9:897996.

DOI

[8]
JIANG H, CAO H W, CHAI Z X, et al. Dynamic alterations in yak (Bos grunniens) rumen microbiome in response to seasonal variations in diet[J]. Physiological Genomics, 2022, 54(12):514-525.

DOI

[9]
ZHANG X L, XU T W, WANG X G, et al. Effect of dietary protein levels on dynamic changes and interactions of ruminal microbiota and metabolites in yaks on the Qinghai-Tibetan plateau[J]. Frontiers in Microbiology, 2021, 12:684340.

DOI

[10]
郝力壮, 刘书杰, 胡令浩, 等. 牦牛营养需要量与饲草料营养价值评价研究进展[J]. 动物营养学报, 2020, 32(10):4725-4732.

DOI

HAO L Z, LIU S J, HU L H, et al. Research progress on nutrient requirements of yak and nutritional value evaluation of forage/feed[J]. Chinese Journal of Animal Nutrition, 2020, 32(10):4725-4732. (in Chinese)

[11]
中华人民共和国农业部. 肉牛饲养标准:NY/T 815—2004[S]. 北京: 中国农业出版社, 2004.

The Ministry of Agriculture of the People’s Republic of China. Feeding standard of beef cattle:NY/T 815—2004[S]. Beijing: China Agriculture Press, 2004. (in Chinese)

[12]
李红丽. 不同能量与蛋白水平饲粮对牦牛育肥前后期生长性能、血清生化指标及瘤胃发酵参数的影响[D].硕士学位论文. 西宁: 青海大学, 2022.

LI H L. Effects of different energy and protein levels on growth performance,serum biochemical parameters and rumen fermentation parameters of yaks in the first and second stages of fattening[D].Master’s Thesis. Xining: Qinghai University, 2022. (in Chinese)

[13]
中华人民共和国国家质量监督检验检疫总局. 实验动物配合饲料常规营养成分的测定:GB/T 14924.9—2001[S]. 北京: 中国标准出版社, 2001.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China. Laboratory animals-formula feeds-determination of routine nutrients:GB/T 14924.9—2001[S]. Beijing: Standards Press of China, 2001. (in Chinese)

[14]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[15]
中华人民共和国国家质量监督检验检疫总局. 饲料中钙的测定:GB/T 6436—2002[S]. 北京: 中国标准出版社, 2002.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China. Determination of calcium in feed:GB/T 6436—2002[S]. Beijing: Standards Press of China, 2002. (in Chinese)

[16]
中华人民共和国国家质量监督检验检疫总局. 饲料中总磷的测定分光光度法:GB/T 6437—2002[S]. 北京: 中国标准出版社, 2002.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China. Determination of phosphorus in feed-Spectphotometry:GB/T 6437—2002[S]. Beijing: Standards Press of China, 2002. (in Chinese)

[17]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of the method for determination of ammonia nitrogen in rumen fluid by colorimetry[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[18]
高雨飞. 高精料日粮条件下烟酸对牛瘤胃微生物区系的影响[D].硕士学位论文. 南昌: 江西农业大学, 2016.

GAO Y F. Effects of niacin on microorganism system in the rumen of cattle under high-concentrate diet[D].Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2016. (in Chinese)

[19]
郭盼盼, 严昌国, 高青山, 等. 日粮精粗比对延边黄牛瘤胃发酵特性及微生物区系的影响[J]. 饲料研究, 2015(21):36-41.

GUO P P, YAN C G, GAO Q S, et al. Effect of diet concentrate to coarse ratio on rumen fermentation characteristics and microbiota of Yanbian yellow cattle[J]. Feed Research, 2015(21):36-41. (in Chinese)

[20]
庞凯悦, 柴沙驼, 王迅, 等. 饲粮精粗比对牦牛瘤胃菌群结构的影响[J]. 草业科学, 2022, 39(10):2201-2210.

PANG K Y, CHAI S T, WANG X, et al. Influence of ration concentrate to coarse ratio on rumen flora structure in yaks[J]. Pratacultural Science, 2022, 39(10):2201-2210. (in Chinese)

[21]
VAN DUNG D, BA N X, VAN N H, et al. Practice on improving fattening local cattle production in Vietnam by increasing crude protein level in concentrate and concentrate level[J]. Tropical Animal Health and Production, 2013, 45(7):1619-1626.

DOI PMID

[22]
LIU H, RAN T, ZHANG C F, et al. Comparison of rumen bacterial communities between yaks (Bos grunniens) and Qaidam cattle (Bos taurus) fed a low protein diet with different energy levels[J]. Frontiers in Microbiology, 2022, 13:982338.

DOI

[23]
MOSS A R, JOUANY J P, NEWBOLD J. Methane production by ruminants:its contribution to global warming[J]. Annales De Zootechnie, 2000, 49(3):231-253.

DOI

[24]
王贝. 饲粮NDF/NFC对不同泌乳阶段奶牛瘤胃甲烷排放量、营养物质表观消化率及生产性能的影响[D].硕士学位论文. 阿拉尔: 塔里木大学, 2019.

WANG B. Effects of dietary NDF/NFC on rumen methane emissions,nutrient apparent digestibility and production performance of dairy cows during different lactating stages[D].Master’s Thesis. Ala’er: Tarim University, 2019. (in Chinese)

[25]
GHIMIRE S, KOHN R A, GREGORINI P, et al. Representing interconversions among volatile fatty acids in the Molly cow model[J]. Journal of Dairy Science, 2017, 100(5):3658-3671.

DOI PMID

[26]
雒诚龙. 日粮蛋白水平对泌乳奶牛生产性能、瘤胃微生物区系及代谢的影响[D].博士学位论文. 乌鲁木齐: 新疆农业大学, 2022.

LUO C L. Effects of dietary crude protein level on production performance,rumen microflora and metabolomics of lactating dairy cows[D].Ph.D.Thesis Urumqi: Xinjiang Agricultural University, 2022. (in Chinese)

[27]
韩璐璐. 体外模拟环境下日粮粗蛋白水平对绵羊瘤胃发酵和养分降解的影响[D].硕士学位论文. 沈阳: 沈阳农业大学, 2016.

HAN L L. Effects of dietary crude protein levels on ruminal fermentation and nutrient degradation of sheep in artificial simulation[D].Master’s Thesis. Shenyang: Shenyang Agricultural University, 2016. (in Chinese)

[28]
李蒋伟, 周力, 马博研, 等. 日粮蛋白水平对育肥藏羊瘤胃细菌多样性的影响[J]. 安徽农业大学学报, 2022, 49(1):98-102.

LI J W, ZHOU L, MA B Y, et al. Effect of dietary protein level on rumen microbial diversity of fattening Tibetan sheep[J]. Journal of Anhui Agricultural University, 2022, 49(1):98-102. (in Chinese)

[29]
郭凯, 唐梦琪, 霍倩倩, 等. 不同蛋白水平饲粮对犊牛瘤胃微生物区系多样性及组成的影响[J]. 家畜生态学报, 2019, 40(11):22-28.

GUO K, TANG M Q, HUO Q Q, et al. Effects of diets with different protein level on rumen bacterial community in calves[J]. Acta Ecologae Animalis Domastici, 2019, 40(11):22-28. (in Chinese)

[30]
WANG Y Y, CAO P H, WANG L, et al. Bacterial community diversity associated with different levels of dietary nutrition in the rumen of sheep[J]. Applied Microbiology and Biotechnology, 2017, 101(9):3717-3728.

DOI PMID

[31]
KIM Y H, NAGATA R E, OHTANI N, et al. Effects of dietary forage and calf starter diet on ruminal pH and bacteria in Holstein calves during weaning transition[J]. Frontiers in Microbiology, 2016, 7:1575.

[32]
LIU C, WU H, LIU S J, et al. Dynamic alterations in yak rumen bacteria community and metabolome characteristics in response to feed type[J]. Frontiers in Microbiology, 2019, 10:1116.

DOI PMID

[33]
HERNÁNDEZ R, DE MARES M C, JIMENEZ H, et al. Functional and phylogenetic characterization of bacteria in bovine rumen using fractionation of ruminal fluid[J]. Frontiers in Microbiology, 2022, 13:813002.

DOI

[34]
BAKER B J, DE ANDA V, SEITZ K W, et al. Diversity,ecology and evolution of archaea[J]. Nature Microbiology, 2020, 5(7):887-900.

DOI

[35]
SHA Y Z, HU J, SHI B G, et al. Characteristics and functions of the rumen microbial community of cattle-yak at different ages[J]. BioMed Research International, 2020, 2020:3482692.

[36]
涂瑞. 不同蛋白水平日粮中添加过瘤胃赖氨酸对牦牛生长性能、养分消化、血清生化、瘤胃发酵和菌群组成的影响[D].硕士学位论文. 成都: 西南民族大学, 2021.

TU R. Effects of rumen-protected lysine in different protein diets on growth performance,nutrient digestion,serum biochemistry,rumen fermentation and microflora composition of yaks[D].Master’s Thesis. Chengdu: Southwest University for Nationalities, 2021. (in Chinese)

[37]
PEREA K, PERZ K, OLIVO S K, et al. Feed efficiency phenotypes in lambs involve changes in ruminal,colonic,and small-intestine-located microbiota[J]. Journal of Animal Science, 2017, 95(6):2585-2592.

[38]
MA Y H, DENG X T, YANG X, et al. Characteristics of bacterial microbiota in different intestinal segments of Aohan fine-wool sheep[J]. Frontiers in Microbiology, 2022, 13:874536.

DOI

[39]
OGUNADE I, SCHWEICKART H, MCCOUN M, et al. Integrating 16S rRNA sequencing and LC-MS-based metabolomics to evaluate the effects of live yeast on rumen function in beef cattle[J]. Animals, 2019, 9(1):28.

DOI

[40]
WANG X Y, SHI B G, ZUO Z, et al. Effects of two different straw pellets on yak growth performance and ruminal microbiota during cold season[J]. Animals, 2023, 13(3):335.

DOI

[41]
WANG Y, YAO W F, LI B, et al. Nuciferine modulates the gut microbiota and prevents obesity in high-fat diet-fed rats[J]. Experimental & Molecular Medicine, 2020, 52(12):1959-1975.

[42]
DES ROSIERS C, DAVID F, GARNEAU M, et al. Nonhomogeneous labeling of liver mitochondrial acetyl-CoA[J]. Journal of Biological Chemistry, 1991, 266(3):1574-1578.

PMID

[43]
YIN J Y, WEI Y F, LIU D Z, et al. An extended bacterial reductive pyrimidine degradation pathway that enables nitrogen release from β-alanine[J]. Journal of Biological Chemistry, 2019, 294(43):15662-15671.

DOI PMID

[44]
XUE M Y, SUN H Z, WU X H, et al. Multi-omics reveals that the rumen microbiome and its metabolome together with the host metabolome contribute to individualized dairy cow performance[J]. Microbiome, 2020, 8(1):64.

DOI

[45]
XIE Y Y, SUN H Z, XUE M Y, et al. Metagenomics reveals differences in microbial composition and metabolic functions in the rumen of dairy cows with different residual feed intake[J]. Animal Microbiome, 2022, 4(1):19.

DOI PMID

[46]
FAN Q S, WANAPAT M, HOU F J. Rumen bacteria influence milk protein yield of yak grazing on the Qinghai-Tibet plateau[J]. Animal Bioscience, 2021, 34(9):1466-1478.

DOI

文章导航

/