研究论文

高投饲率对圆口铜鱼幼鱼肝脏抗氧化、免疫功能和脂质代谢的影响

  • 陈沛 , 1, 2 ,
  • 赵煜 1, 2 ,
  • 杨元金 1, 2 ,
  • 杨菁 1, 2 ,
  • 曲焕韬 , 1, 2, *
展开
  • 1 中国长江三峡集团有限公司,中华鲟研究所,宜昌 443100
  • 2 三峡工程鱼类资源保护湖北省重点实验室,宜昌 443100
* 曲焕韬,高级工程师,E-mail:

陈沛(1990—),男,湖北监利人,博士,从事动物营养与饲料科学研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2023-03-09

  网络出版日期: 2023-09-13

基金资助

2021年金沙江溪洛渡向家坝水电站珍稀特有鱼类增殖放流站运行管理合同(Z422221002)

Effects of High Feeding Rate on Hepatic Antioxidant, Immune Function and Lipid Metabolism in Juvenile Largemouth Bronze Gudgeon (Coreius guichenoti)

  • CHEN Pei , 1, 2 ,
  • ZHAO Yu 1, 2 ,
  • YANG Yuanjin 1, 2 ,
  • YANG Jing 1, 2 ,
  • QU Huantao , 1, 2, *
Expand
  • 1 Chinese Sturgeon Research Institute, China Three Gorges Corporation, Yichang 443100, China
  • 2 Hubei Key Laboratory of Three Gorges Project for Conservation of Fishes, Yichang 443100, China
* senior engineer, E-mail:

Received date: 2023-03-09

  Online published: 2023-09-13

摘要

本试验通过研究高投饲率对圆口铜鱼(Coreius guichenoti)幼鱼肝脏抗氧化、免疫功能和脂质代谢的影响,来探究高投饲率导致圆口铜鱼脂肪肝形成的原因。设置2%(对照组)和5%(高投饲率组)2个投饲率,每组设3个重复,每个重复投放30尾圆口铜鱼,养殖期为8周。结果显示:与对照组相比,高投饲率显著提高圆口铜鱼幼鱼肝脏甘油三酯(TG)、总胆固醇(TC)、游离脂肪酸(NEFA)、谷丙转氨酶(ALT)、谷草转氨酶(AST)、碱性磷酸酶(AKP)和总胆汁酸(TBA)含量/活性(P<0.05);高投饲率显著提高圆口铜鱼幼鱼肝脏活性氧(ROS)、还原性谷胱甘肽(GSH)和丙二醛(MDA)含量以及总抗氧化能力(T-AOC)(P<0.05),显著降低过氧化氢酶(CAT)和超氧化物歧化酶(SOD)活性(P<0.05),且显著升高免疫球蛋白G(IgG)、免疫球蛋白M(IgM)含量与溶菌酶(LYS)活性(P<0.05),显著上调促炎因子基因肿瘤坏死因子α(TNFα)和白细胞介素1β(IL1β)的表达(P<0.05)。肝脏转录组测序结果显示,脂质代谢相关的过氧化物酶体增殖物激活受体(PPAR)信号通路、甘油酯代谢、脂肪酸生物合成和类固醇生物合成通路与脂肪肝的形成密切相关。对与脂质代谢相关的差异表达基因(DEGs)进行分析发现,脂肪肝中脂合成相关基因甘油-3-磷酸酰基转移酶3(GPAT3)、脂素1(LPIN1)、磷脂酸磷酸酶1(PLPP1)、脂肪酸合成酶(FASN)、乙酰辅酶A羧化酶1(ACC1)和线粒体酰基载体蛋白(ACPM)显著上调,脂解相关基因含Patatin样磷脂酶域包含蛋白2(PNPLA2)、单甘油酯脂肪酶(MGLL)、脂蛋白脂肪酶(LPL)、二酰基甘油激酶β(DGKB)和长链脂肪酸乙酰辅酶A连接酶6(ACSL6)显著下调;此外,脂质代谢相关的差异表达转录因子芳香烃受体1(AHR1)和核受体亚家族B2(NR0B2)与脂合成相关基因呈正相关,与脂解相关基因呈负相关,而核受体亚家族D1(NR1D1)、Krueppel样因子9(KLF9)和Krueppel样因子11(KLF11)与脂合成相关基因呈负相关,与脂解相关基因呈正相关。以上结果表明,高投饲率引起圆口铜鱼幼鱼肝脏脂肪合成的增加、脂肪分解的降低,从而导致肝脏脂肪蓄积,最终诱导脂肪肝的形成,并引发氧化应激和炎症反应,加剧肝脏的损伤。

本文引用格式

陈沛 , 赵煜 , 杨元金 , 杨菁 , 曲焕韬 . 高投饲率对圆口铜鱼幼鱼肝脏抗氧化、免疫功能和脂质代谢的影响[J]. 动物营养学报, 2023 , 35(9) : 5870 -5885 . DOI: 10.12418/CJAN2023.540

Abstract

In order to investigate the causes of fatty liver formation in juvenile largemouth bronze gudgeon (Coreius guichenoti), this experiment was conducted to investigate the effects of high feeding rate on hepatic antioxidant, immune function and lipid metabolism of largemouth bronze gudgeon. Two feeding rates of 2% (control group) and 5% (high feeding rate group) were set up, with 3 replicates in each group and 30 fish in each replicate. The culture period was 8 weeks. The results showed that, compared with the control group, the high feeding rate significantly increased the hepatic triglyceride (TG), total cholesterol (TC), non-esterified fatty acid (NEFA), alanine aminotransferase (ALT), aspartate aminotransferase (AST), alkaline phosphatase (AKP) and total bile acid (TBA)contents/activities (P<0.05); the high feeding rate also significantly increased the hepatic reactive oxygen species (ROS), reducing glutathione (GSH), malondialdehyde (MDA) contents and total antioxidant capacity (T-AOC) (P<0.05), significantly decreased catalase (CAT) superoxide dismutase (SOD) activities (P<0.05), significantly increased immunoglobulin G (IgG), immunoglobulin M (IgM) contents and lysozyme (LYS) activity (P<0.05), and significantly up-regulated the expression of pro-inflammatory factor genes tumor necrosis factor α (TNFα) and interleukin 1β (IL1β) (P<0.05). The results of liver RNA-seq revealed that fatty liver formation was closely associated with lipid metabolism, in particular the peroxisome proliferator-activated receptor (PPAR) signaling pathway, glycerolipid metabolism, fatty acid biosynthesis, and steroid biosynthesis pathway. Moreover, the analysis of differentially expressed genes (DEGs) related to lipid metabolism showed that the lipid synthesis-related genes glycerol-3-phosphate acyltransferase 3 (GPAT3), lipin 1 (LPIN1), phospholipid phosphatase 1 (PLPP1), fatty acid synthase (FASN), acetyl-CoA carboxylase 1 (ACC1) and mitochondrial acyl carrier protein (ACPM) were significantly up-regulated (P<0.05), while the lipolysis-related genes Patatin-like phospholipase domain-containing protein 2 (PNPLA2), monotriglyceride lipase (MGLL), lipoprotein lipase (LPL), diacylglycerol kinase β (DGKB) and long-chain fatty acid acetyl-CoA ligase 6 (ACSL6) were significantly down-regulated in fatty liver (P<0.05). In addition, differentially expressed transcription factors related to lipid metabolism, aryl hydrocarbon receptor 1 (AHR1) and nuclear receptor subfamily 0 group b member 2 (NR0B2) were positively correlated with lipogenesis related genes and negatively correlated with lipolysis related genes, while nuclear receptor subfamily 1 group D member 1 (NR1D1), Krueppel transcription factor 9 (KLF9) and Krueppel transcription factor 11 (KLF11) were negatively correlated with lipogenesis related genes and positively correlated with lipolysis related genes. The above results indicate that high feeding rate can accelerate liver fat accumulation by increasing lipid synthesis and decreasing lipolysis, and finally induce the formation of fatty liver in juvenile largemouth bronze gudgeon, which may induce oxidative stress and inflammatory responses to aggravate liver damage.

圆口铜鱼(Coreius guichenoti)主要分布于金沙江中下游、长江上游干流等水域,栖息于激流性生境,为典型的河道洄游性鱼类。多年来,由于过度捕捞、环境污染、涉水工程等人类活动造成圆口铜鱼产卵场破坏、洄游通道被阻断,导致其自然种群规模急剧下降[1-2],因此,加强圆口铜鱼种群资源的保护和恢复非常迫切。目前,人工增殖放流是快速恢复珍稀濒危鱼类自然种群最为有效手段之一。
为了扩大增殖放流的规模,关于圆口铜鱼物种保护的相关研究已在生殖发育[1,3]、人工养殖[4]、食性组成[5]、遗传多样性[6]、种群生物学[2,7]、机体免疫和病害[8-9]等方面开展。然而,关于圆口铜鱼营养代谢的研究还处于刚起步阶段,目前只是对圆口铜鱼全鱼、肝脏、肌肉和性腺组织营养成分进行了相关报道[10-13]。在自然条件下,野生圆口铜鱼全鱼的脂肪含量为7.11%~10.96%,肝脏脂肪含量高达22%,高于大多数鱼类正常水平[12]。董纯等[13]发现,圆口铜鱼性腺从Ⅱ期到Ⅳ期的发育过程中,肌肉粗脂肪含量会显著升高。李学梅等[9]对人工养殖圆口铜鱼亲本与子代肝脏进行转录组测序(RNA-seq)分析发现,差异表达基因(differential expression genes,DEGs)在脂肪酸的消化吸收、代谢、合成通路上显著富集。从以上结果可以推测,圆口铜鱼对脂肪具有较强的蓄积和利用能力,这可能是为其长距离生殖洄游提供必要的能量储备[14-16]。然而,在人工养殖的条件下,圆口铜鱼栖息水环境变得平稳、生殖洄游通道受阻,鱼体脂肪不能及时进行转运或消耗,容易引起脂肪过度蓄积导致鱼体损伤。
肝脏是鱼体脂质合成和代谢的中心,维持肝脏的健康对鱼体生长、免疫力、应激耐受性等方面都至关重要[17]。本课题组前期研究表明,随着投饲率的增加,圆口铜鱼幼鱼肝脏脂肪积累也逐渐增多,且投饲率超过3%会诱发脂肪肝表型[18]。为此,本研究探讨高投饲率导致圆口铜鱼脂肪肝形成的原因,旨在为圆口铜鱼营养代谢性肝病预防等方面提供科学的理论依据,为圆口铜鱼苗种健康培育奠定基础。

1 材料与方法

1.1 试验设计

根据前期研究结果,圆口铜鱼幼鱼投饲率超过3%,肝脏脂肪蓄积逐渐增多,并诱发脂肪肝表型[18],因此本试验设置2%(对照组)和5%(高投饲率组)2个投饲率(其中5%为表观饱食投饲率),每组设3个重复,每个重复30尾,以重复为单位养殖于6个圆形玻纤缸培育池内。圆形玻纤缸培育池直径1.0 m,高1.2 m,池底部四周延中央略微下陷,池底中心为排水口,布置有防漏网,养殖水深维持在0.7 m,并配备有循环水养殖系统,每天水体交换量为13 t。试验鱼来自四川省宜宾市向家坝增殖放流站2022年人工繁育的圆口铜鱼幼鱼。养殖期间,每天08:00和16:00各投喂1次,每2周对试验鱼进行1次称重,并根据体重重新调节投喂量。循坏水养殖系统水温为(20.5±1.8) ℃,光照周期为12 h:12 h,氨氮浓度≤0.1 mg/L,溶解氧浓度≥7.5 mg/L。试验饲料为山东升索饲料科技有限公司生产的S5型号微粒子配合饲料,主要原料包括:进口特种鱼粉、南极磷虾粉、精制鱼油、卵磷脂、氯化胆碱、维生素及类维生素、矿物质元素;主要营养成分含量(干物质基础)如下:粗蛋白质52.66%,粗脂肪14.33%,淀粉10.60%,水分6.92%,粗灰分12.74%,钙3.27%,总磷2.07%。
养殖8周后,所有试验鱼饥饿24 h后,进行称重及计数。每组随机捞取12尾鱼,经100 mg/L 2-苯氧基乙醇(Sigma)麻醉,测量体长和体重后,取肝脏组织,一部分放入4%的多聚甲醛溶液固定,用于苏木精-伊红(HE)和油红O染色,一部分放入液氮快速冷冻,用于转录组测序、荧光定量表达以及生理生化指标分析。

1.2 指标测定

1.2.1 生长性能指标测定

增重率(weight gain rate,WGR,%)=100×(终末均重-初始均重)/初始均重;
特定生长率(specific growth rate,SGR,%/d)=100×(ln终末均重-ln初始均重)/56;
肥满度(CF,g/cm3)=100×终末体重/终末体长3;
存活率(survival rate,SR,%)=100×存活尾数/30。

1.2.2 肝脏生理生化指标检测

将肝脏用液氮研磨后,加入9倍体积的磷酸盐缓冲液(PBS)进行振荡,4 ℃条件下4 000 r/min离心10 min,取上清液用于生理生化指标测定。总蛋白(total protein,TP)、谷丙转氨酶(alanine aminotransferase,ALT)、谷草转氨酶(aspartate aminotransferase,AST)、甘油三酯(triglyceride,TG)、总胆固醇(total cholesterol,TC)、游离脂肪酸(nonesterified fatty acids,NEFA)、碱性磷酸酶(alkaline phosphatase,AKP)、总胆汁酸(total bile acid,TBA)、低密度脂蛋白胆固醇(low-density lipoprotein cholesterol,LDL-C)、总抗氧化能力(total antioxidant capacity,T-AOC)、还原性谷胱甘肽(reduced glutathione,GSH)、超氧化物歧化酶(superoxide dismutase,SOD)、过氧化氢酶(catalase,CAT)和丙二醛(malondialdehyde,MDA)检测试剂盒均购自南京建成生物工程研究所;活性氧(Reactive oxygen species,ROS)、免疫球蛋白G(immunoglobulin G,IgG)、免疫球蛋白M(immunoglobulin M,IgM)、免疫球蛋白Z(immunoglobulin Z,IgZ)和溶菌酶(lysozyme,LYS)检测试剂盒均购自上海酶联生物科技有限公司。以上指标检测步骤参考试剂盒说明书。

1.2.3 肝脏组织切片分析

肝脏组织在4%多聚甲醛溶液中固定处理48 h后,经过脱水、透明、包埋、切片后进行HE染色。肝脏组织切片油红O染色参照Wei等[19],切片用油红O染液染色,经60%异丙醇冲洗后,用苏木精进行复染。将染色后的切片置于光学显微镜(DM2500生物显微镜,Leica,德国)下观察拍照,油红O染色中脂滴的相对面积使用Image J软件分析。

1.2.4 转录组测序及基因功能注释

根据肝脏切片的结果,选取无明显异常肝脏和脂肪肝表型各4个样品,进行RNA提取。将肝脏组织置于液氮预冷的研钵中,研磨至粉末状,之后使用RNA Purification Reagent试剂盒(Invitrogen,美国)对肝脏组织总RNA进行抽提,然后通过TruseqTM RNA sample prep Kit(Illumina)试剂盒建库。采用第2代测序技术,基于Illumina NovaSeq 6000测序平台,对这些文库进行双末端150 bp测序。首先对原始下机数据进行过滤,将带接头、长度小于50 bp、序列平均质量在Q20以下的Reads进行去除,对得到的高质量序列用Trinity软件进行从头拼接得到Unigene转录本序列。转录组的测序工作由上海派森诺生物科技有限公司完成。
采取无参考基因组,对Unigene进行基因功能注释。功能注释数据库包括GO(http://geneontology.org/)、KEGG(http://www.kegg.jp/)、eggNOG(http://eggnog.embl.de/version_3.0/)、UniProt(http://www.uniprot.org/help/uniprotkb)。

1.2.5 转录组DEGs筛选

每个Unigene在样本中的RPKM(reads per kilobase of exon per million fragments mapped)值作为该转录本的表达量。转录本丰度越高,则基因表达水平越高,通过对每个转录本的表达量进行样本间差异显著性分析,获得DEGs。采用DESeq对基因表达进行差异分析,筛选DEGs条件为:|log2[差异倍数(FC)]|>1、q<0.05。
转录因子的预测是与Plant TFDB(https://ngdc.cncb.ac.cn/databasecommons/database/id/307)和Animal TFDB(https://ngdc.cncb.ac.cn/databasecommons/database/id/8)数据库比较,从而预测得到转录因子以及转录因子所属的家族信息。通过|log2(FC)|>2、q<0.05来筛选导致脂肪肝形成的差异表达转录因子。

1.2.6 实时荧光定量PCR(RT-qPCR)分析

提取对照组和高投饲率组圆口铜鱼肝脏RNA,通过定量PCR(qPCR)对10个DEGs进行验证,以此评价转录组测序方法鉴定DEGs的可靠性。依据说明书,使用HiScript 1st Strand cDNA Synthesis Kit(上海吉真生物科技有限公司)将8个肝脏样品的RNA反转录为cDNA,并以反转录产物为模板,以延长因子1α(elongation factor 1α,EF1α)为内参基因,使用AceQ qPCR SYBR Green Master Mix(上海吉真生物科技有限公司),采用CFX96荧光定量PCR仪(Bio-Rad,美国)进行RT-qPCR检测,引物序列见表1。扩增条件为:95 ℃预变性5 min,然后95 ℃变性10 s,60 ℃退火延伸30 s,循环40次。每个样品设3个操作重复,采用2-△△Ct方法计算出各候选基因的mRNA相对表达量。
表1 本研究所用的引物序列

Table 1 Primer sequences used in this study

基因
Genes
上游引物
Forward primer (5'—3')
下游引物
Reverse primer (5'—3')
产物大小
Product size/bp
EF1α TGGGTGTTGGACAAACTGAA CAACACCACCAGCAACAATC 190
LPL AGTGTCAGTGAACCGTCGTAGC CGCAGTTTCCTCCTAATCTCCT 159
LPIN1 GCTCCTGAGCTGCACATAGAC AGGTGGCGGCACTTTACTT 100
CYP24A1 GTGAGGTGGCTCTGGTGGT CCTTTGGAACAATGATGGTGAC 193
CYP2R1 TTAGGTAAGCGGCACTGTCTG GAATAAAGCCTTCGGGGAAC 109
POLA1 CAACCAGTAAAAGCGGAAAAC GAAGATGGAGGAAGGGGAAC 115
LIG1 GGCTAGAGGCAGTGCAAGTG TCGTGGGAAACGGAGTGA 119
PCNA TTCTGATATGCAATGAAATCCC ACCAAGGCTACTCCTCTGTCC 185
FOXM1 TGTTTTCTTGCGGTCTGGTT GAGTGACGTGAGCTTGGTGAT 128
AHR1 GGGCAACCAGATTGCATCA GCAACCACAGCCTAAAACAGA 168
KLF9 CGTCTGTATCCCGTTGCG TTGACTTTCCTCAGGTCCCTC 199
TGFβ1 GCAAGACTCTGGACCTGGAG TGCAGAGGGACAGTGTTCAG 202
TNFα GCAGATCGCTGAGAACACAA AGCTTCATTGTCGCCTTCAT 226
IL1β CCACCTGGTCTTGAAGGAGA CACCTGCTCGAAATCCTCAT 172

EF1α:延长因子1α elongation factor 1α;LPL:脂蛋白脂肪酶 lipoprotein lipase;LPIN1:脂素1 lipin 1;CYP24A1:1α,25-二羟维生素D3-24-羟化酶 1α,25-dihydroxyvitamin D3-24-hydroxylase;CYP2R1:维生素D-25-羟化酶vitamin D-25-hydroxylase;POLA1:DNA聚合酶α催化亚基 DNA polymerase α catalytic subunit;LIG1:DNA连接酶1 DNA ligase 1;PCNA:增殖细胞核抗原 proliferating cell nuclear antigen;FOXM1:叉头蛋白M1 forkhead box protein M1;AHR1:芳香烃受体1 aryl hydrocarbon receptor 1;KLF9:Krueppel样因子9 Krueppel-like factor 9;TGFβ1:转化生长因子β1 transforming growth factor beta 1;TNFα:肿瘤坏死因子α tumor necrosis factor α;IL1β:白细胞介素1β interleukin 1 beta。

1.3 数据统计与分析

试验结果用平均值±标准误(mean±SE)的方式表示。组间差异及两者间相关性分别使用SPSS 26.0软件中独立样本t检验和线性回归分析,其中P<0.05表示差异显著,P<0.01表示差异极显著。文中图片使用GraphPad软件绘制。

2 结果与分析

2.1 高投饲率对圆口铜鱼幼鱼生长性能的影响

与对照组相比,高投饲率显著提高圆口铜鱼幼鱼终末体重、增重率、特定生长率和肥满度(P<0.05),而对存活率无显著影响(P>0.05)(表2)。
表2 高投饲率对圆口铜鱼幼鱼生长性能的影响

Table 2 Effects of high feeding rate on growth performance of juvenile largemouth bronze gudgeon

项目
Items
初始体重
IBW/g
终末体重
FBW/g
增重率
WGR/%
特定生长率
SGR/(%/d)
肥满度
CF/(g/cm3)
存活率
SR/%
对照组 Control group 4.93±0.16 9.11±0.21a 83.70±3.23a 1.09±0.03a 1.42±0.10a 100±0
高投饲率组
High feeding rate group
4.97±0.13 12.37±0.15b 149.40±4.65b 1.63±0.02b 1.55±0.06b 100±0

同列数据肩标无字母或相同字母者表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

In the same column, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05).

2.2 高投饲率对圆口铜鱼幼鱼肝脏生理生化指标的影响

与对照组相比,高投饲率显著提高圆口铜鱼幼鱼肝脏TG、TC、NEFA、ALT、AST、AKP和TBA的含量/活性(P<0.05),而对TP和LDL-C含量没有显著影响(P>0.05)(表3)。
表3 高投饲率对圆口铜鱼幼鱼肝脏生理生化指标的影响

Table 3 Effects of high feeding rate on hepatic physiological and biochemical indicators of juvenile largemouth bronze gudgeon

项目
Items
对照组
Control group
高投饲率组
High feeding rate group
总蛋白 TP/(g/L) 48.48±3.34 47.80±4.89
甘油三酯 TG/(μmol/g prot) 200.19±19.48a 448.10±47.77b
总胆固醇 TC/(μmol/g prot) 40.97±4.46a 69.95±7.35b
低密度脂蛋白胆固醇 LDL-C/(μmol/g prot) 12.14±1.17 12.42±1.00
游离脂肪酸 NEFA/(μmol/g prot) 68.98±9.63a 133.37±20.40b
谷丙转氨酶 ALT/(U/g prot) 23.29±1.86a 30.29±2.26b
谷草转氨酶 AST/(U/g prot) 33.79±3.13a 45.09±4.38b
碱性磷酸酶 AKP/(mg/g prot) 24.63±2.51a 31.45±2.65b
总胆汁酸 TBA/(μmol/g prot) 13.04±1.07b 8.06±0.56a

同行数据肩标无字母或相同字母者表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.3 高投饲率对圆口铜鱼幼鱼肝脏抗氧化和免疫功能的影响

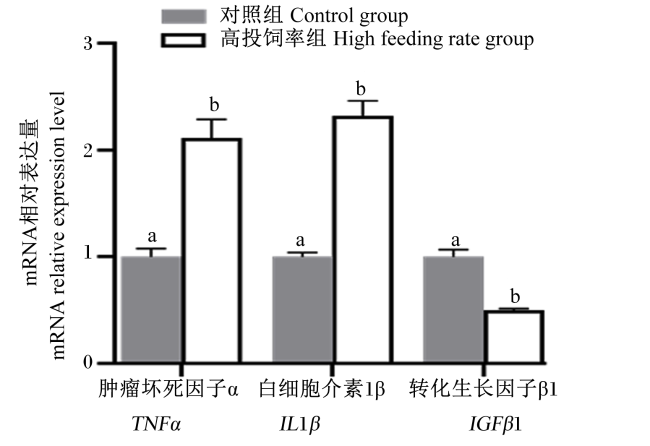
与对照组相比,高投饲率显著提高圆口铜鱼幼鱼肝脏ROS、GSH和MDA含量与T-AOC(P<0.05),显著降低CAT和SOD活性(P<0.05),并且显著提高IgG、IgM含量和LYS活性(P<0.05)(表4)。与对照组相比,高投饲率显著上调圆口铜鱼幼鱼肝脏促炎因子肿瘤坏死因子α(TNFα)和白细胞介素1β(IL1β)的mRNA相对表达量(P<0.05),而显著下调抗炎因子转化生长因子β1(TGFβ1)的mRNA相对表达量(P<0.05)(图1)。
表4 高投饲率对圆口铜鱼幼鱼肝脏抗氧化和免疫指标的影响

Table 4 Effects of high feeding rate on hepatic antioxidant and immune indicators of juvenile largemouth bronze gudgeon

项目
Items
对照组
Control group
高投饲率组
High feeding rate group
抗氧化指标 Antioxidant indicators
活性氧 ROS/(U/mg prot) 69.02±6.00a 161.31±14.82b
总抗氧化能力 T-AOC/(μmol/g prot) 104.22±3.45a 182.65±16.44b
过氧化氢酶 CAT/(U/g prot) 137.16±16.26b 82.84±8.86a
还原性谷胱甘肽 GSH/(μmol/g prot) 12.14±1.12a 27.30±3.63b
超氧化物歧化酶 SOD/(U/mg prot) 202.66±9.42b 165.00±15.36a
丙二醛 MDA/(μmol/g prot) 11.09±9.63a 29.59±2.94c
免疫指标 Immune indicators
免疫球蛋白G IgG/(mg/g prot) 4.03±0.26a 8.65±0.78b
免疫球蛋白M IgM/(mg/g prot) 0.55±0.04a 0.85±0.05b
免疫球蛋白Z IgZ/(mg/g prot) 0.22±0.01 0.25±0.02
溶菌酶 LYS/(U/g prot) 53.99±3.30a 89.88±6.66b
图1 高投饲率对圆口铜鱼幼鱼肝脏炎症因子基因表达的影响

数据柱标注不同小写字母表示组间有差异显著(P<0.05)。

Fig.1 Effects of high feeding rate on expression of hepatic inflammatory cytokine genes of juvenile largemouth bronze gudgeon

Data columns with different lowercase letters in the figure indicate significant difference between groups (P<0.05).

2.4 圆口铜鱼幼鱼肝脏组织病理分析

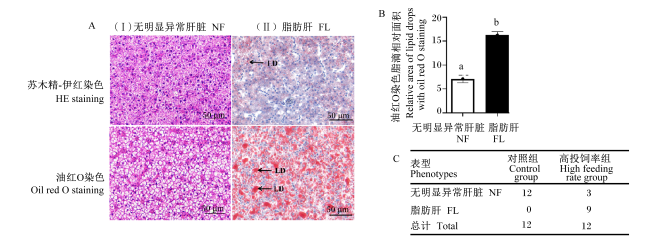
通过HE和油红O染色观察到2种典型的肝脏表型(图2):一种是无明显异常肝脏表型,肝细胞轮廓和细胞核非常清晰,脂滴颗粒和数量都较少;另一种是脂肪肝表型,肝细胞轮廓和肝索不清晰,肝细胞中明显有脂质的空泡,脂滴颗粒增大和数量增多(图2-A)。与无明显异常肝脏表型相比,脂肪肝表型脂肪蓄积程度显著加剧(图2-B)。与对照组相比,高投饲率导致圆口铜鱼幼鱼脂肪肝出现的比例高达75%(9/12)(图2-C)。
图2 圆口铜鱼幼鱼肝脏组织病理分析

A:肝脏组织病理2种表型(比例尺=50 μm),黑色箭头表示脂滴(LD);B:油红O染色脂滴相对面积分析,图中数据柱标注不同小写字母表示组间有差异显著(P<0.05);C:脂肪肝表型数量的统计。

Fig.2 Hepatic histopathological analysis of juvenile largemouth bronze gudgeon

A: two phenotypes of hepatic histopathology (scale bar=50 μm), and the black arrow represents lipid drops (LD); B: relative area analysis of lipid drops with oil red O staining, data columns with different lowercase letters in the figure indicate significant difference between groups (P<0.05); C: statistics of the number of fatty liver phenotype.

2.5 转录组DEGs KEGG通路富集分析

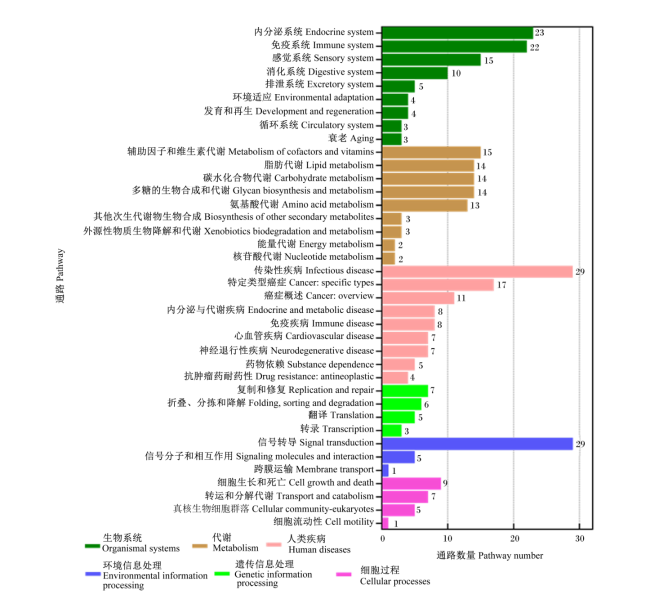
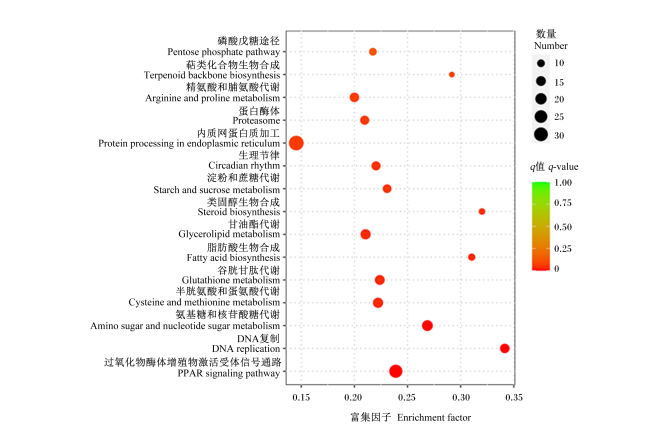
与无明显异常肝脏表型相比,脂肪肝表型有2 438个基因发生了显著变化,其中显著上调1 195个,显著下调1 243个。通过KEGG富集分析,DEGs主要参与到生物系统(organismal systems,25.95%)、代谢(metabolism,23.32%)、人类疾病(human diseases,27.99%)、细胞过程(cellular processes,6.41%)、环境信息处理(environmental information processing,10.20%)和遗传信息处理(genetic information processing,6.12%)6大类以及38小类,共343条代谢通路中(图3),其中信号转导(signal transduction,29条)、传染性疾病(infectious disease,29条)、内分泌系统(endocrine system,23条)、免疫系统(immune system,22条)、特定类型癌症(cancer:specific types,17条)、感觉系统(sensory system,15条)、辅助因子和维生素代谢(metabolism of cofactors and vitamins,15条)这7个小类都超过14条代谢通路。图4表示DEGs富集的前15条KEGG通路主要参与物质生物合成与代谢途径,其中主要富集的通路为内质网蛋白质加工(protein processing in endoplasmic reticulum,34个DEGs)、过氧化物酶体增殖物激活受体(peroxisome proliferators-activated receptor,PPAR)信号通路(PPAR signaling pathway,27个DEGs)、氨基糖和核苷酸糖代谢(amino sugar and nucleotide sugar metabolism,18个DEGs)、甘油酯代谢(glycerolipid metabolism,16个DEGs)、半胱氨酸和蛋氨酸代谢(cysteine and methionine metabolism,16个DEGs)、谷氨酸代谢(glutathione metabolism,15个DEGs)、精氨酸和脯氨酸代谢(arginine and proline metabolism,14个DEGs)、蛋白酶体(proteasome,13个DEGs)、淀粉和蔗糖代谢(starch and sucrose metabolism,12个DEGs)、脂肪酸生物合成(fatty acid biosynthesis,9个DEGs)、类固醇生物合成(steroid biosynthesis,8个DEGs)、萜类化合物生物合成(terpenoid backbone biosynthesis,7个DEGs)。
图3 差异表达基因的KEGG分析

Fig.3 KEGG analysis of DEGs

图4 差异表达基因富集的前15条KEGG通路

Fig.4 Top 15 KEGG pathways enriched by DEGs

2.6 脂质代谢DEGs及差异表达转录因子分析

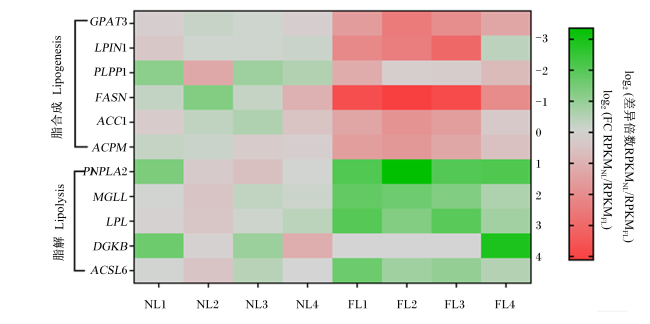
对与脂质代谢相关的DEGs进行分析(图5),发现脂肪肝表型中脂合成相关基因,如甘油-3-磷酸酰基转移酶3(GPAT3)、脂素1(LPIN1)、磷脂磷酸酶1(PLPP1)、脂肪酸合成酶(FASN)、乙酰辅酶A羧化酶1(ACC1)和线粒体酰基载体蛋白(ACPM)显著上调;而脂肪肝表型中脂解相关基因,如含Patatin样磷脂酶域包含蛋白2(PNPLA2)、单甘油酯脂肪酶(MGLL)、脂蛋白脂肪酶(LPL)、二酰基甘油激酶β(DGKB)和长链脂肪酸乙酰辅酶A连接酶6(ACSL6)显著下调。
图5 脂质代谢相关差异表达基因的分析

NL表示无明显异常肝脏,FL表示脂肪肝。NL represents no abnormality liver, and FL represents fatty liver.

GPAT3:甘油-3-磷酸酰基转移酶3 glycerol-3-phosphate acyltransferase 3;LPIN1:脂素1 lipin 1;PLPP1:磷脂磷酸酶1 phospholipid phosphatase 1;FASN:脂肪酸合成酶 fatty acid synthase;ACC1:乙酰辅酶A羧化酶1 acetyl-CoA carboxylase 1;ACPM:线粒体酰基载体蛋白 mitochondrial acyl carrier protein; PNPLA2:含Patatin样磷脂酶域包含蛋白2 Patatin-like phospholipase domain-containing protein 2;MGLL:单甘油酯脂肪酶monotriglyceride lipase;LPL:脂蛋白脂肪酶 lipoprotein lipase;DGKB:二酰基甘油激酶β diacylglycerol kinase β;ACSL6:长链脂肪酸乙酰辅酶A连接酶6 long-chain fatty acid acetyl-CoA ligase 6。

Fig.5 Analysis of DEGs related to lipid metabolism

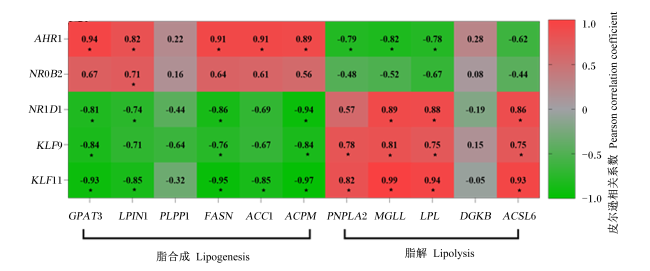
对DEGs进行筛选得到15个差异表达转录因子(表5),脂肪肝表型中上调的转录因子有8个,分别为芳香烃受体1(AHR1)、双性和单抗3相关转录因子2(DMRT2)、泛素蛋白连接酶E3(UHRF1)、DNA J同源B家族11(DNAJB11)、生长抑素b和血小板反应蛋白1型结构域含蛋白(SBSPON)、核因子白细胞介素3调节蛋白(NFIL3)、核受体亚家族B0组成员2(NR0B2)和无机焦磷酸酶(PPA),下调的转录因子有7个,分别为叉头蛋白M1(FOXM1)、同源异型盒蛋白(OTPB)、肝性白血病因子(HLF)、核受体亚家族D1组成员1(NR1D1)、Krueppel样因子9(KLF9)、Krueppel样因子11(KLF11)和GLIS家族锌指1(GLIS1)。差异表达转录因子中AHR1、NR0B2、NR1D1、KLF9和KLF11与脂质代谢密切相关,其中AHR1和NR0B2与脂合成相关基因呈正相关,与脂解相关基因呈负相关,可能有利于肝脏脂肪沉积;而NR1D1、KLF9和KLF11与脂合成相关基因呈负相关,与脂解相关基因呈正相关,可能利于肝脏脂肪消耗(图6)。
表5 差异表达转录因子

Table 5 Differential expression transcription factors

缩写
Abbreviations
基因名称
Gene names
log2(差异倍数)
log2(FC)
调控
Regulation
q
q-value
脂质代谢相关 Related to lipid metabolism
AHR1 芳香烃受体1 Aryl hydrocarbon receptor 1 2.15 上调 9.80E-03
NR0B2 核受体亚家族B0组成员2
Nuclear receptor subfamily 0 group B member 2
2.23 上调 3.49E-02
NR1D1 核受体亚家族D1组成员1
Nuclear receptor subfamily 1 group D member 1
-2.12 下调 2.35E-05
KLF9 Krueppel样因子9 Krueppel transcription factor 9 -2.63 下调 8.76E-12
KLF11 Krueppel样因子11 Krueppel transcription factor 11 -2.19 下调 2.01E-11
其他 Others
DMRT2 双性和单抗3相关转录因子2
Double sex and mab3-related transcription factor 2
3.34 上调 4.71E-02
FOXM1 叉头蛋白M1 Forkhead box protein M1 -2.35 下调 3.56E-02
GLIS1 GLIS家族锌指1 GLIS family Zinc finger 1 -4.01 下调 8.29E-04
DNAJB11 DNA J同源B家族11 DNA J homolog subfamily B member 11 2.14 上调 2.16E-05
OTPB 同源异型盒蛋白 Othopedia homeobox protein B -3.51 下调 1.82E-07
UHRF1 泛素蛋白连接酶E3 Ubiquitin-protein ligase E3 3.37 上调 5.62E-04
SBSPON 生长抑素b和血小板反应蛋白1型结构域含蛋白
Somatomedin-B and thrombospondin type-1 domain-containing protein
2.34 上调 2.36E-02
HLF 肝性白血病因子 Hepatic leukemia factor -2.56 下调 2.92E-17
PPA 无机焦磷酸酶 Inorganic pyrophosphatase 2.46 上调 8.17E-08
NFIL3 核因子白细胞介素3调节蛋白
Nuclear factor interleukin-3-regulated protein
2.99 上调 8.56E-06
图6 脂质代谢相关转录因子与基因的相关性分析

图中各基因和转录因子的中文和英文名称见图5表5。图中*表示相关性显著(P<0.05)。

Fig.6 Correlation analysis of transcription factors and genes related to lipid metabolism

The Chinese and English names of the genes and transcription factors in the figure are shown in Fig.5 and Table 5. * in the figure indicates significant correlation (P<0.05).

2.7 转录组测序结果的qPCR验证

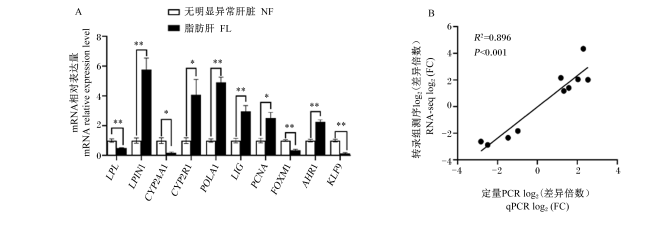
选取10个通过转录组测序筛选获得的DEGs进行qPCR验证,结果发现,转录组测序筛选出的DEGs LPLLPIN1、1α,25-二羟维生素D3-24-羟化酶(CYP24A1)、维生素D-25-羟化酶(CYP2R1)、聚合酶α催化亚基(POLA1)、DNA连接酶1(LIG1)、增殖细胞核抗原(PCNA)、FOXM1、AHR1和KLF9的变化趋势与qPCR结果相一致,并且具有显著相关性(图7),说明转录组测序筛选获得的DEGs结果可靠,可以用于后续的研究。
图7 10个差异表达基因的验证

A:qPCR检测基因表达情况,图中各基因的中文和英文名称见表1。数据用平均值±标准误差表示。*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。B:qPCR数据与转录组测序数据间的相关性。

Fig.7 Validation of 10 DEGs

A: gene expression measured by qPCR, the Chinese and English names of the genes in the figure are shown in Table 1. Values are expressed as mean±SE. * mean significant difference (P<0.05), and ** mean extremely significant difference (P<0.01). B: the correlation between the qPCR data and RNA-seq data.

3 讨论

圆口铜鱼与北极红点鲑(Salvelinus alpinus)[14]、北鳕(Boreogadus saida)[15]和高首鲟(Acipenser transmontanus)[16]一样,洄游期间需要消耗机体大量脂肪/能量来完成洄游生活史。因此,野生圆口铜鱼鱼体各组织脂肪积累可能是为长距离生殖洄游提供能量储备。然而,在人工养殖的条件下,圆口铜鱼栖息水环境变得平稳、生殖洄游通道受阻,鱼体脂肪不能及时进行转运或消耗,容易引起脂肪过度蓄积导致鱼体损伤。本研究发现,高投饲率虽然显著提高了圆口铜鱼幼鱼的生长性能,但75%的圆口铜鱼出现了脂肪肝表型,主要表现为肝细胞轮廓和肝索不清晰,大量的脂滴蓄积。鱼类脂肪肝是现代集约化养殖业中常见的疾病,肝脏过度蓄积脂肪会引起代谢紊乱、免疫力降低,危害养殖鱼类的生长和健康[20]。饲料能量过剩、蛋能比不合理、高脂、高糖以及过量投喂都会造成肝脏脂肪合成量超过需要量,进而导致脂肪沉积,形成脂肪肝[21-22]。过高的能量摄入是养殖鱼类出现脂肪肝的常见原因,在养殖过程中主要是由于投喂量/投饲率过高导致。研究显示,投饲率从1%提高到3%,草鱼(Ctenopharyngodon idellus)幼鱼肝脏脂肪含量(湿重)由3.54%上升至15.55%左右[23]。饱食投喂会提高大口黑鲈(Micropterus salmoides)血浆TG、TC和TBA含量以及肝脏脂肪含量,损害肝细胞完整性,诱发其肝细胞凋亡[24],而在斑马鱼(Danio rerio)[25]、草鱼[26]、金鲫鱼(Carassius auratus red var.)[27]和乌苏里拟鲿(Pseudobagrus ussuriensis)[28]中也被证实过多投喂是诱发鱼类脂肪肝的主要原因。在许多鱼类中,饱和投喂导致的过剩能量会以脂肪形式在鱼体中储存,特别是在肝脏中蓄积,进而引起鱼体肝脏损伤,引发代谢性肝病[25,29]。本试验结果与以上研究结果一致,高投饲率显著提高圆口铜鱼幼鱼肝脏TG、TC和NEFA含量,导致肝脏脂肪蓄积,而肝脏ALT、AST、AKP活性和TBA含量的升高进一步表明肝脏过多脂肪蓄积导致肝功能损伤。
在正常情况下,肝脏内ROS的产生和清除维持着动态平衡。肝脏过多脂肪蓄积会造成鱼体应激反应,引起ROS含量显著增加,导致鱼体氧化损伤[30]。MDA被认为是氧化应激的指标,而SOD和CAT是抗氧化的指标。越来越多的研究表明,脂代谢的紊乱、TG和TC蓄积都可引起强烈的氧化应激[31-32]。在本研究中,高投饲率导致的圆口铜鱼幼鱼肝脏ROS和MDA含量显著升高,而SOD和CAT活性显著下降,这表明高投饲率导致圆口铜鱼幼鱼肝脏脂肪蓄积会引起氧化应激反应,进而降低肝脏的抗氧化能力。鱼体产生过多的ROS也可引起机体炎症反应,如果肝脏炎症未被清除,持续发展会进一步损伤肝功能,进而诱导细胞凋亡,严重会导致凋亡和坏死[33]。本研究发现,高投饲率显著上调圆口铜鱼幼鱼肝脏促炎因子TNFɑIL1β的表达,而显著下调抗炎因子TGFβ的表达。在本研究中,高投饲率也引起圆口铜鱼幼鱼肝脏IgG、IgM含量和LYS活性显著升高,提高了鱼体的免疫力,这可能是一种免受氧化应激和炎症反应损伤的自我保护性机制[34],相似的结果也在大口黑鲈[33]和中华鲟(Acipenser sinensis)[35]中被报道。因此,高投饲率易诱导圆口铜鱼幼鱼肝脏的蓄积,伴随着氧化应激和炎症反应,会进一步加剧肝脏的损伤。
鱼类肝脏脂肪的沉积是一个复杂的代谢过程,主要涉及脂肪合成、分解过程和脂肪转运[17,19]。李学梅等[9]发现,圆口铜鱼子代幼鱼肝脏脂肪酸代谢和合成通路非常旺盛。Jia等[36]报道,大口黑鲈养殖密度过高会调控脂质代谢相关通路,如PPAR信号通路、类固醇生物合成、甘油酯代谢和脂肪酸代谢,导致肝脏脂代谢紊乱,加剧鱼体氧化应激反应。胡晓冬等[37]证实,甘油三酯通路和PPAR信号通路与酒精诱导斑马鱼幼鱼肝脂变性密切相关。本研究发现,圆口铜鱼幼鱼脂肪肝形成的DEGs也主要富集在PPAR信号通路、甘油酯代谢、脂肪酸生物合成和类固醇生物合成代谢通路,其中脂合成相关基因GPAT3、LPIN1、PLPP1、FASNACC1和ACPM显著上调,而脂解相关基因PNPLA2、MGLLLPLDGKBACSL6显著下调。刘康等[38]研究表明,随着投饲率的增加,长吻鮠(Leiocassis longirostris)幼鱼肝胰脏脂肪含量和脂质代谢相关酶(ACC和LPL)活性也随着增加。因此,高投饲率引起肝脏脂合成的增加、脂分解的降低导致肝脏脂肪蓄积是圆口铜鱼幼鱼脂肪肝形成的主要原因。
转录因子是一组独特的DNA结合蛋白,可直接或间接调控下游基因的转录水平参与机体很多生物学过程[39]。本研究在脂肪肝表型中发现,调控脂质代谢的转录因子AHR1和NR0B2的表达显著上调,而NR1D1、KLF9和KLF11的表达显著下调。肝脏过表达芳香烃受体(AHR)会上调小鼠肝细胞脂肪酸转位酶(fatty acid translocase,CD36)的表达,促进肝细胞对脂肪酸的摄取,导致脂质沉积和肝脏损伤,而抑制或沉默AHR可降低肝脏对脂质的摄取和改善肝脏健康[40-41]。高同型半胱氨酸血症可通过激活AHR/CD36信号通路增加肝细胞对脂质的摄取,诱导肝脏脂肪变性[42];激活AHR信号通路可间接诱导大鼠肝细胞的脂滴蓄积[43]。根据以上结果,推测本研究中高投饲率引起的肝脏AHR1表达上调可促进肝脏对脂肪吸收并诱导脂肪肝的形成。在肝脏中,NR0B2可通过参与胆固醇降解、胆汁酸生成以及脂肪生成等途径调控肝脏脂质代谢,过表达NR0B2可引起肝脏脂肪蓄积,而抑制或敲除NR0B2则会改善脂肪肝症状[44-45]NR1D1不仅在调节生物钟过程中发挥核受体的作用,还可直接调节肝脏脂质代谢[46]。小鼠敲除NR1D1后,可引起肝细胞线粒体含量和氧化功能降低,进而导致脂肪蓄积并伴随肝纤维化症状发生[47-48]。Solt等[49]通过NR1D1激动剂处理正常小鼠和肥胖小鼠,发现小鼠骨胳肌CD36和CPT1的表达上调,而硬脂酰辅酶A去饱和酶1(stearoyl-CoA desaturase 1,SCD1)的表达受到抑制,引起体脂含量下降。随后,Burris[50]和Ramakrishnan等[51]也表明NR1D1与CD36、SCD1和CPT1存在密切联系。因此,推测本研究中NR0B2表达上调和NR1D1表达下调可诱导肝脏脂肪蓄积。已有研究报道KLF9和KLF11通过招募转录共抑制因子在脂质代谢过程中发挥调控作用[52-53]。黄金灿等[54]利用腺病毒在小鼠肝原代细胞和高脂小鼠中都过表达KLF9,发现过氧化物酶体增殖物激活受体γ共同激活剂1α(peroxisome proliferator activated receptor-gamma coactivator 1α,PGC1α)等脂质氧化相关基因的表达水平显著升高,促进脂质氧化,从而改善脂肪肝症状。本研究在脂肪肝中发现KLF9的表达下调,其会导致脂合成增加、脂分解降低,可能与脂肪肝形成有关。陆俊宇等[55]利用腺病毒感染的方法在小鼠肝脏中特异性过表达KLF11,结果可以显著降低血清和肝脏TG含量,改善肝脏脂肪堆积。Zhang等[56]研究发现,过表达KLF11能够激活过氧化物酶体增殖物激活受体α(peroxisome proliferators-activated receptor α,PPARα)信号通路,下调FAS的表达,提高肝脏脂肪氧化能力,进而抑制脂质合成。本研究发现,高投饲率导致KLF11的表达下调,可能会降低肝脏脂肪氧化能力,进而促进肝脏脂肪蓄积。转录因子与脂质代谢相关基因的相关性分析结果进一步表明,AHR1和NR0B2表达上调,NR1D1、KLF9和KLF11表达下调,可促进脂质合成、抑制脂质分解,利于肝脏脂肪沉积,最后导致脂肪肝形成。

4 结论

本研究结果表明,高投饲率引起圆口铜鱼幼鱼肝脏脂质合成增加、脂质分解降低,从而导致肝脏脂肪蓄积,最终诱导脂肪肝的形成,并引发氧化应激和炎症反应,加剧肝脏的损伤;此外,圆口铜鱼幼鱼脂肪肝的形成与转录因子AHR1和NR0B2存在正相关,与转录因子NR1D1、KLF9和KLF11存在负相关。
[1]
刘乐和, 吴国犀, 王志玲. 葛洲坝水利枢纽兴建后长江干流铜鱼和圆口铜鱼的繁殖生态[J]. 水生生物学报, 1990(3):205-215.

LIU L H, WU G X, WANG Z L. Reproduction ecology of Coreius heterodon (Bleeker) and Coreius guichenoti (Sauvage et Dabry) in the mainstream of the Changjiang river after the construction of Gezhouba dam[J]. Acta Hydrobiologica Sinica, 1990(3):205-215. (in Chinese)

[2]
GAO X, FUJIWARA M, ZHANG W W, et al. The impact of dams on the population viability of a migratory fish in the Yangtze river,China[J]. Aquatic Conservation Marine and Freshwater Ecosystems, 2022, 32(9):1509-1519.

DOI

[3]
杨志, 龚云, 朱迪, 等. 金沙江中下游圆口铜鱼的繁殖生物学[J]. 水生生物学报, 2018, 42(5):1010-1018.

YANG Z, GONG Y, ZHU D, et al. A preliminary study on the reproductive biology of Coreius guichenoti (Sauvage & Dabry de Thiersant,1874) in the middle and lower stream of Jinsha river,China[J]. Acta Hydrobiologica Sinica, 2018, 42(5):1010-1018. (in Chinese)

[4]
孙志禹, 朱挺兵, 杨德国, 等. 圆口铜鱼人工驯养繁育进展与展望[J]. 淡水渔业, 2020, 50(1):107-112.

SUN Z Y, ZHU T B, YANG D G, et al. Progress and prospect on the artificial domestication and reproduction of Coreius guichenoti[J]. Freshwater Fisheries, 2020, 50(1):107-112. (in Chinese)

[5]
刘飞, 但胜国, 王剑伟, 等. 长江上游圆口铜鱼的食性分析[J]. 水生生物学报, 2012, 36(6):1081-1086.

LIU F, DAN S G, WANG J W, et al. Feeding habits of Coreius guichenoti (Sauvage et Dabry) in the upper Yangtze river[J]. Acta Hydrobiologica Sinica, 2012, 36(6):1081-1086. (in Chinese)

DOI

[6]
熊美华, 邵科, 赵修江, 等. 长江中上游圆口铜鱼群体遗传结构研究[J]. 长江流域资源与环境, 2018, 27(7):1536-1543.

XIONG M H, SHAO K, ZHAO X J, et al. Population genetic structure of Coreius guichenoti in the upstream and middle reaches of the Yangtze river[J]. Resources and Environment in the Yangtze Basin, 2018, 27(7):1536-1543. (in Chinese)

[7]
周灿. 长江上游圆口铜鱼生长及种群特征[D].硕士学位论文. 济南: 山东大学, 2010.

ZHOU C. Growth and population characteristics of Coreius guichenoti (Sauvage et Dabry) in the upper reaches of Yangtze river[D].Master’s Thesis. Ji’nan: Shandong University, 2010. (in Chinese)

[8]
李茜. 急性操作胁迫对养殖圆口铜鱼头肾免疫功能的影响[D].硕士学位论文. 武汉: 华中农业大学, 2013.

LI Q. Effects of acute handing stress on head kidney immune function in farmed largemouth bronze gudgeon (Coreius guichenoti)[D].Master’s Thesis. Wuhan: Huazhong Agricultural University, 2013. (in Chinese)

[9]
李学梅, 吴兴兵, 龚进铃, 等. 圆口铜鱼亲本与子代肝脏转录组特征及对比分析[J]. 水生生物学报, 2020, 44(4):774-780.

LI X M, WU X B, GONG J L, et al. Comparative analysis of liver transcriptome of parent and offspring Coreius guichenoti[J]. Acta Hydrobiologica Sinica, 2020, 44(4):774-780. (in Chinese)

[10]
郑曙明. 铜鱼和圆口铜鱼肌肉氨基酸的初步研究[J]. 四川畜牧兽医学院学报, 1998(Z1):23-25.

ZHENG S M. Preliminary study on the muscular amino acids of Coreius heterodon and Coreius guichenoti[J]. Journal of Sichuan Institute of Animal Husbandry and Veterinary Medicine, 1998(Z1):23-25. (in Chinese)

[11]
葛清秀, 王志坚, 张昊星. 长江铜鱼和圆口铜鱼肝胰腺的比较研究[J]. 泉州师范学院学报, 2001, 19(6):69-74.

GE Q X, WANG Z J, ZHANG H X. Study on the hepatopancreases of Coreius heterodon (Bleeker) and Coreius guichenoti (Sauvage et Dabry) in Yangtze river[J]. Journal of Quanzhou Normal University, 2001, 19(6):69-74. (in Chinese)

[12]
吴斌, 罗毅平, 谢小军. 圆口铜鱼幼鱼鱼体的化学组成及能量密度[J]. 西南大学学报(自然科学版), 2008, 30(10):62-67.

WU B, LUO Y P, XIE X J. Chemical composition and energy density in juvenile Coreius guichenoti[J]. Journal of Southwest University(Natural Science), 2008, 30(10):62-67. (in Chinese)

[13]
董纯, 罗安红, 陈小娟, 等. 不同年龄和性腺发育阶段圆口铜鱼营养成分分析[J]. 水生态学杂志, 2022, 43(2):108-115.

DONG C, LUO A H, CHEN X J, et al. Nutrient composition analysis of Coreius guichenoti at different ages and gonad development stages[J]. Journal of Hydroecology, 2022, 43(2):108-115. (in Chinese)

[14]
CUI Y, HUNG S S O, ZHU X. Effect of ration and body size on the energy budget of juvenile white sturgeon[J]. Journal of Fish Biology, 1996, 49(5):863-876.

DOI

[15]
HOP H, TONN W M, WELCH H E. Bioenergetics of Arctic cod (Boreogadus saida) at low temperatures[J]. Canadian Journal of Fisheries and Aquatic Sciences, 1997, 54(8):1772-1784.

DOI

[16]
ADAMS C E, HUNTINGFORD F A. Growth,maturation and reproductive investment in Arctic charr[J]. Journal of Fish Biology, 1997, 51(4):750-759.

DOI

[17]
NGUYEN P, LERAY V, DIEZ M, et al. Liver lipid metabolism[J]. Journal of Animal Physiology and Animal Nutrition, 2008, 92(3):272-283.

DOI PMID

[18]
赵煜, 曲焕韬, 陈沛, 等. 投喂策略对圆口铜鱼幼鱼生长、消化酶及肝脏组织结构的影响[J/OL]. 渔业科学进展:1-11. https://doi.org/10.19663/j.issn2095-9869.20220716001.

ZHAO Y, QU H T, CHEN P, et al. Effects of feeding strategy on growth,digestive enzymes,and liver structure in juvenile Coreius guichienoti[J/OL]. Progress in Fishery Sciences:1-11. https://doi.org/10.19663/j.issn2095-9869.20220716001. (in Chinese)

[19]
WEI C C, WU K, GAO Y, et al. Magnesium reduces hepatic lipid accumulation in yellow catfish (Pelteobagrus fulvidraco) and modulates lipogenesis and lipolysis via PPARA,JAK-STAT,and AMPK pathways in hepatocytes[J]. Journal of Nutrition, 2017, 147(6):1070-1078.

DOI

[20]
艾庆辉, 严晶, 麦康森. 鱼类脂肪与脂肪酸的转运及调控研究进展[J]. 水生生物学报, 2016, 40(4):859-868.

AI Q H, YAN J, MAI K S. Research progresses of lipids and fatty acids transport in fish[J]. Acta Hydrobiologica Sinica, 2016, 40(4):859-868. (in Chinese)

[21]
程汉良, 夏德全, 吴婷婷. 鱼类脂类代谢调控与脂肪肝[J]. 动物营养学报, 2006, 18(4):294-298.

CHENG H L, XIA D Q, WU T T. Fatty liver and regulation of lipids metabolism in fish[J]. Chinese Journal of Animal Nutrition, 2006, 18(4):294-298. (in Chinese)

[22]
杜震宇. 养殖鱼类脂肪肝成因及相关思考[J]. 水产学报, 2014, 38(9):1628-1638.

DU Z Y. Causes of fatty liver in farmed fish:a review and new perspectives[J]. Journal of Fisheries of China, 2014, 38(9):1628-1638. (in Chinese)

[23]
DU Z Y, LIU Y J, TIAN L X, et al. The influence of feeding rate on growth,feed efficiency and body composition of juvenile grass carp (Ctenopharyngodon idella)[J]. Aquaculture International, 2006, 14(3):247-257.

DOI

[24]
ZHU J, DU R Y, LIU Q Q, et al. Transcriptome analysis provides insights into the molecular mechanism of hepatocyte apoptosis in response to feeding restriction in juvenile largemouth bass Micropterus salmoides[J]. Aquaculture, 2022, 548(Part 1):737550.

DOI

[25]
TAINAKA T, SHIMADA Y, KUROYANAGI J, et al. Transcriptome analysis of anti-fatty liver action by Campari tomato using a zebrafish diet-induced obesity model[J]. Nutrition&Metabolism, 2011, 8:88.

[26]
LIN D, MAO Y Q, CAI F S. Nutritional lipid liver disease of grass carp Ctenopharyngodon idullus (C.et V.)[J]. Chinese Journal of Oceanology and Limnology, 1990, 8(4):363-373.

DOI

[27]
王双双. 饲料脂肪水平对草金鱼和蛋白水平对泰狮生长、形态特征及健康的影响[D].硕士学位论文. 天津: 天津农学院, 2020.

WANG S S. Effects of dietary lipid levels on Carassius auratus red var and protein levels on Oranda (Carassius auratus) growth,morphology and health[D].Master’s Thesis. Tianjin: Tianjin Agricultural University, 2020. (in Chinese)

[28]
BU X Y, LIAN X Q, ZHANG Y, et al. Effects of feeding rates on growth,feed utilization,and body composition of juvenile Pseudobagrus ussuriensis[J]. Aquaculture International, 2017, 25(5):1821-1831.

DOI

[29]
DOS SANTOS J, BURKOW I C, JOBLING M. Patterns of growth and lipid deposition in cod (Gadus morhua L.) fed natural prey and fish-based feeds[J]. Aquaculture, 1993, 110(2):173-189.

DOI

[30]
NIEVES-CORDONES M, LÓPEZ-DELACALLE M, RÓDENAS R, et al. Critical responses to nutrient deprivation:a comprehensive review on the role of ROS and RNS[J]. Environmental and Experimental Botany, 2019, 161:74-85.

DOI

[31]
ZHANG M L, CHEKAN J R, DODD D, et al. Xylan utilization in human gut commensal bacteria is orchestrated by unique modular organization of polysaccharide-degrading enzymes[J]. Proceedings of the National Academy of Sciences of the United States of America, 2014, 111(35):E3708-E3717.

[32]
AWAD A S M, ABD AL HALEEM E N, EL-BAKLY W M, et al. Thymoquinone alleviates nonalcoholic fatty liver disease in rats via suppression of oxidative stress,inflammation,apoptosis[J]. Naunyn-Schmiedeberg’s Archives of Pharmacology, 2016, 389(4):381-391.

DOI

[33]
陈沛. FoxO1在大口黑鲈糖脂代谢中的机制研究[D].博士学位论文. 北京: 中国农业科学院, 2021.

CHEN P. Mechanism of FoxO1 on glucose and lipid metabolism in Micropterus salmoides[D].Ph.D.Thesis Beijing: Chinese Academy of Agricultural Sciences, 2021. (in Chinese)

[34]
URIBE C, FOLCH H, ENRÍQUEZ R, et al. Innate and adaptive immunity in teleost fish:a review[J]. Veterinarni Medicina, 2011, 56(10):486-503.

DOI

[35]
陈沛, 杨元金, 杜合军, 等. 开口饲料对中华鲟仔鱼生长性能、消化酶活性以及抗氧化和免疫功能的影响[J]. 动物营养学报, 2023, 35(2):1160-1168.

DOI

CHEN P, YANG Y J, DU H J, et al. Effects of initial feed on growth performance,digestive enzyme activities,antioxidant and immune function of larvae of Chinese sturgeon (Acipenser sinensis)[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1160-1168. (in Chinese)

DOI

[36]
JIA R, WANG L, HOU Y R, et al. Effects of stocking density on the growth performance,physiological parameters,redox status and lipid metabolism of Micropterus salmoides in integrated rice-fish farming systems[J]. Antioxidants, 2022, 11(7):1215.

DOI

[37]
胡晓冬, 李明, 王洁, 等. 基于RNA-seq技术分析酒精诱导斑马鱼肝损伤的机制[J]. 基因组学与应用生物学, 2022, 41(7):1391-1402.

HU X D, LI M, WANG J, et al. Analysis of the mechanism of ethanol on liver injury of Danio rerio based on RNA-seq technique[J]. Genomics and Applied Biology, 2022, 41(7):1391-1402. (in Chinese)

[38]
刘康, 何金钊, 冯鹏霏, 等. 投喂频率和水平对长吻鮠幼鱼消化酶和肝胰脏脂肪代谢酶活性的影响[J]. 云南农业大学学报(自然科学), 2019, 34(5):779-784.

LIU K, HE J Z, FENG P F, et al. Effects of feeding frequency and level on the digestive enzymes and fat metabolism enzyme in the hepatopancreas of juvenile Leiocassis longirostris[J]. Journal of Yunnan Agricultural University (Natural Science), 2019, 34(5):779-784. (in Chinese)

[39]
LAMBERT S A, JOLMA A, CAMPITELLI L F, et al. The human transcription factors[J]. Cell, 2018, 172(4):650-665.

DOI PMID

[40]
姚柳, 王春炅, 朱毅. 芳香烃受体在非酒精性脂肪性肝脏疾病中的作用[J]. 生理科学进展, 2019, 50(2):141-145.

YAO L, WANG C G, ZHU Y. The role of aryl hydrocarbon receptor in nonalcoholic fatty liver disease[J]. Progress in Physiological Sciences, 2019, 50(2):141-145. (in Chinese)

[41]
XIA H G, ZHU X Y, ZHANG X Y, et al. Alpha-naphthoflavone attenuates non-alcoholic fatty liver disease in oleic acid-treated HepG2 hepatocytes and in high fat diet-fed mice[J]. Biomedicine Pharmacotherapy, 2019, 118:109287.

DOI

[42]
YAO L, WANG C J, ZHANG X, et al. Hyperhomocysteinemia activates the aryl hydrocarbon receptor/CD36 pathway to promote hepatic steatosis in mice[J]. Hepatology, 2016, 64(1):92-105.

DOI PMID

[43]
NEUSCHÄFER-RUBE F, SCHRAPLAU A, SCHEWE B, et al. Arylhydrocarbon receptor-dependent mIndy (Slc13a5) induction as possible contributor to benzo[a]pyrene-induced lipid accumulation in hepatocytes[J]. Toxicology, 2015, 337:1-9.

DOI

[44]
AKINROTIMI O, RIESSEN R, VANDUYNE P, et al. Small heterodimer partner deletion prevents hepatic steatosis and when combined with farnesoid X receptor loss protects against type 2 diabetes in mice[J]. Hepatology, 2017, 66(6):1854-1865.

DOI PMID

[45]
吕秋月, 姜保平, 肖培根. 孤儿核受体小异二聚体伴侣在胆汁酸及糖脂代谢中的作用研究进展[J]. 生命科学研究, 2021, 25(3):209-216.

LV Q Y, JIANG B P, XIAO P G. Roles of orphan nuclear receptor small heterodimer partner in bile acid,glucose and lipid metabolism[J]. Life Science Research, 2021, 25(3):209-216. (in Chinese)

[46]
陈圆华, 李虹辉, 王利香, 等. GSK4112对尼罗罗非鱼肝脏Nr1d1和Ulk1b基因昼夜节律性表达的影响[J]. 基因组学与应用生物学, 2021, 40(2):584-590.

CHEN Y H, LI H H, WANG L X, et al. Effects of GSK4112 on circadian rhythmicity expression of Nr1d1 and Ulk1b in liver of Nile tilapia (Oreochromis niloticus)[J]. Genomics and Applied Biology, 2021, 40(2):584-590. (in Chinese)

[47]
BUGGE A, FENG D, EVERETT L J, et al. Rev-erbα and Rev-erbβ coordinately protect the circadian clock and normal metabolic function[J]. Genes & Development, 2012, 26(7):657-667.

DOI

[48]
DUEZ H, VAN DER VEEN J N, DUHEM C, et al. Regulation of bile acid synthesis by the nuclear receptor Rev-erbalpha[J]. Gastroenterology, 2008, 135(2):689-698.

DOI PMID

[49]
SOLT L A, WANG Y J, BANERJEE S, et al. Regulation of circadian behaviour and metabolism by synthetic REV-ERB agonists[J]. Nature, 2012, 485(7396):62-68.

DOI

[50]
BURRIS T P. Nuclear hormone receptors for heme:REV-ERBɑ and REV-ERBβ are ligand-regulated components of the mammalian clock[J]. Molecular Endocrinology, 2008, 22(7):1509-1520.

DOI

[51]
RAMAKRISHNAN S N, LAU P, BURKE L J, et al. Rev-erbβ regulates the expression of genes involved in lipid absorption in skeletal muscle cells:evidence for cross-talk between orphan nuclear receptors and myokines[J]. Journal of Biological Chemistry, 2005, 280(10):8651-8659.

DOI

[52]
MCCONNELL B B, YANG V W. Mammalian krüppel-like factors in health and diseases[J]. Physiological Reviews, 2010, 90(4):1337-1381.

DOI PMID

[53]
周施施, 张印良, 常永生. KLF9通过上调CD36调节肝脏脂代谢[J]. 生理学报, 2021, 73(5):772-780.

ZHOU S S, ZHANG Y L, CHANG Y S. KLF9 regulates hepatic lipid metabolism via inducing CD36 expression[J]. Acta Physiologica Sinica, 2021, 73(5):772-780. (in Chinese)

[54]
黄金灿, 张磊, 常永生. KLF9基因腺病毒载体的构建及其脂肪酸氢化功能[J]. 天津医科大学学报, 2020, 26(3):193-198.

HUANG J C, ZHANG L, CHANG Y S. KLF9 adenoviral vector construction and it’s function in fatty acid oxidation[J]. Journal of Tianjin Medical University, 2020, 26(3):193-198. (in Chinese)

[55]
陆俊宇, 孔凯文, 张海, 等. 转录因子KLF11生物学功能研究进展[J]. 生理科学进展, 2017, 48(2):94-99.

LU J Y, KONG K W, ZHANG H, et al. Research progress on biological function of transcription factor KLF11[J]. Progress in Physiological Sciences, 2017, 48(2):94-99. (in Chinese)

[56]
ZHANG H B, CHEN Q, YANG M, et al. Mouse KLF11 regulates hepatic lipid metabolism[J]. Journal of Hepatology, 2013, 58(4):763-770.

DOI PMID

文章导航

/