

虾青素(AST)作为一种天然的抗氧化剂,因其优质的生理功能在许多领域中得到应用[1]。AST作为饲料添加剂可以使动物获得足够且均衡的营养元素以提高动物的抗病力,还用作着色剂使皮肤和肌肉显现出健康且鲜艳的颜色[2]。肠道参与体内的营养摄取和免疫调节等生理过程,然而肠上皮的稳态和屏障功能很容易受到一些刺激而被破坏,从而影响生物体的健康状态[3]。研究显示,在鲈鱼基础饲料中添加不同水平(50、100和150 mg/kg)的AST提高了鲈鱼血清总抗氧化能力(T-AOC)、谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶(SOD)活性,降低了丙二醛(MDA)含量,从而改善鲈鱼的生长性能、抗氧化功能和免疫功能[4]。研究表明,饲料中添加AST可提高肉鸡的饲料转化率、总增重和最终体重,并且通过增加血清SOD活性和还原型谷胱甘肽(GSH)含量提高肉鸡的抗氧化水平,同时AST对禽肉和禽蛋品质的提升也有积极的影响[5]。此外,用含0、25、50和100 mg/kg AST的玉米-豆粕型基础饲粮饲喂老龄种公鸡,与对照组相比,AST组精液质量显著提高,且抗氧化能力随着AST添加量的增多而逐渐增强[6]。在用玻璃化冷冻方法保存未成熟的猪卵母细胞中添加AST,可以显著提高玻璃化卵母细胞的存活能力,增强线粒体功能,减轻氧化应激,改善玻璃化猪卵母细胞发育能力[7]。许建春等[8]的研究也得出了相似的结果,其研究显示在猪卵母细胞的体外成熟液中添加适量AST可促进第一极体的排出率,并且改善了卵裂率和囊胚发育率,提高了MⅡ期卵母细胞抗氧化能力,促进了卵母细胞的发育。但目前关于AST对猪肠道影响的研究较少,尚不明确AST对猪肠道是否具有保护作用。因此,本研究旨在探究AST对IPEC-J2细胞抗氧化、抗炎和抗凋亡能力的影响,为AST保护猪肠道健康和在生猪养殖中的应用提供科学依据。
1 材料与方法
1.1 试验材料
AST(HPLC≥98%)购买自上海源叶生物科技有限公司,SOD试剂盒由南京建成生物工程研究所提供,RNA提取试剂(TRIZOL)来源于天根公司,反转录和实时荧光定量PCR试剂盒购于ABM公司,Anti-Nrf2 antibody购于Abcam艾博抗(上海)贸易有限公司,Anti-HO-1 antibody、Anti-Bax antibody、Anti-Bcl-2 antibody和Anti-GAPDH antibody购于武汉三鹰生物技术有限公司。
1.2 细胞培养及处理
试验所使用的IPEC-J2细胞由吉林大学动物科学学院动物营养与饲料科学专业细胞实验室保存并进行培养。DMEM/F12培养基中添加10%胎牛血清(FBS),1%双抗溶液(100 IU/mL青霉素和100 μg/mL链霉素),配制成细胞完全生长培养液,将细胞放入完全培养液中,并置于37 ℃、二氧化碳(CO2)体积分数为5%的恒温培养箱内培养,待细胞生长至80%左右时,用胰酶消化传代。
基于本课题组前期研究得出的5、10、20、40、80和100 μmol/L AST对IPEC-J2细胞活力无显著影响[9],因此本试验沿用AST的上述浓度进行试验。将AST用二甲基亚砜(DMSO)充分溶解成浓度为100 mmol/L的AST母液进行储存。用DMEM/F12细胞完全生长培养液稀释AST母液,配制成浓度分别为5、10、20、40、80和100 μmol/L的AST工作液用于后续细胞处理,终溶液中DMSO的最终浓度不超过0.1%。
根据不同的试验目的,将细胞移入6孔细胞板中用不同浓度的AST工作液继续培养,试验分为7组,培养液中AST浓度分别为0(对照组,未添加AST)、5、10、20、40、80和100 μmol/L。
1.3 SOD活性检测
不同浓度的AST工作液处理细胞24 h后,收集上清到离心管中,3 500 r/min离心15 min,取上清,置冰上待测。450 nm处测定吸光度,计算细胞培养液中SOD活性。
1.4 实时荧光定量PCR检测抗氧化、炎症和凋亡相关基因以及核因子E2相关因子2(Nrf2)信号通路及其下游基因的表达
将细胞以2×10⁵个/mL接到6孔细胞板中,使用不同浓度的AST工作液处理细胞24 h后弃掉细胞培养液,预冷的磷酸盐缓冲液(PBS)轻柔冲洗2次,每孔加入1 mL TRIZOL裂解液,轻轻吹打,待孔内液体清澈不黏稠、孔底干净时,将液体移入1.5 mL离心管中,参照TRIZOL裂解液说明书提取细胞总RNA。使用微量分光光度计测定RNA质量和浓度,使用琼脂糖凝胶电泳检测RNA完整性后。根据cDNA说明书将1 μg RNA转录为cDNA,得到的cDNA采用20 μL的反应体系进行实时荧光定量PCR,引物序列见表1。准备八连管,依次加入10 μL SYBR Green、0.5 μL上游引物、0.5 μL下游引物、7 μL ddH2O、2 μL cDNA,轻微振荡混合均匀。反应条件设置成95 ℃预变性3 min,95 ℃退火15 s,60 ℃延伸1 min,循环数为40。设置甘油醛-3-磷酸脱氢酶(GADPH)基因作为内参基因,采用2-△△Ct法计算目的基因的mRNA相对表达量。
表1 引物序列Table 1 Primer sequences |
| 基因名称 Gene names | 引物序列 Primer sequences (5'—3') | 登录号 Accession No. | 产物大小 Product size/bp |
|---|---|---|---|
| 白细胞介素-1β IL-1β | F:CCACAAATCTCTAGTGCTGGC R:CAGGGTGGGCGTGTTATCT | NM_214055.1 | 199 |
| 髓样分化因子88 MyD88 | F:GTGCCGTCGGATGGTAGT R:CAGTGATGAACCGCAGGAT | NM_001099923.1 | 173 |
| 核转录因子-κB p65 NF-κB p65 | F:GGGGCGATGAGATCTTCCTG R:CACGTCGGCTTGTGAAAAGG | NM_001114281.1 | 110 |
| 核转录因子-κB p50 NF-κB p50 | F:CCGTGTCTGCTGCTGCTGATG R:ACGAGTCATCCAGGTCATACAGAGG | NM_001048232.1 | 286 |
| 半胱天冬蛋白酶-3 Caspase-3 | F:GGAATGGCATGTCGATCTGGT R:ACTGTCCGTCTCAATCCCAC | NM_214131.1 | 351 |
| 半胱天冬蛋白酶-9 Caspase-9 | F:TGGAACTCAAGCCAGAGGAG R:CTGCATTCAGGACGTAAGCC | XM_013998997.2 | 195 |
| 超氧化物歧化酶-2 SOD-2 | F:TGTATCCGTCGGCGTCCAAGG R:TCCTGGTTAGAACAAGCGGCAATC | NM_214127.2 | 93 |
| 肿瘤坏死因子-α TNF-α | F:TTATCGGCCCCCAGAAGGAA R:CGACGGGCTTATCTGAGGTT | NM_214022.1 | 102 |
| 甘油醛-3-磷酸脱氢酶 GAPDH | F:GAGTGAACGGATTTGGCCGC R:AAGGGGTCATTGATGGCGAC | NM_001206359.1 | 91 |
| 核因子E2相关因子2 Nrf2 | F:AGCACAACACATCCCGTCAGAAAC R:GAGCCTGGTTAGGAGCAATGAAGAC | XM_013984303.2 | 134 |
| 血红素加氧酶-1 HO-1 | F:CCAGGTCCTCAAGAAGATTGCTCAG R:GGGTCATCTCCAGAGTGTTCATTCG | NM_001004027.1 | 146 |
| NADPH:醌氧化还原酶1 NQO1 | F:GTGGAAGCCGCAGACCTTGTG R:CATGGCAGCGTATGTGTAAGCAAAC | NM_001159613.1 | 123 |
| 热应激蛋白70 HSP70 | F:CCTTACTTGGCTGGAGCACAACC R:CCTGGAGAAGATGGGACGACAAATC | NM_001123127.1 | 97 |
| Bcl-2相关X蛋白 Bax | F:GCCCTTTTGCTTCAGGGTTTC R:CAATGCGCTTGAGACACTCG | XM_003127290.5 | 130 |
| B淋巴细胞瘤-2 Bcl-2 | F:GGATAACGGAGGCTGGGATG R:TTATGGCCCAGATAGGCACC | XM_021099593.1 | 147 |
| 柯尔奇样ECH相关蛋白1 Keap1 | F:GGACAAACCGCCTCAACTCA R:TCCACGTTTCTGTCTCCACG | NM_001114671.1 | 195 |
| 过氧化氢酶 CAT | F:TTCTGGAGCCTACGTCCTGA R:ATGTGCCTGTGTCCATCTGG | NM_214301.2 | 83 |
| 总超氧化物歧化酶 T-SOD | F:GAGACCTGGGCAATGTGACT R:CCAAACGACTTCCAGCATTT | NM_001190422.1 | 189 |
1.5 蛋白质免疫印迹(Western Blot)检测凋亡相关蛋白B淋巴细胞瘤-2(Bcl-2)、Bcl-2相关X蛋白(Bax)和Nrf2信号通路标志性蛋白Nrf2、血红素加氧酶-1(HO-1)的表达
细胞经AST(80 μmol/L)培养24 h后,弃掉培养液,PBS冲洗2遍,向每孔加入RIPA蛋白裂解液200 μL(含有PMSF蛋白酶抑制剂),4 ℃静置15 min后,14 000×g离心15 min,吸取上清液到全新离心管中,并按照BCA法测定样品蛋白质浓度。蛋白质变性结束后,使用十二烷基硫酸钠-聚丙烯酰胺(SDS-PAGE)配制分离胶和浓缩胶。在每个上样孔中加入20 μg的总蛋白和5 μL的预染彩虹蛋白Marker,80 V下电泳约40 min,随后将电压调节至120 V,当溴酚蓝条带跑到凝胶底部时电泳结束。电泳后,取出预制胶,将转膜滤纸和聚偏二氟乙烯膜(PVDF膜)平铺在半干式转移电泳槽上,从下至上顺序依次是3张滤纸、PVDF膜、凝胶和3张滤纸,接通电源,200~300 mA恒流转膜24 min左右。转膜结束后,将PVDF膜放在用TBST制备的5%的脱脂奶粉溶液中,在摇床上室温封闭1 h。配制一抗工作液,裁剪PVDF膜上所需的目的蛋白Nrf2、HO-1、Bax、Bcl-2和内参蛋白GAPDH,4 ℃孵育过夜。弃去一抗工作液,用TBST洗涤。用5%的脱脂奶粉溶液和辣根过氧化物酶标记的山羊抗兔免疫球蛋白G(IgG)制备二抗工作液。在振荡器上室温孵育2 h。弃去二抗工作液,用TBST冲洗。配制ECL混合液,将PVDF膜置于化学发光成像分析仪中,滴加ECL混合液,曝光显影,保存曝光后的图片,并使用ImageJ v1.8软件进行蛋白质条带的灰度值分析,然后进行统计分析。
1.6 数据统计分析
使用ImageJ v1.8软件对荧光照片进行荧光强度分析,使用SPSS 23.0软件进行数据的统计分析,使用GraphPad Prism 8.0软件制图。所有试验至少重复3次。对试验数据进行单因素方差分析(one-way ANOVA),并采用LSD法进行多重比较,并表示为平均值±标准误。当P>0.05时,判定差异不显著;当P<0.05时,判定差异显著;当P<0.01时,判定差异极显著。
2 结果与分析
2.1 AST对IPEC-J2细胞抗氧化能力的影响
图1-A显示,与对照组相比,10~80 μmol/L的AST可以极显著提高细胞中SOD的活性(P<0.01),而5和100 μmol/L的AST对细胞中SOD活性无显著影响(P>0.05)。图1-B显示,与对照组相比,10~100 μmol/L AST可以显著或极显著提高细胞中总超氧化物歧化酶(T-SOD)的mRNA相对表达量(P<0.05或P<0.01)。图1-C显示,与对照组相比,40~100 μmol/L AST可以显著或极显著提高细胞中过氧化氢酶(CAT)的mRNA相对表达量(P<0.05或P<0.01)),并且在AST为40 μmol/L时提升效果最好。总体来说,IPEC-J2细胞的抗氧化能力随着AST浓度的增加先提升后有所降低。
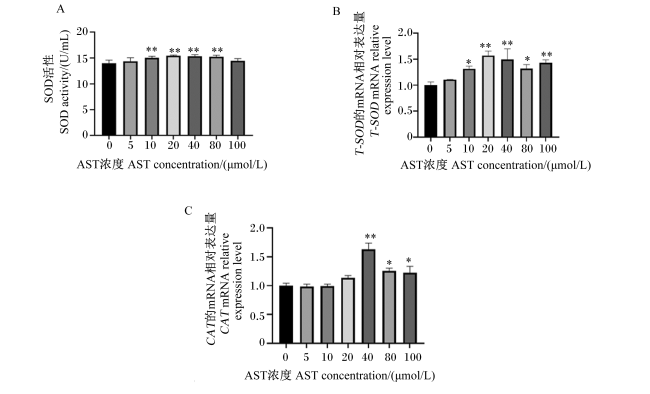
图1 AST对IPEC-J2细胞抗氧化能力的影响“*”表示与对照组相比差异显著(P<0.05),“**”表示与对照组相比差异极显著(P<0.01)。下图同。 Fig.1 Effects of AST on anti-oxidant ability of IPEC-J2 cells “*” indicated significant difference compared with the control group (P<0.05), and “**” indicated extremely significant difference compared with the control group (P<0.01). The same as below. |
2.2 AST对IPEC-J2细胞抗炎能力的影响
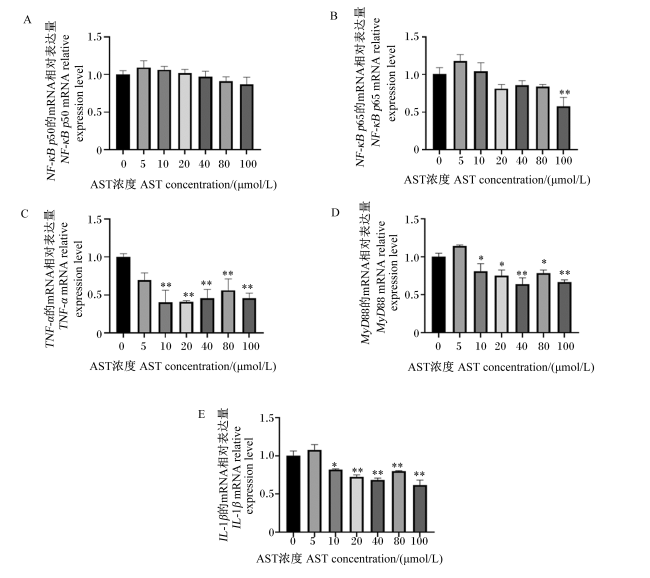
图2-A显示,与对照组相比,5~100 μmol/L的AST对细胞中核转录因子-κB p50(NF-κB p50)的mRNA相对表达量无显著影响(P>0.05),但随着AST浓度的增加而在整体上呈现降低趋势。图2-B显示,与对照组相比,5~80 μmol/L的AST对细胞中核转录因子-κB p65(NF-κB p65)的mRNA相对表达量无显著影响(P>0.05),但100 μmol/L的AST极显著降低细胞中NF-κB p65的mRNA相对表达量(P<0.01)。相较于对照组,细胞中其他炎症因子包括肿瘤坏死因子-α(TNF-α)、髓样分化因子88(MyD88)和白细胞介素-1β(IL-1β)的mRNA相对表达量在AST浓度达到10 μmol/L后即开始出现显著或极显著降低(P<0.05或P<0.01)(图2-C、图2-D、图2-E),说明一定浓度的AST可以提高IPEC-J2细胞的抗炎能力。
2.3 AST对IPEC-J2细胞抗凋亡能力的影响
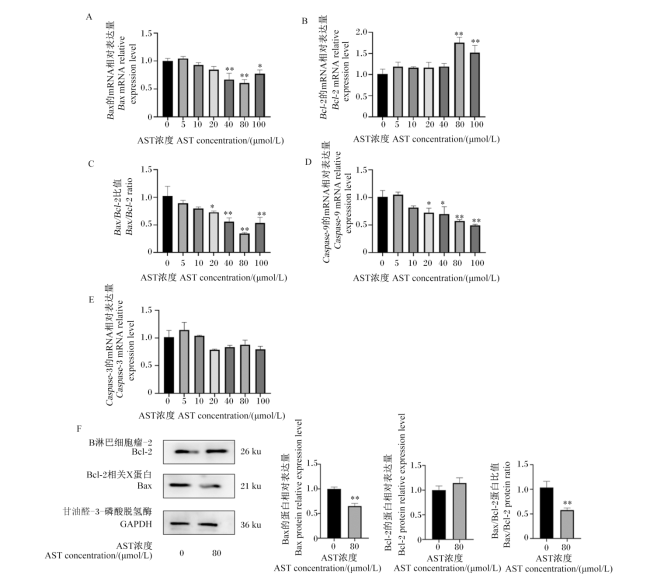
图3-A、图3-B、图3-C显示,与对照组相比,40~100 μmol/L的AST显著或极显著降低了细胞中促凋亡基因Bax的mRNA相对表达量(P<0.05或P<0.01),80~100 μmol/L的AST极显著增加了细胞中抗凋亡基因Bcl-2的mRNA相对表达量(P<0.01),并且20~100 μmol/L的AST促使Bax/Bcl-2基因比值显著或极显著下降(P<0.05或P<0.01),且在AST浓度为80 μmol/L时Bax/Bcl-2基因比值最低。图3-D、图3-E显示,与对照组相比,细胞中半胱天冬蛋白酶-9(Caspase-9)的mRNA相对表达量随着AST浓度的增加而下降,并且在AST浓度达到20 μmol/L后即开始显著或极显著下降(P<0.05或P<0.01);半胱天冬蛋白酶-3(Caspase-3)的mRNA相对表达量随着AST浓度的增加虽然没有显著差异(P>0.05),但也表现出了一定的下降趋势。综合来看,80 μmol/L的AST对IPEC-J2细胞的抗凋亡效果提升较好,且作用比较稳定。通过Western Blot验证了AST(80μmol/L)对抗凋亡蛋白Bcl-2和促凋亡蛋白Bax的蛋白相对表达量的影响,结果(图3-F)显示,80 μmol/L的AST极显著降低了细胞中Bax的蛋白相对表达量和Bax/Bcl-2蛋白比值(P<0.01)。上述结果说明AST有助于IPEC-J2细胞抗凋亡能力的提升。
2.4 AST对IPEC-J2细胞Nrf2信号通路的影响
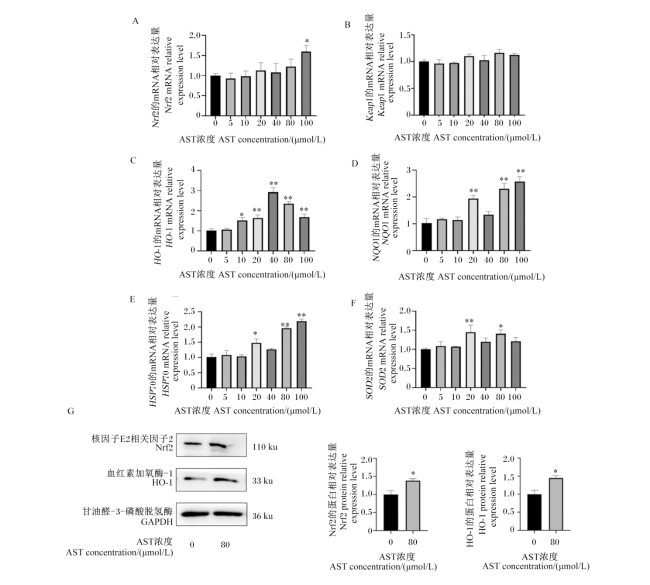
图4-A显示,随着AST浓度的增加,细胞中Nrf2的mRNA相对表达量逐渐升高,在AST浓度为100 μmol/L时与对照组相比表现出显著差异(P<0.05)。图4-B显示,与对照组相比,5~80 μmol/L的AST对细胞中柯尔奇样ECH相关蛋白1(Keap1)的mRNA相对表达量无显著影响(P>0.05)。在经不同浓度AST处理后,细胞中Nrf2信号通路下游基因HO-1、NADPH:醌氧化还原酶1(NQO1)、热应激蛋白70(HSP70)和超氧化物歧化酶2(SOD2)的mRNA相对表达量表现出一致的上升趋势。与对照组相比,10~100 μmol/L的AST显著或极显著升高细胞中HO-1的mRNA相对表达量(P<0.05或P<0.01,图4-C);20、80和100 μmol/L的AST显著或极显著提升细胞中NQO1和HSP70的mRNA相对表达量(P<0.05或P<0.01,图4-D和图4-E);20和80 μmol/L的AST显著或极显著提升细胞中SOD2的mRNA相对表达量(P<0.05或P<0.01,图4-F)。通过Western Blot验证了AST(80 μmol/L)对Nrf2信号通路上的标志性蛋白Nrf2和HO-1的蛋白相对表达量的影响,结果(图4-G)显示,80 μmol/L的AST显著提升了细胞中Nrf2和HO-1的蛋白相对表达量(P<0.05),这表明AST成功激活了IPEC-J2细胞内的Nrf2信号通路。
3 讨论
长期过度氧化应激是引发胃肠道疾病的主要危险因素,AST通过多种机制表现出对胃肠道疾病的保护作用。AST具有强效抗氧化和抗炎活性,其位于细胞膜的内部和表面,能够直接中和活性氧(ROS)和脂质过氧化物,增强抗氧化酶的活性,并抑制促炎转录因子和细胞因子的产生[10]。基于AST的多种优质生理功能,目前已经作为饲料添加剂被广泛应用。据报道,AST能够改善虹鳟鱼肠道健康,增加肠道绒毛长度,有助于提高虹鳟鱼对营养物质的吸收和利用,从而促进虹鳟鱼更好的生长[11]。红法夫酵母富含AST,是天然AST的主要来源之一,将不同水平的红发夫酵母(0、0.1%和0.2%)添加到以玉米、豆粕作为基础的育肥猪饲粮中,结果发现红发夫酵母提高了育肥猪的干物质消化率、白细胞数,并使肉质得到改善[12]。Karimian等[13]用AST(1~100 μmol/L)处理非肿瘤性乳腺细胞系MCF 10A后,对细胞活力的影响很小。此外,朱凌羽等[14]采用MTT法测定了不同浓度AST(10~200 μmol/L)处理IPEC-J2细胞1、3和6 h后的细胞活力,结果显示,随着AST浓度的增加,细胞活力呈现出先升高后降低的趋势,相同浓度下按处理时间比较细胞活力的顺序是3 h>6 h>1 h,但与对照组相比,AST对细胞活力的影响无消极作用。SOD和CAT是内源性酶抗氧化剂,可以抵抗氧化应激的过度产生,起到保护细胞的作用。研究显示,给小鼠补充SOD可以减少脂质过氧化,防止氧化应激诱导的神经细胞认知能力下降[15]。本试验结果显示,AST可以在一定程度上提高IPEC-J2细胞的抗氧化能力,在浓度达到10 μmol/L后即可显著提高细胞中SOD活性并提高T-SOD的mRNA相对表达量;与对照组相比,细胞中CAT的mRNA相对表达量在AST浓度达到40 μmol/L后得到显著改善。与本研究结果相似,Yin等[16]的研究结果显示,AST能够抑制脂多糖(LPS)诱导的树突状细胞(DC)抗氧化能力下降,减少一氧化氮(NO)和ROS的产生;此外,GSH-Px、SOD和CAT等抗氧化酶的活性被AST显著上调。冷冻保存的胚胎容易受到氧化应激的影响,从而降低胚胎发育。有研究表明,玻璃化猪卵母细胞体外培养时,补充AST可以降低ROS积累量,改善GSH含量,减轻氧化应激对胚胎发育的影响[17]。
细胞因子分为促炎细胞因子和抗炎细胞因子,促炎细胞因子[IL-1β、白细胞介素-6(IL-6)和TNF-α)]和抗炎细胞因子[白细胞介素-10(IL-10)、白细胞介素-4(IL-4)和转化生长因子-β(TGF-β)]之间的不平衡是许多疾病发生的基础[18]。AST的抗炎、抗凋亡作用也在大量研究中得到证实,阻断核转录因子-κB(NF-κB)信号通路是AST发挥其抗炎作用的机制之一,AST通过抑制NF-κB信号通路而阻碍下游炎症基因(IL-1β和TNF-α等)的表达[19]。AST可以有效缓解脂肪移植所面临的压力,脂肪移植物在受体中能否存活取决于脂肪来源的干细胞,而干细胞很容易受到氧化应激的影响而降低细胞周期蛋白和胶原蛋白的表达水平,此外,还会增加了Caspase-3、IL-6和TNF-α的表达,导致移植失败;AST预处理则通过Nrf2途径显著缓解氧化应激和炎症,促进脂肪细胞外基质的合成[20]。在本研究中,AST降低了IPEC-J2细胞炎症因子的基因表达。与对照组相比,AST浓度达到10 μmol/L后即可显著降低细胞中IL-1β、TNF-α和MyD88的表达; 5~100 μmol/L的AST对细胞中NF-κB p50的mRNA相对表达量无显著影响;随着AST浓度的增加,NF-κB p65的表达逐渐降低,100 μmol/L的AST能显著降低NF-κB p65的mRNA相对表达量。猪近端肾小管上皮细胞暴露于高葡萄糖会导致NF-κB核异位、炎症蛋白表达量和Bax/Bcl-2蛋白比值增加,诱导细胞炎症和凋亡的发生,而AST的添加则改变了这种趋势,减轻了细胞损伤[21]。
当细胞受到内部或外部信号刺激时,Bcl-2家族成员Bax和Bak在线粒体外膜上寡聚,导致线粒体膜通透性增加,细胞色素C(Cyt-C)释放到细胞质中,进而导致Capase-9和Capase-3的激活,触发细胞凋亡[9]。生姜提取物能够降低人胶质母细胞瘤细胞(U251)的活力,诱导Cyt-C从线粒体释放介导的细胞凋亡,增加Bax/Bcl-2蛋白比值和Capase-3活性[22]。在本研究中,与对照组相比,AST(20~100 μmol/L)显著降低IPEC-J2细胞中Bax/Bcl-2基因比值,并在AST浓度达到20 μmol/L后开始显著降低Capase-9的mRNA相对表达量,80 μmol/L的AST显著降低细胞中Bax的蛋白相对表达量和Bax/Bcl-2蛋白比值,表明AST可以增强IPEC-J2细胞的抗凋亡能力。AST的抗凋亡作用在视网膜神经节细胞中也有着相似的发现,视网膜具有高含量的多不饱和脂肪酸,这使视网膜更容易受到氧化应激的影响。氧化应激在糖尿病并发症中起重要作用,过度的氧化应激则会诱导视网膜神经节细胞凋亡,进而导致糖尿病视网膜病变的发生。用过氧化氢(H2O2)诱导大鼠视网膜神经节细胞系RGC-5,结果显示Bcl-2的蛋白表达量显著降低,Bcl-2家族成员促凋亡蛋白Bad和Caspase-3的蛋白表达量显著增加,而AST的补充逆转了上述蛋白的表达情况,这表明AST能够保护视网膜细胞免受氧化应激,从而抑制细胞凋亡[23]。
据报道,Nrf2是AST发挥其抗氧化、抗炎、抗凋亡等特性的分子靶点[24]。Nrf2在维持机体氧化还原平衡方面起着至关重要的作用,一般来说,Nrf2和Keap-1是在细胞质中结合的,一旦Keap-1被亲电试剂和氧化剂(如ROS)修饰后,Keap-1就会与Nrf2解离,Nrf2转移到核内,与抗氧化响应元件(ARE)结合,并激活下游抗氧化因子(HO-1、NQO1和SOD等)以消除ROS等[25]。AST通过Nrf2/HO-1信号通路保护LPS诱导的树突状细胞和小鼠的损伤,减少NO和ROS的产生,增加抗氧化酶GSH-Px和SOD的活性,在抑制氧化应激中起重要作用[15]。AST通过Nrf2信号通路调节炎症的发生,用阿霉素诱导小鼠局灶性节段性肾小球硬化症(FSGS)模型,FSGS模型属于慢性肾损伤的一种类型,与FSGS模型小鼠接受盐水治疗组相比,暴露于AST的FSGS模型小鼠在肾功能参数以及肾小球和间质纤维化方面表现出显著改善,AST通过抑制NOD样受体热蛋白结构域相关蛋白3(NLRP3)炎症小体活化,减少IL-1β分泌以及上调Nrf2表达来预防阿霉素诱导的慢性肾损伤,这表明AST通过活化Nrf2保护肾脏免受炎症损伤[26]。研究证实,AST能够通过Nrf2信号通路发挥抗凋亡作用,赭曲霉毒素A(OTA)诱导小鼠心率降低,降低组织中SOD、CAT活性和GSH含量,同时增加乳酸脱氢酶(LDH)活性和MDA含量,且AST改善了小鼠的心率和抗氧化水平;此外,OTA上调Keap1、Bax、Caspase-3和Caspase-9蛋白表达,同时下调Nrf2、HO-1和Bcl-2蛋白表达,表明OTA可诱导心肌细胞线粒体凋亡,抑制Nrf2信号通路,而AST改变上述蛋白的表达情况,激活Nrf2信号通路,增强心肌抗凋亡能力,从而发挥对心肌的保护作用[27]。在本研究中,IPEC-J2细胞中Nrf2的mRNA相对表达量随AST浓度的增加而升高,并且100 μmol/L的AST能够显著提升细胞中Nrf2的mRNA相对表达量;IPEC-J2细胞中Keap1的mRNA相对表达量与Nrf2趋势一致,但5~100 μmol/L的AST与对照组相比均未达到统计学差异。Nrf2信号通路的下游基因HO-1、NQO1、HSP70和SOD2都是与抗氧化相关的,AST处理IPEC-J2细胞后,成功激活了Nrf2信号通路,显著增加上述基因的表达,并且AST(80 μmol/L)能够显著提升Nrf2信号通路上的关键蛋白Nrf2和HO-1的表达,从而提高细胞的抗氧化能力。
4 结论
AST能够激活IPEC-J2细胞内Nrf2信号通路,促进其下游基因HO-1、NQO1、HSP70和SOD2表达,增强IPEC-J2细胞抗氧化酶活性以及抗氧化相关基因的表达,降低炎症和凋亡相关基因的表达,AST还能够降低IPEC-J2细胞中Bax的蛋白相对表达量和Bax/Bcl-2蛋白比值,提高细胞抗凋亡能力,并且上调Nrf2信号通路上的关键蛋白Nrf2和HO-1的表达。综合来看,80 μmol/L的AST更能够发挥其生理功能,增强IPEC-J2细胞的抗氧化、抗炎和抗凋亡能力。
 京公网安备 11010802041926号


