研究论文

β-谷甾醇对脂多糖诱导的小鼠乳腺上皮细胞炎症反应及乳蛋白合成的影响

  • 刘莉莉 ,
  • 陈敏
展开
  • 黑龙江中医药大学药学院,哈尔滨 150040

刘莉莉(1980—),女,黑龙江哈尔滨人,教授,博士,研究方向为中药对泌乳的调控。E-mail:

Copy editor: 武海龙

收稿日期: 2023-04-13

  网络出版日期: 2023-09-13

基金资助

国家自然科学基金项目(82003930)

Effects of β-Sitosterol on Lipopolysaccharide-Induced Inflammatory Response and Milk Protein Synthesis in Mouse Mammary Epithelial Cells

  • LIU Lili ,
  • CHEN Min
Expand
  • College of Pharmacy, Heilongjiang University of Chinese Medicine, Harbin 150040, China

LIU Lili, professor, E-mail:

Received date: 2023-04-13

  Online published: 2023-09-13

摘要

本试验旨在探讨β-谷甾醇(BSS)对脂多糖(LPS)诱导的小鼠乳腺上皮细胞(HC11细胞)炎症反应及乳蛋白合成的影响。以体外培养的HC11细胞为模型,分为5组,对照组(生长培养基处理)、乳腺炎症模型组(LPS组,1 μg/mL LPS处理)以及炎症模型药物组(BSS+LPS组,分别用5、10、20 μmol/L的β-谷甾醇预处理1 h后加入1 μg/mL LPS),每组设置5个重复。检测炎性细胞因子和乳蛋白mRNA表达以及乳蛋白合成信号通路相关基因mRNA和蛋白表达。结果表明:1)与对照组相比,LPS组的HC11细胞肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)、白细胞介素-1β(IL-1β)、环氧合酶-2(COX-2)和诱导型一氧化氮合酶(iNOS)的mRNA相对表达量显著升高(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞TNF-αIL-6、IL-1βCOX-2和iNOS的mRNA相对表达量显著降低(P<0.05)。2)与对照组相比,LPS组的HC11细胞β酪蛋白(CSN2)、κ酪蛋白(CSN3)和乳清蛋白(LALBA)的mRNA相对表达量显著降低(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞CSN2、CSN3和LALBA的mRNA相对表达量显著升高(P<0.05)。3)与对照组相比,LPS组的HC11细胞信号转导和转录激活因子5(STAT5)、酪氨酸激酶2(JAK2)、哺乳动物雷帕霉素靶蛋白(mTOR)、真核细胞翻译启动因子4E结合蛋白1(4EBP1)和核糖体S6蛋白激酶1(S6K1)的mRNA相对表达量显著降低(P<0.05),同时磷酸化信号转导和转录激活因子5(p-STAT5)、磷酸化酪氨酸激酶2(p-JAK2)和磷酸化哺乳动物雷帕霉素靶蛋白(p-mTOR)的蛋白相对表达量显著降低(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞STAT5、JAK2、mTOR、4EBP1和S6K1的mRNA相对表达量显著升高(P<0.05),同时p-STAT5、p-JAK2和p-mTOR的蛋白相对表达量显著升高(P<0.05)。由此可见,β-谷甾醇能够抑制LPS诱导的HC11细胞炎症反应和促进乳蛋白的合成。

本文引用格式

刘莉莉 , 陈敏 . β-谷甾醇对脂多糖诱导的小鼠乳腺上皮细胞炎症反应及乳蛋白合成的影响[J]. 动物营养学报, 2023 , 35(9) : 5994 -6003 . DOI: 10.12418/CJAN2023.550

Abstract

The purpose of this experiment was to explore the effect of β-sitosterol (BSS) on lipopolysaccharide (LPS)-induced inflammatory response and milk protein synthesis in mouse mammary epithelial cells (HC11 cells). The experiment used HC11 cells cultured in vitro as the model, and divided into 5 groups: control group (growth medium treated), mammary inflammatory model group (LPS group, 1 μg/mL LPS treated) and inflammatory model medicine groups (BSS+LPS groups, after 5, 10 and 20 μmol/L β-sitosterol treated 1 h, respectively, added 1 μg/mL LPS), and set 5 replicates per group. The mRNA expression of inflammatory cytokines and milk protein, as well as the mRNA and protein expression of genes related to milk protein synthesis signaling pathway were detected. The results showed as follows: 1) compared with the control group, the mRNA relative expression levels of tumor necrosis factor-α (TNF-α), interleukin-6 (IL-6), interleukin-1β (IL-1β), cyclooxygenase-2 (COX-2) and inducible nitric oxide synthase (iNOS) in HC11 cells of LPS group were significantly increased (P<0.05). Compared with the LPS group, the mRNA relative expression levels of TNF-α, IL-6, IL-1β, COX-2 and iNOS in HC11 cells of 5, 10 and 20 μmol/L BSS+LPS groups were significantly decreased (P<0.05). 2) Compared with the control group, the mRNA relative expression levels of β casein (CSN2), κ casein (CSN3) and whey protein (LALBA) in HC11 cells of LPS group were significantly decreased (P<0.05). Compared with the LPS group, the mRNA relative expression levels of CSN2, CSN3 and LALBA in HC11 cells of 5, 10 and 20 μmol/L BSS+LPS groups were significantly increased (P<0.05). 3) Compared with the control group, the mRNA relative expression levels of signal transducer and activator of transcription 5 (STAT5), Janus kinase 2 (JAK2), mammalian target of rapamycin (mTOR), eukaryotic translation initiation factor 4E binding protein 1 (4EBP1) and ribosomaiprotein S6 kinase 1 (S6K1) in HC11 cells of LPS group were significantly decreased (P<0.05), meanwhile, the protein relative expression levels of phosphorylation signal transducer and activator of transcription 5 (p-STAT5), phosphorylation Janus kinase 2 (p-JAK2) and phosphorylation mammalian target of rapamycin (p-mTOR) were significantly decreased (P<0.05). Compared with the LPS group, the mRNA relative expression levels of STAT5, JAK2, mTOR, 4EBP1 and S6K1 in HC11 cells of 5, 10 and 20 μmol/L BSS+LPS groups were significantly increased (P<0.05), meanwhile, the protein relative expression levels of p-STAT5, p-JAK2 and p-mTOR were significantly increased (P<0.05). In conclusion, β-sitosterol can inhibit LPS-induced inflammatory response in HC11 cells and promote milk protein synthesis.

在乳业中,奶牛乳腺炎是一种病因复杂且高发的疾病,如果治疗不及时或不彻底,则很难恢复,并有复发和乳房脓肿的风险。乳腺炎发生后,乳汁的乳脂率和乳蛋白率等显著降低,降低了乳汁的产量和品质,造成的经济损失在奶牛的各种疾病中居于首位。乳腺炎主要由病原微生物引起,尤其是革兰氏阴性菌[1-2]。细菌感染后,乳腺内会产生大量的内毒素。内毒素的主要成分是脂多糖(LPS),它能使机体产生强烈的免疫原性反应。LPS可诱导乳腺上皮细胞或巨噬细胞的免疫应答,分泌大量炎症因子,因此LPS常被作为建立炎症动物模型的重要诱导物[3-4]。研究表明,LPS可与Toll样受体4(TLR4)结合,激活乳腺上皮细胞中的核因子-κB(NF-κB)等多种信号通路,进而促进细胞中白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)等促炎细胞因子的释放以及环氧合酶-2(COX-2)和诱导型一氧化氮合酶(iNOS)的产生,明显扩大炎症反应,促进炎症加重[5]。奶牛乳腺炎发生时,乳腺组织的损伤会导致乳汁中乳蛋白等营养成分含量的降低,同样,奶牛乳腺上皮细胞炎症模型中乳蛋白相关因子的表达量也会显著下调[6]。哺乳动物雷帕霉素靶蛋白(mTOR)信号途径以及酪氨酸激酶2(JAK2)/细胞信号转导和转录激活因子5(STAT5)信号途径主要调控乳腺上皮细胞中乳蛋白的合成,而且2条信号途径之间可相互影响,共同调控泌乳相关因子等合成乳蛋白[7]。研究发现,LPS可能通过抑制乳蛋白合成通路mTOR和STAT5及其下游相关基因的表达,从而降低奶牛乳腺上皮细胞乳蛋白合成分泌功能[8]
在临床应用中,乳腺炎的主要治疗方法是使用抗生素,但其不能有效控制炎症过程[9]。近期研究表明,联合使用抗生素和天然抗炎药物可有效缓解乳腺炎的进一步发展[10-11]。与抗生素相比,天然产物往往具有较强的抗炎作用,而且具有低毒、无残留、不易产生耐药性等优点,牛奶中也不会发生抗生素和耐药菌残留进入食物链而影响人体健康。因此,天然产物在乳腺炎治疗中的应用日益广泛,寻找新的有效的天然抗炎药物是目前奶牛乳腺炎治疗的热点。β-谷甾醇(BSS)是植物甾醇的一种,是很多药用植物的重要活性成分。临床试验证实β-谷甾醇具有降胆固醇、降血糖、抗氧化、抑菌和抗癌等多种生物活性。β-谷甾醇在小鼠胃组织炎症[12]、葡聚糖酸钠诱导的小鼠急性结肠炎[13]、慢性肥胖相关炎症[14]等炎症模型中发挥一定的抗炎作用。然而,β-谷甾醇对乳腺炎动物重要营养成分乳蛋白合成的影响尚未见报道。因此,本研究利用LPS构建了小鼠乳腺炎的体外模型,旨在探讨β-谷甾醇对LPS诱导的小鼠乳腺上皮细胞炎症反应及乳蛋白合成的影响,为β-谷甾醇在缓解乳腺炎的进一步应用提供理论依据。

1 材料与方法

1.1 试验材料

小鼠乳腺上皮细胞(HC11细胞)购自北京北纳创联生物技术研究院。

1.2 主要试剂

β-谷甾醇(纯度>98%)购自成都某生物科技有限公司。噻唑兰(MTT)法细胞活力检测试剂盒购自上海碧云天生物技术有限公司;RPMI-1640干粉、胎牛血清(FBS)购自美国Gibco公司;Trizol购自美国Invitrogen公司;Prime ScriptTM RT reagent Kit试剂盒、SYBR Premix Ex TaqTM试剂盒购自日本TaKaRa公司。STAT5、磷酸化信号转导和转录激活因子5(p-STAT5)、JAK2、磷酸化酪氨酸激酶2(p-JAK2)、mTOR、磷酸化哺乳动物雷帕霉素靶蛋白(p-mTOR)和β-肌动蛋白(β-actin)一抗购自美国Cell Signaling Technology公司。

1.3 试验设计和方法

1.3.1 HC11细胞的培养

采用生长培养基于37 ℃、5% CO2条件下培养HC11细胞,每隔24 h更换新鲜培养基。

1.3.2 β-谷甾醇及LPS对HC11细胞活力影响的检测

试验分为对照组(CON组,生长培养基处理)、乳腺炎症模型组(LPS组,1 μg/mL LPS处理)以及炎症模型药物组(BSS+LPS组,分别用5、10、20 μmol/L的β-谷甾醇预处理1 h后加入1 μg/mL LPS),每组设置5个重复。将处于对数生长期的HC11细胞接种于96孔板(1×10⁴个/孔)中培养过夜,更换新鲜培养基并添加药物处理24 h后,各孔加入10 μL MTT(5 mg/mL),继续培养4 h后吸出培养液,各孔加入100 μL二甲基亚砜(DMSO)以溶解细胞中的甲瓒结晶,振荡10 min后用酶标仪检测各孔在490 nm的吸光度(OD)值并进行计算,试验重复3次。

1.3.3 β-谷甾醇对LPS诱导的HC11细胞炎性细胞因子、乳蛋白及乳蛋白合成信号通路相关基因mRNA表达的检测

试验分组及药物处理方法同1.3.2。将处于对数生长期的HC11细胞接种于6孔板中,待细胞融合度达到70%~80%时,添加药物作用细胞24 h后收集细胞,Trizol法提取RNA,根据Prime ScriptTM RT reagent Kit试剂盒说明书进行反转录,利用实时荧光定量PCR(qRT-PCR)试剂盒(SYBR Premix Ex TaqTM)检测HC11细胞TNF-αCOX-2、白细胞介素-6(IL-6)、IL-1βiNOS、β酪蛋白(CSN2)、κ酪蛋白(CSN3)、乳清蛋白(LALBA)、STAT5、JAK2、mTOR、真核细胞翻译启动因子4E结合蛋白1(4EBP1)、核糖体蛋白S6激酶1(S6K1)的mRNA表达水平。试验所用基因的引物序列见表1,选用β-actin作为内参基因。qRT-PCR结果采用2-ΔΔCt相对定量的方法计算各目的基因的mRNA相对表达量。
表1 引物序列

Table 1 Primer sequences

基因 Genes 引物序列 Primer sequences (5'—3')
β酪蛋白
CSN2
F:TCACTCCAGCATCCAGTCACA
R:GGCCCAAGAGATGGCACCA
κ酪蛋白
CSN3
F:TTCAAACTGCCGTGGTGAGA
R:GGCTAGCAGTAGCAGGCAAA
乳清蛋白
LALBA
F:ACCAGTGGCTACGACACAC
R:CGGGGAACTCACTACTTTTACAC
细胞信号转导和转录激活因子5
STAT5
F:TTTGTGATTGCTCGGTGTG
R:AAGGGATGGTGGGAACG
酪氨酸激酶2
JAK2
F:CGAGCGAAGATCCAAGAC
R:GCAGGGTTTCCAGGTTTAT
哺乳动物雷帕霉素靶蛋白
mTOR
F:TCATCGAGGTGGATGACGAG
R:CGCTGATCCGGACCACATA
真核细胞翻译启动因子4E结合蛋白1
4EBP1
F:AAGCAGGAGAAGCCAAAG
R:GAAGAACCACAGAACCCAC
核糖体蛋白S6激酶1
S6K1
F:CATGGCAGGAGTGTTTGA
R:TCATATGGTCCAACTCCC
肿瘤坏死因子-α
TNF-α
F:ACGGCATGGATCTCAAAGAC
R:GTGGGTGAGGAGCACGTAGT
环氧合酶-2
COX-2
F:AGAGTCAGTTAGTGGGTAGT
R:CTTGTAGTAGGCTTAAACATAG
白细胞介素-6
IL-6
F:CCGGAGAGGAGACTTCACAG
R:CAGAATTGCCATTGCACAAC
白细胞介素-1β
IL-1β
F:GCTGCTTCCAAACCTTTGAC
R:AGCTTCTCCACAGCCACAAT
诱导型一氧化氮合酶
iNOS
F:TGACGCTCGGA ACTGTAGCA
R:CAGTGATG GCCGACCTGAT
β-肌动蛋白
β-actin
F:ACCGTGAAAAGATGACCCAG
R:AGCCTGGATGGCTACGTACA

1.3.4 β-谷甾醇对LPS诱导的HC11细胞乳蛋白合成信号通路相关蛋白表达的检测

试验分组及药物处理方法同1.3.2。将处于对数生长期的HC11细胞接种于6孔板中,待细胞融合度达到70%~80%时,添加药物作用细胞24 h后收集细胞提蛋白,Western blotting方法检测STAT5、p-STAT5、JAK2、p-JAK2、mTOR和p-mTOR的蛋白相对表达量。

1.4 数据处理

采用SPSS 22.0软件对试验数据进行单因素方差分析和Duncan氏法多重比较。试验数据均以平均值±标准差表示,P<0.05表示差异显著。

2 结果与分析

2.1 β-谷甾醇对LPS诱导的HC11细胞活力的影响

利用MTT法检测LPS单独处理以及5、10、20 μmol/L BSS+LPS共处理对HC11细胞活力的影响,结果如图1所示。与CON组相比,LPS组和5、10、20 μmol/L BSS+LPS组HC11细胞相对增殖率均无显著差异(P>0.05)。这说明LPS和β-谷甾醇对HC11细胞活力无影响,后续试验结果不受HC11细胞活力变化的影响。
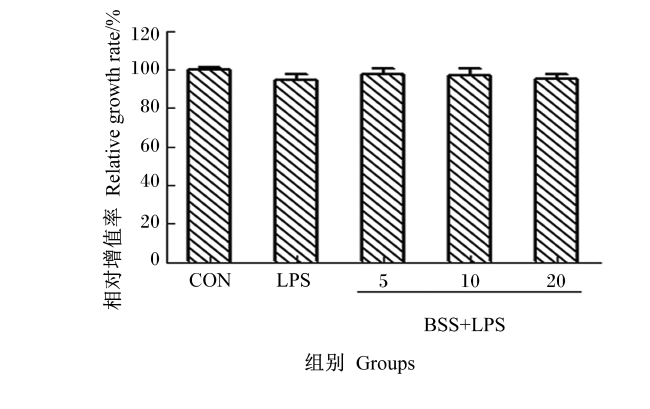
图1 β-谷甾醇对LPS诱导的HC11细胞活力的影响

数据柱标相同或无小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of BSS on viability of LPS-induced HC11 cells

Value columns with the same small or no letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.2 β-谷甾醇对LPS诱导的HC11细胞炎性细胞因子mRNA表达的影响

图2所示,与CON组相比,LPS组的HC11细胞TNF-αIL-6、IL-1βCOX-2和iNOS的mRNA相对表达量均显著升高(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞TNF-αIL-6、IL-1βCOX-2和iNOS的mRNA相对表达量均显著下降(P<0.05);其中,5 μmol/L BSS+LPS组和10 μmol/L BSS+LPS组的HC11细胞炎性细胞因子的mRNA相对表达量较低。
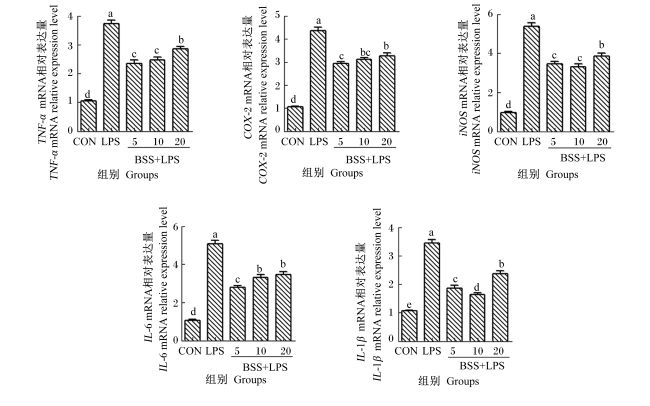
图2 β-谷甾醇对LPS诱导的HC11细胞炎性细胞因子mRNA表达的影响

Fig.2 Effects of BSS on mRNA expression of inflammatory cytokine in LPS-induced HC11 cells

2.3 β-谷甾醇对LPS诱导的HC11细胞乳蛋白mRNA表达的影响

图3所示,与CON组相比,LPS组的HC11细胞CSN2、CSN3和LALBA的mRNA相对表达量均显著降低(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞CSN2、CSN3和LALBA的mRNA相对表达量均显著升高(P<0.05);其中,5 μmol/L BSS+LPS组的HC11细胞CSN2、CSN3和LALBA的mRNA相对表达量较高。
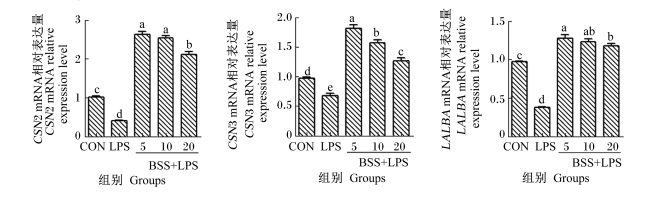
图3 β-谷甾醇对LPS诱导的HC11细胞乳蛋白mRNA表达的影响

Fig.3 Effects of BSS on mRNA expression of milk protein in LPS-induced HC11 cells

2.4 β-谷甾醇对LPS诱导的HC11细胞乳蛋白合成通路相关基因mRNA和蛋白表达的影响

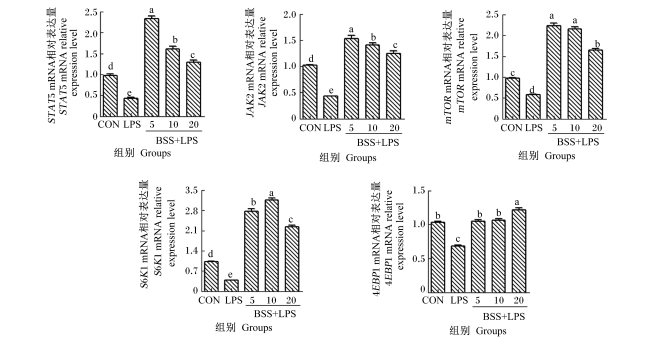
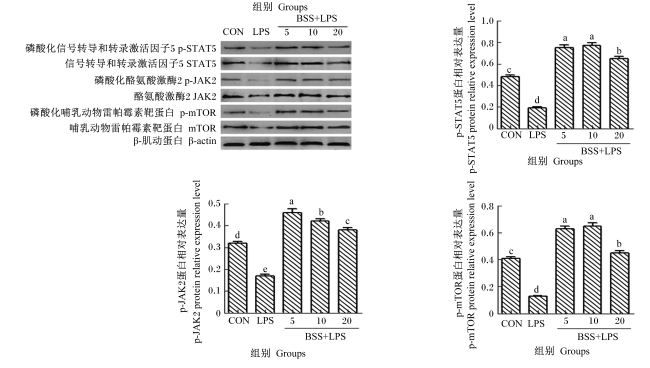
图4图5所示,与CON组相比,LPS组的HC11细胞STAT5、JAK2、mTOR、4EBP1和S6K1的mRNA相对表达量均显著降低(P<0.05),同时p-STAT5、p-JAK2和p-mTOR的蛋白相对表达量也显著降低(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞STAT5、JAK2、mTOR、4EBP1和S6K1的mRNA相对表达量均显著升高(P<0.05),同时p-STAT5、p-JAK2和p-mTOR的蛋白相对表达量也显著升高(P<0.05);其中,5 μmol/L BSS+LPS组和10 μmol/L BSS+LPS组的HC11细胞STAT5、JAK2、mTORS6K1的mRNA和蛋白相对表达量较高。
图4 β-谷甾醇对LPS诱导的HC11细胞乳蛋白合成信号通路相关基因mRNA表达的影响

Fig.4 Effects of BSS on mRNA expression of genes related to milk protein synthesis signal pathway in LPS-induced HC11 cells

图5 β-谷甾醇对LPS诱导的HC11细胞乳蛋白合成信号通路相关蛋白表达的影响

Fig.5 Effects of BSS on protein expression of proteins related to milk protein synthesis signal pathway in LPS-induced HC11 cells

3 讨论

牛乳腺炎是影响世界乳业的重要疾病,会导致牛奶产量和质量的降低,从而给乳业造成巨大的经济损失。牛乳腺炎可由多种因素引起,最常见的因素是病原体感染,包括革兰氏阴性菌在内的多种微生物可引起乳腺炎,其中乳腺上皮细胞参与了抵御病原微生物入侵的第1道防线。

3.1 β-谷甾醇对LPS诱导的HC11细胞炎性细胞因子mRNA表达的影响

研究表明,LPS通过与乳腺上皮细胞膜的模式识别受体TLR4结合,激活多种炎症反应信号通路,导致各种炎性细胞因子TNF-α、IL-1β、IL-6、iNOS和COX-2的产生,这些炎症介质能够进一步放大炎症过程[15]。因此,常用LPS诱导乳腺上皮细胞炎症反应模型来研究乳腺炎潜在治疗药物的抗炎机制。炎性细胞因子能促进炎症的发生发展,TNF-α是感染早期的主要炎症因子,对中性粒细胞具有趋化作用。与TNF-α一样,IL-6和IL-1β在炎症过程中发挥重要作用。研究表明,一些植物活性成分可以通过抑制TNF-α、IL-6和IL-1β的产生来减弱LPS诱导的乳腺炎[16-17]
本研究发现,与CON组相比,LPS组的HC11细胞TNF-αIL-6和IL-1β的mRNA相对表达量显著升高;β-谷甾醇能显著抑制TNF-αIL-6和IL-1β的mRNA表达,其中5和10 μmol/L β-谷甾醇抑制效果较好。Bi等[18]研究发现,β-谷甾醇可以抑制LPS刺激的人脐静脉内皮细胞中TNF-αIL-6和IL-1β的mRNA表达。β-谷甾醇降低了过敏性哮喘大鼠炎症模型肺脏组织中TNF-α、IL-6等炎症因子的含量[19]。这些研究为本试验的结果提供了依据。COX-2是一种由细胞外和细胞内生理刺激(如LPS和TNF-α)激活的诱导酶;iNOS是一种一氧化氮合酶,被炎症、组织损伤等病理刺激激活,抑制iNOS的mRNA表达可以降低炎症介质一氧化氮(NO)含量。因此,COX-2和iNOS常被作为炎症标志物,它们的高表达与氧化应激和炎症的发生密切相关[20-21]。研究发现,iNOS和COX-2在LPS诱导的乳腺炎小鼠乳腺组织中也大量表达[22]。芹菜素和大豆活性肽等植物活性成分可以通过抑制LPS诱导的体内、体外乳腺炎模型中iNOS和COX-2的产生缓解乳腺炎[23-24]。Sun等[25]证明β-谷甾醇可抑制LPS诱导的小鼠小胶质细胞炎症介质IL-6、iNOSTNF-αCOX-2的mRNA表达。本研究也发现,β-谷甾醇能抑制LPS诱导的小鼠HC11细胞iNOSCOX-2的mRNA表达,并且5和10 μmol/L β-谷甾醇的抑制效果较好。这些结果表明,β-谷甾醇可通过抑制促炎介质TNF-αIL-6、IL-1βiNOSCOX-2的mRNA表达来抑制乳腺炎的发展,而且研究提示低剂量的β-谷甾醇对小鼠乳腺炎症反应的抑制效果较好。

3.2 β-谷甾醇对LPS诱导的HC11细胞乳蛋白mRNA表达的影响

乳蛋白是牛乳的重要营养成分,主要成分为酪蛋白和LALBA。牛乳中酪蛋白有αs1酪蛋白(CSN1S1)、CSN2、αs2酪蛋白(CSN1S2)和CSN3等4种亚型。乳蛋白的合成受多种信号通路和激素在多个水平上的调控。LPS对乳蛋白合成有显著的抑制作用,Spitzer等[26]通过检测乳蛋白基因表达发现LPS显著降低了CSN2和LALBA的mRNA相对表达量。原利荣[27]发现LPS刺激能降低奶牛乳腺组织CSN2、CSN1S1和CSN3的mRNA相对表达量。李彦霞等[28]研究表明,大肠杆菌型乳房炎奶牛的乳腺组织中CSN1S1、CSN2和LALBA的mRNA相对表达量与健康奶牛相比均显著下调。植物提取物活性成分丰富,对乳腺炎奶牛乳蛋白率有明显的改善作用。Liu等[29]研究发现,薄荷醇可能通过抑制LPS诱导的奶牛乳腺上皮细胞炎症因子的表达,进而上调β酪蛋白的表达。辣木提取物能上调LPS刺激的奶牛乳腺上皮细胞CSN1S1、CSN1S2和CSN2的mRNA相对表达量[30]。为了探究β-谷甾醇在抑制小鼠乳腺上皮细胞炎症反应的同时是否可以改善乳蛋白的合成,本研究检测了β-谷甾醇对LPS诱导的HC11细胞乳蛋白mRNA表达的影响,结果表明LPS诱导的炎症反应可降低HC11细胞CSN2、CSN3和LALBA的mRNA相对表达量;而不同浓度的β-谷甾醇能不同程度地提高LPS诱导的HC11细胞CSN2、CSN3和LALBA的mRNA相对表达量,其中5 μmol/L BSS+LPS组CSN2、CSN3和LALBA的mRNA相对表达量最高。这些结果表明,β-谷甾醇在缓解LPS诱导的HC11细胞炎症反应的同时可提高乳蛋白的合成,而且低剂量的β-谷甾醇上调乳蛋白mRNA表达的效果最明显。

3.3 β-谷甾醇对LPS诱导的HC11细胞乳蛋白合成通路相关基因mRNA和蛋白表达的影响

哺乳动物mTOR通路和JAK2/STAT5通路是众所周知的调控乳腺中乳蛋白合成的关键信号通路。催乳素和促泌乳相关因子可通过JAK2使STAT5磷酸化,p-STAT5形成二聚体,进入细胞核与乳蛋白基因的启动子和增强子结合,诱导其表达,从而促进乳蛋白合成。激活的mTOR磷酸化其下游效应因子4EBP1,真核细胞翻译起始因子4E(eIF4E)与未磷酸化的4EBP1结合可抑制蛋白质的翻译;而4EBP1经mTOR磷酸化后会与eIF4E脱离,促进乳蛋白的合成。mTOR还能够促进S6K1磷酸化,增强含嘧啶基因mRNA的翻译,进而调节蛋白质的合成[31]。占今舜等[32]研究发现,LPS刺激的奶牛乳腺上皮细胞乳蛋白合成通路相关基因STAT5、mTOR和4EBP1的mRNA相对表达量显著降低。Zhang等[33]研究发现,LPS能降低奶牛乳腺上皮细胞中CSN1S1、CSN3、JAK2、STAT5、mTOR、4EBP1、S6K1的mRNA相对表达量。研究表明,植物提取物可能通过促进乳蛋白合成信号通路相关基因转录及磷酸化蛋白表达而提高LPS诱导的乳腺上皮细胞中乳蛋白合成水平。胡耀等[34]研究发现,黄花蒿乙醇提取物能上调LPS诱导损伤的奶牛乳腺上皮细胞中mTORS6K1、4EBP1、JAK2和STAT5的mRNA相对表达量。黄芪甲苷处理炎症乳腺上皮细胞时可促进CSN2基因表达,并可显著激活p-mTOR蛋白表达[35]。本研究结果显示,LPS诱导显著下调了HC11细胞乳蛋白合成信号通路相关基因的mRNA相对表达量,与前人研究结果一致。同时本研究发现,与LPS诱导损伤的炎症模型HC11细胞相比,β-谷甾醇能上调mTORS6K1、4EBP1、JAK2和STAT5的mRNA相对表达量及p-mTOR、p-STAT5、p-JAK2的蛋白相对表达量,其中5和10 μmol/L β-谷甾醇提高乳蛋白合成信号通路相关基因mRNA和蛋白表达的效果最好。这表明β-谷甾醇可能通过影响mTOR及JAK2/STAT5信号通路来促进炎症模型HC11细胞中乳蛋白的合成。

4 结论

β-谷甾醇可抑制LPS诱导的小鼠乳腺上皮细胞炎性细胞因子的mRNA表达,同时可上调LPS诱导的小鼠乳腺上皮细胞乳蛋白合成信号通路(mTOR通路及JAK2/STAT5通路)相关基因的mRNA和蛋白表达,进而促进乳蛋白的mRNA表达。综合比较,以低剂量的β-谷甾醇缓解LPS诱导的HC11细胞炎症反应以及促进乳蛋白合成的效果较好。
[1]
GANDA E K, BISINOTTO R S, DECTER D H, et al. Evaluation of an on-farm culture system (Accumast) for fast identification of milk pathogens associated with clinical mastitis in dairy cows[J]. PLoS One, 2016, 11(5):e0155314.

DOI

[2]
DERAKHSHANI H, FEHR K B, SEPEHRI S, et al. Invited review:microbiota of the bovine udder:contributing factors and potential implications for udder health and mastitis susceptibility[J]. Journal of Dairy Science, 2018, 101(12):10605-10625.

DOI

[3]
GUO W J, LIU B R, YIN Y H, et al. Licochalcone a protects the blood-milk barrier integrity and relieves the inflammatory response in LPS-induced mastitis[J]. Frontiers in Immunology, 2019, 10:287.

DOI PMID

[4]
RAN X, YAN Z, YANG Y X, et al. Dioscin improves pyroptosis in LPS-induced mice mastitis by activating AMPK/Nrf2 and inhibiting the NF-κB signaling pathway[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:8845521.

[5]
SORDILLO L M. Mammary gland immunobiology and resistance to mastitis[J]. Veterinary Clinics of North America:Food Animal Practice, 2018, 34(3):507-523.

DOI

[6]
单旭菲. PRL抵抗在LPS导致BMEC乳蛋白合成功能降低中的作用[D].硕士学位论文. 大庆: 黑龙江八一农垦大学, 2019.

SHAN X F. The effect of prolactin resistant on lactoprotein decrease induce by LPS in BMEC[D].Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2019. (in Chinese)

[7]
SHU X, FANG Z Y, GUAN Y, et al. High levels of fatty acids inhibit β-casein synthesis through suppression of the JAK2/STAT5 and mTOR signaling pathways in mammary epithelial cells of cows with clinical ketosis[J]. Journal of Dairy Research, 2020, 87(2):212-219.

DOI PMID

[8]
刘立新, 林叶, 张莉, 等. 脂多糖对奶牛乳腺上皮细胞毒性作用及乳蛋白合成的影响[J]. 东北农业大学学报, 2015, 46(6):61-66.

LIU L X, LIN Y, ZHANG L, et al. Cytotoxicity of LPS and effects on milk protein synthesis in dairy cow mammary epithelial cells[J]. Journal of Northeast Agricultural University, 2015, 46(6):61-66. (in Chinese)

[9]
KRÖMKER V, LEIMBACH S. Mastitis treatment-reduction in antibiotic usage in dairy cows[J]. Reproduction in Domestic Animals, 2017, 52(S3):21-29.

DOI

[10]
VAN SOEST F J S, ABBELOOS E, MCDOUGALL S, et al. Addition of meloxicam to the treatment of bovine clinical mastitis results in a net economic benefit to the dairy farmer[J]. Journal of Dairy Science, 2018, 101(4):3387-3397.

DOI PMID

[11]
PAŞCA C, MǍRGHITAŞ L A, DEZMIREAN D S, et al. Efficacy of natural formulations in bovine mastitis pathology:alternative solution to antibiotic treatment[J]. Journal of Veterinary Research, 2020, 64(4):523-529.

DOI

[12]
陈铁民, 刘永辉, 温健新, 等. β-谷甾醇对幽门螺杆菌感染性胃炎小鼠炎症影响[J]. 中国临床药理学杂志, 2022, 38(23):2811-2815.

CHEN T M, LIU Y H, WEN J X, et al. Effect of β-sitosterol on inflammation in mice with Helicobacter pylori infectious gastritis[J]. The Chinese Journal of Clinical Pharmacology, 2022, 38(23):2811-2815. (in Chinese)

[13]
冯思敏, 宁可, 邵平, 等. β-谷甾醇和豆甾醇对小鼠急性结肠炎的治疗作用研究[J]. 中国粮油学报, 2018, 33(12):80-86,94.

FENG S M, NING K, SHAO P, et al. Research on the β-sitosterol and stigmasterol therapeutic effect of acute colitis in mice[J]. Journal of the Chinese Cereals and Oils Association, 2018, 33(12):80-86,94. (in Chinese)

[14]
KURANO M, HASEGAWA K, KUNIMI M, et al. Sitosterol prevents obesity-related chronic inflammation[J]. Biochimica et Biophysica Acta:Molecular and Cell Biology of Lipids, 2018, 1863(2):191-198.

[15]
FANG C Y, WANG L X, QIAO J T, et al. Differential regulation of lipopolysaccharide-induced IL-1β and TNF-α production in macrophages by palmitate via modulating TLR4 downstream signaling[J]. International Immunopharmacology, 2022, 103:108456.

DOI

[16]
KAN X C, LIU B R, GUO W J, et al. Myricetin relieves LPS-induced mastitis by inhibiting inflammatory response and repairing the blood-milk barrier[J]. Journal of Cellular Physiology, 2019, 234(9):16252-16262.

DOI

[17]
JIANG M C, LV Z Y, HUANG Y H, et al. Quercetin alleviates lipopolysaccharide-induced inflammatory response in bovine mammary epithelial cells by suppressing TLR4/NF-κB signaling pathway[J]. Frontiers in Veterinary Science, 2022, 9:915726.

DOI

[18]
BI Y M, LIANG H F, HAN X, et al. β-sitosterol suppresses LPS-induced cytokine production in human umbilical vein endothelial cells via MAPKs and NF-κB signaling pathway[J]. Evidence-Based Complementary and Alternative Medicine, 2023, 2023:9241090.

[19]
贾菊芳, 曾梦楠, 张贝贝, 等. β-谷甾醇对OVA诱导的过敏性哮喘大鼠模型中Th17/Treg免疫失衡的调节[J]. 中国免疫学杂志:1-15[2023-04-01]. http://kns.cnki.net/kcms/detail/22.1126.r.20221208.1504.001.html.

JIA J F, ZENG M N, ZHANG B B, et al. Regulation of Th17/Treg immune imbalance by β-sitosterol in an OVA-induced allergic asthma rat model[J]. Chinese Journal of Immunology:1-15[2023-04-01]. http://kns.cnki.net/kcms/detail/22.1126.r.20221208.1504.001.html. (in Chinese)

[20]
文玲, 边志远, 廖健思, 等. 安胰颗粒对SAP大鼠胰腺组织NF-κBiNOSCOX-2表达的影响[J]. 中成药, 2020, 42(8):2043-2048.

WEN L, BIAN Z Y, LIAO J S, et al. Effects of Anyi granules on the pancreatic expression of NF-κB,iNOS and COX-2 of SAP rats[J]. Chinese Traditional Patent Medicine, 2020, 42(8):2043-2048. (in Chinese)

[21]
张广芹, 马梦娇, 于晓璐, 等. 143抑制LPS诱导的细胞炎症反应[J]. 南京师大学报(自然科学版), 2019, 42(1):95-101.

ZHANG G Q, MA M J, YU X L, et al. The inhibitory effect of 143 on LPS-induced cellular inflammatory response[J]. Journal of Nanjing Normal University (Natural Science Edition), 2019, 42(1):95-101. (in Chinese)

[22]
GUO W J, LIU B R, HU G Q, et al. Vanillin protects the blood-milk barrier and inhibits the inflammatory response in LPS-induced mastitis in mice[J]. Toxicology and Applied Pharmacology, 2019, 365:9-18.

DOI PMID

[23]
陈喜宏, 余世田, 马骁, 等. 芹菜素通过NF-κB和MAPK通路抑制MAC-T细胞和小鼠乳腺的炎性反应[J]. 中国兽医学报, 2022, 42(10):2042-2050.

CHEN X H, YU S T, MA X, et al. Inflammatory inhibition of apigenin through NF-κB and MAPK pathways in MAC-T cells[J]. Chinese Journal of Veterinary Science, 2022, 42(10):2042-2050. (in Chinese)

[24]
陈逸, 张一涵, 张静, 等. 大豆活性肽对体外过氧化氢诱导的奶牛乳腺上皮细胞氧化应激和炎症损伤的缓解作用[J]. 动物营养学报, 2022, 34(10):6714-6725.

DOI

CHEN Y, ZHANG Y H, ZHANG J, et al. Alleviation effect of soybean bioactive peptide on oxidative stress and inflammatory injury of bovine mammary epithelial cells induced by hydrogen peroxide in vitro[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6714-6725. (in Chinese)

DOI

[25]
SUN Y N, GAO L, HOU W, et al. β-Sitosterol alleviates inflammatory response via inhibiting the activation of ERK/p38 and NF-κB pathways in LPS-exposed BV2 cells[J]. BioMed Research International, 2020, 2020:7532306.

[26]
SPITZER A J, TIAN Q, CHOUDHARY R K, et al. Bacterial endotoxin induces oxidative stress and reduces milk protein expression and hypoxia in the mouse mammary gland[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:3894309.

[27]
原利荣. 内毒素对奶牛乳腺组织免疫活化状态及乳脂肪和乳蛋白合成的影响及其控制[D].硕士学位论文. 重庆: 西南大学, 2015.

YUAN L R. The effects of endotoxin on immune activation and the synthesis of milk fat and milk protein and their control in the mammary tissue of dairy cows[D].Master’s Thesis. Chongqing: Southwest University, 2015. (in Chinese)

[28]
李彦霞, 王晋鹏, 冯芬, 等. 大肠杆菌型奶牛乳房炎对产奶性状相关基因表达的影响[J]. 生物技术通报, 2023, 39(2):274-282.

DOI

LI Y X, WANG J P, FENG F, et al. Effects of Escherichia coli dairy cow mastitis on the expressions of milk-producing trait related genes[J]. Biotechnology Bulletin, 2023, 39(2):274-282. (in Chinese)

[29]
LIU S Q, GUO W J, JIA Y X, et al. Menthol targeting AMPK alleviates the inflammatory response of bovine mammary epithelial cells and restores the synthesis of milk fat and milk protein[J]. Frontiers in Immunology, 2021, 12:782989.

DOI

[30]
CHENG W N, JEONG C H, SEO H G, et al. Moringa extract attenuates inflammatory responses and increases gene expression of casein in bovine mammary epithelial cells[J]. Animals, 2019, 9(7):391.

DOI

[31]
余烨, 陶杨, 付斌龙, 等. 泌乳相关因子对乳蛋白合成影响的研究进展[J]. 饲料研究, 2021, 44(16):124-127.

YU Y, TAO Y, FU B L, et al. Research progress on effect of lactation related factors on milk protein synthesis[J]. Feed Research, 2021, 44(16):124-127. (in Chinese)

[32]
占今舜, 詹康, 陈小连, 等. 苜蓿素对脂多糖诱导下奶牛乳腺上皮细胞炎症和乳蛋白合成相关基因表达的影响[J]. 草业科学, 2018, 35(2):441-448.

ZHAN J S, ZHAN K, CHEN X L, et al. Lipopolysaccharide-induced effects of tricin on inflammatory and lacto-protein gene expression in bovine mammary epithelial cells[J]. Pratacultural Science, 2018, 35(2):441-448. (in Chinese)

[33]
ZHANG B Q, GUO Y M, YAN S M, et al. The protective effect of selenium on the lipopolysaccharide-induced oxidative stress and depressed gene expression related to milk protein synthesis in bovine mammary epithelial cells[J]. Biological Trace Element Research, 2020, 197(1):141-148.

DOI PMID

[34]
胡耀, 宋洁, 王丽芳, 等. 黄花蒿乙醇提取物对脂多糖诱导损伤奶牛乳腺细胞中乳蛋白合成的影响[J]. 动物营养学报, 2021, 33(9):5236-5245.

DOI

HU Y, SONG J, WANG L F, et al. Effects of ethanol extract of artemisia annua on milk protein synthesis in lipopolysaccharide-induced injury mammary cells of dairy cows[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):5236-5245. (in Chinese)

[35]
樊嘉琦, 周学章. 黄芪甲苷对脂多糖刺激的奶牛乳腺上皮细胞乳蛋白及乳脂合成相关因子表达的影响[J]. 动物营养学报, 2022, 34(10):6702-6713.

DOI

FAN J Q, ZHOU X Z. Effects of Astragaloside Ⅳ on expression of milk protein and milk fat synthesis-related factors in lipopolysaccharide-stimulated milk bovine mammary epithelial cells[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6702-6713. (in Chinese)

文章导航

/