研究论文

酶菌协同发酵改善菜籽饼粕营养价值的研究

  • 邓生青 ,
  • 郭诚诺 ,
  • 韩明霞 ,
  • 王钰明 ,
  • 赵峰 ,
  • 解竞静 ,
  • 萨仁娜 , *
展开
  • 中国农业科学院北京畜牧兽医研究所,动物营养学国家重点实验室,北京 100193
* 萨仁娜,副研究员,硕士生导师,E-mail:

邓生青(1997—),女,贵州凯里人,硕士研究生,从事饲料养分生物学效价评定研究。E-mail:

Copy editor: 武海龙

收稿日期: 2023-03-20

  网络出版日期: 2023-09-13

基金资助

“十四五”国家重点研发计划“畜禽低蛋白低豆粕多元化日粮配制与节粮技术集成”(2022YFD1300505)

中国农业科学院科技创新工程(ASTIP-IAS07)

Study on Improving Nutritional Value of Rapeseed Cake and Meal by Combination Fermentation with Enzyme and Bacteria

  • DENG Shengqing ,
  • GUO Chengnuo ,
  • HAN Mingxia ,
  • WANG Yuming ,
  • ZHAO Feng ,
  • XIE Jingjing ,
  • SA Renna , *
Expand
  • State Key Laboratory of Animal Nutrition, Institute of Animal Sciences, Chinese Academy of Agricultural Sciences, Beijing 100193, China
* associate professor, E-mail:

Received date: 2023-03-20

  Online published: 2023-09-13

摘要

本试验旨在探究酶菌协同发酵菜籽饼粕对抗营养因子的降解作用以及养分含量的改善作用,为菜籽饼粕在家禽饲粮中的应用提供数据与理论参考。试验采用正交试验法,以菜籽饼为发酵原料,以发酵后总变化率[总变化率=0.7×中性洗涤纤维(NDF)降解率+0.15×硫甙(Gls)降解率+0.15×酸溶蛋白(TCA-SP)增加率]作为综合评价指标,在明确最优酶菌协同发酵工艺的条件下,对9个不同来源菜籽饼粕进行发酵,对发酵后的养分含量变化进行效果评价,以验证发酵工艺对不同来源菜籽饼粕的有效性。结果表明:1)在混菌固态发酵体系中加入纤维素酶、果胶酶和α-半乳糖苷酶,添加量分别为60、60、10 U/g,发酵体系NDF降解率为18.25%,Gls降解率为60.12%,TCA-SP增加率为175.72%,总变化率为48.15%。2)酶菌协同发酵显著降低了菜籽饼NDF、酸性洗涤纤维(ADF)含量,显著提高了粗蛋白质(CP)、TCA-SP、总氨基酸含量(P<0.05),使菜籽饼表面结构发生改变,使蛋白质分子质量变小。3)酶菌协同发酵显著降低了9个不同来源菜籽饼粕的NDF、Gls含量和pH(P<0.05),显著提高了TCA-SP含量(P<0.05)。由此可见,酶菌协同发酵可以提高菜籽饼粕的TCA-SP含量,降低NDF、Gls含量及pH,对不同来源菜籽饼粕均能起到改善其营养价值的作用。

本文引用格式

邓生青 , 郭诚诺 , 韩明霞 , 王钰明 , 赵峰 , 解竞静 , 萨仁娜 . 酶菌协同发酵改善菜籽饼粕营养价值的研究[J]. 动物营养学报, 2023 , 35(9) : 6087 -6099 . DOI: 10.12418/CJAN2023.558

Abstract

This experiment was conducted to investigate the effects of combination fermentation with enzyme and bacteria on degradation of anti-nutritional factors and improvement of nutrient content of rapeseed cake and meal, to provide the data and theoretical reference for the application of rapeseed cake and meal in poultry feed. The experiment adopted a orthogonal experimental method, using rapeseed cake as the fermentation material, using the total rate of change [total rate of change=0.7×degradation rate of neutral detergent fiber (NDF)+0.15×degradation rate of glycosides (Gls)+0.15×increasing rate of acid soluble protein (TCA-SP)] after fermentation as a comprehensive evaluation indicator, under the conditions of clarifying the optimal technology of combination fermentation with enzyme and bacteria, fermented the rapeseed cake and meal from 9 different sources, evaluated the nutrient content change after fermentation, to verify the effectiveness of fermentation technology on different sources of rapeseed cake and meal. The results showed as follows: 1) after the cellulase, pectinase and α-galactosidase of 60, 60 and 10 U/g were added to the mixed bacterial solid-state fermentation system, the degradation rate of NDF was 18.25%, the degradation rate of Gls was 60.12%, the increasing rate of TCA-SP was 175.72%, and the total rate of change was 48.15%. 2) The combination fermentation with enzyme and bacteria significantly decreased the contents of NDF and acid detergent fiber (ADF) in rapeseed cake (P<0.05), significantly increased the contents of crude protein (CP), TCA-SP and total amino acid (P<0.05), changed the surface structure of rapeseed cake, and reduced the molecular weight of protein. 3) The combination fermentation with enzyme and bacteria significantly decreased the contents of NDF and Gls and pH in rapeseed cake and meal from nine different sources (P<0.05), and significantly increased the TCA-SP content (P<0.05). In conclusion, the combination fermentation with enzyme and bacteria can improve the content of TCA-SP in rapeseed cake and meal, decrease the contents of NDF and Gls and pH, improve the nutritional value of rapeseed cake and meal from different sources.

我国家禽年出栏量居世界第一,长期以来以玉米-豆粕型饲粮为主,这些原料大量依赖进口,使得饲料成本逐年升高[1]。为了缓解养殖业饲料原料的供需矛盾,农业农村部实施“豆粕减量替代”行动,引导养殖企业以杂粕类原料替代豆粕。因此,利用生物技术手段提高杂粕类原料的消化利用率,开发利用不同地区的原料,缓解进口豆粕的压力,具有重要意义。菜籽饼粕是油菜籽榨油加工后的副产物,在2020—2021年产量约1 000万t,是产量最高的杂粕类蛋白质饲料原料[2],其粗蛋白质(CP)含量略低于豆粕,含有丰富的含硫氨基酸,赖氨酸和精氨酸含量略低[3]。由于普通菜籽饼粕含有硫甙(Gls)、芥子碱、植酸、单宁和纤维等抗营养因子,适口性差,消化率低于豆粕[4]。研究发现,饲粮中添加10%的菜籽粕显著降低了肉鸡的生长性能[5]。菜籽饼粕的纤维主要存在于菜籽壳上,是难以被家禽利用的结构性多糖(纤维素、果胶多糖、木质素、半纤维素等),彼此间通过氢键与木葡聚糖相互连接形成刚性网状结构,并将蛋白质等养分缠绕包埋。菜籽饼粕中的大部分纤维不能被畜禽体内消化酶降解,也不能被上消化道吸收[6]。Gls是菜籽饼粕毒理作用最大的抗营养因子,可引起甲状腺肿,导致生长迟缓[7]
目前通过发酵技术可以消除Gls、单宁等抗营养因子[8],但对纤维的降解作用不显著[9]。Olukomaiya等[10]报道了发酵后菜籽粕的中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)等含量出现升高的现象。研究发现,利用酶解技术可以降解菜籽饼粕中的纤维并增加产物中小肽含量,但对Gls几乎无作用[11-12]。而酶菌协同发酵杂粕可将酶解技术和发酵技术有效结合,从而提高饲料利用率[8,13]。Goodarzi等[14]研究发现,在菜籽饼液态自发发酵过程中加入果胶酶、葡聚糖酶和植酸酶后,可降低结构性多糖和植酸含量,并显著提高了肉鸡生长性能。不同产地不同加工工艺生产的菜籽饼粕,所含有的养分和抗营养因子含量差异较大[15-16],利用微生物发酵技术改善菜籽饼粕的营养价值受菜籽饼粕的性质、来源、榨油的加工工艺、储存条件、发酵菌种的选择、固体发酵的条件等因素影响[17-20],如发酵后菜籽饼粕CP含量升高[18,20]或无变化[10],NDF含量降低[18]或升高[10]。由此可见,菜籽饼粕生产条件、发酵菌种和工艺不同,对菜籽饼粕的改善效果差异很大。目前尚缺乏发酵工艺对不同来源的菜籽饼粕是否具备普遍适用性的研究。因此,本研究以不同来源的菜籽饼粕为底物,开展酶菌协同发酵,分析探讨发酵工艺对不同来源菜籽饼粕的改善作用,为菜籽饼粕的有效利用提供数据与理论参考。

1 材料与方法

1.1 试验材料与试剂

菌种:枯草芽孢杆菌(B.subtilis)购自中国工业微生物菌种保藏管理中心,植物乳杆菌(L.plantarum)为动物营养学国家重点实验室保存菌株。
酶源:纤维素酶,活性20 000 U/g;果胶酶,活性30 000 U/g;α-半乳糖苷酶,活性5 000 U/g。以上酶源均由天津博菲德科技有限公司惠赠。
主要原料:工艺优化用菜籽饼产自天津;另根据不同产地从我国不同区域采集了8个菜籽粕和1个菜籽饼,粉碎过0.42 mm筛备用。
培养基:MRS和LB培养基购自北京奥博星生物技术有限责任公司。

1.2 试验设计

试验于2021年12月至2022年5月在中国农业科学院北京畜牧兽医研究所动物营养学国家重点实验室进行。试验共分为2个部分。试验1:以工艺优化用菜籽饼为发酵底物,以发酵后菜籽饼的NDF降解率(%)、Gls降解率(%)、酸溶蛋白(TCA-SP)增加率(%)为评价指标,以总变化率(总变化率=0.7×NDF降解率+0.15×Gls降解率+0.15×TCA-SP增加率)为综合评价指标,确定酶菌协同最优发酵工艺,并进行发酵效果的验证。试验2:在最佳酶菌协同发酵工艺下对菜籽粕1、2、3、4、5、6、7、8及菜籽饼9进行酶菌协同发酵处理,探讨酶菌协同发酵工艺对不同来源菜籽饼粕的纤维降解效果及养分的改善效果。

1.3 试验方法

1.3.1 菌种发酵液制备

将枯草芽孢杆菌和植物乳杆菌分别在LB和MRS培养基划线培养后,挑取单菌落,分别接种于LB、MRS液体培养基中,在37 ℃、200 r/min条件下培养24 h,按1%的接种量分别接种到含100 mL液体培养基的三角瓶中,培养18 h后备用。

1.3.2 发酵过程

准确称取50.0 g菜籽饼置于500 mL三角瓶中,将菌种发酵液以枯草芽孢杆菌:植物乳杆菌=5:1的接种比例,按照12%的接种量接种至菜籽饼培养基中,加入蒸馏水调整料水比为1.0:1.2,搅拌均匀后用无菌透气过滤封口膜封口,在35 ℃条件下恒温静置发酵96 h。发酵结束后于55 ℃低温烘干,粉碎待测。

1.4 酶菌协同发酵工艺优化

以总变化率为综合评价指标,以纤维素酶、果胶酶和α-半乳糖苷酶不同添加梯度为试验因素,设计L9(34)三因素三水平正交试验,试验设计见表1
表1 酶菌协同发酵菜籽饼L9(34)正交试验设计

Table 1 L9(34) orthogonal experimental design of combination fermentation with enzyme and bacteria of rapeseed cakeU/g

水平
Levels
因素 Factors
纤维素酶
Cellulase
果胶酶
Pectinase
α-半乳糖苷酶
α-galactosidase
1 20 20 6
2 40 40 8
3 60 40 10

1.5 测定指标及方法

用于测定纤维含量的样品粉碎过0.84 mm筛,用于测定CP和TCA-SP含量的样品粉碎过0.42 mm筛,用于测定氨基酸和Gls含量的样品粉碎过0.25 mm筛。对工艺优化用菜籽饼发酵前后的pH及CP、TCA-SP、NDF、ADF、Gls和氨基酸含量进行测定,以及菜籽饼发酵前后扫描电镜分析和蛋白质分子质量分析。对9个不同来源菜籽饼粕发酵前后的pH及CP、TCA-SP、NDF和Gls含量进行测定。

1.5.1 养分测定

Gls含量采用氯化钯比色法[21]测定,DM含量通过105 ℃烘箱干燥4 h测定,CP含量采用凯氏定氮法测定,TCA-SP含量参照NY/T 3801—2020[22]测定,NDF含量参照GB/T 20806—2006[23]采用Van Soest分析法测定,ADF含量参照NY/T 1459—2007[24]采用Van Soest分析法测定,氨基酸含量利用氨基酸自动分析仪测定。

1.5.2 pH测定

称取发酵前后的样品5.0 g,加蒸馏水50 mL,搅拌30 min后,用预先校正过的pH计测定其pH。

1.5.3 电镜扫描分析

取适量样品粉碎过0.25 mm筛后,置于导电胶固定在扫描电镜专用样品台上,用磁控溅射铂金进行喷金处理,再将处理好的样品用扫描电镜(SU3500,日本)进行观察并拍照留存。

1.5.4 蛋白质分子质量分析

将样品碎过0.25 mm,取适量样品采用变性结合加热的方法来提取菜籽饼粕蛋白质并进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分析,具体操作参照文献[25]进行。

1.6 数据统计与分析

采用Excel 2010软件对数据进行初步处理,采用SAS 9.4软件对数据进行单因素方差分析(one-way ANOVA),采用Duncan氏法进行多重比较,以P<0.05作为差异显著性判断标准。

2 结果

2.1 不同来源菜籽饼粕化学成分

表2可知,菜籽饼9的CP、NDF和TCA-SP含量分别为41.31%、40.39%和2.61%。菜籽粕1~8的CP、NDF和TCA-SP含量分别在37.07%~44.93%、27.03%~40.22%和2.11%~3.19%;CP的变异系数为6.17%,NDF和TCA-SP的变异系数均超过了10%。菜籽饼9的Gls含量为18.81 μmol/g。菜籽粕1~8的Gls含量在18.10~57.64 μmol/g,Gls的变异系数为38.67%,Gls含量最高的是产地为安徽的菜籽粕6,Gls含量最低的是产地为福建的菜籽粕5。
表2 不同来源菜籽饼粕化学成分(干物质基础)

Table 2 Chemical composition of rapeseed cake and meal from different sources (DM basis)%

项目
Items
产地
Origins
样品
Sample
干物质
DM/%
粗蛋白质
CP/%
中性洗涤纤维
NDF/%
酸溶蛋白
TCA-SP/%
硫甙
Gls/(μmol/g)
菜籽粕 Rapeseed meal
1 江苏 Jiangsu RSM1 89.42 44.63 31.26 2.23 22.43
2 安徽 Anhui RSM2 89.25 42.74 40.22 3.19 57.64
3 浙江 Zhejiang RSM3 89.78 37.07 32.26 2.41 37.89
4 福建 Fujian RSM4 89.30 45.56 27.40 2.44 30.43
5 福建 Fujian RSM5 88.88 44.93 27.03 2.28 26.65
6 福建 Fujian RSM6 89.72 42.78 28.67 2.19 18.10
7 广东 Guangdong RSM7 88.87 43.95 33.45 2.11 30.89
8 广西 Guangxi RSM8 88.04 43.99 32.79 2.31 27.03
平均值 Mean 89.16 43.21 31.63 2.39 31.38
变异系数 CV/% 0.63 6.17 13.46 14.23 38.67
菜籽饼 Rapeseed cake
9 天津 Tianjin RSC9 92.84 41.31 40.39 2.61 18.81

2.2 酶菌协同发酵菜籽饼的正交试验结果

表3可知,从极差结果来看,果胶酶对总变化率的影响最大,纤维素酶次之,α-半乳糖苷酶的影响最小,即果胶酶>纤维素酶>α-半乳糖苷酶,最优配比组合为纤维素酶:果胶酶:α-半乳糖苷酶=3:3:3,此时总变化率为46.44%。
表3 酶菌协同发酵菜籽饼的正交试验结果(干物质基础)

Table 3 Orthogonal experimental results of combination fermentation with enzyme and bacteria of rapeseed cake (DM basis)%

编号
Number
因子 Factors 结果 Results
纤维素酶
Cellulase
(A)
果胶酶
Pectinase
(B)
α-半乳糖苷酶
α-galactosidases
(C)
NDF降解率
Degradation
rate of NDF
Gls降解率
Degradation
rate of Gls
TCA-SP增加率
Increasing
rate of TCA-SP
总变化率
Total rate
of change
1 1 1 1 9.25 60.68 97.24 30.17
2 1 2 3 13.99 61.89 104.15 34.70
3 1 3 2 16.46 56.30 115.94 37.36
4 2 1 3 10.01 59.33 104.03 31.51
5 2 2 2 12.92 61.34 127.06 37.31
6 2 3 1 13.46 56.00 122.78 36.24
7 3 1 2 12.48 55.39 96.03 31.45
8 3 2 1 14.16 53.06 118.73 35.68
9 3 3 3 18.19 55.90 168.81 46.44
K - Y 1 34.07 31.04 34.03
K - Y 2 35.02 35.90 35.37
K - Y 3 37.86 40.01 37.55
极差 RJ 3.78 8.97 3.52
最优水平
Optimal levels
A3 B3 C3
排序Rank B>A>C

2.3 酶菌协同发酵对菜籽饼pH及化学成分的影响

表4可知,在最优配比组合酶菌协同发酵条件下,菜籽饼发酵后的pH显著低于发酵前(P<0.05),CP、TCA-SP含量显著高于发酵前(P<0.05),NDF、ADF、半纤维素、Gls含量显著低于发酵前(P<0.05),谷氨酸、丙氨酸、缬氨酸、亮氨酸及总氨基酸含量显著高于发酵前(P<0.05)。
表4 酶菌协同发酵对菜籽饼pH及化学成分的影响(干物质基础)

Table 4 Effects of combination fermentation with enzyme and bacteria on pH and chemical composition of rapeseed cake (DM basis, n=3)

项目
Items
发酵前
Before fermentation
发酵后
After fermentation
均值标准误
SEM
P
P-value
pH 6.02a 3.91b 0.01 <0.01
粗蛋白质 CP/% 38.24b 41.14a 0.07 <0.01
中性洗涤纤维 NDF/% 35.24a 28.81b 0.07 0.01
酸性洗涤纤维 ADF/% 22.08a 17.56b 0.25 0.03
半纤维素 HL/% 13.16a 11.24b 0.23 0.01
硫甙 Gls/(μmol/g) 51.61a 20.58b 1.05 <0.01
酸溶蛋白 TCA-SP/% 3.13b 8.63a 0.02 <0.01
天冬氨酸 Asp/% 3.29 3.32 0.01 0.10
苏氨酸 Thr/% 1.37 1.38 0.01 0.06
丝氨酸 Ser/% 1.54 1.55 0.01 0.06
谷氨酸 Glu/% 7.61b 7.73a 0.02 0.04
甘氨酸 Gly/% 2.05 2.13 0.02 0.10
丙氨酸 Ala/% 1.60b 1.68a 0.01 0.03
半胱氨酸 Cys/% 0.62 0.61 0.01 0.42
缬氨酸 Val/% 1.89b 1.94a 0.01 0.04
蛋氨酸 Met/% 0.75 0.75 0.01 0.42
异亮氨酸 Ile/% 1.56 1.58 0.01 0.12
亮氨酸 Leu/% 2.41b 2.45a 0.01 0.03
酪氨酸 Tyr/% 0.94 0.98 0.01 0.18
苯丙氨酸 Phe/% 1.71 1.73 0.01 0.07
赖氨酸 Lys/% 1.33 1.24 0.05 0.28
组氨酸 His/% 0.92 0.93 0.01 0.18
精氨酸 Arg/% 2.95 2.91 0.04 0.55
脯氨酸 Pro/% 1.76 1.80 0.01 0.17
总氨基酸 TAA/% 34.30b 34.72a 0.01 <0.01

同行数据肩标不同小写字母表示差异显著(P<0.05),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with no letter superscripts mean no significant difference (P>0.05). The same as below.

2.4 酶菌协同发酵对菜籽饼表面形态的影响

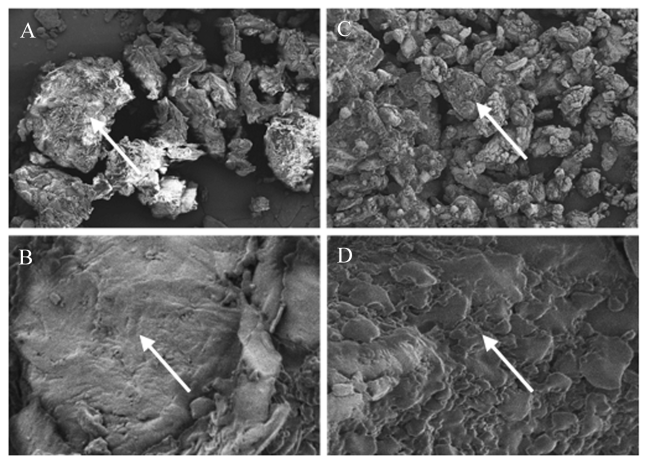
在最优配比组合酶菌协同发酵条件下,电镜观察发酵前后菜籽饼表面形态见图1。在400倍电镜观察下,发酵前的菜籽饼颗粒大,形态不规则;发酵后的菜籽饼颗粒较小,结构较松散。在3 000倍电镜观察下,发酵前的菜籽饼表面光滑平整,呈较大的片状,无小孔隙且结构较为完整;发酵后的菜籽饼表面粗糙,呈现不规则分布,孔隙较多。
图1 菜籽饼发酵前后扫描电镜图片

A:发酵前(400×);B:发酵前(3 000×);C:发酵后(400×);D:发酵后(3 000×)。

Fig.1 Scanning electron microscopy of rapeseed cake before and after fermentation

A: before fermentation (400×); B: before fermentation (3 000×); C: after fermentation (400×); D: after fermentation (3 000×).

2.5 酶菌协同发酵对菜籽饼蛋白质分子质量的影响

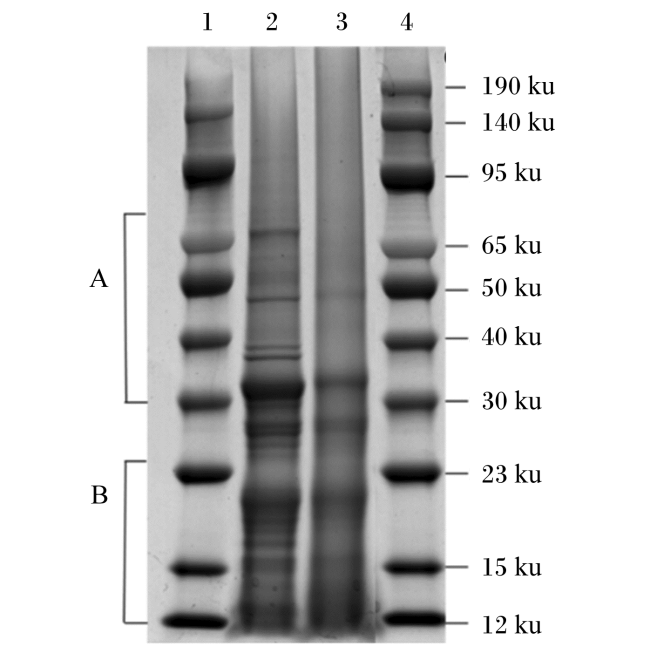
在最优配比组合酶菌协同发酵条件下,发酵前后菜籽饼的蛋白质分子质量结果见图2。A区域蛋白质分子质量为30~75 ku,B区域蛋白质分子质量为12~23 ku,发酵前菜籽饼的蛋白质在A区域分布有多个条带,发酵后菜籽饼的蛋白质主要分布在B区域。
图2 发酵前后菜籽饼的蛋白质分子质量

泳道1、4:蛋白质标准分子质量;泳道2:发酵前菜籽饼的蛋白质;泳道3:发酵后菜籽饼的蛋白质。

Fig.2 Protein molecular weight of rapeseed cake before and after fermentation

Lines 1 and 4: protein standard molecular weight; line 2: protein in rapeseed cake before fermentation; line 3: protein in rapeseed cake after fermentation.

2.6 酶菌协同发酵对不同来源菜籽饼粕养分含量的影响

在最优配比组合酶菌协同发酵条件下,对9个不同来源菜籽饼粕进行酶菌协同发酵。

2.6.1 pH及CP、TCA-SP含量

表5可知,发酵前,9个菜籽饼粕的pH在5.46~5.95,平均值为5.75;发酵后,9个菜籽饼粕的pH在3.92~4.27,平均值为4.06。9个菜籽饼粕发酵后的pH均显著低于发酵前(P<0.05),其中变化幅度最高的为菜籽饼9,降低幅度为1.98。
表5 酶菌协同发酵对不同来源菜籽饼粕pH的影响

Table 5 Effects of combination fermentation with enzyme and bacteria on pH of rapeseed cake and meal from different sources (n=3)

项目
Items
发酵前
Before fermentation
发酵后
After fermentation
变化幅度
Amplitude of variation/%
均值标准误
SEM
P
P-value
菜籽粕1 RSM1 5.66a 4.27b -1.39 0.01 0.01
菜籽粕2 RSM2 5.46a 3.92b -1.54 0.01 0.01
菜籽粕3 RSM3 5.67a 3.97b -1.70 0.01 0.02
菜籽粕4 RSM4 5.93a 4.06b -1.87 0.01 <0.01
菜籽粕5 RSM5 5.93a 4.11b -1.82 0.01 0.01
菜籽粕6 RSM6 5.83a 4.15b -1.68 0.01 0.03
菜籽粕7 RSM7 5.59a 4.02b -1.57 0.01 <0.01
菜籽粕8 RSM8 5.76a 4.08b -1.68 0.01 0.01
菜籽饼9 RSC9 5.95a 3.97b -1.98 0.01 <0.01
平均值 Mean 5.75 4.06
表6可知,发酵前,9个菜籽饼粕的CP含量在37.07%~45.56%,平均值为43.00%;发酵后,9个菜籽饼粕的CP含量在38.85%~46.15%,平均值为43.57%。菜籽粕1、3及菜籽饼9发酵后的CP含量显著高于发酵前(P<0.05)。发酵前,9个菜籽饼粕的TCA-SP含量在2.11%~3.19%,平均值为2.42%;发酵后,9个菜籽饼粕的TCA-SP含量在5.35%~6.52%,平均值为5.95%。9个菜籽饼粕发酵后的TCA-SP含量显著高于发酵前(P<0.05),其中变化幅度最高的为菜籽粕1,提高幅度为192.38%。
表6 酶菌协同发酵对不同来源菜籽饼粕CP和TCA-SP含量的影响(干物质基础)

Table 6 Effects of combination fermentation with enzyme and bacteria on CP and TCA-SP contents of rapeseed cake and meal from different sources (DM basis, n=3)%

项目
Items
发酵前
Before fermentation
发酵后
After fermentation
变化幅度
Amplitude of variation
均值标准误
SEM
P
P-value
粗蛋白质 CP
菜籽粕1 RSM1 44.63b 46.05a +3.18 0.20 0.04
菜籽粕2 RSM2 42.74 42.71 -0.07 0.47 0.97
菜籽粕3 RSM3 37.07b 38.85a +4.80 0.18 0.02
菜籽粕4 RSM4 45.56 46.15 +1.29 0.43 0.43
菜籽粕5 RSM5 44.93 44.84 -0.20 0.24 0.82
菜籽粕6 RSM6 42.78 43.35 -0.07 0.37 0.39
菜籽粕7 RSM7 43.95 44.20 +0.43 0.23 0.54
菜籽粕8 RSM8 43.99 44.28 +0.66 0.14 0.28
菜籽饼9 RSC9 41.31b 41.74a +1.04 0.06 0.04
平均值 Mean 43.00 43.57
酸溶蛋白 TCA-SP
菜籽粕1 RSM1 2.23b 6.52a +192.38 0.06 <0.01
菜籽粕2 RSM2 3.19b 5.64a +76.80 0.10 <0.01
菜籽粕3 RSM3 2.41b 6.26a +159.75 0.04 <0.01
菜籽粕4 RSM4 2.44b 5.96a +144.26 0.05 <0.01
菜籽粕5 RSM5 2.28b 5.71a +150.44 0.07 <0.01
菜籽粕6 RSM6 2.19b 5.35a +144.29 0.03 <0.01
菜籽粕7 RSM7 2.11b 5.96a +182.46 0.06 <0.01
菜籽粕8 RSM8 2.31b 6.13a +165.37 0.07 <0.01
菜籽饼9 RSC9 2.61b 6.06a +132.18 0.12 <0.01
平均值 Mean 2.42 5.95

2.6.2 NDF和Gls含量

表7可知,发酵前,9个菜籽饼粕的NDF含量在27.03%~40.39%,平均值为32.61%;发酵后,9个菜籽饼粕的NDF含量在20.62%~34.76%,平均值为26.08%。9个菜籽饼粕发酵后的NDF含量显著低于发酵前(P<0.05),其中变化幅度最高的为菜籽粕7,降低了26.00%;变化幅度最低的是菜籽饼1,降低了13.95%。
表7 酶菌协同发酵对不同来源菜籽饼粕NDF含量的影响(干物质基础)

Table 7 Effects of combination fermentation with enzyme and bacteria on NDF content of rapeseed cake and meal from different sources (DM basis, n=3)%

项目
Items
发酵前
Before fermentation
发酵后
After fermentation
变化幅度
Amplitude of variation
均值标准误
SEM
P
P-value
菜籽粕1 RSM1 31.26a 25.25b -19.22 0.26 <0.01
菜籽粕2 RSM2 40.22a 31.18b -22.48 0.23 <0.01
菜籽粕3 RSM3 32.26a 27.33b -15.29 0.23 <0.01
菜籽粕4 RSM4 27.40a 20.62b -24.74 0.06 <0.01
菜籽粕5 RSM5 27.03a 22.72b -15.95 0.62 0.04
菜籽粕6 RSM6 28.67a 23.25b -18.89 0.30 0.01
菜籽粕7 RSM7 33.45a 24.75b -26.00 0.20 <0.01
菜籽粕8 RSM8 32.79a 24.90b -24.05 0.62 0.01
菜籽饼9 RSC9 40.39a 34.76b -13.95 0.06 <0.01
平均值 Mean 32.61 26.08
表8可知,发酵前,9个菜籽饼粕的Gls含量在18.10~57.64 μmol/g,平均值为29.99 μmol/g;发酵后,9个菜籽饼粕的Gls含量在13.62~46.23 μmol/g,平均值为22.80 μmol/g。9个菜籽饼粕发酵后的Gls含量显著低于发酵前(P<0.05),其中变化幅度最高的为菜籽粕1,降低了31.30%;变化幅度最低的是菜籽粕4,降低了16.20%。
表8 酶菌协同发酵对不同来源菜籽饼粕Gls含量的影响(干物质基础)

Table 8 Effects of combination fermentation with enzyme and bacteria on Gls content of rapeseed cake and meal from different sources (DM basis, n=3)

项目
Items
发酵前
Before fermentation/
(μmol/g)
发酵后
After fermentation/
(μmol/g)
变化幅度
Amplitude of variation/%
均值标准误
SEM
P
P-value
菜籽粕1 RSM1 22.43a 15.41b -31.30 0.70 0.02
菜籽粕2 RSM2 57.64a 46.23b -19.80 1.15 0.02
菜籽粕3 RSM3 37.89a 28.74b -24.15 0.95 0.03
菜籽粕4 RSM4 30.43a 25.50b -16.20 0.59 0.03
菜籽粕5 RSM5 26.65a 19.86b -25.48 0.18 <0.01
菜籽粕6 RSM6 18.10a 13.73b -24.14 0.89 0.04
菜籽粕7 RSM7 30.89a 22.20b -28.13 0.14 <0.01
菜籽粕8 RSM8 27.03a 19.93b -26.27 0.18 <0.01
菜籽饼9 RSC9 18.81a 13.62b -27.59 0.48 0.02
平均值 Mean 29.99 22.80

3 讨论

3.1 酶菌协同发酵对菜籽饼pH、化学成分及氨基酸含量的影响

本试验前期工作中发现,混菌发酵菜籽饼对NDF降解作用较小,部分处理出现NDF含量升高的现象,这可能是由于寡糖及Gls含量的降低所形成的“浓缩效应”[26];也可能是发酵后产生中性不溶洗涤物或酸性洗涤不溶物等,使NDF的表征值被高估了[27]。针对这一结果,本试验在混菌发酵体系中加了纤维素酶、果胶酶和α-半乳糖苷酶,采用酶菌协同发酵的方式,结果发现,NDF降解率、TCA-SP增加率及总变化率在纤维素酶、果胶酶和α-半乳糖苷酶添加量分别为60、60和10 U/g时最高,分别为18.25%、175.72%和60.12%。Zhu等[28]研究发现,用非淀粉多糖酶前处理再进行乳酸菌发酵,菜籽粕的NDF、ADF及半纤维素含量显著降低,而乳酸菌单独发酵后其含量没有显著变化。王卫卫[29]筛选出的可降解羧甲基纤维素钠的枯草芽孢杆菌,发酵后对棕榈仁粕纤维降解效果较小,在进行酶菌协同发酵后可显著降低棕榈仁粕的纤维含量。本试验结果与上述研究结果相近。
本试验在最优配比组合酶菌协同发酵条件下进行酶菌协同发酵菜籽饼后,菜籽饼发酵后pH显著低于发酵前,CP含量显著高于发酵前。在菜籽饼发酵过程中微生物利用底物中的养分并形成菌体蛋白,并将菜籽饼中大分子蛋白质分解为小肽,也因“浓缩效应”使得发酵后CP含量升高。酶菌协同发酵菜籽饼后TCA-SP增加率为175.72%,TCA-SP主要是由氨基酸残基组成的寡肽,动物吸收寡肽的能力要高于游离的氨基酸[30]。本试验结果表明,酶菌协同发酵菜籽饼的纤维(NDF、ADF和半纤维素)含量均降低,这与Zhu等[28]的报道相似。酶菌协同发酵后Gls降解率为60.12%,表明所用菌株对Gls有较强的降解能力。朱晓峰等[11]用乳酸杆菌发酵后,菜籽粕Gls含量降低了43.43%。郝怡宁等[31]用枯草芽孢杆菌和雅致放射毛霉发酵后,菜籽粕Gls含量降低了45.26%。本试验所用菌株降解Gls能力高于上述文献菌株。
与豆粕相比,菜籽饼的氨基酸消化率较差[32]。本试验结果显示,菜籽饼总氨基酸含量较发酵前显著提高,但各氨基酸组成及含量变动较小。在郝怡宁等[31]的报道中,菜籽粕发酵3 d时总氨基酸含量显著高于未发酵时,然而,发酵5 d后各氨基酸及总氨基酸含量出现下降的趋势。本试验中,氨基酸含量的变化可能受到菌株及发酵时间的影响,在发酵过程中的具体变化趋势还需要进一步进行探讨。

3.2 酶菌协同发酵对菜籽饼表面结构和蛋白质分子质量的影响

扫描电镜结果表明,发酵前菜籽饼颗粒大形态不规则,经酶菌协同发酵后,颗粒变小,表面粗糙出现凹凸不平的孔状。这与Shi等[17]利用黑曲霉发酵菜籽粕的结果一致。菜籽饼完整细胞壁上的纤维网状结构会保护其他养分如蛋白质和多糖免于被降解或转化[33],当对菜籽饼进行堆肥发酵后,其纤维素网状结构大部分被破坏[34]。本试验结果显示,酶菌协同发酵后菜籽饼表面结构被破坏,使得表面积增加,在畜禽采食后,增加了肠道消化酶接触饲料的面积,更有利于消化饲料。
菜籽蛋白主要有2种类别,主要是大分子的12S球蛋白(α亚基和β亚基)和小分子的2S白蛋白,其中12S球蛋白的分子质量在30~60 ku,2S白蛋白分子质量约为6、12和21 ku[18]。本试验结果显示,未发酵菜籽饼主要为30~75 ku的大分子蛋白质,而酶菌协同发酵增加了小分子肽(<15 ku)的分布,这表明酶菌协同发酵在一定程度上将大分子蛋白质分解为小分子肽,进而增加菜籽饼小肽含量,这与Shi等[17]研究结果相似。与大分子蛋白质相比,小分子肽更易被家禽肠道所捕获吸收[18],有利于提高饲料养分消化率。

3.3 酶菌协同发酵对不同来源菜籽饼粕养分含量的影响

与豆粕相比,菜籽饼粕的纤维含量较高,含有Gls等抗营养因子,极大限制了菜籽饼粕在畜禽中的应用。而不同菜籽饼粕的营养价值与养分消化率因来源不同、榨油工艺不同而有差异[35]。油菜籽加工副产物可根据加工方式的不同分为高温热榨菜籽饼、低温冷榨菜籽饼以及压饼后浸提的菜籽粕,不同榨油过程中的温度处理生产的菜籽饼粕的养分和抗营养因子含量均有所不同[16]。Toghyani等[36]研究发现,菜籽粕NDF含量与肉鸡代谢能之间存在极显著的负相关关系。Eklund等[37]研究发现,猪的标准回肠氨基酸消化率随着菜籽粕中NDF等纤维含量的升高而显著降低。因此,提高菜籽饼粕的可消化蛋白质含量,降低Gls及纤维含量,是提高菜籽饼粕营养价值的重要手段。
本试验通过酶菌协同发酵,发现对9个不同来源的菜籽饼粕养分含量均有一定的改善作用。经过酶菌协同发酵后,菜籽饼粕的pH均显著降低。pH的降低可提高畜禽肠道内胃蛋白酶的活性,从而促进对养分的消化吸收[38]。经过酶菌协同发酵后,9个菜籽饼粕的CP含量略有升高,提高的幅度非常有限,在1%左右,说明本试验酶菌协同发酵改善菜籽饼粕的营养价值,对CP含量的提高并不明显,而发酵体系蛋白质含量的变化可能与菌体蛋白的产生有关。菌体蛋白产生量与发酵菌种有关,Wang等[18]利用乳酸菌和地衣芽孢杆菌发酵菜籽粕,CP含量提高了12.09%;Shi等[17]用黑曲霉发酵菜籽粕后,CP含量提高了16.90%。本试验采用的枯草芽孢杆菌具有分泌酸性蛋白酶的活性,可促进饲料大分子蛋白质的进一步降解,这与蛋白质分子质量的结果相一致的。本试验测定的9个菜籽饼粕的TCA-SP含量均有大幅度的提高,表明酶菌协同发酵对TCA-SP含量有明显的提高作用。如前所述,TCA-SP主要是由氨基酸残基组成的寡肽,动物吸收寡肽的能力要高于游离的氨基酸[30]。Tie等[20]研究发现,菜籽粕经蛋白酶酶解及黑曲霉发酵后TCA-SP含量增加了629.66%。本试验结果与上述结果相似。
菜籽饼粕的纤维含量高于豆粕3倍以上[39],且饲料原料纤维含量与代谢能存在负相关[36]。与饲喂玉米-豆粕基础饲粮相比,饲喂菜籽饼粕原料的肉鸡代谢能呈线性下降。相对较低的代谢能是限制菜籽饼粕在肉鸡中饲喂效果的主要因素,这通常与纤维含量高有关。本试验中,经过酶菌协同发酵后,9个菜籽饼粕的NDF含量均显著降低,表明本试验选用混合微生物并联合使用适宜的非淀粉多糖酶,均有一定降解9个不同来源菜籽饼粕NDF的效果。植物源性细胞壁结构错综复杂,纤维互相缠绕形成坚固的网状结构[4],而菜籽饼粕纤维主要是难以被家禽利用的结构性多糖[40],这种纤维网状结构会将蛋白质及淀粉等可消化养分进行包裹,不容易被分解利用[34]。而非淀粉多糖酶结合微生物进行酶菌协同发酵可对菜籽饼粕中纤维等抗营养因子或大分子结构更具针对性和特异性,这种策略延长了酶与底物的接触与作用时间,能同时提高微生物发酵效果和酶解的效率。有研究表明,细胞壁的纤维网状结构在纤维素酶、果胶酶的相互作用下得以打开并降解[41],此时微生物进入细胞内部发挥作用,将大分子化合物转变为小肽等小分子化合物,并利用纤维降解产生的可溶性糖转化为乳酸等代谢产物[42]。朱晓峰等[11]报道了在纤维素酶及果胶酶的酶解作用下,菜籽粕的NDF含量由38.12%降至18.68%;王卫卫[29]研究发现,用甘露聚糖、α-半乳糖苷酶协同植物乳杆菌和酵母菌发酵可显著降低棕榈仁粕的NDF含量,本试验结果与上述研究结果相似。
菜籽饼粕中的Gls可在芥子酶作用下分解为硫氰酸酯、异硫氰酸酯、噁唑烷硫酮及氰类化合物,可引起甲状腺肿,导致生长迟缓,故降低了畜禽生长性能[7]。本试验中,经过酶菌协同发酵后,9个菜籽饼粕的Gls含量显著降低。降低菜籽饼粕中抗营养因子Gls的含量,是双低菜籽饼粕育种技术的目标[39],也是采用发酵技术改善菜籽饼粕营养价值的主要目标之一[8],如利用枯草芽孢杆菌与毛菌混合发酵降解Gls[31],利用乳酸菌、酵母菌、地衣芽孢杆菌混合发降解Gls[18]。Gls含量的降低缓解了其对畜禽肠道、肝脏及甲状腺的损伤,进而提高畜禽对养分的消化吸收能力。此外,Gls含量的高低与生物发酵菌种有关,本试验结果表明选用酶菌协同发酵不同来源的菜籽饼粕,均可以起到降解Gls的效果。

4 结论

① 在混菌固态发酵体系中加入纤维素酶、果胶酶和α-半乳糖苷酶,添加量分别为60、60、10 U/g,发酵体系菜籽饼Gls降解率为60.12%,TCA-SP增加率为175.72%,NDF降解率为18.25%,总变化率为48.15%。
② 酶菌协同发酵改变了菜籽饼的表面结构和蛋白质结构,使蛋白质分子质量变小。
③ 酶菌协同发酵降低了不同来源菜籽饼粕中NDF、Gls含量,增加了TCA-SP含量,改善了菜籽饼粕的营养价值。
[1]
OLUKOMAIYA O, FERNANDO C, MEREDDY R, et al. Solid-state fermented plant protein sources in the diets of broiler chickens:a review[J]. Animal Nutrition, 2019, 5(4):319-330.

DOI

[2]
LI Z C, LI Y K, LV Z Q, et al. Net energy of corn,soybean meal and rapeseed meal in growing pigs[J]. Journal of Animal Science and Biotechnology, 2017, 8:44.

DOI

[3]
LI P L, CHEN Y F, LYU Z Q, et al. Concentration of metabolizable energy and digestibility of amino acids in Chinese produced dehulled double-low rapeseed expellers and non-dehulled double-low rapeseed co-products fed to growing-finishing pigs[J]. Animal Feed Science and Technology, 2017, 234:10-19.

DOI

[4]
LONG C, QI X L, VENEMA K. Chemical and nutritional characteristics,and microbial degradation of rapeseed meal recalcitrant carbohydrates:a review[J]. Frontiers in Nutrition, 2022, 9:948302.

DOI

[5]
HARIBHAU G A, VIJAYA LAKSHMI K, ALEXANDER G, et al. Effect of supplementation of multiple enzymes to the diets containing variable protein sources on performance and nutrient utilization in commercial broilers[J]. Tropical Animal Health and Production, 2020, 52(4):1739-1744.

DOI PMID

[6]
PUSTJENS A M, DE VRIES S, SCHOLS H A, et al. Understanding carbohydrate structures fermented or resistant to fermentation in broilers fed rapeseed (Brassica napus) meal to evaluate the effect of acid treatment and enzyme addition[J]. Poultry Science, 2014, 93(4):926-934.

DOI PMID

[7]
SHI C Y, HE J, WANG J P, et al. Effects of Aspergillus niger fermented rapeseed meal on nutrient digestibility,growth performance and serum parameters in growing pigs[J]. Animal Science Journal, 2016, 87(4):557-563.

DOI

[8]
ZENTEK J, GOODARZI BOROOJENI F. Technological processing of poultry and pig feed:impact on the composition,digestibility,anti-nutritional factors and hygiene[J]. Animal Feed Science and Technology, 2020, 268:114576.

DOI

[9]
CROAT J R, BERHOW M, KARKI B, et al. Conversion of canola meal into a high-protein feed additive via solid-state fungal incubation process[J]. Journal of the American Oil Chemists’ Society, 2016, 93(4):499-507.

DOI

[10]
OLUKOMAIYA O O, FERNANDO W C, MEREDDY R, et al. Solid-state fermentation of canola meal with Aspergillus sojae,Aspergillus ficuum and their co-cultures:effects on physicochemical,microbiological and functional properties[J]. Animal Feed Science and Technology, 2020, 127:109362.

[11]
朱晓峰, 张桢, 丁立人, 等. 响应面法优化菜籽粕的酶解条件[J]. 动物营养学报, 2021, 33(3):1708-1715.

DOI

ZHU X F, ZHANG Z, DING L R, et al. Optimization of enzymatic hydrolysis conditions of rapeseed meal by response surface method[J]. Chinese Journal of Animal Nutrition, 2021, 33(3):1708-1715. (in Chinese)

[12]
LONG C, RÖSCH C, DE VRIES S, et al. Cellulase and alkaline treatment improve intestinal microbial degradation of recalcitrant fibers of rapeseed meal in pigs[J]. Journal of Agricultural and Food Chemistry, 2020, 68(39):11011-11025.

DOI PMID

[13]
GOODARZI B F, SENZ M, KOZŁOWSKI K, et al. The effects of fermentation and enzymatic treatment of pea on nutrient digestibility and growth performance of broilers[J]. Animal, 2017, 11(10):1698-1707.

DOI PMID

[14]
GOODARZI B F, MÄNNER K, BOROS D, et al. Spontaneous and enzymatic fermentation of rapeseed cake for broiler nutrition[J]. Animal Feed Science and Technology, 2022, 284:115135.

DOI

[15]
于爽. 不同来源菜籽粕的肉鸭代谢能评定及蛋白酶对其能值的影响研究[D].硕士学位论文. 雅安: 四川农业大学, 2020.

YU S. Study on the evaluation of metabolizable energy of rapeseed meal from different sources and effect of protease on its energy value in meat duck[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2020. (in Chinese)

[16]
张泽宇. 菜籽饼粕硫苷含量对猪消化代谢能的影响[D].硕士学位论文. 北京: 中国农业大学, 2019.

ZHANG Z Y. Effect of thioglycoside content in rapeseed meal on digestible and metabolizable energy of pigs[D].Master’s Thesis. Beijing: China Agricultural University, 2019. (in Chinese)

[17]
SHI C Y, HE J, YU J, et al. Physicochemical properties analysis and secretome of Aspergillus niger in fermented rapeseed meal[J]. PLoS One, 2016, 11(4):e0153230.

DOI

[18]
WANG Y, LIU J, WEI F H, et al. Improvement of the nutritional value,sensory properties and bioavailability of rapeseed meal fermented with mixed microorganisms[J]. LWT-Food Science and Technology, 2019, 112:108238.

DOI

[19]
WANG Y, SUN H, HAN B, et al. Improvement of nutritional value,molecular weight patterns (soluble peptides),free amino acid patterns,total phenolics and antioxidant activity of fermented extrusion pretreatment rapeseed meal with Bacillus subtilis YY-1 and Saccharomyces cerevisiae YY-2[J]. LWT-Food Science and Technology, 2022, 160:113280.

DOI

[20]
TIE Y, LI L, LIU J, et al. Two-step biological approach for treatment of rapeseed meal[J]. Journal of Food Science, 2020, 85(2):340-348.

DOI PMID

[21]
WANG X S, JIN Q Z, WANG T, et al. Screening of glucosinolate-degrading strains and its application in improving the quality of rapeseed meal[J]. Annals of Microbiology, 2012, 62(3):1013-1020.

DOI

[22]
中华人民共和国农业农村部. 饲料原料中酸溶蛋白测定:NY/T 3801—2020[S]. 北京: 中国农业出版社, 2020.

Ministry of Agriculture and Rural Affairs of the People’s Republic of China. Determination of acid-soluble protein in feed materials:NY/T 3801—2020[S]. Beijing: China Agriculture Press, 2020. (in Chinese)

[23]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料中中性洗涤纤维(NDF)的测定:GB/T 20806—2006[S]. 北京: 中国标准出版社, 2006.

General Administration of Quality Supervision, Inspection and Quarantine of the People’s Republic of China, Standardization Administration of the People’s Republic of China. Determination of neutral detergent fiber in feedstuffs:GB/T 20806—2006[S]. Beijing: Standards Press of China, 2006. (in Chinese)

[24]
中华人民共和国农业部. 饲料中酸性洗涤纤维的测定:NY/T 1459—2007[S]. 北京: 中国农业出版社, 2007.

The Ministry of Agriculture of the People’s Republic of China. Determination of acid detergent fiber in feedstuff (ADF):NY/T 1459—2007[S]. Beijing: China Agriculture Press, 2007. (in Chinese)

[25]
程友飞. 微生物固态发酵豆粕及其致敏性研究[D].硕士学位论文. 南昌: 南昌大学, 2016.

CHENG Y F. Study on the preparation and allergenicity of soybean meal by microbial solid state fermentation[D].Master’s Thesis. Nanchang: Nanchang University, 2016. (in Chinese)

[26]
CROAT J R. Increasing the nutritional value of canola meal via fungal bioprocessing[D].Master’s Thesis. Brookings: South Dakota State University, 2015.

[27]
RAMLI M N, IMURA Y, TAKAYAMA K, et al. Bioconversion of sugarcane bagasse with Japanese koji by solid-state fermentation and its effects on nutritive value and preference in goats[J]. Asian-Australasian Journal of Animal Sciences, 2005, 18(9):1279-1284.

DOI

[28]
ZHU X F, WANG L Y, ZHANG Z, et al. Combination of fiber-degrading enzymatic hydrolysis and Lactobacilli fermentation enhances utilization of fiber and protein in rapeseed meal as revealed in simulated pig digestion and fermentation in vitro[J]. Animal Feed Science and Technology, 2021, 278:115001.

DOI

[29]
王卫卫. 菌酶协同处理棕榈仁粕及其对肉鸡生长影响机理研究[D].博士学位论文. 北京: 中国农业科学院, 2021.

WANG W W. Study on palm kernel cake fermented with bacteria and enzyme and its mechanism on improving growth performance of broilers[D].Ph.D.Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2021. (in Chinese)

[30]
ANWAR M N, RAVINDRAN V, MOREL P C H, et al. Measurement of the true ileal calcium digestibility of some feed ingredients for broiler chickens[J]. Animal Feed Science and Technology, 2018, 237:118-128.

DOI

[31]
郝怡宁, 王志高, 何荣, 等. 混菌静态发酵改善双低菜籽粕品质[J]. 中国农业科学, 2020, 53(10):2066-2077.

DOI

HAO Y N, WANG Z G, HE R, et al. Quality improvement of rapeseed meal based on static-state fermented with mixed microorganisms[J]. Scientia Agricultura Sinica, 2020, 53(10):2066-2077. (in Chinese)

DOI

[32]
HANSEN J Ø, SKREDE A, MYDLAND L T, et al. Fractionation of rapeseed meal by milling,sieving and air classification-effect on crude protein,amino acids and fiber content and digestibility[J]. Animal Feed Science and Technology, 2017, 230:143-153.

DOI

[33]
WANG L P, SHEN Q R, YU G H, et al. Fate of biopolymers during rapeseed meal and wheat bran composting as studied by two-dimensional correlation spectroscopy in combination with multiple fluorescence labeling techniques[J]. Bioresource Technology, 2012, 105:88-94.

DOI

[34]
EBRAHIMI S R, NIKKHAH A, SADEGHI A A, et al. Chemical composition,secondary compounds,ruminal degradation and in vitro crude protein digestibility of gamma irradiated canola seed[J]. Animal Feed Science and Technology, 2009, 151(3/4):184-193.

DOI

[35]
OLUKOSI O A, KASPRZAK M M, KIGHTLEY S, et al. Investigations of the nutritive value of meals of double-low rapeseed and its influence on growth performance of broiler chickens[J]. Poultry Science, 2017, 96(9):3338-3350.

DOI PMID

[36]
TOGHYANI M, RODGERS N, BAREKATAIN M R, et al. Apparent metabolizable energy value of expeller-extracted canola meal subjected to different processing conditions for growing broiler chickens[J]. Poultry Science, 2014, 93(9):2227-2236.

DOI PMID

[37]
EKLUND M, SAUER N, SCHÖNE F, et al. Effect of processing of rapeseed under defined conditions in a pilot plant on chemical composition and standardized ileal amino acid digestibility in rapeseed meal for pigs[J]. Journal of Animal Science, 2015, 93(6):2813-2825.

DOI PMID

[38]
吴正可. 多菌种固态发酵菜籽粕的工艺优化及其对肉鸡的饲用价值评定[D].硕士学位论文. 北京: 中国农业科学院, 2018.

WU Z K. Study on the multi-strain solid fermenting process of rapeseed meal and its feeding value for broilers[D].Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2018. (in Chinese)

[39]
李培丽. 双低菜籽饼的猪有效能和氨基酸消化率研究[D].博士学位论文. 北京: 中国农业大学, 2018.

LI P L. Study on available energy and amino acids digestibility of double-low rapeseed cakes for pigs[D].Ph.D.Thesis Beijing: China Agricultural University, 2018. (in Chinese)

[40]
CARRÉ P, CITEAU M, ROBIN G, et al. Hull content and chemical composition of whole seeds,hulls and germs in cultivars of rapeseed (Brassica napus)[J]. OCL, 2016, 23(3):A302.

DOI

[41]
BERLIN A, MAXIMENKO V, GILKES N, et al. Optimization of enzyme complexes for lignocellulose hydrolysis[J]. Biotechnology and Bioengineering, 2007, 97(2):287-296.

PMID

[42]
LIU Q H, LI X Y, DESTA S T, et al. Effects of Lactobacillus plantarum and fibrolytic enzyme on the fermentation quality and in vitro digestibility of total mixed rations silage including rape straw[J]. Journal of Integrative Agriculture, 2016, 15(9):2087-2096.

DOI

文章导航

/