研究论文

固态发酵饲料工艺优化及抗营养因子降解效果研究

  • 陈诗宇 ,
  • 茶光辉 ,
  • 李吉琴 ,
  • 梅会友 ,
  • 展丽梅 ,
  • 鲍国樱 ,
  • 徐乐 ,
  • 曹振辉 , **
展开
  • 云南农业大学动物科学技术学院,昆明 650201
**曹振辉,教授,博士生导师,E-mail:

*同等贡献作者

陈诗宇(2000—),男,四川宜宾人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 武海龙

收稿日期: 2023-05-03

  网络出版日期: 2023-10-12

基金资助

云南省中青年学术和技术带头人后备人才(202305AC160040)

云南省宣威市宣和猪产业科技特派团"项目(202104BI090022)

Study on Optimization of Solid-State Fermentation Feed Process and Degradation Effects of Anti-Nutritional Factor

  • CHEN Shiyu ,
  • CHA Guanghui ,
  • LI Jiqin ,
  • MEI Huiyou ,
  • ZHAN Limei ,
  • BAO Guoying ,
  • XU Le ,
  • CAO Zhenhui , **
Expand
  • College of Animal Science and Technology, Yunnan Agricultural University, Kunming 650201, China
**professor, E-mail:

*Contributed equally

Received date: 2023-05-03

  Online published: 2023-10-12

摘要

本研究旨在对黑曲霉和乳酸杆菌(植物乳杆菌和发酵乳杆菌)二段固态发酵大豆皮和菜籽饼工艺条件进行优化,并对其发酵前后营养物质和抗营养因子含量变化进行研究。采用单因素试验设计,以发酵产物中还原糖含量为指标,筛选出黑曲霉发酵阶段适宜的发酵温度、料液比、发酵时间、大豆皮和菜籽饼原料比例和接种量,并通过四因素三水平(L934)正交试验探究料液比、发酵时间、大豆皮和菜籽饼原料比例和接种量对黑曲霉发酵产物中还原糖含量的影响。在黑曲霉固态发酵的最佳工艺基础上,采用单因素试验设计,以发酵产物中乳酸杆菌活菌数为指标,探究乳酸杆菌发酵阶段适宜的发酵时间、发酵温度、接种量和尿素添加量,并通过四因素三水平(L934)正交试验探究发酵时间、发酵温度、接种量和尿素添加量对乳酸杆菌发酵产物中乳酸杆菌活菌数的影响。结果表明:黑曲霉最优发酵工艺为发酵温度35℃,料液比1.0∶2.8 g/mL,发酵时间60 h,大豆皮和菜籽饼原料比例2∶1,接种量5×10⁷ CFU/g。乳酸杆菌最优发酵工艺为发酵温度35 ℃,发酵时间60 h,接种量5×10⁶ CFU/g,尿素添加量1.0%。经黑曲霉和乳酸杆菌二段固态发酵后,发酵产物中粗蛋白质、粗脂肪、粗灰分含量较发酵前均显著增加(P<0.05),粗纤维、大豆球蛋白、β-伴大豆球蛋白、硫代葡萄糖苷和单宁含量较发酵前均显著降低(P<0.05)。由此可见,黑曲霉和乳酸杆菌(植物乳杆菌和发酵乳杆菌)二段固态发酵可提高大豆皮和菜籽饼饲用价值。

本文引用格式

陈诗宇 , 茶光辉 , 李吉琴 , 梅会友 , 展丽梅 , 鲍国樱 , 徐乐 , 曹振辉 . 固态发酵饲料工艺优化及抗营养因子降解效果研究[J]. 动物营养学报, 2023 , 35(10) : 6787 -6800 . DOI: 10.12418/CJAN2023.618

Abstract

This study aims to optimize the two-stage solid-state fermentation process of soybean hulls and rapeseed cake using Aspergillus niger and Lactobicillus (Lactobacillus plantarum and Lactobacillus fermentum), and investigate the changes in nutrient and anti-nutritional factor contents before and after fermentation. A single-factor experimental design was adopted, using the reducing sugar content in fermentation product as an indicator to screen the optimal fermentation temperature, solid to liquid ratio, fermentation time, soybean hulls and rapeseed cake raw material ratio and inoculation quantity in the Aspergillus niger fermentation stage, and a four-factor three-level (L934) orthogonal experiment was used to explore the effects of solid to liquid ratio, fermentation time, soybean hulls and rapeseed cake raw material ratio and inoculation quantity on the reducing sugar content in Aspergillus niger fermentation product. Based on the optimal Aspergillus niger fermentation process, a single-factor experimental design was adopted, using the Lactobicillus viable count in fermentation product as an indicator to explore the optimal fermentation time, fermentation temperature, inoculation quantity and urea addition in the Lactobicillus fermentation stage, and a four-factor, three-level (L934) orthogonal experiment was used to investigate the effects of the fermentation time, fermentation temperature, inoculation quantity and urea addition on the Lactobicillus viable count in Lactobicillus fermentation product. The results showed that the optimal fermentation conditions for Aspergillus niger were: fermentation temperature was 35 ℃, solid to liquid ratio was 1.0∶2.8 g/mL, fermentation time was 60 h, soybean hulls and rapeseed cake raw material ratio was 2.0∶1.0, and inoculation quantity was 5×10⁷ CFU/g. The optimal fermentation conditions for Lactobicillus were: fermentation temperature was 35 ℃, fermentation time was 60 h, inoculation quantity of 5×10⁶ CFU/g, and urea addition was 1.0%. After two-stage solid-state fermentation with Aspergillus niger and Lactobicillus, the contents of crude protein, crude fat and crude ash in the fermentation product were significantly increased compared with before fermentation (P<0.05), while the contents of crude fiber, glycinin, β-conglycinin, glucosinolates and tannins were significantly decreased compared with before fermentation (P<0.05). In conclusion, two-stage solid-state fermentation with Aspergillus niger and Lactobicillus (Lactobacillus plantarum and Lactobacillus fermentum) can improve the feed value of soybean hulls and rapeseed cake.

我国是畜牧业大国,肉蛋产量已连续多年位居世界第一。但我国饲料配方以玉米-豆粕型为主,随着畜牧业的持续快速发展,人畜争粮矛盾日益突出[1]。为缓解饲料原料缺口,保障我国粮食安全,农业农村部于2021年3月推出《饲料中玉米豆粕减量替代工作方案》,以期广辟饲料原料来源,减少玉米、大豆的供应压力。同时我国非常规饲料资源丰富,但因其具有适口性差、营养价值低和含有抗营养因子等特点,非常规饲料资源利用率较低。因此,加大对非常规饲料资源的开发及利用,是保证养殖业持续发展的关键因素。大豆皮是大豆加工的副产物,属于非常规饲料资源,其富含膳食纤维,可替代部分能量饲料,但含有胰蛋白酶抑制因子、大豆球蛋白和β-伴大豆球白等抗营养因子,易引起动物过敏和腹泻[2-3]。菜籽饼必需氨基酸较为平衡,是目前常用的饲料资源[4],但其含有硫代葡萄糖苷、植酸和单宁等抗营养因子[5],易降低饲料适口性,损害畜禽肝脏和肾脏功能[6]。上述因素限制了大豆皮和菜籽饼在畜禽饲粮中的应用。
近年来,利用微生物固态发酵技术提高非常规饲料资源利用价值的研究逐渐引起人们的关注。微生物固态发酵是指在没有自由水或自由水含量很低的条件下在固体原料中接入微生物菌种进行发酵培养的过程,其能通过有益微生物产生的一系列酶降解饲料原料中抗营养因子和生物大分子物质,提高饲料原料营养价值[7]。此外,有益微生物定殖于肠道后能显著提高动物免疫功能,抑制病原微生物增殖,从而维护动物健康[8-9]。利用微生物固态发酵技术生产发酵饲料具有能耗低、成本低和污染物排放低等优点。但微生物固态发酵生产效率受温度、料液比、时间等多因素制约,每个因素对于最优工艺的开发和经济可行性都至关重要[10]。因此,为提高大豆皮和菜籽饼的营养价值,本试验拟先利用黑曲霉(Aspergillus niger)对大豆皮和菜籽饼进行有氧发酵,在此基础上再利用发酵乳杆菌(Lactobacillus fermentum)和植物乳杆菌(Lactobacillus plantarum)进行二段厌氧发酵,通过单因素试验与正交试验探究最优二段固态发酵工艺,并对比发酵前后营养成分和抗营养因子含量变化,其最优发酵工艺可为非常规饲料原料的开发提供一些理论依据。

1 材料与方法

1.1 试验材料与菌种

大豆皮和菜籽饼:均从市场购得,65 ℃烘干制成风干样并粉碎过40目筛。
无菌水:蒸馏水分装,121 ℃灭菌20 min。
黑曲霉、植物乳杆菌和发酵乳杆菌:均为本实验室分离所得。

1.2 主要试剂与仪器

沙氏葡萄糖琼脂(SDA)培养基:蛋白胨10 g,葡萄糖40 g,加入蒸馏水1 000 mL,121 ℃灭菌20 min。
MRS培养基:蛋白胨10 g,酵母膏粉4 g,无水乙酸纳5 g,吐温80 1 mL,硫酸镁0.2 g,牛肉膏粉5 g,葡萄糖20 g,磷酸氢二钾2 g,硫酸锰0.05 g,加入蒸馏水1 000 mL,121 ℃灭菌20 min。
马铃薯葡萄糖琼脂(PDA)培养基、LB培养基购自广东环凯生物科技有限公司;琼脂购自广东环凯生物科技有限公司;结晶紫中性红胆盐葡萄糖琼脂(VRBGA)培养基购自Solarbio公司;志贺氏菌增菌肉汤-新生霉素、木糖赖氨酸脱氧胆盐琼脂(XLD)培养基购自青岛海博生物技术有限公司;大豆球蛋白、β-伴大豆球蛋白、胰蛋白酶抑制因子、硫代葡萄糖苷检测酶联免疫吸附测定(ELISA)试剂盒购自上海酶联生物科技有限公司。其余试剂均为分析纯。
主要仪器:凯氏定氮仪(UDK-159)、分光光度计(UV-5100)、高速低温离心机(ThermoFisher ST-16R)、涡旋混合器(SCILOGEX MX-S)等。

1.3 试验设计和方法

1.3.1 种子液的制备

取100 μL冻存的黑曲霉孢子液接种到50 mL SDA液体培养基中,在37 ℃、100 r/min恒温摇床中培养24 h,将培养好的菌丝接种到SDA斜面培养基,37 ℃培养48 h,使用无菌生理盐水冲刷孢子,并收集菌液,制得黑曲霉孢子液。
取100 μL冻存的植物乳杆菌菌液接种到10 mL MRS液体培养基中,37 ℃复苏8 h后,移取100 μL复苏后菌液于10 mL MRS液体培养基中,37 ℃活化16 h,再移取100 μL活化后菌液于10 mL MRS液体培养基中,37 ℃扩大培养8 h后,5 000 r/min离心10 min,倒掉上层培养基,加入无菌生理盐水后混匀,制得植物乳杆菌菌液。发酵乳杆菌菌液制备方法同上。用无菌水调整以上菌液浓度,备用。

1.3.2 黑曲霉固态发酵大豆皮和菜籽饼工艺优化

1.3.2.1 单因素试验

以大豆皮和菜籽饼原料比例(3∶1、2∶1、1∶1、1∶2和1∶3)、料液比(1.0∶1.2、1.0∶1.6、1.0∶2.0、1.0∶2.4和1.0∶2.8 g/mL)、接种量(5×104、5×105、5×106、5×107和5×108 CFU/g)、发酵时间(24、36、48、60和72 h)和发酵温度(33、35、37、39和41 ℃)5个因素为研究对象,进行单因素试验,以发酵产物中还原糖含量为指标,研究单个因素对黑曲霉固态发酵大豆皮和菜籽饼还原糖含量的影响。

1.3.2.2 正交试验

为确定黑曲霉固态发酵大豆皮和菜籽饼的最佳工艺,在确定最佳发酵温度为35 ℃的条件下,在单因素试验的基础上,以还原糖含量为指标设计四因素三水平(L934)正交试验。每个水平设计3个重复。正交试验设计见表1
表1 黑曲霉固态发酵大豆皮和菜籽饼工艺的正交试验设计

Table 1 Orthogonal experimental design of Aspergillus niger solid-state fermentation of soybean hull and rapeseed cake

水平
Levels
因素 Factors
大豆皮和菜籽饼原料比例
Soybean hull to rapeseed
cake raw materials ratio (A)
料液比
Solid to liquid
ratio/(g/mL) (B)
接种量
Inoculation quantity/
(CFU/g) (C)
发酵时间
Fermentation
time/h (D)
1 2∶1 1.0∶2.0 5×10⁶ 36
2 1∶1 1.0∶2.4 5×10⁷ 48
3 1∶2 1.0∶2.8 5×10⁸ 60

1.3.3 乳酸杆菌固态发酵大豆皮和菜籽饼工艺优化

1.3.3.1 单因素试验

在黑曲霉固态发酵大豆皮和菜籽饼的最佳工艺基础上,以尿素添加量(0、0.5%、1.0%、1.5%、2.0%)、接种量(5×10⁴、5×10⁵、5×10⁶、5×10⁷和5×10⁸ CFU/g)、发酵温度(33、35、37、39和41 ℃)、发酵时间(24、36、48、60和72 h)4个因素为研究对象,分别对植物乳杆菌和发酵乳杆菌进行单因素试验,以发酵产物中乳酸杆菌活菌数为指标,研究单个因素对乳酸杆菌固态发酵大豆皮和菜籽饼乳酸杆菌活菌数的影响。

1.3.3.2 正交试验

在黑曲霉固态发酵大豆皮和菜籽饼的最佳工艺基础上,将植物乳杆菌和发酵乳杆菌等比例混合,并在单因素试验的基础上,以乳酸杆菌活菌数为指标设计四因素三水平(L934)正交试验。每个水平设计3个重复。正交试验设计见表2
表2 乳酸杆菌固态发酵大豆皮和菜籽饼工艺的正交试验设计

Table 2 Orthogonal experimental design of Lactobacillus solid-state fermentation of soybean hull and rapeseed cake

水平
Levels
因素 Factors
尿素添加量
Urea addition/% (A)
接种量
Inoculation quantity/
(CFU/g) (B)
发酵温度
Fermentation
temperature/℃ (C)
发酵时间
Fermentation
time/h (D)
1 0.5 5×10⁵ 33 36
2 1.0 5×10⁶ 35 48
3 1.5 5×10⁷ 37 60

1.4 测定指标与方法

1.4.1 还原糖含量、乳酸杆菌活菌数及常规营养物质含量的测定

还原糖含量的测定参照刘建玲[11]的方法;乳酸杆菌活菌数的测定参照史燕[12]的方法;水分含量测定参照《饲料中的水分测定》(GB/T 6435—2014);粗蛋白质含量测定参照《饲料中粗蛋白的测定-凯氏定氮法》(GB/T 6432—2018);粗脂肪含量测定参照《饲料中粗脂肪的测定》(GB/T 6433—2006);粗纤维含量测定参照《饲料中粗纤维的测定》(GB/T 6434—2006);粗灰分含量测定参照《饲料中粗灰分的测定》(GB/T 6438—2007);钙含量测定参照《饲料中钙的测定》(GB/T 6436—2018);总磷含量测定参照《饲料中总磷的测定-分光光度法》(GB/T 6437—2018)。

1.4.2 抗营养因子含量的测定

大豆球蛋白、β-伴大豆球蛋白、胰蛋白酶抑制因子和硫代葡萄糖苷含量测定参照ELISA试剂盒产品说明书;植酸含量的测定参照温舒元等[13]的方法;单宁含量的测定参照于新颖等[14]的方法。

1.4.3 发酵饲料感官与质量评测

根据德国农业协会评分法[15]对经黑曲霉、植物乳杆菌和发酵乳杆菌混合发酵后的饲料进行感官评定,发酵饲料感官评分标准如表3所示,得分≥16分为1级,10~15分为2级,5~9分为3级,0~4分为4级。
表3 发酵饲料感官评分标准

Table 3 Sensory scoring criteria of fermented feed

项目 Items 评分标准 Scoring criteria 得分 Score
有芳香果味或明显的面包香味 14

气味 Odor
有微弱的酸臭味,或较轻的酸味,芳香味弱 10
酸味颇重,或有刺鼻的焦糊臭或霉味 4
有较强的酸臭味或氨味,或几乎无酸味 2
结构保持良好(松软不黏手) 4

质地 Structure
结构保持较差(松软无黏性) 2
结构保持极差,或有轻度的霉菌污染(略带黏性) 1
腐烂或污染严重(发黏结块) 0
与原料相似,烘干后呈淡褐色 2
色泽 Color 略有变色呈淡黄色或带褐色 1
变色严重,墨绿色或褐色呈黄色,霉味较强 0
质量评测:称取10 g发酵样品,加入装有90 mL无菌生理盐水的锥形瓶中振荡混匀,吸取1 mL该液体加入到9 mL的无菌生理盐水中逐步进行10倍梯度稀释,吸取100 μL稀释液分别加入到大肠杆菌(VRBGA)、沙门氏菌(XLD)、志贺氏菌(志贺氏菌增菌肉汤-新生霉素)、霉菌(PDA)和乳酸杆菌(MRS)的选择性分离培养基中涂布均匀,培养48 h后进行菌落计数。

1.5 数据统计与分析

试验数据采用SPSS 25.0软件进行单因素方差分析,比较多个组之间的数据差异性采用Duncan氏法,比较2组之间的数据差异性采用Student独立样本t检验,结果用平均值±标准差表示,显著水平设置为P<0.05。

2 结果与分析

2.1 黑曲霉固态发酵大豆皮和菜籽饼单因素试验结果

2.1.1 大豆皮和菜籽饼原料比例对还原糖含量的影响
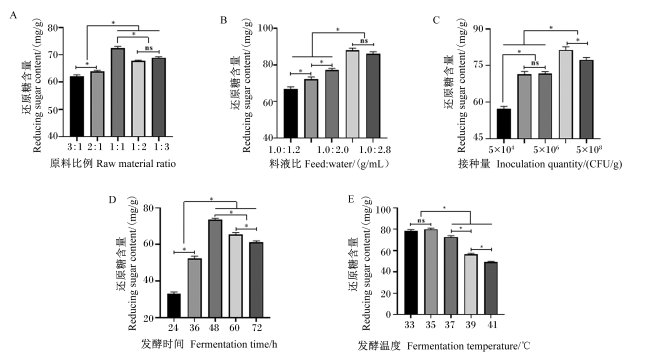
图1-A可知,在料液比为1.0∶1.6 g/mL、接种量为5×106 CFU/g、发酵温度为37 ℃、发酵时间为48 h的条件下,随着菜籽饼原料比例的增加,发酵产物中还原糖含量呈先升高后下降的趋势,大豆皮和菜籽饼原料比例为1∶1时还原糖含量达到最高,显著高于大豆皮和菜籽饼原料比例为3∶1、2∶1、1∶2和1∶3时(P<0.05)。
图1 单因素条件对还原糖含量的影响

*表示差异显著(P<0.05),ns表示差异不显著(P>0.05)。下图同。

Fig.1 Effects of single factor conditions on reducing sugar content

* indicated significant difference (P<0.05), while ns indicated no significant difference (P>0.05). The same as below.

2.1.2 料液比对还原糖含量的影响

图1-B可知,在大豆皮和菜籽饼原料比例为1∶1、接种量为5×10⁶ CFU/g、发酵温度为37 ℃、发酵时间为48 h的条件下,随着料液比的降低,发酵产物中还原糖含量呈先升高后下降的趋势,料液比为1.0∶2.4 g/mL时还原糖含量达到最高,显著高于料液比为1.0∶1.2、1.0∶1.6和1.0∶2.0 g/mL时(P<0.05)。

2.1.3 接种量对还原糖含量的影响

图1-C可知,在大豆皮和菜籽饼原料比例为1∶1、料液比为1.0∶1.6 g/mL、发酵温度为37 ℃、发酵时间为48 h的条件下,随着接种量的增加,发酵产物中还原糖含量呈先升高后下降的趋势,接种量为5×10⁷ CFU/g时还原糖含量达到最高,显著高于接种量为5×104、5×105、5×106和5×108 CFU/g时(P<0.05)。

2.1.4 发酵时间对还原糖含量的影响

图1-D可知,在原料比例为1∶1、料液比为1.0∶1.6 g/mL、接种量为5×106 CFU/g、发酵温度为37 ℃的条件下,随着发酵时间的增加,发酵产物中还原糖含量呈先升高下降的趋势,发酵时间为48 h时还原糖含量达到最高,显著高于发酵时间为24、36、60和72 h时(P<0.05)。

2.1.5 发酵温度对还原糖含量的影响

图1-E可知,在原料比例为1∶1、料液比为1.0∶1.6 g/mL、接种量为5×106 CFU/g、发酵时间为48 h的条件下,随着发酵温度的升高,发酵产物中还原糖含量呈逐渐下降的趋势,发酵温度为35 ℃时还原糖含量达到最高,显著高于发酵温度为37、39和41 ℃时(P<0.05)。

2.2 黑曲霉固态发酵大豆皮和菜籽饼正交试验结果

表4中正交结果R值可知,对发酵产物中还原糖含量的影响程度为B>D>A>C,即料液比>发酵时间>原料比例>接种量;由K值可得最优组合为A1B3C2D3,即原料比例为2∶1,料液比为1.0∶2.8 g/mL,接种量为5×107 CFU/g,发酵时间为60 h。
表4 黑曲霉固态发酵大豆皮和菜籽饼正交试验结果

Table 4 Orthogonal experimental results of Aspergillus niger solid-state fermentation of soybean hull and rapeseed cake

试验号
Test No.
因素 Factors 还原糖含量
Reducing sugar
content/
(mg/g)
大豆皮和菜籽饼原料比例
Soybean hull to rapeseed
cake raw materials
ratio (A)
料液比
Solid to liquid
ratio/(g/mL) (B)
接种量
Inoculation
quantity/
(CFU/g) (C)
发酵时间
Fermentation
time/h (D)
1 2∶1 (1) 1.0∶2.0 (1) 5×10⁶ (1) 36 (1) 67.69
2 2∶1 (1) 1.0∶2.4 (2) 5×10⁷ (2) 48 (2) 86.69
3 2∶1 (1) 1.0∶2.8 (3) 5×10⁸ (3) 60 (3) 97.69
4 1∶1 (2) 1.0∶2.0 (1) 5×10⁷ (2) 60 (3) 80.02
5 1∶1 (2) 1.0∶2.4 (2) 5×10⁸ (3) 36 (1) 78.58
6 1∶1 (2) 1.0∶2.8 (3) 5×10⁶ (1) 48 (2) 92.91
7 1∶2 (3) 1.0∶2.0 (1) 5×10⁸ (3) 48 (2) 68.13
8 1∶2 (3) 1.0∶2.4 (2) 5×10⁶ (1) 60 (3) 86.80
9 1∶2 (3) 1.0∶2.8 (3) 5×10⁷ (2) 36 (1) 85.80
K1 84.02 71.95 82.47 77.36
K2 83.84 84.02 84.17 82.58
K3 80.24 92.13 81.47 88.17
R 3.78 20.19 2.70 10.81
主次因素 Primary and secondary factors B>D>A>C
最优组合 Optimal combination A1B3C2D3

2.3 植物乳杆菌固态发酵大豆皮和菜籽饼单因素试验结果

2.3.1 尿素添加量对植物乳杆菌活菌数的影响
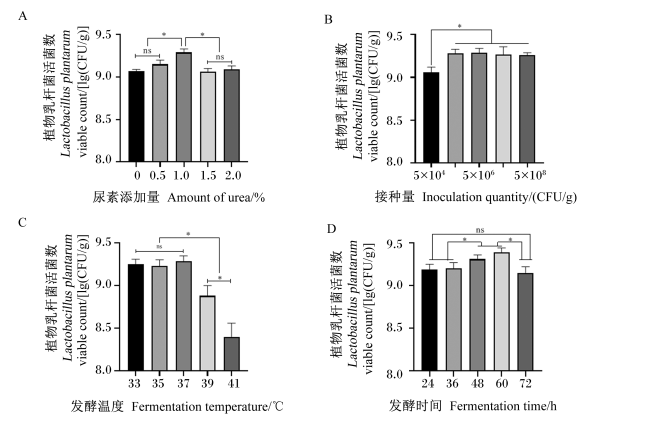
图2-A可知,在接种量为5×10⁶ CFU/g、发酵温度为37 ℃、发酵时间为48 h的条件下,随着尿素添加量的增加,发酵产物中植物乳杆菌活菌数呈先升高后下降的趋势,尿素添加量为1.0%时植物乳杆菌活菌数最高,显著高于尿素添加量为0、0.5%、1.5%和2.0%时(P<0.05)。
图2 单因素条件对植物乳杆菌活菌数的影响

Fig.2 Effects of single factor conditions on Lactobacillus plantarum viable count

2.3.2 接种量对植物乳杆菌活菌数的影响

图2-B可知,在尿素添加量为1.0%、发酵温度为37 ℃、发酵时间为48 h的条件下,随着接种量的增加,发酵产物中植物乳杆菌活菌数呈先升高后不变的趋势,接种量为5×10⁴ CFU/g时植物乳杆菌活菌数显著低于接种量为5×105、5×106、5×107和5×108 CFU/g时(P<0.05),接种量为5×106 CFU/g时植物乳杆菌活菌数最高。

2.3.3 发酵温度对植物乳杆菌活菌数的影响

图2-C可知,在尿素添加量为1.0%、接种量为5×10⁶ CFU/g、发酵时间为48 h的条件下,随着发酵温度的升高,发酵产物中植物乳杆菌活菌数呈先升高后下降的趋势,发酵温度为33、35和37 ℃时植物乳杆菌活菌数显著高于发酵温度为39和41 ℃时(P<0.05),发酵温度为37 ℃时植物乳杆菌活菌数最高。

2.3.4 发酵时间对植物乳杆菌活菌数的影响

图2-D可知,在尿素添加量为1.0%、接种量为5×10⁶ CFU/g、发酵温度为37 ℃的条件下,随着发酵时间的增加,发酵产物中植物乳杆菌活菌呈先升高后下降的趋势,发酵时间为48和60 h时植物乳杆菌活菌数显著高于发酵时间为24、36和72 h时(P<0.05),发酵时间为60 h时植物乳杆菌活菌数最高。

2.4 发酵乳杆菌固态发酵大豆皮和菜籽饼单因素试验结果

2.4.1 尿素添加量对发酵乳杆菌活菌数的影响
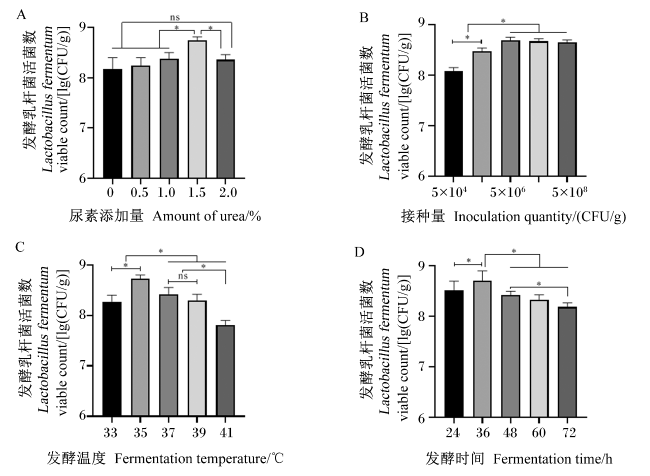
图3-A可知,在接种量为5×10⁶ CFU/g、发酵温度为37 ℃、发酵时间为48 h的条件下,随着尿素添加量的增加,发酵产物中发酵乳杆菌活菌数呈先升高后下降的趋势,尿素添加量为1.5%时发酵乳杆菌活菌数最高,显著高于尿素添加量为0、0.5%、1.0%和2.0%时(P<0.05)。
图3 单因素条件对发酵乳杆菌活菌数的影响

Fig.3 Effects of single factor conditions on Lactobacillus fermentum viable count

2.4.2 接种量对发酵乳杆菌活菌数的影响

图3-B可知,在尿素添加量为1.0%、发酵温度为37 ℃、发酵时间为48 h的条件下,随着接种量的增加,发酵产物中发酵乳杆菌活菌数呈先升高后不变的趋势,接种量为5×10⁴和5×10⁵ CFU/g时发酵乳杆菌活菌数显著低于接种量为5×106、5×107和5×108 CFU/g时(P<0.05),接种量为5×106 CFU/g时发酵乳杆菌活菌数最高。

2.4.3 发酵温度对发酵乳杆菌活菌数的影响

图3-C可知,在尿素添加量为1.0%、接种量为5×10⁶ CFU/g、发酵时间为48 h的条件下,随着发酵温度的升高,发酵产物中发酵乳杆菌活菌数呈先升高后下降的趋势,发酵温度为35 ℃时发酵乳杆菌活菌数最高,显著高于发酵温度为33、37、39和41 ℃时(P<0.05)。

2.4.4 发酵时间对发酵乳杆菌活菌数的影响

图3-D可知,在尿素添加量为1.0%,接种量为5×10⁶ CFU/g,发酵温度为37 ℃的条件下,随着发酵时间的增加,发酵产物中发酵乳杆菌活菌数呈先升高后下降的趋势,发酵时间为36 h发酵乳杆菌活菌数最高,显著高于发酵时间为24、48、60和72 h时(P<0.05)。

2.5 乳酸杆菌固态发酵大豆皮和菜籽饼正交试验结果

表5正交试验结果R值可知,对发酵产物中乳酸杆菌活菌数的影响程度为D>C>B>A,即发酵时间>发酵温度>接种量>尿素添加量;由K值可得最优组合为A2B2C2D3,即尿素添加量为1.0%,乳酸杆菌接种量为5×10⁶ CFU/g,发酵温度为35 ℃,发酵时间为60 h。
表5 乳酸杆菌固态发酵大豆皮和菜籽饼正交试验结果

Table 5 Orthogonal experimental results of Lactobicillus solid-state fermentation of soybean hull and rapeseed cake

试验号
Test No.
因素 Factors 乳酸杆菌活菌数
Lactobacillus
viable count/
[lg(CFU/g)]
尿素添加量
Amount of urea/
% (A)
接种量
Inoculation quantity/
(CFU/g)(B)
发酵温度
Fermentation
temperature/℃ (C)
发酵时间
Fermentation
time/h (D)
1 0.5 (1) 5×10⁵ (1) 33 (1) 36 (1) 8.41
2 0.5 (1) 5×10⁶ (2) 35 (2) 48 (2) 8.89
3 0.5 (1) 5×10⁷ (3) 37 (3) 60 (3) 8.94
4 1.0 (2) 5×10⁵ (1) 35 (2) 60 (3) 9.19
5 1.0 (2) 5×10⁶ (2) 37 (3) 36 (1) 8.77
6 1.0 (2) 5×10⁷ (3) 33 (1) 48 (2) 8.61
7 1.5 (3) 5×10⁵ (1) 37 (3) 48 (2) 8.57
8 1.5 (3) 5×10⁶ (2) 33 (1) 60 (3) 9.18
9 1.5 (3) 5×10⁷ (3) 35 (2) 36 (1) 8.81
K1 8.75 8.72 8.73 8.66
K2 8.86 8.95 8.96 8.69
K3 8.85 8.78 8.76 9.10
R 0.11 0.22 0.23 0.44
主次因素 Primary and secondary factors D>C>B>A
最优组合 Optimal combination A2B2C2D3

2.6 最优固态发酵工艺对大豆皮和菜籽饼营养物质含量的影响

表6可知,发酵后发酵产物中粗蛋白质、粗脂肪、粗灰分、钙和磷含量较发酵前均显著提高(P<0.05),粗纤维含量较发酵前显著降低(P<0.05);其中,粗蛋白质含量提高了69.86%,粗脂肪含量提高了40.83%,粗灰分含量提高了14.73%,钙含量提高了11.43%,磷含量提高了4.44%,粗纤维含量降低了41.41%。
表6 大豆皮和菜籽饼发酵前后营养物质含量变化(风干基础)

Table 6 Changes of nutrient content in soybean hull and rapeseed cake before and after fermentation (air-dry basis)%

项目
Items
粗蛋白质
CP
粗脂肪
EE
粗纤维
CF
粗灰分
Ash

Ca
总磷
TP
发酵前 Before fermentation 15.26±0.28b 3.87±0.07b 29.73±0.05a 7.40±0.17b 1.05±0.04b 0.45±0.01b
发酵后 After fermentation 25.92±0.22a 5.45±0.09a 17.42±0.27b 8.49±0.09a 1.17±0.04a 0.47±0.01a
提升比例 Increase ratio/% 69.86 40.83 -41.41 14.73 11.43 4.44

同列数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same column, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.7 最优固态发酵工艺对大豆皮和菜籽饼抗营养因子含量的影响

表7可知,发酵后发酵产物中大豆球蛋白、β-伴大豆球蛋白、硫代葡萄糖苷和单宁含量较发酵前均显著降低(P<0.05);其中,大豆球蛋白含量降低了12.17%,β-伴大豆球蛋白含量降低了15.95%,硫代葡萄糖苷含量降低了14.89%,单宁含量降低了28.64%。发酵前后发酵产物中胰蛋白酶抑制因子和植酸含量差异不显著(P<0.05)。
表7 大豆皮和菜籽饼发酵前后抗营养因子含量变化(风干基础)

Table 7 Changes of anti-nutritional factor content in soybean hull and rapeseed cake before and after fermentation (air-dry basis)mg/g

项目
Items
大豆球蛋白
Soybean
globulin
β-伴大豆
球蛋白
β-conglycinin
胰蛋白酶
抑制因子
Trypsin inhibitor
硫代葡萄糖苷
Glucosinolates
植酸
Phytic acid
单宁
Tannin
发酵前 Before fermentation 37.95±0.65a 8.84±0.23a 9.30±0.14 14.10±0.30a 15.60±0.17 9.74±0.08a
发酵后 After fermentation 33.33±1.02b 7.43±0.27b 9.27±0.12 12.00±0.14b 15.56±0.11 6.95±0.12b
降低比例 Decrease ratio/% 12.17 15.95 0.32 14.89 0.26 28.64

2.8 发酵饲料感官与质量评测

表8可知,大豆皮和菜籽饼经过黑曲霉和乳酸杆菌固态发酵后,有明显的酸香味,且无腐烂或污染,颜色也与原料相似,从气味、质地和色泽进行综合评分,得分为16分,达到优良等级。
表8 发酵饲料感官评定表

Table 8 Sensory evaluation table of fermented feed

项目
Items
气味
Odor
质地
Structure
色泽
Color
总分
Total score
等级(质量)
Grade (quality)
评分标准
Scoring criteria
有明显芳香果味和清
香的酸味,无臭味或霉味
结构保持较差
(松软无黏性)
颜色与原料相似,
且烘干后呈淡褐色

16

1级
(优良)
得分Score 12 2 2
表9可知,大豆皮和菜籽饼经过黑曲霉和乳酸杆菌固态发酵后,乳酸杆菌总数达1.53×10⁹ CFU/g,pH降至4.62,大肠杆菌、沙门氏菌、志贺氏菌、霉菌等致病菌均未检出,表明饲料未发生霉变或污染。
表9 发酵饲料pH和微生物卫生指标

Table 9 pH and microbial hygiene indexes of fermented feed

项目
Item
pH 大肠杆菌
Escherichia coli
沙门氏菌
Salmonella
志贺氏菌
Shigella
霉菌和酵母菌
Mold and yeast
乳酸杆菌
Lactobacillus/(CFU/g)
检出值
Detection value
4.62 1.53×10⁹

—:未检出

not detected。

3 讨论

3.1 固态发酵菌种的选择

黑曲霉、植物乳杆菌、发酵乳杆菌是公认安全的微生物,于2013年被列入我国《饲料添加剂品种目录》中。黑曲霉是好氧型微生物,其产酶丰富、活性高,发酵过程中分泌的葡糖淀粉酶、酸性蛋白酶、纤维素酶、半纤维素酶、果胶酶等胞外水解酶多达15种,能够有效破坏植物纤维素所形成的网状结构,释放嵌于其中的蛋白质、脂肪和多糖,并降解生物大分子,改善饲料营养结构[16-17]。乳酸杆菌是动物肠道中土著菌种,是最常见的兼性厌氧益生菌种类,其分解代谢碳水化合物的主要终产物为乳酸,并能够分泌具有广谱抑菌活性的细菌素抑制有害菌的生长[18-19]。植物乳杆菌与发酵乳杆菌均属于乳酸杆菌,研究表明植物乳杆菌能降低饲料中β-伴大豆球蛋白、硫代葡萄糖苷等抗营养因子,从而提高饲料饲用价值,其还能够维持肠道菌群稳态,抑制有害菌生长,提高畜禽生长性能与繁殖性能[20-22]。发酵乳杆菌能够产生多种抗菌肽,可作为食品防腐剂或抗生素的替代品,研究表明其能增强机体免疫反应并预防胃肠道和上呼吸道感染[23]。此外,植物乳杆菌和发酵乳杆菌之间可能存在协同共生效应,李玉彤[24]研究发现,植物乳杆菌与发酵乳杆菌等比例混菌发酵胡柚汁中所含的活菌数、总酚含量和总黄酮含量高于单菌发酵。据统计,大豆皮粗纤维含量高达38.04%,菜籽饼中含有硫代葡萄糖苷、植酸和单宁等抗营养因子[3-4]。为达到降解大豆皮和菜籽饼中粗纤维与抗营养因子、提高其饲用价值的目的,本研究采用黑曲霉、植物乳杆菌和发酵乳杆菌对大豆皮和菜籽饼进行二段固态发酵。

3.2 大豆皮和菜籽饼二段固态发酵工艺优化

本研究采用二段固态发酵工艺,其中第一段使用黑曲霉进行有氧固态发酵,第二段使用植物乳杆菌和发酵乳杆菌进行混菌厌氧固态发酵。固态发酵是一种三相非均相过程,包括固相、液相和气相,是传递质量与热量的体系,微生物生长和次生代谢产物的产生与温度和传热过程相关,因此固态发酵的效率高度依赖于温度[25]。黑曲霉在6~47 ℃均能生长,但处于不同温度时其生长速度与代谢产物也有所差异[26],本研究发现发酵温度为35 ℃时发酵产物中还原糖含量最高,表明此温度下黑曲霉代谢旺盛,纤维素酶产量高,与Tsao等[27]和刘传都[28]的最适温度条件一致。
黑曲霉有氧固态发酵阶段正交试验结果R值显示,料液比对发酵结果影响最大,发酵时间对发酵结果影响较大,大豆皮和菜籽饼原料比例和接种量对发酵结果影响较小。固态发酵体系中水分含量直接影响微生物的生长,水分含量过低会导致底物营养物质溶解度降低,微生物生长与产酶能力受到限制;水分含量过高会导致发酵基质颗粒易团聚,体系气体传输与散热性能受到影响[25]。本研究确定的适宜料液比为1.0∶2.8 g/mL。分析原因可能是大豆皮质地蓬松、孔间隙大,因此对水分含量需求较高。Jamal等[29]通过响应面法对白腐真菌固态发酵木薯皮进行优化,发现水分含量对发酵效果影响最大。Yang等[30]使用米曲霉、里氏木霉、金孢霉对大豆子叶纤维和酒糟进行固态发酵,发现料液比为1.0∶3.0 g/mL时发酵效果最好。本研究适宜料液比结果与上述研究结果基本一致。发酵时间是影响发酵基质营养成分改善的重要因素,发酵时间过短体系内酶活性较低,对生物大分子物质降解不充分;发酵时间过长微生物会过度消耗基质养分,副产物累积过多并导致菌体自溶[25]。本研究中适宜发酵时间为60 h,与Heidary等[31]研究结果相近,即较短的发酵时间有利于提高时间效率并降低成本。
混菌厌氧固态发酵阶段正交试验结果R值显示,发酵时间对发酵效果影响最大,发酵温度与接种量对发酵效果的影响相当,而尿素添加量对发酵效果影响最小。混菌厌氧固态发酵阶段适宜发酵时间为60 h。吴伟伟[32]使用乳酸杆菌发酵棉籽饼粕制备生物活性饲料,发现发酵时间为60 h时发酵产物中乳酸杆菌活菌数最高。Sakai等[33]使用乳酸杆菌对厨余垃圾进行发酵,发现发酵时间为60 h时发酵产物中乳酸含量达到最高。本研究结果与上述研究结果一致。本研究中适宜发酵温度为35 ℃,与张倩茹等[34]研究结果相近。

3.3 最优工艺发酵前后大豆皮和菜籽饼营养物质和抗营养因子含量变化

大豆皮和菜籽饼经二段固态发酵后,大豆皮和菜籽饼营养物质含量得到较大提高,部分抗营养因子被有效降解,发酵产物酸香味明显,综合评分16分,达到优良等级。发酵后,粗蛋白质含量较发酵前提升了69.86%,粗脂肪含量提升了40.83%,粗纤维含量降低了41.41%,乳酸杆菌总数达1.53×10⁹ CFU/g。欧荣娣等[35]使用二段固态发酵工艺处理红薯渣,有氧发酵阶段接种黑曲霉和产朊假丝酵母,厌氧发酵阶段接种产朊假丝酵母、枯草芽孢杆菌和乳酸杆菌,发酵后粗蛋白含量较发酵前提升了85.99%,粗纤维含量下降了3.8%。Su等[36]使用枯草芽孢杆菌、植物乳杆菌对玉米、豆粕混合饲料进行二段固态发酵,粗蛋白质、粗脂肪含量较发酵前分别提升了14.20%、42.11%,粗纤维含量下降了39.55%,乳酸杆菌总数达9.21×108 CFU/g。本研究结果与上述研究结果一致。黑曲霉、乳酸杆菌均能够将底物中非蛋白氮转化为菌体蛋白[37]。同时黑曲霉分泌的纤维素酶、半纤维素酶、果胶酶能够将纤维素降解为小分子糖类物质,二段固态发酵中乳酸杆菌能利用其迅速生长,活菌数和菌体蛋白含量也相应增加[16]。因此,发酵产物中粗蛋白质含量升高,而粗纤维含量下降。最优工艺发酵后pH降至4.62,黑曲霉和乳酸杆菌发酵过程中均能分泌大量有机酸,黑曲霉主要分泌草酸和柠檬酸[38],乳酸杆菌主要分泌乳酸[22],上述产物均能被乙醚浸提,粗脂肪含量提高可能与此有关。此外,固态发酵过程中微生物利用底物进行新陈代谢,体系干物质出现损失,也会使营养物质含量相对提升[39]
大豆皮和菜籽饼经二段固态发酵后,大豆球蛋白、β-伴大豆球蛋白、单宁、硫代葡萄糖苷含量较发酵前分别下降12.17%、15.95%、28.64%、14.89%。抗营养因子变化趋势与李英英等[40]、Shi等[41]研究结果一致。黑曲霉产酶能力强,具有分泌单宁酶与天冬氨酸蛋白酶的能力[16,42]。天冬氨酸蛋白酶在酸性或中性条件下具有活性,现被广泛应用于大豆蛋白的降解[43]。黑曲霉和乳酸杆菌均具有降解硫代葡萄糖苷的作用[27,44]。研究表明,曲霉属具有分泌黑芥子酶的能力[45]。Mullaney等[21]发现乳酸杆菌能够将硫代葡萄糖苷转化为芥酸腈、萝卜硫腈和其他未鉴定代谢物。蛋白酶与纤维素酶也被发现能够降低菜籽饼中硫代葡萄糖苷含量,黑曲霉可能通过分泌上述酶将硫代葡萄糖苷降解[46]

4 结论

① 黑曲霉固态发酵最优工艺为:大豆皮和菜籽饼原料比例2.0∶1.0,料液比1.0∶2.8 g/mL,黑曲霉接种量5×107 CFU/g,发酵温度35 ℃,发酵时间60 h。
② 植物乳杆菌和发酵乳杆菌等比例混菌固态发酵最优工艺为:尿素添加量1.0%,乳酸菌接种量5×10⁶ CFU/g,发酵温度35 ℃,发酵时间60 h。
③ 大豆皮和菜籽饼经最优二段固态发酵后,大豆皮和菜籽饼中粗蛋白质、粗脂肪和粗灰分含量提高,粗纤维、大豆球蛋白、β-伴大豆球蛋白、单宁、硫代葡萄糖苷含量降低,且富含乳酸杆菌,饲用价值得到有效改善。
[1]
高树琴, 段瑞, 王竑晟, 等. 北方农牧交错带在保障国家大粮食安全中发挥重要作用[J]. 中国科学院院刊, 2021, 36(6):643-651.

GAO S Q, DUAN R, WANG H S, et al. Farming-pastoral ecotone of northern China plays important role in ensuring national food security[J]. Bulletin of the Chinese Academy of Sciences, 2021, 36(6):643-651. (in Chinese)

[2]
SUN X, DEVI N D, URRIOLA P E, et al. Feeding value improvement of corn-ethanol co-product and soybean hull by fungal fermentation:fiber degradation and digestibility improvement[J]. Food and Bioproducts Processing, 2021, 130:143-153.

DOI

[3]
张喜喜, 史莹华, 王丽, 等. 大豆皮营养成分及其在动物生产上的应用研究进展[J]. 动物营养学报, 2023, 35(4):2154-2165.

DOI

ZHANG X X, SHI Y H, WANG L, et al. Research progress on nutritional components of soybean hull and its application in animal production[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2154-2165. (in Chinese)

DOI

[4]
LOMASCOLO A, UZAN-BOUKHRIS E, SIGOILLOT J C, et al. Rapeseed and sunflower meal:a review on biotechnology status and challenges[J]. Applied Microbiology and Biotechnology, 2012, 95(5):1105-1114.

DOI

[5]
荆文光. 菜籽粕化学成分和生物活性研究[D]. 博士学位论文. 北京: 中国中医科学院, 2014.

JING W G. Studies on chemical constituents and bioactivity of the rapeseed meal (Brassica napus L.)[D]. Ph.D.Thesis. Beijing: China Academy of Chinese Medical Sciences, 2014. (in Chinese)

[6]
TRIPATHI M K, MISHRA A S. Glucosinolates in animal nutrition:a review[J]. Animal Feed Science and Technology, 2007, 132(1/2):1-27.

DOI

[7]
ZHENG L, LI D, LI Z L, et al. Effects of Bacillus fermentation on the protein microstructure and anti-nutritional factors of soybean meal[J]. Letters in Applied Microbiology, 2017, 65(6):520-526.

DOI

[8]
YAO Y, CAI X Y, FEI W D, et al. The role of short-chain fatty acids in immunity,inflammation and metabolism[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(1):1-12.

DOI

[9]
KOGAN G, KOCHER A. Role of yeast cell wall polysaccharides in pig nutrition and health protection[J]. Livestock Science, 2007, 109(1/2/3):161-165.

DOI

[10]
PANDEY A. Solid-state fermentation[J]. Biochemical Engineering Journal, 2003, 13(2/3):81-84.

DOI

[11]
刘建玲. 玉米皮固态培养混合益生菌的研究[D]. 硕士学位论文. 大连: 大连理工大学, 2016.

LIU J L. Solid-state cultivation of mixed probiotics using corn bran[D]. Master’s Thesis. Dalian: Dalian University of Technology, 2016. (in Chinese)

[12]
史燕. 益生菌固态发酵燕麦的研究[D]. 硕士学位论文. 天津: 天津科技大学, 2014.

SHI Y. Study on solid-state fermentation of whole oats by probiotics[D]. Master’s Thesis. Tianjin: Tianjin University of Science and Technology, 2014. (in Chinese)

[13]
温舒元, 范杰英, 魏春雁, 等. 分光光度法测定大豆中植酸含量的不确定度评估[J]. 东北农业科学, 2019, 44(3):92-96.

WEN S Y, FAN J Y, WEI C Y, et al. Evaluation of uncertainty of the determination of phytic acid content in soybean by spectrophotometry[J]. Journal of Northeast Agricultural Sciences, 2019, 44(3):92-96. (in Chinese)

[14]
于新颖, 魏长浩, 余诚玮, 等. 粗壮脉纹孢菌固态发酵对菜籽粕营养品质的改善[J]. 中国食品学报, 2020, 20(2):221-227.

YU X Y, WEI C H, YU C W, et al. Improvement of nutrition components of rapeseed meal by solid-state fermentation with Neurospora crassa[J]. Journal of Chinese Institute of Food Science and Technology, 2020, 20(2):221-227. (in Chinese)

[15]
张子仪. 中国饲料学[M]. 北京: 中国农业出版社, 2000.

ZHANG Z Y. Chinese feed science[M]. Beijing: China Agriculture Press, 2000. (in Chinese)

[16]
SHI C Y, HE J, YU J, et al. Physicochemical properties analysis and secretome of Aspergillus niger in fermented rapeseed meal[J]. PLoS One, 2016, 11(4):e0153230.

DOI

[17]
WANG L P, SHEN Q R, YU G H, et al. Fate of biopolymers during rapeseed meal and wheat bran composting as studied by two-dimensional correlation spectroscopy in combination with multiple fluorescence labeling techniques[J]. Bioresource Technology, 2012, 105:88-94.

DOI

[18]
KÖNIG H, FRÖHLICH J. Lactic acid bacteria[M]//KÖNIG H,UNDEN G,FRÖHLICH J. Biology of microorganisms on grapes,in must and in wine. Cham: Springer, 2017:3-41.

[19]
ŞANLIBABA P, GÜÇER Y. Antimicrobial activity of lactic acid bacteria[J]. Journal of International Scientific Publications, 2015, 3:451-457.

[20]
陈丽娟, 郑裴, 徐玉霞, 等. 益生菌发酵豆粕产CLA及豆粕中抗营养因子降解的研究[J]. 中国油脂, 2010, 35(6):19-21.

CHEN L J, ZHENG P, XU Y X, et al. Production of CLA and degradation of anti-nutritional factors in soybean meal by fermentation with probiotics[J]. China Oils and Fats, 2010, 35(6):19-21. (in Chinese)

[21]
MULLANEY J A, KELLY W J, MCGHIE T K, et al. Lactic acid bacteria convert glucosinolates to nitriles efficiently yet differently from Enterobacteriaceae[J]. Journal of Agricultural and Food Chemistry, 2013, 61(12):3039-3046.

DOI

[22]
WANG J, JI H F, WANG S X, et al. Lactobacillus plantarum ZLP001:in vitro assessment of antioxidant capacity and effect on growth performance and antioxidant status in weaning piglets[J]. Asian-Australasian Journal of Animal Sciences, 2012, 25(8):1153-1158.

DOI

[23]
NAGHMOUCHI K, BELGUESMIA Y, BENDALI F, et al. Lactobacillus fermentum:a bacterial species with potential for food preservation and biomedical applications[J]. Critical Reviews in Food Science and Nutrition, 2020, 60(20):3387-3399.

DOI

[24]
李玉彤. 10L发酵罐乳酸菌发酵胡柚饮料工艺优化及质量控制[D]. 硕士学位论文. 宁波: 宁波大学, 2021.

LI Y T. Optimization and quality control of lactic acid bacteria fermentation of Huyou juice in 10L fermenter[D]. Master’s Thesis. Ningbo: Ningbo University, 2021. (in Chinese)

[25]
KRISHNA C. Solid-state fermentation systems-an overview[J]. Critical Reviews in Biotechnology, 2005, 25(1/2):1-30.

DOI

[26]
COSTA C P, GONÇALVES SILVA D, RUDNITSKAYA A, et al. Shedding light on Aspergillus niger volatile exometabolome[J]. Scientific Reports, 2016, 6(1):27441.

DOI

[27]
TSAO G T, XIA L M, CAO N J, et al. Solid-state fermentation with Aspergillus niger for cellobiase production[C]// Twenty-First Symposium on Biotechnology for Fuels and Chemicals. Totowa,NJ: Humana Press, 2000:743-749.

[28]
刘传都. 利用混合菌固体发酵木薯渣生产菌体蛋白饲料的研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2009.

LIU C D. A study of utilizing the mixed bacterium solid fermentation cassava dregs produced bacterial protein feed[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2009. (in Chinese)

[29]
JAMAL P, TIJANI R I D, ALAM M Z, et al. Effect of operational parameters on solid state fermentation of cassava peel to an enriched animal feed[J]. Journal of Applied Sciences, 2012, 12(11):1166-1170.

DOI

[30]
YANG S L, LIO J Y, WANG T. Evaluation of enzyme activity and fiber content of soybean cotyledon fiber and distiller’s dried grains with solubles by solid state fermentation[J]. Applied Biochemistry and Biotechnology, 2012, 167(1):109-121.

DOI

[31]
HEIDARY V M, KHANAHMADI M, ATAEI S A, et al. Optimization of process variables for production of beta-glucanase by Aspergillus niger CCUG33991 in solid-state fermentation using wheat bran[J]. Waste and Biomass Valorization, 2021, 12(6):3233-3243.

DOI

[32]
吴伟伟. 复合微生物固态发酵棉籽饼粕的研究[D]. 硕士学位论文. 无锡: 江南大学, 2009.

WU W W. Solid-state fermentation of cottonseed meal with mixed culture of microorganisms[D]. Master’s Thesis. Wuxi: Jiangnan University, 2009. (in Chinese)

[33]
SAKAI K, MURATA Y, YAMAZUMI H, et al. Selective proliferation of lactic acid bacteria and accumulation of lactic acid during open fermentation of kitchen refuse with intermittent pH adjustment[J]. Food Science and Technology Research, 2000, 6(2):140-145.

DOI

[34]
张倩茹, 尹蓉, 王贤萍, 等. 乳酸菌发酵树莓饮料的工艺优化[J]. 食品科技, 2021, 46(5):99-103.

ZHANG Q R, YIN R, WANG X P, et al. Optimization of fermented raspberry beverage by lactic acid bacteria[J]. Food Science and Technology, 2021, 46(5):99-103. (in Chinese)

[35]
欧荣娣, 范觉鑫, 王升平, 等. 红薯渣固态发酵条件优化[J]. 动物营养学报, 2015, 27(10):3302-3310.

OU R D, FAN J X, WANG S P, et al. Optimum conditions of sweet potato residue by solid-state fermentation[J]. Chinese Journal of Animal Nutrition, 2015, 27(10):3302-3310. (in Chinese)

[36]
SU W F, JIANG Z P, HAO L H, et al. Variations of soybean meal and corn mixed substrates in physicochemical characteristics and microbiota during two-stage solid-state fermentation[J]. Frontiers in Microbiology, 2021, 12:688839.

DOI

[37]
KAM S, KENARI A A, YOUNESI H. Production of single cell protein in stickwater by Lactobacillus acidophilus and Aspergillus niger[J]. Journal of Aquatic Food Product Technology, 2012, 21(5):403-417.

DOI

[38]
WU L, ZHANG L C, LI X J, et al. Effective production of kojic acid in engineered Aspergillus niger[J]. Microbial Cell Factories, 2023, 22(1):40.

DOI

[39]
陈中平, 周安国, 王之盛, 等. 米曲霉发酵豆粕营养特性的研究[J]. 中国畜牧杂志, 2011, 47(9):40-44.

CHEN Z P, ZHOU A G, WANG Z S, et al. Evaluation of nutritional quality of soybean meals fermented by Aspergillus oryzae[J]. Chinese Journal of Animal Science, 2011, 47(9):40-44. (in Chinese)

[40]
李英英, 丁立人, 朱平华, 等. 复合菌株固态发酵对大豆皮营养价值的影响[J]. 动物营养学报, 2022, 34(6):4041-4049.

DOI

LI Y Y, DING L R, ZHU P H, et al. Effects of solid-state fermentation with compound strains on nutritional value of soybean hulls[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):4041-4049. (in Chinese)

DOI

[41]
SHI C Y, HE J, YU J, et al. Solid state fermentation of rapeseed cake with Aspergillus niger for degrading glucosinolates and upgrading nutritional value[J]. Journal of Animal Science and Biotechnology, 2015, 6(1):13.

DOI

[42]
保玉心, 邱树毅. 响应面法优化黑曲霉产单宁酶的固体发酵条件[J]. 现代食品科技, 2012, 28(8):986-989.

BAO Y X, QIU S Y. Optimization of the solid state fermentation conditions for tannase production by Aspergillus niger using response surface method[J]. Modern Food Science&Technology, 2012, 28(8):986-989. (in Chinese)

[43]
史丹. 酸性蛋白酶的表达及其在大豆蛋白和虾壳酶解中的应用研究[D]. 硕士学位论文. 广州: 华南理工大学, 2020.

SHI D. Expression of aspartic proteases and their application in soybean protein and shrimp shell hydrolysis[D]. Master’s Thesis. Guangzhou: South China University of Technology, 2020. (in Chinese)

[44]
ZHU X F, WANG L Y, ZHANG Z, et al. Combination of fiber-degrading enzymatic hydrolysis and lactobacilli fermentation enhances utilization of fiber and protein in rapeseed meal as revealed in simulated pig digestion and fermentation in vitro[J]. Animal Feed Science and Technology, 2021, 278:115001.

DOI

[45]
BUTRINDR B, NIAMSUP H, SHANK L, et al. Myrosinase overproducing mutants of Aspergillus sp. NR463[J]. Annals of Microbiology, 2004, 54(4):493-501.

[46]
MAHAJAN A, DUA S. Role of enzymatic treatments in modifying the functional properties of rapeseed (Brassica campestris var. toria) meal[J]. International Journal of Food Sciences and Nutrition, 1998, 49(6):435-440.

DOI

文章导航

/