综述

小肽转运载体的生物学特征、影响因素及对肠道稳态的调控

  • 马春来 ,
  • 杨小军 , *
展开
  • 西北农林科技大学动物科技学院,杨凌 712100
* 杨小军,教授,博士生导师,E-mail:

马春来(1999—),女,甘肃定西人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-05-11

  网络出版日期: 2023-11-12

基金资助

国家自然科学基金项目(319752529)

陕西省饲料工程技术研究中心(2019HBGC-16)

Biological Characteristics and Influencing Factors of Small Peptide Transporters and Their Regulation on Intestinal Homeostasis

  • MA Chunlai ,
  • YANG Xiaojun , *
Expand
  • College of Animal Science and Technology, Northwest A&F University, Yangling 712100, China
* professor, E-mail:

Received date: 2023-05-11

  Online published: 2023-11-12

摘要

小肽转运载体介导的小肽的吸收在促进动物的生长发育和提高动物生产性能中发挥着重要作用。肠道作为动物营养物质消化吸收的主要部位,肠道内环境的稳态对动物机体的健康和生长发育至关重要。由于小肽转运载体参与营养物质转运及调控肠道稳态与肠道炎症,所以肽转运蛋白成为了营养学、生理学、药理学上的研究焦点。本文就小肽转运载体的结构、转运机制、功能、表达及活性调控进行了综述,特别总结了小肽转运载体1在肠道炎症与调控肠道稳态中的作用。

本文引用格式

马春来 , 杨小军 . 小肽转运载体的生物学特征、影响因素及对肠道稳态的调控[J]. 动物营养学报, 2023 , 35(11) : 6914 -6925 . DOI: 10.12418/CJAN2023.630

Abstract

The absorption of small peptides mediated by small peptide transporters plays an important role in promoting the growth and development of animals and improving animal performance. The intestine is the main part of nutrient digestion and absorption in animals, so the homeostasis of the intestinal internal environment is very important for the health, growth and development of animal body. Because small peptide transporters are involved in nutrient transport and the regulation of intestinal homeostasis and inflammation, peptide transporters had become the focus of research in nutrition, physiology and pharmacology. This review summarizes the structure, mechanism of action, function, expression and activity regulation of small peptide transporters, with special emphasis on the regulation role of small peptide transporter 1 in intestinal inflammation and intestinal homeostasis.

最初的蛋白质营养理论认为,动物采食的蛋白质被消化道中的蛋白酶和肽酶降解为游离氨基酸才能被机体直接吸收利用。但是,近几年逐渐发现不同来源的饲料即使氨基酸组成相同,但机体对氨基酸的利用率仍存在差异,因此蛋白质的利用并不完全取决于氨基酸。蛋白质在动物肠腔内经过胰蛋白酶、糜蛋白酶、氨肽酶和羧肽酶等多种消化酶的降解后,最终的水解产物除了氨基酸还有大量的二肽与三肽,这些小肽可以被肠黏膜直接吸收进入血液被机体利用,与氨基酸吸收系统相比,小肽吸收系统耗能低且易饱和、吸收速度快是动物提高对饲粮蛋白质利用的最佳方式[1]。因此,小肽的吸收与转运在蛋白质营养中占据了重要的位置,也成为了动物对蛋白质消化吸收机制的研究热点。
有研究发现,用化学、微生物或酶处理方法将动物副产品和植物源中的蛋白质进行预先处理后去饲喂幼龄动物,这种预先处理可以提高具有营养或生理调节功能的多肽的含量,而多肽在动物肠道中水解为小肽后被吸收利用,结果发现可以提高幼龄动物的生产性能和饲料利用率,小肽促进幼龄动物生长的原因可能如下[2]:1)在动物的消化道中,小肽的吸收系统与氨基酸的吸收系统是独立发挥作用的,而在肠道中小肽的吸收速率是大于等量的游离氨基酸的吸收速率;2)小肠中的细菌对小肽的分解速率低于等量的游离氨基酸,从而降低氨基酸在动物肠道的损失;3)与特定的氨基酸相比,特定的肽可以通过改善肠道形态及肠道的功能保护肠道健康;4)可提供功能性肽,增强机体抗氧化力和肌肉蛋白质的沉积[3-4]。然而,小肽在动物肠道的吸收是通过小肽转运载体的跨膜转运实现的,这种跨膜转运是动物体内营养物质运输的重要途径。小肽转运载体在机体小肽营养运输中发挥着重要作用,此外其在调控肠道稳态与肠道炎症中也扮演重要的角色,因此,肽转运蛋白成为了营养学、生理学、药理学方面的研究热点问题。

1 小肽转运载体的生物学特征

饲料中的蛋白质或多肽被动物采食后,经过消化道酶水解成小肽或游离氨基酸被吸收利用,这一过程需要小肽转运载体和氨基酸转运载体的参与。

1.1 小肽转运载体的种类

目前已经发现的属于质子依赖型寡肽转运载体(POT)家族的转运载体有4种,分别为小肽转运载体1(PepT1)、小肽转运载体2(PepT2)、小肽组氨酸转运载体1(PhT1)、小肽组氨酸转运载体2(PhT2)。

1.2 小肽转运载体的转运机制

1.2.1 PepT1的转运机制

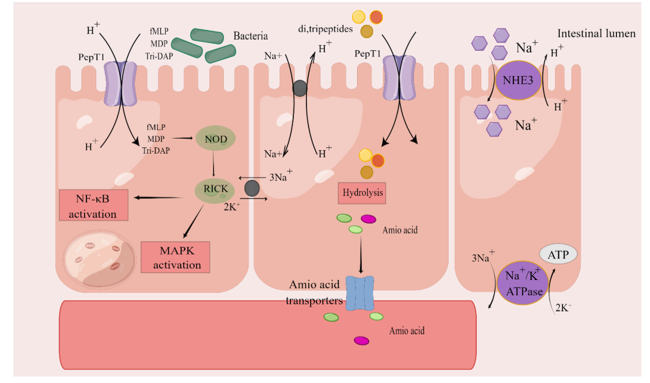
单胃动物主要在小肠吸收小肽,包括3种吸收方式:1)小肽转运发生在肠细胞膜上,通过PepT1与氢离子(H+)协同是二肽和三肽吸收的主要途径[5](图1)。小肽分子和H+通过PepT1一同转运至细胞内,为保持细胞内稳态,H+则由细胞顶膜侧的H+/钠离子(Na+)交换途径转运至细胞外侧。小肽以易化扩散的形式进入细胞后,会导致细胞内pH降低,进而激活细胞膜上的H+/Na+交换通道,H+被释放出细胞,细胞内的pH又回归至原水平。小肽转运的主要驱动力来自于质子的电化学梯度形成的能量。由PepT1转运至细胞内的小肽被细胞内肽酶降解为游离氨基酸,再由氨基酸转运体转运至血液中,被机体吸收。2)依靠H+或钙离子(Ca2+)主动转运,需要消耗ATP。3)谷胱甘肽(GSH)转运系统,由于GSH在生物膜内有抗氧化的功能,所以GSH转运系统对机体而言具有特殊的生理意义。
图1 肠上皮细胞PepT1转运不同肽的作用模式

Intestinal lumen:肠腔;PepT1:小肽转运载体1 peptide transporter 1;Bacteria:细菌;di,tripeptides:二/三肽;NOD:模式识别受体 pattern recognition receptor;RICK:丝氨酸/苏氨酸蛋白激酶 serine/threonine protein kinase;NF-κB activation:核因子-κB活化;MAPK activation:丝裂原活化蛋白激酶活化;Hydrolysis:酶解;Amino acid:氨基酸;Amino acid transporters:氨基酸转运载体;NHE3:钠氢交换因子3 sodium-hydrogen exchange factor 3;fMLP: N-甲酰基-Leu-Met-Phe N-formyl Leu-Met-Phe;MDP: 胞壁酰二肽 muramyl dipeptide;Tri-DAP:促炎三肽 pro-inflammatory tripeptide;Na+:钠离子 sodion;H+:氢离子 hydrion;K+:钾离子 potassium;ATP:三磷酸腺苷 adenosine triphosphate。

Fig.1 Action modes of intestinal epithelial PepT1 transport of different peptides[5-7]

动物机体对肽的吸收机制与氨基酸吸收机制完全不同,氨基酸转运是通过Na+泵或非Na+泵转运系统进行的,并以Na+泵耗能转运方式为主。研究表明,肽与氨基酸的吸收存在2种独立的转运系统,与氨基酸转运系统相比,肽转运系统具有耗能低且不易饱和的特点[5]

1.2.2 PepT2的转运机制

PepT1和PepT2具有不同的功能和物理化学性质,PepT1是一种低亲和力高容量转运蛋白,可以从肠腔中高效的吸收二肽和三肽,而PepT2是二肽和三肽的高亲和转运蛋白。PepT1和PepT2对二肽和三肽或结构相关的底物吸收伴随着质子的易位。PepT2由12个结构域(TMDs)构成,其中TM1~TM6构成N端束,TM7~TM12构成C端束,N端与C端面向细胞质。细胞外侧由来自N端的TM1和TM2及C端TM7和TM8来调节细胞外肽靠近结合位点,细胞内侧由TM4和TM5及TM10和TM11折叠调节细胞内肽和质子的释放。哺乳动物PepT2的TM2是保守的组氨酸(His),TM1和TM7是天冬氨酸-精氨酸(Asp-Arg)盐桥,质子结合促进了PepT2由向内开放的状态向外定向,进而再重新定向的变化[8]。PepT2转运中性或阴离子二肽时以2∶1的质子与底物化学计量运输,细胞外的pH在底物的结合亲和力中起到至关重要的作用,较低的pH有利于阴离子化合物的结合,而阳离子化合物的结合随着pH的升高而增加,不带净电荷的底物是转运蛋白结合和转运的首选[8]
目前对于PhT1和PhT2的驱动力、传输方式、底物特异性没有系统的分析,然而,观察到的His转运的pH依赖性和所使用的模型肽表明了与PepT1相似的转运模式。

1.3 小肽转运载体的表达组织

1.3.1 PepT1的表达组织

PepT1主要在十二指肠、空肠、回肠和结肠的顶端表达[9]PepT1在肾近端小管、胆管上皮中也有表达,在胰腺中也有发现[10-11]。PepT1在组织中的分布也证实了大量的二肽和三肽在肠腔中被广泛吸收到肠细胞中,继而被机体利用。在肠腔中PepT1的表达从小肠的近端到远端逐渐增加,但是PepT1功能的发挥依赖于细胞膜上的H+/Na+离子泵(图1),跨质膜的pH梯度在肠道近端强于远端,故PepT1的功能活性沿着肠道近端到远端存在差异,Jappar等[12]评估了野生型小鼠(WT)和PepT1敲除小鼠小肠和大肠对二肽(Gly-Sar)的通透性,结果发现十二指肠与空肠对二肽的通透性能力相当,显著高于回肠和结肠。此外,在绒毛尖端检测到更高的PepT1转运蛋白的表达,而在杯状细胞和下隐窝细胞中检测不到[11]PepT1的这种表达模式会使在近端肠腔区域和肠道绒毛尖端快速吸收食糜中的二肽和三肽。

1.3.2 PepT2的表达组织

PepT2广泛存在于各种组织中,Zwarycz等[9]研究发现,PepT2在肉鸡的肾脏和大脑中的高表达水平与哺乳动物的分布一致。在肾脏中,PepT2主要存在于近端小管的后段,而PepT1存在于近端小管的S1和其他曲段[13]PepT2也在大脑中广泛表达,包括大脑皮层、后脑和小脑。有研究证实,脉络膜丛是血脑屏障的位置,PepT2在该屏障有所表达[14]。Takano等[15]研究发现,PepT2在肺脏中也有所表达。此外,它还在人、猪、牛的乳腺中表达[16]。Sun等[17]发现,PepT2在人和小鼠的脾脏中表达。

1.3.3 PhT1和PhT2的表达组织

Bhardwaj等[18]应用免疫组化分析显示,在胃肠道和Caco-1细胞中观察到人肽/His转运蛋白(hPHT15,属于POT家族,SLC4A2)mRNA的表达,而且在hPHT1-COS-7细胞中,hPHT1对His和肌肽的摄取在15 min内与时间呈线性关系,并且发现有pH依赖性。在大脑中检测到组氨酸转运蛋白PhT1和PhT2,但其功能及重要性尚不清楚。Wang等[19]用体外切片和体内药代动力学方法研究PhT1对脑中1-His的转运作用,与野生型小鼠相比,PhT1缺陷小鼠切片中1-His的摄取在脑实质中减少50%,而在脑脊液中没有,这些研究结果表明,PhT1可能在大脑His转运中起到重要作用,从而对神经肽调节和His/组胺稳态产生影响。Agu等[20]研究发现,在人鼻上皮细胞中,PepT1、PepT2、PhT1和PhT2在mRNA水平上均有所表达。PhT1在眼睛和脾脏中表达[21],PhT2在肺脏、脾脏和胸腺中表达[22]。在小鼠和人脾脏巨噬细胞和淋巴细胞中检测到PepT2、PhT1和PhT2的表达,而未检测到PepT1的表达[17]。小肽转运载体家族的组织分布见表1
表1 小肽转运载体家族组织分布

Table 1 Tissue distribution of small peptide transporters family[9-22]

基因
Genes
蛋白
Protein
底物
Substrate
组织分布
Tissue distribution
溶质载体家族15成员1
SLC15A1
PepT1 二肽、三肽及拟肽类药物 小肠、肾脏、胰脏、肝脏、胆管
溶质载体家族15成员2
SLC15A2
PepT2 二肽、三肽及拟肽类药物 肾脏、脉络丛、神经元、
星形胶质细胞、肺脏、乳腺、脾脏
溶质载体家族15成员4
SLC15A4
PhT1 组氨酸、二肽、三肽及
拟肽类药物
眼睛、脾脏、肠
溶质载体家族15成员3
SLC15A3
PhT2 组氨酸、二肽、三肽及
拟肽类药物
大脑、肺脏、胸腺、肠

1.4 小肽转运载体的结构及同源性

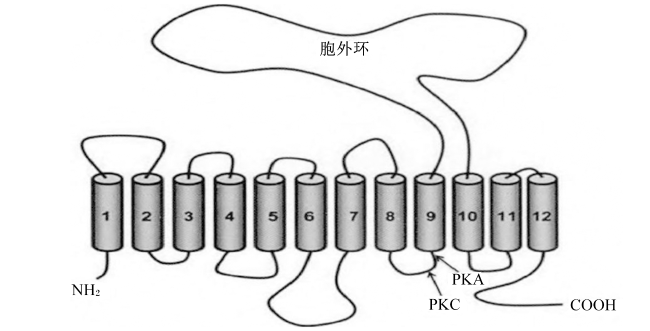
PepT1有12个跨膜螺旋(TM1~12)(图2)。TM1-6形成N端结构域(NTD),TM7~12形成C端结构域(CTD)。肽结合位点大约位于膜的中间,由NTD的TM1、2、4和5以及CTD的TM7、8和10的残基排列[23]。哺乳动物的PepT1有1个由200个氨基酸残基组成的细胞外结构域(ECD),位于第9和第10结构域之间[24]
图2 PepT1转运载体的跨膜结构

PKC:蛋白激酶C protein kinase C;PKA:蛋白激酶A protein kinase A;-NH2:氨基 amidogen;-COOH:羧基 carboxyl。

Fig.2 Transmembrane structure of PepT1 transporter[27]

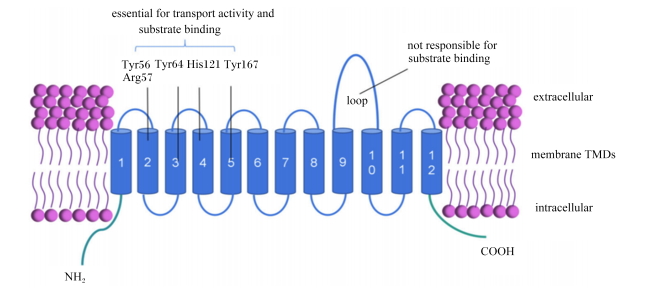
人的PepT2包含729个氨基酸,涉及12个跨膜结构域(TMDS)(图3),在第9和第10结构域包含1个大的细胞外环[25]。Terada等[26]研究发现,hPepT2的His57、His121、Tyr56、Tyr64、Tyr167对其功能及底物结合至关重要,PepT1和PepT2有50%的氨基酸同源性,细胞内和细胞外的氨基酸相比跨膜结构域的氨基酸序列更加具有多样性。
图3 PepT2的跨膜结构

essential for transport activity and substrate binding:对转运活性和底物结合至关重要;loop:胞外环;not responsible for substrate binding:对底物结合无责任;extracellular:细胞外域;membrane TMDs:膜结构域;intracellular:细胞内的;-NH2:氨基 amidogen;-COOH:羧基 carboxyl。

Fig.3 Transmembrane structure of PepT2[8]

哺乳动物的转运蛋白PhT1在大鼠组织中被鉴定出来,并在大鼠大脑cDNA文库中被克隆出来。大鼠PhT1的cDNA全长2 751 bp,编码572个氨基酸残基,预测分子质量为64.9 ku[21]。PhT2和PhT1具有47%的同源性,PhT2最初是在免疫细胞中克隆出来的,据报道是在转染细胞中起溶酶体His转运体的作用[7]

1.5 小肽转运载体的底物

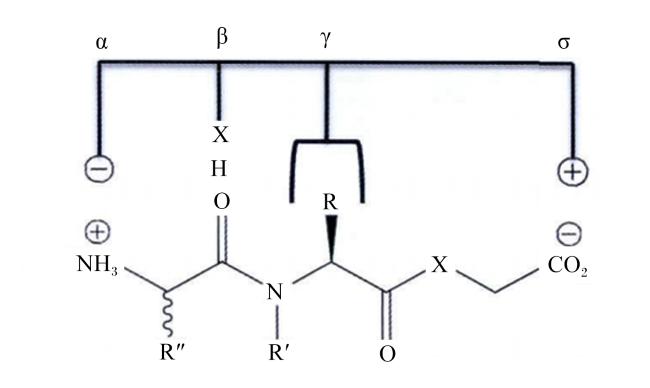
PepT1的中心有许多保守的氨基酸残基与底物相互作用,这些结构大致可以被简化为4个基本单元(图4)。PepT1与底物结合的结构包括以下几点[28]:1)α单元与 NH 3 +基团高亲和力的结合位点;2)β单元能够形成氢键结合;3)γ单元有1个可容纳较大侧链的疏水口袋,容纳二肽、三肽等底物;4)σ单元正电荷的His位点与底物羧基相互作用;5)底物的N2+可被烷基化(R');6)多个位点的立体化学选择性为顺式L构型。
图4 PepT1与底物识别的二维特征及其底物模块

Fig.4 Two-dimensional features of PepT1 recognition with substrates and their substrate modules[28]

PepT2具有广泛的底物特异性,可以吸收大小和电荷不同的二肽和三肽,可以转运近400种二肽和8 000种三肽,尽管PepT2可以介导所有三肽和二肽的转运,但是它们具有显著不同的亲和性,含有L-氨基酸残基的肽比含有D-氨基酸残基的肽具有更高的亲和力[29]。PepT2还可以转运具有药理活性的拟肽药物[30]
目前,尚不清楚PhT1和PhT2是否可以运输与PepT1和PepT2相同谱的二肽和三肽,但是可以将游离His作为底物,除此之外,POT家族还能够识别和转运拟肽和类肽药物。

2 影响小肽转运载体表达的因素

2.1 PepT1表达的调控

2.1.1 营养因素的调控

饲料的组成和质量不仅对肠道组织的结构有很大的影响,而且还决定了肠道上皮细胞中各种营养物质的转运蛋白和消化酶的表达和功能。饲料中蛋白质水平是调控PepT1表达的重要因素,其调控因素为直接依赖底物。Abdel-Raheem等[31]研究表明,空肠氨基酸和肽转运蛋白编码基因(LAT1、CAT1、CAT2、PepT1和PepT2)随着双发酵豆粕水平的增加而上调,说明饲料蛋白质水平的增加或缺乏均会影响PepT1的表达。研究表明,蛋白质的消化产物可以作为调节PepT1的表达和稳定性的代谢信号,肉鸡短时间禁食后,会引起肠道刷状缘膜上的PepT1 mRNA水平的变化[32]。Wi s 'niewski等[33]喂养2个月小鼠,正常饮食(ND)含有34.4%的碳水化合物、19.6%的蛋白质和3.3%的脂肪,高脂饮食(HFD)含有25.3%的碳水化合物、24.1%的蛋白质和34.6%的脂肪,比较了小鼠小肠黏膜的蛋白质浓度,结果发现,不仅饲料中氨基酸水平会影响肽转运蛋白的表达,饲喂含有34.6%能量的高脂高蛋白质饲粮可降低小鼠体内PepT1的表达,以及葡萄糖转运蛋白SGLT1、GLUT2的表达。

2.1.2 肽酶和信号因子的调控

细胞内和全身氨基酸稳态的变化对营养物质转运蛋白的表达有显著的影响。胞质刷状缘肽酶和肽转运蛋白之间存在直接或间接的影响,Benner等[34]研究发现,肽酶抑制剂(阿伐他汀、贝司他汀)诱导肽酶活性降低,胞浆中小肽积累,导致细胞内氨基酸浓度降低和PepT1的表达和功能的下降。Rexhepaj等[35]使用Using Chamber技术发现在小鼠小肠组织中加入磷脂酰肌醇3-激酶(PI3K)的抑制剂可以下调由Gly-Gly引起的跨膜电流,从而推断PI3K可以调控小肽的转运。通过在瓜蟾卵母细胞中与酪氨酸激酶[Janus激酶(JAK)2或JAK3]共表达肽转运体PepT1和PepT2,发现JAK2或JAK3可以正向调控PepT1和PepT2的功能和表达,这2种激酶都参与JAK/信号转导及转录激活因子(JAK/STAT)信号通路[36]

2.1.3 microRNA和转录因子的调控

microRNA在哺乳动物小肠、大肠的分化、发育、免疫和屏障功能中发挥着许多作用[37-38]。Zhang等[11]研究发现,PepT1的表达介导microRNA延绒毛轴的差异表达来调控肠道稳态,PepT1敲除小鼠的空肠隐绒轴的microRNA显著减少。Okamura等[39]研究表明,胆汁酸通过过氧化物酶体增殖物激活受体α(peroxisome proliferator-activated receptor α,PPARα)的活性调节PepT1的表达,在摄食期间释放的胆汁酸抑制PPARα,导致小鼠小肠中PepT1在夜间低表达,而在白天高表达,从而导致小肠中小肽的表达呈现昼夜节律的变化。

2.1.4 跨膜质子的调控

细胞膜PepT1的转运功能的发挥严格依赖于跨膜质子浓度梯度,细胞外质子浓度梯度为PepT1转运二肽及三肽提供驱动力。PepT1在转运小肽时会激活肠细胞膜上的Na+/H+交换蛋白(NHE)1、NHE2、NHE3。有研究表明,在哺乳动物肠上皮细胞中NHE3对PepT1功能的发挥起着至关重要的作用[40],而PepT2功能的发挥依赖于肠上皮细胞上的NHE1、NHE2[41]

2.1.5 激素的调控

激素可以调节小肽转运载体的功能和表达。据报道,胰岛素处理降低了非糖尿病雄性大鼠的肠道PepT1 mRNA的表达,但糖尿病雄性大鼠的肠道PepT1 mRNA表达被增加,同时胰岛素处理后雌性大鼠和雄性大鼠肠道PepT1 mRNA表达是不同的,所以胰岛素对PepT1的影响仍需进一步探究[42]

2.1.6 发育阶段和昼夜节律的调控

发育阶段和昼夜规律也是影响PepT1表达的因素。动物在其孵化或出生阶段及哺乳动物的断奶期,肠道消化系统的结构和功能会发生改变,肠道中的小肽转运载体也会发生相应的变化。研究发现,动物肠道的PepT1在胚胎期时已经有所表达,出生后其表达水平会有所上升,但随着年龄和个体发育,PepT1的表达水平会逐渐降低[43]。昼夜节律也参与了PepT1的转录和功能的调节,有研究发现,在光周期维持在12 h以上的大鼠中,PepT1的底物Gly-Sar在黑暗环境下的转运增强[44]

2.2 PepT2表达的调控

2.2.1 底物因素的调控

由于PepT2具有广泛的底物特异性,能够转运400种二肽和8 000种三肽以及一些拟肽类化合物。底物是影响动物机体PepT2表达的关键因素之一。PepT2的底物对PepT2具有调控作用,且不同底物对PepT2的活性不同。Wang等[45]研究发现,将Met-Met的细胞外浓度从20 μg/mL增加到160 μg/mL处理牛乳腺上皮细胞(BMECs)后,PepT2的表达会依赖性的增加。

2.2.2 激素的调控

PepT2的活性受激素,如胰岛素、催乳素、表皮生长因子和甲状腺激素等的影响。Zhou等[46]研究发现,用不同浓度催乳素、氢化可的松以及胰岛素处理增强了BMECs中PepT2的表达。此外,表皮生长因子(EGF)处理大鼠近端小管细胞系SKPT细胞时导致PepT2的表达和运输活性呈现剂量依赖性的下降,EGF是通过降低SKPT细胞中PepT2的转录和mRNA的稳定性来抑制PepT2的表达[47]。PepT2位于近端小管的远端,它参与原代尿液中的肽的重吸收[8]。Søndergaard等[48]研究发现,用EGF处理猪肾细胞系LLC-PK2细胞增强了PepT2的肽转运活性,并导致LLC-PK2细胞的总蛋白含量、碱性磷酸酶活性和细胞密度的上调。Lu等[49]研究表明,雄性大鼠甲状腺切除后肾脏中PepT2 mRNA表达上调,而用甲状腺激素替代品处理后抑制了这种上调。

2.2.3 生理因素的调控

PepT2的表达受到动物生理状态的调控,已被证实发育阶段和年龄会调控动物机体PepT2的表达[8]。Alghamdi等[50]研究发现,PepT2的表达受到衰老的调控,在老年大鼠肾脏中的PepT2的表达相较于青年和中年大鼠均有所增加,大鼠肾脏中PepT2的表达水平呈年龄依赖性。在肺脏组织中,PepT2在Ⅱ型细胞中表达,在分化过程中表达减少,在Ⅰ型样细胞中几乎不表达[15]

2.2.4 疾病因素的调控

PepT2的表达也受到病理状态的调控,有研究表明,在哺乳动物中,炎症可以调控包括PepT2在内的许多转运蛋白的表达和转运活性。Karimian等[51]研究表明,病毒炎症会影响大鼠PepT2及其他药物转运蛋白在肾脏中的表达。在人前列腺上皮细胞RWPE-1中,肿瘤坏死因子-α(TNF-α)和干扰素-γ(IFN-γ)下调了PepT2的mRNA水平,表明炎症对前列腺上皮细胞中PepT2的表达有影响[52]

2.2.5 细胞信号通路的调控

PI3K/蛋白激酶B(AKt)通路可以改变细胞生长、存活和营养物质转运[53]。Wang等[16]研究发现,PI3K和AKt的抑制显著降低了PepT2的表达,同时发现BMECs中的多肽转运受到PI3K/AKt信号通路的控制。Takano等[54]发现,核因子-κB(NF-κB)和丝裂原活化蛋白激酶(MAPK)信号通路可在H441细胞中调控由PepT2转运的细菌多肽引起的先天免疫反应。大量的研究证明,PepT2的表达受到很多蛋白因素的影响,但是细胞内信号传导在多种因素刺激后如何进行的,以及哪些转录因子参与PepT2的调控尚不清楚。
目前国内外对PhT1和PhT2蛋白调控因素的研究较少,所以对其调控因素尚不清楚。

3 PepT1调控动物肠道稳态和肠道炎症的研究进展

3.1 PepT1在维持肠道稳态中的作用
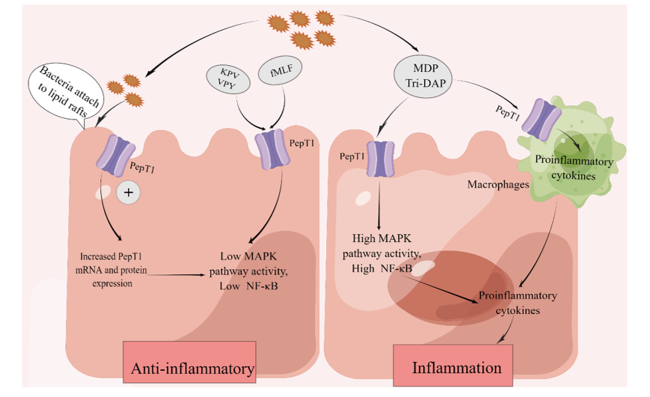
PepT1在维持肠道稳态中发挥着重要的作用。PepT1调控的作用机制如图5所示,PepT1可转运的底物多样性导致其在动物肠道中不仅可以转运小肽,也可以转运肠道致病菌的产物细菌寡肽,从而使PepT1通过细菌-上皮之间的相互作用,调控肠道炎症,在调控机体肠道稳态中发挥重要作用。Dalmasso等[55]研究发现,细菌肽聚糖分解的促炎三肽(Tri-DAP)可以被PepT1转运,转运后的Tri-DAP会诱导NF-κB和MAPK的活化,从而导致促炎细胞因子白细胞介素-8(IL-8)的产生。细菌产物胞壁酰二肽(MDP)被证明也是PepT1的转运底物,MDP在被PepT1转运至细胞内后激活细胞内NOD2,从而诱导NF-κB和MAPK的活化[56]。另外,Ayyadurai等[57]研究发现,与野生型小鼠相比,PepT1敲除小鼠在葡聚糖硫酸钠(DSS)诱导的结肠炎中,体重减轻较低,直肠出血较少,且炎症细胞因子的mRNA表达水平较低。细菌产物像促炎三肽Tri-DAP和MDP均会被PepT1转运,从而调节促炎细胞因子的分泌,诱导肠道炎症,从而影响肠道稳态。
图5 PepT1在肠道稳态中的调控作用

Bacteria attach to lipid rafts:细菌结合在脂筏;PepT1:小肽转运载体1 proton-dependent oligopeptide transporter 1;Increased PepT1 mRNA and protein expression :增强PepT1的mRNA和蛋白的表达;Low NF-κB pathway activity: 降低NF-κB信号通路活性;Low MAPK pathway activity: 降低MAPK信号通路活性;Anti-inflammatory: 抗炎;fMLF:N-甲酰基-Met-Leu-Pro N-formyl-Met-Leu-Pro;MDP: 胞壁酰二肽 muramyl dipeptide;Tri-DAP:促炎三肽 pro-inflammatory tripeptide;NF-κB:核因子-κB nuclear factor-κB;MAPK:丝裂原活化蛋白激酶 mitogen-activated protein kinase; KPV:α-促黑素细胞激素(α-MSH)的C端序列Lys-Pro-Val C-terminal sequence of alpha-melanocyte-stimulating hormone (alpha-MSH) Lys-Pro-Val;VPY:膳食大豆三肽Val-Pro-Tyr dietary soy tripeptide Val-Pro-Tyr;High NF-κB pathway activity: 增强NF-κB信号通路活性;High MAPK pathway activity: 增强MAPK信号通路活性;Macrophages:巨噬细胞;Proinflammatory cytokines:促炎细胞因子;Inflammation:炎症。

Fig.5 Regulatory role of PepT1 in intestinal homeostasis[5]

另外,肠致病菌会通过肠道脂筏特异性地附着在肠细胞上,诱导肠细胞脂筏中的PepT1的表达,而脂筏中PepT1的高表达反过来会抑制肠道致病菌与肠细胞上脂筏的特异性附着,从而表现出抗炎的作用[7,58]。此外,PepT1也可以转运在生物活性寡肽像α-促黑素细胞激素(α-MSH)的C端序列Lys-Pro-Val(KPV)和膳食大豆三肽Val-Pro-Tyr(VPY)以及益生菌产物N-甲酰基-Met-Leu-Pro(fMLF),在PepT1转运这些生物活性成分后,会降低与肠道炎症相关的NF-κB和MAPK的激活,从而抑制炎症因子的表达,达到抗炎的作用,调控机体肠道稳态[59-61]
综上所述,PepT1在肠道中转运底物不同时发挥的作用也会不同,当PepT1通过转运具有抗炎活性的益生菌产物及寡肽,或者肠致病菌特异性地结合在肠细胞中脂筏上时,发现机体与肠道炎症相关的NF-κB和MAPK的信号通路被抑制,从而在抗炎中发挥作用;当PepT1转运肠道中细菌产物(Tri-DAP和MDP)时,发现NF-κB和MAPK的信号通路被激活,诱导机体发生炎症。PepT1通过转运不同底物参与肠道的抗炎过程或者诱导机体发生肠道炎症,从而在调控肠道稳态中发挥着重要作用。

3.2 PepT1在调控肠道炎症中的作用

3.2.1 对反刍动物肠道炎症的调控作用

当机体处于疾病或在外界条件刺激下肠道中的细菌大量繁殖或菌群失调的状态下,肠道菌群会释放大量的细菌寡肽产物MDP,PepT1不仅可以转运二肽与三肽,同时可以将细菌寡肽产物MDP转运入肠道细胞,从而引发机体发生肠道炎症反应(图5)。MDP是肽聚糖的降解产物,是革兰氏阴性菌细胞壁的一种成分[7]。严康[62]的研究表明,高精料瘤胃液能够显著上调原代瘤胃上皮细胞(BRECs)的PepT1的表达,这可能由于高精料组的大量细菌分解产生的细菌小肽的大量积累,导致瘤胃上皮细胞的PepT1对其的转运增加,细胞内的细菌小肽产物会激活炎症信号通路,从而引发炎症。

3.2.2 对水产动物肠道炎症的调控作用

在高等动物中,细菌产物寡肽MDP会由PepT1转运至肠细胞中,激活PepT1-NOD2-RICK信号通路,继而通过NF-κB和MAPK这2条途径激活转录因子,诱导肠细胞炎症因子的表达,从而引起肠道炎症(图5)。唐建洲[63]采用生物信息技术对PepT1与小肽的结合模式进行模拟发现,PepT1与小肽及MDP的结合是通过氨基酸残基与之形成氢键实现的,草鱼腹腔注射MDP后上调了肠道PepT1的表达,同时上调了各种炎症因子的mRNA的表达水平,草鱼中这种炎症反应也是通过PepT1-NOD2-RICK信号通路实现的。

3.2.3 对小鼠和人肠道炎症的调控作用

虽然PepT1通常在结肠中的表达很低,但在结肠炎和短肠综合征中,小肠和结肠中的PepT1的表达均会上调,这种上调可能是由于疾病状态下的炎症因子和激素水平的变化会调控PepT1的表达和功能[64-65]。有研究表明,PepT1在结肠炎症中呈现区域性表达,近端结肠低表达或者无表达,而在远端结肠高表达,这种高表达会促进水和电解质的吸收[66]
POT家族成员的其他成员在机体发生炎症后也会出现变化,先前的研究发现,IBD患者的SLC15A4(PhT1)的表达出现上调[67]。Sun等[52]用TNF-α和IFN-γ处理前列腺癌症细胞系PC-3时,PepT2的水平显著升高。

4 小结与展望

近些年,对POT家族成员的结构和生物学功能及其在肠道稳态中发挥的作用进行了初步了解。研究结果检测到PepT1和PepT2在人类和动物的许多器官和组织中均有所表达,深入探讨PepT1和PepT2的结构、作用机制、影响因素及其调控肠道稳态的作用机制,并且发现其在肠道炎症中通过调控NF-κB和MAPK信号通路及与肠道微生物互作,在调控肠道健康中发挥着重要的作用,阐明其在小肽营养的深入研究及在生理药理上有重大意义。
研究发现,PhT1与PhT2在多种组织类型中表达,比如大脑、肠段、眼、脾脏、胸腺,然而对其结构、生物学功能及影响其转运活性的因素方面的研究仍然很少,因此有必要进一步对这2种肽转运载体进行深入研究,探究其在动物和人类疾病与健康中的功能。许多研究已经证明,PepT1在肠道炎症中发挥作用总伴随着肠道微生物群的改变,这种改变可能是由于PepT1的缺失或过表达影响肠道吸收营养物质的差异,导致微生物群的消化底物发生改变,从而改变其功能和组成。未来需要更深入地研究PepT1与肠道微生物群的关系,有助于鉴定宿主与微生物群之间的新的特异性相互作用,更好地理解PepT1调控肠道稳态的作用机制。
[1]
郭春晖, 刘文, 李红宇, 等. 小肽的营养理论与研究进展[J]. 现代畜牧兽医, 2022(8):93-96.

GUO C H, LIU W, LI H Y, et al. Nutritional theory and research progress of small peptides[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2022(8):93-96. (in Chinese)

[2]
HOU Y Q, WU Z L, DAI Z L, et al. Protein hydrolysates in animal nutrition:industrial production,bioactive peptides,and functional significance[J]. Journal of Animal Science and Biotechnology, 2017, 8:24.

DOI

[3]
HOU Y Q, YAO K, YIN Y L, et al. Endogenous synthesis of amino acids limits growth,lactation,and reproduction in animals[J]. Advances in Nutrition, 2016, 7(2):331-342.

DOI

[4]
HOU Y Q, YIN Y L, WU G Y. Dietary essentiality of“nutritionally non-essential amino acids”for animals and humans[J]. Experimental Biology and Medicine, 2015, 240(8):997-1007.

DOI

[5]
SPANIER B, ROHM F. Proton coupled oligopeptide transporter 1 (PepT1) function,regulation,and influence on the intestinal homeostasis[J]. Comprehensive Physiology, 2018, 8(2):843-869.

[6]
INGERSOLL S A, AYYADURAI S, CHARANIA M A, et al. The role and pathophysiological relevance of membrane transporter PepT1 in intestinal inflammation and inflammatory bowel disease[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2012, 302(5):G484-G492.

[7]
VIENNOIS E, PUJADA A, ZEN J, et al. Function,regulation,and pathophysiological relevance of the POT superfamily,specifically PepT1 in inflammatory bowel disease[J]. Comprehensive Physiology, 2018, 8(2):731-760.

[8]
WANG C H, CHU C, JI X, et al. Biology of peptide transporter 2 in mammals:new insights into its function,structure and regulation[J]. Cells, 2022, 11(18):2874.

DOI

[9]
ZWARYCZ B, WONG E A. Expression of the peptide transporters PepT1,PepT2,and PHT1 in the embryonic and posthatch chick[J]. Poultry Science, 2013, 92(5):1314-1321.

DOI

[10]
SCHNIERS B K, RAJASEKARAN D, KORAC K, et al. PEPT1 is essential for the growth of pancreatic cancer cells:a viable drug target[J]. The Biochemical Journal, 2021, 478(20):3757-3774.

DOI

[11]
ZHANG Y C, VIENNOIS E, ZHANG M Z, et al. PepT1 expression helps maintain intestinal homeostasis by mediating the differential expression of miRNAs along the crypt-villus axis[J]. Scientific Reports, 2016, 6:27119.

DOI PMID

[12]
JAPPAR D, WU S P, HU Y J, et al. Significance and regional dependency of peptide transporter (PEPT) 1 in the intestinal permeability of glycylsarcosine:in situ single-pass perfusion studies in wild-type and Pept1 knockout mice[J]. Drug Metabolism and Disposition, 2010, 38(10):1740-1746.

DOI

[13]
GHARABLI H, RAFIQ M, IQBAL A, et al. Functional characterization of the putative POT from Clostridium perfringens[J]. Biology, 2023, 12(5):651.

DOI

[14]
CHEN X M, KEEP R F, LIANG Y, et al. Influence of peptide transporter 2 (PEPT2) on the distribution of cefadroxil in mouse brain:a microdialysis study[J]. Biochemical Pharmacology, 2017, 131:89-97.

DOI

[15]
TAKANO M, HORIUCHI T, SASAKI Y, et al. Expression and function of PEPT2 during transdifferentiation of alveolar epithelial cells[J]. Life Sciences, 2013, 93(17):630-636.

DOI PMID

[16]
WANG C H, SUN Y L, ZHAO F Q, et al. Functional characterization of peptide transporters in bovine mammary epithelial cells[J]. Journal of Agricultural and Food Chemistry, 2019, 67(1):213-219.

DOI PMID

[17]
SUN D L, WANG Y Q, TAN F Q, et al. Functional and molecular expression of the proton-coupled oligopeptide transporters in spleen and macrophages from mouse and human[J]. Molecular Pharmaceutics, 2013, 10(4):1409-1416.

DOI PMID

[18]
BHARDWAJ R K, HERRERA-RUIZ D, ELTOUKHY N, et al. The functional evaluation of human peptide/histidine transporter 1 (hPHT1) in transiently transfected COS-7 cells[J]. European Journal of Pharmaceutical Sciences, 2006, 27(5):533-542.

PMID

[19]
WANG X X, HU Y J, KEEP R F, et al. A novel role for PHT1 in the disposition of L-histidine in brain:in vitro slice and in vivo pharmacokinetic studies in wildtype and Pht1 null mice[J]. Biochemical Pharmacology, 2017, 124:94-102.

DOI

[20]
AGU R, COWLEY E, SHAO D, et al. Proton-coupled oligopeptide transporter (POT) family expression in human nasal epithelium and their drug transport potential[J]. Molecular Pharmaceutics, 2011, 8(3):664-672.

DOI PMID

[21]
YAMASHITA T, SHIMADA S, GUO W, et al. Cloning and functional expression of a brain peptide/histidine transporter[J]. Journal of Biological Chemistry, 1997, 272(15):10205-10211.

DOI PMID

[22]
SAKATA K, YAMASHITA T, MAEDA M, et al. Cloning of a lymphatic peptide/histidine transporter[J]. The Biochemical Journal, 2001, 356(Pt 1):53-60.

DOI

[23]
GUETTOU F, QUISTGAARD E M, TRÉSAUGUES L, et al. Structural insights into substrate recognition in proton-dependent oligopeptide transporters[J]. EMBO Reports, 2013, 14(9):804-810.

DOI PMID

[24]
NEWSTEAD S. Recent advances in understanding proton coupled peptide transport via the POT family[J]. Current Opinion in Structural Biology, 2017, 45:17-24.

DOI PMID

[25]
STAUFFER M, JECKELMANN J M, ILGÜ H, et al. Peptide transporter structure reveals binding and action mechanism of a potent PEPT1 and PEPT2 inhibitor[J]. Communications Chemistry, 2022, 5(1):23.

DOI PMID

[26]
TERADA T, INUI K I. Peptide transporters:structure,function,regulation and application for drug delivery[J]. Current Drug Metabolism, 2004, 5(1):85-94.

DOI

[27]
MEREDITH D, PRICE R A. Molecular modeling of PepT1-towards a structure[J]. The Journal of Membrane Biology, 2006, 213(2):79-88.

DOI

[28]
BAILEY P D, BOYD C A R, COLLIER I D, et al. Affinity prediction for substrates of the peptide transporter PepT1[J]. Chemical Communications, 2006(3):323-325.

PMID

[29]
DANIEL H, SPANIER B, KOTTRA G, et al. From bacteria to man:archaic proton-dependent peptide transporters at work[J]. Physiology, 2006, 21:93-102.

DOI

[30]
PARKER J L, DEME J C, WU Z Y, et al. Cryo-EM structure of PepT2 reveals structural basis for proton-coupled peptide and prodrug transport in mammals[J]. Science Advances, 2021, 7(35):eabh3355.

DOI

[31]
ABDEL-RAHEEM S M, MOHAMMED E S Y, MAHMOUD R E, et al. Double-fermented soybean meal totally replaces soybean meal in broiler rations with favorable impact on performance,digestibility,amino acids transporters and meat nutritional value[J]. Animals, 2023, 13(6):1030.

DOI

[32]
MADSEN S L, WONG E A. Expression of the chicken peptide transporter 1 and the peroxisome proliferator-activated receptor α following feed restriction and subsequent refeeding[J]. Poultry Science, 2011, 90(10):2295-2300.

DOI PMID

[33]
WIŚNIEWSKI J R, FRIEDRICH A, KELLER T, et al. The impact of high-fat diet on metabolism and immune defense in small intestine mucosa[J]. Journal of Proteome Research, 2015, 14(1):353-365.

DOI PMID

[34]
BENNER J, DANIEL H, SPANIER B. A glutathione peroxidase,intracellular peptidases and the TOR complexes regulate peptide transporter PEPT-1 in C. elegans[J]. PloS One, 2011, 6(9):e25624.

DOI

[35]
REXHEPAJ R, ROTTE A, PASHAM V, et al. PI3 kinase and PDK1 in the regulation of the electrogenic intestinal dipeptide transport[J]. Cellular Physiology and Biochemistry, 2010, 25(6):715-722.

DOI PMID

[36]
HOSSEINZADEH Z, DONG L, BHAVSAR S K, et al. Upregulation of peptide transporters PEPT1 and PEPT2 by Janus kinase JAK2[J]. Cellular Physiology and Biochemistry, 2013, 31(4/5):673-682.

DOI

[37]
MCKENNA L B, SCHUG J, VOUREKAS A, et al. MicroRNAs control intestinal epithelial differentiation,architecture,and barrier function[J]. Gastroenterology, 2010, 139(5):1654-1664.e1.

DOI

[38]
RUNTSCH M C, ROUND J L, O’CONNELL R M. MicroRNAs and the regulation of intestinal homeostasis[J]. Frontiers in Genetics, 2014, 5:347.

DOI PMID

[39]
OKAMURA A, KOYANAGI S, DILXIAT A, et al. Bile acid-regulated peroxisome proliferator-activated receptor-α (PPARα) activity underlies circadian expression of intestinal peptide absorption transporter PepT1/Slc15a1[J]. The Journal of Biological Chemistry, 2014, 289(36):25296-25305.

DOI

[40]
WANG C Y, LIU S, XIE X N, et al. Regulation profile of the intestinal peptide transporter 1 (PepT1)[J]. Drug Design,Development and Therapy, 2017, 11:3511-3517.

DOI

[41]
WADA M, MIYAKAWA S, SHIMADA A, et al. Functional linkage of H+/peptide transporter PEPT2 and Na+/H+ exchanger in primary cultures of astrocytes from mouse cerebral cortex[J]. Brain Research, 2005, 1044(1):33-41.

DOI

[42]
DER-BOGHOSSIAN A H, SAAD S R, PERREAULT C, et al. Role of insulin on jejunal PepT1 expression and function regulation in diabetic male and female rats[J]. Canadian Journal of Physiology and Pharmacology, 2010, 88(7):753-759.

DOI

[43]
ZHANG H, WONG E A. Spatial transcriptional profile of PepT1 mRNA in the yolk sac and small intestine in broiler chickens[J]. Poultry Science, 2017, 96(8):2871-2876.

DOI

[44]
PAN X Y, TERADA T, IRIE M, et al. Diurnal rhythm of H+-peptide cotransporter in rat small intestine[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2002, 283(1):G57-G64.

[45]
WANG C H, ZHAO F Q, LIU J X, et al. Dipeptide (methionyl-methionine) transport and its effect on β-casein synthesis in bovine mammary epithelial cells[J]. Cellular Physiology and Biochemistry, 2018, 49(2):479-488.

DOI PMID

[46]
ZHOU M M, WU Y M, LIU H Y, et al. Effects of tripeptides and lactogenic hormones on oligopeptide transporter 2 in bovine mammary gland[J]. Journal of Animal Physiology and Animal Nutrition, 2011, 95(6):781-789.

DOI PMID

[47]
BRAVO S A, NIELSEN C U, AMSTRUP J, et al. Epidermal growth factor decreases PEPT2 transport capacity and expression in the rat kidney proximal tubule cell line SKPT0193 cl.2[J]. American Journal of Physiology.Renal Physiology, 2004, 286(2):F385-F393.

[48]
SØNDERGAARD H B, BRAVO S A, NIELSEN C U, et al. Cloning of the pig PEPT2 (pPEPT2) and characterization of the effects of epidermal growth factor (EGF) on pPEPT2-mediated peptide uptake in the renal porcine cell line LLC-PK1[J]. European Journal of Pharmaceutical Sciences, 2008, 33(4/5):332-342.

DOI

[49]
LU H, KLAASSEN C. Tissue distribution and thyroid hormone regulation of Pept1 and Pept2 mRNA in rodents[J]. Peptides, 2006, 27(4):850-857.

DOI

[50]
ALGHAMDI O A, KING N, ANDRONICOS N M, et al. Molecular changes to the rat renal cotransporters PEPT1 and PEPT2 due to ageing[J]. Molecular and Cellular Biochemistry, 2019, 452(1/2):71-82.

DOI

[51]
KARIMIAN POUR N, MCCOLL E R, PIQUETTE-MILLER M. Impact of viral inflammation on the expression of renal drug transporters in pregnant rats[J]. Pharmaceutics, 2019, 11(12):624.

DOI

[52]
SUN D L, TAN F Q, FANG D B, et al. Expression of proton-coupled oligopeptide transporter (POTs) in prostate of mice and patients with benign prostatic hyperplasia (BPH) and prostate cancer (PCa)[J]. Prostate, 2013, 73(3):287-295.

DOI PMID

[53]
SHEPPARD K, KINROSS K M, SOLOMON B, et al. Targeting PI3 kinase/AKT/mTOR signaling in cancer[J]. Critical Reviews in Oncogenesis, 2012, 17(1):69-95.

DOI PMID

[54]
TAKANO M, TAKEUCHI T, KURIYAMA S, et al. Role of peptide transporter 2 and MAPK signaling pathways in the innate immune response induced by bacterial peptides in alveolar epithelial cells[J]. Life Sciences, 2019, 229:173-179.

DOI PMID

[55]
DALMASSO G, NGUYEN H T T, CHARRIER-HISAMUDDIN L, et al. PepT1 mediates transport of the proinflammatory bacterial tripeptide L-Ala-γ-D-Glu-meso-DAP in intestinal epithelial cells[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2010, 299(3):G687-G696.

[56]
VAVRICKA S R, MUSCH M W, CHANG J E, et al. hPepT1 transports muramyl dipeptide,activating NF-kappaB and stimulating IL-8 secretion in human colonic Caco2/bbe cells[J]. Gastroenterology, 2004, 127(5):1401-1409.

DOI

[57]
AYYADURAI S, CHARANIA M A, XIAO B, et al. PepT1 expressed in immune cells has an important role in promoting the immune response during experimentally induced colitis[J]. Laboratory Investigation, 2013, 93(8):888-899.

DOI PMID

[58]
NGUYEN H T, CHARRIER-HISAMUDDIN L, DALMASSO G, et al. Association of PepT1 with lipid rafts differently modulates its transport activity in polarized and nonpolarized cells[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2007, 293(6):G1155-G1165.

[59]
CARLSON R M, VAVRICKA S R, ELORANTA J J, et al. fMLP induces Hsp27 expression,attenuates NF-kappaB activation,and confers intestinal epithelial cell protection[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2007, 292(4):G1070-G1078.

[60]
DALMASSO G, CHARRIER-HISAMUDDIN L, NGUYEN H T T, et al. PepT1-mediated tripeptide KPV uptake reduces intestinal inflammation[J]. Gastroenterology, 2008, 134(1):166-178.

DOI PMID

[61]
KOVACS-NOLAN J, ZHANG H, IBUKI M, et al. The PepT1-transportable soy tripeptide VPY reduces intestinal inflammation[J]. Biochimica et Biophysica Acta, 2012, 1820(11):1753-1763.

[62]
严康. PEPT1调控奶牛瘤胃上皮细胞炎症反应的分子机制研究[D]. 博士学位论文. 扬州: 扬州大学, 2022.

YAN K. The molecular mechanism of PEPT1 regulating the inflammatory response in bovine rumen epithelial cells[D]. Ph.D.Thesis. Yangzhou: Yangzhou University, 2022. (in Chinese)

[63]
唐建洲. 草鱼PepT1介导细菌小肽MDP诱发肠道炎症的机理及其调控研究[D]. 博士学位论文. 长沙: 湖南农业大学, 2020.

TANG J Z. Study on mechanism and regulation of the PepT1-mediated MDP induces intestinal inflammation in grass carp (Ctenopharyngodon idellus)[D]. Ph.D.Thesis. Changsha: Hunan Agricultural University, 2020. (in Chinese)

[64]
VIENNOIS E, INGERSOLL S A, AYYADURAI S, et al. Critical role of PepT1 in promoting colitis-associated cancer and therapeutic benefits of the anti-inflammatory PepT1-mediated tripeptide KPV in a murine model[J]. Cellular and Molecular Gastroenterology and Hepatology, 2016, 2(3):340-357.

PMID

[65]
ZIEGLER T R, FERNÁNDEZ-ESTÍVARIZ C, GU L H, et al. Distribution of the H+/peptide transporter PepT1 in human intestine:up-regulated expression in the colonic mucosa of patients with short-bowel syndrome[J]. The American Journal of Clinical Nutrition, 2002, 75(5):922-930.

DOI

[66]
WUENSCH T, SCHULZ S, ULLRICH S, et al. The peptide transporter PEPT1 is expressed in distal colon in rodents and humans and contributes to water absorption[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2013, 305(1):G66-G73.

DOI

[67]
LEE J, TATTOLI I, WOJTAL K A, et al. pH-dependent internalization of muramyl peptides from early endosomes enables Nod1 and Nod2 signaling[J]. The Journal of Biological Chemistry, 2009, 284(35):23818-23829.

DOI

文章导航

/