研究论文

高碳水化合物饲料添加牛磺酸对杂交鳢生长性能、肝脏糖代谢相关基因表达、抗氧化活性及免疫应答的影响

  • 李培佳 , 1, 2 ,
  • 吕旦 1, 2, * ,
  • 李敏 1, 2 ,
  • 彭凯 , 1 ,
  • 胡俊茹 1 ,
  • 黄文 1, 3 ,
  • 曹俊明 2 ,
  • 赵红霞 , 1, **
展开
  • 1 广东省农业科学院动物科学研究所,广东省农业科学院水产研究中心,广东省畜禽育种与营养研究重点实验室,广州 510640
  • 2 广东海洋大学水产学院,湛江 524088
  • 3 广州飞禧特生物科技有限公司,广州 510640
** 赵红霞,研究员,硕士生导师,E-mail:

*同等贡献作者

李培佳(1998—),男,河南鹤壁人,硕士研究生,研究方向为水产动物营养与饲料。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-05-17

  网络出版日期: 2023-11-12

基金资助

国家自然科学基金(31402307)

国家自然科学基金(31902388)

广东省自然科学基金(2021A1515010850)

Effects of Taurine Supplementation in High Carbohydrate Diet on Growth Performance, Gene Expression Related to Liver Glucose Metabolism, and Antioxidant Activity and Immune Response of Hybrid Snakehead [Channa maculata (♀) ×C. argus (♂)]

  • LI Peijia , 1, 2 ,
  • LYU Dan 1, 2 ,
  • LI Min 1, 2 ,
  • PENG Kai , 1 ,
  • HU Junru 1 ,
  • HUANG Wen 1, 3 ,
  • CAO Junming 2 ,
  • ZHAO Hongxia , 1, **
Expand
  • 1 Guangdong Key Laboratory of Animal Breeding and Nutrition, Collaborative Innovation Center of Aquatic Sciences, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
  • 2 College of Fisheries, Guangdong Ocean University, Zhanjiang 524088, China
  • 3 Guangzhou Fishtech Biotechnology Co., Ltd., Guangzhou 510640, China
** professor, E-mail:

*Contributed equally

Received date: 2023-05-17

  Online published: 2023-11-12

摘要

本试验旨在研究高碳水化合物饲料添加牛磺酸对杂交鳢生长性能、肝脏糖代谢相关基因表达、抗氧化活性及免疫应答的影响。试验选取初始体重为(22.02±0.02) g的杂交鳢450尾,随机分为3组:低碳水化合物组(LC组,碳水化合物含量为21%)、高碳水化合物组(HC组,碳水化合物含量为27%)和高碳水化合物饲料添加牛磺酸组(HT组,碳水化合物含量为27%,牛磺酸添加量为1%),每组3个重复,每个重复50尾鱼,饲喂8周。结果表明:与LC组相比,HC组的血浆葡萄糖(GLU)含量及谷丙转氨酶(ALT)和谷草转氨酶(AST)活性显著增加(P<0.05);血浆碱性磷酸酶(ALP)活性和肝脏谷胱甘肽过氧化物酶(GSH-Px)活性显著下降(P<0.05);肝脏白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)、Toll样受体4(TLR4)和髓样分化因子88(MyD88)基因相对表达量显著升高(P<0.05);肝脏转化生长因子-β(TGF-β)和热休克蛋白70(HSP70)基因相对表达量显著下降(P<0.05)。与HC组相比,HT组的饲料系数(FC),血浆GLU含量及ALT、AST活性,肝脏丙二醛(MDA)和糖原含量显著降低(P<0.05);蛋白质沉积率(PPV),血浆总蛋白(TP)含量、ALP活性、胰岛素含量,肝脏总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)、GSH-Px活性显著增加(P<0.05);肝脏胰岛素相关基因蛋白激酶B(AKT)和磷脂酰肌醇-3激酶(PI3K)基因相对表达量显著上调(P<0.05);肝脏糖代谢相关基因丙酮酸激酶(PK)和葡萄糖转运蛋白2(GLUT2)基因相对表达量显著上调(P<0.05);肝脏白细胞介素-10(IL-10)、TGF-βHSP70基因相对表达量显著升高(P<0.05);肝脏白细胞介素-8(IL-8)、IL-1βTNF-αTLR4和MyD88基因相对表达量显著下降(P<0.05)。综上所述,高碳水化合物饲料可诱发杂交鳢的氧化应激和炎症,而添加牛磺酸可提高杂交鳢的抗氧化活性,缓解炎症,促进糖代谢。

本文引用格式

李培佳 , 吕旦 , 李敏 , 彭凯 , 胡俊茹 , 黄文 , 曹俊明 , 赵红霞 . 高碳水化合物饲料添加牛磺酸对杂交鳢生长性能、肝脏糖代谢相关基因表达、抗氧化活性及免疫应答的影响[J]. 动物营养学报, 2023 , 35(11) : 7320 -7334 . DOI: 10.12418/CJAN2023.666

Abstract

The aim of this study was to investigate the effects of taurine supplementation in high carbohydrate diet on growth performance, expression of genes related to glucose metabolism in liver, antioxidant activity and immune response of Channa maculata (♀) ×C. argus (♂). A total of 450 hybrid snakeheads, with an initial body weight of (22.02±0.02) g, were randomly divided into three groups: low-carbohydrate group (LC group, 21% carbohydrate), high-carbohydrate group (HC group, 27%carbohydrate), and high-carbohydrate diet supplemented with taurine group (HT group, 27% carbohydrate and 1% taurine), with three replicates for each group and 50 fish reared in each replicate, and feeding for 8 weeks. The results showed that compared with LC group, the plasma glucose (GLU) content and the activities of alanine aminotransferase (ALT) and aspartate aminotransferase (AST) in HC group were significantly increased (P<0.05); plasma alkaline phosphatase (ALP) activity and liver glutathione peroxidase (GSH-Px) activity were significantly decreased (P<0.05); the liver relative expression levels of interleukin-1β (IL-1β), tumor necrosis factor-α (TNF-α), Toll-like receptor 4 (TLR4) and myeloid differentiation factor 88 (MyD88) were significantly up regulated (P<0.05); the relative expression levels of transforming growth factor-β (TGF-β) and heat shock protein 70 (HSP70) in the liver exhibited a significant down-regulated (P<0.05). Compared with the HC group, the HT group exhibited a significant decrease in feed coefficient (FC), plasma glucose (GLU) content, alanine aminotransferase (ALT) and aspartate aminotransferase (AST) activities, liver malondialdehyde (MDA) content, and liver glycogen content (P<0.05); the protein deposition rate (PPV), plasma total protein (TP) content, ALP activity, insulin content, liver total antioxidant capacity (T-AOC), liver superoxide dismutase (SOD) and liver GSH-Px activities were significantly increased (P<0.05). The relative expression levels of insulin-related genes, including protein kinase B (AKT) and phosphatidylinositol-3-kinase (PI3K), were significantly up-regulated in the liver (P<0.05); additionally, the relative expression levels of glucose metabolism-related genes, such as pyruvate kinase (PK) and glucose transporter 2 (GLUT2), were also significantly up-regulated in the liver (P<0.05); the liver relative expression levels of interleukin-10 (IL-10), TGF-β, and HSP70 were significantly upregulated (P<0.05), while the relative expression levels of interleukin-8 (IL-8), IL-1β, TNF-α, TLR4, and MyD88 were significantly down-regulated in the liver (P<0.05). In conclusion, high carbohydrate diet can induce oxidative stress and inflammation in hybrid snakehead fish. However, taurine supplementation can improve antioxidant activity, alleviate inflammation, and promote glucose metabolism in hybrid snakehead.

近年来,集约化的养殖模式推动了水产养殖产业的发展,但是在集约化的养殖模式下,鱼类易患营养性、代谢性及应激性疾病,这些问题也制约了水产养殖产业的发展,对水产养殖业造成了严重的经济损失[1]。乌鳢是典型的肉食性物种,因生长快、抗病力强和市场价值高等特点在我国被广泛养殖[2]。近年来,珠三角地区鳢科鱼类的养殖品种主要是杂交鳢[Channa maculata(♀)×Channa argus(♂)],2021年珠三角地区杂交鳢的产量达到28.30万t,占比全国总产量的51.60%[3]。淀粉是饲料配方中重要的膨化剂和黏合剂,在饲料制作过程中使膨化饲料达到物理膨胀[4]。然而,鱼类属于葡萄糖(GLU)不耐受体质,高碳水化合物饲料可诱发高血糖、糖原积累及炎症反应,进而损害肝脏免疫和代谢机能,最终导致鱼类肝脏代谢性疾病[5]
牛磺酸(taurine)首次从牛胆汁中分离出,因此被称为牛胆素[6]。牛磺酸由膳食摄取或自身合成,其中,水产品及畜禽产品中含量更为丰富[7]。牛磺酸不参与蛋白质合成,在水产动物体内以游离氨基酸形式分布并发挥生理功能[8]。牛磺酸在水产动物体内主要用于维持细胞内外渗透压[9]、清除氧自由基[10]、提高机体免疫力[11]、改善内分泌状态[12]及促进糖、脂代谢[13]等。研究表明,饲料碳水化合物含量的提高可降低饲料中优质蛋白质的比例,但由于优质蛋白质含量的下降,牛磺酸的含量也随之减少[14]。大黄鱼(Larimichthys crocea)[15]和真鲷(Pagrus major)[16]饲料缺乏牛磺酸会降低其生长性能,相反,牛磺酸的补充会改善这种现象,并提高饲料利用率[17]。另外,据报道牛磺酸可激活胰岛素信号通路,增强胰岛素敏感性并降低胰岛素抵抗等功能[18]。然而关于牛磺酸对杂交鳢饲喂高碳水化合物饲料的缓解作用和机制目前还鲜有报道。因此,我们假设牛磺酸具有可缓解或抑制水生动物由高碳水化合物饲料引起的肝脏代谢性疾病。
长期摄入高碳水化合物饲料会抑制鱼类生长,导致肝糖原积累,进而诱导炎症反应和肝脏功能异常[19-20]。肉食性鱼类饲料碳水化合物的添加量通常为20%左右,杂交鳢饲料碳水化合物含量超过25%会导致高血糖和脂质氧化积累以及炎症反应,进而损害免疫和抗氧化能力[19-20]。饲料添加牛磺酸可以显著促进鱼类生长,提高免疫力,激活胰岛素信号通路,促进糖代谢。日本牙鲆(Paralichthys olivaceus)、鲈鱼(Dicentrarchus labrax)、大菱鲆(Scophthalmus maximus)和尼罗罗非鱼(Oreochromis niloticus)[19-20]等水产动物的研究表明,牛磺酸在饲料中的适宜添加量为1%左右。然而,目前关于牛磺酸在杂交鳢饲料中应用的研究较为缺乏。因此,本研究以杂交鳢为试验对象,研究高碳水化合物饲料中添加牛磺酸对杂交鳢生长性能、糖代谢、肝脏抗氧化活性及免疫应答的影响及作用机制,旨在为牛磺酸在水产养殖中的应用提供依据。

1 材料与方法

1.1 试验饲料

试验设计3个组:低碳水化合物组(LC组,碳水化合物含量为21%)、高碳水化合物组(HC组,碳水化合物含量为27%)及高碳水化合物饲料添加牛磺酸组(HT组,碳水化合物含量为27%,牛磺酸添加量为1%)。牛磺酸纯度≥98%。按照饲料配方将不同的饲料原料进行称量,并粉碎过60目筛,逐级混合后拌水,采用B20强力搅拌机(广州市番禺力丰食品机械厂)进行混合,混合后采用T52型膨化机(广州市华强膨化机械厂)制成膨化饲料,继而将磷脂油、豆油和鱼油进行混合并喷洒到膨化饲料上,喷洒均匀后自然风干,风干后阴凉保存备用。试验饲料组成及营养水平见表1
表1 试验饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis) %

项目
Items
组别Groups
LC HC HT
原料Ingredients
鱼粉Fish meal 35.00 35.00 35.00
豆粕Soybean meal 28.00 20.00 20.00
玉米蛋白粉Corn gluten meal 2.00 6.00 6.00
面粉Wheat flour 15.00 25.00 25.00
鱼油Fish oil 3.00 3.00 3.00
豆油Soybean oil 3.00 3.00 3.00
磷脂油Phospholipid oil 1.00 1.00 1.00
维生素预混料Vitamin premix1) 1.00 1.00 1.00
矿物质预混料Mineral premix2) 1.00 1.00 1.00
磷酸二氢钙Ca(H2PO4)2 1.50 1.50 1.50
维生素C磷酸酯Vitamin C phosphate (35%) 0.10 0.10 0.10
氯化胆碱Choline chloride 0.50 0.50 0.50
褐藻酸钠Sodium alginate 1.00 1.00 1.00
纤维素Cellulose 7.90 1.90 0.90
牛磺酸Taurine 1.00
合计Total 100.00 100.00 100.00
营养水平Nutrients levels3)
水分Moisture 7.57 7.81 8.38
粗蛋白质Crude protein 44.63 44.33 44.03
粗脂肪Crude lipid 8.22 7.97 7.97
粗灰分Ash 9.34 9.54 9.58
粗纤维Crude fiber 8.91 3.39 2.47
可消化碳水化合物Digestible carbohydrate 21.34 27.45 27.57
总能Gross energy/(MJ/kg) 11.32 11.17 11.14

1) 维生素预混料为每千克饲料提供 Vitamin premix provided the following per kilogram of diets: VA 2 500 IU,VB1 1 mg,VB2 6 mg,VB6 5 mg,VD3 2 000 IU,VE 50 IU,VK3 1 mg,叶酸 folic acid 1 mg,烟酸 nicotinic acid 10 mg,胆碱 choline 1 000 mg,生物素 biotin 0.14 mg。

2) 矿物质预混料为每千克饲料提供 Mineral premix provided the following per kilogram of diets:Fe (FeSO4·H2O) 13 mg,Zn (ZnSO4·H2O) 60 mg,Mn (MnSO4·H2O) 32 mg,Cu (CuSO4·H2O) 7 mg,NaCl 1 200 mg,KI 8 mg。

3) 可消化碳水化合物(%)=100-粗蛋白质(%)-粗脂肪(%)-粗灰分(%)-粗纤维(%)。总能分别使用蛋白质、脂质和可消化碳水化合物的能量当量18.81、35.57和14.59 kJ/g计算。 Digestibility carbohydrate(%)=100-crude protein(%)-crude lipid(%)-ash(%)-crude fiber(%). Gross energy was calculated using energy equivalents 18.81, 35.57 and 14.59 kJ/g for protein, lipid and digestible carbohydrate, respectively.

1.2 试验鱼和养殖管理

在广东省农业科学院动物科学研究所白云试验基地进行养殖试验,养殖用水需曝气后使用。从广州市锦龙渔业有限公司购买杂交鳢鱼苗。第1周在2.5 m×2.5 m×1.5 m的暂养网箱中暂养,每天08:00和16:00饱食投喂LC组饲料2次。暂养结束后禁食24 h,随机挑选体格均匀、初始体重为(22.02±0.02) g、活力旺盛的杂交鳢鱼苗450尾,随机分为3组,每组3个重复,每个重复50尾,以重复为单位在1.5 m×1.5 m×1.5 m的网箱中进行8周养殖试验。每天08:00和16:00饱食投喂各组试验饲料2次。试验期间养殖水体溶氧含量在8 mg/L左右,pH 8.0左右,氨氮含量<0.1 mg/L,水温为25~32 ℃,试验采取自然光照。

1.3 生长性能指标测定

每个网箱随机挑选6尾试验鱼进行测量,将体重、体长、内脏等数据进行汇总,并统计存活率及消耗饲料量,相关计算公式如下:
存活率(SR,%)=100×F/F;
饲料系数(FC)=D/(W-W);
蛋白质沉积率(PPV,%)=100×(W×CP-W×CP)/(D×CP饲料);
特定生长率(SGR,%/d)=100×(lnW-lnW)/T;
增重率(WGR,%)=100×(W-W)/W
式中:F为初始尾数;F为终末尾数;CP为初始鱼体蛋白质含量;CP为终末鱼体蛋白质含量;W为体重;W为鱼初始体重;W为鱼终末体重;CP饲料为饲料蛋白质含量;D为摄入饲料总重;D为饲料摄入量;T为养殖时间。

1.4 样品采集

8周养殖试验结束后,禁食24 h。从每个重复中随机挑取3尾鱼测定体成分;再随机挑取8尾鱼,采用MS-222(120 mg/L)麻醉,肝素钠抗凝管采血5 mL,采集后的全血进行10 min离心(3 500 r/min),离心后采集血浆进行生化指标测定。采集血液后,将试验鱼放置于冰上迅速进行解剖,摘取其中3尾鱼肝脏,进行糖代谢相关基因表达及免疫和抗氧化指标的测定,再取3尾鱼的肝脏,10%福尔马林溶液固定,进行肝脏切片的制作。

1.5 体成分测定

水分含量采用105 ℃烘箱烘干至恒重的方法(GB/T 6435—2014)测定,粗蛋白质含量利用半自动凯氏定氮仪,采用凯氏定氮法(GB/T 6432—2018)测定,粗脂肪含量采用乙醚抽提的方法(GB/T 6433—2006)测定,粗灰分含量采用550 ℃灼烧至恒重的方法(GB/T 6433—2006)测定。

1.6 血浆生化指标测定

采用双缩脲法测定血浆中总蛋白(TP)含量,分光光度法测定血浆谷丙转氨酶(ALT)活性,葡萄糖氧化酶法测定血浆GLU含量,酶偶联速率法测定血浆尿素氮(UN)含量,酶法测定血浆甘油三酯(TG)含量,分光光度法测定血浆谷草转氨酶(AST)活性,酶法测定血浆总胆固醇(TCHO)含量。所有指标采用全自动化分析仪(广州金域医学检测)测定。

1.7 肝脏抗氧化指标测定

测定肝脏过氧化物酶(POD)、超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)活性、总抗氧化能力(T-AOC)、丙二醛(MDA)含量,肝糖原以及肌糖原含量均采用试剂盒测定,试剂盒购自南京建成生物工程研究所,测定步骤、原理和计算公式等参考试剂盒说明书。

1.8 肝脏切片

肝脏固定状态良好后,对肝脏组织进行修剪、脱水、包埋、切片、染色、封片最后镜检合格的样片。在显微镜下浏览切片,使用成像显微镜拍摄或使用CaseViewer 2.2截取对应不同的典型病变部位图,对切片中典型病理改变,如炎症、坏死、变性、增生以及纤维化等情况采用箭头标识,并反映出不同组之间的差异。

1.9 实时荧光定量PCR分析

采用总RNA提取试剂盒(诺唯赞生物科技股份有限公司)提取杂交鳢肝脏总RNA。使用1%琼脂糖凝胶电泳来检测RNA完整性,DNA/RNA Calculator测定RNA浓度和纯度。然后将RNA逆转录为cDNA(HiScript® Ⅲ RT SuperMix for qPCR kit, 诺唯赞生物科技股份有限公司)。实时荧光定量PCR引物序列见表2(上海生工生物技术有限公司合成),β-肌动蛋白作为内参基因,采用20 μL反应体系:上、下游引物(10 μmol/L)各0.4 μL,组织cDNA模板2 μL,dd H2O 7.2 μL,荧光剂(2 × ChamQ Universal SYBR qPCR Master Mix)10 μL。每个样本3个重复,阴性对照采用dd H2O作为模板,根据2-ΔΔCt方法计算目的基因相对表达量[21]
表2 引物序列

Table 2 Primer sequences

基因
Genes
上游引物
Forward primer (5'—3')
下游引物
Reverse primer (5'—3')
β-肌动蛋白β-actin CACTGTGCCCATCTACGAG CCATCTCCTGCTCGAAGTC
白细胞介素-8 IL-8 GAGTCTGAGCAGCCTGGGAGT CTGTTCGCCGGTTTTCAGTG
白细胞介素-1β IL-1β GACACGATGCGATTCCTATTCT CACTGGGCAGTCTTCTCGGA
肿瘤坏死因子-α TNF-α ACAATACCACCCCAGGTCCCA ACGCAGCATCCTCTCATCCAT
转化生长因子-β TGF-β TGCGGCACCCAATCACACAAC GTTAGCATAGTAACCCGTTGGC
热休克蛋白70 HSP70 ATTTTGAATGTGTCTGCGGT ACTTGCTGATGATGGGGTTA
热休克蛋白90 HSP90 TGTATGTCAGGAGGGTGTTT TAGATTGATTTCTGGTTTTC
蛋白激酶B AKT CAGTGTGGTGATTGTCAAGGA GCCGTTCCGTCTTCATCAG
糖原合成酶GS ATCTATGCCACTCAGAGACACA CAAGGTTACAGCCACGAACAA
磷酸烯醇丙酮酸羧激酶PEPCK CTGGCTGAAGGAGTGGAGTT CACTGCCGAAGGACAGGAT
胰岛素受体底物-1 IRS-1 TGTGGCTGCTGTGGTGTT CTGGCGGAACTCCTCACTTA
葡萄糖激酶GK AGAGCAGATCCTGTCAGAGTTC ACCAGCATCACACGGAAGTT
丙酮酸激酶PK CGAGGAACTGAGGAGACACT GGCATTACGAGTAACAGCAAGA
葡萄糖转运体2 GLUT2 TGTTGTCGGCATCCTCATCA ACATCAGCACTGGCATCGTA
葡萄糖-磷酸酶G6P CACACGGAGGCAAGAAGTC CGGCGAAGGAGGTTAAGAAG
磷脂酰肌醇-3-羟激酶PI3K GGTGCGAGATGCCTCAACA AGCCAGTGACTCATTGCGATA
Toll样受体4 TLR4[22] GGAGGAGACAGAAGGTGTAGATTTG AGGTTGTGATCTTGGGCTGAGTG
髓样分化因子MyD88[22] TGTCCGAGGTGGAAAGAAGTG TCAAAGTCGCTCTGGCAGTAG

1.10 数据分析

试验数据用平均值±标准误表示,采用SPSS 25.0软件进行统计分析,先对试验数据进行方差齐性检验,满足方差齐性条件则进行单因素方差分析(one-way ANOVA),差异显著再用Tukey's检验方法进行多重比较;方差齐性条件不满足,则用Dunnett's T3检验法进行多重比较。差异显著性水平为P<0.05。

2 结果

2.1 生长性能分析

表3可知,与HC组相比,HT组FC显著降低(P<0.05),PPV显著升高(P<0.05);各组间杂交鳢FBW、WGR、SR和SGR无显著差异(P>0.05)。
表3 高碳水化合物饲料添加牛磺酸对杂交鳢生长性能的影响

Table 3 Effects of taurine supplementation in high carbohydrate diet on growth performance of Channa maculata (♀) ×C. argus (♂)

项目
Items
组别Groups
LC HC HT
初始体重IBW/g 22.02±0.01 22.02±0.01 22.02±0.01
终末体重FBW/g 103.87±7.05 94.77±5.49 105.41±5.08
增重率WGR/% 371.73±32.17 330.38±24.84 378.68±23.05
饲料系数FC 1.64±0.14ab 1.77±0.10b 1.35±0.06a
存活率SR/% 91.33±1.76 86.00±2.00 92.67±2.40
蛋白质沉积率PPV/% 26.52±2.65ab 21.53±1.29a 29.69±1.12b
特定生长率SGR/(%/d) 2.76±0.13 2.60±0.10 2.79±0.09

同行数据肩标不同字母表示差异显著(P<0.05)。下表同。

Values with different letter superscripts in the same row mean significant difference (P<0.05). The same as below.

2.2 血浆生化指标分析

表4可知,与HC组相比,HT组血浆TP含量显著升高(P<0.05);与LC组和HT组相比,HC组血浆GLU含量显著升高(P<0.05);与LC组相比,HC组和HT组血浆AST活性显著升高(P<0.05);与LC组相比,HC组和HT组血浆ALP活性显著下降(P<0.05);与LC组和HT组相比,HC组血浆ALT活性显著升高(P<0.05);各组间血浆TG、UN和TCHO含量无显著差异(P>0.05)。
表4 高碳水化合物饲料添加牛磺酸对杂交鳢血浆生化指标的影响

Table 4 Effects of taurine supplementation in high carbohydrate diet on plasma biochemical indices of Channa maculata (♀) ×C. argus (♂)

项目
Items
组别Groups
LC HC HT
总蛋白TP/(g/L) 36.13±2.59ab 33.00±0.78a 39.63±0.22b
甘油三酯TG/(mmol/L) 2.05±0.30 1.84±0.17 1.78±0.13
葡萄糖GLU/(mmol/L) 9.09±1.41a 13.06±1.11b 8.90±0.73a
尿素氮UN/(mmol/L) 0.73±0.07 0.73±0.03 0.67±0.03
谷草转氨酶AST/(U/L) 58.33±0.88a 75.33±1.20c 63.67±2.19b
总胆固醇TCHO/(mmol/L) 2.49±0.11 2.74±0.06 2.82±0.10
碱性磷酸酶ALP/(U/L) 11.67±0.33b 7.67±0.67a 11.33±0.67b
谷丙转氨酶ALT/(U/L) 2.00±0.58a 4.67±0.67b 1.67±0.67a

2.3 肝脏抗氧化指标分析

表5可知,与HC组相比,HT组肝脏T-AOC显著升高(P<0.05);与HC组相比,LC组和HT组肝脏GSH-Px活性显著升高(P<0.05);与HC组相比,HT组肝脏SOD活性显著升高(P<0.05);与HC组相比,HT组肝脏MDA含量显著升高(P<0.05);各组肝脏CAT和POD活性无显著差异(P>0.05)。
表5 高碳水化合物饲料添加牛磺酸对杂交鳢肝脏抗氧化指标的影响

Table 5 Effects of taurine supplementation in high carbohydrate diet on liver antioxidant indexes of Channa maculata (♀) ×C. argus (♂)

项目
Items
组别Groups
LC HC HT
总抗氧化能力T-AOC/(U/mg prot) 1.47±0.07ab 1.34±0.22a 1.88±0.04b
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 364.66±11.53b 281.71±3.79a 359.99±22.13b
超氧化物歧化酶SOD/(U/mg prot) 109.19±1.92ab 99.75±4.34a 112.00±2.26b
过氧化氢酶CAT/(U/mg prot) 158.11±21.86 137.48±1.58 175.28±3.90
丙二醛MDA/(nmol/mg prot) 2.21±0.37ab 3.58±0.55b 1.37±0.19a
过氧化物酶POD/(U/mg prot) 3.99±0.17 4.18±0.41 3.82±0.11

2.4 肝脏糖原和胰岛素含量分析

表6可知,与HC组相比,HT组肝脏的肝糖原含量显著下降(P<0.05);与LC组和HC组相比,HT组肝脏胰岛素含量显著升高(P<0.05);各组间肝脏肌糖原含量无显著差异(P>0.05)。
表6 高碳水化合物饲料添加牛磺酸对杂交鳢肝脏糖原和胰岛素含量的影响

Table 6 Effects of taurine supplementation in high carbohydrate diet on liver glycogen and insulin contents of Channa maculata (♀) ×C. argus (♂)ng/g

项目
Items
组别Groups
LC HC HT
肝糖原Liver glycogen 3 122.67±75.33ab 3 528.33±157.17b 2 818.00±189.85a
肌糖原Muscle glycogen 1 166.00±31.09 1 378.33±249.71 1 317.33±123.21
胰岛素Insulin 35.72±0.84a 34.87±0.89a 40.61±0.43b

2.5 肝脏胰岛素信号通路相关基因表达分析

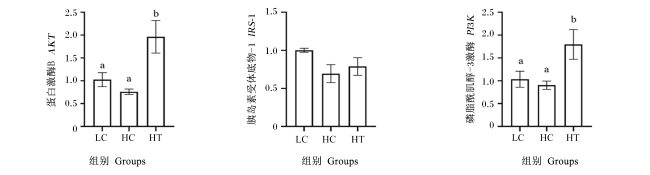
图1可知,与HC组相比,HT组肝脏蛋白激酶B(AKT)和磷脂酰肌醇-3-羟激酶(PI3K)基因相对表达量显著上调(P<0.05);各组肝脏胰岛素受体底物-1(IRS-1)基因相对表达量无显著差异(P>0.05)。
图1 高碳水化合物饲料添加牛磺酸对杂交鳢肝脏胰岛素信号通路相关基因表达的影响

数据柱标注不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of taurine supplementation in high carbohydrate diet on expression of genes related to insulin signaling pathway in liver of Channa maculata (♀) ×C. argus (♂)

Different letters in the data column indicated significant difference (P<0.05). The same as below.

2.6 肝脏糖代谢相关基因表达分析

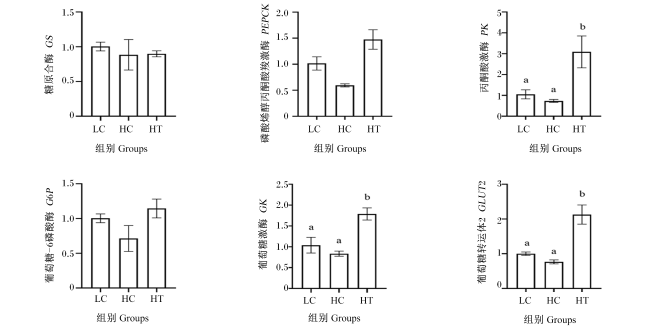
图2可知,与LC组和HC组相比,HT组肝脏丙酮酸激酶(PK)、葡萄糖激酶(GK)和葡萄糖转运体2(GLUT2)基因相对表达量显著上调(P<0.05);各组间肝脏糖原合成酶(GS)、磷酸烯醇丙酮酸羧激酶(PEPCK)和葡萄糖-磷酸酶(G6P)基因相对表达量无显著差异(P>0.05)。
图2 高碳水化合物饲料添加牛磺酸对杂交鳢肝脏糖代谢相关基因表达的影响

Fig.2 Effects of taurine supplementation in high carbohydrate diet on gene expression related to glucose metabolism in liver of Channa maculata (♀) ×C. argus (♂)

2.7 肝脏免疫相关基因表达分析

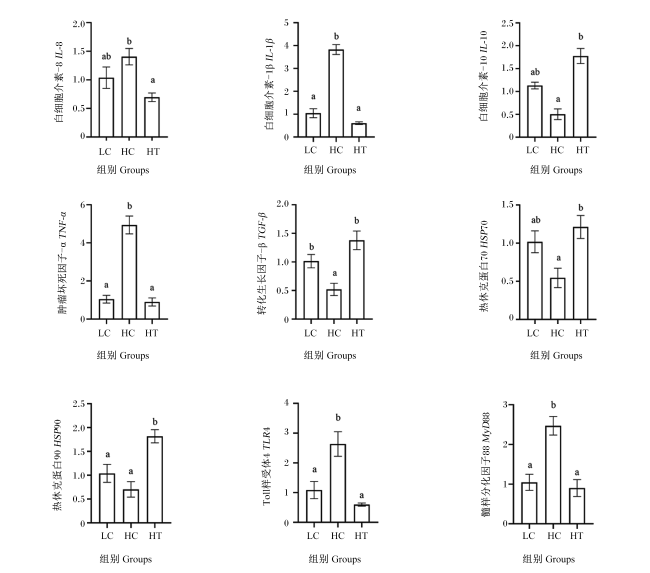
图3可知,与HC组相比,HT组肝脏白细胞介素-8(IL-8)基因相对表达量显著下调(P<0.05);与HC组相比,LC组和HT组肝脏白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)基因相对表达量显著下调(P<0.05);与HC组相比,LC组和HT组肝脏转化生长因子-β(TGF-β)基因相对表达量显著上调(P<0.05);与HC组相比,HT组肝脏热休克蛋白70(HSP70)基因相对表达量显著上调(P<0.05);与LC组和HC组相比,HT组肝脏热休克蛋白90(HSP90)基因相对表达量显著上调(P<0.05);与HC组相比,HT组肝脏白细胞介素-10(IL-10)基因相对表达量显著上调(P<0.05);与HC组相比,LC组和HT组肝脏Toll样受体4(TLR4)和髓样分化因子88(MyD88)基因相对表达量显著下调(P<0.05)。
图3 高碳水化合物饲料添加牛磺酸对杂交鳢肝脏免疫相关基因表达的影响

Fig.3 Effects of taurine supplementation in high-carbohydrate diet on gene expression related to immune in liver of Channa maculata (♀) ×C. argus (♂)

2.8 肝脏病理切片分析

图4可知,LC组和HT组杂交鳢肝索结构清晰,肝细胞排列紧密,脂质含量丰富,表现为胞浆空白,部分静脉周围可见肝胰脏,细胞形态正常,组织未见明显坏死或炎症反应。HC组杂交鳢肝胰脏周围间隙增宽(黑色箭头),小叶偶见炎性细胞小灶性浸润(红色箭头),未见其他明显异常。
图4 高碳水化合物饲料添加牛磺酸对杂交鳢肝脏形态的影响

a:肝索;b:肝胰脏。

Fig.4 Effects of taurine supplementation in high carbohydrate diet on liver morphology of Channa maculata (♀)×C. argus (♂)

a: hepatic cords; b: hepatopancreas.

3 讨论

肉食性鱼类对饲料碳水化合物利用率较低,通常控制在20%以下[22]。当饲料碳水化合物含量过高会导致鱼类生长抑制、肝糖代谢异常及炎症反应[22]。Xu等[23]研究表明,杂交鳢碳水化合物含量为11%能够显著促进生长、提高抗氧化活性和免疫应答。本研究表明,高碳水化合物饲料降低了杂交鳢WGR、SGR和PPV,升高FC,但并不显著,这说明高碳水化合物饲料对杂交鳢产生生长抑制作用。本研究结果与大黄鱼(Pseudosciaena crocea, Richardson)研究结果[24]相似。饲料碳水化合物含量较高情况下鱼类会通过高采食量维持正常的生长性能,这就解释了杂交鳢采食高碳水化合物饲料导致的FC高但生长性能降低的原因[25]。在高碳水化合物饲料中添加牛磺酸后,杂交鳢FC显著下降,PPV显著提高,WGR和SGR也相应提高,但并不显著,说明添加牛磺酸可显著提高杂交鳢的生长性能。同时牛磺酸能够提高PPV,减少蛋白质作为能源物质损耗[26]。牛磺酸还可刺激鱼类采食感受器,增强摄食效率,这充分解释了杂交鳢FC显著下降,生长性能显著提高的原因,同时也在牙鲆[27]和大菱鲆[28]等多种鱼种中得到验证。
血浆生化指标关联到鱼类的营养代谢及健康状况[29]。在本试验条件下,杂交鳢摄食高碳水化合物饲料后,血浆GLU含量显著升高。这可能由于在鱼类体内进行营养代谢过程中,高碳水化合物饲料会导致鱼类出现持续高血糖现象。这与虹鳟(Oncorhynchus mykiss)[30]和欧洲海鲈(Dicentrarchus labrax)[31]研究结果相似。当高碳水化合物饲料添加牛磺酸后,牛磺酸表现出良好的降血糖效果,这可能由于牛磺酸可以促进肌细胞摄取和利用GLU,加速糖酵解,降低血糖浓度,也可以诱导糖原合成酶Ⅰ活性升高,增加糖原的合成,同时降低糖原磷酸化酶活性,抑制糖原分解[32]。同时观察到,饲料添加牛磺酸后,血浆TP含量显著升高,这与杂交鳢PPV结果一致,表明饲料添加牛磺酸可以显著促进机体蛋白质生成,这可能由于牛磺酸可以促进大量的含硫氨基酸合成蛋白质[33]。因此,可以推测出牛磺酸可以促进杂交鳢的蛋白质合成及代谢。血清代谢酶包括ALT、AST和AKP,是检测动物健康状况的重要血清标志物,ALT、AST、AKP等组织标记酶活性的改变与器官特异性细胞损伤程度有直接关系[34]。ALP被认为参与生长、蛋白质合成、营养物质的摄取和运输等[35]。在本试验中观察到高碳水化合物饲料饲喂杂交鳢导致血浆AST和ALT活性显著升高,转氨酶活性升高代表了鱼类健康受到高碳水化合物饲料的影响。在高碳水化合物饲料中添加牛磺酸后,杂交鳢血浆ALT活性显著下降,ALP活性显著升高,这说明添加牛磺酸可保护肝脏功能免受高碳水化合物饲料损害,显著改善杂交鳢的健康状况。
机体氧化反应产生自由基,进而损坏机体细胞,引起疾病的发生[36]。机体细胞内存在氧化防御体系,可以清除氧化反应产物,使机体保持氧化动态平衡状态[37]。机体氧化防御体系包括酶系统(SOD、GSH-Px、T-AOC)和非酶系统(维生素E和维生素C)[38]。T-AOC反映机体抗氧化能力[39],SOD反映机体清除氧自由基的能力[40],GSH-Px反映机体清除过氧化氢的能力[41],MDA反映组织间脂质氧化损伤的程度[42]。在本试验条件下,高碳水化合物饲料显著降低了杂交鳢肝脏GSH-Px的活性,SOD活性和T-AOC也出现降低,但不显著。本试验结果表明,高碳水化合物饲料可降低机体的抗氧化能力,这可能由于高碳水化合物饲料降低了肝脏SOD活性,机体氧自由基显著增加,肝脏发生氧化损伤,T-AOC显著下降。同时观察到,当在高碳水化合物饲料中添加牛磺酸后,杂交鳢肝脏T-AOC、GSH-Px和SOD活性显著升高,MDA含量显著下降,对杂交鳢肝脏抗氧化能力的改善尤其明显,这表明高碳水化合物饲料中添加牛磺酸可以缓解杂交鳢的氧化应激,增强机体抗氧化能力,这可能由于牛磺酸可与自由基结合,阻止氧化反应的进行,直接发挥抗氧化作用。此外,牛磺酸还可调节线粒体蛋白质合成,促进线粒体呼吸活动,进而保护线粒体,增强机体抗氧化活性[10],这与石首鱼(Totoaba macdonaldi)[43]和欧洲鲈鱼[44]研究结果相似。
持续性高碳水化合物饲料的摄入,会使机体出现高血糖现象,这种现象也被认为机体胰岛素分泌不足[45]。在本试验条件下,HC组的杂交鳢肝脏胰岛素含量低于LC组,并表现出高血糖现象。本试验结果表明,杂交鳢吸收到体内的糖类不能很好的利用,因此杂交鳢对糖类的利用效率可能与胰岛素的分泌效率相关。同时观察到,在高碳水化合物饲料中添加牛磺酸可显著提高肝脏胰岛素含量,这可能由于牛磺酸能抑制胰腺ATP敏感的钾离子通道活性,使KATP通道关闭,β细胞去极化激活电压依赖性的钙离子(Ca2+)通道增加细胞内Ca2+,从而刺激胰岛素分泌,进而促进细胞摄取和利用GLU,加快糖酵解效率,达到降血糖作用[18]。IRS-1是胰岛素通路(IRS-1/PI3K/AKT)的第一信使,当IRS-1激活后,胰岛素信号会进入细胞并激活PI3K,进而通过AKT行使胰岛素样作用[46]。在本试验条件下,HC组杂交鳢肝脏AKTPI3K的基因表达水平被显著抑制,HT组肝脏AKTPI3K基因相对表达量显著上调,这也有力地证明了牛磺酸对杂交鳢表现出的胰岛素样作用,牛磺酸进入胰腺β细胞能够引起胰岛素的释放,从而使血浆GLU含量降低,以调控杂交鳢的糖代谢过程[18]。GLU代谢的第1步是GLUT2介导GLU和肝细胞之间的相互转运[46]。PK和GK在糖酵解中发挥限速酶作用,在本试验中,高碳水化合物饲料抑制了PKGLUT2的表达,这种抑制会直接影响到GLU在肝脏和血液之间的转运速率,这一点从肝脏糖原累积可以表明,高碳水化合物饲料抑制了糖原分解效率,从而造成肝糖原蓄积,影响肝脏糖代谢。牛磺酸的添加显著促进PKGK的基因表达,说明牛磺酸可以促进糖酵解并提高肝脏糖代谢效率。
肝脏对免疫系统的贡献非常重要,炎症反应作为鱼类免疫系统反应的重要组成部分,在应对各种挑战方面做出了巨大贡献[47-48]。炎症反应是先天免疫系统应对各种刺激的重要组成部分,主要是由细胞因子介导(IL-8、IL-1β、TNF-α、TGF-β和IL-10)[49]。IL-8主要促进中性粒细胞黏附在内皮细胞上并迁移到炎症部位[50],IL-1β和TNF-α可以通过调节其他细胞因子的表达来诱导炎症反应[51],TGF-β通过抑制炎性细胞因子的释放来有效缓解炎症[52],IL-10抑制T淋巴细胞的增殖、活化和迁移,限制炎症反应[49]。HSP在促进身体细胞对各种压力的抵抗力方面起着重要作用,因此常用于水生动物转录调控和应激反应的研究[53]HSP70和HSP90基因表达水平的上调可以显著增强机体细胞对各种应激的抵抗力,保护细胞免受氧化应激[54]。研究表明,摄入高碳水化合物饲料可引起肝脏损伤、脂肪沉积和炎症反应等。在本试验条件下,高碳水化合物饲料显著上调了肝脏IL-1βTNF-α基因相对表达量,显著下调了TGF-βHSP70基因相对表达量。本试验结果表明,肉食性鱼类由于肝糖应激,饲料中高碳水化合物直接损伤肝脏,造成肝细胞损伤及炎症反应。同时观察到,在高碳水化合物饲料中添加牛磺酸,肝脏IL-8、IL-1βTNF-αTLR4和MyD88基因相对表达量显著下调,IL-10、TGF-βHSP70基因相对表达量显著上调。这说明高碳水化合物饲料中添加牛磺酸可以显著改善杂交鳢的免疫能力。TLRs是一类跨膜蛋白,具有识别入侵病原体和触发细胞信号转导等功能,MyD88和TLR4参与炎症过程[55]。在本研究中,高碳水化合物饲料添加牛磺酸显著下调了杂交鳢肝脏中MyD88和TLR4基因的表达,结果表明,牛磺酸可激活杂交鳢的Toll样受体,介导MyD88依赖的信号通路,最终抑制促炎细胞因子IL-8、IL-1β和TNF-α的释放,激活获得性免疫反应,最终调节免疫功能,增强机体抵抗力,减轻肝脏炎症反应。由此可见,饲料中添加牛磺酸可以通过调节抗氧化酶的活性来保护肝脏免受氧化损伤,通过上调抗炎因子的表达和抑制促炎因子的表达来减轻肝脏炎症反应。在本试验条件下,当杂交鳢在高碳水化合物应激状态,肝脏进入病理状态,进而表现出HSP70基因相对表达显著下调,随着牛磺酸的添加,肝脏MyD88和TLR4基因相对表达量显著上调,TLRs通过MyD88依赖通路诱导免疫应答。综合分析表明,牛磺酸可通过调节杂交鳢肝脏TLR4-MyD88信号通路相关因子减轻炎症反应,改善免疫功能。
肝脏组织形态被认为是评价鱼类营养状况、代谢和肝脏健康的良好指标[56]。为了评估补充牛磺酸对高碳水化合物饲料引起的组织病理学改变的有效性,制作了肝脏切片。先前的研究表明,高碳水化合物饲料会损害肝脏,例如组织间隙增宽、炎症反应及细胞核破裂等[57]。在本研究的高碳水化合物组中也可以观察到炎性细胞浸润症状。同样,在本研究中,饲料中添加牛磺酸减少了由高碳水化合物饲料引起的肝脏组织学异常。由此可见,饲料中添加牛磺酸可缓解杂交鳢高碳水化合物饲料所诱导的肝脏炎症病理状态。

4 结论

综上所述,高碳水化合物饲料的摄入诱导了氧化应激、炎症反应、糖代谢紊乱甚至肝脏形态改变,显著降低了杂交鳢的生长性能。高碳水化合物饲料中添加牛磺酸显著降低了FC,这可使杂交鳢养殖饲料成本降低。此外,在高碳水化合物饲料中添加牛磺酸提高了杂交鳢肝脏的抗氧化能力,促进了肝脏胰岛素信号通路(PI3K和AKT)的激活,并通过调控TLR4-MyD88免疫信号通路,抑制促炎症因子(IL-1βTNF-α)基因表达,缓解肝脏炎症反应。
[1]
LIANG X F, CHEN P, WU X L, et al. Effects of high starch and supplementation of an olive extract on the growth performance,hepatic antioxidant capacity and lipid metabolism of largemouth bass (Micropterus salmoides)[J]. Antioxidants, 2022, 11(3):577.

DOI

[2]
FANG H H, XIE J J, LIAO S Y, et al. Effects of dietary inclusion of shrimp paste on growth performance,digestive enzymes activities,antioxidant and immunological status and intestinal morphology of hybrid snakehead (Channa maculata♀×Channa argus♂)[J]. Frontiers in Physiology, 2019, 10:1027.

DOI

[3]
YANG C, HUANG R, OU M, et al. A rapid method of sex-specific marker discovery based on NGS and determination of the XX/XY sex-determination system in Channa maculata[J]. Aquaculture, 2020, 528:735499.

DOI

[4]
SØRENSEN M, MORKEN T, KOSANOVIC M, et al. Pea and wheat starch possess different processing characteristics and affect physical quality and viscosity of extruded feed for Atlantic salmon[J]. Aquaculture Nutrition, 2011, 17(2):e326-e336.

DOI

[5]
MA H J, MOU M M, PU D C, et al. Effect of dietary starch level on growth,metabolism enzyme and oxidative status of juvenile largemouth bass,Micropterus salmoides[J]. Aquaculture, 2019, 498:482-487.

DOI

[6]
HUXTABLE R J. Physiological actions of taurine[J]. Physiological Reviews, 1992, 72(1):101-163.

DOI PMID

[7]
王芙蓉. 牛磺酸对鹌鹑生产性能、免疫功能及脂肪代谢影响的研究[D]. 博士学位论文. 无锡: 江南大学, 2010.

WANG F R. The effects of taurine on production performance,immune function and lipid metabolism in quails[D]. Ph.D.Thesis. Wuxi: Jiangnan University, 2010. (in Chinese)

[8]
钱嘉豪. 高糖饲料添加牛磺酸对不同食性鱼类IGF-1R SUMOylation修饰和糖代谢的影响研究[D]. 硕士学位论文. 湛江: 广东海洋大学, 2021.

QIAN J H. Effects of supplementing taurine to a high carbohydrate dietary on IGF-1R SUMOylation and glucose metabolism in hybrid grouper (♀Epinephelus fuscoguttatus×♂E.lanceolatus),Nile tilapia (Oreochromis niloticus) and grass carp (Ctenopharyngodon idella)[D]. Master's Thesis. Zhanjiang: Guangdong Ocean University, 2021. (in Chinese)

[9]
于道德, 郑永允, 宁璇璇, 等. 牛磺酸在鱼类中的生物学功能[J]. 海洋科学, 2010, 34(2):86-91.

YU D D, ZHENG Y Y, NING X X, et al. The biological functions of taurine on fish[J]. Marine Sciences, 2010, 34(2):86-91. (in Chinese)

[10]
JONG C J, AZUMA J N H, SCHAFFER S. Mechanism underlying the antioxidant activity of taurine:prevention of mitochondrial oxidant production[J]. Amino Acids, 2012, 42(6):2223-2232.

DOI

[11]
FUKUDA K, HIRAI Y, YOSHIDA H, et al. Free amino acid content of lymphocytes nd granulocytes compared[J]. Clinical Chemistry, 1982, 28(8):1758-1761.

PMID

[12]
IKUYAMA S, OKAJIMA T, KATO K I, et al. Effect of taurine on growth hormone and prolactin secretion in rats:possible interaction with opioid peptidergic system[J]. Life Sciences, 1988, 43(10):807-812.

DOI

[13]
SIRDAH M M. Protective and therapeutic effectiveness of taurine in diabetes mellitus:a rationale for antioxidant supplementation[J]. Diabetes & Metabolic Syndrome:Clinical Research & Reviews, 2015, 9(1):55-64.

[14]
JIRSA D, DAVIS A, STUART K, et al. Development of a practical soy-based diet for California yellowtail,Seriola lalandi[J]. Aquaculture Nutrition, 2011, 17(4):e869-e874.

DOI

[15]
TAKAGI S, MURATA H, GOTO T, et al. Efficacy of taurine supplementation for preventing green liver syndrome and improving growth performance in yearling red sea bream Pagrus major fed low-fishmeal diet[J]. Fisheries Science, 2006, 72(6):1191-1199.

DOI

[16]
TAKAGI S, MURATA H, GOTO T, et al. The green liver syndrome is caused by taurine deficiency in yellowtail,Seriola quinqueradiata fed diets without fishmeal[J]. Aquaculture Science, 2005, 53(3):279-290.

[17]
GAYLORD T G, TEAGUE A M, BARROWS F T. Taurine supplementation of all-plant protein diets for rainbow trout (Oncorhynchus mykiss)[J]. Journal of the World Aquaculture Society, 2006, 37(4):509-517.

DOI

[18]
L’AMOREAUX W J, CUTTITTA C, SANTORA A, et al. Taurine regulates insulin release from pancreatic beta cell lines[J]. Journal of Biomedical Science, 2010, 17(1):S11.

DOI

[19]
LIN S M, SHI C M, MU M M, et al. Effect of high dietary starch levels on growth,hepatic glucose metabolism,oxidative status and immune response of juvenile largemouth bass,Micropterus salmoides[J]. Fish & Shellfish Immunology, 2018, 78:121-126.

[20]
YU H H, ZHANG L L, CHEN P, et al. Dietary bile acids enhance growth,and alleviate hepatic fibrosis induced by a high starch diet via AKT/FOXO1 and cAMP/AMPK/SREBP1 pathway in Micropterus salmoides[J]. Frontiers in Physiology, 2019, 10:1430.

DOI

[21]
LIVAK K J, SCHMITTGEN T D. Analysis of relative gene expression data using real-time quantitative PCR and the 2-ΔΔCT method[J]. Methods, 2001, 25(4):402-408.

DOI

[22]
DIXON D G, HILTON J W. Influence of available dietary carbohydrate content on tolerance of waterborne copper by rainbow trout,Salmo gairdneri Richardson[J]. Journal of Fish Biology, 1981, 19(5):509-518.

DOI

[23]
XU T T, LIU X W, HUANG W Q, et al. Effects of dietary carbohydrate levels on growth,metabolic enzyme activities and oxidative status of hybrid snakehead (Channa maculata♀×Channa argus♂)[J]. Aquaculture, 2023, 563(Part 2):738960.

DOI

[24]
CHENG Z Y, MAI K S, AI Q H, et al. Effects of dietary pregelatinized corn starch on growth,apparent digestibility,and digestive enzyme activity of large yellow croaker fingerlings (Pseudosciaena crocea)[J]. Israeli Journal of Aquaculture-Bamidgeh, 2013, 65:IJA_65.2013.843.

[25]
HEMRE G I, MOMMSEN T P, KROGDAHL Å. Carbohydrates in fish nutrition:effects on growth,glucose metabolism and hepatic enzymes[J]. Aquaculture Nutrition, 2002, 8(3):175-194.

DOI

[26]
GAULL G E, PASANTES-MORALES H, WRIGHT C E. Taurine in human nutrition:overview[J]. Progress in Clinical and Biological Research, 1985, 179:3-21.

[27]
KIM S K, MATSUNARI H, TAKEUCHI T, et al. Effect of different dietary taurine levels on the conjugated bile acid composition and growth performance of juvenile and fingerling Japanese flounder Paralichthys olivaceus[J]. Aquaculture, 2007, 273(4):595-601.

DOI

[28]
YUN B, AI Q H, MAI K S, et al. Synergistic effects of dietary cholesterol and taurine on growth performance and cholesterol metabolism in juvenile turbot (Scophthalmus maximus L.) fed high plant protein diets[J]. Aquaculture, 2012, 324/325:85-91.

DOI

[29]
徐田田, 黄文庆, 李国立, 等. 不同糖水平饲料中添加新型植物提取物添加剂对杂交鳢生长、代谢及抗氧化能力的影响[J]. 饲料工业, 2022, 43(18):57-64.

XU T T, HUANG W Q, LI G L, et al. Effects of different carbohydrate levels with plant extracts feed additives supplementation on growth,metabolism and antioxidant capacity of hybrid snakehead (Channa maculata♀×Channa argus♂)[J]. Feed Industry, 2022, 43(18):57-64. (in Chinese)

[30]
DEL SOL NOVOA M, CAPILLA E, ROJAS P, et al. Glucagon and insulin response to dietary carbohydrate in rainbow trout (Oncorhynchus mykiss)[J]. General and Comparative Endocrinology, 2004, 139(1):48-54.

PMID

[31]
ENES P, SANCHEZ-GURMACHES J, NAVARRO I, et al. Role of insulin and IGF-I on the regulation of glucose metabolism in European sea bass (Dicentrarchus labrax) fed with different dietary carbohydrate levels[J]. Comparative Biochemistry and Physiology Part A:Molecular&Integrative Physiology, 2010, 157(4):346-353.

[32]
MCCARTY M F. Exploiting complementary therapeutic strategies for the treatment of type Ⅱ diabetes and prevention of its complications[J]. Medical Hypotheses, 1997, 49(2):143-152.

DOI

[33]
PARK G S, TAKEUCHI T, SEIKAI T, et al. The effects of dietary taurine on growth and taurine levels in whole body of juvenile Japanese flounder Paralichthys olivaceus[J]. Nippon Suisan Gakkaishi, 2001, 67(2):238-243.

DOI

[34]
LI Y, WU J P, CHEN X H, et al. Dietary myo-inositol requirements of juvenile hybrid sturgeon (Acipenser baerii♀×A.schrenckii♂)[J]. Aquaculture Research, 2020, 51(3):1143-1151.

DOI

[35]
YI Y L, ZHANG Z H, ZHAO F, et al. Probiotic potential of Bacillus velezensis JW:antimicrobial activity against fish pathogenic bacteria and immune enhancement effects on Carassius auratus[J]. Fish & Shellfish Immunology, 2018, 78:322-330.

[36]
HOSEINI S M, AHMAD KHAN M, YOUSEFI M, et al. Roles of arginine in fish nutrition and health:insights for future researches[J]. Reviews in Aquaculture, 2020, 12(4):2091-2108.

DOI

[37]
MA J G, LIU Y, NIU D C, et al. Effects of chlorpyrifos on the transcription of CYP3A cDNA,activity of acetylcholinesterase,and oxidative stress response of goldfish (Carassius auratus)[J]. Environmental Toxicology, 2015, 30(4):422-429.

DOI

[38]
WANG Y L, WANG C A, LIU S Y, et al. Effects of dietary arginine on growth performance,digestion,absorption ability,antioxidant capability,gene expression of intestinal protein synthesis,and inflammation-related genes of triploid juvenile Oncorhynchus mykiss fed a low-fishmeal diet[J]. Aquaculture Nutrition, 2022, 2022:3793727.

[39]
TAN X H, LIN H Z, HUANG Z, et al. Effects of dietary leucine on growth performance,feed utilization,non-specific immune responses and gut morphology of juvenile golden pompano Trachinotus ovatus[J]. Aquaculture, 2016, 465:100-107.

DOI

[40]
KONG Y D, LI M, CHU G S, et al. The positive effects of single or conjoint administration of lactic acid bacteria on Channa argus:digestive enzyme activity,antioxidant capacity,intestinal microbiota and morphology[J]. Aquaculture, 2021, 531:735852.

DOI

[41]
许治冲, 刘晖, 徐奇友, 等. 温度和饲料脂肪水平对松浦镜鲤免疫及抗氧化能力的影响[J]. 大连海洋大学学报, 2012, 27(5):429-435.

XU Z C, LIU H, XU Q Y, et al. Effects of dietary lipid levels on immunity and antioxidant function in Songpu mirror carp at different temperatures[J]. Journal of Dalian Fisheries University, 2012, 27(5):429-435. (in Chinese)

[42]
YU Z, WU X Q, ZHENG L J, et al. Effect of acute exposure to ammonia and BFT alterations on Rhynchocypris lagowski:digestive enzyme,inflammation response,oxidative stress and immunological parameters[J]. Environmental Toxicology and Pharmacology, 2020, 78:103380.

DOI

[43]
BAÑUELOS-VARGAS I, LÓPEZ L M, PÉREZ-JIMÉNEZ A, et al. Effect of fishmeal replacement by soy protein concentrate with taurine supplementation on hepatic intermediary metabolism and antioxidant status of totoaba juveniles (Totoaba macdonaldi)[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2014, 170:18-25.

DOI

[44]
FEIDANTSIS K, KAITETZIDOU E, MAVROGIANNIS N, et al. Effect of taurine-enriched diets on the Hsp expression,MAPK activation and the antioxidant defence of the European sea bass (Dicentrarchus labrax)[J]. Aquaculture Nutrition, 2014, 20(4):431-442.

DOI

[45]
BORGES P, VALENTE L M P, VÉRON V, et al. High dietary lipid level is associated with persistent hyperglycaemia and downregulation of muscle Akt-mTOR pathway in Senegalese sole (Solea senegalensis)[J]. PLOS One, 2014, 9(7):e102196.

DOI

[46]
LIU X L, LIANG Z X, DUAN H W, et al. Dengue virus is involved in insulin resistance via the downregulation of IRS-1 by inducing TNF-α secretion[J]. Biochimica et Biophysica Acta (BBA):Molecular Basis of Disease, 2022, 1868(10):166472.

[47]
JIN H M, YAN C, XIAO T F, et al. High fish oil diet promotes liver inflammation and activates the complement system[J]. Molecular Medicine Reports, 2018, 17(5):6852-6858.

DOI PMID

[48]
ZHAO J, LIU Y, JIANG J, et al. Effects of dietary isoleucine on the immune response,antioxidant status and gene expression in the head kidney of juvenile Jian carp (Cyprinus carpio var. Jian)[J]. Fish & Shellfish Immunology, 2013, 35(2):572-580.

[49]
MING J H, YE J Y, ZHANG Y X, et al. Optimal dietary curcumin improved growth performance,and modulated innate immunity,antioxidant capacity and related genes expression of NF-κB and Nrf2 signaling pathways in grass carp (Ctenopharyngodon idella) after infection with Aeromonas hydrophila[J]. Fish&Shellfish Immunology, 2020, 97:540-553.

[50]
ARNOLD H, PLUTA H J, BRAUNBECK T. Simultaneous exposure of fish to endosulfan and disulfoton in vivo:ultrastructural,stereological and biochemical reactions in hepatocytes of male rainbow trout (Oncorhynchus mykiss)[J]. Aquatic Toxicology, 1995, 33(1):17-43.

DOI

[51]
ARNOLD H, PLUTA H J, BRAUNBECK T. Sublethal effects of prolonged exposure to disulfoton in rainbow trout (Oncorhynchus mykiss):cytological alterations in the liver by a potent acetylcholine esterase inhibitor[J]. Ecotoxicology and Environmental Safety, 1996, 34(1):43-55.

DOI

[52]
JIANG W D, FENG L, LIU Y, et al. Lipid peroxidation,protein oxidant and antioxidant status of muscle,intestine and hepatopancreas for juvenile Jian carp (Cyprinus carpio var. Jian) fed graded levels of myo-inositol[J]. Food Chemistry, 2010, 120(3):692-697.

DOI

[53]
EL-LEITHY A A A, HEMEDA S A, ABD EL NABY W S H, et al. Optimum salinity for Nile tilapia (Oreochromis niloticus) growth and mRNA transcripts of ion-regulation,inflammatory,stress- and immune-related genes[J]. Fish Physiology and Biochemistry, 2019, 45(4):1217-1232.

DOI

[54]
ROBERTS R J, AGIUS C, SALIBA C, et al. Heat shock proteins (chaperones) in fish and shellfish and their potential role in relation to fish health:a review[J]. Journal of Fish Diseases, 2010, 33(10):789-801.

DOI

[55]
ROYCHOWDHURY P, AFTABUDDIN M, PATI M K. Thermal stress-induced oxidative damages in the liver and associated death in fish,Labeo rohita[J]. Fish Physiology and Biochemistry, 2021, 47(1):21-32.

DOI

[56]
TAN X H, SUN Z Z, LIU Q Y, et al. Effects of dietary Ginkgo biloba leaf extract on growth performance,plasma biochemical parameters,fish composition,immune responses,liver histology,and immune and apoptosis-related genes expression of hybrid grouper (Epinephelus lanceolatus♂×Epinephelus fuscoguttatus♀) fed high lipid diets[J]. Fish & Shellfish Immunology, 2018, 72:399-409.

[57]
ZHANG Y M, XIE S W, GUO T Y, et al. High dietary starch inclusion impairs growth and antioxidant status,and alters liver organization and intestinal microbiota in largemouth bass Micropterus salmoides[J]. Aquaculture Nutrition, 2020, 26(5):1806-1821.

DOI

文章导航

/