研究论文

β-甘露聚糖酶对鹌鹑生产性能、血浆生化指标及肠道微生物区系的影响

  • 霍文颖 , 1 ,
  • 李梦云 1 ,
  • 车龙 1 ,
  • 王彩玲 1 ,
  • 王志祥 , 2, *
展开
  • 1 河南牧业经济学院动物科技学院,郑州 450046
  • 2 河南农业大学动物科技学院,郑州 450046
* 王志祥,教授,博士生导师,E-mail:

霍文颖(1974—),女,河南杞县人,副教授,博士,从事单胃动物营养调控与饲料高效利用研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-06-16

  网络出版日期: 2023-12-11

基金资助

河南牧业经济学院博士科研启动资金项目(2019HNUAHEDF039)

Effects of β-Mannanase on Performance, Plasma Biochemical Indices and Intestinal Microflora of Egg Quail

  • HUO Wenying , 1 ,
  • LI Mengyun 1 ,
  • CHE Long 1 ,
  • WANG Cailing 1 ,
  • WANG Zhixiang , 2, *
Expand
  • 1 College of Animal Science and Technology, Henan University of Animal Husbandry and Economy, Zhengzhou 450046, China
  • 2 College of Animal Science and Technology, Henan Agricultural University, Zhengzhou 450046, China
* professor, E-mail:

Received date: 2023-06-16

  Online published: 2023-12-11

摘要

本试验旨在研究β-甘露聚糖酶对产蛋高峰期鹌鹑生产性能、养分表观代谢率、蛋品质、血浆生化指标、肠道结构和肠道微生物区系的影响。选取240只健康、体重接近的产蛋高峰期(80日龄)鹌鹑,随机分为2组,每组6个重复,每个重复20只。对照组饲喂基础饲粮,试验组在基础饲粮中添加200 mg/kg的β-甘露聚糖酶。预试期30 d,正试期120 d。结果显示:与对照组相比,添加β-甘露聚糖酶极显著提高了十二指肠和回肠的绒毛高度和绒隐比、Chao1指数、ACE指数、α-变形菌纲(Alphaproteobacteria)和梭菌纲(Clostridia)的相对丰度(P<0.01),极显著改善了蛋形指数(P<0.01),显著提高了鹌鹑的平均蛋重、能量和粗蛋白质的表观代谢率、血浆总蛋白(TP)和白蛋白(ALB)的含量以及丹丝毒菌纲(Erysipelotrichia)的相对丰度(P<0.05),显著改善了蛋壳强度、蛋黄颜色和哈氏单位(P<0.05),此外,极显著降低了死淘率、十二指肠的隐窝深度和Negativicutes的相对丰度(P<0.01),显著降低了料蛋比、血浆肌酐(CRE)含量、谷丙转氨酶(ALT)和谷草转氨酶(AST)的活性、白细胞介素-1(IL-1)的含量(P<0.05)。综上所述,在产蛋高峰期鹌鹑饲粮中添加200 mg/kg的β-甘露聚糖酶可改善盲肠微生物区系的组成,提高鹌鹑的生产性能、养分表观代谢率、蛋品质、免疫力和肠道的健康。

本文引用格式

霍文颖 , 李梦云 , 车龙 , 王彩玲 , 王志祥 . β-甘露聚糖酶对鹌鹑生产性能、血浆生化指标及肠道微生物区系的影响[J]. 动物营养学报, 2023 , 35(12) : 7839 -7851 . DOI: 10.12418/CJAN2023.712

Abstract

This experiment investigated the effects of β-mannanase on performance, nutrient apparent metabolic rates, egg quality, plasma biochemical indices, intestinal structure, and intestinal microflora of quail during the peak laying period. A total of 240 healthy quail (80 days of age) with similar body weight at the peak of egg production were randomly divided into two groups: six replicates per group and 20 quail per replicate. Quail in the control group were fed a basal diet, and those in the experimental group were fed the basal diet supplemented with 200 mg/kg β-mannanase. The pre-test period was 30 days, and the test period was 120 days. The results showed that compared with the control group, the addition of β-mannanase significantly increased the villus height and ratio of villus height to crypt depth, Chao1 index, ACE index, and the relative abundance of Alphaproteobacteria and Clostridia in duodenum and ileum (P<0.01), significantly improved egg shape index (P<0.01), significantly increased the average egg weight, apparent metabolic rates of energy and crude protein, the contents of total protein (TP) and albumin (ALB) in plasma and the relative abundance of Erysipelotrichia (P<0.05), significantly improved egg shell strength, egg yolk color and Haugh unit (P<0.05). In addition, the death rate, duodenal crypt depth and relative abundance of Negativicutes significantly reduced (P<0.01),and the ratio of feed to egg, the content of creatinine (CRE), the activities of alanine aminotransferase (ALT) and aspartate aminotransferase (AST) and the content of interleukin-1 (IL-1) significantly decreased (P<0.05). In conclusion, dietary supplementation of 200 mg/kg β-mannanase can improve the composition of cecal microflora, performance, nutrient apparent metabolic rate, egg quality, immunity, and intestinal health of quail during the peak laying period.

β-甘露聚糖是一种非淀粉多糖,由β-1,4-D-吡喃甘露糖苷键连接而成的线状多糖,也是存在于玉米-豆粕型饲粮中的抗营养因子,它会增加消化道内食糜的黏性,从而影响动物对饲粮中养分的消化与吸收,导致养分消化率的下降[1-2]。β-甘露聚糖酶是一类半纤维素水解酶,能够水解甘露聚糖和异甘露聚糖中的β-1,4-D-糖苷键。通过将β-甘露聚糖酶添加到动物饲粮中,能够有效降解饲粮中的甘露聚糖含量,促进被细胞壁包裹的养分在消化道中的释放,从而降低食糜的黏度。此外,β-甘露聚糖酶还能通过增加十二指肠和空肠绒毛的高度,扩大其表面积,增强动物对养分的吸收能力[3]
大量研究表明,饲粮中添加β-甘露聚糖酶可以改善畜禽的生长性能[4-6]。β-甘露聚糖酶主要作为外源性酶参与机体对养分的消化。Zheng等[7]的研究表明,将β-甘露聚糖酶添加到蛋鸡饲粮中可以提高产蛋前期的采食量、产蛋率和蛋壳质量。高会战[8]报道,将β-甘露聚糖酶添加到肉鸡饲粮中可以改善肠道形态,促进蛋白质的沉积。目前对β-甘露聚糖酶的研究多集中在肉鸡、蛋鸡和断奶仔猪上,在蛋用鹌鹑上的应用研究甚少。因此,本试验的目的是研究β-甘露聚糖酶对产蛋高峰期鹌鹑的生产性能、养分表观代谢率、蛋品质、血浆生化指标、肠道结构和肠道微生物区系的影响,为β-甘露聚糖酶在鹌鹑饲粮中的应用提供理论依据。

1 材料与方法

1.1 试验材料

β-甘露聚糖酶的活性为3.6×10⁸ U/kg。

1.2 试验设计

将240只健康、体重接近的产蛋高峰期(80日龄)鹌鹑随机分为2组,每组6个重复,每个重复20只。对照组饲喂玉米-豆粕型基础饲粮(其组成及营养水平见表1),试验组在基础饲粮中添加200 mg/kg β-甘露聚糖酶(预试验发现添加200 mg/kg的β-甘露聚糖酶是提高鹌鹑生产性能的最佳剂量,因此,在本试验中重点研究200 mg/kg β-甘露聚糖酶对鹌鹑的影响)。预试期30 d,正试期120 d。试验期间记录采食量、产蛋数并计算产蛋率、平均蛋重和料蛋比。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 53.00
豆粕Soybean meal 35.00
鱼粉Fish meal 2.50
石粉Limestone 5.80
磷酸氢钙CaHPO4 1.40
食盐NaCl 0.30
豆油Soybean oil 1.00
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 12.41
粗蛋白质CP 20.32
粗脂肪EE 1.47
粗纤维CF 1.85
钙Ca 3.54
总磷TP 0.63

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Fe (as ferrous sulfate) 80 mg,Mn (as manganese sulfate) 100 mg,Cu (as copper sulfate) 70 mg,Zn (as zinc sulfate) 70 mg,VA 12 000 IU,VD3 3 500 IU,VE 18 IU,VK3 1 mg,VB2 2.5 mg,VB6 2 mg。

2)代谢能为计算值,其他均为实测值。ME was a calculated value, while the others were measured values.

1.3 饲养管理

饲养试验在河南牧业经济学院动物科技学院动物试验场进行,采用3层立式笼养,自由采食和饮水,按常规饲养管理方法进行。

1.4 样品采集

蛋样:试验结束时,每个重复随机收取鹌鹑蛋10个,置于4 ℃保存,在24 h内检测蛋品质。
血浆样:试验结束时,每个重复随机选取体重相近的鹌鹑10只,空腹12 h,用无菌采血管于翅静脉采血,立即3 000 r/min离心10 min,将血浆和红细胞分离;将血浆转移到无菌离心管中,放至-20 ℃冰箱保存待测。
粪样:代谢试验采用全收粪法,在试验期末110~114 d,每日以重复为单位,收集的粪便(去除粪中的杂物)在60~65 ℃烘干至恒重,自然状态下回潮24 h,称重记录,粉碎后过40目筛备用。
肠道样:鹌鹑屠宰后取十二指肠、空肠、回肠约1 cm的肠段样本保存于4%甲醛溶液中待测。
盲肠内容物样:取盲肠内容物于无菌离心管中,液氮速冻后放至-80 ℃冰箱保存待测。

1.5 指标测定

1.5.1 生产性能

以重复为单位,记录每日每个重复产蛋鹌鹑投料量、余料量、产蛋数及蛋重,计算平均日采食量、产蛋率、平均蛋重及料蛋比。计算公式如下:
产蛋率(%)=100×产蛋总数/存栏鹌鹑数;
平均日采食量(g)=(每笼所喂饲粮总量-每笼的余料量)/存栏鹌鹑数;
平均蛋重(g)=每笼总蛋重/每笼总蛋数;
料蛋比=平均日采食量/平均蛋重。

1.5.2 养分表观代谢率

饲粮和粪样中的干物质含量采用干燥法(GB/T 6435—2006)测定;能量采用全自动氧弹测热计(IKA-C2000,德国IKA公司)测定;粗蛋白质含量采用凯氏定氮法(GB/T 6432—2018)测定;粗脂肪含量采用乙醚浸提法(GB/T 6433—2006)测定。
养分表观代谢率(%)=100×(饲粮采食量×饲粮养分含量-排泄物量×排泄物养分含量)/(饲粮采食量×饲粮养分含量)。

1.5.3 蛋品质

蛋重、蛋黄颜色、蛋白高度与哈氏单位:使用蛋品质分析仪(EA-01型,以色列ORKO公司)检测。
蛋壳强度:将鹌鹑蛋放于蛋壳强度分析仪(ESTG-01型,以色列ORKO公司)进行检测。
蛋壳厚度:使用蛋壳厚度测定仪(NFN-380型,日本FHK公司)测定蛋的上部、中部及下部的厚度,取其平均值,精确到0.02 mm。
蛋形指数:使用游标卡尺测定每个鹌鹑蛋的横径与纵径,按照蛋形指数(%)=100×横径/纵径进行计算。
蛋比重:用100 mL的量筒先量取40 mL的水,再将鹌鹑蛋缓慢放入量筒内,总体积减去40 mL得出蛋的体积,按照蛋比重(g/mL)=蛋重/蛋体积进行计算。

1.5.4 血浆生化指标

血浆中尿素氮、钙、白蛋白、肌酐、葡萄糖、总蛋白、无机磷、胰岛素、胰岛素样生长因子、白细胞介素-1、白细胞介素-2、白细胞介素-6和白细胞介素-8含量及谷丙转氨酶、谷草转氨酶活性采用自动生化分析仪测定。

1.5.5 肠道结构

取保存于4%甲醛溶液中的各肠段样本,经水洗、脱水、浸蜡、包埋、切片、贴片等处理后,再进行苏木精-伊红染色,使用光学显微镜观察肠道组织形态,并测量肠绒毛高度、隐窝深度,计算绒隐比。

1.5.6 肠道微生物区系

采用高通量测序的方法检测盲肠内容物微生物丰度,测序由诺禾致源科技股份有限公司完成(北京)。提取盲肠内容物中的DNA,采用Illumina平台对V3~V4区群落DNA片段进行双端(paired-end)测序,采用DADA2方法进行去引物、质量过滤、去噪、拼接和去嵌合体。分析软件:QIIME2(2019.4)。分析步骤:首先调用qiimecutadapt trim-paired切除序列的引物片段,弃去未匹配引物的序列;然后通过qiime dada2 denoise-paired调用DADA2进行质控、去噪、拼接、去嵌合体。引物信息为F:5'-ACTCCTACGGGAGGCAGCA-3';R:5'-CGGACTACHVGGGT-3'。图片绘制和数据分析在云平台上进行。

1.6 数据处理与分析

试验数据使用SPSS 20.0软件进行独立样本t检验,结果以平均值和均值标准误(SEM)表示,P<0.05和P<0.01分别为差异显著和极显著的判断标准。

2 结果与分析

2.1 β-甘露聚糖酶对产蛋高峰期鹌鹑生产性能的影响

表2所示,与对照组相比,β-甘露聚糖酶组在31~60 d时的料蛋比显著降低(P<0.05);在91~120 d时产蛋率显著升高(P<0.05);饲养全期(1~120 d),平均蛋重显著升高(P<0.05),料蛋比显著降低(P<0.05),死淘率极显著降低(P<0.01)。
表2 饲粮中添加β-甘露聚糖酶对产蛋高峰期鹌鹑生产性能的影响

Table 2 Effects of dietary β-mannanase supplementation on performance of quail during peak laying period (n=6)

项目
Items
对照组
Control group
β-甘露聚糖酶组
β-mannanase group
均值标准误
SEM
P
P-value
1 to 30 d
平均日采食量Average daily feed intake/g 26.32 26.44 0.22 0.80
平均蛋重Average egg weight/g 10.77 10.84 0.06 0.91
产蛋率Laying rate/% 90.42 90.45 0.80 0.99
料蛋比Feed/egg 2.45 2.44 0.02 0.75
31 to 60 d
平均日采食量Average daily feed intake/g 26.58 26.67 0.23 0.87
平均蛋重Average egg weight/g 10.82 11.66 0.07 0.80
产蛋率Laying rate/% 87.29 87.45 0.88 0.93
料蛋比Feed/egg 2.46a 2.29b 0.04 0.02
61 to 90 d
平均日采食量Average daily feed intake/g 28.19 28.20 0.24 0.98
平均蛋重Average egg weight/g 10.91 11.21 0.08 0.58
产蛋率Laying rate/% 85.15 87.83 1.24 0.30
料蛋比Feed/egg 2.59 2.52 0.02 0.52
91 to 120 d
平均日采食量Average daily feed intake/g 28.51 28.07 0.23 0.38
平均蛋重Average egg weight/g 11.09 11.27 0.10 0.92
产蛋率Laying rate/% 82.48b 87.85a 1.29 0.03
料蛋比Feed/egg 2.57 2.49 0.02 0.38
1 to 120 d
平均日采食量Average daily feed intake/g 27.27 27.35 0.19 0.85
平均蛋重Average egg weight/g 10.87b 11.26a 0.09 0.01
产蛋率Laying rate/% 86.22 88.04 0.67 0.19
料蛋比Feed/egg 2.51a 2.43b 0.02 0.02
死淘率Death and culling rate/% 7.84A 1.96B 1.03 <0.01

同行数据肩标无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean significant difference (P<0.01). The same as below.

2.2 β-甘露聚糖酶对产蛋高峰期鹌鹑养分表观代谢率的影响

表3所示,与对照组相比,β-甘露聚糖酶组能量和粗蛋白质养分表观代谢率显著升高(P<0.05),干物质、粗脂肪养分表观代谢率差异不显著(P>0.05)。
表3 饲粮中添加β-甘露聚糖酶对产蛋高峰期鹌鹑养分表观代谢率的影响

Table 3 Effects of dietary β-mannanase supplementation on nutrient apparent metabolic rates of quail during peak laying period (n=6) %

项目
Items
对照组
Control group
β-甘露聚糖酶组
β-mannanase group
均值标准误
SEM
P
P-value
能量Energy 58.82b 66.27a 1.90 0.04
干物质DM 51.39 55.47 3.41 0.57
粗蛋白质CP 42.76b 48.13a 1.18 0.01
粗脂肪EE 85.83 89.36 1.64 0.30

2.3 β-甘露聚糖酶对产蛋高峰期鹌鹑蛋品质的影响

表4所示,与对照组相比,β-甘露聚糖酶组的蛋形指数极显著升高(P<0.01),蛋壳强度、蛋黄颜色和哈氏单位显著升高(P<0.05),蛋比重、蛋白高度、蛋壳厚度差异不显著(P>0.05)。
表4 饲粮中添加β-甘露聚糖酶对产蛋高峰期鹌鹑蛋品质的影响

Table 4 Effects of dietary β-mannanase supplementation on egg quality of quail during peak laying period (n=10)

项目
Items
对照组
Control group
β-甘露聚糖酶组
β-mannanase group
均值标准误
SEM
P
P-value
蛋形指数Egg shape index 1.29B 1.33A 0.01 <0.01
蛋比重Egg specific gravity/(g/mL) 1.12 1.09 0.01 0.07
蛋壳强度Eggshell strength/N 1.35b 1.47a 0.03 0.03
蛋黄颜色Yolk color 4.63b 4.87a 0.06 0.03
蛋白高度Egg white height/mm 4.42 4.64 0.08 0.19
蛋壳厚度Eggshell thickness/mm 0.20 0.21 <0.01 0.34
哈氏单位Haugh unit 88.48b 90.73a 0.50 0.02

2.4 β-甘露聚糖酶对产蛋高峰期鹌鹑血浆生化指标的影响

表5所示,与对照组相比,β-甘露聚糖酶组血浆白蛋白、总蛋白含量显著升高(P<0.05),白细胞介素-1含量及谷丙转氨酶、谷草转氨酶活性显著降低(P<0.05),肌酐含量极显著降低(P<0.01),尿素氮、钙、葡萄糖、无机磷、胰岛素、胰岛素样生长因子-1、白细胞介素-2、白细胞介素-6、白细胞介素-8含量差异不显著(P>0.05)。
表5 饲粮中添加β-甘露聚糖酶对产蛋高峰期鹌鹑血浆生化指标的影响

Table 5 Effects of dietary β-mannanase supplementation on plasma biochemical indices of quail during peak laying period (n=10)

项目
Items
对照组
Control group
β-甘露聚糖酶组
β-mannanase group
均值标准误
SEM
P
P-value
尿素氮UN/(mmol/L) 1.68 1.72 0.47 0.97
钙Ca/(mmol/L) 1.58 1.46 0.06 0.38
白蛋白ALB/(g/L) 7.49b 9.40a 0.47 0.04
肌酐CRE/(μmol/L) 2 322.60A 1 314.97B 177.76 <0.01
谷丙转氨酶ALT/(U/L) 23.02a 14.30b 1.98 0.02
谷草转氨酶AST/(U/L) 91.49a 50.94b 8.29 0.01
葡萄糖GLU/(mmol/L) 21.51 20.84 0.89 0.72
总蛋白TP/(g/L) 23.31b 28.51a 1.14 0.01
无机磷Inorganic P/(mmol/L) 0.85 0.63 0.10 0.30
胰岛素INS/(mU/L) 34.49 34.72 0.51 0.83
胰岛素样生长因子-1 IGF-1/(ng/mL) 121.60 114.78 2.57 0.20
白细胞介素-1 IL-1/(pg/mL) 253.18a 239.77b 3.22 0.03
白细胞介素-2 IL-2/(pg/mL) 243.28 238.52 2.79 0.42
白细胞介素-6 IL-6/(pg/mL) 23.94 24.50 0.38 0.49
白细胞介素-8 IL-8/(pg/mL) 93.84 99.94 1.89 0.11

2.5 β-甘露聚糖酶对产蛋高峰期鹌鹑肠道结构的影响

表6所示,与对照组相比,β-甘露聚糖酶组十二指肠和回肠的绒毛高度和绒隐比极显著升高(P<0.01),十二指肠的隐窝深度极显著降低(P<0.01),其他指标无显著差异(P>0.05)。
表6 饲粮中添加β-甘露聚糖酶对产蛋高峰期鹌鹑肠道结构的影响

Table 6 Effects of dietary β-mannanase supplementation on intestinal structure of quail during peak laying period (n=6)

项目
Items
对照组
Control group
β-甘露聚糖酶组
β-mannanase group
均值标准误
SEM
P
P-value
十二指肠Duodenum
绒毛高度Villus height/mm 0.84B 1.01A 0.25 <0.01
隐窝深度Crypt depth/mm 0.23A 0.18B 0.01 <0.01
绒隐比VH/CD 3.68B 5.65A 0.27 <0.01
空肠Jejunum
绒毛高度Villus height/mm 0.79 0.84 0.02 0.14
隐窝深度Crypt depth/mm 0.16 0.18 0.01 0.20
绒隐比VH/CD 5.06 4.77 0.23 0.56
回肠Ileum
绒毛高度Villus height/mm 0.43B 0.53A 0.02 <0.01
隐窝深度Crypt depth/mm 0.10 0.11 <0.01 0.51
绒隐比VH/CD 4.24B 5.14A 0.17 <0.01

2.6 β-甘露聚糖酶对产蛋高峰期鹌鹑盲肠微生物区系的影响

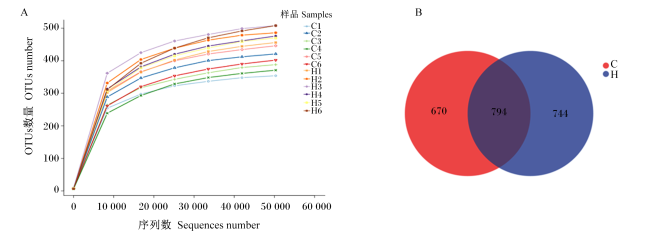
稀释曲线可直接反映测序数据量的合理性,并间接反映样本中物种的丰富程度。由图1-A可以看出,测试深度较小时,操作分类单元(OTUs)数量变化剧烈,OTUs数量随着测序深度的增加而大幅度增加,当测序深度达到10 000 reads时,曲线趋向平坦时,说明测序数据量足够大,可以反映样品中绝大多数的微生物物种信息。本研究中盲肠内容物曲线趋于平坦,说明测序数据量足够大,测序结果是合理的。
图1 稀释曲线(A)和维恩图分析(B)

“C”表示对照组,“H”表示β-甘露聚糖酶组。下图同。

Fig.1 Rarefaction curve (A) (n=6) and Venn diagram analysis (B)

“C” represents the control group, “H” represents the β-mannanase group. The same as below.

基于Illumina MiSeq高通量测序平台分别对12份盲肠内容物样本(每组各6份)的16S rRNA基因V3~V4区进行测序。除去不正确的嵌合序列后,总共产生了815 952个高质量的读数。平均每个样品获得67 996个序列,平均长度为421 bp。在物种水平上使用99%序列相似性标准共鉴定出2 208个OTUs,根据Greengenes分类,它们都属于细菌域。如图1-B所示,2组共有794个OTUs,对照组特有670个OTUs,β-甘露聚糖酶组特有744个OTUs。

2.6.1 β-甘露聚糖酶对产蛋高峰期鹌鹑盲肠微生物alpha多样性的影响
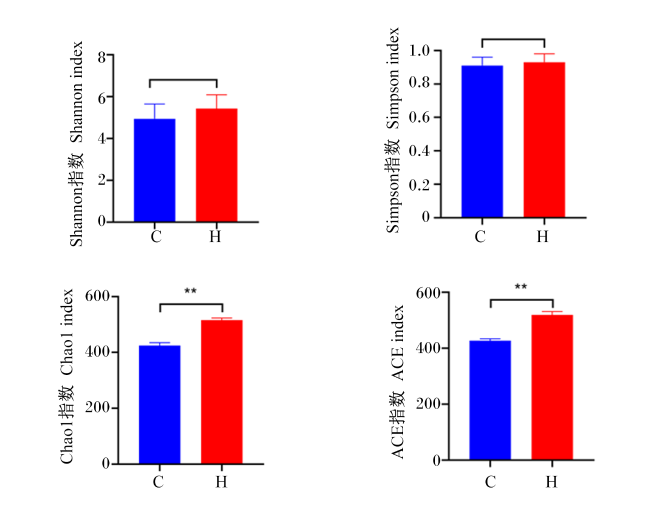
alpha多样性是指特定区域或生态系统内的多样性。Chao1或ACE指数越大,说明群落丰度越高。Shannon指数越大,说明群落多样性越高。Simpson指数越大,说明群落多样性越低。如图2所示,与对照组相比,β-甘露聚糖酶组的Chao1指数和ACE指数极显著升高(P<0.01),Shannon指数和Simpson指数无显著差异(P>0.05),说明饲粮中添加β-甘露聚糖酶提高了盲肠微生物菌群的丰富度。
图2 alpha多样性分析

“*”表示差异显著(P<0.05);“**”表示差异极显著(P<0.01)。 下图同。

Fig.2 Alpha diversity analysis (n=6)

“*” indicates a significant difference(P<0.05); “**”indicates a very significant difference (P<0.01). The same as below.

2.6.2 β-甘露聚糖酶对产蛋高峰期鹌鹑盲肠微生物beta多样性的影响

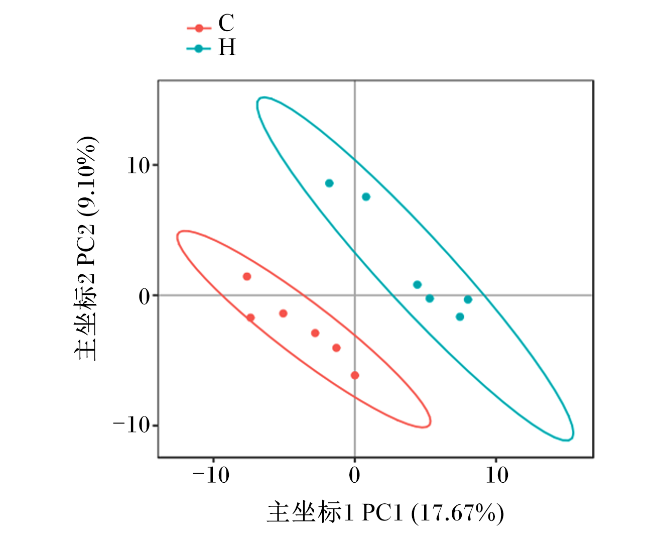
beta多样性用来分析不同分组间盲肠菌群多样性的指标。其中通常以Weighted UniFrac距离为基础的主坐标分析(PCoA)对2组间盲肠菌群多样性的差异或相似性进行分析。图中每1个点代表1个样本,相同颜色的点表示来自同一个分组,2点的距离越近则表示两者的群落构成差异越小。如图3所示,2组样本完全分离,表明饲粮添加β-甘露聚糖酶改变了菌群结构。
图3 主坐标分析

Fig.3 Principal coordinate analysis (n=6)

2.6.3 β-甘露聚糖酶对产蛋高峰期鹌鹑盲肠微生物菌群组成的影响

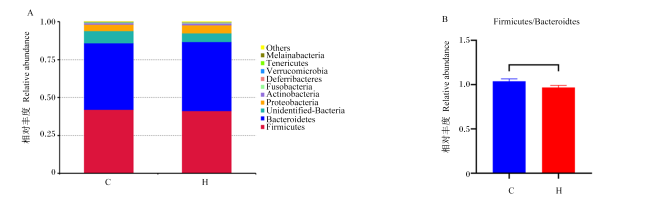
图4-A所示,2组的前5个优势菌门依次是厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidetes)、未知菌门(Unidentified-Bacteria)、变形菌门(Proteobacteria)、放线菌门(Actinobacteria),占菌群分类的99%以上。如图4-B所示,2组间厚壁菌门与拟杆菌门的比值差异不显著(P>0.05)。
图4 β-甘露聚糖酶对产蛋高峰期鹌鹑盲肠微生物门水平菌群丰度的影响

Firmicutes:厚壁菌门;Bacteroidetes:拟杆菌门;Unidentified-Bacteria:未知菌门; Proteobacteria:变形菌门; Actinobacteria:放线菌门;Fusobacteria:梭杆菌门;Deferribacteres:脱铁杆菌门;Verrucomicrobia:疣微菌门;Tenericutes:软壁菌门;Others:其他。

Fig.4 Effects of β-mannanase on phylum level flora abundance of cecal microorganisms of quail during peak laying period (n=6)

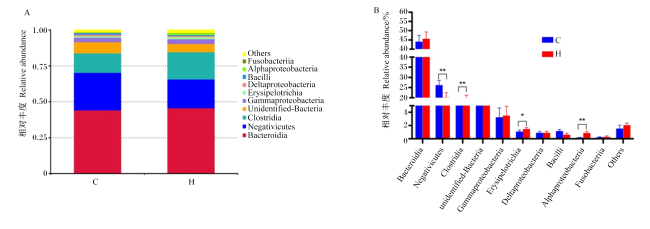
图5-A所示,在纲水平上,鹌鹑盲肠中的10大优势菌纲分别是拟杆菌纲(Bacteroidia)、Negativicutes、梭菌纲(Clostridia)、未知菌纲(unidentified-Bacteria)、γ-变形菌纲(Gammaproteobacteria)、丹丝毒菌纲(Erysipelotrichia)、δ-变形菌纲(Deltaproteobacteria)、杆菌纲(Bacilli)、α-变形菌纲(Alphaproteobacteria)、梭杆菌纲(Fusobacteriaceae)。如图5-B所示,对前10个优势菌纲进行统计分析,与对照组相比,β-甘露聚糖酶组的梭菌纲和α-变形菌纲的相对丰度极显著升高(P<0.01),丹丝毒菌纲的相对丰度显著升高(P<0.05),Negativicutes的相对丰度极显著降低(P<0.01)。
图5 β-甘露聚糖酶对产蛋高峰期鹌鹑盲肠微生物纲水平菌群丰度的影响

Bacteroidia:拟杆菌纲;Clostridia:梭菌纲;Unidentified-Bacteria:未知菌纲;Gammaproteobacteria:γ-变形菌纲;Erysipelotrichia:丹丝毒菌纲;Deltaproteobacteria:δ-变形菌纲;Bacilli:杆菌纲;Alphaproteobacteria:α-变形菌纲;Fusobateriia:梭杆菌纲;Others:其他。

Fig.5 Effects of β-mannanase on flora abundance of cecal microorganisms at class level of quail during peak laying period (n=6)

2.6.4 鹌鹑盲肠微生物菌群丰度与表型指标的相关性分析

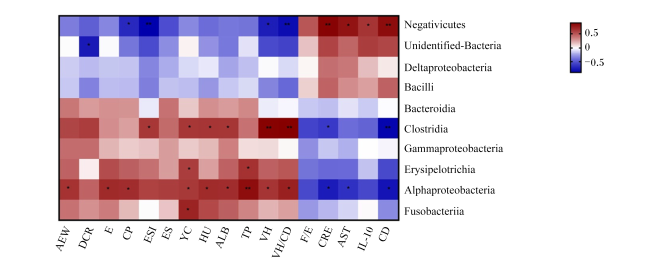
为了预测前10个细菌纲与19个差异表型指标之间的相关性,进行了Pearson相关性分析。如图6所示,Negativicutes相对丰度与血浆肌酐含量和隐窝深度呈极显著正相关(P<0.01),与血浆白细胞介素-1含量和谷草转氨酶活性呈显著正相关(P<0.05),但与蛋形指数和绒隐比呈极显著负相关(P<0.01),与粗蛋白质表观代谢率和绒毛高度呈显著负相关(P<0.05)。未知菌纲相对丰度与死淘率呈显著负相关(P<0.05)。梭菌纲相对丰度与绒毛高度和绒隐比呈极显著正相关(P<0.01),与蛋形指数、蛋黄颜色、哈氏单位、血浆白蛋白含量呈显著正相关(P<0.05),但与隐窝深度呈极显著负相关(P<0.01),与血浆肌酐含量呈显著负相关(P<0.05)。丹丝毒菌纲相对丰度与血清总蛋白含量和蛋黄颜色呈显著正相关(P<0.05)。α-变形菌纲相对丰度与血浆总蛋白含量呈极显著正相关(P<0.01),与平均蛋重、能量和粗蛋白质表观代谢率、蛋黄颜色、哈氏单位、血浆白蛋白含量、绒毛高度和绒隐比呈显著正相关(P<0.05),但与血浆肌酐含量及谷草转氨酶活性、隐窝深度呈显著负相关(P<0.05)。梭杆菌纲相对丰度与蛋黄颜色呈显著正相关(P<0.05)。
图6 纲水平的菌与差异表型指标的相关性分析

*表示显著相关(P<0.05);**表示极显著相关(P<0.01)。* indicates significant correlation (P<0.05); ** indicates very significant correlation (P<0.01).

Unidentified-Bacteria:未知菌纲;Deltaproteobacteria:δ-变形菌纲;Bacilli:杆菌纲;Bacteroidia:拟杆菌纲;Clostridia:梭菌纲; Gammaproteobacteria:γ-变形菌纲; Erysipelotrichia:丹丝毒菌纲;Alphaproteobacteria:α-变形菌纲;Fusobacteriia:梭杆菌纲。AEW:平均蛋重 average egg weight;DCR:死淘率 death and culling rate;E:能量 energy;CP:粗蛋白质 crude protein;ESI:蛋形指数egg pattern index;ES:蛋壳强度 eggshell thickness;YC:蛋黄颜色 eggshell color;HU:哈氏单位 Haugh unit;ALB:白蛋白 albumin;TP:总蛋白total protein;VH:绒毛高度villus height;VH/CD:绒隐比 villus height/crypt depth;F/E:料蛋比 feed to egg ratio;CRE:肌酐 creatinine;AST:谷草转氨酶 aspartate aminotransferase;IL-10:白细胞介素-10 interleukin-10;CD:隐窝深度 crypt depth。

Fig.6 Correlation analysis between bacteria at class level and different phenotypic indexes (n=6)

3 讨论

3.1 饲粮添加β-甘露聚糖酶对产蛋高峰期鹌鹑生产性能、蛋品质和养分表观代谢率的影响

玉米-豆粕型饲粮中含有大量的β-甘露聚糖,影响畜禽对营养物质的消化吸收和利用,而在动物饲粮中加入β-甘露聚糖酶能将甘露聚糖降解为甘露聚糖单元,其能够弥补动物内源消化酶的不足,并对饲粮中的抗营养因子进行消除和降解,提高饲粮的转化率和利用效率,进而改善动物的生长性能[9]。研究表明,β-甘露聚糖酶通过降解对内源性酶具有抗性的碳水化合物,显著提高畜禽的生长性能,改善饲料的转化率[10-11]。Zheng等[7]的研究表明,将β-甘露聚糖酶添加到蛋鸡饲粮中可以提高产蛋前期的采食量、产蛋率和蛋壳质量。 营养物质代谢率是衡量动物消化吸收营养物质的重要指标。其水平的高低直接影响动物的生长性能,反映饲粮的营养价值。赵娜等[12]的研究表明,在肉鸡低能量饲粮中加入500 mg/kg的β-甘露聚糖酶,其养分表观代谢率达到了饲喂高能量饲粮的水平。张俊妍等[13]的研究表明,在白来杭蛋鸡饲粮中添加200 g/t的β-甘露聚糖酶可显著提高产蛋率、蛋重、蛋壳厚度和蛋黄颜色,降低破蛋率。本试验研究表明,在产蛋高峰期鹌鹑饲粮中添加β-甘露聚糖酶,提高了平均蛋重、产蛋率、蛋形指数、蛋壳强度、哈氏单位,改善了蛋黄颜色,降低了死淘率;此外,还提高了饲粮能量和粗蛋白质的养分表观代谢率。与前人研究的饲粮中补充β-甘露聚糖酶对能量利用和营养物质表观消化率有显著积极作用的结果[14]相一致。这表明了饲粮添加β-甘露聚糖酶能够弥补动物体内源消化酶的不足,并对饲粮中的抗营养因子进行消除和降解,提高饲料转化率和利用效率,进而改善动物的生产性能。

3.2 饲粮添加β-甘露聚糖酶对产蛋高峰期鹌鹑血浆生化指标的影响

血液中的总蛋白含量主要由白蛋白和球蛋白组成,其在血液中的含量可以反映出机体的蛋白质代谢情况[15]。张俊妍等[13]的研究表明,饲粮中添加β-甘露聚糖酶的蛋鸡血清中白蛋白含量会升高。谷丙转氨酶和谷草转氨酶是常见的监测肝脏损伤的指标[16-17]。白细胞介素-1、白细胞介素-2、白细胞介素-6和白细胞介素-8等细胞因子属于促炎性细胞因子,能够激活动物机体的先天性免疫和获得性免疫系统,介导炎症反应的产生和加剧[18]。测量血浆中肌酐含量是评估肾脏功能的重要方法之一。当肾脏受到损伤,血浆中的肌酐含量就会升高。本试验研究表明,在鹌鹑饲粮中添加β-甘露聚糖酶可以提高血浆中总蛋白和白蛋白的含量。这说明β-甘露聚糖酶能够促进蛋白质合成和增强机体免疫力,可能是由于该酶能降低鹌鹑小肠内的非淀粉多糖含量,使得饲粮中的营养物质更容易被消化吸收。此外,添加β-甘露聚糖酶还可以降低血浆谷丙转氨酶和谷草转氨酶的活性及肌酐、白细胞介素-1含量。这表明β-甘露聚糖酶能够缓解鹌鹑的生理应激反应和炎症反应,减轻机体负担,保护肝脏和肾脏健康。

3.3 饲粮添加β-甘露聚糖酶对产蛋高峰期鹌鹑肠道结构的影响

肠道作为动物体最大的免疫器官,不仅负责营养物质的消化和吸收,还作为免疫系统的一部分发挥屏障作用[19]。小肠黏膜的形态学指标主要包括绒毛高度、隐窝深度和绒隐比。绒毛高度和绒隐比是估计小肠营养吸收能力的常用标准,较高的绒毛高度和绒隐比意味着小肠吸收能力增强[20-21]。Mehri等[22]研究发现,通过添加900 g/t的β-甘露聚糖酶到肉鸡饲粮中,可以有效地促进小肠养分的吸收和利用,从而显著提高小肠的绒毛高度、杯状细胞数量、小肠不同部位的隐窝深度和上皮厚度。本试验研究表明,在鹌鹑饲粮中添加β-甘露聚糖酶可以提高十二指肠和回肠的绒毛高度和绒隐比,表明了通过添加β-甘露聚糖酶到鹌鹑饲粮中,可以促进肠道对养分的吸收和利用,改善肠道形态,增强肠道屏障功能,从而提高动物的消化吸收能力和免疫防御能力。

3.4 饲粮添加β-甘露聚糖酶对产蛋高峰期鹌鹑肠道微生物区系的影响

肠道菌群与宿主共生,通过调节消化、肠道发育、营养物质吸收和代谢以及先天免疫和适应性免疫系统的功能发挥重要作用[23]。本试验研究表明,饲粮中添加β-甘露聚糖酶提高了Chao1指数和ACE指数从而提高了菌群的丰度。beta多样性分析得出添加β-甘露聚糖酶改变了菌群的结构。在门水平上,本试验中排在前2位的优势菌门为:厚壁菌门和拟杆菌门。拟杆菌门是动物胃肠道菌群中最重要的共生菌之一,它能够抑制宿主肠道病原菌定植,而许多属于厚壁菌门的细菌已经被证明参与能量代谢和维持肠道健康[24]。厚壁菌门与拟杆菌门的比值增加有利于营养物质的吸收[25],并与肠道微生物菌群组成以及宿主获取能量的能力密切相关[26]。研究表明,肉鸡饲粮中添加黄芪多糖和甘草多糖提高了厚壁菌门与拟杆菌门的比值,有利于肉仔鸡肠道微生物对营养物质的吸收[27]。而本试验研究表明,在鹌鹑饲粮中添加β-甘露聚糖酶并未提高厚壁菌门与拟杆菌门的比值,试验结果与他人的研究不同,造成这种现象的原因可能与试验动物、饲粮水平的不同等因素有关。因此,β-甘露聚糖酶对微生物门水平菌群组成的影响还有待于进一步的研究。
在纲水平上,本试验中有显著差异的优势菌纲分别为Negativicutes、梭菌纲、丹丝毒菌纲、α-变形菌纲。丹丝毒菌纲是革兰氏阳性菌的一个类群,在细菌分类系统中属于厚壁菌门。丹丝毒菌纲在肠道内发挥着重要作用,与肠道健康和代谢疾病密切相关。一些丹丝毒菌纲可产生有益代谢产物,例如丙酮酸和丁酸,而另一些丹丝毒菌纲可能与肥胖症、炎症性肠病以及其他代谢相关疾病的发展有关[28]。α-变形菌纲类群的一些细菌可以存在于人和动物的肠道中,与肠道微生物菌群的形成和调节密切相关。研究发现,α-变形菌纲下的SphingomonasMethylosinusAfipia等菌株都能够在人体肠道内定植并参与维护肠道健康状态[26]。另外,一些α-变形菌纲的细菌还能够分解多种复杂碳水化合物和蛋白质,释放出有益的代谢产物,从而改善肠道环境,对宿主产生积极作用[29-30]。研究表明,丁酸梭菌属于梭菌纲类别的细菌,其在动物肠道内可以参与食物消化、产生有益物质(如短链脂肪酸)以供肠细胞利用,并与宿主的免疫系统保持平衡,对维持肠道健康和功能发挥重要作用[31-32]。Negativicutes是一类革兰氏阴性菌,可能参与多种疾病的发生和发展,例如口腔炎症、龋齿、糖尿病、冠心病等[33-36]。研究表明,饲粮中添加D-半乳糖饲喂3周可提高Negativicutes的相对丰度,诱导断奶仔猪慢性氧化应激,降低生长性能[37]。本试验研究表明,添加β-甘露聚糖酶提高了丹丝毒菌纲、α-变形菌纲和梭菌纲的相对丰度,降低了Negativicutes的相对丰度,表明β-甘露聚糖酶对鹌鹑的肠道健康具有保护作用,使大多数有益菌数量增多,有害菌数量减少,使肠道微生物向有利的方向发展。
相关性分析表明,丹丝毒菌纲相对丰度与血浆总蛋白含量和蛋黄颜色呈显著正相关。α-变形菌纲相对丰度与平均蛋重、能量和粗蛋白质表观代谢率、蛋黄颜色、哈氏单位、血浆白蛋白和总蛋白含量、绒毛高度、绒隐比呈显著正相关,但与血浆肌酐含量及谷草转氨酶活性、隐窝深度呈显著负相关。梭菌纲相对丰度与蛋形指数、蛋黄颜色、哈氏单位、血浆白蛋白含量、绒毛高度、绒隐比呈显著正相关,但与血浆肌酐含量和隐窝深度呈显著负相关。Negativicutes相对丰度与血浆肌酐、白细胞介素-1含量及谷草转氨酶活性和隐窝深度呈显著正相关,但与粗蛋白质表观代谢率、蛋形指数、绒毛高度和绒隐比呈显著负相关,表明饲粮中添加200 mg/kg的β-甘露聚糖酶可通过改变盲肠微生物菌群的组成,提高鹌鹑的生产性能、养分表观代谢率、蛋品质、免疫力和肠道健康。

4 结论

在产蛋高峰期鹌鹑饲粮中添加200 mg/kg的β-甘露聚糖酶可通过改变盲肠微生物区系的组成,提高鹌鹑的生产性能、养分表观代谢率、蛋品质、免疫力和肠道健康。
[1]
CHAUHAN P S, PURI N E, SHARMA P, et al. Mannanases:microbial sources,production,properties and potential biotechnological applications[J]. Applied Microbiology and Biotechnology, 2012, 93(5):1817-1830.

DOI

[2]
SRIVASTAVA P K, KAPOOR M. Production,properties,and applications of endo-β-mannanases[J]. Biotechnology Advances, 2017, 35(1):1-19.

DOI

[3]
JEONG S, JO N, LEE J J, et al. Effects of β-mannanase and bacteriophage supplementation on health and growth performance of Holstein calves[J]. Animals, 2021, 11(2):372.

DOI

[4]
LIU S S, MA C, LIU L, et al. β-xylosidase and β-mannosidase in combination improved growth performance and altered microbial profiles in weanling pigs fed a corn-soybean meal-based diet[J]. Asian-Australasian Journal of Animal Sciences, 2019, 32(11):1734-1744.

DOI PMID

[5]
YAQOOB M U, YOUSAF M, KHAN M I, et al. Effect of β-mannanase supplementation on growth performance,ileal digestibility,carcass traits,intestinal morphology,and meat quality in broilers fed low-ME diets[J]. Animals, 2022, 12(9):1126.

DOI

[6]
WHITE D, ADHIKARI R, WANG J, et al. Effects of dietary protein,energy and β-mannanase on laying performance,egg quality,and ileal amino acid digestibility in laying hens[J]. Poultry Science, 2021(6):101312.

[7]
ZHENG L, CHO S H, KANG C W, et al. Effects of β-mannanase on egg production performance,egg quality,intestinal microbiota,viscosity,and ammonia concentration in laying hens[J]. Brazilian Journal of Poultry Science, 2020, 22(1): eRBCA-2019-1180.

[8]
高会战. 日粮中添加β-甘露聚糖酶对肉鸡生产性能及肠道健康的影响[D]. 硕士学位论文. 泰安: 山东农业大学, 2015.

GAO H Z. Effects of dietary β-mannanase supplementation on production performance and intestinal health in broilers[D]. Master’s Thesis. Tai’an: Shandong Agricultural University, 2015. (in Chinese)

[9]
WU G, BRYANT M M, VOITLE R A, et al. Effects of β-mannanase in corn-soy diets on commercial leghorns in second-cycle hens[J]. Poultry Science, 2005, 84(6):894-897.

DOI

[10]
LEE J T, BAILEY C A, CARTWRIGHT A L. β-mannanase ameliorates viscosity-associated depression of growth in broiler chickens fed guar germ and hull fractions[J]. Poultry Science, 2003, 82(12):1925-1931.

DOI

[11]
ODETALLAH N H, FERKET P R, GRIMES J L, et al. Effect of mannan-endo-1,4-beta-mannosidase on the growth performance of turkeys fed diets containing 44 and 48% crude protein soybean meal[J]. Poultry Science, 2002, 81(9):1322-1331.

PMID

[12]
赵娜, 韩苗苗, 龚利敏, 等. 低能日粮中添加β-甘露聚糖酶对肉仔鸡生长性能及养分表观消化率的影响[J]. 中国畜牧杂志, 2017, 53(11):61-65.

ZHAO N, HAN M M, GONG L M, et al. Effects of β-mannanase on growth performance and apparent nutrient digestibility of broilers fed with low energy diets[J]. Chinese Journal of Animal Science, 2017, 53(11):61-65. (in Chinese)

[13]
张俊妍, 华丽娜, 郑传威, 等. 冬季添加β-甘露聚糖酶对白壳蛋鸡生产性能、蛋品质、血液指标的影响[J]. 中国家禽, 2015, 37(6):24-29.

ZHANG J Y, HUA L N, ZHENG C W, et al. Effects of β-mannanase supplementation in winter on production performance,egg quality and blood parameters of white shell layers[J]. China Poultry, 2015, 37(6):24-29. (in Chinese)

[14]
DAWOOD A, SHI W B. Effect of dietary β-mannanase supplementation on growth performance,digestibility,and gene expression levels of Cyprinus carpio (Linnaeus) fingerlings fed a plant protein-rich diet[J]. Frontiers in Veterinary Science, 2022, 9:956054.

DOI

[15]
阮栋, 周桂莲, 王薇薇, 等. 饲粮代谢能和粗蛋白质水平对1-8周龄慢速型黄羽肉鸡母鸡生长性能、胴体品质和血浆生化指标的影响[J]. 动物营养学报, 2022, 34(12):7649-7663.

DOI

RUAN D, ZHOU G L, WANG W W, et al. Effects of dietary metabolizable energy and crude protein levels on growth performance,carcass quality and plasma biochemical indices of slow-growing yellow-feathered female chickens aged from 1 to 8 weeks[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7649-7663. (in Chinese)

DOI

[16]
曹三成. 临床医学检验手册[M]. 天津: 天津科学技术出版社, 2012.

CAO S C. Clinical medical laboratory handbook[M].Tianjin: TianjinScience and Technology Press, 2012. (in Chinese)

[17]
安秀秀, 李向宝, 魏学良, 等. 过瘤胃胆碱和有机铬对围产期奶牛干物质采食量、奶产量及血液生化指标的影响[J]. 动物营养学报, 2022, 34(2):989-999.

DOI

AN X X, LI X B, WEI X L, et al. Effects of rumen-protected choline and organic chromium on dry matter intake,milk yield and blood biochemical indexes of dairy cows during transition period[J]. Chinese Journal of Animal Nutrition, 2022, 34(2):989-999. (in Chinese)

[18]
RUAN D, JIANG S Q, HU Y J, et al. Effects of corn distillers dried grains with solubles on performance,oxidative status,intestinal immunity and meat quality of Chinese yellow broilers[J]. Journal of Animal Physiology and Animal Nutrition, 2017, 101(6):1185-1193.

DOI

[19]
SHAO Y J, GUO Y M, WANG Z. β-1,3/1,6-glucan alleviated intestinal mucosal barrier impairment of broiler chickens challenged with Salmonella enterica serovar typhimurium[J]. Poultry Science, 2013, 92(7):1764-1773.

DOI

[20]
TUCCI F M, THOMAZ M C, HANNAS M I, et al. Effects of the addition of trofic agents in weaned piglets diet on the expression of the enzyme ornithine decarboxylase,on the contents of protein and DNA and on performance[J]. Ciência Animal Brasileira, 2014, 15(4):377-383.

DOI

[21]
CAIRO P L G, GOIS F D, SBARDELLA M, et al. Effects of dietary supplementation of red pepper (Schinus terebinthifolius Raddi) essential oil on performance,small intestinal morphology and microbial counts of weanling pigs[J]. Journal of the Science of Food and Agriculture, 2018, 98(2):541-548.

DOI

[22]
MEHRI M, ADIBMORADI M, SAMIE A, et al. Effects of β-mannanase on broiler performance,gut morphology and immune system[J]. African Journal of Biotechnology, 2010, 9(37):6221-6228.

[23]
MAHMOOD T, GUO Y M. Dietary fiber and chicken microbiome interaction:where will it lead to?[J]. Animal Nutrition, 2020, 6(1):1-8.

DOI

[24]
GHOSHAL U C. Postinfection irritable bowel syndrome[J]. Gut and Liver, 2022, 16(3):331-340.

DOI

[25]
HOU Q C, KWOK L Y, ZHENG Y, et al. Differential fecal microbiota are retained in broiler chicken lines divergently selected for fatness traits[J]. Scientific Reports, 2016, 6:37376.

DOI PMID

[26]
KASAI C K, SUGIMOTO K, MORITANI I, et al. Comparison of the gut microbiota composition between obese and non-obese individuals in a Japanese population,as analyzed by terminal restriction fragment length polymorphism and next-generation sequencing[J]. BMC Gastroenterology, 2015, 15:100.

DOI

[27]
QIAO Y Y, LIU C Z, GUO Y P, et al. Polysaccharides derived from Astragalus membranaceus and Glycyrrhiza uralensis improve growth performance of broilers by enhancing intestinal health and modulating gut microbiota[J]. Poultry Science, 2022, 101(7):101905.

DOI

[28]
KAAKOUSH N O. Insights into the role of Erysipelotrichaceae in the human host[J]. Frontiers in Cellular and Infection Microbiology, 2015, 5:84.

[29]
VANDEPUTTE D, KATHAGEN G, D'HOE K, et al. Quantitative microbiome profiling links gut community variation to microbial load[J]. Nature, 2017, 551(7681):507-511.

DOI

[30]
REY F E, FAITH J J, BAIN J, et al. Dissecting the in vivo metabolic potential of two human gut acetogens[J]. Journal of Biological Chemistry, 2010, 285(29):22082-22090.

DOI

[31]
STOEVA M K, GARCIA-SO J, JUSTICE N, et al. Butyrate-producing human gut symbiont,Clostridium butyricum,and its role in health and disease[J]. Gut Microbes, 2021, 13(1):1-28.

[32]
CHEN D F, JIN D C, HUANG S M, et al. Clostridium butyricum,a butyrate-producing probiotic,inhibits intestinal tumor development through modulating Wnt signaling and gut microbiota[J]. Cancer Letters, 2020, 469:456-467.

DOI

[33]
SINGH R K, CHANG H W, YAN D, et al. Influence of diet on the gut microbiome and implications for human health[J]. Journal of Translational Medicine, 2017, 15(1):73.

DOI PMID

[34]
WU N, YANG X, ZHANG R F, et al. Dysbiosis signature of fecal microbiota in colorectal cancer patients[J]. Microbial Ecology, 2013, 66(2):462-470.

DOI PMID

[35]
OLSEN I, YAMAZAKI K. Can oral bacteria affect the microbiome of the gut?[J]. Journal of Oral Microbiology, 2019, 11(1):1586422.

DOI

[36]
TAI N W, WONG F S, WEN L. The role of gut microbiota in the development of type 1,type 2 diabetes mellitus and obesity[J]. Reviews in Endocrine and Metabolic Disorders, 2015, 16(1):55-65.

DOI

[37]
HAN H, LIU Z M, YIN J, et al. D-galactose induces chronic oxidative stress and alters gut microbiota in weaned piglets[J]. Frontiers in Physiology, 2021, 12:634283.

DOI

文章导航

/