研究论文

固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺发育的影响及代谢组学分析

  • 梁玉鸿 , 1 ,
  • 焦洋 1 ,
  • 刘书杰 1 ,
  • 杨得玉 1 ,
  • 周玉青 2 ,
  • 张万明 2 ,
  • 崔占鸿 , 1, *
展开
  • 1 青海大学畜牧兽医科学院,农业农村部青藏高原放牧牦牛藏羊动物营养与饲草料重点实验室,青海省牦牛工程技术研究中心,青海省高原放牧家畜动物营养与饲料科学重点实验室,西宁 810016
  • 2 海北藏族自治州高原生态畜牧业科技示范园管委会,海晏 810299
* 崔占鸿,研究员,硕士生导师,E-mail:

梁玉鸿(1998—),女,贵州赤水人,硕士研究生,研究方向为反刍动物营养与饲料。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-06-22

  网络出版日期: 2023-12-11

基金资助

国家自然科学基金项目(32260853)

青海省中央引导地方科技发展资金项目(2023-ZY-017)

Effects of Different Feeding Levels of Solid Feed on Pancreatic Development of Suckling Yak Calves and Its Metabolomic Analysis

  • LIANG Yuhong , 1 ,
  • JIAO Yang 1 ,
  • LIU Shujie 1 ,
  • YANG Deyu 1 ,
  • ZHOU Yuqing 2 ,
  • ZHANG Wanming 2 ,
  • CUI Zhanhong , 1, *
Expand
  • 1 Key Laboratory of Plateau Grazing Animal Nutrition and Feed Science of Qinghai Province, Yak Engineering Technology Research Center of Qinghai Province, Key Laboratory of Animal Nutrition and Forage-Feed of Grazing Yak and Tibetan Sheep in Qinghai-Tibetan Plateau, Ministry of Agriculture and Rural Affairs, Academy of Animal Husbandry and Veterinary Sciences, Qinghai University, Xining 810016, China
  • 2 Management Committee of Plateau Ecological Animal Husbandry Science and Technology Demonstration Park, Haibei Tibetan Autonomous Prefecture, Haiyan 810299,China
* professor, E-mail:

Received date: 2023-06-22

  Online published: 2023-12-11

摘要

牦牛犊牛出生后,经历从采食液体饲料过渡到采食固体饲料、由非反刍营养型过渡到反刍营养型的转变。犊牛及早适应采食固体饲料对其生长和消化系统发育非常关键,是犊牛培育的重点。本试验旨在利用非靶向代谢组学技术探究固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺发育的影响。选取日龄[(60±3)日龄]、体重[(54.20±3.28) kg]相近的21头健康的牦牛犊牛(公)作为试验动物,随机分为3组,即低饲喂量组(40%采食组,IR40组)、中饲喂量组(70%采食组,IR70组)和高饲喂量组(自由采食组,AL组),每组7头。3组试验犊牛均在饲喂等量代乳粉的基础上,分别采食低、中、高饲喂量的固体饲料(精料和苜蓿干草)。预试期30 d,正试期90 d。结果表明:1)AL组的体重、胰腺指数、外分泌部面积总占比显著高于IR70组(P<0.05);AL组的体重、胰腺重量、胰腺指数、外分泌部面积总占比显著高于IR40组(P<0.05)。2)AL组胰腺的胰淀粉酶、胰蛋白酶活性和胰岛素含量显著高于IR70组(P<0.05);AL组胰腺的胰淀粉酶、胰蛋白酶、糜蛋白酶活性和胰高血糖素、胰岛素、生长抑素含量显著高于IR40组(P<0.05);IR70组胰腺的胰高血糖素含量显著高于IR40组(P<0.05)。3)代谢组学分析发现,与AL组相比,IR70组在甾体生物合成中,麦角钙化醇含量显著上升(P<0.05);在卵母细胞减数分裂通路、孕酮介导的卵母细胞成熟通路和乳腺癌通路中,孕酮含量均显著上升(P<0.05);在嘧啶代谢通路中,脱氧胞苷酸、尿嘧啶含量显著上升(P<0.05)。与IR40组相比,IR70组在胰岛素抵抗通路中,UDP-N-乙酰葡糖胺含量显著下降(P<0.05);在甾体生物合成通路中,麦角钙化醇含量显著上升(P<0.05);在内分泌抵抗通路中,睾酮含量显著上升(P<0.05);在甘氨酸、丝氨酸和苏氨酸代谢通路中,O-磷酸-L-丝氨酸含量显著下降(P<0.05);在新霉素、卡那霉素和庆大霉素生物合成通路中,UDP-N-乙酰葡糖胺含量显著下降(P<0.05);在甾体激素生物合成通路中,科托酮、睾酮含量显著上升(P<0.05)。综上得出,采用代乳饲喂方式培育哺乳期牦牛犊牛时,提高固体饲料饲喂量改善了犊牛的生长发育质量,促进了其胰腺组织形态与功能的发育;且中饲喂量能够诱导哺乳期牦牛犊牛胰腺细胞分化,提升机体对小分子营养物质的消化吸收能力。

本文引用格式

梁玉鸿 , 焦洋 , 刘书杰 , 杨得玉 , 周玉青 , 张万明 , 崔占鸿 . 固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺发育的影响及代谢组学分析[J]. 动物营养学报, 2023 , 35(12) : 7903 -7919 . DOI: 10.12418/CJAN2023.717

Abstract

After the birth of a yak calf, the early adaptation of calves to solid feed is critical to their growth and digestive system development, as it involves the transition from liquid to solid feed and from a non-ruminant to a ruminant nutritional type. It is considered the focus of calf breeding. The aim of this experiment was to investigate the effects of different feeding levels of solid feed on the development of pancreas in suckling yak calves using non-targeted metabolomics techniques. Twenty-one healthy yak calves (males) with similar age [(60±3) days of age] and weight [(44.45±2.50) kg] were selected as test animals and randomly divided into three groups: the low feeding group (40% feed intake group, IR40 group), the medium feeding group (70% feed intake group, IR70 group) and the high feeding group (free feeding group, AL group), with 7 yak calves in each group. All three groups were fed equal amounts of milk replacer and different amounts of solid feed (concentrate and alfalfa hay). The pretest period lasted for 30 days, and the test period lasted for 90 days. The results showed as follows: 1) the body weight, pancreatic organ index and total percentage of external secretory part area were significantly higher in the AL group than the IR70 group (P<0.05); additionally,the body weight, pancreatic weight, pancreatic organ index and total percentage of external secretory part area were significantly higher in the AL group than the IR40 group (P<0.05). 2) Pancreatic amylase, pancreatic protease activity and insulin content were significantly higher in the AL group than the IR70 group (P<0.05).Moreover, pancreatic amylase, trypsin and chymotrypsin activities and glucagon, insulin and growth inhibitor contents were significantly higher in the AL group than the IR40 group (P<0.05); glucagon content was significantly higher in the IR70 group than the IR40 group (P<0.05). 3) Metabolomic analysis revealed a significant increase in ergocalciferol content in steroid biosynthesis in the IR70 group compared with the AL group (P<0.05); progesterone content was significantly increased in the oocyte meiotic pathway, progesterone-mediated oocyte maturation pathway and breast cancer pathway (P<0.05); in the pyrimidine metabolic pathway, the contents of deoxycytidylic acid and uracil were significantly increased (P<0.05); the content of UDP-N-acetylglucosamine in the insulin resistance pathway was significantly decreased in the IR70 group compared with the IR40 group (P<0.05); the ergocalciferol content in the steroid biosynthesis pathway was significantly increased (P<0.05); the testosterone content in the endocrine resistance pathway was significantly increased (P<0.05); the O-phosphate-L-serine content in the glycine, serine and threonine metabolic pathways was significantly decreased (P<0.05); UDP-N-acetylglucosamine content was significantly reduced in the neomycin, kanamycin and gentamicin biosynthetic pathways (P<0.05); in the steroid hormone biosynthetic pathway, corticosterone and testosterone contents were significantly increased (P<0.05). In summary,it is concluded that when suckling yak calves are bred by milk replacer feeding,increasing the amount of solid feed improve the quality of growth and development of yak calves,and promote the development of the morphology and function of their pancreatic tissues; and the medium feeding amount can induce the differentiation of pancreatic cells in suckling yak calves,and enhance the body’s ability to digest and absorb small molecule nutrients.

牦牛作为青藏地区牧民饲养的主要优势反刍家畜之一[1],对当地较为恶劣的自然生态环境有极强适应性[2-3]。然而,高原冷季时间较长,牧草质量呈季节性变化,使得带犊母牦牛营养摄入不足,母牦牛泌乳量和牧草质量不足以满足牦牛犊牛生长需要[4-5]。同时,初生犊牛免疫能力低下,营养缺乏使其对抗疾病的能力减弱,严重时可致其死亡。犊牛作为牦牛产业持续高质量发展的基础,传统的随母哺乳饲养方式不利于犊牛的生长发育,导致犊牛培育质量不高,是影响牦牛产业高质量发展的突出问题之一。本团队前期研究表明,哺乳期牦牛犊牛在饲喂代乳粉的基础上进行早期补饲,能够提高牦牛犊牛的生长性能[6-9],增强犊牛的抗病能力[10-12]。提升牦牛犊牛摄入的营养水平可以增加犊牛胰腺腺泡和胰岛的分布密集程度,也会增加胰腺外分泌部面积总占比和胰腺内分泌部面积总占比[13]。段嘉钰等[14]和张颖楠等[15]研究发现,合理的饲粮营养水平会影响哺乳期牦牛犊牛主要内脏器官和胃肠道的良好发育,降低犊牛的腹泻频率,有利于犊牛早期的健康生长。因此,在犊牛的早期培育中,科学合理的饲粮营养水平可以有效促进犊牛健康生长,也为后期高质量生产奠定坚实基础。
胰腺是集合了内、外分泌2种组织的器官,其外分泌组织包括腺泡和导管,其功能是分泌和运输含有多种消化酶的胰液[16];内分泌组织也称胰岛,是紧实的内分泌细胞团簇,这些细胞分别通过分泌内分泌激素,共同参与血糖调节[16-17]。胰腺淀粉酶分泌不足特别是对奶牛小肠淀粉消化率的降低是关键因素[18]。于红霞等[19]研究发现,亮氨酸不是长期调控山羊胰腺的α-淀粉酶分泌的重要因素。马晓玲等[20]运用液相色谱-质谱(LC-MS)技术,通过差异代谢物的筛选发现经产母牦牛围产后期会发生不同程度的代谢障碍,导致产后生殖系统恢复困难,这也说明了代谢组学技术可以更加准确地揭示机体的内在机制规律。郭龙[21]研究发现,功能性氨基酸可以调控奶牛胰腺的发育,提高其生长发育和生产性能。焦洋等[13]研究发现,早期补饲可以提高牦牛犊牛的营养水平,提高胰腺分泌的酶活性和激素含量,促进胰腺的生长发育,但科学合理的饲粮营养水平对牦牛犊牛胰腺发育的相关文献还比较少。因此,本试验以牦牛犊牛为研究对象,运用非靶向代谢组学技术探究固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺发育的影响,为牦牛犊牛培育的早期营养调控提供理论依据。

1 材料与方法

1.1 试验设计

选取日龄[(60±3)日龄]、体重[(54.20±3.28) kg]相近的21头健康的牦牛犊牛(公)作为试验动物,随机分为3组,即低饲喂量组(40%采食组,IR40组)、中饲喂量组(70%采食组,IR70组)和高饲喂量组(自由采食组,AL组),每组7头。试验期为2021年8月10日至2021年12月7日,共计120 d,其中预试期30 d,正试期90 d。试验基地位于东经100°96'和北纬36°92'范围内的青海省海北州海晏县,海拔3 010 m,年平均气温1.5 ℃。

1.2 饲养管理及试验饲粮

牦牛犊牛在40 d断母乳,40 d以前随母哺乳,每日哺乳量为1.29 kg/d[6],40 d以后采用代乳粉代替母乳饲喂进行早期培育,同时补充饲喂固体饲料(精料和苜蓿干草)。3组的代乳粉饲喂量相同。代乳粉和温水(煮沸后冷却至42 ℃)以1∶5的比例混合均匀,倒入奶瓶中,犊牛主动进行吸吮,分早、晚2次饲喂。正试期开始时3组代乳粉饲喂量为0.40 kg/d,之后每5 d增加10 g。基础饲粮为苜蓿干草和精料,精粗比3组均为3∶7,饲喂时先喂精料后喂粗料,分早、晚2次饲喂。正试期开始时3组精料饲喂量分别为0.30、0.21、0.12 kg/d,之后每10 d分别增加30、21、12 g;3组苜蓿干草饲喂量分别为0.70、0.49、0.28 kg/d,之后每10 d分别增加50、35、20 g。牦牛犊牛均采用单栏饲养,有足够的活动空间,自由饮水。代乳粉购自北京精准动物营养研究中心,精料购自湟源县河湟青牧饲料有限公司,粗料为3~5 cm的苜蓿干草。饲料的营养水平见表1。基础饲粮组成见表2。IR40组、IR70组和AL组每10 d苜蓿干草、精料营养水平变化分别见表3表4
表1 饲料的营养水平(干物质基础)

Table 1 Nutritent levels of diets (DM basis) %

项目Items 代乳粉MR 苜蓿干草AH 精料SC
粗蛋白质CP 26.24 12.50 20.00
粗脂肪EE 27.90 0.90 4.70
中性洗涤纤维NDF 46.65 38.50
酸性洗涤纤维ADF 35.70 29.80
钙Ca 2.50 0.98 0.80
磷P 1.40 0.18 0.45

营养水平均为测定值。表3表4同。

Nutrient levels were measured values. The same as Table 3 and Table 4.

表2 基础饲粮组成(绝干基础)

Table 2 Composition of the basal diet (absolute dry basis) %

原料Ingredients 含量Content
苜蓿Alfalfa 70.00
玉米Corn 9.00
小麦Wheat 7.00
小麦麸Wheat bran 4.00
豆粕Soybean meal 3.00
菜籽粕Rapeseed meal 5.00
食盐NaCl 0.50
预混料Premix 1.50
合计Total 100.00

预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Ca 60 mg,P 45 mg,Na 48 mg,K 90 mg,Mg 36 mg,Cu 22 mg,Fe 126.3 mg,Zn 46.8 mg,Mn 54.18 mg,VA 60 000 IU,VD3 325 000 IU,VE 1 000 IU。

表3 IR40组、IR70组和AL组每10 d苜蓿干草营养水平变化

Table 3 Changes of nutrient levels of alfalfa hay per 10 days in IR40, IR70 and AL groups %

时间
Times
组别
Groups
粗蛋白质
CP
粗脂肪
EE
中性洗
涤纤维
NDF
酸性洗
涤纤维
ADF

Ca

P

2021.09.09—2021.09.18
IR40 2.67 0.19 9.96 7.62 0.21 0.04
IR70 4.65 0.33 17.35 13.27 0.36 0.07
AL 6.67 0.48 24.91 19.06 0.52 0.10

2021.09.19—2021.09.28
IR40 3.07 0.22 11.46 8.77 0.24 0.04
IR70 5.53 0.40 20.65 15.81 0.43 0.08
AL 8.24 0.59 30.74 23.53 0.64 0.12

2021.09.29—2021.10.08
IR40 1.48 0.11 5.52 4.23 0.12 0.02
IR70 4.55 0.33 16.98 12.99 0.36 0.06
AL 9.51 0.68 35.50 27.17 0.74 0.14

2021.10.09—2021.10.18
IR40 1.63 0.12 6.08 4.65 0.13 0.02
IR70 4.97 0.36 18.55 14.19 0.39 0.07
AL 10.32 0.74 38.53 29.49 0.81 0.15

2021.10.19—2021.10.28
IR40 1.81 0.13 6.75 5.17 0.14 0.03
IR70 5.51 0.40 20.57 15.74 0.43 0.08
AL 11.19 0.81 41.78 31.97 0.88 0.16

2021.10.29—2021.11.07
IR40 1.88 0.13 7.02 5.37 0.15 0.03
IR70 5.77 0.41 21.55 16.49 0.45 0.08
AL 11.72 0.84 43.76 33.49 0.92 0.17

2021.11.8—2021.11.17
IR40 2.00 0.14 7.46 5.71 0.16 0.03
IR70 6.12 0.44 22.86 17.49 0.48 0.09
AL 12.46 0.90 46.51 35.59 0.98 0.18

2021.11.18—2021.11.27
IR40 2.15 0.15 8.02 6.14 0.17 0.03
IR70 6.56 0.47 24.49 18.74 0.51 0.09
AL 13.21 0.95 49.31 37.73 1.03 0.19

2021.11.28—2021.12.07
IR40 2.15 0.15 8.02 6.14 0.17 0.03
IR70 5.25 0.38 19.59 14.99 0.41 0.07
AL 10.70 0.77 39.93 30.56 0.84 0.15
表4 IR40组、IR70组和AL组每10 d精料营养水平变化

Table 4 Changes of nutrient levels of concentrate per 10 days in IR40, IR70 and AL groups %

时间
Times
组别
Groups
粗蛋白质
CP
粗脂肪
EE
中性洗
涤纤维
NDF
酸性洗
涤纤维
ADF

Ca

P

2021.09.09—2021.09.18
IR40 1.74 0.41 3.36 2.60 0.07 0.04
IR70 3.11 0.73 5.98 4.63 0.12 0.07
AL 4.44 1.04 8.55 6.61 0.18 0.10

2021.09.19—2021.09.28
IR40 2.04 0.48 3.93 3.04 0.08 0.04
IR70 3.70 0.87 7.11 5.51 0.15 0.08
AL 6.00 1.41 11.55 8.94 0.24 0.13

2021.09.29—2021.10.08
IR40 0.99 0.23 1.90 1.47 0.04 0.02
IR70 3.00 0.70 5.77 4.46 0.12 0.07
AL 6.12 1.44 11.78 9.12 0.24 0.14

2021.10.09—2021.10.18
IR40 1.12 0.26 2.16 1.67 0.04 0.02
IR70 3.28 0.77 6.31 4.88 0.13 0.07
AL 6.71 1.58 12.92 10.00 0.27 0.15

2021.10.19—2021.10.28
IR40 1.22 0.28 2.34 1.81 0.05 0.03
IR70 3.67 0.86 7.06 5.46 0.15 0.08
AL 7.56 1.78 14.55 11.26 0.30 0.17

2021.10.29—2021.11.07
IR40 1.30 0.30 2.49 1.93 0.05 0.03
IR70 3.84 0.90 7.38 5.71 0.15 0.09
AL 7.90 1.86 15.21 11.78 0.32 0.18

2021.11.08—2021.11.17
IR40 1.36 0.32 2.62 2.03 0.05 0.03
IR70 4.06 0.95 7.81 6.05 0.16 0.09
AL 8.34 1.96 16.05 12.43 0.33 0.19

2021.11.18—2021.11.27
IR40 1.44 0.34 2.77 2.14 0.06 0.03
IR70 3.08 0.72 5.93 4.59 0.12 0.07
AL 9.00 2.11 17.32 13.41 0.36 0.20

2021.11.28—2021.12.07
IR40 1.44 0.34 2.77 2.14 0.06 0.03
IR70 2.46 0.58 4.74 3.67 0.10 0.05
AL 6.08 1.43 11.70 9.06 0.24 0.14

1.3 饲粮营养水平测定

饲粮营养水平均为实测值,其中粗蛋白质、粗脂肪、中性洗涤纤维和酸性洗涤纤维含量均参考张丽英[22]的方法进行测定,钙含量按照GB/T 6436—2018测定[23],磷含量按照GB/T 6437—2018测定[24]

1.4 胰腺样品采集

牦牛犊牛在饲养试验结束后的前1 d空腹12 h后称重记录数据,试验结束后每组各选5头进行屠宰试验,取出牦牛犊牛胰腺组织称重记录数据。取组织样品放入含有4%多聚甲醛的50 mL离心管中固定备用,组织样不超过离心管的3/4;再取分子样放入5 mL离心管中,分子样不超过离心管的2/3,快速投入-196 ℃的液氮罐中冷藏,后转入-80 ℃超低温冰箱中备用。具体采集操作方法参见本课题组已发表的文献[13]。

1.5 测定指标及方法

体尺指标:测量体重、体斜长、体高、胸围、管围。
胰腺指数计算公式如下:
胰腺指数(%)=100×胰腺重量/宰前体重。
组织切片观察及胰腺面积计算:通过苏木精-伊红(HE)染色做胰腺组织切片,在统一视野总面积为1×105 μm2的情况下进行观察,使用Image-Pro Plus 6.0软件测量记录视野内的胰腺面积,计算胰腺外分泌部面积总占比、胰腺内分泌部面积总占比、胰腺内外分泌部面积比,计算公式如下:
胰腺内分泌部面积总占比(%)=100×胰腺内分泌部面积/胰腺总面积;
胰腺外分泌部面积总占比(%)=100×胰腺外分泌部面积/胰腺总面积;
胰腺内外分泌部面积比(%)=100×胰腺内分泌部面积/胰腺外分泌部面积。
胰腺主要消化酶活性和激素含量测定:在备好的冰浴中把从-80 ℃超低温冰箱取出胰腺样品与液氮一起在研钵里研磨成粉末,通过电子天平称取0.2 g左右放入离心管中,加入一定量的磷酸盐缓冲液(PBS)将其稀释成10倍,用涡旋振荡仪将样本充分混合均匀。经过20 min速度为2 500 r/min冷冻离心后,取上清液装入新的离心管中。根据酶联免疫吸附试验(ELISA)试剂盒(江苏酶标生物科技有限公司)的操作步骤进行酶活性和激素含量的测定。检测结果绘制成标准曲线得出样品线性回归方程,用于计算酶活性和激素含量。具体操作方法参见本课题组已发表的文献[13]。

1.6 非靶向代谢组分析

测序仪器包括质谱仪(Q ExactiveTM HF,德国赛默飞公司)、色谱仪(Vanquish UHPLC,德国赛默飞公司)、色谱柱(Hypesil Gold column,100 mm×2.1 mm,1.9 μm,美国赛默飞公司)和低温离心机(D3024R,美国赛洛捷克公司)。
测序试剂包括甲醇(67-56-1,美国赛默飞公司)、质谱水(7732-18-5,德国默克公司)、甲酸(64-18-6,美国赛默飞公司)和醋酸铵(631-61-8,美国赛默飞公司)。
代谢物的提取:在备好的冰浴中把从-80 ℃超低温冰箱取出的100 mg胰腺样品加液氮研磨后置于EP管中,加入500 μL的80%甲醇水溶液用涡旋振荡仪充分混合均匀后静置5 min,在15 000×g、4 ℃离心机离心20 min后取上清液加质谱水稀释,再次离心后,取上清液进行LC-MS分析。
测序色谱条件:色谱柱为HypesilGoldcolumn(C18),流速为0.2 mL/min,柱温为40 ℃,进样体积为2 μL。在正离子模式下,流动相A为0.1%甲酸,流动相B为甲醇;在负离子模式下,流动相A为5 mmol/L醋酸铵(pH 9.0),流动相B同为甲醇。洗脱梯度为在正离子模式下,0~1.5 min流动相A为98%、B为2%,3~10 min流动相A为0、B为100%,10.1~12.0 min流动相A为98%、B为2%,负离子模式洗脱时间和试剂含量与正离子模式相同。扫描范围选择质荷比m/z 100~1 500,ESI源的设置为喷雾电压3.5 kV、鞘气流速35 psi、辅助气流速10 L/min、离子传输管温度320 ℃、离子导入射频电平60 dBW、辅助气加热器温度350 ℃、极性正极和负极、MS/MS二级扫描为数据依赖性扫描。
数据统计分析:通过KEGG数据库(https://www.genome.jp/kegg/pathway.html)、HMDB数据库(https://hmdb.ca/metabolites)和LIPIDMaps数据库(http://www.lipidmaps.org/)对鉴定到的代谢物进行注释,使用Meta X 21.0软件对数据进行处理,用Ggplot 2.0软件进行火山图绘制,其中差异代谢物筛选的默认标准为变量重要性投影(VIP)值>1,P<0.05且差异性倍数(FC)值≥2或FC≤0.5。

1.7 数据处理与统计分析

数据采用SPSS 25.0软件进行t检验分析,结果用“平均值±标准差”表示,以P<0.05作为差异显著性的判断标准。

2 结果

2.1 固体饲料不同饲喂量对哺乳期牦牛犊牛体尺指标及胰腺指数的影响

表5可知,AL组的体重、胰腺指数显著高于IR70组(P<0.05);AL组的体重、胰腺重量、胰腺指数显著高于IR40组(P<0.05);IR70组的体重显著高于IR40组(P<0.05)。
表5 固体饲料不同饲喂量对哺乳期牦牛犊牛体尺指标及胰腺指数的影响

Table 5 Effects of different feeding levels of solid feed on body size indexes and pancreas index in suckling yak calves

项目
Items
组别Groups P
P-value
IR40 IR70 AL
体重Body weight/kg 70.00±1.34c 75.20±1.59b 82.80±0.80a <0.001
体斜长Body length/cm 88.80±0.97 85.60±1.70 88.80±1.32 0.200
体高Body height/cm 83.20±1.53 84.00±2.78 87.00±1.05 0.370
胸围Heart girth/cm 107.80±1.32 107.60±1.03 106.20±0.74 0.524
管围Cannon circumference/cm 15.20±0.20 14.80±0.20 14.80±0.20 0.300
胰腺重Pancreas weight/g 49.00±0.89b 54.40±1.57ab 62.20±4.27a 0.015
胰腺指数Pancreas index/% 0.069 4±0.010 8b 0.072 8±0.008 0b 0.075 6±0.011 3a 0.003

同行数据肩标不同字母表示差异显著(P<0.05)。表6表7表8同。

In the same row, values with different letter superscripts mean significant difference (P<0.05). The same as Table 6, Table 7 and Table 8.

2.2 固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺形态发育的影响

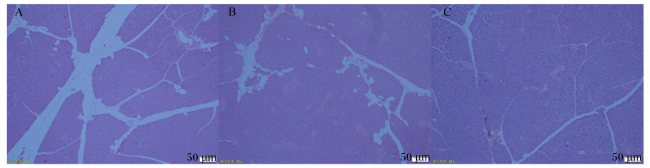
图1可知,随着固体饲料饲喂量的提高,胰腺组织的细胞排列密集程度依次增加,内分泌部和外分泌部面积也随之相应的减少和增加,而组织间间隙、脂肪空泡、毛细血管的数量随之减少。
图1 固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺形态发育的影响

A:IR40组;B:IR70组;C:AL组。

Fig.1 Effects of different feeding levels of solid feed on morphological development of pancreas in suckling yak calves

A: IR40 group; B: IR70 group; C: AL group.

表6可知,AL组的外分泌部面积总占比显著高于IR70组和IR40组(P<0.05);IR70组的内分泌部面积总占比、内外分泌部面积比显著低于IR40组(P<0.05)。
表6 固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺内外分泌部面积的影响

Table 6 Effects of different feeding levels of solid feed on area of internal and external secretory parts of pancreas in suckling yak calves %

项目
Items
组别Groups P
P-value
IR40 IR70 AL
内分泌部面积总占比
Total percentage of internal secretory part area
0.040 6±0.001 8a 0.031 1±0.000 9b 0.029 0±0.000 4b <0.001
外分泌部面积总占比
Total percentage of external secretory part area
0.934 5±0.002 4b 0.938 2±0.002 8b 0.947 5±0.001 3a 0.001
内外分泌部面积比
Area ratio of internal and
external secretory parts
0.043 5±0.002 0a 0.033 2±0.001 0b 0.030 6±0.000 4b <0.001

2.3 固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺功能发育的影响

表7可知,AL组的胰淀粉酶、胰蛋白酶活性显著高于IR70组(P<0.05);AL组的胰淀粉酶、胰蛋白酶、糜蛋白酶活性显著高于IR40组(P<0.05)。
表7 固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺消化酶活性的影响

Table 7 Effects of different feeding levels of solid feed on activity of pancreatic digestive enzymes in suckling yak calvesU/L

项目
Items
组别Groups P
P-value
IR40 IR70 AL
胰淀粉酶Pancreatic amylase 35.00±0.84b 35.46±1.31b 38.73±0.30a 0.025
胰脂肪酶Pancreatic lipase 123.65±1.71 124.78±1.93 125.55±0.56 0.060
胰蛋白酶Pancreatic protease 163.46±2.26b 166.67±1.40b 175.18±6.10a 0.038
糜蛋白酶Chymotrypsin 129.91±5.97b 135.26±5.82ab 147.98±0.61a 0.044
表8可知,AL组胰腺的胰岛素含量显著高于IR70组(P<0.05);AL组胰腺的胰高血糖素、胰岛素、生长抑素含量显著高于IR40组(P<0.05);IR70组胰腺的胰高血糖素含量显著高于IR40组(P<0.05)。
表8 固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺激素含量的影响

Table 8 Effects of different feeding levels of solid feed on pancreatic hormone contents in suckling yak calvesμg/L

项目
Items
组别Groups P
P-value
IR40 IR70 AL
胰高血糖素Glucagon 0.318±0.011b 0.340±0.007a 0.346±0.002a 0.031
胰岛素Insulin 1.108±0.044b 1.202±0.012b 1.325±0.045a 0.007
胰多肽Pancreatic polypeptide 2.964±0.045 3.011±0.020 3.314±0.016 0.425
生长抑素Growth inhibitor 0.287±0.002b 0.298±0.017ab 0.325±0.004a 0.039

2.4 固体饲料不同饲喂量对哺乳期牦牛犊牛胰腺代谢组学的影响

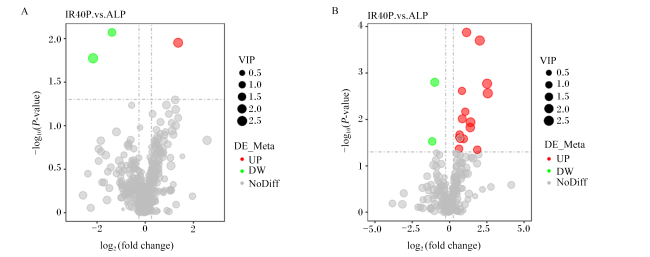
图2可知,在正离子模式下的火山图中,IR40组与AL组相比,3个差异代谢物含量存在显著变化(P<0.05),其中显著上调的有1个,下调的有2个。在负离子模式下的火山图中,IR40组与AL组相比,17个差异代谢物含量存在显著变化(P<0.05),其中显著上调的有15个,下调的有2个。
图2 正离子(A)、负离子(B)模式下的IR40组和AL组火山图

图中IR40P为低饲喂量组(IR40组),ALP为高饲喂量组(AL组);log2(fold change)代表代谢物的差异倍数变化;-log10(P-value)代表差异显著性水平;UP代表上调;DW代表下调;NoDiff代表无差异显著性。下图同。

Fig.2 Volcano plot of IR40 group and AL group in positive ion (A) and negative ion (B) mode

In the figure, IR40P is the low feeding group (IR40 group) and ALP is the high feeding group (AL group); log2(fold change) represents the variance fold change of metabolites; -log10(P-value) represents the level of variance significance; UP represents upregulation; DW represents downregulation; NoDiff represents no variance significance. The same as below.

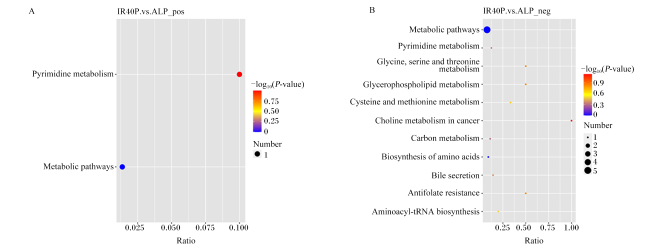
图3可知,IR40组与AL组相比,差异代谢物富集到的KEGG代谢通路有13条。在正离子模式下共筛选出2条代谢通路,在负离子模式下共筛选出11条代谢通路。
图3 正离子(A)、负离子(B)模式下的IR40组和AL组代谢通路气泡图

pos:正离子模式 positive ion mode;Metabolic pathways:代谢途径;Pyrimidine metabolism:嘧啶代谢;neg:负离子模式 negative ion mode; Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Glycerophospholipid metabolism:甘油磷脂代谢;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸代谢;Choline metabolism in cancer:癌症中的胆碱代谢;Carbon metabolism:碳代谢;Biosynthesis of amino acids:氨基酸生物合成;Bile secretion:胆汁分泌;Antifolate resistance:抗逆转录病毒抗体;Aminoacyl-tRNA biosynthesis:氨基酸-tRNA生物合成。

图中Number代表代谢通路中差异代谢物的数目;Ratio代表代谢通路中差异代谢物的数目/该通路中鉴定出总代谢物数目的比率。图5图7同。In the figure, Number represents the number of differential metabolites in the metabolic pathway; Ratio represents the ratio of the number of differential metabolites in the metabolic pathway/the number of total metabolites identified in the pathway. The same as Fig.5 and Fig.7.

Fig.3 Bubble diagram of metabolic pathway of IR40 group and AL group in positive ion (A) and negative ion (B) modes

表9可知,与AL组相比,IR40组在其所有的代谢通路中,相关差异代谢物的含量均不显著(P>0.05)。
表9 IR40组和AL组代谢通路以及相关差异代谢物

Table 9 Metabolic pathways and related differential metabolites of IR40 group and AL group

序号
No.
代谢通路
Metabolic pathways
差异代谢物
Differential metabolites
P
P-value
1 癌症中的胆碱代谢Choline metabolism in cancer 胞二磷胆碱Citicoline↑ 0.073
2 嘧啶代谢Pyrimidine metabolism 脱氧胞苷酸dCMP↑ 0.101
3 甘氨酸、丝氨酸和苏氨酸代谢
Glycine, serine and threonine metabolism
O-磷酸-L-丝氨酸
O-phospho-L-serine↑
0.142
4 甘油磷脂代谢Glycerophospholipid metabolism 胞二磷胆碱Citicoline↑ 0.142
5 抗叶酸抵抗Antifolate resistance 脱氧胸苷酸dTMP↑ 0.142
6 半胱氨酸和甲硫氨酸代谢
Cysteine and methionine metabolism
O-磷酸-L-丝氨酸
O-phospho-L-serine↑
0.206
7 氨酰-tRNA生物合成
Aminoacyl-tRNA biosynthesis
O-磷酸-L-丝氨酸
O-phospho-L-serine↑
0.323
8 胆汁分泌Bile secretion 脱氧胆酸Deoxycholic acid↑ 0.425
9 嘧啶代谢Pyrimidine metabolism 脱氧胸苷酸dTMP↑ 0.471
10 碳代谢Carbon metabolism O-磷酸-L-丝氨酸
O-phospho-L-serine↑
0.514
11 代谢途径Metabolic pathways 脱氧胸苷酸dTMP↑胞二磷胆碱Citicoline↑
咖啡酸Caffeic acid↑
O-磷酸-L-丝氨酸O-phospho-L-serine↑
阿魏酸Ferulic acid↑
1.000
12 氨基酸的生物合成
Biosynthesis of amino acids
O-磷酸-L-丝氨酸
O-phospho-L-serine↑
1.000
13 代谢途径Metabolic pathways 脱氧胞苷酸dCMP↑ 1.000

表中↑代表上调;↓代表下调。表10表11同。

In the table, ↑ represents upward adjustment; ↓ represents downward adjustment. The same as Table 10 and Table 11.

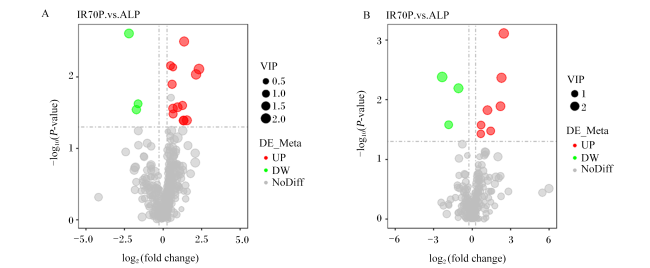
图4中可知,在正离子模式下的火山图中,IR70组与AL组相比,16个差异代谢物含量存在显著变化(P<0.05),其中显著上调的有13个,下调的有3个。在负离子模式下的火山图中,IR70组与AL组相比,10个差异代谢物含量存在显著变化(P<0.05),其中显著上调的有7个,下调的有3个。
图4 正离子(A)、负离子(B)模式下的IR70组和AL组火山图

图中IR70P为中饲喂量组(IR70组)。下图同。

Fig.4 Volcano plot of IR70 group and AL group in positive ion (A) and negative ion (B) modes

In the figure, IR70P is the medium feeding group (IR70 group). The same as below.

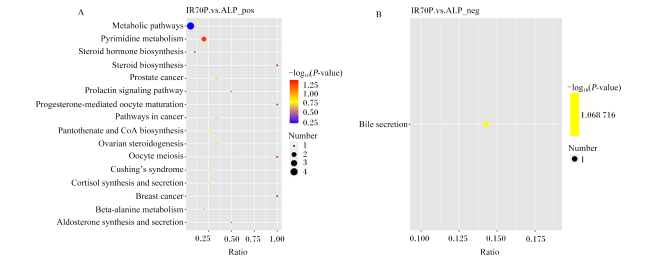
图5可知,IR70组与AL组相比,差异代谢物富集到的KEGG代谢通路有17条。在正离子模式下共筛选出16条代谢通路,在负离子模式下共筛选出1条代谢通路。
图5 正离子(A)、负离子(B)模式下的IR70组和AL组代谢通路气泡图

Metabolic pathways:代谢途径; Pyrimidine metabolism:嘧啶代谢;Steroid hormone biosynthesis:甾体激素生物合成;Steroid biosynthesis:甾体生物合成;Prostate cancer:前列腺癌;Prolactin signaling pathway:催乳素信号传导途径;Progesterone-mediated oocyte maturation:孕激素介导的卵母细胞成熟;Pathways in cancer:癌症路径;Pantothenate and CoA biosynthesis:泛酸和CoA生物合成;Ovarian steroidogenesis:卵巢类固醇生成;Oocyte meiosis:卵母细胞减数分裂;Cushing’s syndrome:库欣式综合征;Cortisol synthesis and secretion:皮质醇合成和分泌;Breast cancer:乳腺癌;Beta-alanine metabolism:β-丙氨酸代谢;Aldosterone synthesis and secretion:醛固酮合成和分泌;Bile secretion:胆汁分泌。

Fig.5 Bubble diagram of metabolic pathway of IR70 group and AL group in positive ion (A) and negative ion (B) modes

表10可知,与AL组相比,IR70组在甾体生物合成(steroid biosynthesis)通路中,差异代谢物麦角钙化醇(ergocalciferol)的含量显著上升(P<0.05);在卵母细胞减数分裂(oocyte meiosis)通路中,差异代谢物孕酮(progesterone)的含量显著上升(P<0.05);在孕酮介导的卵母细胞成熟(progesterone-mediated oocyte maturation)通路中,差异代谢物孕酮的含量显著上升(P<0.05);在乳腺癌(breast cancer)通路中,差异代谢物孕酮的含量显著上升(P<0.05);在嘧啶代谢(pyrimidine metabolism)通路中,差异代谢物脱氧胞苷酸(dCMP)、尿嘧啶(uracil)的含量显著上升(P<0.05)。
表10 IR70组和AL组代谢通路以及相关差异代谢物

Table 10 Metabolic pathways and related differential metabolites of IR70 group and AL group

序号
No.
代谢通路
Metabolic pathways
差异代谢物
Differential metabolites
P
P-value
1 甾体生物合成Steroid biosynthesis 麦角钙化醇Ergocalciferol↑ 0.040
2 卵母细胞减数分裂Oocyte meiosis 孕酮Progesterone↑ 0.040
3 孕酮介导的卵母细胞成熟
Progesterone-mediated oocyte maturation
孕酮Progesterone↑ 0.040
4 乳腺癌Breast cancer 孕酮Progesterone↑ 0.040
5 嘧啶代谢Pyrimidine metabolism 脱氧胞苷酸dCMP↑尿嘧啶Uracil↑ 0.050
6 催乳素信号通路Prolactin signaling pathway 孕酮Progesterone↑ 0.080
7 醛固酮的合成与分泌Aldosterone synthesis and secretion 孕酮Progesterone↑ 0.080
8 胆汁分泌Bile secretion 脱氧胆酸Deoxycholic acid↑ 0.085
9 卵巢类固醇生成Ovarian steroidogenesis 孕酮Progesterone↑ 0.118
10 癌症中的通路Pathways in cancer 孕酮Progesterone↑ 0.118
11 前列腺癌Prostate cancer 孕酮Progesterone↑ 0.118
12 泛酸和辅酶A生物合成Pantothenate and CoA biosynthesis 尿嘧啶Uracil↑ 0.154
13 皮质醇的合成与分泌Cortisol synthesis and secretion 孕酮Progesterone↑ 0.154
14 库兴综合征Cushing’s syndrome 孕酮Progesterone↑ 0.154
15 β-丙氨酸代谢Beta-alanine metabolism 尿嘧啶Uracil↑ 0.190
16 甾体激素生物合成Steroid hormone biosynthesis 孕酮Progesterone↑ 0.351
17 代谢途径Metabolic pathways 孕酮Progesterone↑
麦角钙化醇Ergocalciferol↑
脱氧胞苷酸dCMP↑尿嘧啶Uracil↑
0.570
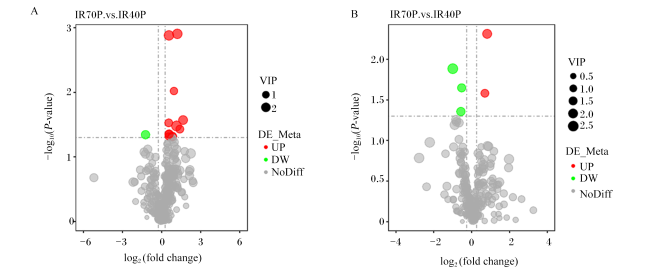
图6中可知,在正离子模式下的火山图中,IR70组与IR40组相比,13个差异代谢物含量存在显著变化(P<0.05),其中显著上调的有12个,下调的有1个。在负离子模式下的火山图中,IR70组与IR40组相比,5个差异代谢物含量存在显著变化(P<0.05),其中显著上调的有2个,下调的有3个。
图6 正离子(A)、负离子(B)模式下的IR70组和IR40组火山图

Fig.6 Volcano plot of IR70 group and IR40 group in positive ion (A) and negative ion (B) modes

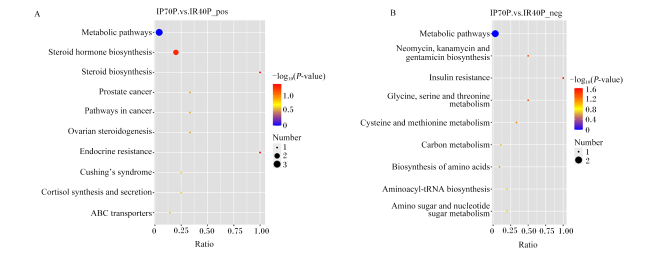
图7可知,IR70组与IR40组相比,差异代谢物富集到的KEGG代谢通路有19条。在正离子模式下共筛选出10条代谢通路,在负离子模式下共筛选出9条代谢通路。
图7 正离子(A)、负离子(B)模式下的IR70组和IR40组代谢通路气泡图

pos:正离子模式 positive ion mode;Metabolic pathways:代谢途径;Steroid hormone biosynthesis:类固醇激素生物合成;Steroid biosynthesis:类固醇生物合成;Prostate cancer:前列腺癌;Pathways in cancer:癌症中的路径;Ovarian steroidogenesis:卵巢类固醇生成;Endocrine resistance:内分泌抵抗;Cushing’s syndrome:库欣式综合征;Cortisol synthesis and secretion:皮质醇合成和分泌;ABC transporters:ABC运输工具;neg:负离子模式 negative ion mode;Neomycin, kanamycin and gentamicin biosynthesis:新霉素、卡那霉素和庆大霉素生物合成;Insulin resistance:胰岛素抵抗;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸的代谢;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸的代谢;Carbon metabolism:碳代谢;Biosynthesis of amino acids:氨基酸生物合成;Aminoacyl-tRNA biosynthesis:氨基酸-tRNA生物合成;Amino sugar and nucleotide sugar metabolism:氨基酸糖和核苷酸糖的代谢。

Fig.7 Bubble diagram of metabolic pathway of IR70 group and IR40 group in positive ion (A) and negative ion (B) modes

表11可知,与IR40组相比,IR70组在胰岛素抵抗(insulin resistance)通路中,差异代谢物UDP-N-乙酰葡糖胺(UDP-N-acetylglucosamine)的含量显著下降(P<0.05);在甾体生物合成通路中,差异代谢物麦角钙化醇的含量显著上升(P<0.05);在内分泌抵抗(endocrine resistance)通路中,差异代谢物睾酮(testosterone)的含量显著上升(P<0.05);在甘氨酸、丝氨酸和苏氨酸代谢(glycine, serine and threonine metabolism)通路中,差异代谢物O-磷酸-L-丝氨酸(O-phospho-L-serine)的含量显著下降(P<0.05);在新霉素、卡那霉素和庆大霉素生物合成(neomycin, kanamycin and gentamicin)通路中,差异代谢物UDP-N-乙酰葡糖胺的含量显著下降(P<0.05);在甾体激素生物合成(steroid hormone biosynthesis)通路中,差异代谢物科托酮(cortodoxone)、睾酮的含量显著上升(P<0.05)。
表11 IR70组和IR40组代谢通路以及相关差异代谢物

Table 11 Metabolic pathways and related differential metabolites of IR70 group and IR40 group

序号
No.
代谢通路
Metabolic pathways
差异代谢物
Differential metabolites
P
P-value
1 胰岛素抵抗Insulin resistance UDP-N-乙酰葡糖胺
UDP-N-acetylglucosamine↓
0.024
2 甾体生物合成Steroid biosynthesis 麦角钙化醇Ergocalciferol↑ 0.040
3 内分泌抵抗Endocrine resistance 睾酮Testosterone↑ 0.040
4 甘氨酸、丝氨酸和苏氨酸代谢
Glycine, serine and threonine metabolism
O-磷酸-L-丝氨酸
O-phospho-L-serine↓
0.048
5 新霉素、卡那霉素和庆大霉素生物合成
Neomycin, kanamycin and gentamicin biosynthesis
UDP-N-乙酰葡糖胺
UDP-N-acetylglucosamine↓
0.048
6 甾体激素生物合成Steroid hormone biosynthesis 科托酮Cortodoxone↑
睾酮Testosterone↑
0.050
7 半胱氨酸和甲硫氨酸代谢
Cysteine and methionine metabolism
O-磷酸-L-丝氨酸
O-phospho-L-serine↓
0.072
8 卵巢类固醇生成Ovarian steroidogenesis 睾酮Testosterone↑ 0.118
9 癌症中的通路Pathways in cancer 睾酮Testosterone↑ 0.118
10 前列腺癌Prostate cancer 睾酮Testosterone↑ 0.118
11 氨基糖和核苷酸糖代谢
Amino sugar and nucleotide sugar metabolism
UDP-N-乙酰葡糖胺
UDP-N-acetylglucosamine↓
0.119
12 氨酰-tRNA生物合成
Aminoacyl-tRNA biosynthesis
O-磷酸-L-丝氨酸
O-phospho-L-serine↓
0.119
13 皮质醇的合成与分泌Cortisol synthesis and secretion 科托酮Cortodoxone↑ 0.154
14 库欣综合征Cushing’s syndrome 科托酮Cortodoxone↑ 0.154
15 碳代谢Carbon metabolism O-磷酸-L-丝氨酸
O-phospho-L-serine↓
0.209
16 氨基酸的生物合成
Biosynthesis of amino acids
O-磷酸-L-丝氨酸
O-phospho-L-serine↓
0.252
17 ABC转运蛋白ABC transporters 甲基β-D-半乳糖苷
Methyl beta-D-galactopyranoside↑
0.258
18 代谢途径Metabolic pathways 科托酮Cortodoxone↑
睾酮Testosterone↑
麦角钙化醇Ergocalciferol↑
1.000
19 代谢途径Metabolic pathways O-磷酸-L-丝氨酸O-phospho-L-serine↓
UDP-N-乙酰葡糖胺UDP-N-acetylglucosamine↓
1.000

3 讨论

从体尺指标和胰腺形态上看,相较于低饲喂量和中饲喂量,高饲喂量能显著提高哺乳期牦牛犊牛的体重和胰腺指数。这与牛玉杰等[25]结果相似。同时,高饲喂量的牦牛犊牛胰腺外分泌部面积显著高于低饲喂量和中饲喂量。Vu等[26]通过空肠近远端发现饲喂量的提高可以极大程度上提高胰酶的分泌,维持胆囊收缩并降低肠胰反射。而本试验结果也表明,哺乳期牦牛犊牛低饲喂量和中饲喂量会影响胰腺外分泌部的发育,从而阻碍犊牛早期正常的消化代谢水平,不利于其正常的健康生长。
从胰腺功能上看,相较于低饲喂量和中饲喂量,高饲喂量显著提高了胰淀粉酶、胰蛋白酶活性。Trotta等[27]研究发现,妊娠母羊在60%的饲喂量下,胰腺重量、α-淀粉酶、胰腺胰蛋白酶总活性显著降低,胎儿中的胰蛋白酶活性也随之降低,说明羔羊会随着母羊的营养水平变化其消化酶的活性也发生变化。这表明早期牦牛犊牛摄入营养水平不足不利于其胰腺消化酶的正常分泌,这可能会导致消化功能或生长性能降低。同时,高饲喂量的牦牛犊牛胰腺分泌的胰岛素含量显著升高。汤琦[28]将妊娠母鼠营养水平调整为50%,造成胎儿宫内生长发育迟缓,血浆胰岛素含量显著降低,但调控胰岛素的基因胰腺十二指肠同源框蛋白-1(PDX-1)显著上调,这说明了随着饲喂量的降低会增强胰岛素的敏感性。赵田等[29]发现,60%饲喂量下小鼠的胰岛素分泌减少,血糖下曲线面积降低了70.8%。可见不同饲喂量能影响哺乳期牦牛犊牛胰岛素分泌,进而影响机体内部血糖调节的敏感性。
从胰腺代谢通路和差异代谢物上看,相较于低饲喂量,中饲喂量的牦牛犊牛在胰岛素抵抗和新霉素、卡那霉素和庆大霉素生物合成代谢通路中,UDP-N-乙酰葡糖胺的含量显著下降,是UDP-N-乙酰葡糖胺己糖胺生物合成通路的最终产物。Chatham等[30]研究发现,UDP-N-乙酰葡糖胺含量的升高与包括心血管系统在内的葡萄糖毒性和糖尿病并发症有关,在循环系统中失调会造成糖尿病对心血管系统的不利影响。在甾体生物合成代谢通路中,麦角钙化醇含量显著上升。中饲喂量与高饲喂量的比较结果也与此一致。Heerdegen等[31]发现,在24-脱氢胆固醇还原酶24(DHCR24)作用下,麦角钙化醇在生态类固醇类似物的循环中诱导细胞分化调节其正常生长,在促进内脏对小分子蛋白质消化吸收的同时,对甾体炎症也可以起到抵御抑制的效果。在内分泌抵抗和甾体激素生物合成代谢通路中,睾酮的含量显著上升。Abate等[32]研究发现,睾酮含量与胰岛素抵抗、Ⅱ型糖尿病风险增加有关,其含量可以预测机体的胰岛素抵抗过度、β细胞功能障碍或肝葡萄糖输出量。在甘氨酸、丝氨酸和苏氨酸代谢通路中,O-磷酸-L-丝氨酸的含量显著下降。Pan等[33]研究发现,O-磷酸-L-丝氨酸参与的氨基酸代谢代表了细胞的应激反应从而保证了细胞的完整性。在甾体激素生物合成代谢通路中,科托酮的含量显著上升。科托酮作为雌激素前体,Kanaya等[34]研究发现,通过在芳香酶转化作用下作为雌激素发挥作用,是阳性乳腺癌风险的重要指标。
与高饲喂量相比,中饲喂量牦牛犊牛在卵母细胞减数分裂、孕酮介导的卵母细胞成熟和乳腺癌代谢通路中,孕酮的含量显著上升。Barrozo等[35]研究发现,孕酮作用下窦卵泡卵丘-卵母细胞复合物(COCs)促进了卵母细胞直径的增加,提高了其在卵母细胞中mRNA水平,有利于卵母细胞获能。孕酮也与乳腺癌发生有关,在正常的乳腺组织中孕酮由旁分泌机制驱动的。Trabert等[36]研究发现,孕酮在乳腺癌病因中有潜在的阻断、预防和治疗机制。在嘧啶代谢通路中,脱氧胞苷酸和尿嘧啶的含量显著上升。嘧啶核糖核苷酸对细胞生长和增殖至关重要,Mollick等[37]研究发现,消耗嘧啶核糖核苷酸可以减少癌细胞的生长,利用其合成抑制剂在一定程度上治疗恶性肿瘤。这表明中饲喂量的牦牛犊牛在哺乳期胰腺差异代谢物的含量变化效果更优,可以作为许多疾病检测指标并在疾病预防与治疗方面发挥重要作用。

4 结论

综上得出,采用代乳饲喂方式培育哺乳期牦牛犊牛时,提高固体饲料饲喂量改善了牦牛犊牛的生长发育质量,促进了其胰腺组织形态与功能的发育;且中饲喂量能够诱导哺乳期牦牛犊牛胰腺细胞分化,提升机体对小分子营养物质的消化吸收能力。
[1]
陈元元, 崔占鸿, 王迅, 等. 青海不同地区牦牛乳矿物质元素含量比较研究[J]. 中国乳品工业, 2023, 51(2):15-20.

CHEN Y Y, CUI Z H, WANG X, et al. Comparative study on the content of mineral elements in yak milk in different areas of Qinghai[J]. China Dairy Industry, 2023, 51(2):15-20. (in Chinese)

[2]
HE X D, XIA Y, JIGE M T, et al. Adaptive response of reproduction to high-altitude hypoxic stress by altering mRNA expression of hypoxia-inducible factors in female yaks (Bos grunniens)[J]. Animal Biotechnology, 2020, 31(4):373-375.

DOI

[3]
傅芳, 官久强, 曲秀龙, 等. 不同海拔饲育的麦洼牦牛肺脏组织转录组学分析[J]. 兽类学报, 2020, 40(5):475-484.

FU F, GUAN J Q, QU X L, et al. Transcriptomics analysis of lungs in yaks breeding at different altitudes[J]. Acta Theriologica Sinica, 2020, 40(5):475-484. (in Chinese)

DOI

[4]
张玉莹, 刘燕红, 郭文杰, 等. 不同培育方式下健康与腹泻牦牛犊牛肠道菌群组成特征分析[J]. 动物营养学报, 2022, 34(7):4519-4529.

DOI

ZHANG Y Y, LIU Y H, GUO W J, et al. Composition characteristics analysis of intestinal bacterial flora for healthy and diarrhea yak calves under different rearing methods[J]. Chinese Journal of Animal Nutrition, 2022, 34(7):4519-4529. (in Chinese)

DOI

[5]
文勇立, 赵佳琦. 牦牛的泌乳量测定及其乳特性[J]. 中国乳业, 2019(11):12-18.

WEN Y L, ZHAO J Q. Lactation determination and its milk characteristics in yaks[J]. China Dairy, 2019(11):12-18. (in Chinese)

[6]
崔占鸿. 牦牛犊牛培育方式对生长和消化道发育的影响[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2020.

CUI Z H. Effects of rearing patterns on growth and digstive tract development in yak calves[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[7]
安乐乐, 郭文杰, 操君, 等. 哺乳期饲喂开食料对牦牛犊牛生长性能和肠道发育的影响[J]. 动物营养学报, 2023, 35(3):1716-1728.

DOI

AN L L, GUO W J, CAO J, et al. Effects of feeding starter during lactation on growth performance and intestinal development of yak calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1716-1728. (in Chinese)

DOI

[8]
周亚楠, 冯宇哲, 杨得玉, 等. 哺乳期补饲开食料对牦牛犊牛生长性能和皱胃组织形态与功能发育的影响[J]. 动物营养学报, 2022, 34(9):5942-5950.

DOI

ZHOU Y N, FENG Y Z, YANG D Y, et al. Effects of starter feeding on growth performance and morphological and functional development of abomasum of yak calves during lactation period[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5942-5950. (in Chinese)

DOI

[9]
周亚楠, 冯宇哲, 杨得玉, 等. 苜蓿干草、燕麦干草及二者混合饲喂对哺乳期牦牛犊牛生长性能、血清生化指标及瘤胃发酵参数、组织形态和微生物区系的影响[J]. 动物营养学报, 2023, 35(2):995-1007.

DOI

ZHOU Y N, FENG Y Z, YANG D Y, et al. Effects of alfalfa hay,oat hay and their mixed feeding on growth performance,serum biochemical indexes and rumen fermentation parameters,morphology and microflora of suckling yak calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):995-1007. (in Chinese)

[10]
郝文君, 薛国良, 刘书杰, 等. 补饲开食料对早期断奶牦牛犊牛胸腺和脾脏发育的转录组学分析[J]. 动物营养学报, 2023, 35(2):977-994.

DOI

HAO W J, XUE G L, LIU S J, et al. Transcriptomic analysis of starter feed supplementation on thymus and spleen development in early weaned yak calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):977-994. (in Chinese)

DOI

[11]
郭文杰, 刘书杰, 冯宇哲, 等. 哺乳期补饲开食料对牦牛犊牛生长性能、腹泻频率和发病频率的影响[J]. 动物营养学报, 2022, 34(1):422-431.

DOI

GUO W J, LIU S J, FENG Y Z, et al. Effects of starter feed on growth performance,diarrhea frequency and incidence frequency of yak calves during lactation[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):422-431. (in Chinese)

[12]
郝文君, 崔占鸿, 刘书杰. 补饲开食料对哺乳期牦牛犊牛生长性能和血清指标的影响[J]. 饲料研究, 2021, 44(16):1-5.

HAO W J, CUI Z H, LIU S J. Effect of supplying starter feed on growth performance and serum index of lactation yak calves[J]. Feed Research, 2021, 44(16):1-5. (in Chinese)

[13]
焦洋, 刘书杰, 杨得玉, 等. 基于代谢组学研究补饲精料对早期断奶牦牛犊牛胰腺发育的影响[J]. 动物营养学报, 2022, 34(9):5951-5963.

DOI

JIAO Y, LIU S J, YANG D Y, et al. Effects of concentrate supplementation on pancreatic development of early-weaned yak calves by using metabolomics[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5951-5963. (in Chinese)

DOI

[14]
段嘉钰, 刘书杰, 周磊, 等. 采食限制对哺乳期牦牛犊牛生长性能、腹泻频率及主要内脏器官指数的影响[J]. 饲料工业, 2022, 43(21):47-53.

DUAN J Y, LIU S J, ZHOU L, et al. Effects of restricted feed intake during suckling period on growth performance,diarrhea frequency and major organ indices in yak calves[J]. Feed Industry, 2022, 43(21):47-53. (in Chinese)

[15]
张颖楠, 李世关, 刘书杰, 等. 不同饲喂水平对断奶牦牛犊牛生长性能、瘤胃发酵及微生物区系的影响[J]. 饲料工业, 2023, 44(6):38-45.

ZHANG Y N, LI S G, LIU S J, et al. Effects of different feeding levels on growth performance,rumen fermentation and microbiota of weaned yak calves[J]. Feed Industry, 2023, 44(6):38-45. (in Chinese)

[16]
陶玉, 陈心怡, 俞清, 等. 胰岛类器官研究进展[J]. 中国科学(生命科学), 2023, 53(2):140-160.

TAO Y, CHEN X Y, YU Q, et al. Advances in islet organoids[J]. Scientia Sinica (Vitae), 2023, 53(2):140-160. (in Chinese)

[17]
PAN F C, WRIGHT C. Pancreas organogenesis:from bud to plexus to gland[J]. Developmental Dynamics, 2011, 240(3):530-565.

DOI

[18]
姚军虎, 郭龙, 曹阳春. 日粮因素对反刍动物胰腺外分泌功能的调控[J]. 饲料工业, 2019, 40(16):1-10.

YAO J H, GUO L, CAO Y C. Regulation of dietary on pancreatic exocrine function in ruminants[J]. Feed Industry, 2019, 40(16):1-10. (in Chinese)

[19]
于红霞, 于志鹏, 刘凯, 等. 十二指肠灌注亮氨酸对山羊胰腺外分泌功能的影响[J]. 动物营养学报, 2011, 23(9):1513-1518.

YU H X, YU Z P, LIU K, et al. Infusion of leucine into duodenum affects pancreatic exocrine secretion of goats[J]. Chinese Journal of Animal Nutrition, 2011, 23(9):1513-1518. (in Chinese)

[20]
马晓玲, 彭巍, 舒适. 基于LCMS技术对牦牛围产后期的血清动态代谢组学分析[J]. 畜牧兽医学报, 2022, 53(11):3811-3826.

MA X L, PENG W, SHU S. Serum dynamic metabonomics analysis of yaks in late perinatal period based on LCMS technology[J]. Acta Veterinaria Et Zootechnica Sinica, 2022, 53(11):3811-3826. (in Chinese)

[21]
郭龙. 亮氨酸和苯丙氨酸调控奶牛胰腺酶合成和分泌的信号传导网络[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2019.

GUO L. Leucine and phenylalanine regulate pancreatic enzyme synthesis and secretion of dairy cow:the signal transduction network[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2019. (in Chinese)

[22]
张丽英. 饲料分析及饲料质量检测技术[M]. 3版. 北京: 中国农业大学出版社, 2007.

ZHANG L Y. Feed analysis and feed quality testing technology[M]. 3rd ed. Beijing: China Agricultural University Press, 2007. (in Chinese)

[23]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中钙的测定:GB/T 6436—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of calcium in feeds:GB/T 6436—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[24]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中总磷的测定分光光度法:GB/T 6437—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of phosphorus in feeds-spectrophotometry:GB/T 6437—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[25]
牛玉杰, 郑新霞, 牛俊丽, 等. 饲喂水平对多胎萨福克公羊生长性能、消化代谢和血清生化指标的影响[J]. 中国畜牧杂志, 2022, 58(12):199-203.

NIU Y J, ZHENG X X, NIU J L, et al. Effect of feeding level on growth performance,digestive metabolism and serum biochemical indexes of multiparous Suffolk rams[J]. Chinese Journal of Animal Science, 2022, 58(12):199-203. (in Chinese)

[26]
VU M K, VAN DER VEEK P P, FRÖLICH M, et al. Does jejunal feeding activate exocrine pancreatic secretion?[J]. European Journal of Clinical Investigation, 1999, 29(12):1053-1059.

PMID

[27]
TROTTA R J, VASQUEZ-HIDALGO M A, VONNAHME K A, et al. Effects of nutrient restriction during midgestation to late gestation on maternal and fetal postruminal carbohydrase activities in sheep[J]. Journal of Animal Science, 2020, 98(1):skz393.

DOI

[28]
汤琦. 妊娠期能量限饲对子代成年大鼠胰岛β细胞的影响[D]. 硕士学位论文. 重庆: 西南大学, 2019.

TANG Q. Effects of energy restriction during pregnancy on islet β cells in offspring of adult rats[D]. Master’s Thesis. Chongqing: Southwest University, 2019. (in Chinese)

[29]
赵田, 汤雅迪, 赵一楠, 等. 肥胖及限食对胰岛素分泌调节异常的影响[J]. 中国比较医学杂志, 2019, 29(10):3-10.

ZHAO T, TANG Y D, ZHAO Y N, et al. Effects of obesity and caloric restriction on insulin secretion[J]. Chinese Journal of Comparative Medicine, 2019, 29(10):3-10. (in Chinese)

[30]
CHATHAM J C, YOUNG M E, ZHANG J H. Role of O-linked N-acetylglucosamine (O-GlcNAc) modification of proteins in diabetic cardiovascular complications[J]. Current Opinion in Pharmacology, 2021, 57:1-12.

DOI

[31]
HEERDEGEN D, REUTER D, KORNMAYER M M, et al. Synthesis of Seco-analogues of the DHCR24 inhibitor SH-42[J]. European Journal of Organic Chemistry, 2020, 2020(39):6270-6288.

DOI

[32]
ABATE N, HAFFNER S M, GARG A, et al. Sex steroid hormones,upper body obesity,and insulin resistance[J]. The Journal of Clinical Endocrinology and Metabolism, 2002, 87(10):4522-4527.

DOI

[33]
PAN L, YU J, REN D Y, et al. Metabolomic analysis of significant changes in Lactobacillus casei Zhang during culturing to generation 4,000 under conditions of glucose restriction[J]. Journal of Dairy Science, 2019, 102(5):3851-3867.

DOI

[34]
KANAYA N, NGUYEN D M, LU H, et al. AroER tri-screenTM is a novel functional assay to estimate both estrogenic and estrogen precursor activity of chemicals or biological specimens[J]. Breast Cancer Research and Treatment, 2015, 151(2):335-345.

DOI

[35]
BARROZO L G, BEZERRA F T G, PAULINO L R F M, et al. Effects of epidermal growth factor and progesterone on oocyte meiotic resumption and expression of maturation-related transcripts in bovine oocytes from medium-size antral follicles[J]. Reproduction,Fertility and Development, 2020, 32(2):223.

[36]
TRABERT B, SHERMAN M E, KANNAN N, et al. Progesterone and breast cancer[J]. Endocrine Reviews, 2020, 41(2):320-344.

DOI

[37]
MOLLICK T, LAÍN S. Modulating pyrimidine ribonucleotide levels for the treatment of cancer[J]. Cancer & Metabolism, 2020, 8:12.

文章导航

/