研究论文

β-谷甾醇对脂多糖诱导的乳腺上皮细胞氧化应激及乳脂合成的影响

  • 刘莉莉 ,
  • 杨丹 ,
  • 王晶晶
展开
  • 黑龙江中医药大学药学院,哈尔滨 150040

刘莉莉(1980—),女,黑龙江哈尔滨人,教授,博士,研究方向为中药对泌乳的调控。E-mail:

Copy editor: 武海龙

收稿日期: 2023-06-23

  网络出版日期: 2023-12-11

基金资助

国家自然科学基金项目(82003930)

Effects of β-Sitosterol on Oxidative Stress and Milk Fat Synthesis of Mammary Epithelial Cells Induced by Lipopolysaccharide

  • LIU Lili ,
  • YANG Dan ,
  • WANG Jingjing
Expand
  • College of Pharmacy, Heilongjiang University of Chinese Medicine, Harbin 150040, China

LIU Lili, professor, E-mail:

Received date: 2023-06-23

  Online published: 2023-12-11

摘要

本试验旨在探讨β-谷甾醇(BSS)对脂多糖(LPS)诱导的小鼠乳腺上皮细胞(HC11细胞)氧化应激及乳脂合成的影响。试验以体外培养的HC11细胞为模型,分为5组:对照组(CON组,生长培养基处理)、乳腺炎症模型组(LPS组,1 μg/mL LPS处理)以及炎症模型药物组(BSS+LPS组,分别用5、10、20 μmol/L的BSS预处理1 h后加入1 μg/mL LPS),每组设置5个重复。检测HC11细胞氧化应激指标及抗氧化相关基因、乳脂合成相关基因mRNA和蛋白表达的变化。结果表明:1)与CON组相比,LPS组的HC11细胞丙二醛(MDA)、一氧化氮(NO)含量及诱导型一氧化氮合酶(iNOS)活性显著升高(P<0.05),超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GPx)、过氧化氢酶(CAT)活性和总抗氧化能力(T-AOC)显著降低(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞MDA、NO含量及iNOS活性显著降低(P<0.05),SOD、GPx、CAT活性和T-AOC显著升高(P<0.05)。2)与CON组相比,LPS组的HC11细胞核因子E2相关因子2(Nrf2)、血红素氧合酶-1(HO-1)和NAD(P)H醌氧化还原酶1(NQO1)mRNA和蛋白相对表达量显著降低(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞Nrf2、HO-1和NQO1 mRNA和蛋白相对表达量显著升高(P<0.05)。3)与CON组相比,LPS组的HC11细胞过氧化物酶体增殖物激活受体γ(PPARγ)和固醇调节元件结合蛋白1(SREBP1)mRNA和蛋白相对表达量显著降低(P<0.05),乙酰辅酶A羧化酶(ACC)、脂肪酸合成酶(FAS)和硬脂酰辅酶A去饱和酶(SCD)mRNA相对表达量显著降低(P<0.05)。与LPS组相比,5、10、20 μmol/L BSS +LPS组的HC11细胞PPARγSREBP1 mRNA和蛋白相对表达量显著升高(P<0.05),ACCFASSCD mRNA相对表达量显著升高(P<0.05)。由此可见,BSS能够抑制LPS诱导的HC11细胞氧化损伤,并能促进氧化应激状态下HC11细胞乳脂的合成。

本文引用格式

刘莉莉 , 杨丹 , 王晶晶 . β-谷甾醇对脂多糖诱导的乳腺上皮细胞氧化应激及乳脂合成的影响[J]. 动物营养学报, 2023 , 35(12) : 8013 -8023 . DOI: 10.12418/CJAN2023.726

Abstract

The purpose of this experiment was to explore the effects of β-sitosterol (BSS) on oxidative stress and milk fat synthesis of mammary epithelial cells (HC11 cells) induced by lipopolysaccharide (LPS). The HC11 cells cultured in vitro were used as a model, and divided into 5 groups: control group (CON group, growth medium treated), mammary inflammatory model group (LPS group, 1 μg/mL LPS treated) and inflammatory model medicine groups (BSS+LPS groups, after 5, 10 and 20 μmol/L BSS treated 1 h, respectively, added 1 μg/mL LPS), and set 5 replicates per group. The oxidative stress indexes and the mRNA expression and protein expression of antioxidant related genes and milk fat synthesis related genes in HC11 cells were detected. The results showed as follows: 1) compared with the CON group, the malondialdehyde (MDA), nitric oxide (NO) contents and inducible nitric oxide synthase (iNOS) activity in HC11 cells of LPS group were significantly increased (P<0.05), and the superoxide dismutase (SOD), glutathione peroxidase (GPx), catalase (CAT) activities and total antioxidant capacity (T-AOC) were significantly decreased (P<0.05). Compared with the LPS group, the MDA, NO content and iNOS activity in HC11 cells of 5, 10 and 20 μmol/L BSS+LPS groups were significantly decreased (P<0.05), and the SOD, GPx, CAT activities and T-AOC were significantly increased (P<0.05). 2) Compared with the CON group, the mRNA and protein relative expression levels of nuclear factor erythroid 2-related factor 2 (Nrf2), heme oxygenase-1 (HO-1) and NAD(P)H: quinone oxidoreductase 1 (NQO1) in HC11 cells of LPS group were significantly decreased (P<0.05). Compared with the LPS group, the mRNA and protein relative expression levels of Nrf2, HO-1 and NQO1 in HC11 cells of 5, 10 and 20 μmol/L BSS+LPS groups were significantly increased (P<0.05). 3) Compared with the CON group, the mRNA and protein relative expression levels of peroxisome proliferator activated receptor γ (PPARγ) and sterol regulatory element binding protein 1 (SREBP1) in HC11 cells of LPS group were significantly decreased (P<0.05), and the mRNA relative expression levels of acetyl-CoA carboxylase (ACC), fatty acid synthase (FAS) and stearyl coenzyme A desaturated enzyme (SCD) were significantly decreased (P<0.05). Compared with the LPS group, the mRNA and protein relative expression levels of PPARγ and SREBP1 in HC11 cells of 5, 10 and 20 μmol/L BSS+LPS groups were significantly increased (P<0.05), and the mRNA relative expression levels of ACC, FAS and SCD were significantly increased (P<0.05). In conclusion, BSS can inhibit LPS-induced HC11 cells oxidative damage, and promote milk fat synthesis in HC11 cells under oxidative stress.

氧化应激是体内自由基产生过多与抗氧化能力失衡导致的。氧化应激发生时自由基的富集会导致细胞内生物大分子损伤、脂质过氧化、DNA损伤,进一步加速细胞衰老,损伤细胞功能,甚至威胁细胞生命。炎症反应可促进细胞活性氧自由基的过量产生。革兰氏阴性菌细胞壁的脂多糖(LPS)也被称为细菌内毒素。LPS对奶牛有害,可引起全身和局部炎症反应,导致乳品质和产奶量严重下降,给奶牛养殖业和加工业造成重大的经济损失[1]。细菌会在临床疾病如瘤胃酸中毒、乳腺和子宫感染时释放LPS。LPS通过与细胞表面Toll样受体4结合引发炎症反应,导致随后的氧化应激[2]。LPS乳房内给药也会刺激乳腺炎症反应,并对乳腺造成随后的氧化损伤[3]。在细胞氧化应激的反应中,核因子E2相关因子2(nuclear factor erythroid 2-eelated factor 2,Nrf2)作为细胞内氧化还原状态的调节因子发挥重要作用,其通过与抗氧化反应元件相互作用,激活编码关键抗氧化分子和抗氧化酶基因如血红素氧合酶-1(heme oxygenase-1,HO-1)和NAD(P)H醌氧化还原酶1[NAD(P)H: quinone oxidoreductase 1,NQO1]等的表达来对抗氧化应激。乳脂是牛奶营养品质的主要物质基础,可以为人类提供营养和能量。奶牛乳腺上皮细胞发生氧化应激时,乳腺细胞的损伤会导致乳脂成分的降低,同时细胞内乳脂合成相关基因的表达量也会显著下调[4]。过氧化物酶体增殖物激活受体γ(peroxisome proliferator activated receptor γ,PPARγ)和固醇调节元件结合蛋白1(sterol regulatory element binding protein 1,SREBP1)是乳脂合成与分泌过程中最重要的2个调控因子,在乳脂合成基因网络中处于枢纽位置,二者可通过结合靶基因,影响乳腺对脂肪酸的摄取、转运、从头合成和酯化过程[5]。研究发现,LPS可以降低奶牛乳腺上皮细胞中乳脂合成关键转录因子SREBP1和PPARγ的转录、翻译及调控脂肪酸代谢相关酶mRNA的表达,进而影响乳脂的合成[6]
既往研究表明,伴随炎症反应的氧化应激会对乳腺上皮细胞的功能产生负面影响,甚至导致细胞凋亡[7]。因此,如何缓解氧化应激,优化乳腺上皮细胞的泌乳功能,对泌乳动物的实际生产具有重要意义。β-谷甾醇(β-sitosterol,BSS)是植物甾醇的关键活性成分,也是一种安全、天然、绿色和有效的动物营养补充物,其广泛分布于多种油料性植物及中药植物的根、茎、叶、种子和果实中。通常先从植物材料中提取混合植物甾醇,再利用化学法及物理法精制出纯度较高的BSS单体[8]。BSS具有较强的生理活性和较高的营养价值,广泛应用于医药、保健食品、饲料等行业中。临床试验和模式动物的研究已证实,BSS具有降血糖、抗炎、抑菌和抗癌等多种生物活性[9-10]。此外,研究发现BSS能显著降低大鼠肝脏组织中脂质过氧化物含量,同时其能上调细胞内抗氧化酶活性,对四氯化碳引起的由氧化应激介导的慢性肝病发挥保护作用[11]。BSS可明显缓解肽聚糖诱导的角质细胞氧化应激,减少细胞内活性氧水平,其抗氧化作用与HO-1的蛋白表达水平升高有关[12]。前人研究表明BSS具有一定的抗氧化能力,但BSS能否对动物乳腺的氧化损伤发挥保护作用以及其对乳腺氧化应激发生时重要营养成分乳脂肪合成的影响尚未见报道。因此,本研究利用LPS构建了小鼠乳腺上皮细胞氧化损伤的体外模型,旨在探讨BSS对LPS诱导的小鼠乳腺上皮细胞氧化应激及乳脂合成的影响,为BSS缓解动物乳腺氧化损伤及改善乳质量的应用提供理论依据。

1 材料与方法

1.1 试验材料

小鼠乳腺上皮细胞(HC11细胞)购自北京北纳创联生物技术研究院。

1.2 主要试剂

BSS(纯度>98%)购自成都某生物科技有限公司;LPS购自美国Sigma公司;噻唑兰(MTT)法细胞活力检测试剂盒购自上海碧云天生物技术有限公司;RPMI-1640干粉、胎牛血清(FBS)购自美国Gibco公司;Trizol购自美国Invitrogen公司;Prime ScriptTM RT reagent Kit试剂盒、SYBR Premix Ex TaqTM试剂盒购自日本TaKaRa公司;超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GPx)、过氧化氢酶(CAT)、丙二醛(MDA)、一氧化氮(NO)、诱导型一氧化氮合酶(iNOS)、总抗氧化能力(T-AOC)检测试剂盒购自南京建成生物工程研究所;Nrf2、NQO1、HO-1一抗购自美国Proteintech公司;PPARγ、SREBP1和β-肌动蛋白(β-actin)一抗购自美国Cell Signaling Technology公司。

1.3 试验设计和方法

1.3.1 HC11细胞的培养

采用生长培养基(RPMI-1640+10% FBS)于37 ℃、5% CO2条件下培养HC11细胞,每隔24 h更换新鲜培养基。

1.3.2 BSS对LPS诱导的HC11细胞氧化应激指标的检测

试验分为对照组(CON组,生长培养基处理)、乳腺炎症模型组(LPS组,1 μg/mL LPS处理)以及炎症模型药物组(BSS+LPS组,分别用5、10、20 μmol/L的BSS预处理1 h后加入1 μg/mL LPS),每组设置5个重复。LPS添加浓度参考前人文献报道[13-14],BSS添加浓度由前期试验研究确定。将处于对数生长期的HC11细胞接种于6孔板中,待细胞融合度达到70%~80%时,药物作用细胞24 h后,收集细胞,根据试剂盒说明书检测T-AOC和MDA、NO含量及iNOS、SOD、GPx、CAT活性。

1.3.3 BSS对LPS诱导的HC11细胞抗氧化相关基因及乳脂合成相关基因mRNA表达的检测

试验分组及药物处理方法同1.3.2。将处于对数生长期的HC11细胞接种于6孔板中,待细胞融合度达到70%~80%时,添加药物作用细胞24 h后收集细胞,Trizol法提取RNA,根据PrimeScriptTM RT reagent Kit试剂盒说明书进行反转录,利用实时荧光定量PCR(qRT-PCR)试剂盒(SYBR Premix Ex TaqTM)检测HC11细胞Nrf2、NQO1、HO-1、SREBP1、PPARγ、乙酰辅酶A羧化酶(acetyl-CoA carboxylase,ACC)、脂肪酸合成酶(fatty acid synthase,FAS)、硬脂酰辅酶A去饱和酶(stearyl coenzyme A desaturated enzyme,SCD)的mRNA表达水平。试验所用基因的引物序列见表1,选用β-actin作为内参基因。qRT-PCR结果采用2-ΔΔCt相对定量的方法计算各目的基因的mRNA相对表达量。
表1 实时荧光定量PCR引物序列

Table 1 Primer sequences for qRT-PCR

基因Genes 引物序列Primer sequences (5'—3')
核因子E2相关因子2 Nrf2 F:CAGCATAGAGCAGGACATGGAG
R:GAACAGCGGTAGTATCAGCCAG
NAD(P)H醌氧化还原酶1 NQO1 F:GGTTTGGAGTCCCTGCCATT
R:GCCTTCTTACTCCGGAAGGG
血红素氧合酶-1 HO-1 F:CCTCACTGGCAGGAAATCATC
R:CCTCGTGGAGACGCTTTACATA
固醇调节元件结合蛋白1 SREBP1 F:CTTCTGGAGACATCGCAAAC
R:GGTAGACAACAGCCGCATC
过氧化物酶体增殖物激活受体γ PPARγ F:GGAAGACCACTCGCATTCCTT
R:GTAATCAGCAACCATTGGGTCA
乙酰辅酶A羧化酶ACC F:GAGAGGGGTCAAGTCCTTCC
R:ACATCCACTTCCACACACGA
脂肪酸合成酶FAS F:ATCAGAAATTCAGCCCGTTG
R:AAGTTGCATCCACCCAAATC
硬脂酰辅酶A去饱和酶SCD F:CTAGGCTTGCCTTTGTCCAG
R:GGTAGGGAGGATCTGGAAGC
β-肌动蛋白β-actin F:ACCGTGAAAAGATGACCCAG
R:AGCCTGGATGGCTACGTACA

1.3.4 BSS对LPS诱导的HC11细胞抗氧化相关蛋白和乳脂合成相关蛋白表达的检测

试验分组及药物处理方法同1.3.2,将处于对数生长期的HC11细胞接种于6孔板中,待细胞融合度达到70%~80%时,添加药物作用细胞24 h后收集细胞提取蛋白,采用Western blotting方法检测Nrf2、NQO1、HO-1、SREBP1和PPARγ的蛋白相对表达量。

1.4 数据处理

采用SPSS 22.0软件对试验数据进行单因素方差分析(one-way ANOVA),如果组间差异有统计学意义,进一步采用Tukey法进行多重比较,试验数据均以平均值±标准差表示,P<0.05为差异显著。

2 结果

2.1 BSS对LPS诱导的HC11细胞氧化应激指标的影响

2.1.1 BSS对LPS诱导的HC11细胞MDA、NO含量及iNOS活性的影响

BSS对LPS诱导的HC11细胞MDA、NO含量及iNOS活性的影响如表2所示。与CON组相比,LPS组的HC11细胞MDA、NO含量及iNOS活性分别显著升高了120.83%、131.75%及86.20%(P<0.05);与LPS组相比,5、10、20μmol/LBSS+LPS组的HC11细胞MDA、NO含量及iNOS活性均显著降低(P<0.05)。
表2 BSS对LPS诱导的HC11细胞MDA、NO含量和iNOS活性的影响

Table 2 Effects of BSS on MDA, NO contents and iNOS activity in LPS-induced HC11 cells

项目
Items
组别Groups
CON LPS 5 μmol/L
BSS+LPS
10 μmol/L
BSS+LPS
20 μmol/L
BSS+LPS
丙二醛
MDA/(nmol/mg prot)
0.96±0.05e 2.12±0.09a 1.37±0.05d 1.54±0.06c 1.85±0.07b
一氧化氮
NO/(nmol/mg prot)
1.89±0.06d 4.38±0.16a 2.59±0.09c 2.75±0.12c 3.78±0.15b
诱导型一氧化氮合酶
iNOS/(U/mg prot)
8.26±0.32e 15.38±0.54a 9.86±0.47d 11.24±0.43c 13.87±0.27b

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.1.2 BSS对LPS诱导的HC11细胞SOD、GPx、CAT活性及T-AOC的影响

BSS对LPS诱导的HC11细胞SOD、GPx、CAT活性及T-AOC的影响如表3所示。与CON组相比,LPS组的HC11细胞SOD、GPx、CAT活性及T-AOC分别显著降低了189.46%、156.89%、148.82%及336.54%(P<0.05);与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞SOD、GPx、CAT活性及T-AOC均显著升高(P<0.05)。
表3 BSS对LPS诱导的HC11细胞SOD、GPx、CAT活性及T-AOC的影响

Table 3 Effects of BSS on SOD, GPx, CAT activities and T-AOC in LPS-induced HC11 cells U/mg prot

项目
Items
组别Groups
CON LPS 5 μmol/L
BSS+LPS
10 μmol/L
BSS+LPS
20 μmol/L
BSS+LPS
超氧化物歧化酶SOD 59.86±2.28a 20.68±1.53e 46.36±2.13b 41.58±1.97c 34.86±1.76d
谷胱甘肽过氧化物酶GPx 91.35±3.24a 35.56±1.84d 73.86±3.38b 68.48±2.95b 49.75±2.68c
过氧化氢酶CAT 6.32±0.21a 2.54±0.12d 5.36±0.17b 5.68±0.23b 3.87±0.19c
总抗氧化能力T-AOC 2.27±0.07a 0.52±0.03e 1.63±0.06b 1.48±0.06c 1.25±0.05d

2.2 BSS对LPS诱导的HC11细胞抗氧化相关基因mRNA和蛋白表达的影响
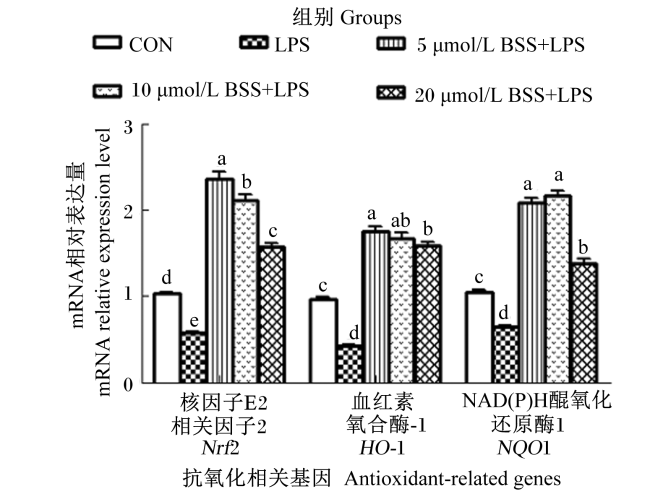
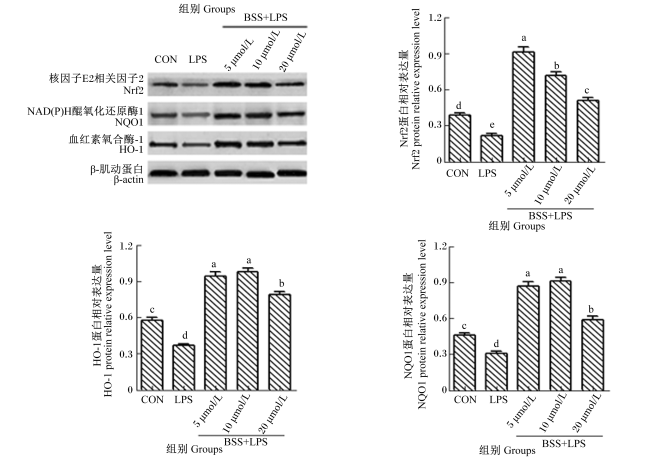
BSS对LPS诱导的HC11细胞Nrf2、HO-1、NQO1 mRNA和蛋白表达的影响如图1图2所示。与CON组相比,LPS组的HC11细胞Nrf2、HO-1、NQO1 mRNA和蛋白相对表达量均显著降低(P<0.05);与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞Nrf2、HO-1和NQO1 mRNA和蛋白相对表达量均显著升高(P<0.05)。
图1 BSS对LPS诱导的HC11细胞抗氧化相关基因mRNA表达的影响

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of BSS on mRNA expression of antioxidant related genes in LPS-induced HC11 cells

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

图2 BSS对LPS诱导的HC11细胞抗氧化相关蛋白表达的影响

Fig.2 Effects of BSS on protein expression of antioxidant related proteins in LPS-induced HC11 cells

2.3 BSS对LPS诱导的HC11细胞乳脂合成相关基因mRNA和蛋白表达的影响

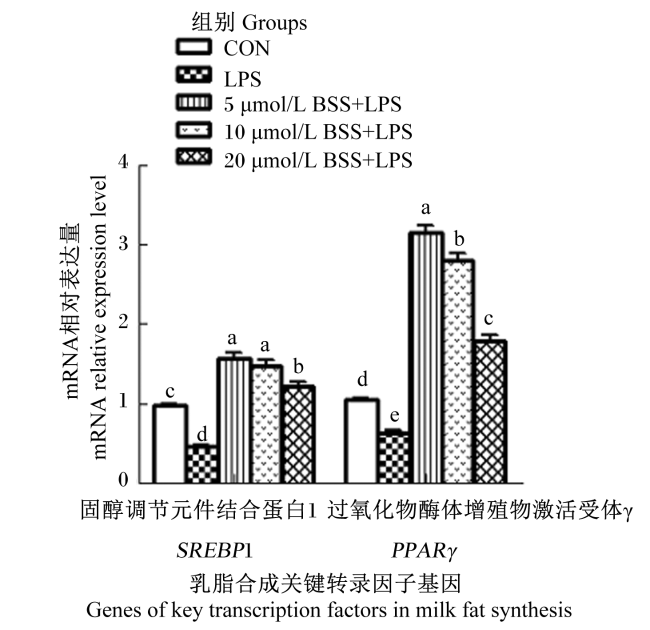
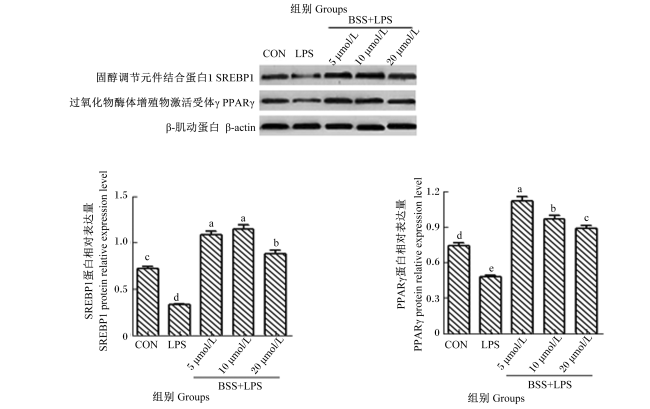
BSS对LPS诱导的HC11细胞乳脂合成关键转录调控因子SREBP1和PPARγ mRNA和蛋白表达的影响如图3图4所示。与CON组相比,LPS组的HC11细胞SREBP1和PPARγ mRNA和蛋白相对表达量均显著降低(P<0.05);与LPS组相比,5、10、20 μmol/L BSS +LPS组的HC11细胞SREBP1和PPARγ mRNA和蛋白相对表达量均显著升高(P<0.05)。
图3 BSS对LPS诱导的HC11细胞SREBP1和PPARγ mRNA表达的影响

Fig.3 Effects of BSS on mRNA expression of SREBP1 and PPARγ in LPS-induced HC11 cells

图4 BSS对LPS诱导的HC11细胞SREBP1和PPARγ蛋白表达的影响

Fig.4 Effects of BSS on the protein expression of SREBP1 and PPARγ in LPS-induced HC11 cells

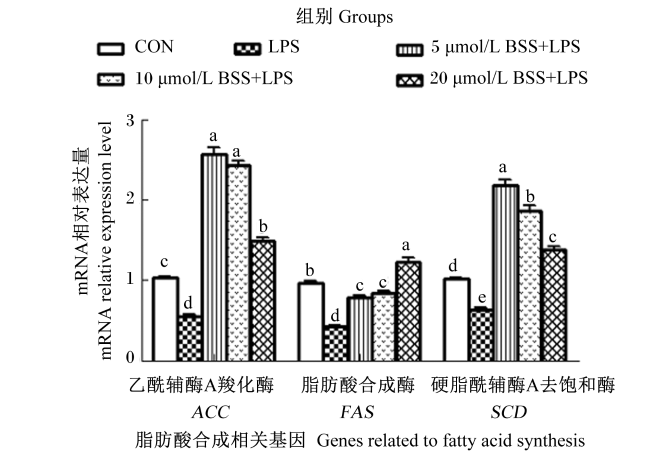
BSS对LPS诱导的HC11细胞脂肪酸合成相关基因ACCFASSCD mRNA表达的影响如图5所示。与CON组相比,LPS组的HC11细胞ACCFASSCD mRNA相对表达量均显著降低(P<0.05);与LPS组相比,5、10、20 μmol/L BSS+LPS组的HC11细胞ACCFASSCD mRNA相对表达量均显著升高(P<0.05)。
图5 BSS对LPS诱导的HC11细胞ACCFASSCD mRNA表达的影响

Fig.5 Effects of BSS on mRNA expression of ACC, FAS and SCD in LPS-induced HC11 cells

3 讨论

乳腺氧化应激一般由炎症所引发,对产奶动物健康和泌乳性能有负面影响。LPS是革兰氏阴性菌(如大肠杆菌)的外膜成分,大肠杆菌侵入乳导管可导致乳腺细胞LPS增多,LPS可以改变乳腺上皮细胞的平衡,提高炎症因子的表达,引起乳腺组织炎症和氧化应激。目前的研究已经证实奶牛机体发生瘤胃酸中毒时,通常会导致体内产生大量的LPS,LPS可通过血液循环进入乳腺对乳腺造成氧化损伤。所以本研究采用LPS诱导HC11细胞建立氧化损伤模型,研究BSS对LPS诱导的HC11细胞氧化损伤及乳脂合成的影响。

3.1 BSS对LPS诱导的HC11细胞氧化应激指标的影响

氧化对身体至关重要,但过度氧化会诱发细胞积累大量的自由基,如氧自由基和氮自由基等,导致细胞发生脂质过氧化,进而引起细胞和组织氧化损伤,抗氧化系统可以抵御机体氧化应激。动物的抗氧化系统由抗氧化酶和非酶抗氧化剂组成,主要用于防止氧化损伤和维持氧化还原平衡。SOD、CAT和GPx是体内主要的抗氧化酶,它们通过催化超氧阴离子向过氧化氢和氧的转化或直接与活性氧反应来抑制活性氧介导的毒性[15]。MDA含量是细胞膜过氧化的一个重要指标。氮自由基的合成需要NO作为前体小分子,而NO主要由iNOS催化合成[16]。研究表明,一些植物活性成分可以减弱LPS诱导的氧化应激。莲心碱预处理可降低LPS诱导的小鼠脓毒症模型脾脏组织中MDA含量,增强CAT、SOD和GPx活性,进而缓解脾脏损伤[17]。连翘苷可提高肾小管上皮HK-2细胞的抗氧化应激能力,进而减轻LPS诱导的氧化应激损伤[18]。甘草查尔酮C能影响LPS诱导的H9c2细胞中iNOS/NO通路,明显下调LPS诱导的H9c2细胞iNOS的蛋白表达,能抑制LPS处理的H9c2细胞释放NO[19]。丹皮酚可提高LPS诱导的奶牛乳腺上皮细胞SOD和GPx活性,降低MDA含量,减轻乳腺上皮细胞的氧化应激[20]。姜黄素能显著减少奶牛乳腺上皮细胞在LPS诱导下产生的MDA含量,提高T-AOC和SOD活性,证明姜黄素对LPS刺激的乳腺上皮细胞氧化损伤有良好的保护作用[21]
植物甾醇在医学和食品科学中具有广泛的应用。在动物生产中,科学使用植物甾醇可以促进动物生长,改善机体健康,提高畜产品的质量,对降低养殖成本和提高经济效益具有积极作用,其作为一种功能性添加剂,在饲料工业中具有广阔的应用前景[22-23]。在各种植物甾醇中,BSS是主要化合物,在植物中含量丰富。BSS的促生长、抑菌、抗炎、抗氧化和免疫调节等生物学特性使其在无抗养殖中具有良好的应用前景[10]。本试验利用BSS作用于LPS诱导的HC11细胞,以研究其对HC11细胞氧化应激的影响,结果表明,LPS诱导的HC11细胞MDA、NO含量及iNOS活性显著升高,SOD、GPx、CAT活性和T-AOC显著降低;而BSS能显著抑制LPS诱导的HC11细胞MDA、NO含量及iNOS活性,显著提高抗氧化酶活性。这些结果表明,BSS也可以通过上调抗氧化酶活性进而抑制MDA、NO含量及iNOS活性,减轻LPS引起的HC11细胞氧化损伤。

3.2 BSS对LPS诱导的HC11细胞抗氧化基因表达的影响

Nrf2是调控抗氧化蛋白表达以防止氧化损伤的最具特征的转录因子之一。当机体发生氧化应激时,活化的Nrf2转运进入细胞核与抗氧化反应元件结合,激活转录及调控抗氧化蛋白的基因表达,从而发挥抗氧化作用,典型的Nrf2调控基因包括NQO1、HO-1、SOD[24-25]。研究发现,姜黄素可以提高奶牛乳腺上皮细胞Nrf2的mRNA和蛋白表达,并能上调其下游HO-1和NQO1靶基因的表达,从而对LPS引起的氧化损伤起到保护作用[26]。适当浓度的大麻二酚能激活小鼠乳腺上皮细胞Nrf2信号通路,上调抗氧化酶SOD1、HO-1和NQO1的表达,抑制细胞内活性氧和MDA的产生,以缓解LPS诱导的乳腺细胞氧化损伤[27]。饲粮中添加BSS能提高热应激肉鸡组织抗氧化酶活性,抑制其脂质过氧化,上调抗氧化基因Nrf2、GPxSODCAT的mRNA表达,提示BSS可通过激活Nrf2信号通路提高热应激条件下肉鸡肝脏的抗氧化功能[28]。BSS负载固体脂质纳米颗粒能够改善关节炎大鼠滑膜的氧化还原状态,降低MDA含量,增加SOD和CAT活性,还能上调HO-1和Nrf2的mRNA表达,表明其可通过激活HO-1/Nrf2通路发挥一定的抗关节炎作用[29]。本研究也检测了BSS对LPS诱导的HC11细胞Nrf2及下游抗氧化酶基因和蛋白表达的影响,发现不同浓度BSS能显著提高HC11细胞Nrf2 mRNA和蛋白相对表达量,并且BSS处理的HC11细胞Nrf2下游基因HO-1与NQO1 mRNA和蛋白相对表达量也显著升高。本研究结果提示,BSS也可作为HC11细胞Nrf2信号通路潜在的激活剂,HC11细胞中经BSS激活的Nrf2能促进下游抗氧化酶基因HO-1和NQO1的表达,从而对LPS诱导的氧化损伤起到保护作用。

3.3 BSS对LPS诱导的HC11细胞乳脂合成相关基因表达的影响

乳脂在衡量乳制品质量和乳汁能量分布方面起着核心作用。LPS对乳腺上皮细胞造成的氧化损伤能减少乳脂的合成,最终导致乳质量下降。SREBP1和PPARγ是乳脂合成相关基因网络中关键的转录调控因子。对啮齿类动物和奶牛的研究证明,SREBP1在调节乳腺脂肪酸合成中起核心作用。激活的SREBP1通过结合脂肪酸合成酶ACC1、FAS等基因的应答元件,进而激活脂肪生成基因的转录促进乳脂合成[30]。PPARγ可通过调节乳腺中与脂肪酸摄取、活化、运输、从头合成、去饱和、甘油三酯合成相关的生脂基因表达及SREBP1的表达而在乳脂合成中发挥关键作用[31]。Kadegowda等[32]使用PPARγ激动剂罗格列酮处理奶牛乳腺上皮细胞,发现脂肪酸从头合成基因(ACCFASSCD)及转录调控基因(SREBP1)的mRNA相对表达量均上调。Ma等[33]研究表明,LPS明显抑制奶牛乳腺上皮细胞乳脂合成相关转录因子SREBP1、PPARγ及其下游酶ACCFASSCD的mRNA表达。Liu等[34]研究发现,LPS刺激的奶牛乳腺上皮细胞乳脂合成相关基因SREBP1、PPARγACCFAS的mRNA表达及SREBP1、PPARγ蛋白表达和ACC、FAS活性均显著降低。研究发现,植物提取物可能通过促进乳脂合成关键转录因子的表达而提高LPS诱导的乳腺上皮细胞乳脂的合成。一定浓度的黄芪甲苷能显著提高LPS诱导的奶牛乳腺上皮细胞FASACCPPARγ的mRNA相对表达量,对LPS抑制的乳脂合成有减缓作用[35]。龙血素B能够显著上调LPS诱导的奶牛乳腺上皮细胞乳脂合成相关基因PPARγSREBP1和FAS的mRNA表达,进而促进乳脂合成[36]。本研究发现,LPS诱导显著下调了HC11细胞乳脂合成关键转录调控因子及脂肪酸合成相关基因的表达量,与前人研究结果相似。同时本研究结果还显示,与LPS诱导损伤的HC11细胞相比,BSS能提高SREBP1、PPARγACCFASSCD的mRNA相对表达量及SREBP1和PPARγ的蛋白相对表达量。本研究结果表明,BSS可能通过上调氧化应激状态下HC11细胞中乳脂合成关键转录因子SREBP1和PPARγ的表达,进而影响脂肪酸合成相关基因的表达,发挥促进氧化损伤HC11细胞乳脂合成的作用。

4 结论

BSS可抑制LPS诱导的小鼠乳腺上皮细胞的氧化损伤;同时BSS可上调LPS诱导的小鼠乳腺上皮细胞乳脂合成关键转录调控因子SREBP1和PPARγ的表达,进而提高脂肪酸合成相关基因的表达,表明BSS可促进氧化损伤的小鼠乳腺上皮细胞乳脂的合成。
[1]
ABAKER J A, XU T L, JIN D, et al. Lipopolysaccharide derived from the digestive tract provokes oxidative stress in the liver of dairy cows fed a high-grain diet[J]. Journal of Dairy Science, 2017, 100(1):666-678.

DOI PMID

[2]
JIN D, CHANG G J, ZHANG K, et al. Rumen-derived lipopolysaccharide enhances the expression of lingual antimicrobial peptide in mammary glands of dairy cows fed a high-concentrate diet[J]. BMC Veterinary Research, 2016, 12(1):128.

DOI PMID

[3]
LI L, WANG H H, NIE X T, et al. Sodium butyrate ameliorates lipopolysaccharide-induced cow mammary epithelial cells from oxidative stress damage and apoptosis[J]. Journal of Cellular Biochemistry, 2019, 120(2):2370-2381.

DOI

[4]
LI L, TANG W, ZHAO M, et al. Study on the regulation mechanism of lipopolysaccharide on oxidative stress and lipid metabolism of bovine mammary epithelial cells[J]. Physiological Research, 2021, 70(5):777-785.

DOI PMID

[5]
陈美庆, 张养东, 郑楠, 等. 短链脂肪酸调控奶牛乳腺乳脂合成作用机制的研究进展[J]. 动物营养学报, 2022, 34(3):1426-1433.

DOI

CHEN M Q, ZHANG Y D, ZHENG N, et al. Advances in mechanism of short-chain fatty acids regulating milk fat synthesis in bovine mammary gland[J]. Chinese Journal of Animal Nutrition, 2022, 34(3):1426-1433. (in Chinese)

[6]
张旭. LPS对奶牛乳腺上皮细胞乳脂合成功能和脂代谢相关分子的影响[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2018.

ZHANG X. Effect of LPS on the milk fat synthesis and lipid metabolism-related molecules in dairy cow mammary epithelial cells[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2018. (in Chinese)

[7]
GUO W J, LIU J X, SUN J X, et al. Butyrate alleviates oxidative stress by regulating NRF2 nuclear accumulation and H3K9/14 acetylation via GPR109A in bovine mammary epithelial cells and mammary glands[J]. Free Radical Biology and Medicine, 2020, 152:728-742.

DOI PMID

[8]
陈元堃, 曾奥, 罗振辉, 等. β-谷甾醇药理作用研究进展[J]. 广东药科大学学报, 2021, 37(1):148-153.

CHEN Y K, ZENG A, LUO Z H, et al. Advances on pharmacology of β-sitosterol[J]. Journal of Guangdong Pharmaceutical University, 2021, 37(1):148-153. (in Chinese)

[9]
BABU S, JAYARAMAN S. An update on β-sitosterol:a potential herbal nutraceutical for diabetic management[J]. Biomedicine & Pharmacotherapy, 2020, 131:110702.

DOI

[10]
陈跃平, 谢婷, 张昊, 等. β-谷甾醇的生理功能及其在动物生产中的应用研究进展[J]. 动物营养学报, 2022, 34(5):2721-2731.

DOI

CHEN Y P, XIE T, ZHANG H, et al. Physiological functions of β-sitosterol and advances of its application in animal production[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):2721-2731. (in Chinese)

DOI

[11]
DEVARAJ E, ROY A, ROYAPURAM VEERARAGAVAN G, et al. β-sitosterol attenuates carbon tetrachloride-induced oxidative stress and chronic liver injury in rats[J]. Naunyn Schmiedebergs Archives of Pharmacology, 2020, 393(6):1067-1075.

DOI

[12]
LIAO P C, LAI M H, HSU K P, et al. Identification of β-sitosterol as in vitro anti-inflammatory constituent in Moringa oleifera[J]. Journal of Agricultural and Food Chemistry, 2018, 66(41):10748-10759.

DOI

[13]
姜爱民. 桑色素对LPS诱导的小鼠乳腺炎的保护作用及机制初步研究[D]. 硕士学位论文. 长春: 吉林大学, 2021.

JIANG A M. The anti-inflammatory effects of morin on LPS-induced mastitis in mice and its mechanisms[D]. Master’s Thesis. Changchun: Jilin University, 2021. (in Chinese)

[14]
JIANG M C, LV Z Y, HUANG Y H, et al. Quercetin alleviates lipopolysaccharide-induced inflammatory response in bovine mammary epithelial cells by suppressing TLR4/NF-κB signaling pathway[J]. Frontiers in Veterinary Science, 2022, 9:915726.

DOI

[15]
ABDEL-DAIM M M, ABDEL-RAHMAN H G, DESSOUKI A A, et al. Impact of garlic (Allium sativum) oil on cisplatin-induced hepatorenal biochemical and histopathological alterations in rats[J]. Science of the Total Environment, 2020, 710:136338.

DOI

[16]
KOUTI L, NOROOZIAN M, AKHONDZADEH S, et al. Nitric oxide and peroxynitrite serum levels in Parkinson’s disease:correlation of oxidative stress and the severity of the disease[J]. European Review for Medical and Pharmacological Sciences, 2013, 17(7):964-970.

[17]
WANG H Y, YANG Y H, ZHANG X, et al. Liensinine attenuates inflammation and oxidative stress in spleen tissue in an LPS-induced mouse sepsis model[J]. Journal of Zhejiang University Science B, 2023, 24(2):185-190.

DOI

[18]
梁勇, 武军元, 刘禹赓, 等. 连翘苷调控miR-146a对脂多糖诱导的肾小管上皮细胞HK-2凋亡及氧化应激的影响[J]. 中国老年学杂志, 2022, 42(10):2438-2443.

LIANG Y, WU J Y, LIU Y G, et al. Effect of forsythin on lipopolysaccharide-induced apoptosis and oxidative stress in renal tubular epithelial cells HK-2 by regulating miR-146a[J]. Chinese Journal of Gerontology, 2022, 42(10):2438-2443. (in Chinese)

[19]
FRANCESCHELLI S, PESCE M, FERRONE A, et al. Biological effect of licochalcone C on the regulation of PI3K/Akt/eNOS and NF-κB/iNOS/NO signaling pathways in H9c2 cells in response to LPS stimulation[J]. International Journal of Molecular Sciences, 2017, 18(4):690.

DOI

[20]
杨明, 李可, 贾丽, 等. 丹皮酚对LPS诱导的奶牛乳腺上皮细胞炎性损伤的缓解作用[J]. 畜牧与兽医, 2023, 55(4):50-55.

YANG M, LI K, JIA L, et al. Alleviation effect of paeonol on LPS-induced inflammatory injury in bovine mammary epithelial cells[J]. Animal Husbandry & Veterinary Medicine, 2023, 55(4):50-55. (in Chinese)

[21]
李瑞华. 姜黄素对牛乳腺上皮细胞的抗氧化作用及抑癌机制的研究[D]. 硕士学位论文. 长春: 吉林大学, 2021.

LI R H. The antioxidant effect of curcumin on bovine mammary epithelial cells and its anticancer mechanism[D]. Master’s Thesis. Changchun: Jilin University, 2021. (in Chinese)

[22]
彭建, 陈刘浦, 贝亦江, 等. 植物甾醇的生理功能及在动物生产中的应用[J]. 饲料研究, 2021, 44(5):152-154.

PENG J, CHEN L P, BEI Y J, et al. Physiological functions and application in animal production of phytosterols[J]. Feed Research, 2021, 44(5):152-154. (in Chinese)

[23]
周路, 徐宝成, 尤思聪, 等. 植物甾醇生理功能及安全性评估研究新进展[J]. 中国粮油学报, 2020, 35(6):196-202.

ZHOU L, XU B C, YOU S C, et al. New progresses in research of physiological function and safety evaluation of phytosterols[J]. Journal of the Chinese Cereals and Oils Association, 2020, 35(6):196-202. (in Chinese)

[24]
SUN X D, LI X B, JIA H D, et al. Nuclear factor E2-related factor 2 mediates oxidative stress-induced lipid accumulation in adipocytes by increasing adipogenesis and decreasing lipolysis[J]. Antioxidants&Redox Signaling, 2020, 32(3):173-192.

[25]
GUO S C, YANG J Y, QIN J P, et al. Melatonin promotes in vitro maturation of vitrified-warmed mouse germinal vesicle oocytes,potentially by reducing oxidative stress through the Nrf2 pathway[J]. Animals, 2021, 11(8):2324.

DOI

[26]
LI R H, FANG H T, SHEN J L, et al. Curcumin alleviates LPS-induced oxidative stress,inflammation and apoptosis in bovine mammary epithelial cells via the NFE2L2 signaling pathway[J]. Toxins, 2021, 13(3):208.

DOI

[27]
范港, 黄鑫, 张伟伟, 等. 大麻二酚对脂多糖诱导的小鼠乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2023, 35(2):1298-1307.

DOI

FAN G, HUANG X, ZHANG W W, et al. Protective effects of cannabidiol on oxidative damage of mouse mammary epithelial cells induced by lipopolysaccharide[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1298-1307. (in Chinese)

DOI

[28]
程业飞. β-谷甾醇对正常和热应激条件下肉鸡生长、抗氧化和线粒体功能影响的研究[D]. 博士学位论文. 南京: 南京农业大学, 2020.

CHENG Y F. Study on effects of β-sitosterol on growth,and antioxidant and mitochondial function of broilers under normal and heat stress conditions[D].Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2020. (in Chinese)

[29]
ZHANG F, LIU Z Y, HE X J, et al. β-Sitosterol-loaded solid lipid nanoparticles ameliorate complete Freund’s adjuvant-induced arthritis in rats:involvement of NF-кB and HO-1/Nrf-2 pathway[J]. Drug Delivery, 2020, 27(1):1329-1341.

DOI

[30]
LI N, ZHAO F, WEI C J, et al. Function of SREBP1 in the milk fat synthesis of dairy cow mammary epithelial cells[J]. International Journal of Molecular Sciences, 2014, 15(9):16998-17013.

DOI PMID

[31]
LIU L L, LIN Y, LIU L X, et al. Regulation of peroxisome proliferator-activated receptor gamma on milk fat synthesis in dairy cow mammary epithelial cells[J]. In Vitro Cellular & Developmental Biology-Animal, 2016, 52(10):1044-1059.

DOI

[32]
KADEGOWDA A K G, BIONAZ M, PIPEROVA L S, et al. Peroxisome proliferator-activated receptor-gamma activation and long-chain fatty acids alter lipogenic gene networks in bovine mammary epithelial cells to various extents[J]. Journal of Dairy Science, 2009, 92(9):4276-4289.

DOI PMID

[33]
MA N N, WEI G Z, ZHANG H Z, et al. Cis-9,trans-11 CLA alleviates lipopolysaccharide-induced depression of fatty acid synthesis by inhibiting oxidative stress and autophagy in bovine mammary epithelial cells[J]. Antioxidants, 2021, 11(1):55.

DOI

[34]
LIU L X, ZHANG L I, LIN Y E, et al. 14-3-3γ regulates cell viability and milk fat synthesis in lipopolysaccharide-induced dairy cow mammary epithelial cells[J]. Experimental and Therapeutic Medicine, 2016, 11(4):1279-1287.

PMID

[35]
樊嘉琦, 周学章. 黄芪甲苷对脂多糖刺激的奶牛乳腺上皮细胞乳蛋白及乳脂合成相关因子表达的影响[J]. 动物营养学报, 2022, 34(10):6702-6713.

DOI

FAN J Q, ZHOU X Z. Effects of astragaloside on expression of milk protein and milk fat synthesis-related factors in lipopolysaccharide-stimulated milk bovine mammary epithelial cells[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6702-6713. (in Chinese)

[36]
王茗琦. 龙血素B缓解脂多糖诱导的奶牛乳腺上皮细胞炎症和氧化应激的机制[D]. 硕士学位论文. 长春: 吉林大学, 2021.

WANG M Q. The mechanism of loureirin B alleviating lipopolysaccharide-induced inflammation and oxidative stress in bovine mammary epithelial cells[D]. Master’s Thesis. Changchun: Jilin University, 2021. (in Chinese)

文章导航

/