研究论文

解淀粉芽孢杆菌B10抑制黄曲霉生长活性物质克隆表达及作用效果研究

  • 李天溪 ,
  • 龙淼 , *
展开
  • 沈阳农业大学动物科学与医学学院,农业农村部反刍动物重大疫病防控重点实验室(东部),重要家畜疫病研究教育部重点实验室,沈阳 110000
* 龙 淼,教授,博士生导师,E-mail:

李天溪(1998—),女,辽宁朝阳人,硕士研究生,研究方向为动物营养代谢病与中毒病。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-05-19

  网络出版日期: 2023-12-11

基金资助

国家自然科学基金(32273074)

国家自然科学基金(31972746)

国家自然科学基金(31872538)

国家自然科学基金(31772809)

辽宁省教育厅重点项目(LJKZ0632)

Study on Bacillus amyloliquefaciens B10 Inhibiting Cloning and Expression of Growth Active Substance of Aspergillusflavus and Its Efficacy

  • LI Tianxi ,
  • LONG Miao , *
Expand
  • Key Laboratory of Livestock Infectious Diseases, Ministry of Education, Key Laboratory of Ruminant Infectious Disease Prevention and Control (East), Ministry of Agriculture and Rural Affairs, College of Animal Science and Veterinary Medicine, Shenyang Agricultural University, Shenyang 110000, China
* professor, E-mail:

Received date: 2023-05-19

  Online published: 2023-12-11

摘要

本试验旨在从解淀粉芽孢杆菌B10中克隆表达出能够抑制黄曲霉生长的活性物质,验证其黄曲霉抑制活性,明确其抗菌作用方式。试验通过克隆表达及亲和层析纯化操作成功得到重组1,3-1,4-β-D-葡聚糖4-葡聚糖水解酶(B10-Glu)及抗菌肽LCI(B10-LCI),并对二者基本生物学信息进行分析。平板抑菌试验验证抑菌活性后,探究B10-Glu、B10-LCI最小抑菌浓度(MIC)及环境条件对二者抑菌效果的影响。通过电镜观察、细胞膜通透性及线粒体膜电位变化、活性氧(ROS)含量及过氧化氢酶(CAT)、超氧化物歧化酶(SOD)活性检测,探究B10-Glu、B10-LCI黄曲霉抑制方式。结果表明:1)B10-Glu及B10-LCI的表观分子质量分别为25及12 ku,与预测分子质量较为接近。B10-LCI最佳诱导条件为16 ℃诱导16 h,B10-Glu为25 ℃诱导12 h。2)B10-Glu及B10-LCI对黄曲霉均有清晰明显的抑制效果,抑菌圈半径分别为1.14及1.17 cm。MIC分别为0.94及0.96 μg/mL。3)B10-Glu及B10-LCI均能抑制黄曲霉孢子形成;破坏其菌丝形态及细胞内部结构;提高黄曲霉细胞膜通透性,致使细胞内容物流失;破坏线粒体等细胞器,促使ROS积累并降低细胞抗氧化水平。综上所述,B10-Glu及B10-LCI能通过抑制黄曲霉生长繁殖过程、破坏其细胞结构来发挥二者的优良抗黄曲霉作用效果。

本文引用格式

李天溪 , 龙淼 . 解淀粉芽孢杆菌B10抑制黄曲霉生长活性物质克隆表达及作用效果研究[J]. 动物营养学报, 2023 , 35(12) : 8024 -8035 . DOI: 10.12418/CJAN2023.727

Abstract

The aim of this experiment was to clone and express the active substances that could inhibit the growth of Aspergillusflavus from Bacillus amyloliquefaciens B10, verify their inhibitory activity against Aspergillusflavus and clarify their antibacterial action mode. The experiment purified recombinant 1,3-1,4-β-D-glucan 4-glucan hydrolase (B10-Glu) and antibacterial peptide LCI (B10-LCI) through cloning, expression, affinity chromatography, and other operations, and analyzed their basic biological information. After verifying their antibacterial activity through plate antibacterial tests, investigate the effects of minimum inhibitory concentration (MIC) of B10-Glu and B10-LCI, as well as environmental conditions, on their antibacterial effects. The inhibition mode of Aspergillusflavus was explored by electron microscope observation, cell membrane permeability, mitochondrial membrane potential change, reactive oxygen species (ROS) content and catalase (CAT), superoxide dismutase (SOD) activity detection. The results showed as follows: 1) the apparent molecular weights of B10-Glu and B10-LCI were 25 and 12 ku, respectively, which were close to the predicted molecular weights. The optimal induction conditions for B10-LCI were 16 ℃ for 16 h, and B10-Glu was 25 ℃ for 12 h. 2) Both B10-Glu and B10-LCI had obvious inhibitory effects on Aspergillusflavus, and the radius of inhibitory zone was 1.14 and 1.17 cm, respectively. MIC were 0.94 and 0.96 μg/mL, respectively 3) Both B10-Glu and B10-LCI could inhibit the formation of Aspergillusflavus spores; destroy its mycelial morphology and cellular internal structure; improving the membrane permeability of Aspergillusflavus cells, resulting in loss of cell content logistics; destroy organelle such as mitochondria, promote ROS accumulation and reduce cell antioxidant level. In summary, B10-Glu and B10-LCI can exert their excellent anti Aspergillusflavus effect by inhibiting the growth and reproduction of Aspergillusflavus and destroying its cell structure.

黄曲霉(Aspergillus flavus)及其主要次级代谢产物黄曲霉毒素(aflatoxins)是常见的威胁食品及饲料安全、危害人畜生命健康的致病物质。抑制饲料中黄曲霉生长及降低黄曲霉毒素的产生对畜禽健康养殖具有重要意义。目前,常用的物理、化学防治方法在实际生产应用中存在诸多弊端,生物防治因其专一性、环境友好性等原因逐渐兴起,生防菌和抑菌蛋白的筛选鉴定为安全有效的抑制黄曲霉污染以及降低黄曲霉毒素在饲料中的存在提供了新方法。
解淀粉芽孢杆菌(Bacillus amyloliquefaciens)就是生防细菌的重要成员之一,是一种极具发展前景的真菌拮抗菌,其抗菌谱广泛,养分需求简单,且对极端环境有着较强抵抗力[1-2],能抑制黄曲霉的生长、产孢,对黄曲霉产生的毒性代谢产物黄曲霉毒素也有着良好的降解效果[3]。人们普遍认为,生防菌对真菌的这种拮抗作用主要源于其代谢产生的一系列生物活性物质。现有研究表明,解淀粉芽孢杆菌代谢产物中的抗菌活性物质主要包括细菌素、水解酶和由核糖体合成途径产生的抗菌蛋白,以及非核糖体合成途径产生的抗微生物脂肽类物质[4-6]。这些物质通过参与生防菌与植物及病原体之间的相互作用,来体现它们在植物真菌病害防治中具有的重要作用。
本试验室在之前的研究中已经筛选鉴定出1株黄曲霉拮抗菌——解淀粉芽孢杆菌B10,其无菌发酵上清液中的蛋白成分有明显的黄曲霉抑制效果,并据此锁定了多种可能的活性蛋白类物质[7],其中葡聚糖水解酶是早已被证实的具有真菌拮抗作用的活性物质[8],其通过破坏真菌细胞壁中的葡聚糖结构损伤真菌细胞,从而发挥拮抗作用。葡聚糖水解酶具有的高生物降解性、安全无毒性使其在实际生产中被广泛用于病原真菌的拮抗。LCI蛋白家族成员的小分子抗菌肽也存在真菌拮抗相关活性的报道[9],其相较于酶类抗真菌物质分子质量更小、结构更简单、性质也更为稳定,在新药开发及临床应用领域具有更大的优势。
本试验旨在通过克隆表达方法对从解淀粉芽孢杆菌B10中鉴定出的1,3-1,4-β-D-葡聚糖4-葡聚糖水解酶(B10-Glu)及抗菌肽LCI(B10-LCI)进行活性验证,并探究其抗菌作用方式。为采用生物防控技术防控饲料中黄曲霉污染提供了新的思路和理论依据,为进一步防治真菌毒素中毒病及临床生产应用奠定了基础。

1 材料与方法

1.1 菌种来源

解淀粉芽孢杆菌B10由本实验室分离鉴定并保存于中国典型培养物保藏中心(保藏号:CCTCCNO:M2018353);黄曲霉产毒菌株(中国科学院微生物研究所,编号:3.4408);Trans5α Chemically Competent Cell、BL21 Chemically Competent Cell(北京全式金生物技术股份有限公司)

1.2 试验仪器

Ni SepharoseTM 6 Fast Flow(美国Cytiva);凝胶成像仪,PCR仪,蛋白、核酸电泳槽及电泳仪(美国BIO-RAD);高压低温破碎仪(广州聚能纳米生物科技股份有限公司);pH仪(上海雷磁仪器有限公司)。

1.3 试验试剂

细菌DNA快速提取试剂盒、PrimeSTAR Max DNA Polymerase、QuickCutBamH I、QuickCuXho I、T4 DNA Ligase(北京TaKaRa);GeneJET胶回收及质粒提取试剂盒(美国Thermo scientific);PDA培养基、LB液体培养基(北京索莱宝科技有限公司);察氏液体培养基(青岛宾得生物技术有限公司);十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶配制试剂盒(上海雅酶生物科技有限公司);BCA蛋白定量试剂盒(上海翊圣生物科技有限公司)。

1.4 B10-Glu、B10-LCI基因克隆及原核表达

1.4.1 B10-Glu、B10-LCI基因克隆

先将用LB液体培养基新鲜培养到对数生长期的解淀粉芽孢杆菌B10菌液12 000 r/min 离心2 min 弃上清, 通过DNA提取试剂盒提取DNA。 之后分别利用B10-Glu、 B10-LCI引物(B10-Glu,F:5' -CGGGATCCATGTTTTA TCGTATGAAACGAGTGC- 3', R: 5' -CCCTCGAGTTATTTTTTT GTATAGCGCACCCAG- 3'; B10-LCI, F: 5' -CGGGATCCATGAAATTCAAAAAAGTGT TAACCGGT- 3', R: 5' -CCCTCGAGTTATTTATCTACACTTTCATAA ATCCCTACCC-3')扩增目的序列。 反应体系为: PrimeSTAR Max DNA Polymerase(2×)25 μL; B10 DNA 7 μL; 上、下游引物各1 μL; ddH2O 16 μL。 反应程序为:预变性95 ℃ 5 min; 变性98 ℃ 10 s、 退火58 ℃ 5 s、 延伸72 ℃ 1 min, 34个循环; 终延伸72 ℃ 5 min; 4 ℃保存。得到的PCR产物通过120 V、 40 min琼脂糖凝胶(1.2%)电泳进行检测, 初步确定了扩增产物条带位置的正确性后通过胶回收进行纯化。 同时利用质粒提取试剂盒提取质粒pET-28a, 并通过上述方法对其进行电泳检测及产物回收。
之后用BamHI和XhoI快切酶对载体质粒和目的基因进行双酶切处理,体系为:质粒DNA 12.3 μL(<1 μg);2种酶各1 μL;10×QuickCut Buffer 2 μL;ddH2O 3.7 μL。37 ℃反应90 min。得到的酶切片段经纯化后通过T4连接酶按照目的片段∶载体质粒=7∶1的摩尔比计算连接体系,16 ℃连接过夜,构建重组质粒,并通过热激法将其转化到Trans5α感受态细胞中。随后将菌液接种到添加了50 μg/mL卡那霉素的LB固体平板上,37 ℃培养过夜。选取平板上的单菌落,于37 ℃、150 r/min培养4 h并利用特异性引物进行菌液PCR,筛选阳性克隆。之后提取阳性克隆中的重组质粒进行双酶切验证,并设置空质粒不酶切组、空质粒双酶切组和阴性对照组。最后用pET-28a通用测序引物(T7:5'-TAATACGACTCACTATAGGG-3'和T7-TER:5'-GCTAGTTATTGCTCAGCGG-3')对剩余重组质粒进行测序,以确定插入片段的正确性。

1.4.2 B10-Glu、B10-LCI原核表达

表达前先通过Expasy分析工具(网址: https://web.expasy.org/protparam)对目的蛋白的一些生物信息进行了预测。之后从阳性克隆菌中提取重组质粒,用相同方法将其转入BL21(DE3)表达感受态细胞中并进行阳性结果的筛选。将成功导入重组质粒的表达感受态菌液以1%的接菌量接入含有卡那霉素(50 μg/mL)的LB液体培养基中37 ℃、150 r/min培养至对数生长期[吸光度(OD)600=0.6],取部分菌液利用终浓度为1 mmol/L的IPTG诱导重组蛋白表达,并通过考马斯亮蓝染色、脱色处理验证表达情况。成功表达后对B10-Glu、B10-LCI最适诱导表达条件及表达类型进行探究。将剩余菌液分别置于37 ℃、5 h;30 ℃、8 h;25 ℃、12 h;16 ℃、16 h这4种常见诱导条件下进行培养,并以未导入重组质粒的菌液作对照。菌体经由超声细胞破碎仪破碎后,4 ℃、12 000 r/min离心10 min,分别收集破碎上清液与沉淀。加入Protein loading buffer(6×),100 ℃、10 min制备蛋白变性样,并通过SDS-PAGE(12.5%)、考马斯亮蓝染色、脱色处理及Image J软件对目的蛋白条带灰度值进行分析。

1.4.3 B10-Glu、B10-LCI纯化及活性验证

在最适诱导表达条件下大量培养菌株并收集蛋白液,通过亲和层析色谱法对其进行进一步纯化。待B10-Glu、B10-LCI与Ni SepharoseTM 6 Fast Flow填料充分接触结合后,分别用50、100、150、200、300及500 mmol/L咪唑溶液洗脱目的蛋白。在各组洗脱液通过截流量3 ku的浓缩管进行适当超滤浓缩及透析除盐后,通过SDS-PAGE及考马斯亮蓝染色脱色方法确定重组蛋白纯度。
接下来通过平板抑菌试验对纯化前后蛋白液的黄曲霉抑制活性进行验证。含有黄曲霉孢子的PDA平板30 ℃培养8 h后,用打孔器(5 mm)在平板中间打孔并注入100 μL蛋白液,4 ℃预扩散5 h后37 ℃培养过夜,以磷酸盐缓冲液(PBS)及咪唑溶液作对照组,观察黄曲霉生长及抑制情况。

1.5 B10-Glu、B10-LCI MIC的测定

将纯化后的B10-Glu、B10-LCI通过BCA蛋白定量检测,根据OD值(562 mm)计算二者具体浓度。BCA标准曲线回归方程:y=0.761 8x+0.137 1。随后通过上文方法制备含有黄曲霉孢子的PDA平板,将蛋白液用无菌PBS稀释0、2、4、6、8、10倍后取100 μL分别注入打好的孔中。4 ℃预扩散5 h后37 ℃培养过夜。以PBS作对照组,观察黄曲霉生长及抑制情况。

1.6 B10-Glu、B10-LCI作用效果的研究

1.6.1 B10-Glu、B10-LCI对黄曲霉微观形态的影响

取100 μL黄曲霉孢子混悬液(1×10⁶个/mL)接种于10 mL察氏液体培养基,37 ℃、150 r/min培养48 h后加入蛋白液(终浓度不低于MIC)继续培养24 h,以加入等量无菌PBS组作为对照。之后参考卫梦绮[10]的研究中关于扫描电子显微镜(SEM)及透射电子显微镜(TEM)样品的制备方法,分别制片观察黄曲霉形态变化情况。

1.6.2 B10-Glu、B10-LCI对黄曲霉细胞膜通透性的影响

参考1.6.1黄曲霉对照组及蛋白孵育组处理方法制样后离心去除培养液并用PBS洗涤3次,之后取适量菌丝加入1 mL碘化丙啶(PI)染液(10 μg/mL),37 ℃避光静置20 min。PBS冲洗后挑取少量菌丝于载玻片上并滴加抗荧光淬灭剂封片,于荧光显微镜下观察结果。
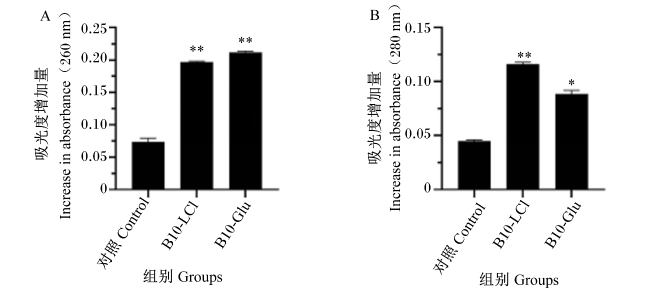
另外分别记录试验组及对照组共孵育前后培养上清液的260、280 nm OD值,据此计算加入B10-Glu、B10-LCI后黄曲霉蛋白与核酸的相对泄露程度(核酸泄露度=OD260-OD260;蛋白泄露度=OD280-OD280)。

1.6.3 B10-Glu、B10-LCI对黄曲霉线粒体膜电位的影响

参考1.6.1黄曲霉对照组及蛋白孵育组处理方法制样后离心去除培养液并用PBS洗涤3次,之后取适量菌丝加入1 mL罗丹明123染液(50 μmol/L),37 ℃避光静置10 min。PBS冲洗后挑取少量菌丝于载玻片上并滴加抗荧光淬灭剂封片,于荧光显微镜下观察结果。

1.6.4 B10-Glu、B10-LCI对黄曲霉胞内活性氧(ROS)含量及过氧化氢酶(CAT)、超氧化物歧化酶(SOD)活性的影响

参考1.6.1黄曲霉对照组及蛋白孵育组处理方法制样后离心去除培养液并用PBS洗涤3次,之后取适量菌丝加入荧光探针DCFH-DA(10 μmol/L),37 ℃避光静置30 min。PBS冲洗后挑取少量菌丝于载玻片上并滴加抗荧光淬灭剂封片,于荧光显微镜下观察结果。
另外取适量菌丝用1 mL提取液重悬后,超声波破碎后4 ℃、8 000×g离心10 min取上清备用。之后分别使用CAT和SOD活性检测试剂盒对黄曲霉细胞内CAT和SOD活性进行检测。

1.7 数据统计分析

试验数据采用SPSS 22.0软件的one-way ANOVA程序进行单因素方差分析,并采用Duncan氏法进行多重比较,P<0.05为差异显著,P<0.01为差异极显著。数据采用平均值±标准误表示。

2 结果与分析

2.1 B10-Glu、B10-LCI克隆结果

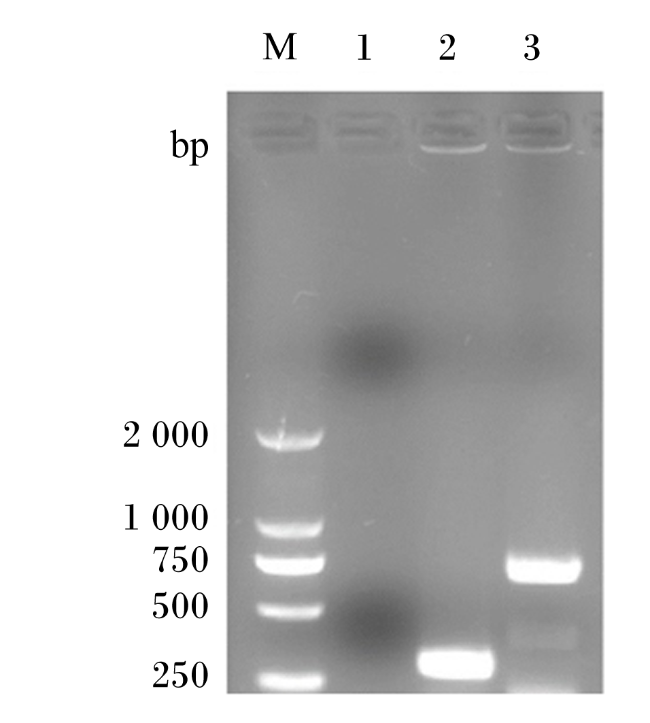
PCR反应扩增目的基因结果显示,在280及740 bp位置分别出现明显的条带,初步判断扩增到目的产物,如图1所示。
图1 基因扩增电泳图

M: DL2000 DNA标记物; 1: 阴性对照; 2: B10-LCI PCR产物; 3: B10-Glu PCR产物。

Fig.1 Electropherograms of gene amplification

M: DL2000 DNA marker; 1: negative control; 2: B10-LCI PCR products; 3: B10-Glu PCR products.

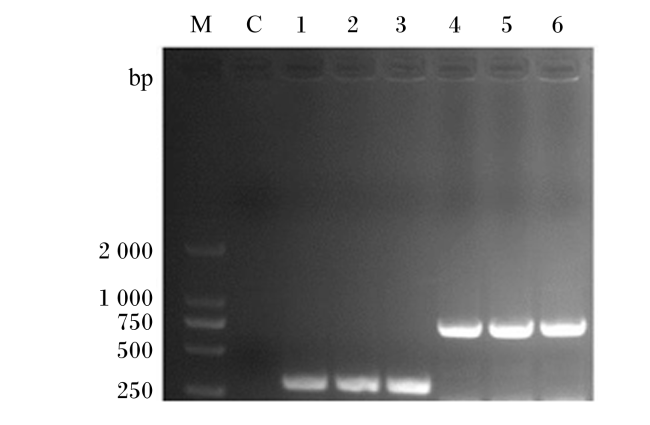
重组载体转化到克隆感受态细胞之后的菌液PCR试验结果显示,在相应碱基数位置B10-Glu、B10-LCI均出现明显条带,如图2所示,即成功筛选到阳性克隆菌落。
图2 菌液PCR筛选阳性克隆

M: DL2000 DNA标记物; C: 阴性对照; 1、2、3: B10-LCI PCR产物; 4、5、6: B10-Glu PCR产物。

Fig.2 Bacterial PCR screening for positive clones

M: DL2000 DNA marker; C: negative control; 1, 2, 3: B10-LCI PCR products; 4, 5, 6: B10-Glu PCR products.

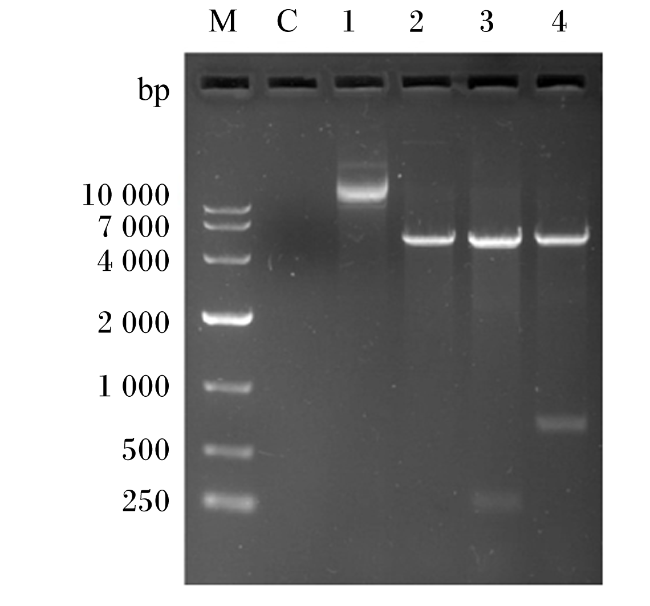
双酶切验证结果如图3所示,重组质粒经双酶切后分别出现上下2条清晰的条带(3、4泳道),靠上的条带均与空质粒双酶切条带位置相符,靠下的条带分别与目的基因条带位置相符,证明原核表达载体构建成功。
图3 重组质粒双酶切验证

M1: DL10000 DNA标志物; C: 阴性对照; 1: 空质粒不酶切; 2:空质粒双酶切; 3: B10-LCI重组质粒双酶切; 4: B10-Glu重组质粒双酶切。

Fig.3 Verification of recombinant plasmid by double-enzyme digestion

M1: DL10000 DNA marker; C: negative control; 1: empty plasmid is not digested; 2: double-enzyme digestion of empty plasmid; 3: double-enzyme digestion of recombinant plasmid B10-LCI; 4: double-enzyme digestion of recombinant plasmid B10-Glu.

重组质粒测序结果经NCBI Blast分析后显示,扩增出的B10-Glu序列与解淀粉芽孢杆菌菌株LS1-002-014s的一种糖苷水解酶家族16蛋白基因序列(GenBank:CP089530.1)相似度达99%。B10-LCI序列与解淀粉芽孢杆菌KHG19的一种未命名蛋白基因序列(GenBank:CP007242.1)相似度达100%。所以,可以确定各组序列的阳性克隆能够表达相应蛋白。

2.2 B10-Glu、B10-LCI表达结果

ProtParam工具分析得到的B10-Glu、B10-LCI序列生物学信息结果如表1所示,二者均为稳定性蛋白(不稳定系数小于40),并得到了各蛋白预计分子质量、预计等电点、亲水性总平均值及预计半衰期等生物学信息。
表1 B10-Glu、B10-LCI分析结果

Table 1 B10-Glu, B10-LCI analysis results

目的蛋白名称
Names of target
proteins
预计分子质量
Expected
molecular
weight/ku
预计等电点
Expected
isoelectric
point
不稳定系数
Instability
coefficient
脂肪族指数
Aliphatic
index
亲水性总平均值
Hydrophilicity
total average
value
预计半衰期
Expected half-life
抗菌肽LCI
B10-LCI
9 900.34 9.44 24.80 81.17 0.081 体外哺乳动物
网织红细胞:30 h
酵母菌:>20 h
大肠杆菌:>10 h
1,3-1,4-β-D-葡聚糖
4-葡聚糖水解酶
B10-Glu
27 402.67 6.89 17.01 60.62 -0.430
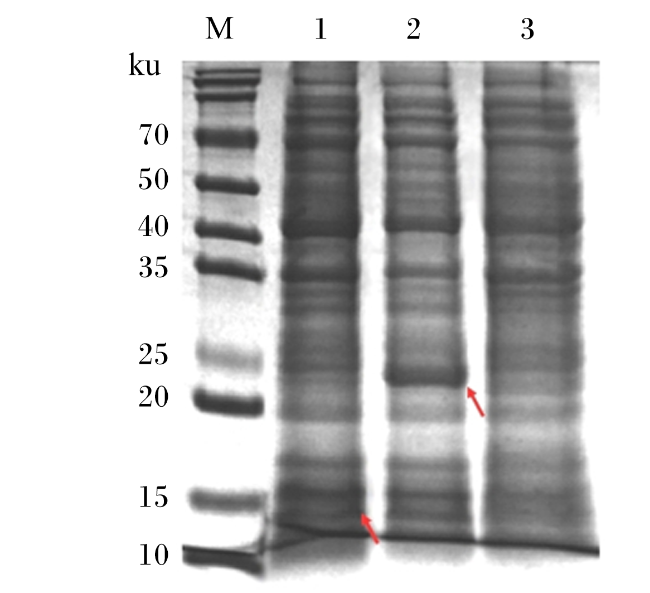
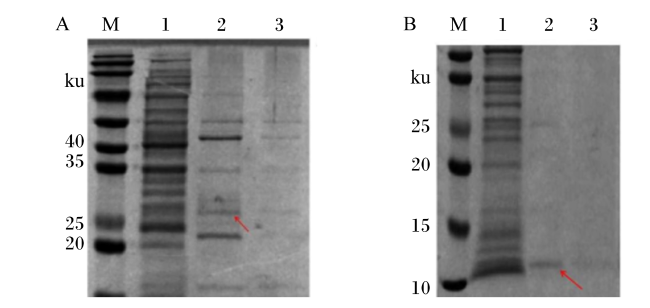
B10-Glu、B10-LCI诱导表达结果如图4所示。B10-LCI组在12 ku左右处观察到明显条带,B10-Glu组在25 ku左右处观察到明显条带,可以看出二者分子质量大小皆与预测结果较为相近。
图4 诱导表达结果

M: 蛋白标志物; 1: B10-LCI诱导表达; 2: B10-Glu诱导表达; 3: 对照组。

Fig.4 Induced expression results

M: protein marker; 1: B10-LCI induced expression; 2: B10-Glu induced expression; 3: control group.

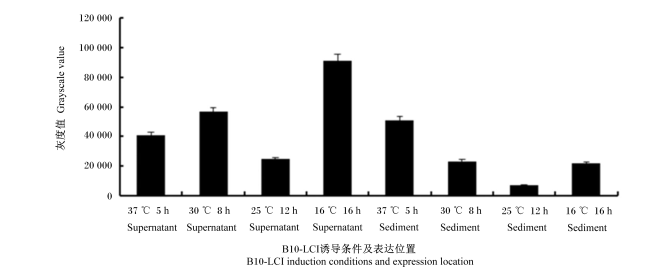
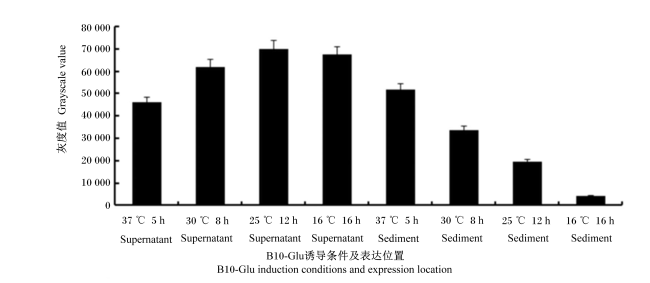
图5图6展示了B10-LCI和B10-Glu最适诱导表达条件及表达位置结果,可以看出二者的最大灰度值分别出现在16 ℃诱导16 h的破碎上清液组和25 ℃诱导12 h的破碎上清液组,所以判断B10-LCI最佳诱导条件为16 ℃诱导16 h,B10-Glu为25 ℃诱导12 h。二者在细胞破碎上清液中大量表达,主要以可溶性蛋白形式出现。
图5 B10-LCI诱导表达条件及表达位置分析

Supernatant:上清液;Sediment: 沉积物。图6同 the same as Fig.6

Fig.5 Analysis of induced expression conditions and expression positions of B10-LCI

图6 B10-Glu诱导表达条件及表达位置分析

Fig.6 Analysis of induced expression conditions and expression positions of B10-Glu

2.3 B10-Glu、B10-LCI纯化及抑菌效果

B10-Glu和B10-LCI亲和层析纯化结果如图7所示,经200 mmol/L以上浓度的咪唑纯化后,SDS-PAGE检测显示去除了绝大部分杂带。
图7 B10-Glu、B10-LCI纯化结果

M: 蛋白标志物; 1: B10-Glu未纯化组; 2: B10-Glu 200 mmol/L咪唑纯化组; 3: B10-Glu 300 mmol/L咪唑纯化组。

Fig.7 Purification results of B10-Glu and B10-LCI

M: protein marker; 1: B10-Glu unpurified group; 2: B10-Glu 200 mmol/L imidazole purification group; 3: B10-Glu 300 mmol/L imidazole purification group.

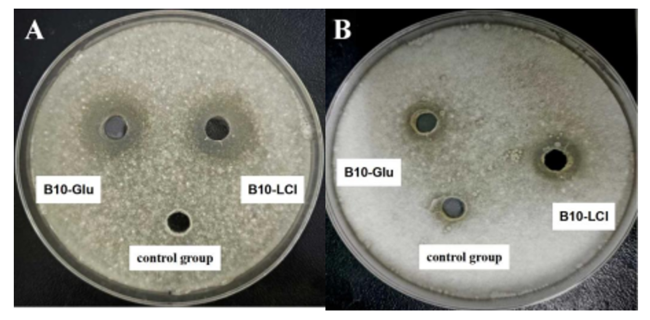
B10-Glu、B10-LCI抑菌活性验证试验结果如图8所示,二者对黄曲霉均具有抑制效果。未纯化组抑菌圈较大但边缘不清晰,圈内也有少量黄曲霉生长。B10-Glu、B10-LCI纯化组抑菌圈边缘清晰,分界明显且内部几乎无黄曲霉菌生长,抑菌圈半径分别为1.14及1.17 cm,抑菌效果更佳。
图8 B10-Glu、B10-LCI蛋白抑菌活性验证结果

A: B10-Glu未纯化组; B: B10-Glu纯化组;C: B10-LCI未纯化组; D: B10-LCI纯化组。

Fig.8 Validation results of bacteriostatic activity of B10-Glu and B10-LCI proteins

A: B10-Glu unpurified group; B: B10-Glu purification group; C: B10-LCI unpurified group; D: B10-LCI purification group.

2.4 B10-Glu、B10-LCI MIC测定结果

通过BCA方法测得的B10-Glu、B10-LCI具体浓度分别为1.87及1.92 μg/mL。MIC结果显示,存在抑菌效果的组分中最大稀释倍数为2倍,抑菌圈半径分别为0.41及0.48 cm,如图9所示。所以,B10-Glu和B10-LCI MIC分别为0.94及0.96 μg/mL。
图9 B10-Glu、B10-LCI MIC结果

A: B10-Glu、B10-LCI未稀释组抑菌图; B: B10-Glu、10-LCI稀释2倍组抑菌图。

Fig.9 B10-Glu and B10-LCI MIC results

A: bacteriostatic diagram of B10-Glu, B10-LCI undiluted group; B: bacteriostatic diagram of B10-Glu, B10-LCI diluted twice group.

2.5 B10-Glu、B10-LCI抑菌作用效果分析

2.5.1 黄曲霉微观形态变化结果
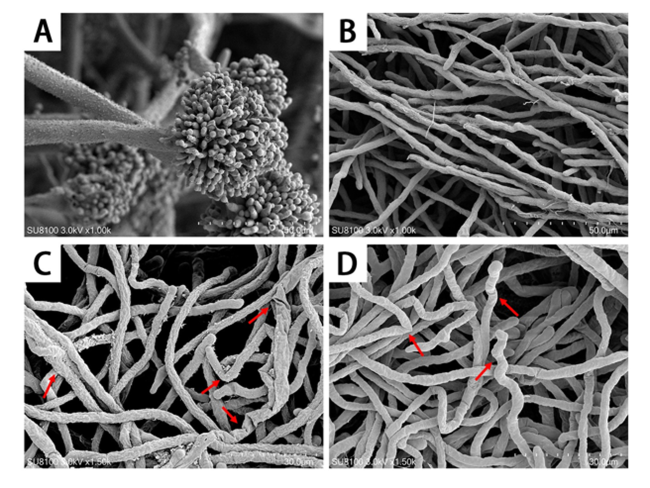
SEM结果如图10所示,对照组黄曲霉孢子发育正常,形态饱满清晰;菌丝排列整齐,表面有刺突状凸起,形态饱满圆润,笔直且粗细均匀。B10-Glu、B10-LCI组视野中无明显产孢孢子头存在;菌丝相互缠绕且扭曲变形,存在不规则褶皱及凹陷情况。且B10-Glu组相较于B10-LCI组,菌丝体干瘪褶皱、折叠形变情况更为明显。
图10 SEM结果

A: 对照组孢子形态; B: 对照组菌丝形态; C: B10-Glu组菌丝形态; D: B10-LCI组菌丝形态。

Fig.10 SEM results

A: spore morphology in control group; B: mycelial morphology in the control group; C: mycelial morphology in B10-Glu group; D: mycelial morphology in B10-LCI group.

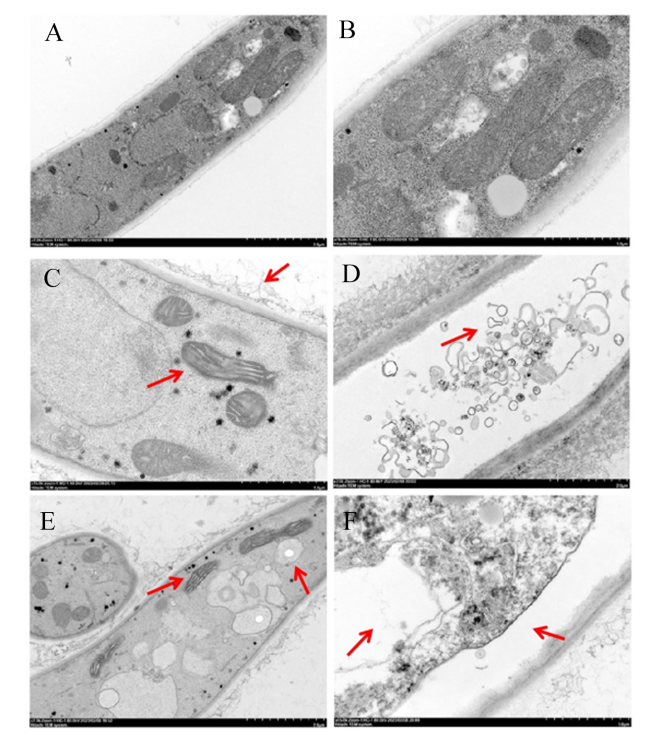
TEM结果如图11所示,对照组黄曲霉菌丝细胞形态健康,细胞壁、细胞膜等膜结构边缘清晰完整;细胞基质均匀,颜色较深;细胞器分布均匀且形态正常、结构完整。B10-Glu、B10-LCI组菌毛杂乱脱落,质膜形成大量囊泡。细胞基质流失、颜色变浅,出现壁膜分离现象。另外,胞内液泡变大出现明显空洞,一些细胞器消失且结构混乱、排列无序。这一现象在B10-LCI组最为明显,部分细胞的胞内结构几乎完全消失。除此之外,线粒体在蛋白处理后发生明显损伤,其边界模糊、嵴增宽,结构不完整且颜色加深。
图11 TEM结果

A、B: 对照组菌丝细胞形态; C、D: B10-LCI组菌丝细胞形态; E、F: B10-Glu组菌丝细胞形态。

Fig.11 TEM results

A, B: mycelial cell morphology in the control group; C, D: mycelial cell morphology in B10-LCI group; E, F: mycelial cell morphology in B10-Glu group.

2.5.2 黄曲霉细胞膜通透性变化结果

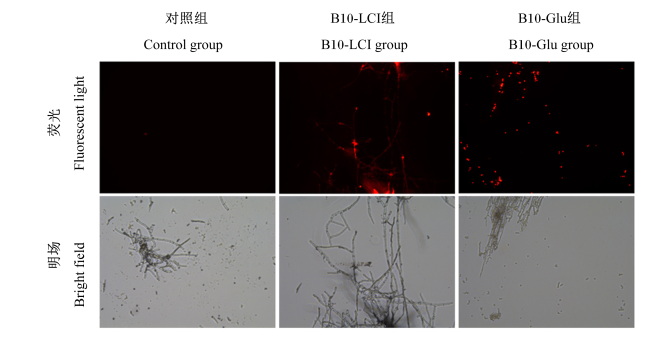
黄曲霉PI染色结果如图12所示,B10-Glu、B10-LCI组相较于对照组,菌丝及孢子均出现较强红色荧光,说明B10-Glu、B10-LCI能够改变黄曲霉细胞膜通透性。
图12 PI染色结果

Fig.12 PI staining results

黄曲霉核酸和蛋白泄露情况如图13所示,与对照组相比,B10-Glu和B10-LCI组能够显著上调黄曲霉细胞内核酸及蛋白泄露程度。B10-Glu造成的核酸泄露程度高于B10-LCI,且极显著高于对照组(P<0.01),在260 nm处吸光度增加量约为对照组的2.9倍。B10-LCI造成的蛋白泄露程度极显著高于对照组(P<0.01),在280 nm处吸光度增加量约为对照组的2.6倍,B10-Glu造成的蛋白泄露程度显著高于对照组(P<0.05)。
图13 黄曲霉内容物泄露结果

A: 黄曲霉核酸泄露情况; B: 黄曲霉蛋白泄露情况。“*”表示试验组与对照组相比有显著差异(P<0.05), “**”表示试验组与对照组相比有极显著差异(P<0.01)。

Fig.13 Leakage results of Aspergillusflavus content

A: Aspergillusflavus nucleic acid leakage situation; B: Aspergillusflavus protein leakage situation. “*” indicates a signigicant difference between the experimental group and the control group (P<0.05),“**” indicates a significant difference between the experimental group and the control group (P<0.01).

2.5.3 黄曲霉线粒体膜电位变化结果

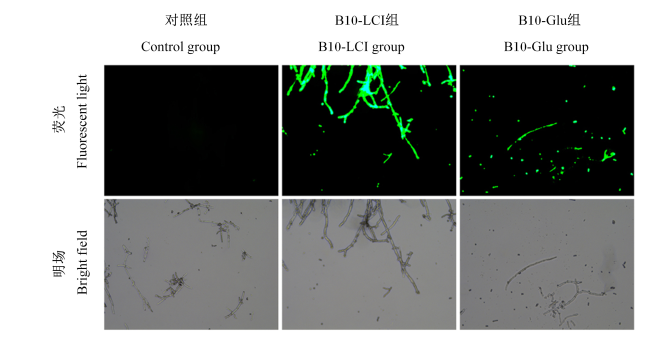
罗丹明123染色结果如图14所示,与对照组相比,B10-Glu和B10-LCI组的黄曲霉菌体可见大量绿色荧光,表明黄曲霉胞内线粒体膜电位下降,线粒体出现损伤。
图14 罗丹明123染色结果

Fig.14 Rhodamine 123 staining results

2.5.4 黄曲霉胞内ROS含量及CAT、SOD活性变化结果

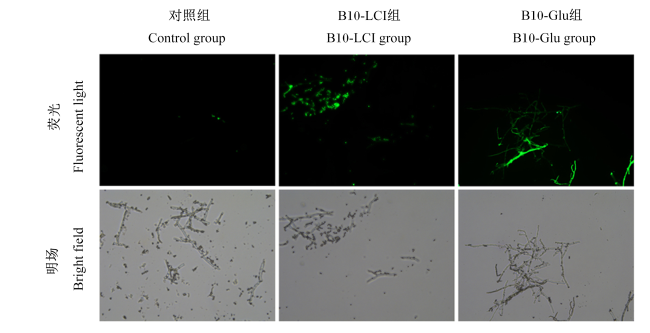
荧光探针DCFH-DA染色结果如图15所示,与对照组相比,B10-Glu和B10-LCI组的黄曲霉菌体出现大量绿色荧光,说明黄曲霉胞内ROS含量上升,菌体产生氧化损伤。
图15 荧光探针DCFH-DA染色结果

Fig.15 Fluorescent probe DCFH-DA staining results

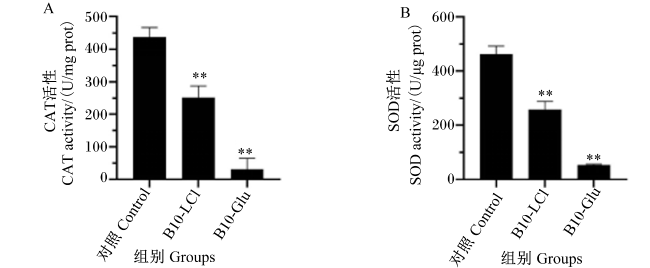
根据CAT和SOD催化底物反应效率测算二者活性试验结果如图16所示,与对照组相比,黄曲霉B10-Glu和B10-LCI组CAT和SOD活性均发生极显著下降(P<0.01)。CAT活性分别降低至31.667和252.035 U/mg prot,与对照组相比,分别下降了92.75%和42.28%;SOD活性分别降低至53.799和258.853 U/μg prot,与对照组相比,分别下降了88.38%和44.10%。这表明B10-Glu和B10-LCI会对黄曲霉菌抗氧化系统产生严重影响。
图16 黄曲霉CAT和SOD活性结果

A: 黄曲霉CAT活性; B: 黄曲霉SOD活性。“**”表示试验组与对照组相比有极显著差异(P<0.01)。

Fig.16 Results of CAT and SOD activities of Aspergillusflavus

A: CAT activity of Aspergillusflavus; B: SOD activity of Aspergillusflavus. “**” indicates a significant difference between the experimental group and the control group (P<0.01).

3 讨论

通过分子克隆及测序鉴定,我们得到了与数据库中基因序列高度匹配的B10-Glu、B10-LCI基因序列。根据其注释名称并非为准确的目的蛋白名称,而是仅注释了此蛋白所属的家族类别或仅将其初步认定为一种蛋白类物质,我们推测这2种活性蛋白较少被人研究。
此外,Expasy分析工具预测出的蛋白数据提供了一些B10-Glu、B10-LCI的基本信息。二者蛋白序列的N端氨基酸均为蛋氨酸,具有相对较高的稳定性,相同的半衰期或许是因为它们均产自于原核生物。此外B10-Glu具亲水性,为亲水性蛋白。B10-LCI脂肪族指数较高,代表其具有较好的热稳定性质。等电点也是十分重要的生物学数据,但因其是基于蛋白序列进行预测,没有考虑蛋白高级结构的影响,所以相较真实值会有一定差异。另外B10-Glu和B10-LCI诱导表达后,表观分子质量分别约为25和12 ku。Zhang等[11]从小麦籽粒中分离得到的具有黄曲霉抑制特性的β-1,3-葡聚糖酶分子质量约为33 ku;研究表明,分离得到的β-1,3-葡聚糖酶表观分子质量约为35 ku[12-13]。这与B10-Glu均存在较大差异,说明B10-Glu可能是一种具有黄曲霉抑制效果的新型β-1,3-葡聚糖酶。Wang等[9]从解淀粉芽孢杆菌FS6中纯化出的青枯菌抑菌蛋白APC2(LCI家族)分子质量小于10 ku;张宝[14]从解淀粉芽孢杆菌K103中分离出的立枯丝核菌杆菌肽分子质量约为10 ku,这与B10-LCI较为接近,侧面说明B10-LCI可能为一种霉菌杆菌肽。
之后在证实了B10-Glu和B10-LCI对黄曲霉的抑菌活性后,测定了二者的MIC分别为0.94及0.96 μg/mL。这一结果与张伟绩[15]得到的葡聚糖酶的黄曲霉抑制活性高了近110倍;与秦楠等[16]分离得到的抗菌肽对黄曲霉的MIC高了近57倍,体现了二者优越的黄曲霉抑制活性。
在对B10-Glu、B10-LCI作用效果的研究中,我们发现二者能明显改变黄曲霉菌丝形态,破坏细胞内部结构并抑制其正常生长繁殖过程。这与前人研究的结果[17-19]一致。细胞膜通透性的提高增强了细胞内容物的泄漏,朱晓嫚[20]的研究也得到了类似结果,这可能源于抑菌成分和细胞膜之间的相互作用。另外,线粒体是细胞维持生命活动的重要结构单位,其异常变化会给细胞的呼吸状态、能量代谢及正常生理功能带来严重影响,甚至导致细胞凋亡。很多天然产物、抑菌蛋白和抗菌肽等就通过破坏线粒体膜,抑制线粒体酶、线粒体氧化磷酸化及氧化还原平衡来影响线粒体功能[17-21]。本试验证实B10-Glu、B10-LCI通过破坏渗透平衡导致钙和质子泄漏,从而改变电化学势导致线粒体功能紊乱,进而影响黄曲霉细胞内氧化应激状态及ROS含量,引发氧化损伤,有研究也证实了ROS积累与黄曲霉生长抑制间的关系[22-23]。本试验中ROS积累也使得黄曲霉对抗氧化酶类(CAT、SOD)产生毒性作用,导致抗氧化酶活性下降,进一步引起ROS大量积累,从而抑制黄曲霉生长并可能导致细胞凋亡。

4 结论

从解淀粉芽孢杆菌B10中克隆表达出的B10-Glu及B10-LCI具有良好的黄曲霉抑制活性,其抑菌机制是能够抑制黄曲霉孢子形成,破坏其菌丝形态及细胞内部结构,促进ROS积累并影响其抗氧化水平。
[1]
HO T H, CHUANG C Y, ZHENG J L, et al. Bacillus amyloliquefaciens strain PMB05 intensifies plant immune responses to confer resistance against bacterial wilt of tomato[J]. Phytopathology, 2020, 110(12):1877-1885.

DOI

[2]
SAMARAS A, HADJIPETROU C, KARAOGLANIDIS G. Bacillus amyloliquefaciens strain QST713 may contribute to the management of SDHI resistance in Botrytis cinerea[J]. Pest Management Science, 2021, 77(3):1316-1327.

DOI

[3]
SIAHMOSHTEH F, SICILIANO I, BANANI H, et al. Efficacy of Bacillus subtilis and Bacillus amyloliquefaciens in the control of aspergillus parasiticus growth and aflatoxins production on pistachio[J]. International Journal of Food Microbiology, 2017, 254:47-53.

DOI

[4]
CHEN K, TIAN Z H, LUO Y, et al. Antagonistic activity and the mechanism of Bacillus amyloliquefaciens DH-4 against citrus green mold[J]. Phytopathology, 2018, 108(11):1253-1262.

DOI

[5]
LIN L Z, ZHENG Q W, WEI T, et al. Isolation and characterization of fengycins produced by Bacillus amyloliquefaciens JFL21 and its broad-spectrum antimicrobial potential against multidrug-resistant foodborne pathogens[J]. Frontiers in Microbiology, 2020, 11:579621.

DOI

[6]
PANG Y A, YANG J J, CHEN X Y, et al. An antifungal chitosanase from Bacillus subtilis SH21[J]. Molecules, 2021, 26(7):1863.

DOI

[7]
李天溪, 党萌, 龙淼. 1株黄曲霉颉颃菌的鉴定及其抑菌活性成分分析[J]. 中国畜牧兽医, 2022, 49(5):1828-1839.

DOI

LI T X, DANG M, LONG M. Identification of an antagonistic strain of Aspergillus flavus and preliminary analysis of its antibacterial components[J]. China Animal Husbandry & Veterinary Medicine, 2022, 49(5):1828-1839. (in Chinese)

[8]
孙紫文, 孟玉洁, 杨玉青, 等. 芽孢杆菌发酵液的抑菌活性及葡聚糖酶的基因克隆、表达分析[J]. 食品工业科技, 2023, 44(8):144-152.

SUN Z W, MENG Y J, YANG Y Q, et al. Antifungal activity of bacillus fermentation broth,and gene cloning,prokaryotic expression of endoglucanase[J]. Science and Technology of Food Industry, 2023, 44(8):144-152. (in Chinese)

[9]
WANG R, LIANG X, LONG Z, et al. An LCI-like protein APC2 protects ginseng root from Fusarium solani infection[J]. Journal of Applied Microbiology, 2021, 130(1):165-178.

DOI

[10]
卫梦绮. 枯茗醛对黄曲霉生长的抑制作用及机理初探[D]. 硕士学位论文. 西安: 陕西科技大学, 2019.

WEI M Q. The inhibitory activity and preliminary mechanism of cuminaldehyde on the growth of Aspergillus flavus[D]. Master’s Thesis. Xi’an: Shaanxi University of Science & Technology, 2019. (in Chinese)

[11]
ZHANG S B, ZHANG W J, ZHAI H C, et al. Expression of a wheat β-1,3-glucanase in Pichia pastoris and its inhibitory effect on fungi commonly associated with wheat kernel[J]. Protein Expression and Purification, 2019, 154:134-139.

DOI

[12]
JI Z L, PENG S, CHEN L L, et al. Identification and characterization of a serine protease from Bacillus licheniformis W10:a potential antifungal agent[J]. International Journal of Biological Macromolecules, 2020, 145:594-603.

DOI

[13]
ZHAO M, LIU D M, LIANG Z H, et al. Antagonistic activity of Bacillus subtilis CW14 and its β-glucanase against Aspergillus ochraceus[J]. Food Control, 2022, 131:108475.

DOI

[14]
张宝. 解淀粉芽孢杆菌抗菌脂肽bacillomycin L的纯化鉴定及抑菌机理研究[D]. 博士学位论文. 北京: 中国农业大学, 2014.

ZHANG B. Purification,identification and machanism of action of lipopeptide antibiotic bacillomycin L produced by Bacillus amyloliquefaciens[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2014. (in Chinese)

[15]
张伟绩. 小麦中真菌细胞壁水解酶的表达及其对黄曲霉生长及产毒的影响[D]. 硕士学位论文. 郑州: 河南工业大学, 2020.

ZHANG W J. Expression of wheat fungal cell wall hydrolase and its effect on the growth as well as toxin production of Aspergillus flavus[D]. Master’s Thesis. Zhengzhou: Henan University of Technology, 2020. (in Chinese)

[16]
秦楠, 杨金梅, 梁莹支, 等. 解淀粉芽孢杆菌HRH317菌株抗菌肽发酵条件优化及其抑菌活性研究[J]. 食品安全质量检测学报, 2021, 12(15):6169-6176.

QIN N, YANG J M, LIANG Y Z, et al. Optimization of fermentation conditions and antibacterial activity of antimicrobial peptides from Bacillus amylolytica HRH317 strain[J]. Journal of Food Safety & Quality, 2021, 12(15):6169-6176. (in Chinese)

[17]
张威. 抗菌肽Sub3及其融合蛋白Sub3_AflR抗黄曲霉作用研究[D]. 硕士学位论文. 郑州: 河南工业大学, 2021.

ZHANG W. Inhibition effect of antimicrobial peptide Sub3 and its fusion protein Sub3_AflR on Aspergillus flavus[D]. Master’s Thesis. Zhengzhou: Henan University of Technology, 2021. (in Chinese)

[18]
XU W T, WEI L, QU W, et al. A novel antifungal peptide from foxtail millet seeds[J]. Journal of the Science of Food and Agriculture, 2011, 91(9):1630-1637.

DOI PMID

[19]
彭兵, 张树斌, 贾宇, 等. 枯草芽孢杆菌菌株A抗菌蛋白的分离纯化及抗真菌机理[J]. 中国农业科学, 2011, 44(1):67-74.

PENG B, ZHANG S B, JIA Y, et al. Purification and antifungal mechanism of a kind of antifungal protein from strain a of Bacillus subtilis[J]. Scientia Agricultura Sinica, 2011, 44(1):67-74. (in Chinese)

[20]
朱晓嫚. 邻香兰素抑制黄曲霉作用研究[D]. 硕士学位论文. 郑州: 河南工业大学, 2021.

ZHU X M. Study on inhibitory effect of o-vanillin against Aspergillus flavus[D]. Master’s Thesis. Zhengzhou: Henan University of Technology, 2021. (in Chinese)

[21]
TIAN F, WOO S Y, LEE S Y, et al. Antifungal activity of essential oil and plant-derived natural compounds against Aspergillus flavus[J]. Antibiotics, 2022, 11(12):1727.

DOI

[22]
李生发. 己醛和庚醛对黄曲霉生长抑制作用研究[D]. 硕士学位论文. 郑州: 河南工业大学, 2022.

LI S F. Study on the growth inhibition of Aspergillus flavus by hexanal and heptanal[D]. Master’s Thesis. Zhengzhou: Henan University of Technology, 2022. (in Chinese)

[23]
胡振阳. 紫苏精油对黄曲霉抑制作用与机理研究[D]. 南京: 南京财经大学, 2021.

HU Z Y. Inhibitory effect and mechanism of Perilla frutescens essential oil on Aspergillus flavus[D]. Nanjing: Nanjing University of Finance & Economics, 2021. (in Chinese)

文章导航

/