

1 材料与方法
1.1 辣木叶水溶性活性成分筛选及潜在作用靶点的获取
1.2 辣木叶治疗肠炎作用靶点网络构建
1.3 蛋白质互作(PPI)网络构建
1.4 基因本体(GO)功能富集分析和京都基因与基因组百科全书(KEGG)信号通路富集分析
1.5 活性成分与治疗肠炎关键靶点的分子对接
2 结果
2.1 辣木叶水溶性活性成分筛选
表1 辣木叶水溶性活性成分Table 1 Water-soluble active components of Moringa oleifera leaves |
| 类别 Categories | 编号 ID | 中文名 Chinese name | 英文名 English name | 水溶性 Water solubility | 规范化简化分子 线性输入规范 Canonical SMILES |
|---|---|---|---|---|---|
| 苯丙素 Phenylpropanoids | LM01 | 咖啡酸 | caffeic acid | √ | C1=CC(=C(C=C1C=CC(=O)O)O)O |
| LM02 | 邻香豆酸 | o-coumaric acid | √ | C1=CC=C(C(=C1)C=CC(=O)O)O | |
| LM03 | 对香豆酸 | p-coumaric acid | √ | C1=CC(=CC=C1C=CC(=O)O)O | |
| LM04 | 阿魏酸 | ferulic acid | √ | COC1=C(C=CC(=C1)C=CC(=O)O)O | |
| LM05 | 异阿魏酸 | iso-ferulic acid | √ | COC1=C(C=C(C=C1)C=CC(=O)O)O | |
| LM06 | 3,4,5-甲氧 基肉桂酸 | 3,4,5-methoxy- cinnamic acid | √ | COC1=CC(=CC(=C1OC)OC)/ C=C/C(=O)O | |
| LM07 | 芥子酸 | sinapic acid | √ | COC1=CC(=CC(=C1O)OC)C= CC(=O)O | |
| LM08 | 肉桂酸 | cinnamic acid | √ | C1=CC=C(C=C1)C=CC(=O)O | |
| LM09 | 香豆素 | coumarin | √ | C1=CC=C2C(=C1)C=CC(=O)O2 | |
| 黄酮 Flavones | LM10 | 山柰酚 | kaempferol | √ | C1=CC(=CC=C1C2=C(C(=O)C3= C(C=C(C=C3O2)O)O)O)O |
| LM11 | 槲皮素 | quercetin | √ | C1=CC(=C(C=C1C2=C(C(=O)C3= C(C=C(C=C3O2)O)O)O)O)O | |
| LM12 | 柚皮素 | naringenin | √ | C1C(OC2=CC(=CC(=C2C1=O)O)O) C3=CC=C(C=C3)O | |
| 生物碱 Alkaloids | LM13 | 辣木碱 | moringine | √ | C1=CC=C(C=C1)CN |
| LM14 | niazimin A | √ | CCOC(=O)NCC1=CC=C(C=C1) OC2C(C(C(C(O2)C)OC(=O)C)O)O | ||
| 维生素 Vitamins | LM15 | 维生素B3 | vitamin B3 | √ | C1=CC(=CN=C1)C(=O)N |
| LM16 | 维生素C | vitamin C | √ | C([C@@H]([C@@H]1C(=C(C(= O)O1)O)O)O)O | |
| LM17 | 维生素H | vitamin H | √ | C1[C@H]2[C@@H]([C@@H] (S1)CCCCC(=O)O)NC(=O)N2 | |
| 酚及酚酸 Phenols and phenolic acids | LM18 | 鞣花酸 | ellagic acid | √ | C1=C2C3=C(C(=C1O)O)OC(=O)C4= CC(=C(C(=C43)OC2=O)O)O |
| LM19 | 没食子酸 | gallic acid | √ | C1=C(C=C(C(=C1O)O)O)C(=O)O | |
| LM20 | 龙胆酸 | gentistic acid | √ | C1=CC(=C(C=C1O)C(=O)O)O | |
| LM21 | 香草酸 | vanillic acid | √ | COC1=C(C=CC(=C1)C(=O)O)O | |
| LM22 | 原儿茶酸 | protocatechuic acid | √ | C1=CC(=C(C=C1C(=O)O)O)O | |
| LM23 | 对羟基 苯甲酸 | p-hydroxybenzoic acid | √ | C1=CC(=CC=C1C(=O)O)O | |
| LM24 | 丁香酸 | syringic acid | √ | COC1=CC(=CC(=C1O)OC)C(=O)O | |
| LM25 | 邻苯三酚 | pyrogallol | √ | C1=CC(=C(C(=C1)O)O)O | |
| LM26 | 邻苯二酚 | catechol | √ | C1=CC=C(C(=C1)O)O | |
| LM27 | 香草醛 | vanillin | √ | COC1=C(C=CC(=C1)C=O)O | |
| 异硫氰酸酯 Isothiocyanates | LM28 | 异硫氰酸苄酯 | benzyl isothiocyanate | √ | C1=CC=C(C=C1)CN=C=S |
| LM29 | 萝卜硫素 | sulforaphane | √ | CS(=O)CCCCN=C=S | |
| 脂肪酸 Fatty acids | LM30 | 邻苯二甲酸 二乙酯 | diethyl phthalate | √ | CCOC(=O)C1=CC=CC= C1C(=O)OCC |
| LM31 | 丙二酸二甲酯 | dimethyl malonate | √ | C(C(=O)O)C(=O)O |
2.2 辣木叶水溶性活性成分与肠炎相关靶点的获取
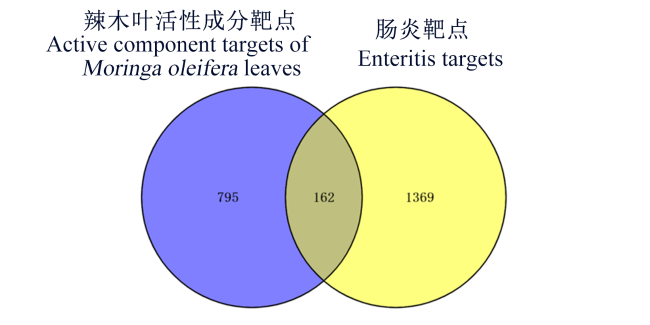
图1 辣木叶活性成分靶点与肠炎靶点韦恩图Fig.1 Venn diagram of active component targets of Moringa oleifera leaves and enteritis targets |
表2 辣木叶活性成分对应肠炎相关交集靶点Table 2 Active components of Moringa oleifera leaves correspond to intersectional targets associated with enteritis |
| 成分 Components | 靶点 Targets | 靶点全称Full names of targets | |
|---|---|---|---|
| 英文English | 中文Chinese | ||
| LM01/04/05/06/07/10/17/18 | PTGS2 | prostaglandin endoperoxide synthase 2 | 前列腺素内过氧化物合成酶2 |
| LM01/02/03/04/05/06/07/08/14/21 | MMP1 | matrix metalloproteinase 1 | 基质金属蛋白酶1 |
| LM01/04/05/06/07/12/17 | PTGS1 | prostaglandin endoperoxide synthase 1 | 前列腺素内过氧化物合成酶1 |
| LM01/04/05/06/07/10/11/12/14/28 | APP | amyloid beta precursor protein | 淀粉样β前提蛋白 |
| LM01/02/03/04/05/06/07/08/10/11/18 | ALOX5 | arachidonate-5-lipoxygenase | 花生四烯酸-5-脂氧合酶 |
| LM01/04/05/06/07/10/11/14 | ABCB1 | ATP binding cassette subfamily | ATP结合盒亚家族B成员1 |
| B member 1 | |||
| LM01/02/03/04/05/06/07/08/10/11/12/14/21 | MMP2 | matrix metalloproteinase 2 | 基质金属蛋白酶2 |
| LM01/04/06/07/08/10/11/28 | AHR | aryl hydrocarbon receptor | 芳香烃受体 |
| LM01/02/03/04/05/06/07/08 | TLR4 | Toll-like receptor 4 | Toll样受体4 |
| LM01/04/06/07 | CYP1A1 | cytochrome P450 family 1 | 细胞色素P450家族1亚家族A成员1 |
| subfamily A member 1 | |||
| LM01/04/06/07/28 | CYP1A2 | cytochrome P450 family 1 | 细胞色素P450家族1亚家族A成员2 |
| subfamily A member 2 | |||
| LM01/04/06/07/10/11/12 | CYP1B1 | cytochrome P450 family 1 | 细胞色素P450家族1亚家族B成员1 |
| subfamily B member 1 | |||
| LM01/02/03/04/05/06/07/08/10/11/12/14/21 | MMP9 | matrix metalloproteinase 9 | 基质金属蛋白酶9 |
| LM01/04/06/07 | NFE2L2 | nuclear factor erythroid | 核因子红系2相关因子2 |
| 2-related factor 2 | |||
| LM01/04/06/07/28 | STAT3 | signal transducer and activator of | 信号转导与转录激活因子3 |
| transcription 3 | |||
| LM01/06/31 | HMGCR | hydroxymethylglutaryl-CoA reductase | 羟甲基戊二酸单酰辅酶A还原酶 |
| LM01/04/06/07/10/11/12/14/18 | MET | MET proto-oncogene, receptor | MET原癌基因受体酪氨酸激酶 |
| tyrosine kinase | |||
| LM01/06 | GSTP1 | glutathione S-transferase Pi 1 | 谷胱甘肽巯基转移酶Pi 1 |
| LM01/06/17/24 | PTGDR2 | prostaglandin D2 receptor 2 | 前列腺素D2受体2 |
| LM01/04/06/07/10/11/17/19/21/22/24/27 | TTR | transthyretin | 甲状腺素运载蛋白 |
| LM01/06/07/10/11/12/28 | CYP19A1 | cytochrome P450 family 19 | 细胞色素P450家族19 |
| subfamily A member 1 | 亚家族A成员1 | ||
| LM01/04/06/08 | SLC16A1 | solute carrier family 16 member 1 | 溶质载体家族16成员1 |
| LM01/04/06/07 | ACE | angiotensin converting enzyme | 血管紧张素转化酶 |
| LM01/05/06/07 | MME | membrane metalloendopeptidase | 膜金属肽链内切酶 |
| LM01/06/07/14/17 | ECE1 | endothelin converting enzyme 1 | 内皮素转化酶1 |
| LM01/02/03/04/05/06/07/08/10/11/12/14/18/19/22/23 | ESR2 | estrogen receptor 2 | 雌激素受体2 |
| LM01/06/17 | ITGB1 | integrin subunit beta 1 | 整合素亚基β1 |
| LM01/04/05/06/07/08/09/10/11/14/17/18/25/26 | EGFR | epidermal growth factor receptor | 表皮生长因子受体 |
| LM01/06 | CDK8 | cyclin dependent kinase 8 | 细胞周期蛋白依赖性激酶8 |
| LM01/04/05/06/07 | RELA | RELA proto-oncogene, | RELA原癌基因核因子-κB亚基 |
| NF-κB subunit | |||
| LM01/03/06/07/10/12/18 | ESR1 | estrogen receptor 1 | 雌激素受体1 |
| LM01/06/17 | CREBBP | CREB binding protein | CREB结合蛋白 |
| LM01/06/17 | ACE2 | angiotensin converting enzyme 2 | 血管紧张素转化酶2 |
| LM01/06/17 | CXCL8 | C-X-C motif chemokine ligand 8 | C-X-C基序趋化因子配体8 |
| LM01/04/05/06/10/11/13/15/17/28 | PARP1 | poly (ADP-ribose) polymerase 1 | 聚ADP核糖聚合酶1 |
| LM01/06/14/17 | CXCR2 | C-X-C motif chemokine receptor 2 | C-X-C基序趋化因子受体2 |
| LM01/23 | HDAC8 | histone deacetylase 8 | 组蛋白去乙酰化酶8 |
| LM01/02/03/17/28/29/30 | MIF | macrophage migration inhibitory factor | 巨噬细胞游走抑制因子 |
| LM03/04/05/07/12 | F3 | coagulation factor Ⅲ | 凝血因子Ⅲ |
| LM03/04/05/12/24/25/26/31 | FYN | tyrosine-protein kinase Fyn | 酪氨酸蛋白激酶Fyn |
| LM03/04/05/12/21/24/31 | LCK | tyrosine-protein kinase Lck | 酪氨酸蛋白激酶Lck |
| LM04/05/07/17 | CPA1 | carboxypeptidase A1 | 羧肽酶A1 |
| LM04/05/07 | TLR9 | Toll-like receptor 9 | Toll样受体9 |
| LM04/05/07/10/11 | ALOX15 | arachidonate-15-lipoxygenase | 花生四烯酸-15-脂氧合酶 |
| LM04 | NOS2 | nitric oxide synthase 2 | 一氧化氮合酶2 |
| LM04/18 | CCND1 | cyclin D1 | 细胞周期蛋白D1 |
| LM04/12/18 | CDK4 | cyclin-dependent kinases 4 | 细胞周期蛋白依赖性激酶4 |
| LM04/05/07 | CTNNB1 | catenin beta 1 | 连环蛋白β1 |
| LM04/05/07/10/11/13/14/28/30 | F2 | prothrombin | 凝血酶原 |
| LM05/07/17 | ITGAL | integrin alpha L | 整合素αL |
| LM05/07/17 | ICAM1 | inter-cellular adhesion molecule 1 | 细胞间黏附分子1 |
| LM05/07/17 | ITGB2 | integrin subunit beta 2 | 整合素亚基β2 |
| LM05/07/14/18 | ERBB2 | Erb-B2 receptor tyrosine kinase 2 | Erb-B2受体酪氨酸激酶2 |
| LM05/07/14 | MAPK8 | mitogen-activated protein kinase 8 | 丝裂原活化蛋白激酶8 |
| LM07/12 | IGFBP3 | insulin-like growth factor- | 胰岛素样生长因子结合蛋白3 |
| binding protein 3 | |||
| LM07/10 | CFTR | cystic fibrosis transmembrane | 囊性纤维化跨膜传导调节蛋白 |
| conductance regulator | |||
| LM07 | ADA | adenosine deaminase | 腺苷脱氨酶 |
| LM07 | ANPEP | alanyl (membrane) aminopeptidase | 丙氨酰膜氨基肽酶 |
| LM07 | LTA4H | leukotriene A4 hydrolase | 白三烯A4水解酶 |
| LM07/27 | EP300 | histone acetyltransferase P300 | 组蛋白乙酰转移酶P300 |
| LM08/13/26/28 | IDO1 | indoleamine 2,3-dioxygenase 1 | 吲哚胺2,3-双加氧酶1 |
| LM09 | NFKB1 | nuclear factor kappa-B subunit 1 | 核因子-κB亚基1 |
| LM09/10/11/13/28/30 | ACHE | acetylcholinesterase | 乙酰胆碱酯酶 |
| LM09/10/11/18 | XDH | xanthine dehydrogenase/oxidase | 黄嘌呤脱氢酶/氧化酶 |
| LM10/11 | TYR | tyrosinase | 酪氨酸酶 |
| LM10/11/12/28 | ABCC1 | ATP binding cassette | ATP结合盒亚家族C成员1 |
| subfamily C member 1 | |||
| LM10/11/12 | ABCG2 | ATP binding cassette | ATP结合盒超家族G成员2 |
| superfamily G member 1 | |||
| LM10/11/12 | SYK | lysine-tRNA ligase | 赖氨酸tRNA连接酶 |
| LM10/11/12/16/18 | GSK3B | glycogen synthase kinase 3 beta | 糖原合成酶激酶3β |
| LM10/11 | ARG1 | arginase 1 | 精氨酸酶1 |
| LM10/11/18/19/20/22 | GPR35 | G protein-coupled receptor 35 | G蛋白偶联受体35 |
| LM10/11/12/18 | CDK2 | cyclin-dependent kinase 2 | 细胞周期蛋白依赖性激酶2 |
| LM10/11/12/18/19/22 | IGF1R | insulin-like growth factor 1 receptor | 胰岛素样生长因子1受体 |
| LM10/11 | MPO | myeloperoxidase | 髓过氧化物酶 |
| LM10/11 | PIK3R1 | phosphoinositide 3-kinase | 磷脂酰肌醇3-激酶调控亚基α |
| regulatory subunit alpha | |||
| LM10/11/12/14/18 | SRC | SRC proto-oncogene, non-receptor | SRC原癌基因非受体酪氨酸激酶 |
| tyrosine kinase | |||
| LM10/11/18 | PTK2 | protein tyrosine kinase 2 | 蛋白酪氨酸激酶2 |
| LM10/11/12/14/18 | KDR | kinase insert domain receptor | 激酶插入结构域受体 |
| LM10/11/12/14/17 | MMP13 | matrix metalloproteinase 13 | 基质金属蛋白酶13 |
| LM10/11/12/14 | MMP3 | matrix metalloproteinase 3 | 基质金属蛋白酶3 |
| LM10/11/17 | CXCR1 | C-X-C motif chemokine receptor 1 | C-X-C基序趋化因子受体1 |
| LM10/11/19/22 | ALK | anaplastic lymphoma receptor | 间变性淋巴瘤受体酪氨酸激酶 |
| tyrosine kinase | |||
| LM10/11/18 | AKT1 | protein kinase B1 | 蛋白激酶B1 |
| LM10/11/12 | PLA2G1B | phospholipase A2 group ⅠB | 磷脂酶A2群ⅠB |
| LM10/11 | AXL | tyrosine-protein kinase receptor UFO | 酪氨酸-蛋白激酶受体UFO |
| LM10/11/12/17 | MMP12 | matrix metalloproteinase 12 | 基质金属蛋白酶12 |
| LM10/11 | TOP1 | DNA topoisomerase 1 | DNA拓扑异构酶1 |
| LM10/11 | TERT | telomerase reverse transcriptase | 端粒酶逆转录酶 |
| LM11/12/18 | INSR | insulin receptor | 胰岛素受体 |
| LM11 | MYLK | myosin light chain kinase, | 肌球蛋白轻链激酶,平滑肌 |
| smooth muscle | |||
| LM11/14 | PIK3CG | phosphatidylinositol 4,5-bisphosphate | 磷脂酰肌醇4,5-二磷酸 |
| 3-kinase catalytic subunit gamma | 3-激酶催化亚基γ | ||
| LM12/17/30 | CES1 | carboxylesterase 1 | 羧酸酯酶1 |
| LM12/17 | PPARG | peroxisome proliferator-activated | 过氧化物酶体增殖物激活受体γ |
| receptor gamma | |||
| LM12/17/18/30 | CES2 | carboxylesterase 1 | 羧酸酯酶2 |
| LM12/17 | PLA2G2A | phospholipase A2 group ⅡA | 磷脂酶A2群ⅡA |
| LM12 | PLA2G10 | phospholipase A2 group Ⅹ | 磷脂酶A2群Ⅹ |
| LM12/19/21/22/24 | SERPINE1 | serpin family E member 1 | 丝氨酸蛋白酶抑制剂家族E成员1 |
| LM12 | KIT | KIT proto-oncogene, receptor | KIT原癌基因受体酪氨酸激酶 |
| tyrosine kinase | |||
| LM12 | FGFR1 | fibroblast growth factor receptor 1 | 成纤维细胞生长因子受体1 |
| LM12/30 | CTSB | cathepsin B | 组织蛋白酶B |
| LM12 | BCHE | butyrylcholinesterase | 丁酰胆碱酯酶 |
| LM12 | PTGER2 | prostaglandin E receptor 2 | 前列腺素E受体2 |
| LM12/19/22 | BCL2L1 | Bcl-2-like protein 1 | Bcl-2样蛋白1 |
| LM12 | PIK3CB | phosphatidylinositol 4,5-bisphosphate | 磷脂酰肌醇4,5-二磷酸 |
| 3-kinase catalytic subunit beta | 3-激酶催化亚基β | ||
| LM12 | CYP2C9 | cytochrome P450 family 2 | 细胞色素P450家族2亚家族C成员9 |
| subfamily C member 9 | |||
| LM12 | CYP3A4 | cytochrome P450 family 3 | 细胞色素P450家族3亚家族A成员4 |
| subfamily A member 4 | |||
| LM12 | PIK3CA | phosphatidylinositol 4,5-bisphosphate | 磷脂酰肌醇4,5-二磷酸 |
| 3-kinase catalytic subunit alpha | 3-激酶催化亚基α | ||
| LM12 | PGF | placenta growth factor | 胎盘生长因子 |
| LM12 | VEGFA | vascular endothelial growth factor A | 血管内皮生长因子A |
| LM12/17 | EDNRA | endothelin receptor type A | 内皮素受体A型 |
| LM12 | BCL2 | B-cell lymphoma 2 | B细胞淋巴瘤2 |
| LM12/18 | AURKA | aurora kinase A | 极光激酶A |
| LM12 | HNF4A | hepatocyte nuclear factor 4-alpha | 肝细胞核因子4α |
| LM12 | FLG | filaggrin | 丝聚合蛋白 |
| LM12 | CDKN3 | cyclin-dependent kinase inhibitor 3 | 周期蛋白依赖性激酶抑制剂3 |
| LM13/28 | PRSS1 | serine protease 1 | 丝氨酸蛋白酶1 |
| LM13/28/30 | PLAU | plasminogen activator, urokinase | 尿激酶纤溶酶原激活物 |
| LM13 | KCNN4 | potassium calcium-activated channel | 钾钙激活通道亚家族N成员4 |
| subfamily N member 4 | |||
| LM14 | ADORA2B | adenosine receptor A2b | 腺苷受体A2b |
| LM14 | DNMT1 | DNA methyltransferase 1 | DNA甲基转移酶1 |
| LM14 | MAPK1 | mitogen-activated protein kinase 1 | 丝裂原活化蛋白激酶1 |
| LM14 | NTRK1 | neurotrophic receptor tyrosine kinase 1 | 神经营养受体酪氨酸激酶1 |
| LM14 | GAPDH | glyceraldehyde-3-phosphate | 甘油醛-3-磷酸脱氢酶 |
| dehydrogenase | |||
| LM14 | ABL1 | tyrosine-protein kinase ABL1 | 酪氨酸蛋白激酶ABL1 |
| LM14 | SLC5A4 | solute carrier family 5 member 4 | 溶质载体家族5成员4 |
| LM14 | ADAM17 | ADAM metallopeptidase domain 17 | ADAM金属肽酶结构域17 |
| LM14 | MTOR | mechanistic target of rapamycin kinase | 雷帕霉素激酶机制靶点 |
| LM14 | GSTM1 | glutathione S-transferase Μ1 | 谷胱甘肽巯基转移酶Μ1 |
| LM14 | MAPK14 | mitogen-activated protein kinase 14 | 丝裂原活化蛋白激酶14 |
| LM14/18 | FLT4 | Fms related receptor tyrosine kinase 4 | Fms相关受体酪氨酸激酶4 |
| LM14 | SLC5A1 | solute carrier family 5 member 1 | 溶质载体家族5成员1 |
| LM14 | MMP14 | matrix metalloproteinase 14 | 基质金属蛋白酶14 |
| LM14 | TRPV1 | transient receptor potential cation | 瞬时受体电位阳离子通道 |
| channel subfamily Ⅴ member 1 | 亚家族Ⅴ成员1 | ||
| LM14 | LIPG | lipase G, endothelial type | 内皮型脂肪酶 |
| LM14 | CASP8 | Caspase-8 | 半胱天冬酶-8 |
| LM14 | CASP1 | Caspase-1 | 半胱天冬酶-1 |
| LM14 | PDGFRA | platelet-derived growth | 血小板衍生生长因子受体α |
| factor receptor α | |||
| LM14/18 | PDGFRB | platelet-derived growth | 血小板衍生生长因子受体β |
| factor receptor β | |||
| LM14 | JAK2 | Janus kinase 2 | Janus激酶2 |
| LM14 | HSPA5 | heat shock protein family | 热休克蛋白家族A成员5 |
| A member 5 | |||
| LM14 | GC | GC vitamin D binding protein | GC维生素D结合蛋白 |
| LM15 | IKBKB | inhibitor of nuclear factor kappa B | 核因子κB激酶亚基β抑制剂 |
| kinase subunit beta | |||
| LM17/18 | HSPA1A | heat shock protein A1A | 热休克蛋白A1A |
| LM17 | PPARA | peroxisome proliferator-activated | 过氧化物酶体增殖物激活受体α |
| receptor alpha | |||
| LM17/27 | PTPRC | protein tyrosine phosphatase | 蛋白酪氨酸磷酸酶受体C型 |
| receptor type C | |||
| LM17 | ITGB3 | integrin subunit beta 3 | 整合素亚基β3 |
| LM17 | FABP1 | fatty acid binding protein 1 | 脂肪酸结合蛋白1 |
| LM17 | GRK2 | G protein-coupled receptor | G蛋白偶联受体激酶2 |
| kinase 2 | |||
| LM17/28 | PDE4A | phosphodiesterase 4A | 磷酸二酯酶4A |
| LM17 | HSP90AA1 | heat shock protein 90 alpha | 热休克蛋白90 α家族A类成员1 |
| family class A member 1 | |||
| LM17/28 | SLC6A4 | solute carrier family 6 member 4 | 溶质载体家族6成员4 |
| LM18 | TEK | TEK receptor tyrosine kinase | TEK受体酪氨酸激酶 |
| LM18 | BRAF | B-Raf proto-oncogene, serine/ | B-Raf原癌基因丝氨酸/ |
| threonine kinase | 苏氨酸激酶 | ||
| LM18 | TNNI3 | troponin Ⅰ type 3 | 肌钙蛋白Ⅰ型3 |
| LM19/20/22 | COMT | catechol-O-methyltransferase | 儿茶酚-O-甲基转移酶 |
| LM20/22 | ALB | albumin | 白蛋白 |
| LM21 | MMP8 | matrix metalloproteinase 8 | 基质金属蛋白酶8 |
| LM21/24 | POLA1 | DNA polymerase alpha 1, | DNA聚合酶α1催化亚基 |
| catalytic subunit | |||
| LM25/26 | PTPN22 | protein tyrosine phosphatase | 蛋白酪氨酸磷酸酶非受体22型 |
| non-receptor type 22 | |||
| LM27 | ALPG | alkaline phosphatase, germ cell type | 碱性磷酸酶生殖细胞型 |
| LM30 | CTSG | cathepsin G | 组织蛋白酶G |
| LM28/30 | CTSL | cathepsin L | 组织蛋白酶L |
2.3 辣木叶活性成分治疗肠炎PPI及核心靶点筛选
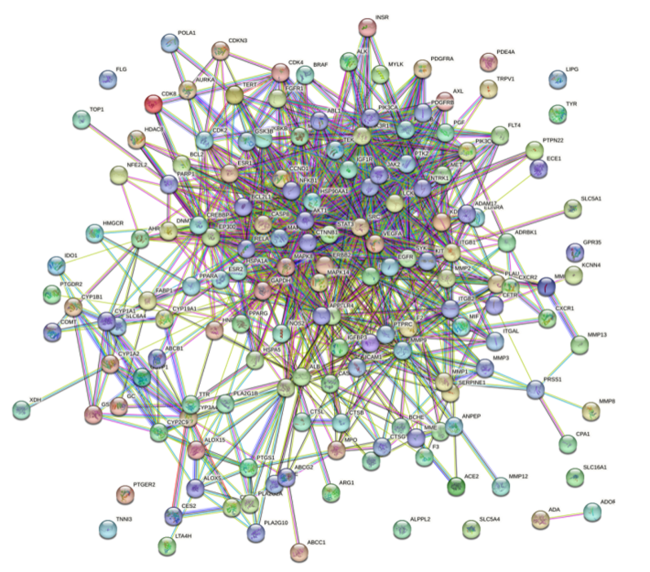
图2 辣木叶活性成分治疗肠炎潜在靶点的PPI网络图Fig.2 PPI network diagram of potential targets of active components of Moringa oleifera leaves for enteritis treatment |
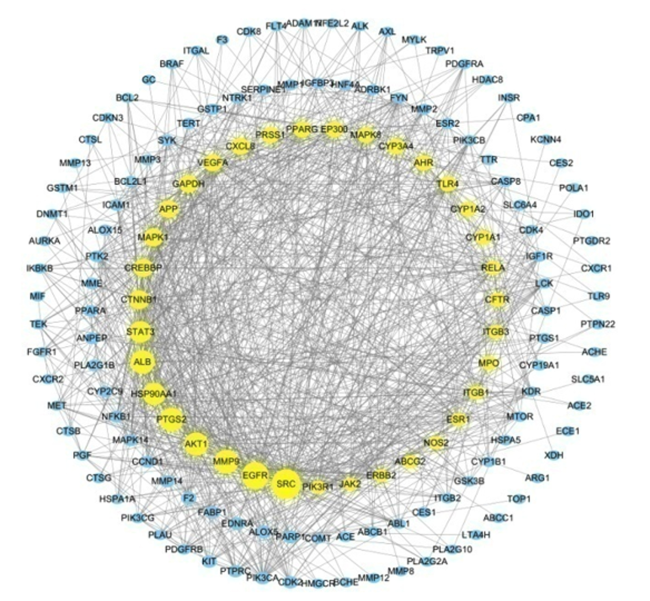
2.4 辣木叶治疗肠炎作用靶点KEGG信号通路和GO功能富集分析
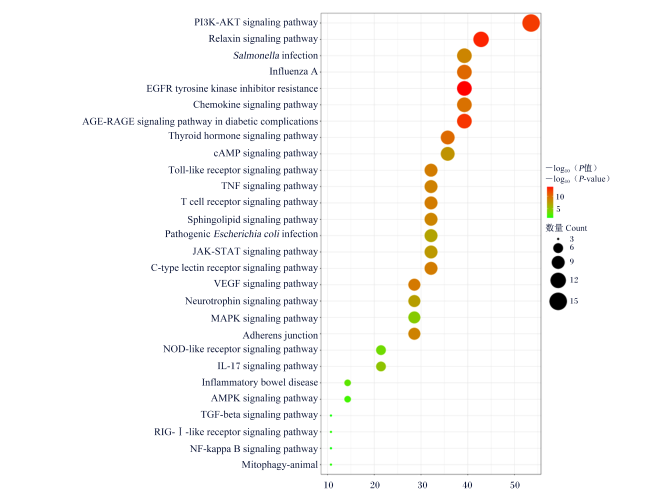
图4 KEGG信号通路富集分析PI3K-AKT signaling pathway:磷脂酰肌醇3-激酶-蛋白激酶B信号通路;Relaxin signaling pathway:松弛素信号通路;Salmonella infection:沙门氏菌感染;Influenza A:流行性感冒A;EGFR tyrosine kinase inhibitor resistance:表皮生长因子受体酪氨酸激酶抑制剂耐药性;Chemokine signaling pathway:趋化因子信号通路;AGE-RAGE signaling pathway in diabetic complications:糖尿病并发症中的糖基化终产物及其受体信号通路;Thyroid hormone signaling pathway:甲状腺激素信号通路;cAMP signaling pathway:环磷酸腺苷信号通路;Toll-like receptor signaling pathway:Toll样受体信号通路;TNF signaling pathway:肿瘤坏死因子信号通路;T cell receptor signaling pathway:T细胞受体信号通路;Sphingolipid signaling pathway:鞘脂信号通路;Pathogenic Escherichia coli infection:致病性大肠杆菌感染;JAK-STAT signaling pathway:Janus激酶-信号转导与转录激活因子信号通路;C-type lectin receptor signaling pathway:C型凝集素受体信号通路;VEGF signaling pathway:血管内皮生长因子信号通路;Neurotrophin signaling pathway:神经营养因子信号通路;MAPK signaling pathway:丝裂原活化蛋白激酶信号通路;Adherens junction:黏附连接;NOD-like receptor signaling pathway: NOD样受体信号通路;IL-17 signaling pathway:白细胞介素-17信号通路;Inflammatory bowel disease:炎症性肠病;AMPK signaling pathway:单磷酸腺苷活化蛋白激酶信号通路;TGF-beta signaling pathway:转化生长因子β信号通路;RIG-Ⅰ-like receptor signaling pathway:维甲酸诱导基因Ⅰ样受体信号通路;NF-kappa B signaling pathway:核因子-κB信号通路;Mitophagy-animal:动物线粒体自噬。图5和图7同 the same as Fig.5 and Fig.7. Fig.4 KEGG signaling pathway enrichment analysis |
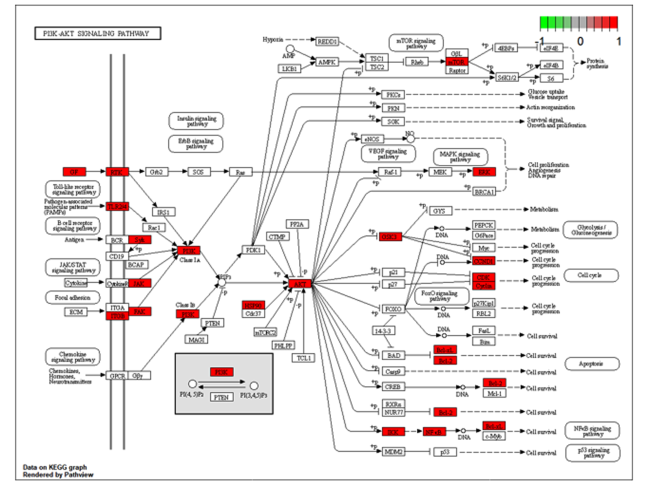
图5 关键靶点在PI3K-AKT信号通路中发挥作用的过程Pathogen-associated molecular patterns:病原体相关分子模式;B cell receptor signaling pathway:B细胞受体信号通路;Antigen:抗原;Cytokine:细胞因子;Focal adhesion:聚焦黏附;ECM:细胞外基质 extracellular matrix;Chemokines, hormones, neurotransmitters:趋化因子,激素,神经递质;RTK:受体酪氨酸激酶 receptor tyrosine kinase;Grb2:生长因子受体结合蛋白2 growth factor receptor bound protein 2;SOS:Ras/Rac鸟嘌呤核苷酸交换因子 Ras/Rac guanine nucleotide exchange factor;TLR:Toll样受体 Toll-like receptor;BCR:RhoGEF和GTP酶的BCR激活剂 BCR activator of RhoGEF and GTPase;CytokineR:细胞因子R;ITGA:整合素亚基α integrin subunit alpha;ITGB:整合素亚基β integrin subunit beta;GPCR:G蛋白偶联受体 G protein-coupled receptor;Gβγ:G蛋白βγ复合物 G protein beta-gamma complex;IRS1:胰岛素受体底物1 insulin receptor substrate 1;BCAP:磷脂酰肌醇3-激酶B细胞适配器 B-cell adapter for PI3K;PAK:P21活化激酶 P21 activated kinase;PI3K:磷脂酰肌醇3-激酶 phosphoinositide 3-kinase;Class ⅠA:ⅠA类;Class ⅠB:ⅠB类;PTEN:磷酸酯酶与张力蛋白同系物 phosphatase and tensin homolog;MAGI:膜相关鸟苷酸激酶WW和PDZ结构域 membrane associated guanylate kinase, WW and PDZ domain;Insulin signaling pathway:胰岛素信号通路;EebB signaling pathway:Erb-B2受体酪氨酸激酶信号通路;PIP3:磷脂酰肌醇(3,4,5)-三磷酸phosphatidylinositol (3,4,5)-trisphosphate;PI(4,5)P2:磷脂酰肌醇(4,5)-二磷酸 phosphatidylinositol (4,5)-bisphosphate;PI(3,4,5)P3:磷脂酰肌醇(3,4,5)-三磷酸phosphatidylinositol (3,4,5)-trisphosphate;PDK1:丙酮酸脱氢酶激酶1 pyruvate dehydrogenase kinase 1;CTMP:羧基末端调节蛋白 carboxyl-terminal modulator protein;PP2A:蛋白磷酸酶2A protein phosphatase 2A;AKT:蛋白激酶B protein kinase B;HSP90:热休克蛋白90 heat shock protein 90;Cdc37:细胞分裂周期37 cell division cycle 37;mTORC2:哺乳动物雷帕霉素靶蛋白复合物2 mammalian target of rapamycin complex 2;PHLPP:PH结构域和富含亮氨酸的重复蛋白磷酸酶 PH domain and leucine rich repeat protein phosphatase;TCL1:T细胞白血病/淋巴瘤蛋白1 T cell leukemia/lymphoma protein 1;Hypoxia:缺氧;REDD1:在发育和DNA损伤反应中受调控1 regulated in development and DNA damage response 1;AMP:单磷酸腺苷 adenosine monophosphate;LKB1:肝激酶B1 liver kinase B1;AMPK:单磷酸腺苷活化蛋白激酶 adenosine monophosphate activated protein kinase;TSC:结节性硬化症 tuberous sclerosis;mTOR signaling pathway:哺乳动物雷帕霉素靶蛋白信号通路;Rheb:在大脑中富集的Ras同系物 Ras homolog enriched in brain;GβL:G蛋白β样 G protein beta subunit-like;4EBPs:4E结合蛋白 4E binding proteins;S6K1/2:核糖体蛋白S6激酶1/2 ribosomal protein S6 kinase 1/2;eIF4E:真核细胞翻译起始因子4E eukaryotic translation initiation factor 4E;eIF4B:真核细胞翻译起始因子4B eukaryotic translation initiation factor 4B;S6:核糖体蛋白S6 ribosomal protein S6;Protein synthesis:蛋白质合成;PKCs:磷脂酰肌醇依赖性蛋白激酶 phosphoinositide dependent protein kinases;PKN:蛋白激酶N protein kinase N;SGK:血清和糖皮质激素诱导激酶 serum and glucocorticoid-induced kinase;Glucose uptake:葡萄糖摄取;Vesicle transport:囊泡运输;Actin reorganization:肌动蛋白重组;Survival signal:生存信号;Growth and proliferation:生长繁殖;eNOS:内皮型一氧化氮合酶 endothelial nitric oxide synthase;NO:一氧化氮 nitric oxide;Raf-1:Raf-1原癌基因丝氨酸/苏氨酸激酶 Raf-1 proto-oncogene, serine/threonine kinase;MEK:丝裂原活化蛋白激酶激酶 mitogen-activated protein kinase kinase;ERK:细胞外信号调节激酶 extracellular signal-regulated kinase;Cell proliferation:细胞增殖;Angiogenesis:血管生成;DNA repair:DNA修复;GSK3:糖原合成酶激酶3 glycogen synthase kinase 3;GYS:糖原合成酶 glycogen synthase;Metabolism:代谢;PEPCK:磷酸烯醇丙酮酸羧化激酶 phosphoenolpyruvate carboxykinase;Glycolysis:糖酵解;Gluconeogenesis:糖异生;Cell cycle progression:细胞周期进程;CDK:周期蛋白依赖性激酶 cyclin-dependent kinase;Cyclin:周期蛋白;Cell cycle:细胞周期;FOXO:叉头框蛋白O Forkhead box O;FoxO signaling pathway:叉头框蛋白O信号通路;FasL:Fas配体 Fas ligand;BAD:Bcl2相关的细胞死亡蛋白激动剂 Bcl2-associated agonist of cell death;Bcl-xL:b细胞淋巴瘤-特大 B-cell lymphoma-extra large;Casp9:半胱天冬酶-9 Caspase-9;Mcl-1:骨髓性白血病1 myeloid leukemia 1;RXRα:类视黄醇X受体α retinoid X receptor alpha;NUR77:核受体亚家族4群A成员1 nuclear receptor subfamily 4 group A member 1;IKK:核因子-κB激酶抑制剂 inhibitor of nuclear factor-κB kinase;NF-κB:核因子-κB nuclear factor-κB;MDM2:小鼠双分钟2同系物 mouse double minute 2 homolog;NF-κB signaling pathway:核因子-κB信号通路;p53 signaling pathway:p53信号通路。 Fig.5 Processes in which key targets play a role in PI3K-AKT signaling pathway |
表3 核心靶点相关拓扑参数Table 3 Core target related topological parameters |
| 靶点 Targets | 自由度 Degree of freedom | 特征向量 Eigenvector | 局部平均连同中心性 Local average connectivity | 介数 Betweenness | 接近中心性 Closeness centrality | 网络 Netcat |
|---|---|---|---|---|---|---|
| SRC | 59 | 0.248 4 | 15.627 1 | 2 071.127 7 | 0.573 1 | 44.230 3 |
| EGFR | 54 | 0.240 8 | 16.074 0 | 1 198.043 0 | 0.568 7 | 39.140 2 |
| MMP9 | 49 | 0.207 3 | 13.265 3 | 1 780.128 2 | 0.549 8 | 31.125 7 |
| AKT1 | 47 | 0.207 2 | 13.574 5 | 1 376.353 5 | 0.556 0 | 29.031 7 |
| PTGS2 | 47 | 0.186 5 | 10.680 9 | 1 275.601 4 | 0.537 9 | 26.004 1 |
| HSP90AA1 | 43 | 0.194 6 | 13.209 3 | 950.644 8 | 0.543 8 | 25.038 6 |
| ALB | 42 | 0.192 8 | 14.047 6 | 728.799 9 | 0.536 0 | 27.425 1 |
| STAT3 | 40 | 0.191 9 | 15.100 0 | 312.347 9 | 0.486 9 | 29.177 1 |
| CTNNB1 | 38 | 0.186 5 | 15.263 2 | 256.423 4 | 0.479 1 | 28.245 0 |
| CREBBP | 36 | 0.151 1 | 10.000 0 | 863.363 1 | 0.506 8 | 17.553 9 |
| MAPK1 | 33 | 0.152 2 | 11.939 4 | 427.686 5 | 0.500 0 | 18.378 6 |
| APP | 31 | 0.123 1 | 9.612 9 | 637.747 4 | 0.501 7 | 16.139 9 |
| GAPDH | 30 | 0.144 7 | 11.133 3 | 314.070 0 | 0.465 6 | 16.560 1 |
| VEGFA | 29 | 0.154 9 | 14.069 0 | 149.957 5 | 0.458 5 | 19.609 0 |
| CXCL8 | 29 | 0.148 7 | 12.620 7 | 343.380 9 | 0.477 6 | 17.218 8 |
| PRSS1 | 29 | 0.109 0 | 8.206 9 | 866.408 7 | 0.496 7 | 15.502 1 |
| PPARG | 28 | 0.105 4 | 8.285 7 | 1 436.416 3 | 0.503 4 | 13.784 7 |
| EP300 | 28 | 0.157 6 | 14.357 1 | 96.735 6 | 0.471 5 | 17.800 9 |
| MAPK8 | 28 | 0.148 4 | 11.928 6 | 314.798 7 | 0.501 7 | 14.738 9 |
| CYP3A4 | 28 | 0.131 7 | 9.928 6 | 591.795 5 | 0.486 9 | 13.291 5 |
| AHR | 27 | 0.124 7 | 9.629 6 | 539.672 4 | 0.503 4 | 13.804 3 |
| TLR4 | 27 | 0.117 4 | 9.259 3 | 756.162 9 | 0.508 5 | 12.699 8 |
| CYP1A2 | 27 | 0.138 0 | 11.926 0 | 176.201 1 | 0.482 2 | 14.935 1 |
| CYP1A1 | 27 | 0.119 4 | 9.259 3 | 383.909 6 | 0.457 1 | 14.813 6 |
| RELA | 26 | 0.087 7 | 6.538 5 | 1 403.458 4 | 0.512 0 | 11.872 7 |
| CFTR | 25 | 0.124 3 | 10.880 0 | 87.550 3 | 0.443 5 | 15.289 9 |
| ITGB3 | 25 | 0.099 3 | 5.920 0 | 797.061 9 | 0.479 1 | 10.022 6 |
| MPO | 24 | 0.088 5 | 7.250 0 | 711.857 2 | 0.490 1 | 11.493 2 |
| ITGB1 | 24 | 0.129 3 | 11.000 0 | 181.183 0 | 0.474 5 | 12.803 4 |
| ESR1 | 23 | 0.120 2 | 10.956 5 | 187.399 7 | 0.473 0 | 13.924 6 |
| NOS2 | 22 | 0.126 8 | 12.181 9 | 67.957 3 | 0.455 7 | 14.530 2 |
| ABCG2 | 20 | 0.118 6 | 10.900 0 | 75.007 2 | 0.444 8 | 12.272 0 |
| ERBB2 | 20 | 0.112 8 | 10.600 0 | 58.473 6 | 0.447 4 | 12.617 4 |
| JAK2 | 20 | 0.096 9 | 8.000 0 | 415.138 9 | 0.447 4 | 9.585 0 |
| PIK3R1 | 20 | 0.074 2 | 6.900 0 | 1 391.388 7 | 0.488 5 | 11.206 4 |
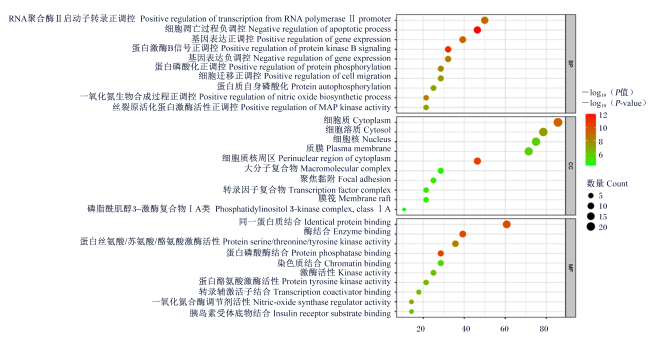
2.5 辣木叶活性成分-肠炎靶点-信号通路网络可视化
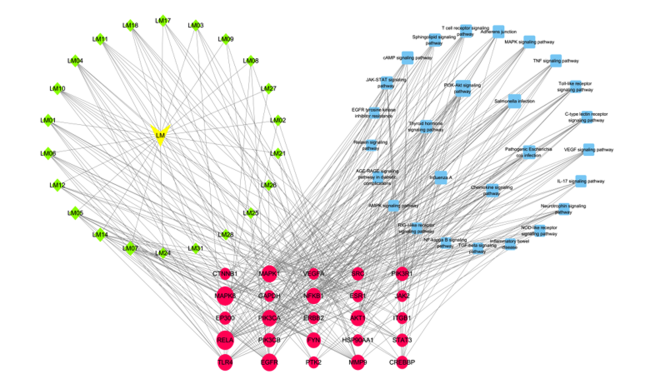
2.6 辣木叶活性成分与靶蛋白的分子对接
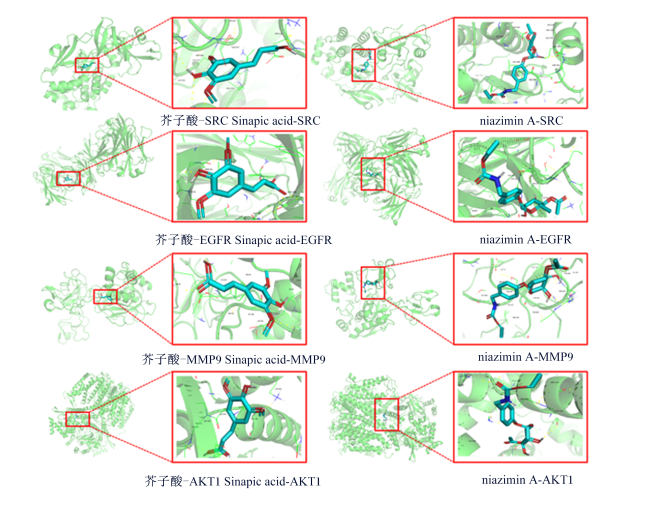
表4 辣木叶活性成分与核心靶点分子对接结果Table 4 Molecular docking results of core targets with active components of Moringa oleifera leaves |
| 项目 Items | 结合自由能Binding free energy/(kcal/mol) | |||
|---|---|---|---|---|
| SRC原癌基因非受体 酪氨酸激酶 SRC | 表皮生长因子受体 EGFR | 基质金属蛋白酶9 MMP9 | 蛋白激酶B AKT1 | |
| 芥子酸Sinapic acid | -5.5 | -6.2 | -5.9 | -6.0 |
| niazimin A | -7.2 | -6.6 | -6.0 | -7.1 |
1 kcal≈4.186 kJ。 |
 京公网安备 11010802041926号


