研究论文

菜籽粕混合发酵饲料替代豆粕对生长猪生长性能、养分表观消化率以及血清生化和抗氧化指标的影响

  • 毛江笛 ,
  • 倪志翔 ,
  • 汪海峰 , *
展开
  • 浙江大学动物科学学院,杭州 310058
* 汪海峰,研究员,博士生导师,E-mail:

毛江笛(1994—),男,浙江温州人,博士研究生,动物营养与饲料科学专业。E-mail:

Copy editor: 田艳明

收稿日期: 2023-07-26

  网络出版日期: 2024-01-12

基金资助

浙江省研发攻关计划重大项目(2023C02026)

国家重点研发计划项目(2022YFD1300602)

Effects of Rapeseed Meal Mixed Fermented Feed Replacing Soybean Meal on Growth Performance, Nutrient Apparent Digestibility and Serum Biochemical and Antioxidant Indices of Growing Pigs

  • MAO Jiangdi ,
  • NI Zhixiang ,
  • WANG Haifeng , *
Expand
  • College of Animal Science, Zhejiang University, Hangzhou 310058, China
* professor, E-mail:

Received date: 2023-07-26

  Online published: 2024-01-12

摘要

本试验旨在研究菜籽粕混合发酵饲料替代豆粕对生长猪生长性能、养分表观消化率以及血清生化和抗氧化指标的影响。试验选用70%菜籽粕、15%玉米皮和15%麸皮混合作为发酵原料,筛选菌种后选择添加酵母菌、罗伊氏乳杆菌(Lactobacillus reuteri)和中性蛋白酶进行发酵。优化发酵条件后将条件控制为含水量55%、发酵温度30 ℃、发酵时间60 h,干燥制得发酵饲料。在饲喂试验中,选取平均体重为(39.3±5.3) kg的“杜×长×大”三元杂交生长猪72头,随机分为3组,每组3个重复,每个重复8头猪(公母各占1/2)。对照组(CON组)饲喂基础饲粮,未发酵组(RMD组)饲喂用15%未发酵菜籽粕混合饲料替代基础饲粮中豆粕、玉米和麸皮的饲粮,发酵组(FRMD组)饲喂用15%菜籽粕混合发酵饲料替代基础饲粮中豆粕、玉米和麸皮的饲粮。试验期28 d。结果表明:1)混合发酵显著提高了菜籽粕混合饲料的粗蛋白质(CP)和三氯乙酸酸溶蛋白(TCA-N)含量(P<0.05),显著降低了硫代葡萄糖苷、植酸和单宁含量(P<0.05)。2)饲养试验结果表明,3组生长猪生长性能无显著差异(P>0.05);FRMD组总磷表观消化率要显著高于RMD组(P<0.05);与CON组相比,RMD组血清尿素氮(UN)含量有所提高(P>0.05),而FRMD组血清UN含量无显著差异(P>0.05);与RMD组相比,FRMD组血清谷胱甘肽过氧化物酶(GSH-Px)活性显著降低(P<0.05)。由此可见,混合发酵可提高菜籽粕的营养价值,并且菜籽粕在混合发酵后可部分替代生长猪饲粮中的豆粕。

本文引用格式

毛江笛 , 倪志翔 , 汪海峰 . 菜籽粕混合发酵饲料替代豆粕对生长猪生长性能、养分表观消化率以及血清生化和抗氧化指标的影响[J]. 动物营养学报, 2024 , 36(1) : 162 -173 . DOI: 10.12418/CJAN2024.016

Abstract

This experiment was conducted to investigate the effects of rapeseed meal mixed fermented feed replacing soybean meal on growth performance, nutrient apparent digestibility and serum biochemical and antioxidant indices of growing pigs. In the experiment, 70% rapeseed meal, 15% corn husk and 15% bran were mixed as fermentation raw materials. After screening the strains, yeast, Lactobacillus reuteri and neutral protease were selected for fermentation. After optimizing the fermentation conditions, the fermentation feed was prepared by drying with 55% water content, 30 ℃ fermentation temperature and 60 h fermentation time. In the feeding experiment, 72 Duroc×Landrace×Yorkshire crossbred growing pigs with an average body weight of (39.3±5.3) kg were randomly divided into 3 groups with 3 replicates per group and 8 pigs per replicate (half male and half female). Pigs in the control group (CON group) were fed a basal diet, those in the unfermented group (RMD group) were fed a diet in which 15% unfermented rapeseed meal mixed feed replaced soybean meal, corn and bran in the basal diet, and those in the fermented group (FRMD group) were fed a diet in which 15% rapeseed meal mixed fermented feed replaced soybean meal, corn and bran in the basal diet, respectively. The experiment lasted for 28 days. The results showed as follows: 1) the mixed fermentation significantly increased the contents of crude protein (CP) and trichloroacetate acid soluble protein TCA-N (P<0.05), and significantly decreased the contents of glucosinolide, phytic acid and tannin in rapeseed meal mixed feed (P<0.05). 2) The results of feeding experiment showed that there was no significant difference in growth performance of pigs in three groups (P>0.05); the apparent digestibility of total phosphorus in FRMD group was significantly higher than that in RMD group (P<0.05); compared with CON group, the serum urea nitrogen (UN) content in RMD group was increased (P>0.05), but there was no significant difference in serum UN content in FRMD group (P>0.05); compared with RMD group, the serum glutathione peroxidase (GSH-Px) activity in FRMD group was significantly decreased (P<0.05). In conclusion, the mixed fermentation can improve the nutritional values of rapeseed meal, and the rapeseed meal can partially replace soybean meal in the diet for growing pigs after mixed fermentation.

饲料资源短缺是我国饲料工业与畜牧业当前发展所面临的主要问题。国内主要大宗饲料,特别是豆粕严重依赖进口,然而近年由于受中美贸易摩擦以及新冠疫情的影响,我国豆粕进口形势愈加严峻。2022年度海关数据表明,大豆仍是我国占比最大的粮食进口品种,数量占全国粮食进口总量的62%,金额占全国粮食进口总量的74%。但与此同时,国内仍然存在有大量农副产品资源未被充分有效利用。与豆粕相比,菜籽粕含有更多的抗营养因子[1-2],因此在猪饲粮中的应用有限。然而,菜籽粕通常含有34%~38%的粗蛋白质(crude protein,CP),其含硫氨基酸含量甚至比豆粕高出20%。此外,菜籽粕中的矿物质含量,如钙(0.83 mg/kg)、磷(1.14 mg/kg)、镁(0.49 mg/kg)和硫(5.9 mg/kg)含量也高于大豆[3]
固态发酵被认为是提高菜籽粕饲用营养价值以及减少其抗营养因子含量的天然方法。饲喂发酵菜籽粕可提高畜禽的生长性能。例如,Chiang等[4]用发酵乳酸菌、粪肠球菌、酿酒酵母菌和枯草芽孢杆菌(Bacillus subtilis)发酵菜籽粕来饲喂肉仔鸡;Shi等[5]用黑曲霉(Aspergillus niger)发酵菜籽粕来饲喂生长猪;Hu等[6]用枯草芽孢杆菌、产朊假丝酵母和粪肠球菌发酵菜籽粕来饲喂肉鸡。然而,目前利用菜籽粕与其他低值原料混合发酵以替代生长猪饲粮中豆粕和玉米的研究还很少。
微生物发酵菜籽粕后,可降解其中的硫代葡萄糖苷、植酸和单宁等抗营养因子含量,提高其CP、三氯乙酸酸溶蛋白(TCA-N)和氨基酸等营养价值[7-11]。玉米皮和麸皮在发酵过程中则可以起到重要的辅助作用,如调节发酵原料的碳氮比以促进微生物生长增殖,并且通过微生物发酵也可以提高它们的蛋白质含量和蛋白质质量[12]。因此,菜籽粕、麸皮和玉米皮可与微生物混合发酵一起处理,以提高其对生长猪的营养价值。虽然已有研究报道发酵可以提高菜籽粕的营养价值[8,10,13],但有关生长猪饲喂发酵菜籽粕对其养分表观消化率以及血清生化和抗氧化指标影响的研究还很有限。因此,本试验评估了固态发酵对发酵原料(菜籽粕、玉米皮和麸皮)营养成分和抗营养因子含量的影响,以及探究了菜籽粕混合发酵饲料部分替代豆粕对生长猪生长性能、营养表观消化率以及血清生化和抗氧化指标的影响,旨在为菜籽粕的综合利用提供参考。

1 材料与方法

1.1 菜籽粕混合发酵饲料的制备

1.1.1 主要试验材料

发酵原料由菜籽粕、玉米皮和麸皮组成,其添加比例分别为70%、15%和15%。菜籽粕购自中粮东海粮油工业(张家港)有限公司,玉米皮购自蚌埠市金源生物科技有限公司,麸皮购自河南飞天农业开发股份有限公司。

1.1.2 试验菌种和蛋白酶

酵母菌、罗伊氏乳杆菌(Lactobacillus reuteri)、黑曲霉和枯草芽孢杆菌为本实验室保存菌种,中性蛋白酶(活性50 000 U/g)来自河南某有限公司。

1.1.3 发酵菌株的选择和组合

分别培养酵母菌(酵母提取物蛋白胨葡萄糖培养基,30 ℃,24 h)、罗伊氏乳杆菌(MRS培养基,37 ℃,18 h)、枯草芽孢杆菌(LB培养基,30 ℃,24 h)和黑曲霉(马铃薯葡萄糖琼脂培养基,30 ℃,24 h),然后将酵母菌(108 CFU/mL)、罗伊氏乳杆菌(108 CFU/mL)、枯草芽孢杆菌(108 CFU/mL)、黑曲霉(106个孢子/mL)或中性蛋白酶分别按照10%[14]、10%[15]、10%[13]、10%[16]和0.1%(根据生产说明)(基于原料重量)的比例添加至菜籽粕混合发酵原料中进行固态发酵。发酵条件为含水量50%、温度30 ℃、发酵时间48 h,饲料厚度为7~10 cm,发酵过程中不翻动饲料。

1.1.4 菜籽粕混合饲料的固态发酵

根据单一菌种或蛋白酶发酵的结果,选择能降解多种抗营养因子的酵母菌、可以降解部分抗营养因子并产生乳酸的罗伊氏乳杆菌和大幅提高TCA-N含量的中性蛋白酶进行组合发酵。2种菌株培养物(108 CFU/mL)和中性蛋白酶分别以原料重量的10%和0.1%的比例接种到混合原料中。发酵条件为含水量50%、温度30 ℃、发酵时间48 h,饲料厚度为7~10 cm,发酵过程中不翻动饲料。
接着,对发酵条件进行优化。试验的发酵条件设定为:发酵时间分别为48、60和72 h(固定温度30 ℃、含水量50%);温度分别为25、30和35 ℃(固定发酵时间60 h、含水量50%);含水量分别为45%、50%和55%(固定温度30 ℃、发酵时间60 h)。菌种培养基和中性蛋白酶的接种量设定同上。最终,根据所得结果,将最佳发酵条件设定为含水量55%、温度30 ℃、发酵时间60 h。

1.1.5 营养成分和抗营养因子含量的测定

饲料中干物质(DM)、CP和TCA-N含量分别参照GB/T 6435—2014、GB/T 6432—2018和GB/T 22492—2008的方法进行测定;硫代葡萄糖苷含量参照氯化钯法[17]进行测定;单宁含量参照钨酸钠-磷钼酸比色分光光度计法[18]进行测定;植酸含量参照三氯化铁滴定法[19]进行测定;氨基酸含量采用日立L8900全自动氨基酸分析仪进行测定。

1.2 动物试验

1.2.1 试验设计和饲养管理

试验采用随机分组原则,选取平均体重为(39.3±5.3) kg的“杜×长×大”三元杂交生长猪72头,随机分为3组,每组3个重复(栏),每个重复8头猪(公母各占1/2)。对照组(CON组)饲喂基础饲粮,未发酵组(RMD组)饲喂含15%未发酵菜籽粕混合饲料的饲粮,发酵组(FRMD组)饲喂含15%菜籽粕混合发酵饲料的饲粮,饲粮均以颗粒料的形式进行饲喂。试验期28 d,试验期间试验猪自由采食和饮水,按常规程序进行驱虫免疫,试验在浙江某生猪试验基地进行。

1.2.2 试验饲粮

对照组基础饲粮为常规玉米-豆粕型饲粮,未发酵组和发酵组分别用15%未发酵菜籽粕混合饲料和15%菜籽粕混合发酵饲料替代基础饲粮中的豆粕、玉米和麸皮,饲粮组成及营养水平见表1
表1 饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of diets (air-dry basis)%

项目Items 对照组CON group 未发酵组RMD group 发酵组FRMD group
原料Ingredients
玉米Corn 62.00 59.00 59.00
豆粕Soybean meal 25.00 15.00 15.00
菜籽粕Rapeseed meal 10.50
麸皮Bran 3.00 2.25
玉米皮Corn bran 2.25
发酵饲料Fermented feed 15.00
鱼粉Fish meal 1.00 1.00 1.00
脂肪粉Fat powder 2.00 3.00 3.00
磷酸氢钙CaHPO4 0.80 0.70 0.70
石粉Limestone 1.20 1.20 1.20
食盐NaCl 0.30 0.30 0.30
植酸酶Phytase 0.01 0.01 0.01
赖氨酸Lys 0.14 0.24 0.24
氯化胆碱Choline chloride 0.10 0.10 0.10
预混料Premix1) 1.45 1.45 1.45
肽能健Tainengjian2) 3.00 3.00 3.00
合计Total 100.00 100.00 100.00
营养水平Nutrient levels3)
消化能DE/(MJ/kg) 14.50 14.20 14.20
粗蛋白质CP 17.42 16.89 17.37
钙Ca 0.85 0.87 0.89
总磷TP 0.42 0.46 0.48
赖氨酸Lys 0.61 0.59 0.61
蛋氨酸Met 0.41 0.40 0.42

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 7 500 IU,VD 350 IU,VE 25 IU,VK3 2.0 mg,VB1 1.875 mg,VB2 3.75 mg,VB6 2.19 mg,VB12 0.025 mg,烟酸 nicotinic acid 25 mg,泛酸 pantothenic acid 15.6 mg,叶酸 folic acid 2.0 mg,生物素 biotin 0.187 5 mg,Cu (basic copper chloride) 20 mg,Zn (zinc sulfate) 80 mg,Fe (ferrous sulfate) 80 mg,Mn (manganese sulfate) 30 mg,Se (sodium selenite) 0.3 mg,I (as potassium iodide) 0.4 mg,霉可吸 mycosorb 800 mg,利舒宝 lysoforte 700 mg,百福菌 actisaf 1 g。

2)肽能健是一种小肽蛋白粉。Tainengjian was a kind of small peptide protein powder.

3)消化能根据《中国饲料成分及营养价值表(2022年第33版)》计算所得,其余为实测值。DE was calculated by Tables of Feed Composition and Nutritional Values in China (33rd Edition 2022), while the others were measured values.

1.2.3 样品采集与处理

依照四分法采集3个组的饲粮各3份,保存于-20 ℃。试验期第25天,从每个猪栏中随机抽取猪只收集新鲜粪便,并于-20 ℃保存,用于后续养分含量的测定。试验期第26天,每栏随机选择2头猪进行采血,将血液离心后获取血清于-20 ℃保存,用于后续血清生化和抗氧化指标的测定与分析。

1.2.4 检测指标及方法

1.2.4.1 生长性能

在试验第1天和第28天09:00对试验猪进行空腹称重(以头为单位),计算平均日增重(ADG);以栏为单位记录饲粮消耗量,最后根据扣除结块发霉的饲粮和浪费的饲粮后的总耗料量,计算每头猪的平均日采食量(ADFI);并根据ADG和ADFI计算料重比(F/G)。

1.2.4.2 养分表观消化率

采用盐酸不溶灰分(AIA)内源指示剂法测定养分表观消化率。粪便样品中添加5%的6 mol/L盐酸进行混合固氮,在55 ℃的烘箱中干燥48 h至恒重,风干后的样品粉碎过60目筛。饲粮和粪便中的总能(GE)、DM、钙、总磷、CP和AIA含量分别参照ISO 9831:1998、GB/T 6435—2014、GB/T 13885—2017、GB/T 6437—2018、GB/T 6432—2018和GB/T 23742—2009方法测定。养分表观消化率计算公式如下:

某养分表观消化率(%)=100-100×[(饲粮中AIA含量/粪便中AIA含量)×(粪便中该养分含量/饲粮中该养分含量)]。

1.2.4.3 血清生化和抗氧化指标

血清生化指标包括血清尿素氮(UN)、总蛋白(TP)、磷和钙含量以及谷草转氨酶(AST)和谷丙转氨酶(ALT)活性采用试剂盒进行测定,血清抗氧化指标包括丙二醛(MDA)含量、超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性以及总抗氧化能力(T-AOC),采用试剂盒进行测定,试剂盒购自南京建成生物工程研究所。

1.3 数据统计分析

采用SAS 9.1.3统计软件对试验数据进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较,发酵前后营养成分变化差异采用t检验,结果以“平均值±标准差”形式表示,P<0.05表示差异显著。

2 结果与分析

2.1 菜籽粕混合发酵菌株的选择和发酵条件的优化

2.1.1 发酵菌株的选择

表2可知,单一菌株(罗伊氏乳杆菌、酵母菌、枯草芽孢杆菌或黑曲霉)或蛋白酶单独发酵均可显著提高混合饲料原料中的CP和TCA-N含量(P<0.05),并显著降低植酸含量(P<0.05);此外,酵母菌单独发酵可以同时显著降低原料中的硫代葡萄糖苷和单宁含量(P<0.05),罗伊氏乳杆菌单独发酵也有着较强的降解植酸的能力(P<0.05),中性蛋白酶单独发酵提高发酵TCA-N含量的能力要显著高于其他菌种(P<0.05)。因此,本试验选择将酵母菌、罗伊氏乳杆菌和中性蛋白酶组合进行固态发酵。结果表明,组合发酵有效结合了单菌各自的优势,显著提高了菜籽粕混合原料的CP和TCA-N含量(P<0.05),并显著降低了其硫代葡萄糖苷、植酸和单宁含量(P<0.05)。
表2 单独发酵和组合发酵结果(干物质基础)

Table 2 Results of single fermentation and combined fermentation (DM basis) (n=3)

项目
Items
原料
Ingredient
单独发酵Single fermentation 组合发酵
Combined
fermentation
SEM P
P-value
罗伊氏
乳杆菌
Lactobacillus
reuteri
酵母菌
Yeast
枯草芽
孢杆菌
Bacillus
subtilis
黑曲霉
Aspergillus
niger
中性
蛋白酶
Neutral
protease
粗蛋白质CP/% 32.62c 36.09b 36.50b 35.55b 36.38b 38.32a 38.11a 0.48 <0.001
三氯乙酸酸
溶蛋白
TCA-N/%
5.36c 7.28b 7.84b 8.66b 8.20b 21.60a 20.70a 1.40 <0.001
硫代葡萄糖苷
Glucosinolate/
(μmol/g)
41.67ab 42.83ab 32.57c 43.09ab 44.54a 40.22a 31.17c 1.01 <0.001
植酸
Phytic acid/%
4.51a 2.92c 3.10c 2.82c 3.54b 3.15c 3.08c 0.12 <0.001
单宁Tannin/% 1.53b 1.63ab 1.19c 1.09c 1.76a 1.76a 1.14c 0.07 <0.001

组合发酵包括罗伊氏乳杆菌、酵母菌和中性蛋白酶。Combined fermentation included Lactobacillus reuteri, yeast and neutral protease.

同行数据肩标相同或无字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。表3表5表6表7表8同。In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as Table 3, Table 5, Table 6, Table 7 and Table 8.

2.1.2 发酵条件的优化

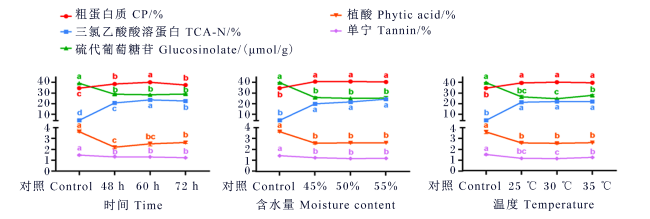
图1可知,与其他发酵时间相比,发酵60 h的饲料中的CP和TCA-N含量显著提高(P<0.05);除发酵48 h的饲料中的植酸含量显著低于发酵72 h(P<0.05)外,不同发酵时间对饲料中的抗营养因子含量的影响没有显著差异(P>0.05),因此选择发酵时间为60 h。而在不同发酵温度的处理中,养分和抗营养因子含量整体差异不大,只有发酵温度为30℃时饲料中的硫代葡萄糖苷含量和单宁含量显著低于发酵温度为35 ℃时(P<0.05),因此选择发酵温度为30 ℃。不同含水量处理之间发酵饲料各养分和抗营养因子含量无显著差异(P>0.05),含水量为55%时TCA-N含量较高,因为选择含水量为55%。综合来看,菜籽粕混合发酵的适宜条件为含水量55%、发酵温度30 ℃、发酵时间60 h,饲料厚度7~10 cm,发酵过程中不翻动饲料。
图1 不同发酵时间、温度和含水量对发酵效果的影响(干物质基础)

同一折线上的数值标注不同小写字母表示差异显著(P<0.05)。

Fig.1 Effects of different fermentation time, temperature and moisture contents on fermentation effect (DM basis) (n=3)

Values on the same fold labeled with different small letters indicated significant differences (P<0.05).

最终用于动物试验的发酵饲料发酵效果如表3所示。发酵效果与之前实验室发酵效果相差不大,有效改善了菜籽粕混合饲料的蛋白质品质,降低了其中的抗营养因子含量。结果表明,与未发酵饲料相比,发酵饲料CP含量提高了16.3%(P<0.05),TCA-N提高了332.0%(P<0.05),硫代葡萄糖苷、植酸和单宁含量分别降低了为27.2%、35.0%和21.3%(P<0.05)。
表3 菜籽粕混合发酵前后营养成分变化(干物质基础)

Table 3 Changes of nutrient composition of rapeseed meal before and after mixed fermentation (DM basis) (n=9)

项目
Items
未发酵饲料
Unfermented feed
发酵饲料
Fermented feed
SEM P
P-value
粗蛋白质CP/% 33.19±0.12b 38.59±0.27a 1.34 <0.001
三氯乙酸酸溶蛋白TCA-N/% 4.40±0.11b 19.01±0.39a 3.27 <0.001
硫代葡萄糖苷Glucosinolate/(μmol/g) 37.31±0.12a 27.17±0.99b 2.51 <0.001
植酸Phytic acid/% 3.97±0.08a 2.58±0.19b 0.38 <0.001
单宁Tannin/% 1.50±0.06a 1.18±0.07b 0.09 <0.001
表4可知,与发酵前相比,菜籽粕混合发酵后总氨基酸含量提高了14.70%,其中苏氨酸、半胱氨酸、酪氨酸、赖氨酸和组氨酸含量分别提高了10.06%、16.98%、12.16%、13.25%、17.12%;除此之外,菜籽粕混合发酵后仅谷氨酸含量有所下降,其他氨基酸含量也均有小幅提高。
表4 菜籽粕混合发酵前后氨基酸含量变化(干物质基础)

Table 4 Changes of amino acid contents of rapeseed meal before and after mixed fermentation (DM basis)%

项目
Items
未发酵饲料
Unfermented feed
发酵饲料
Fermented feed
提高率
Improvement ratio
天门冬氨酸Asp 3.02 3.18 5.30
苏氨酸Thr 1.79 1.97 10.06
丝氨酸Ser 1.21 1.27 4.96
谷氨酸Glu 5.88 5.70 -3.06
脯氨酸Pro 1.87 1.99 6.42
甘氨酸Gly 2.51 2.57 2.39
丙氨酸Ala 2.99 3.08 3.01
半胱氨酸Cys 1.06 1.24 16.98
缬氨酸Val 2.00 2.09 4.50
蛋氨酸Met 0.76 0.81 6.58
异亮氨酸Ile 1.71 1.80 5.26
亮氨酸Leu 2.94 3.12 6.12
酪氨酸Tyr 1.48 1.66 12.16
苯丙氨酸Phe 1.82 1.92 5.49
赖氨酸Lys 1.51 1.71 13.25
组氨酸His 1.11 1.30 17.12
精氨酸Arg 1.90 1.91 0.53
总氨基酸Total AA 32.51 37.29 14.70

2.2 菜籽粕混合发酵饲料对生长猪的饲喂效果

2.2.1 菜籽粕混合发酵饲料对生长猪生长性能的影响

表5可知,与RMD组相比,FRMD组生长猪ADG和ADFI均有所提高,F/G则有所降低,但差异均不显著(P>0.05)。3组之间生长性能均无显著差异(P>0.05)。
表5 菜籽粕混合发酵饲料对生长猪生长性能的影响

Table 5 Effects of rapeseed meal mixed fermented feed on growth performance of growing pigs (n=3)

项目
Items
对照组
CON group
未发酵组
RMD group
发酵组
FRMD group
SEM P
P-value
始重IBW/kg 38.47±0.40 39.53±1.48 39.37±1.72 0.39 0.600
末重FBW/kg 56.00±2.00 56.10±0.80 58.12±1.70 0.61 0.258
平均日采食量ADFI/(kg/d) 1.40±0.04 1.39±0.12 1.38±0.16 0.03 0.988
平均日增重ADG/(kg/d) 0.63±0.09 0.59±0.04 0.67±0.01 0.02 0.424
料重比F/G 2.26±0.28 2.35±0.04 2.06±0.20 0.07 0.352

2.2.2 菜籽粕混合发酵饲料对生长猪养分表观消化率的影响

表6可知,与RMD组相比,FRMD组生长猪总磷表观消化率显著提高(P<0.05),而GE、DM、钙和CP的表观消化率3组之间均无显著差异(P>0.05)。
表6 菜籽粕混合发酵饲料对生长猪养分表观消化率的影响

Table 6 Effects of rapeseed meal mixed fermented feed on nutrient apparent digestibility of growing pigs (n=3)%

项目
Items
对照组
CON group
未发酵组
RMD group
发酵组
FRMD group
SEM P
P-value
总能GE 85.33±0.88 83.51±1.33 83.70±0.41 0.40 0.107
干物质DM 86.93±1.41 84.51±2.14 84.06±0.57 0.63 0.118
钙Ca 53.30±2.41 49.10±6.81 55.91±11.90 2.52 0.609
总磷TP 49.04±2.42ab 46.32±2.25b 53.14±1.93a 1.18 0.025
粗蛋白质CP 84.84±3.01 82.98±2.05 83.46±0.35 0.67 0.567

2.2.3 菜籽粕混合发酵饲料对生长猪血清生化指标的影响

表7可知,与CON组相比,RMD组生长猪血清UN含量有所提高(P>0.05),而FRMD血清UN含量无显著差异(P>0.05)。各组间其他血清生化指标均无显著差异(P>0.05)。
表7 菜籽粕混合发酵饲料对生长猪血清生化指标的影响

Table 7 Effects of rapeseed meal mixed fermented feed on serum biochemical indices of growing pigs (n=6)

项目
Items
对照组
CON group
未发酵组
RMD group
发酵组
FRMD group
SEM P
P-value
总蛋白TP/(g/L) 66.77±7.36 71.31±6.35 73.66±7.48 2.28 0.519
尿素氮UN/(mmol/L) 4.05±0.05 4.90±0.45 4.76±0.36 0.17 0.053
钙Ca/(mmol/L) 2.70±0.09 2.76±0.11 2.92±0.19 0.05 0.227
磷P/(mmol/L) 2.94±0.13 2.51±0.52 2.86±0.38 0.13 0.387
谷草转氨酶AST/(U/L) 8.10±1.34 8.62±2.74 9.19±0.78 0.55 0.772
谷丙转氨酶ALT/(U/L) 10.60±2.20 10.94±0.83 13.30±1.80 0.65 0.191

2.2.4 菜籽粕混合发酵饲料对生长猪血清抗氧化指标的影响

表8可知,与CON组和RMD组相比,FRMD组生长猪血清GSH-Px活性显著降低(P<0.05)。各组间其他血清抗氧化指标均无显著差异(P>0.05)。
表8 菜籽粕混合发酵饲料对生长猪血清抗氧化指标的影响

Table 8 Effects of rapeseed meal mixed fermented feed on serum antioxidant indices of growing pigs (n=6)

项目
Items
对照组
CON group
未发酵组
RMD group
发酵组
FRMD group
SEM P
P-value
超氧化物歧化酶SOD/(U/mL) 126.27±5.27 114.89±19.91 123.96±4.81 3.93 0.521
丙二醛MDA/(nmol/mL) 6.65±0.17 7.00±3.94 4.18±1.28 0.82 0.355
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 156.50±1.77a 156.42±3.05a 141.19±10.36b 3.13 0.039
总抗氧化能力T-AOC/(mmol/L) 0.20±0.02 0.26±0.14 0.25±0.11 0.03 0.191

3 讨论

3.1 菜籽粕混合发酵菌株的选择和发酵条件的优化

尽管菜籽粕不如豆粕,但相较于其他低值饲料,菜籽粕蛋白质含量较高,氨基酸平衡性较好,然而因其抗营养因子种类多、含量高,且适口性不佳,严重影响了其在猪饲料上的应用[9]。因此,本试验希望通过微生物固态发酵的方式降解其含有的抗营养因子,提高其营养价值。玉米皮和麸皮的蛋白质含量较低,粗纤维含量高,直接用于饲喂动物营养价值不高,但是在固态发酵过程中可以为微生物发酵提供碳源,调节发酵原料的碳氮比,同时可以通过微生物发酵提高蛋白质含量和蛋白质品质。因此,将三者结合可以通过微生物固态发酵成为营养特性良好的发酵饲料。
根瘤菌[20-21]、黑曲霉[5,8]、枯草芽孢杆菌[22]、乳酸菌[10]和酵母菌[23]都曾被报道可以有效降解菜籽粕中的抗营养因子。在本研究中,4种微生物和1种蛋白酶被用作候选筛选对象。结果发现,酵母菌和罗伊氏乳杆菌降低了菜籽粕中的各种抗营养因子含量,提高了发酵原料的CP和TCA-N含量,而外源补充的中性蛋白酶提升发酵饲料中TCA-N含量的能力远强于其他菌种。因此,本研究选用酵母菌、罗伊氏乳杆菌和中性蛋白酶进行组合发酵,而组合发酵有效地结合了酵母菌、罗伊氏乳杆菌和中性蛋白酶各自的优点。
发酵条件也会影响饲料发酵产品质量。本研究中的最佳发酵温度为30 ℃,这可能是因为本研究中筛选出的最能有效降解硫代葡萄糖苷等抗营养因子的微生物为酵母菌,而30 ℃是酵母菌生长的理想温度。有研究报道,发酵饲料中的TCA-N含量会随着含水量的增加而增加,然而,水分含量过高则会导致发酵饲料容易结块和内部过热,不利于微生物的充分发酵[24]。此外,高含水量会使发酵饲料难以干燥,会提高后期的烘干成本。因此,本试验选择55%为最佳发酵含水量。在本研究中,笔者发现,在一定时间范围内,发酵饲料的CP含量随着发酵时间的延长而增加,但超过一定时间后又反而会降低。发酵时间为60 h时,发酵饲料的CP含量高于发酵48 h或者72 h,因此选择60 h为最佳发酵时间。
此前有研究报道,发酵后菜籽粕中的硫代葡萄糖苷被完全降解[9]。但在本研究中,经过固态发酵后,尽管菜籽粕混合物中的硫代葡萄糖苷、植酸和单宁含量都有显著降低,但都还有一定残留。造成这种差异的原因可能是发酵过程中使用的微生物不同。此外,本研究中使用的菜籽粕本身的硫代葡萄糖苷含量不高,这也可能导致了最终降解率的百分比不高。在本研究中,经过发酵后菜籽粕混合饲料中的CP和TCA-N含量均有所提高,这与之前大多数有关发酵菜籽粕的报道一致。发酵提高CP含量的原因应该是发酵过程中蔗糖和低聚糖在发酵过程中被微生物所消耗[25],导致发酵饲料中CP的相对含量增加。而TCA-N含量的提高可能是由于发酵过程中微生物分泌的蛋白酶或外源添加的蛋白酶降解了饲料中的蛋白质,产生了分子质量较小的蛋白质水解物[26]。本研究中,TCA-N含量的提高率明显高于一些研究所报道的结果[5,27-28],这可能是由于本研究在固态发酵中额外添加了中性蛋白酶,而添加外源蛋白酶可以提高微生物发酵降解大分子蛋白质的能力[29]。有研究报道,固态发酵可以提高菜籽粕中除组氨酸外的大部分氨基酸含量[16]。在本研究中,固态发酵后菜籽粕混合饲料中的大多数氨基酸的含量也有所提高。

3.2 菜籽粕混合发酵饲料对生长猪生长性能、养分表观消化率以及血清生化和抗氧化指标的影响

Shi等[5]研究表明,饲喂发酵菜籽粕的猪生长性能显著优于饲喂未发酵菜籽粕的猪。在本研究中,3个组之间生长猪生长性能未发现显著差异,这可能是由于本研究中饲喂试验仅设置了每组3个栏作为重复,导致尽管平均值有差异,但差异并不显著。
Pérez等[30]研究表明,饲粮中菜籽粕含量的增加会线性地降低生长猪对于饲粮中有机物、CP、总碳水化合物、膳食纤维和能量的表观消化率。在本研究中,FRMD组的生长猪相较于RMD组的生长猪有着更高的总磷表观消化率。这可能是因为本研究中固体发酵有效降解了菜籽粕混合饲料中的部分植酸,从而释放出饲料中更多的非植酸磷(NPP),提高了试验猪对于磷的消化率。同样,Shi等[5]研究表明,饲喂含有未发酵菜籽粕的饲粮的生长猪,其DM、CP、钙和磷的全消化道表观消化率显著低于饲喂常规玉米-豆粕型饲粮与饲喂含黑曲霉发酵菜籽粕的饲粮的生长猪。并且,扫描电镜结果显示,经由枯草芽孢杆菌或黑曲霉发酵的菜籽粕其植物细胞壁会被破坏,进而导致菜籽粕的微观形态变得不规则,出现大量孔洞[11]。因此,固态发酵可以破坏植物资源饲料原料的复杂结构,从而提高养分的消化率。
一般来说,血清UN含量降低意味着蛋白质分解减少,蛋白质沉积增加[31]。因此,血清UN含量可以反映饲料中的氨基酸平衡。当氨基酸平衡更符合动物的营养需求时,血清UN含量就会降低[32]。本试验中,RMD组生长猪血清UN含量高于CON组,而FRMD组与CON组之间没有显著差异,这表明菜籽粕混合饲料的固态发酵实质性地提高了生长猪对于饲粮中氨基酸的利用效率。硫代葡萄糖苷会对肝脏造成损害[33]。AST和ALT可反映动物肝脏的损伤程度[34]。在本研究中,3组生长猪血清AST和ALT活性并无显著差异。这可能还是因为本研究中使用的菜籽粕中的硫代葡萄糖苷含量较低,导致即使在加入未经发酵的菜籽粕混合饲料的饲粮也未能对生长猪造成显著的肝脏损伤。
菜籽粕中的抗营养因子会对动物的某些器官产生毒性作用。例如,硫代葡萄糖苷及其衍生物可对肝脏、肾脏和甲状腺造成损害,从而降低它们的功能并阻碍生长[33]。血清抗氧化指标可反映动物的防御能力和体内环境的稳定性。其中,血清MDA含量可以反映脂质的氧化程度,而SOD是一种重要的抗氧化酶[35]。在本研究中,与RMD组相比,FRMD组或CON组生长猪血清SOD活性更高而血清MDA含量更低,这表明饲喂未发酵菜籽粕混合饲料会对生长猪造成氧化应激,而饲喂发酵过的菜籽粕混合饲料则不会。因此,本研究所使用的菜籽粕混合发酵饲料对生长猪的毒性作用较小,可减少生长猪的氧化应激。
综上所述,在生长猪饲养过程中使用此菜籽粕混合发酵饲料替代部分豆粕对于缓解我国的豆粕进口压力具有一定的积极意义,而在豆粕与菜籽粕差价较大时使用此菜籽粕混合发酵饲料则可以有效降低饲料成本。

4 结论

固体发酵有效降解了菜籽粕混合饲料中的抗营养因子含量,提高了CP和大部分氨基酸的含量,从而改善了菜籽粕混合饲料的营养价值。同时,饲喂试验表明,与饲喂菜籽粕混合原料的生长猪相比,饲喂菜籽粕混合发酵饲料的生长猪的总磷表观消化率得到提高,血清抗氧化能力和氨基酸平衡均有所改善,菜籽粕混合发酵饲料可部分替代豆粕并对生长猪生长性能无不良影响。
[1]
NACZK M, AMAROWICZ R, SULLIVAN A, et al. Current research developments on polyphenolics of rapeseed/canola:a review[J]. Food Chemistry, 1998, 62(4):489-502.

DOI

[2]
KHAJALI F, SLOMINSKI B A. Factors that affect the nutritive value of canola meal for poultry[J]. Poultry Science, 2012, 91(10):2564-2575.

PMID

[3]
SAUVANT D, PEREZ J M, TRAN G. Tables of composition and nutritional value of feed materials:pigs,poultry,cattle,sheep,goats,rabbits,horses and fish[M].Translated by Ponter A.Wageningen, The Netherlands: Wageningen Academic Publishers, 2004.

[4]
CHIANG G, LU W Q, PIAO X S, et al. Effects of feeding solid-state fermented rapeseed meal on performance,nutrient digestibility,intestinal ecology and intestinal morphology of broiler chickens[J]. Asian-Australasian Journal of Animal Sciences, 2010, 23(2):263-271.

DOI

[5]
SHI C Y, HE J, WANG J P, et al. Effects of Aspergillus niger fermented rapeseed meal on nutrient digestibility,growth performance and serum parameters in growing pigs[J]. Animal Science Journal, 2016, 87(4):557-563.

DOI

[6]
HU Y N, WANG Y W, LI A K, et al. Effects of fermented rapeseed meal on antioxidant functions,serum biochemical parameters and intestinal morphology in broilers[J]. Food and Agricultural Immunology, 2016, 27(2):182-193.

DOI

[7]
SMITS J P, KNOL W, BOL J. Glucosinolate degradation by Aspergillus clavatus and Fusarium oxysporum in liquid and solid-state fermentation[J]. Applied Microbiology and Biotechnology, 1993, 38(5):696-701.

[8]
EL-BATAL A I, ABDEL KAREM H. Phytase production and phytic acid reduction in rapeseed meal by Aspergillus niger during solid state fermentation[J]. Food Research International, 2001, 34(8):715-720.

DOI

[9]
RAKARIYATHAM N, SAKORN P. Biodegradation of glucosinolates in brown mustard seed meal (Brassica juncea) by Aspergillus sp. NR-4201 in liquid and solid-state cultures[J]. Biodegradation, 2002, 13(6):395-399.

DOI

[10]
ALJUOBORI A, ABDULLAH N, ZULKIFLI I, et al. Lactobacillus salivarius fermentation reduced glucosinolate and fibre in canola meal[J]. Journal of Food Research, 2014, 3(5):95-102.

DOI

[11]
SHI C, ZHANG Y, YIN Y, et al. Amino acid and phosphorus digestibility of fermented corn-soybean meal mixed feed with Bacillus subtilis and Enterococcus faecium fed to pigs[J]. Journal of Animal Science, 2017, 95(9):3996-4004.

[12]
YUNUS F N, NADEEM M, RASHID F. Single-cell protein production through microbial conversion of lignocellulosic residue (wheat bran) for animal feed[J]. Journal of the Institute of Brewing, 2015, 121(4):553-557.

DOI

[13]
SHI C Y, ZHANG Y, LU Z Q, et al. Solid-state fermentation of corn-soybean meal mixed feed with Bacillus subtilis and Enterococcus faecium for degrading antinutritional factors and enhancing nutritional value[J]. Journal of Animal Science and Biotechnology, 2017, 8:50.

DOI

[14]
SONG Y S, FRIAS J, MARTINEZ-VILLALUENGA C, et al. Immunoreactivity reduction of soybean meal by fermentation,effect on amino acid composition and antigenicity of commercial soy products[J]. Food Chemistry, 2008, 108(2):571-581.

DOI

[15]
ALLAILY TARMAN A T, NAHROWI RAMLI N R, RIDLA M R M, et al. Effects of organic acids on Salmonella enteritidis growth inhibition and ileum surface area in laying ducks fed anaerobically fermented feed[J]. International Journal of Poultry Science, 2017, 16(3):98-104.

DOI

[16]
SHI C Y, HE J, YU J, et al. Solid state fermentation of rapeseed cake with Aspergillus niger for degrading glucosinolates and upgrading nutritional value[J]. Journal of Animal Science and Biotechnology, 2015, 6(1):13.

DOI

[17]
王宁惠. 油菜籽(饼粕)中硫代葡萄糖甙总量速测方法-氯化钯法[J]. 青海农林科技, 2009(3):58-59.

WANG N H. A quantitative analysis method of glucosinolates in rapeseed meal[J]. Science and Technology of Qinghai Agriculture and Forestry, 2009(3):58-59. (in Chinese)

[18]
潘娟, 商军, 黄士新. 钨酸钠-磷钼酸比色分光光度法测定饲料中的单宁[J]. 饲料工业, 2012, 33(7):51-55.

PAN J, SHANG J, HUANG S X. Determination of tannin in feed using spectrophotometric method with sodium tungstate-phosphomolybdic acid[J]. Feed Industry, 2012, 33(7):51-55. (in Chinese)

[19]
王国蓉, 万文贵, 王丽, 等. 三氯化铁滴定法测定植酸含量方法的优化及改进研究[J]. 食品科学, 2009, 30(10):188-190.

DOI

WANG G R, WAN W G, WANG L, et al. Optimization of ultrasonic-assisted extraction conditions for determination of phytic acid in wheat bran by FeCl3 titration method[J]. Food Science, 2009, 30(10):188-190. (in Chinese)

DOI

[20]
ROZAN P, VILLAUM C, BAU H M, et al. Detoxication of rapeseed meal by Rhizopus Oligosporus sp-T3:a first step towards rapeseed protein concentrate[J]. International Journal of Food Science & Technology, 1996, 31(1):85-90.

[21]
VIG A P, WALIA A. Beneficial effects of Rhizopus oligosporus fermentation on reduction of glucosinolates,fibre and phytic acid in rapeseed (Brassica napus) meal[J]. Bioresource Technology, 2001, 78(3):309-312.

DOI

[22]
HE R, JU X R, YUAN J, et al. Antioxidant activities of rapeseed peptides produced by solid state fermentation[J]. Food Research International, 2012, 49(1):432-438.

DOI

[23]
DOSSOU S, KOSHIO S, ISHIKAWA M, et al. Effect of partial replacement of fish meal by fermented rapeseed meal on growth,immune response and oxidative condition of Red Sea bream juvenile,Pagrus major[J]. Aquaculture, 2018, 490:228-235.

DOI

[24]
WENG X Y, SUN J Y. Biodegradation of free gossypol by a new strain of Candida tropicalis under solid state fermentation:effects of fermentation parameters[J]. Process Biochemistry, 2006, 41(7):1663-1668.

DOI

[25]
ROJAS O J, STEIN H H. Concentration of digestible,metabolizable,and net energy and digestibility of energy and nutrients in fermented soybean meal,conventional soybean meal,and fish meal fed to weanling pigs[J]. Journal of Animal Science, 2013, 91(9):4397-4405.

DOI

[26]
UÇKUN KIRAN E, SALAKKAM A, TRZCINSKI A P, et al. Enhancing the value of nitrogen from rapeseed meal for microbial oil production[J]. Enzyme and Microbial Technology, 2012, 50(6/7):337-342.

DOI

[27]
XU F Z, ZENG X G, DING X L. Effects of replacing soybean meal with fermented rapeseed meal on performance,serum biochemical variables and intestinal morphology of broilers[J]. Asian-Australasian Journal of Animal Sciences, 2012, 25(12):1734-1741.

DOI

[28]
ASHAYERIZADEH A, DASTAR B, SHAMS SHARGH M, et al. Fermented rapeseed meal is effective in controlling Salmonella enterica serovar Typhimurium infection and improving growth performance in broiler chicks[J]. Veterinary Microbiology, 2017, 201:93-102.

DOI

[29]
胡瑞, 陈艳, 王之盛, 等. 复合益生菌发酵豆粕生产工艺参数的优化及酶菌联合发酵对豆粕品质的影响[J]. 动物营养学报, 2013, 25(8):1896-1903.

DOI

HU R, CHEN Y, WANG Z S, et al. Optimization of process parameters of probiotics-fermented soybean meal and effects of coordination action between compound probiotics and enzyme on fermentation quality[J]. Chinese Journal of Animal Nutrition, 2013, 25(8):1896-1903. (in Chinese)

[30]
PÉREZ DE NANCLARES M, MARCUSSEN C, TAUSON A H, et al. Increasing levels of rapeseed expeller meal in diets for pigs:effects on protein and energy metabolism[J]. Animal, 2019, 13(2):273-282.

DOI

[31]
FENG J, LIU X, XU Z R, et al. Effects of Aspergillus oryzae 3.042 fermented soybean meal on growth performance and plasma biochemical parameters in broilers[J]. Animal Feed Science and Technology, 2007, 134(3/4):235-242.

DOI

[32]
HEITZMAN R J, CHAN K H. Alterations in weight gain and levels of plasma metabolites,proteins,insulin and free fatty acids following implantation of an anabolic steroid in heifers[J]. The British Veterinary Journal, 1974, 130(6):532-537.

DOI

[33]
BELL J M. Factors affecting the nutritional value of canola meal:a review[J]. Canadian Journal of Animal Science, 1993, 73(4):689-697.

DOI

[34]
GIANNINI E, BOTTA F, FASOLI A, et al. Progressive liver functional impairment is associated with an increase in AST/ALT ratio[J]. Digestive Diseases and Sciences, 1999, 44(6):1249-1253.

DOI PMID

[35]
DUAN J L, YIN J, REN W K, et al. Dietary supplementation with L-glutamate and L-aspartate alleviates oxidative stress in weaned piglets challenged with hydrogen peroxide[J]. Amino Acids, 2016, 48(1):53-64.

DOI

文章导航

/