综述

动物肠道血管屏障功能及调节研究进展

  • 聂兴宇 , 1, 2 ,
  • 冯露雅 1, 2 ,
  • 王婧 1, 2 ,
  • 谭碧娥 , 1, 2, *
展开
  • 1 湖南农业大学动物科学技术学院,畜禽产品品质调控湖南省重点实验室,长沙 410128
  • 2 岳麓山实验室,长沙 410128
* 谭碧娥,教授,博士生导师,E-mail:

聂兴宇(1999—),女,湖南娄底人,硕士研究生,从事猪营养研究。E-mail:

Copy editor: 田艳明

收稿日期: 2023-07-10

  网络出版日期: 2024-01-12

基金资助

国家自然科学基金项目(32072745)

国家生猪产业技术体系(CARS-35)

Research Progress on Function and Regulation of Gut Vascular Barrier in Animals

  • NIE Xingyu , 1, 2 ,
  • FENG Luya 1, 2 ,
  • WANG Jing 1, 2 ,
  • TAN Bi’e , 1, 2, *
Expand
  • 1 Key Laboratory for Quality Regulation of Livestock and Poultry Products of Hunan Province, College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
  • 2 Yuelushan Laboratory, Changsha 410128, China
* professor, E-mail:

Received date: 2023-07-10

  Online published: 2024-01-12

摘要

肠道血管屏障(GVB)是一种位于肠上皮层下方的解剖结构,由紧密相互作用的内皮细胞、肠神经胶质细胞和周细胞组成,是防止大分子和细菌从肠腔转移到体循环的最后一道防线。GVB被认为是肠道屏障的必需组分,也是肠-肝-脑轴上重要的枢纽,其功能障碍会导致许多肠道和肠外疾病的发生。引起GVB功能障碍的重要原因之一是肠道菌群的失调。因为肠道菌群会通过分泌细菌素或短链脂肪酸等代谢产物,从而参与调节Wnt/β-连环蛋白(β-catenin)、载脂蛋白M(ApoM)/鞘氨醇-1-磷酸(S1P)和血管内皮生长因子A(VEGFA)/一氧化氮(NO)等信号途径,引起血管内皮细胞间紧密连接蛋白[如封闭蛋白(claudin)]和黏附连接蛋白[如血管内皮钙黏蛋白(VE-cadherin)]表达下降以及质膜囊泡相关蛋白1表达升高。高脂饮食和过糖化饮食会诱导肠道菌群紊乱,破坏GVB,这一过程可由含黄酮或生物碱的物质缓解。本文综述了GVB的组成和分子基础及其调节机制,阐明了肠道菌群尤其是病原菌影响GVB功能的机制,并阐述了GVB功能的营养调控,旨在为肠道屏障功能调控提供参考。

本文引用格式

聂兴宇 , 冯露雅 , 王婧 , 谭碧娥 . 动物肠道血管屏障功能及调节研究进展[J]. 动物营养学报, 2024 , 36(1) : 64 -73 . DOI: 10.12418/CJAN2024.007

Abstract

The gut vascular barrier (GVB) is an anatomical structure below the intestinal upper cortex that consists of tightly interacting endothelial cells, intestinal glial cells and pericytes, and is the last line of defense against the transfer of macromolecules and bacteria from the intestinal lumen to the systemic circulation. GVB is considered to be an essential component of the intestinal barrier and an important hub on the gut-liver-brain axis, and its dysfunction leads to many intestinal and parenteral diseases. One of the important causes of GVB dysfunction is the imbalance of intestinal flora. Because intestinal flora is involved in regulating signaling pathways such as Wnt/β-catenin, apolipoprotein M (ApoM)/sphingosin-1-phosphate (S1P), and vascular endothelial growth factor A (VEGFA)/nitric oxide (NO) by secreting metabolites such as bacteriocin or short-chain fatty acids, and resulting in the protein expression of tight junction proteins such as claudin and adhesion junction proteins such as vascular endothelial cadherin (VE-cadherin) between vascular endothelial cells decreased and the expression of plasma membrane vesicle-associated protein-1 increased. High-fat and hyper-glycated diets induce disruption of the intestinal flora and destroy GVB, a process that can be mitigated by substances containing flavonoids or alkaloids. In this paper, the composition, molecular basis and regulatory mechanism of GVB were reviewed, the mechanism of intestinal flora, especially pathogenic bacteria, affecting GVB function was elucidated, and the nutritional regulation of GVB function was expounded, so as to provide reference for the regulation of intestinal barrier function.

肠道黏膜屏障是维持机体内环境稳定的重要屏障,其将机体与外部环境分开,保护机体免受环境威胁和病原菌的侵害。肠道屏障包括机械屏障、化学屏障、生物屏障和免疫屏障,正常情况下肠道屏障功能是动态稳衡的。肠道屏障功能的维持需要特殊免疫细胞、上皮细胞、内皮细胞以及辅助细胞(如肠神经胶质细胞和周细胞)共同作用,其结构失衡可引起肠道微环境的免疫反应,或使病原菌大量生长和渗漏,从而引起各种疾病。
肠上皮屏障是一种半透性屏障,由覆盖整个黏膜的单层肠细胞形成[1]。此外,特化的肠细胞也限制了细菌的入侵,如产生黏液的杯状细胞和分泌抗菌肽的潘氏细胞[2],如同肠上皮屏障选择性地调节进入宿主组织的物质一样,肠道血管系统也必须高度选择性地控制进入循环系统的物质[3]。在2015年,Spadoni等[4]提出了一种新的肠道屏障结构——肠道血管屏障(gut vascular barrier,GVB)。GVB是肠道屏障的重要组成部分,与肠上皮屏障一起,保证了体循环中肠道微生物群的物理排除[5]。肠道的稳定关乎动物的健康,GVB的发现,揭开了深一层的肠道及肠外组织的病理发生原理。因此,本文综述了近年来在动物模型中研究GVB取得的一些进展,并进一步研究调控GVB的物质,为保障GVB稳定、结构和功能的完整性与健康发育提供新的思路。

1 GVB的组成和分子基础

1.1 GVB的细胞组成

GVB主要由肠道微血管内皮细胞(intestinal microvascular endothelial cells,IMVECs)组成,周围附着少量成纤维细胞、肠神经胶质细胞和周细胞,构成一个血管单位,它们与固有层的免疫细胞作用密切,允许肠道物质选择性进入血液循环,从而实现对食物抗原和微生物群的阻隔。IMVECs分布于肠道黏膜内的微血管内层,位于血液和间质组织的交界处,呈网囊状,紧接上皮细胞层,细胞间通过连接复合物进行信息通讯[6]。成纤维细胞为多突的纺锤形或星形的扁平细胞,轮廓不清。肠神经胶质细胞在肠道中形成了一个巨大的细胞网络,广泛分布于肠黏膜。周细胞被基底膜包围,沿着并围绕血管延伸突起,包括周向突起、纵向突起或者星形突起,是一类个体独立的细胞,存在多种形态[8]

1.2 GVB的分子基础

内皮细胞在大脑中形成了一个稳定且具有高度选择性的血管组织屏障,以防止中枢神经系统感染毒素;然而在肠道等其他器官,为了利于物质的分泌与吸收,相对来说内皮屏障的管控并没有那么严格。但是,为了维持肠道的稳定和保持GVB结构和功能的完整性,内皮细胞间通过细胞膜形成连接,以连接复合物作为桥梁,完成细胞旁信号通路的构建。连接复合物在结构上相对较复杂,由紧密连接(tight junction,TJ)和黏附连接(adhesion junction,AJ)组成,能严格控制腔内物质的胞外运输[9]。TJ控制上皮间运输和黏膜通透性,由跨膜蛋白闭合蛋白(occludin)和封闭蛋白(claudin)以及胞浆蛋白闭锁小带蛋白-1(zonula occludens-1,ZO-1)等构成;而AJ由血管内皮钙黏蛋白(vascular endothelial cadherin,VE-cadherin)和β-连环蛋白(β-catenin)组成[5](图1)。
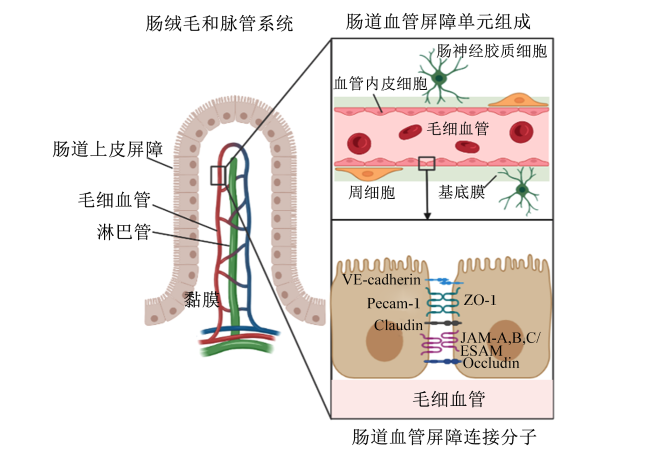
图1 GVB的细胞和分子组成

VE-cadherin:血管内皮钙黏蛋白 vascular endothelial cadherin;ZO-1:闭锁小带蛋白-1 zonula occludens-1;Claudin:封闭蛋白;Pecam-1:血小板内皮细胞黏附分子-1 platelet endothelial cell adhesion molecule-1;JAM-A,B,C:连接黏附分子-A,B,C junctional adhesion molecule-A,B,C;ESAM:内皮细胞选择性黏附分子 endothelial selective adhesion molecule;Occludin:闭合蛋白。

Fig.1 Cell and molecular composition of GVB[5]

跨膜蛋白claudin是TJ里调节细胞旁通透性的关键组成部分,它的功能严格依赖其结构和翻译后修饰。通过利用在C端形成的短胞质域和长结构域与细胞质中的支架蛋白相互作用[10],可以间接将claudin连接到肌动蛋白细胞骨架上并调节claudin功能。过程的发生取决于claudin C端末端包含2个多肽的疏水基序,或者通过磷酸化与泛素化等翻译后修饰手段,控制屏障功能,而能够被修饰的claudin主要有claudin-1/-2/-4/-5/-16[11]。claudin有通道形成和封闭的作用,通道形成可以控制细胞旁途径对离子、溶质和微生物的渗透性,以防止其无限穿过细胞膜,而封闭作用可以维护血管屏障的完整性[12]。一旦敲除claudin-1和claudin-5,机体将无法继续存活[13]。claudin种类与内皮屏障所表达的各项功能相关,研究证实claudin不同表达模式与GVB渗透性变化有关。内皮细胞屏障的改变独立于肠上皮屏障,通常与病原体和免疫激活有关,也与紧密连接蛋白的改变息息相关,如果claudin失调或定位错误会导致某些病理状况的发生。在小鼠炎症性肠病的进展中,claudin-2表达上调,而claudin-2是肠道炎症过程中肠道屏障渗漏的中介物[14]。22例临床慢性肠假梗阻患者空肠内皮紧密连接蛋白缺失,并伴随着claudin-4的上调,导致神经胶质细胞被激活,提示血管屏障受损[15]
随着对GVB的深入了解,一种存在于全身有孔毛细血管和跨内皮通道的质膜囊泡相关蛋白-1(plasmalemma vesicle-associated protein-1,PV-1)被发现[4]。PV-1由质膜囊泡相关蛋白(PLVAP)基因编码,在生理条件下,PV-1低水平表达,此时屏障功能正常,物质可在血液和组织中进行正常交换。在小鼠模型中,沙门氏菌入侵会释放信号导致上皮和GVB的破坏,引起紧密连接蛋白和黏附连接蛋白表达量降低,细胞间连接能力下降,PLVAP基因表达上调,从而导致血管内皮通透性增加,大分子渗出血管壁,细菌则借助血管内皮的高通透性由肠道进入血液,进而进入体循环,进行全身性传播[16]。因此PV-1可作为内皮渗漏的标志之一,以评估GVB是否完整。

2 GVB的功能及调节机制

2.1 GVB的功能

IMVECs通过产生多种细胞因子和生物活性物质,调节各级信号通路,抑制肠内毒素等有害物质入血[17]。肠神经胶质细胞和周细胞共同参与肠道屏障的发育。肠神经胶质细胞发送和接收来自肠神经元和上皮细胞的信号,通过释放可溶性因子(如S-亚硝基谷胱甘肽)来支持屏障功能,因为S-亚硝基谷胱甘肽可恢复因缺乏肠神经胶质细胞导致的屏障损伤[7]。一旦切除成年小鼠空肠和回肠神经胶质细胞,会立即引起肠道大面积病理改变,因此肠神经胶质细胞在维持肠道完整性方面起着关键作用[18]。肠神经胶质细胞可加速受损脊髓部位血管系统的修复[19]。目前,已经有研究证实,周细胞对血脑屏障血管的稳定是必要的。周细胞覆盖率决定了血管相对通透性,当周细胞存在并且数量丰富时,内皮细胞间间隙变小,血管渗漏情况减少。周细胞在发育早期被内皮细胞分泌的血小板衍生性生长因子-β招募至血液,导致转化生长因子-β(transforming growth factor-β,TGF-β)激活,达到稳定血管的作用。GVB具有与血脑屏障相似的形态及功能特征,因此可以合理推测周细胞对GVB有相同的作用。但肠神经胶质细胞和周细胞在GVB中的确切作用及途径还有待深入研究。被囊括在成纤维细胞范围内的绒毛顶端端细胞是一种新发现的血管周围细胞,具有转录和代谢活性,它可以通过蛋白酶ADAM金属肽酶含血小板反应蛋白1基元18(ADAM metallopeptidase with thrombospondin type 1 motif 18,ADAMTS18)依赖的纤维连接蛋白降解来限制血管内皮生长因子A(vascular endothelial growth factor A,VEGFA)的积累[20]。当机体受到不可控因素的破坏时,除了GVB的屏障作用,还有肠道免疫细胞发挥免疫调节作用。病菌入体时,白细胞通过变形穿过IMVECs间隙,集中到病菌作用部位,分泌细胞因子来增加内皮细胞趋化因子受体和整合素的表达,从而促进免疫细胞外渗到固有层。在组织中,免疫细胞遇到增强效应的细胞因子和病原体衍生的产物,这些物质放大炎症反应,免疫细胞通过体液免疫或细胞免疫解决入侵的病原体[3]。免疫系统对血管有重要作用,免疫细胞可以在特殊生理期间维持血管完整性。
总得来说,GVB作为从肠道通向机体各器官的最后一道关口,在避免外界病原体进入血液并在全身传播中发挥了重要的作用。

2.2 GVB的调节机制

Wnt/β-catenin通路参与调控GVB,该通路的激活有助于维持GVB的功能。Wnt为分泌型糖蛋白,于体外启动后通过配体与细胞表面受体特异性结合,引起下游蛋白的活化,激活细胞内转录或非转录反应[21],从而导致β-catenin积累,而β-catenin参与黏附连接蛋白的形成,提示该通路可以维持内皮稳定。
载脂蛋白M(apolipoprotein M,ApoM)/鞘氨醇-1-磷酸(sphingosin-1-phosphate,S1P)信号通路参与维持内皮细胞屏障,不表达ApoM的小鼠血管渗漏增加[22]。ApoM大量存在于血液,主要与高密度脂蛋白结合,其结构特有疏水性信号肽,可结合S1P等的小生物活性脂,再与相对应的S1P的5种G蛋白偶联受体作用。S1P共有R1~R5这5种受体,每种受体可发挥不同的生理效应。S1P与位于肠道血管系统的S1PR1结合,若缺失S1PR1,极易导致血管异常增殖。S1PR1的作用,即抑制异位血管分支的生成,增强细胞间黏附作用,从而维持血管的稳定。该功能与VEGFA诱导的信号通路及VE-cadherin在内皮连接处的定位相关[23]。此外,S1PR1在IMVECs和树突状细胞中表达,且在IMVECs中表达信号最强[24]。用盲肠结扎穿刺法处理小鼠会诱导脓毒症,而脓毒症会导致肝脏磷酸烯醇式丙酮酸羧激酶和Toll样受体4(Toll-like receptor 4,TLR4)mRNA的过表达。TLR4介导促炎因子生成并诱导糖异生过程,使得血清内毒素和血糖水平显著升高,从而抑制肝脏中ApoM mRNA的表达量,降低血浆中ApoM水平,进而阻止ApoM/S1P信号通路的激活,扰乱GVB功能,导致细菌及其衍生物渗出毛细血管壁进入组织[4,25]
研究表明,通过转录组测序得到肠血管紊乱时IMVECs的基因表达图谱,提出了2条能调节GVB的信号通路:音猬因子(sonic hedgehog,SHH)信号通路和内皮细胞向间充质细胞转化(endothelial to mesenchymal transition,EndoMT)信号通路[26]。SHH信号通路更多地参与血脑屏障的调节,在肠道中可以控制绒毛发育。另有研究表明,IMVECs中的SHH信号失活会导致紧密连接蛋白表达的减少和血浆蛋白的高渗漏,提示血管通透性增加[26]。小鼠机体被感染后,IMVECs刺激血管生成和参与EndoMT过程的基因上调。具体来说,驱动EndoMT的转录因子——蜗牛家族转录抑制因子-2(Snail-2)和间充质细胞特征基因肌动蛋白α2(ACTA2)的表达均升高,说明IMVECs向间充质细胞转变增多,细胞连接能力下降,内皮标志物减少,可能导致血管通透性增加,GVB遭到破坏[27]。由此可见,EndoMT表型转换被定义为炎症刺激时内皮功能障碍的标志。
一氧化氮(nitric oxide,NO)是体内传递细胞内及细胞间信息的分子,可以作为免疫分子和炎症递质参与机体众多反应途径,具有舒张血管作用[28]。调控NO合成的酶仅有1种,起主要作用的是诱导型一氧化氮合酶(inducible nitric oxide synthase,iNOS)和内皮型一氧化氮合酶(endothelial nitric oxide synthase,eNOS)[29]。VEGFA参与血管形成,也作为介质诱导NO产生。当炎症介质开始产生,机体会立即作出反应,刺激血管反应和白细胞反应。免疫细胞分泌血管内皮生长因子(vascular endothelial growth factor,VEGF)激活IMVECs产生血小板内皮细胞黏附分子-1(platelet endothelial cell adhesion molecule-1,Pecam-1),Pecam-1可加速血管内皮细胞间连接的松动,促进血管生成[30]。白细胞运输和迁移也需要依赖Pecam-1才能迅速到达损伤部位清除炎症介质。VEGFA能促进iNOS的积累,从而诱导产生大量的NO加重肠道炎症,并刺激异位血管的产生;但是eNOS能抑制VEGFA对iNOS的诱导,减少血管渗漏和血管生成,减轻肠道炎症[29]。所以VEGFA/NO信号途径可以调节受损肠道的复原。此外,TGF-β可以对VEGF起调节作用,TGF-β本身不参与血管形成过程,但VEGF存在的情况下,相对低浓度的TGF-β就可以起到双倍效应。

3 肠道菌群对GVB功能的影响

3.1 生理条件下肠道菌群对GVB的影响

在健康个体中,肠道菌群不能进入肝脏、脾脏或其他外周组织[31]。肠道菌群可以影响GVB的发育,肠道菌群激活IMVECs和间充质细胞,依靠Toll样受体(Toll-like receptor,TLR)等途径调节血管生成反应,同时也刺激肠黏膜中神经胶质细胞的定植和发育[32],促进肠神经回路稳态。相较无菌肠道,正常菌群定植的肠道组织中有更高的血管标志物Pecam-1水平和血管生成素1基因表达。肠道菌群会激活组织因子-蛋白酶激活受体-1信号通路,诱导凝血和血管重建[33]。肠道中的双歧杆菌、鼠李糖乳杆菌、保加利亚菌、植物乳杆菌和乳酸杆菌等有益菌参与调节免疫系统和改善GVB功能。有益菌发挥功能的方式通常是抑制促炎细胞因子的产生以及增加紧密连接蛋白的表达。植物乳杆菌可以增强体内TJ复合物的稳定性,并可能减弱细胞因子、毒素和病原体对TJ复合物的破坏[34]。双歧杆菌不仅能够降低脂多糖(lipopolysaccharide,LPS)刺激下白细胞介素-6(interleukin-6,IL-6)和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)的产生,还能够抑制偶联蛋白的表达,而偶联蛋白则能分解紧密连接蛋白[35]。鼠李糖乳杆菌GG可减少肠道炎症,增强屏障的稳定性,其菌株NPSRQERR和PDENK对肠炎沙门氏菌、金黄色葡萄球菌等具有抗菌作用[36]。嗜酸乳杆菌和嗜热链球菌的益生菌菌株能保护细胞免受大肠杆菌的损伤(图2)。
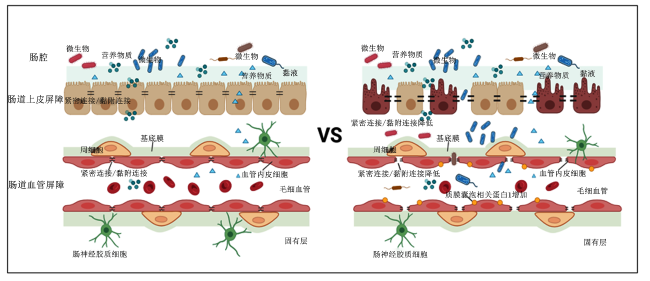
图2 肠道菌群正常和失调状态下的GVB

Fig.2 GVB under normal or dysregulated states of gut microbiota[31]

肠道内大多数微生物都有能力在复杂和艰难的环境下分泌细菌素,已知细菌素是核糖体合成的带正电荷且疏水的多肽,具有抗菌活性[37]。微生物通过产生细菌素,与其他微生物争夺营养,肠道微生物产生的细菌素肽链更短,且主要由赖氨酸和蛋氨酸组成。细菌素的产生会受到微生物活性的影响,而微生物活性由温度、营养物质和pH等因素控制。肠道黏液层的保护作用和细胞分泌的蛋白酶是细菌素在肠内产生的两大阻力,黏液层结合多肽,蛋白酶降解多肽。所以细菌素穿越GVB可能的方式在于细菌必须通过不断地分泌细菌素来克服这些阻力,以量取胜。如果在GVB的附近产生细菌素,就可以尽量避免与黏液层接触,减少细菌素的损失。结合以上条件,细菌素更有可能在蛋白酶水平较低的结肠中存活[38]。目前,仅已知Toll样受体5(Toll-like receptor 5,TLR5)、C型凝集素受体能负责识别细菌素。Spadoni等[4]认为,细菌素的大小足以穿过GVB。细菌素通过细胞旁运输,较大细胞素或细菌毒素则通过细胞胞吞作用通过GVB[39]

3.2 病理条件下肠道菌群对GVB的影响

胃肠道炎症或感染,以及抗生素的使用均会导致微生物群的失调(图2)。小肠内细菌过度生长可损害肠黏膜的屏障功能,肠道屏障的破坏可导致菌群成分在体内的易位,诱发全身性的炎症反应[31]。鼠伤寒沙门氏菌的侵略会抑制Wnt/β-catenin通路的激活,通路抑制表现在β-catenin的诱导基因轴抑制蛋白-2(Axin-2)的表达急剧降低,增加血管内皮细胞通透性,从而使得细菌向胆囊扩散。沙门氏菌在肠道的易位能力就取决于其阻断血管内皮细胞Wnt/β-catenin信号通路的能力[4]。当沙门氏菌无法穿透GVB时,与之结构功能相似的菌群会辅助增加β-catenin信号水平,促进沙门氏菌的扩散。用革兰氏阴性菌的LPS皮下刺激小鼠,会导致肠道微血管病变,造成腹泻等症状;肠道微血管病变反映在血管层变薄,内皮细胞连接能力减弱。LPS不仅显著增加了内皮细胞对荧光素异硫氰酸酯-葡聚糖的通透性,而且还降低了跨内皮细胞的电渗透性,破坏肠道血管完整性[40]。肠球菌分泌的溶菌素容易和血细胞等带负电荷的分子结合,降低血细胞等的利用度,表现出细胞毒性[41]。经大肠杆菌热敏肠毒素处理,猪小肠黏膜IMVECs活力有较明显的降低,促炎细胞因子如内皮素1、白细胞介素-1β(interleukin-1β,IL-1β)等水平显著升高[42]。有更多的研究证实,肠道IMVECs的不稳定状态是促炎细胞因子或内毒素对其进行攻击的主要原因,同时提示肠道IMVECs的损害是多种疾病发生发展的基础。

4 GVB在肠-肝-脑轴中的作用

肝脏靠近胃肠道,微生物通过门静脉的传递影响肝脏功能,肝脏功能异常往往伴随着肠道菌群的变化。肠道受损后内毒素诱导巨噬细胞释放促炎细胞因子,激活炎症反应,并通过病原体/微生物相关分子模式传播到肝脏甚至大脑[43]。有研究表明,GVB被完全破坏后,肝脏在一定程度上也可以发挥肝血管屏障功能,抵挡一部分肠道菌群的入侵,这一过程的实现依赖排列在肝窦的Kupffer细胞[44]。有证据表明,胆汁酸对肠道微生物群和肠道屏障功能均有重要影响。腔内缺乏胆汁酸提示小肠丧失屏障防御机制,细菌过度生长繁殖,大量进入门静脉循环,从而抵达肠-肝轴并进一步扩散到全身[45]。外源性奥贝胆酸(obeticholic acid,OCA)是一种胆汁酸类似物,也可作为法尼醇X受体(Farnesoid X receptor,FXR)的激动剂,而FXR是一种表达于肝脏和肠道的胆汁酸活化核受体,不仅可以调节胆汁酸分泌,还可以防止肠道菌群易位[46]。OCA激活FXR可促进血管内皮细胞中β-catenin的激活,抑制小鼠肠黏膜促炎细胞因子的产生[47],缓解肠道炎症症状,改善血管屏障功能。肠道菌群摄取膳食中的胆碱或肉碱,将其转化成三甲胺,通过肠-肝轴转移到肝脏,再与肝脏中的黄素单加氧酶反应生成氧化三甲胺(trimethylamine oxide,TMAO)[48],高水平的TMAO是肝脏功能受损的标志之一。肠道病理性紊乱后,肠道菌群分泌代谢物芳香烃受体(aromatic hydrocarbon receptor,AhR)与肠道天然的AhR配体相互作用,可以抑制炎症通路的活跃[49],积极阻止有害菌群在肠-肝轴上的扩散。
随着对肠-肝轴的研究越来越多,肠道和肝脏的相互作用途径以及分子机制也逐渐清楚。但是,也有不少研究证明大脑参与了肠-肝轴的建设,沿肠-肝-脑轴的血管屏障存在功能联系,无菌培养小鼠可观察到血脑屏障受损,但给无菌小鼠进行粪菌移植后,血脑屏障功能得到了修复[50]。结合以往研究结果,可以说肠道菌群既可以作为炎症的来源,又可以作为修复血脑屏障的重要手段。肠道和大脑在神经、内分泌和免疫水平上的双向信号受到肠道菌群的调节。下丘脑-垂体-肾上腺轴能否正常发育也与肠道菌群相关[51]。5-羟色胺是贯穿肠-脑轴的一类信号分子[52],直接调节肠道通透性。肠道微生物群通过犬嘌呤途径对色氨酸及其代谢的影响可能与多种肠道和神经系统疾病有关,如帕金森病和阿尔茨海默病[53]。肝性脑病是一种晚期肝病患者体内肠源性神经毒素系统性积聚引起的神经精神综合征,该病的存在证明了肠道菌群和肝性脑病之间有很强的联系。在病理条件下,肠道菌群代谢物如短链脂肪酸(short-chain fatty acids,SCFAs)和肽聚糖一旦避开血管屏障进入体循环,最终都将会让病原体转移到大脑,从而引起神经炎症[31]。迷走感觉传入神经和交感神经都能直接或间接地感知肠道微环境,并通过免疫调节促进肠道内环境稳定[54]

5 GVB的营养素调控

有关GVB的营养素调控研究甚少,已有的研究证实,类黄酮和生物碱等可以影响GVB功能。小檗碱是存在于黄连等中草药植物根茎、树皮中的异喹啉类生物碱,影响细胞代谢,抑制细菌毒素,具有抗炎抗菌的生理特点[55]。小檗碱通过降低IMVECs通透性及血清内毒素水平,增加β-catenin、claudin-12和VE-cadherin蛋白表达,提高跨内皮电阻值(其值降低是提示血管屏障功能障碍的敏感指标),激活Wnt/β-catenin信号通路,改善GVB功能[56]。柚皮苷是柑橘类植物中常见的多甲氧基类黄酮,已被证实能改善TNF-α诱导的体外GVB破坏。当TNF-α处理体外大鼠IMVECs建立的肠道内皮屏障时,会显著促进IMVECs凋亡,降低健康细胞率,而柚皮苷可以阻止TNF-α诱导的内皮间紧密连接表达的减少和细胞凋亡,促进内皮屏障破坏的修复[57]。另一种类黄酮山奈酚对GVB也表现出积极有益的作用。VEGF诱导血管生成和微血管通透性增加的重要信号分子是VEGFR2和蛋白激酶B(Akt)[58],山奈酚通过抑制VEGF/Akt/p38及下游效应因子,缓解LPS或TNF-α引起的GVB紊乱。山奈酚能够缓解由LPS或TNF-α诱导的GVB损伤及异常血管生成,但山奈酚作用于GVB的具体位点有待更深一步的研究。
高脂饲粮诱导的肠道菌群失调也会导致GVB的损伤。将高脂饲粮饲喂的小鼠粪便微生物群移植到特定的健康受体组织中,表现为GVB损伤。可以推测,高脂饲粮先是作用于微生物群使其紊乱,再通过微生物群的改变破坏GVB[59]。所以对由高脂饲粮诱导的小鼠使用降脂物质,是否还能够均衡微生物群改善GVB,还有待进一步研究。肠道微生物促进饲粮中的饱和长链脂肪酸被淋巴系统吸收,随后进入血液到肝脏,该类饱和脂肪酸是一种促炎营养素,通过炎症信号激活各级炎症反应[60]。除了脂质,糖类也会引发微生物群紊乱。摄入过量果糖会促进脂肪合成过程,参与破坏肠道屏障,引发内毒素入血[61]。用于食品加工的乳化剂羧甲基纤维素会改变肠道表面微生物定植的种类和比例,改变屏障性质[62]。口服携带人白细胞介素-10(human interleukin-10,hIL-10)的分泌型转基因双歧杆菌(BL-hIL-10)能缓解小鼠结肠炎症反应,作用机理可能是BL-hIL-10可以发挥白细胞介素-10(interleukin-10,IL-10)的生理活性和功能,抑制VEGFA的表达和NO的释放[28]

6 小结

综上所述,GVB在维持肠道健康和整体身体功能方面发挥着重要作用。GVB主要通过内皮细胞、辅助细胞和特殊免疫细胞的相互作用来实现其生理效应,并受到Wnt/β-catenin和ApoM/S1P等信号通路的调控。此外,和肠屏障密切接触的肠道菌群通过分泌细菌素、SCFAs和肽聚糖等代谢产物也能调控GVB生理功能。肠道菌群紊乱引起GVB通透性增加是导致致病菌入血,破坏肠-肝-脑轴的直接原因。因此,更加深入地了解GVB与肠道菌群之间的分子机制,可以为我们提供新的治疗策略,使肠道成为治疗神经、免疫和代谢疾病的最佳靶向组织。目前,关于针对GVB的营养干预手段报道很少,因此如何最大程度利用GVB的分子基础和生理功能来解决生产难题,是未来需要深入思考和探究的方向。
[1]
ALLAM-NDOUL B, CASTONGUAY-PARADIS S, VEILLEUX A. Gut microbiota and intestinal trans-epithelial permeability[J]. International Journal of Molecular Sciences, 2020, 21(17):6402.

DOI

[2]
FARRÉ R, FIORANI M, ABDU RAHIMAN S, et al. Intestinal permeability,inflammation and the role of nutrients[J]. Nutrients, 2020, 12(4):1185.

DOI

[3]
GENTILE M E, KING I L. Blood and guts:the intestinal vasculature during health and helminth infection[J]. PLoS Pathogens, 2018, 14(7):e1007045.

DOI

[4]
SPADONI I, ZAGATO E, BERTOCCHI A, et al. A gut-vascular barrier controls the systemic dissemination of bacteria[J]. Science, 2015, 350(6262):830-834.

DOI PMID

[5]
SCALISE A A, KAKOGIANNOS N, ZANARDI F, et al. The blood-brain and gut-vascular barriers:from the perspective of claudins[J]. Tissue Barriers, 2021, 9(3):1926190.

DOI

[6]
ROUMENINA L T, RAYES J, FRIMAT M, et al. Endothelial cells:source,barrier,and target of defensive mediators[J]. Immunological Reviews, 2016, 274(1):307-329.

DOI

[7]
SAVIDGE T C, NEWMAN P, POTHOULAKIS C, et al. Enteric glia regulate intestinal barrier function and inflammation via release of S-nitrosoglutathione[J]. Gastroenterology, 2007, 132(4):1344-1358.

DOI PMID

[8]
DORE-DUFFY P, CLEARY K. Morphology and properties of pericytes[J]. Methods in Molecular Biology, 2011, 686:49-68.

[9]
RAHIMI N. Defenders and challengers of endothelial barrier function[J]. Frontiers in Immunology, 2017, 8:1847.

DOI PMID

[10]
GÜNZEL D, YU A S L. Claudins and the modulation of tight junction permeability[J]. Physiological Reviews, 2013, 93(2):525-569.

DOI PMID

[11]
TAKAHASHI S Y, IWAMOTO N, SASAKI H, et al. The E3 ubiquitin ligase LNX1p80 promotes the removal of claudins from tight junctions in MDCK cells[J]. Journal of Cell Science, 2009, 122(Pt 7):985-994.

DOI PMID

[12]
FURUSE M, HATA M, FURUSE K, et al. Claudin-based tight junctions are crucial for the mammalian epidermal barrier:a lesson from claudin-1-deficient mice[J]. The Journal of Cell Biology, 2002, 156(6):1099-1111.

DOI

[13]
NITTA T, HATA M, GOTOH S, et al. Size-selective loosening of the blood-brain barrier in claudin-5-deficient mice[J]. The Journal of Cell Biology, 2003, 161(3):653-660.

DOI

[14]
LUETTIG J, ROSENTHAL R, BARMEYER C, et al. Claudin-2 as a mediator of leaky gut barrier during intestinal inflammation[J]. Tissue Barriers, 2015, 3(1/2):e977176.

DOI

[15]
BOSCHETTI E, ACCARINO A, MALAGELADA C, et al. Gut epithelial and vascular barrier abnormalities in patients with chronic intestinal pseudo-obstruction[J]. Neurogastroenterology and Motility, 2019, 31(8):e13652.

DOI

[16]
STAN R V, TSE D, DEHARVENGT S J, et al. The diaphragms of fenestrated endothelia:gatekeepers of vascular permeability and blood composition[J]. Developmental Cell, 2012, 23(6):1203-1218.

DOI

[17]
施晓杰, 马维超, 邓昱晨, 等. 猪小肠微血管内皮细胞的分离培养与纯化[J]. 中国兽医杂志, 2019, 55(1):36-38,43,4.

SHI X J, MA W C, DENG Y C, et al. Isolation and purification of porcine intestinal microvascular endothelial cells[J]. Chinese Journal of Veterinary Medicine, 2019, 55(1):36-38,43,4. (in Chinese)

[18]
BUSH T G, SAVIDGE T C, FREEMAN T C, et al. Fulminant jejuno-ileitis following ablation of enteric glia in adult transgenic mice[J]. Cell, 1998, 93(2):189-201.

DOI PMID

[19]
JIANG S C, KHAN M I, LU Y, et al. Acceleration of blood-brain barrier formation after transplantation of enteric glia into spinal cords of rats[J]. Experimental Brain Research, 2005, 162(1):56-62.

DOI PMID

[20]
BERNIER-LATMANI J, MAURI C, MARCONE R, et al. ADAMTS18+ villus tip telocytes maintain a polarized VEGFA signaling domain and fenestrations in nutrient-absorbing intestinal blood vessels[J]. Nature Communications, 2022, 13(1):3983.

DOI

[21]
LIU J Q, XIAO Q, XIAO J N, et al. Wnt/β-catenin signalling:function,biological mechanisms,and therapeutic opportunities[J]. Signal Transduction and Targeted Therapy, 2022, 7(1):3.

DOI

[22]
CHRISTOFFERSEN C, OBINATA H, KUMARASWAMY S B, et al. Endothelium-protective sphingosine-1-phosphate provided by HDL-associated apolipoprotein M[J]. Proceedings of the National Academy of Sciences of the United States of America, 2011, 108(23):9613-9618.

DOI PMID

[23]
GAENGEL K, NIAUDET C, HAGIKURA K, et al. The sphingosine-1-phosphate receptor S1PR1 restricts sprouting angiogenesis by regulating the interplay between VE-cadherin and VEGFR2[J]. Developmental Cell, 2012, 23(3):587-599.

DOI PMID

[24]
KARUPPUCHAMY T, BEHRENS E H, GONZÁLEZ-CABRERA P, et al. Sphingosine-1-phosphate receptor-1 (S1P1) is expressed by lymphocytes,dendritic cells,and endothelium and modulated during inflammatory bowel disease[J]. Mucosal Immunology, 2017, 10(1):162-171.

DOI

[25]
LI Y N, ZHOU J, QIU J S, et al. Berberine reduces gut-vascular barrier permeability via modulation of ApoM/S1P pathway in a model of polymicrobial sepsis[J]. Life Sciences, 2020, 261:118460.

DOI

[26]
SPADONI I, PIETRELLI A, PESOLE G, et al. Gene expression profile of endothelial cells during perturbation of the gut vascular barrier[J]. Gut Microbes, 2016, 7(6):540-548.

PMID

[27]
ALVAREZ J I, DODELET-DEVILLERS A, KEBIR H, et al. The hedgehog pathway promotes blood-brain barrier integrity and CNS immune quiescence[J]. Science, 2011, 334(6063):1727-1731.

DOI PMID

[28]
黄云辉, 张定国, 杨根华, 等. 携带IL-10基因的双歧杆菌对溃疡性结肠炎模型小鼠血浆及结肠组织NO和VEGF-A表达影响[J]. 中国微生态学杂志, 2016, 28(2):129-132,137.

HUANG Y H, ZHANG D G, YANG G H, et al. Effect of interleukin-10 gene-carrying bifidobacteria on the expression of NO and VEGF-A in the plasma and colon tissue of mice with ulcerative colitis[J]. Chinese Journal of Microecology, 2016, 28(2):129-132,137. (in Chinese)

[29]
FUKUMURA D, GOHONGI T, KADAMBI A, et al. Predominant role of endothelial nitric oxide synthase in vascular endothelial growth factor-induced angiogenesis and vascular permeability[J]. Proceedings of the National Academy of Sciences of the United States of America, 2001, 98(5):2604-2609.

DOI PMID

[30]
EDER P, KORYBALSKA K, LINKE K, et al. Angiogenesis-related proteins-their role in the pathogenesis and treatment of inflammatory bowel disease[J]. Current Protein & Peptide Science, 2015, 16(3):249-258.

[31]
BRESCIA P, RESCIGNO M. The gut vascular barrier:a new player in the gut-liver-brain axis[J]. Trends in Molecular Medicine, 2021, 27(9):844-855.

DOI

[32]
KABOURIDIS P S, LASRADO R, MCCALLUM S, et al. Microbiota controls the homeostasis of glial cells in the gut lamina propria[J]. Neuron, 2015, 85(2):289-295.

DOI PMID

[33]
REINHARDT C, BERGENTALL M, GREINER T U, et al. Tissue factor and PAR1 promote microbiota-induced intestinal vascular remodelling[J]. Nature, 2012, 483(7391):627-631.

DOI

[34]
KARCZEWSKI J, TROOST F J, KONINGS I, et al. Regulation of human epithelial tight junction proteins by Lactobacillus plantarum in vivo and protective effects on the epithelial barrier[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2010, 298(6):G851-G859.

DOI

[35]
LING X, LINGLONG P, WEIXIA D, et al. Protective effects of Bifidobacterium on intestinal barrier function in LPS-induced enterocyte barrier injury of Caco-2 monolayers and in a rat NEC model[J]. PloS One, 2016, 11(8):e0161635.

DOI

[36]
LU R L, FASANO S R A, MADAYIPUTHIYA N, et al. Isolation,identification,and characterization of small bioactive peptides from Lactobacillus GG conditional media that exert both anti-gram-negative and gram-positive bactericidal activity[J]. Journal of Pediatric Gastroenterology and Nutrition, 2009, 49(1):23-30.

DOI

[37]
CAVERA V L, ARTHUR T D, KASHTANOV D, et al. Bacteriocins and their position in the next wave of conventional antibiotics[J]. International Journal of Antimicrobial Agents, 2015, 46(5):494-501.

DOI PMID

[38]
DICKS L M T, DREYER L, SMITH C, et al. A review:the fate of bacteriocins in the human gastro-intestinal tract:do they cross the gut-blood barrier?[J]. Frontiers in Microbiology, 2018, 9:2297.

DOI

[39]
KAUR S, KAUR S. Bacteriocins as potential anticancer agents[J]. Frontiers in Pharmacology, 2015, 6:272.

DOI PMID

[40]
GARCIA SORIANO F, LIAUDET L, MARTON A, et al. Inosine improves gut permeability and vascular reactivity in endotoxic shock[J]. Critical Care Medicine, 2001, 29(4):703-708.

PMID

[41]
COX C R, COBURN P S, GILMORE M S. Enterococcal cytolysin:a novel two component peptide system that serves as a bacterial defense against eukaryotic and prokaryotic cells[J]. Current Protein & Peptide Science, 2005, 6(1):77-84.

[42]
马维超, 施晓杰, 张倩, 等. 大肠杆菌热敏肠毒素对猪小肠黏膜微血管内皮细胞活力及细胞因子表达的影响[J]. 中国兽医学报, 2019, 39(5):956-961.

MA W C, SHI X J, ZHANG Q, et al. Effect of heat labile enterotoxin on the viability and cytokine expression of porcine intestinal mucosal microvascular endothelial cells[J]. Chinese Journal of Veterinary Science, 2019, 39(5):956-961. (in Chinese)

[43]
NAKAMOTO N, SASAKI N, AOKI R, et al. Gut pathobionts underlie intestinal barrier dysfunction and liver T helper 17 cell immune response in primary sclerosing cholangitis[J]. Nature Microbiology, 2019, 4(3):492-503.

DOI PMID

[44]
BALMER M L, SLACK E, DE GOTTARDI A, et al. The liver may act as a firewall mediating mutualism between the host and its gut commensal microbiota[J]. Science Translational Medicine, 2014, 6(237):237ra66.

[45]
TILG H, ADOLPH T E, TRAUNER M. Gut-liver axis:pathophysiological concepts and clinical implications[J]. Cell Metabolism, 2022, 34(11):1700-1718.

DOI

[46]
SORRIBAS M, JAKOB M O, YILMAZ B, et al. FXR modulates the gut-vascular barrier by regulating the entry sites for bacterial translocation in experimental cirrhosis[J]. Journal of Hepatology, 2019, 71(6):1126-1140.

DOI PMID

[47]
ÚBEDA M, LARIO M, MUÑOZ L, et al. Obeticholic acid reduces bacterial translocation and inhibits intestinal inflammation in cirrhotic rats[J]. Journal of Hepatology, 2016, 64(5):1049-1057.

DOI PMID

[48]
RENGA B, D’AMORE C, CIPRIANI S, et al. FXR mediates a chromatin looping in the GR promoter thus promoting the resolution of colitis in rodents[J]. Pharmacological Research, 2013, 77:1-10.

DOI PMID

[49]
TANG W H W, WANG Z N, LEVISON B S, et al. Intestinal microbial metabolism of phosphatidylcholine and cardiovascular risk[J]. The New England Journal of Medicine, 2013, 368(17):1575-1584.

DOI PMID

[50]
ZHAO M M, ZHAO L, XIONG X L, et al. TMAVA,a metabolite of intestinal microbes,is increased in plasma from patients with liver steatosis,inhibits γ-butyrobetaine hydroxylase,and exacerbates fatty liver in mice[J]. Gastroenterology, 2020, 158(8):2266-2281.e27.

DOI

[51]
BRANISTE V, AL-ASMAKH M, KOWAL C, et al. The gut microbiota influences blood-brain barrier permeability in mice[J]. Science Translational Medicine, 2014, 6(263):263ra158.

[52]
MOLONEY R D, DESBONNET L, CLARKE G, et al. The microbiome:stress,health and disease[J]. Mammalian Genome, 2014, 25(1/2):49-74.

DOI

[53]
O’MAHONY S M, CLARKE G, BORRE Y E, et al. Serotonin,tryptophan metabolism and the brain-gut-microbiome axis[J]. Behavioural Brain Research, 2015, 277:32-48.

DOI

[54]
MULLER P A, SCHNEEBERGER M, MATHEIS F, et al. Microbiota modulate sympathetic neurons via a gut-brain circuit[J]. Nature, 2020, 583(7816):441-446.

DOI

[55]
SONG D Y, HAO J Y, FAN D M. Biological properties and clinical applications of berberine[J]. Frontiers of Medicine, 2020, 14(5):564-582.

DOI

[56]
HE Y, YUAN X M, ZUO H, et al. Berberine exerts a protective effect on gut-vascular barrier via the modulation of the Wnt/β-catenin signaling pathway during sepsis[J]. Cellular Physiology and Biochemistry, 2018, 49(4):1342-1351.

DOI

[57]
LIU P, BIAN Y F, FAN Y S, et al. Protective effect of naringin on in vitro gut-vascular barrier disruption of intestinal microvascular endothelial cells induced by TNF-α[J]. Journal of Agricultural and Food Chemistry, 2020, 68(1):168-175.

DOI

[58]
HUANG X G, ZHOU G H, WU W Y, et al. Editing VEGFR2 blocks VEGF-induced activation of Akt and tube formation[J]. Investigative Ophthalmology & Visual Science, 2017, 58(2):1228-1236.

[59]
MOURIES J, BRESCIA P, SILVESTRI A, et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development[J]. Journal of Hepatology, 2019, 71(6):1216-1228.

DOI PMID

[60]
VAN DIJK S J, FESKENS E J M, BOS M B, et al. A saturated fatty acid-rich diet induces an obesity-linked proinflammatory gene expression profile in adipose tissue of subjects at risk of metabolic syndrome[J]. The American Journal of Clinical Nutrition, 2009, 90(6):1656-1664.

DOI

[61]
TODORIC J, DI CARO G, REIBE S, et al. Fructose stimulated de novo lipogenesis is promoted by inflammation[J]. Nature Metabolism, 2020, 2(10):1034-1045.

DOI

[62]
CHASSAING B, COMPHER C, BONHOMME B, et al. Randomized controlled-feeding study of dietary emulsifier carboxymethylcellulose reveals detrimental impacts on the gut microbiota and metabolome[J]. Gastroenterology, 2022, 162(3):743-756.

DOI

文章导航

/