研究论文

乳果糖-凝结芽孢杆菌合生素通过Toll样受体4/髓样分化因子88/核因子-κB信号通路缓解脂多糖诱导的断奶仔猪肠道炎症

  • 木颖琦 ,
  • 赵祖艳 ,
  • 杨运南 ,
  • 姚文 ,
  • 郑卫江 , *
展开
  • 南京农业大学动物科技学院,南京 210095
* 郑卫江,副教授,硕士生导师,E-mail:

木颖琦(2002—),女,云南丽江人,本科生,研究方向为动物营养与饲料科学。E-mail:

Copy editor: 田艳明

收稿日期: 2023-08-07

  网络出版日期: 2024-01-12

基金资助

国家重点研发计划(2017YFE0114400)

江苏现代农业(生猪)产业技术体系营养调控岗位项目(JATS[2022]465)

Lactulose and Bacillus coagulans Synbiotic Alleviates Lipopolysaccharide-Induced Intestinal Inflammation in Weaned Piglets through Toll-Like Receptor 4/Myeloid Differentiation Factor 88/Nuclear Factor-κB Signaling Pathway

  • MU Yingqi ,
  • ZHAO Zuyan ,
  • YANG Yunnan ,
  • YAO Wen ,
  • ZHENG Weijiang , *
Expand
  • College of Animal Science and Technology, Nanjing Agricultural University, Nanjing 210095, China
* associate professor, E-mail:

Received date: 2023-08-07

  Online published: 2024-01-12

摘要

本试验旨在研究乳果糖-凝结芽孢杆菌合生素对脂多糖(LPS)诱导的断奶仔猪肠道炎症缓解作用的分子机制。试验选取24头健康、体重接近的27~28日龄“杜×长×大”三元杂交断奶阉公猪,随机分为4组,每组6个重复,每个重复1头猪。对照组(CON组)和LPS组饲喂基础饲粮,金霉素组(CTC组)饲喂基础饲粮+75 mg/kg的金霉素,合生素组(SYN组)饲喂基础饲粮+10 g/kg的乳果糖和2×109 CFU/kg的凝结芽孢杆菌。试验期32 d。试验结束时,对LPS组、CTC组和SYN组仔猪腹腔注射100 μg/kg BW LPS,CON组注射相同剂量的生理盐水;注射4 h后屠宰,采集血清和空肠黏膜样本,测定炎症细胞因子含量及Toll样受体4(TLR4)/髓样分化因子88(MyD88)/核因子-κB(NF-κB)信号通路相关基因和蛋白表达。结果表明:1)与CON组相比,LPS刺激不仅显著提高血清促炎因子白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、白细胞介素-12(IL-12)、干扰素-γ(IFN-γ)和肿瘤坏死因子-α(TNF-α)以及抗炎因子白细胞介素-10(IL-10)含量(P<0.05),还显著提高空肠黏膜促炎因子IL-6、IL-12和IFN-γ以及抗炎因子白细胞介素-4(IL-4)、IL-10和转化生长因子-β1(TGF-β1)含量(P<0.05)。此外,与CON组相比,LPS刺激还显著提高空肠黏膜TNF-αIL-1βIL-10 mRNA相对表达量(P<0.05),且显著提高空肠黏膜TLR4、MyD88和NF-κB mRNA和蛋白相对表达量(P<0.05)。2)与LPS组相比,CTC组和SYN组血清IL-1β和IL-10以及空肠黏膜IL-6、IL-12、IL-4和IL-10含量显著降低(P<0.05),空肠黏膜TGF-β1含量显著提高(P<0.05),空肠黏膜TNF-αIL-1βIL-10 mRNA相对表达量显著降低(P<0.05),空肠黏膜NF-κB mRNA相对表达量以及TLR4和NF-κB蛋白相对表达量显著降低(P<0.05);SYN组血清IL-6、IL-8、IL-12和TNF-α以及空肠黏膜IL-1β含量显著降低(P<0.05),空肠黏膜TLR4和MyD88 mRNA相对表达量以及MyD88蛋白相对表达量显著降低(P<0.05)。综上所述,在无抗饲粮中添加乳果糖-凝结芽孢杆菌合生素替代金霉素可通过抑制断奶仔猪空肠黏膜TLR4/MyD88/NF-κB信号通路,降低TNF-αIL-1β mRNA相对表达量,改善空肠和血清炎症细胞因子水平,从而缓解LPS诱导的应激反应,提高断奶仔猪的抗应激能力。

本文引用格式

木颖琦 , 赵祖艳 , 杨运南 , 姚文 , 郑卫江 . 乳果糖-凝结芽孢杆菌合生素通过Toll样受体4/髓样分化因子88/核因子-κB信号通路缓解脂多糖诱导的断奶仔猪肠道炎症[J]. 动物营养学报, 2024 , 36(1) : 551 -563 . DOI: 10.12418/CJAN2024.050

Abstract

The aim of this study was to investigate the molecular mechanism of the alleviating effects of lactulose and Bacillus coagulans synbiotic on intestinal inflammation induced by lipopolysaccharide (LPS) in weaned piglets. A total of 24 healthy Duroc×Landrace×Yorkshire crossbred weaned boars aged of 27 to 28 days with similar body weight were randomly divided into 4 groups with 6 replicates per group and 1 pig per replicate. Piglets in the control group (CON group) and LPS group were fed a basal diet, those in the chlorotetracycline group (CTC group) were fed the basal diet+75 mg/kg chlorotetracycline, and those in the synbiotic group (SYN group) were fed the basal diet+10 g/kg lactulose and 2×10⁹ CFU/kg Bacillus coagulans, respectively. The experiment lasted for 32 days. At the end of the experiment, piglets in LPS group, CTC group and SYN group were intraperitoneally injected with 100 μg/kg BW LPS, and those in CON group were injected with the same dose of normal saline. The serum and jejunal mucosa samples were collected and the contents of inflammatory cytokines and the expression of genes and proteins related to Toll-like receptor 4 (TLR4)/myeloid differentiation factor 88 (MyD88)/nuclear factor-κB (NF-κB) signaling pathway were determined. The results show as follows: 1) compared with CON group, LPS stimulation not only significantly increased the contents of pro-inflammatory factors such as interleukin-1β (IL-1β), interleukin-6 (IL-6), interleukin-8 (IL-8), interleukin-12 (IL-12), interferon-γ (IFN-γ) and tumor necrosis factor-α (TNF-α) as well as the anti-inflammatory factor as interleukin-10 (IL-10) in serum, but also significantly increased the contents of pro-inflammatory factors such as IL-6, IL-12 and IFN-γ as well as anti-inflammatory factors such as interleukin-4 (IL-4), IL-10 and transforming growth factor-β1 (TGF-β1) in jejunal mucosa (P<0.05). In addition, compared with CON group, LPS stimulation also significantly increased the mRNA relative expression levels of TNF-α, IL-1β and IL-10 in jejunal mucosa (P<0.05), and significantly increased the mRNA and protein relative expression levels of TLR4, MyD88 and NF-κB in jejunal mucosa (P<0.05). 2) Compared with LPS group, the contents of IL-1β and IL-10 in serum and contents of IL-6, IL-12, IL-4 and IL-10 in jejunal mucosa in CTC group and SYN group were significantly decreased (P<0.05), the TGF-β1 content in jejunal mucosa was significantly increased (P<0.05), the mRNA relative expression levels of TNF-α, IL-1β and IL-10 in jejunal mucosa were significantly decreased (P<0.05), and the mRNA relative expression level of NF-κB and the protein relative expression levels of TLR4 and NF-κB in jejunal mucosa were significantly decreased (P<0.05); the contents of IL-6, IL-8, IL-12 and TNF-α in serum and IL-1β content in jejunum mucosa in SYN group were significantly decreased (P<0.05), and the mRNA relative expression levels of TLR4 and MyD88 and protein relative expression level of MyD88 in jejunum mucosa were significantly decreased (P<0.05). In conclusion, dietary lactulose and Bacillus coagulans synbiotic instead of chlorotetracycline in antibiotic-free diets can inhibit the TLR4/MyD88/NF-κB signaling pathway in jejunal mucosa of weaned piglets, reduce the mRNA relative expression levels of TNF-α and IL-1β, improve the levels of inflammatory cytokines in jejunum and serum, and thus alleviate the LPS-induced stress response and improve the anti-stress ability of weaned piglets.

断奶是生猪养殖的重要阶段,在生猪养殖过程中,采用早期断奶技术提高养殖的经济效益。然而,由于环境和饲粮的改变,以及受仔猪胃肠道发育不完全等多种因素的影响,断奶后仔猪容易出现断奶应激反应,表现为腹泻、拒食甚至死亡等现象,这给养猪行业带来巨大损失[1]。在生产过程中,常采取在饲粮中添加抗生素的措施来缓解仔猪断奶应激。不过,随着饲用抗生素的禁用,研究可替代饲用抗生素的添加剂已经成为重要的方向。合生素是一种微生态制剂,由益生菌和益生元的组合构成,可发挥益生菌和益生元的双重作用[2]。其中,凝结芽孢杆菌和功能性多糖组成的合生素在畜禽生产中得到了广泛应用[3]。研究表明,仔猪断奶前后10 d补充15 mL/kg乳果糖可促进肠道发育,提高生长性能和免疫力,并改善抗应激能力[4];而凝结芽孢杆菌则能通过平衡肠道菌群、维持肠道正常形态和缓解肠道炎症反应等方式改善断奶仔猪生长性能[5]
脂多糖(lipopolysaccharide,LPS)是革兰氏阴性菌细胞壁的主要成分,能够引起动物机体广泛的炎症反应[6-7]。LPS是一种效果稳定且具有良好重复性的应激源[8],常通过腹腔注射LPS来构建免疫应激模型。因此,在断奶应激研究中,腹腔注射LPS是目前最常用的构建急性应激模型的方式[9-11]。LPS会引发细胞内Toll样受体4(Toll-like receptor 4,TLR4)/核因子-κB(nuclear factor-κB,NF-κB)信号通路,进而刺激促炎细胞因子合成。研究表明,通过抑制TLR4/NF-κB信号通路的激活,可以调节炎性细胞因子的转录,从而阻止LPS或其他因素引发的炎症反应[12-14]。本实验室前期研究发现,乳果糖-凝结芽孢杆菌合生素可以改善小鼠肠道组织形态,减少引发炎症反应的菌群相对丰度[15]。在断奶仔猪的研究中也发现,乳果糖-凝结芽孢杆菌合生素可以降低断奶仔猪的腹泻率[16],增强仔猪对LPS诱导的肠道形态损伤、屏障功能障碍和细胞凋亡的恢复能力[17]。然而,乳果糖-凝结芽孢杆菌合生素缓解LPS诱导的仔猪肠道损伤的具体机制还不清楚。因此,本试验旨在以断奶仔猪为研究对象,通过研究TLR4/髓样分化因子88(myeloid differentiation factor 88,MyD88)/NF-κB信号通路,探讨乳果糖-凝结芽孢杆菌合生素对LPS诱导的断奶仔猪肠道炎症的影响,为乳果糖-凝结芽孢杆菌合生素的应用提供参考。

1 材料与方法

1.1 试验设计

选取24头健康、体重接近、体况相似的27~28日龄“杜×长×大”三元杂交断奶阉公猪,随机分为4组,每组6个重复,每个重复1头猪。对照组(CON组)和LPS组饲喂基础饲粮,金霉素组(CTC组)饲喂基础饲粮+75 mg/kg的金霉素,合生素组(SYN组)饲喂基础饲粮+10 g/kg的乳果糖和2×109 CFU/kg的凝结芽孢杆菌。试验期32 d。基础饲粮参照NRC(2012)仔猪营养需要进行配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)%

项目Items 含量Content
原料Ingredients
玉米Corn 51.07
豆粕Soybean meal 15.00
膨化大豆Extruded soybean 8.58
乳清粉Whey powder 6.00
细麦麸Fine wheat bran 5.00
鱼粉Fish meal 5.00
大豆油Soybean oil 2.00
预混料Premix1) 1.00
砂糖Granulated sugar 2.00
葡萄糖Glucose 2.00
磷酸氧钙CaHPO4 0.60
石粉Limestone 0.55
氯化钠NaCl 0.30
二氧化钛TiO2 0.30
L-赖氨酸盐酸盐L-Lys·HCl 0.23
L-苏氨酸L-Thr 0.15
DL-蛋氨酸DL-Met 0.10
L-色氨酸L-Try 0.07
氧化胆碱Choline chloride 0.05
合计Total 100.00
营养水平Nutrient levels2)
总能GE/(MJ/kg) 17.48
代谢能ME/(MJ/kg) 13.96
粗蛋白质CP 18.99
粗纤维CF 2.46
粗脂肪EE 6.64
粗灰分Ash 5.61
钙Ca 0.75
总磷TP 0.74

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Fe (C4H8FeN2O4) 105 mg,Cu (CuSO4·5H2O) 125 mg,Zn (ZnSO4·H2O) 22 mg,Mn (MnSO4·H2O) 20 mg,I [Ca(IO3)2] 0.1 mg,VA 124.5 mg,VD3 23.8 mg,VE 1 044.4 mg,VK3 34.4 mg,VB1 17.6 mg,VB2 89.4 mg,VB6 14.0 mg,生物素 biotin 3.2 mg,叶酸 folic acid 19.4 mg,泛酸 pantothenic acid 237.3 mg,烟酸 nicotinic acid 430.5 mg。

2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

在为期29 d的饲养试验结束后采集试验猪前腔静脉血[16],待仔猪恢复3 d 后,在试验的第32天建立仔猪LPS急性应激模型,即对LPS组、CTC组和SYN组的仔猪腹腔注射100 μg/kg BW LPS(按照康保聚[14]的方法),而CON组则注射相同剂量的生理盐水。

1.2 试验材料和饲养管理

本试验中,金霉素、乳果糖和凝结芽孢杆菌的来源和使用量与赵祖艳等[16]的试验相同,试验在扬州优佳创试验猪场进行。试验期间,所有仔猪单栏饲养,自由采食和饮水。每天对圈舍进行清洁,保持仔猪的饲养环境清洁,并定期对圈舍进行消毒。

1.3 样品采集

仔猪注射LPS或者生理盐水后的4 h时进行采血[17]、屠宰和取样。在肌肉注射戊巴比妥钠(50 mg/kg BW)后,获取空肠(近端20~38 cm处)的肠道组织样品,并用预冷的生理盐水冲洗肠道内容物。部分肠道组织样本被固定在4%多聚甲醛中,剩余部分则纵向剖开肠段,用吸水纸轻轻吸净水分,小心地使用无菌载玻片刮取肠道黏膜,并转移至-80 ℃保存。

1.4 检测指标及方法

1.4.1 血清和空肠黏膜炎症细胞因子含量

采用Porcine Cytokine Array Q1固相芯片(QAPCYT-1-4,RayBiotech,美国)对血清和空肠黏膜中的炎症细胞因子相关指标进行检测,包括白细胞介素-1β(IL-1β)、白细胞介素-4(IL-4)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、白细胞介素-10(IL-10)、白细胞介素-12(IL-12)、干扰素-γ(IFN-γ)、转化生长因子-β1(TGF-β1)和肿瘤坏死因子-α(TNF-α)含量。

1.4.2 空肠黏膜炎症细胞因子相关基因表达定量分析

采用TRIzol试剂(TaKaRa)从空肠黏膜组织提取总RNA。采用分光光度计(Nano-Drop2000,Nano-Drop Technologies,美国)检测RNA浓度和纯度,并用焦碳酸二乙酯(DEPC)水稀释至相同的500 ng/μL浓度。参考反转录试剂盒(TaKaRa)说明书,将RNA反转录为cDNA,并在-20 ℃保存备用。采用SYBR® Premix Ex Taq试剂盒(TaKaRa)和QuantStudio 5 RealTime PCR System(Thermo Fisher,美国)进行荧光定量PCR反应,每个样本2个重复,反应程序如下:95 ℃预变性3 min;95 ℃ 5 s;60 ℃ 30 s;共40个循环。目的基因的mRNA相对表达量以β-肌动蛋白(β-actin)为内参基因,采用2-△△Ct法进行计算。所用引物序列见表2
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
产物大小
Product size/bp
β-肌动蛋白β-actin F:GGACTTCGAGCAGGAGATGG
R:GCACCGTGTTGGCGTAGAGG
XM_021086047.1 233
Toll样受体4 TLR4 F:TTTCTTGCAGTGGGTCGAGG
R:GGAAGGTGAGAACTGACGCA
NM_001293316.1 161
髓样分化因子88 MyD88 F:GTGCCGTCGGATGGTAGTG
R:TCTGGAAGTCACATTCCTTGCTT
NM_001099923.1 65
核因子-κB NF-κB F:GGGGCGATGAGATCTTCCTG
R:CACGTCGGCTTGTGAAAAGG
NM_001114281.1 110
白细胞介素-1β IL-1β F:AGAGATGAAGTGCTGCACCC
R:TTCTCCACTGCCACGATGAC
NM_214055.1 132
肿瘤坏死因子-α TNF-α F:ACTCCTTCAGACCCCCTCAC
R:GCCACATTCCAGATGTCCCA
NM_214022.1 239
白细胞介素-10 IL-10 F:CTGCATCCACTTCCCAACCA
R:CGGCATTACGTCTTCCAGGT
NM_214041.1 202

1.4.3 蛋白免疫印迹(Western Blot)法检测空肠黏膜TLR4/MyD88/NF-κB信号通路相关蛋白表达

取少量超低温研磨的空肠黏膜组织,并加入含1%苯甲基磺酰氟(PMSF)的放射免疫沉淀试验(RIPA)总蛋白裂解液。使用匀浆机进行匀浆,然后在冰上静置10 min,12 000 r/min、4 ℃离心20 min并吸取上清液。对上清液进行蛋白浓度测定和变性处理,并通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离蛋白。将分离的蛋白转印至聚偏二氟乙烯(PVDF)膜。在室温下使用5%脱脂奶粉室温封闭2 h(转速 40 r/min),然后加入一抗抗体:鼠抗β-actin(Cat:66009-1-Ig,Proteintech)以1∶10 000稀释;兔抗TLR4(Cat:19811-1-AP,Proteintech)、兔抗MyD88(Cat:NB100-56698,Novus)以1∶2 000稀释;鼠抗NF-κB(Cat:6956S,CST)以1∶1 000稀释,以上抗体在4 ℃孵育过夜。孵育后,采用Tris盐缓冲液(TBST)清洗3次后加入相应的辣根过氧化物酶(HRP)标记的二抗。其中,NF-κB鼠二抗(Cat:SA00001-1,Proteintech)以1∶20 000稀释,其他均使用兔二抗(Cat:SA00001-2,Proteintech)以1∶10 000稀释。在室温下孵育2 h,再次用TBST清洗3次后,使用化学发光底物(ECL,Tanon)发光液进行显色,然后利用Tanon 3900凝胶成像系统对蛋白条带灰度进行分析。

1.5 数据统计分析

所得数据采用SPSS 25.0软件进行分析,其中CON组与LPS组间差异采用独立样本t检验;LPS组、CTC组和SYN组采用单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较。结果采用GraphPad Prism 9软件作图,以平均值(mean)和均值标准误(SEM)表示,以P<0.05为差异显著。

2 结果与分析

2.1 乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪血清炎症细胞因子含量的影响
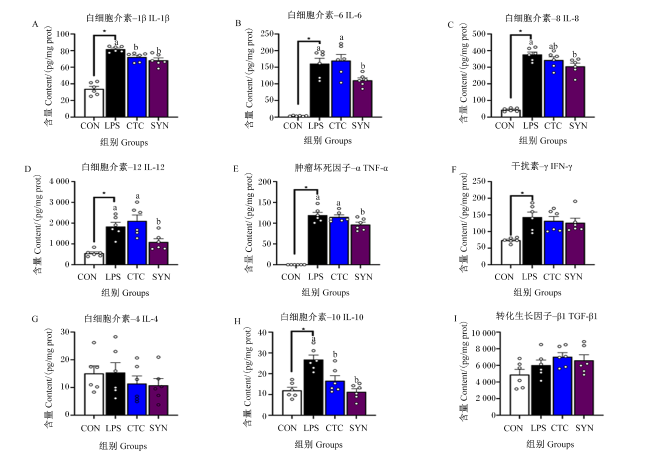
乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪血清炎症细胞因子含量的影响如图1所示。与CON组相比,LPS刺激显著提高了血清促炎因子IL-1β、IL-6、IL-8、IL-12、IFN-γ和TNF-α以及抗炎因子IL-10含量(P<0.05),而对血清抗炎因子IL-4和TGF-β1含量无显著影响(P>0.05)。与LPS组相比,CTC组和SYN组血清促炎因子IL-1β和抗炎因子IL-10含量显著降低(P<0.05),且CTC组和SYN组间无显著差异(P>0.05)。与LPS组和CTC组相比,SYN组血清促炎因子IL-6、IL-12和TNF-α含量显著降低(P<0.05),而LPS组和CTC组间无显著差异(P>0.05)。SYN组血清促炎因子IL-8含量显著低于LPS组(P<0.05),而CTC组血清IL-8含量与LPS组和SYN组之间均无显著差异(P>0.05)。CTC组、LPS组和SYN组之间血清促炎因子IFN-γ以及抗炎因子IL-4和TGF-β1含量均无显著差异(P>0.05)。
图1 乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪血清炎症细胞因子含量的影响

*表示CON组与LPS组间差异显著(P<0.05),LPS组、CTC组和SYN组间标注不同小写字母表示差异显著(P<0.05)。图2图3图4同。

Fig.1 Effects of lactulose and Bacillus coagulans synbiotic on inflammatory cytokine contents in serum of weaned piglets challenged with LPS

* mean significant difference between CON group and LPS group (P<0.05), and different small letters marked on value columns mean significant difference among LPS group, CTC group and SYN group (P<0.05). The same as Fig.2, Fig.3 and Fig.4.

2.2 乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜炎症细胞因子含量的影响
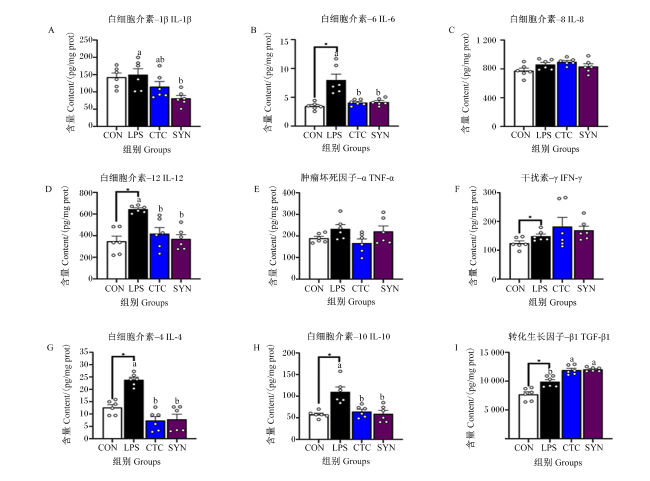
乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜炎症细胞因子含量的影响如图2所示。与CON组相比,LPS刺激显著提高了空肠黏膜促炎因子IL-6、IL-12和IFN-γ以及抗炎因子IL-4、IL-10和TGF-β1含量(P<0.05),而对促炎因子IL-1β、IL-8和TNF-α含量无显著影响(P>0.05)。与LPS组相比,CTC组和SYN组空肠黏膜促炎因子IL-6和IL-12以及抗炎因子IL-4和IL-10含量显著降低(P<0.05),且CTC组和SYN组间无显著差异(P>0.05);CTC组和SYN组空肠黏膜抗炎因子TGF-β1含量显著提高(P<0.05),且CTC组和SYN组间无显著差异(P>0.05);SYN组空肠黏膜促炎因子IL-1β含量显著降低(P<0.05),而CTC组空肠黏膜IL-1β含量与LPS组和SYN组之间均无显著差异(P>0.05)。CTC组、LPS组和SYN组之间空肠黏膜促炎因子IL-8、TNF-α和IFN-γ含量均无显著差异(P>0.05)。
图2 乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜炎症细胞因子含量的影响

Fig.2 Effects of lactulose and Bacillus coagulans synbiotic on inflammatory cytokine contents in jejunal mucosa of weaned piglets challenged with LPS

2.3 乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜炎症细胞因子相关基因表达的影响
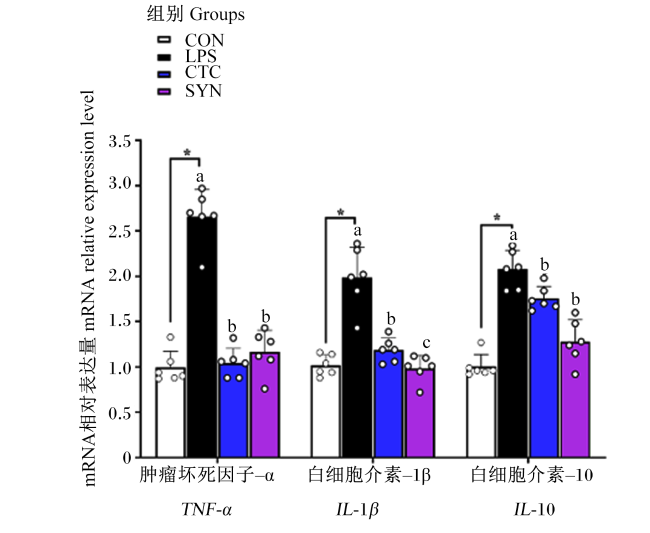
乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜炎症细胞因子相关基因表达的影响如图3所示。与CON组相比,LPS刺激显著提高空肠黏膜TNF-αIL-1βIL-10 mRNA相对表达量(P<0.05)。与LPS组相比,CTC组和SYN组空肠黏膜IL-10、IL-1βTNF-α mRNA相对表达量显著降低(P<0.05),且CTC组和SYN组间空肠黏膜TNF-αIL-10 mRNA相对表达量无显著差异(P>0.05)。此外,与CTC组相比,SYN组空肠黏膜IL-1β mRNA相对表达量显著降低(P<0.05)。
图3 乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜炎症细胞因子相关基因表达的影响

Fig.3 Effects of lactulose and Bacillus coagulans symbiotic on expression of genes related to inflammatory cytokines in jejunal mucosa of weaned piglets challenged with LPS

2.4 乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜TLR4/MyD88/NF-κB信号通路相关基因和蛋白表达的影响
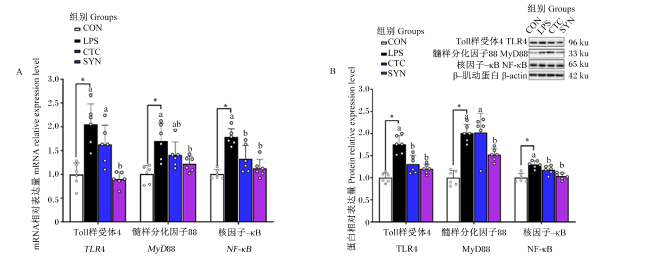
乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜TLR4/MyD88/NF-κB信号通路相关基因和蛋白表达的影响如图4所示。与CON组相比,LPS刺激显著提高空肠黏膜TLR4、MyD88和NF-κB mRNA和蛋白相对表达量(P<0.05)。与LPS组相比,CTC组和SYN组空肠黏膜NF-κB mRNA和蛋白相对表达量显著降低(P<0.05),且CTC组和SYN组间无显著差异(P>0.05);CTC组空肠黏膜TLR4 mRNA相对表达量无显著差异(P>0.05),但CTC组空肠黏膜TLR4蛋白相对表达量显著降低(P<0.05);SYN组空肠黏膜TLR4、MyD88和NF-κB mRNA和蛋白相对表达量均显著降低(P<0.05);CTC组空肠黏膜MyD88 mRNA和蛋白相对表达量均无显著差异(P>0.05),但相比于CTC组,SYN组空肠黏膜MyD88蛋白相对表达量显著降低(P<0.05)。
图4 乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪空肠黏膜TLR4/MyD88/NF-κB信号通路相关基因(A)和蛋白(B)表达的影响

Fig.4 Effects of lactulose and Bacillus coagulans synbiotic on expression of genes (A) and proteins (B) related to TLR4/MyD88/NF-κB signaling pathway in jejunal mucosa of weaned piglets challenged with LPS

2.5 LPS刺激断奶仔猪血清和空肠黏膜炎症细胞因子含量以及空肠黏膜TLR4/MyD88/NF-κB信号通路蛋白相对表达量之间的相关性分析
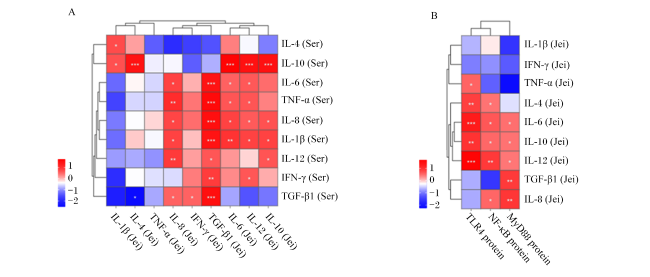
图5展示了LPS刺激断奶仔猪血清炎症细胞因子含量与空肠黏膜炎症细胞因子含量(A)以及空肠黏膜炎症细胞因子含量与空肠黏膜TLR4/MyD88/NF-κB信号通路蛋白相对表达量(B)之间的Pearson相关性结果。如图5-A所示,空肠黏膜促炎因子IL-1β含量与血清抗炎因子IL-4和IL-10含量呈显著正相关(P<0.05);空肠黏膜促炎因子IL-8含量与血清促炎因子IL-6、TNF-α、IL-8、IL-1β和IL-12以及抗炎因子TGF-β1含量呈显著正相关(P<0.05);空肠黏膜促炎因子IFN-γ含量与血清抗炎因子TGF-β1含量呈显著正相关(P<0.05);空肠黏膜促炎因子IL-6含量与血清促炎因子IL-6、TNF-α、IL-8和IL-1β以及抗炎因子IL-10含量呈显著正相关(P<0.05);空肠黏膜促炎因子IL-12含量与血清促炎因子IL-6、TNF-α、IL-8、IL-1β和IFN-γ以及抗炎因子IL-10含量呈显著正相关(P<0.05);空肠黏膜抗炎因子IL-4含量与血清抗炎因子IL-10含量呈显著正相关(P<0.05),但与血清抗炎因子TGF-β1含量呈显著负相关(P<0.05);空肠黏膜抗炎因子IL-10含量与血清促炎因子IL-8、IL-12和IL-1β以及抗炎因子IL-10含量呈显著正相关(P<0.05);空肠黏膜抗炎因子TGF-β1含量与血清促炎因子IL-6、IL-8、IL-12、TNF-α、IL-1β和IFN-γ以及抗炎因子TGF-β1含量呈显著正相关(P<0.05)。
图5 LPS刺激断奶仔猪血清炎症细胞因子含量与空肠黏膜炎症细胞因子含量(A)以及空肠黏膜炎症细胞因子含量与空肠黏膜TLR4/MyD88/NF-κB信号通路蛋白相对表达量(B)之间的Pearson相关性

IL-1β:白细胞介素-1β interleukin-1β;IL-4:白细胞介素-4 interleukin-4;IL-6:白细胞介素-6 interleukin-6;IL-8:白细胞介素-8 interleukin-8;IL-10:白细胞介素-10 interleukin-10;IL-12:白细胞介素-12 interleukin-12;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IFN-γ:干扰素-γ interferon-γ;TGF-β1:转化生长因子-β1 transforming growth factor-β1;TLR4:Toll样受体4 Toll-like receptor 4;NF-κB:核因子-κB nuclear factor-κB;MyD88:髓样分化因子88 myeloid differentiation factor 88;Ser:血清 serum;Jei:空肠黏膜 jejunal mucosa;protein:蛋白相对表达量 protein relative expression level。

红色表示正相关,蓝色表示负相关,白色表示无相关性。*表示P<0.05,**表示P<0.01,***表示P<0.001。

Fig.5 Pearson correlation between inflammatory cytokine contents in serum and jejunal mucosa (A) and inflammatory cytokine contents and TLR4/MyD88/NF-κB signaling pathway protein relative expression levels in jejunal mucosa (B) of weaned piglets challenged with LPS

Red represented positive correlation, blue represented negative correlation, and white represented no correlation. * mean P<0.05, ** mean P<0.01, and *** mean P<0.001.

图5-B所示,空肠黏膜TLR4蛋白相对表达量与空肠黏膜促炎因子TNF-α、IL-6和IL-12以及抗炎因子IL-4和IL-10含量呈显著正相关(P<0.05);空肠黏膜NF-κB蛋白相对表达量与空肠黏膜促炎因子IL-6、IL-8和IL-12以及抗炎因子IL-4和IL-10含量呈显著正相关(P<0.05);空肠黏膜MyD88蛋白相对表达量与空肠黏膜促炎因子IL-6、IL-8和IL-12以及抗炎因子IL-10和TGF-β1含量呈显著正相关(P<0.05)。

3 讨论

本实验室前期研究发现,乳果糖-凝结芽孢杆菌合生素可改善葡聚糖硫酸钠(DSS)诱导的小鼠结肠组织形态损伤,减少引发肠道炎症反应的脱硫杆菌门(Desulfobacterota)和脱铁杆菌门(Deferribacteres)的相对丰度[15]。在断奶仔猪的相关研究中,本课题组还发现,乳果糖-凝结芽孢杆菌合生素具有类似于金霉素的促生长效果[18],可以降低腹泻率、提高总能和粗脂肪的表观消化率,降低血清总胆红素含量并降低料重比[16]。此外,乳果糖-凝结芽孢杆菌合生素还能缓解LPS引起的肠道形态损伤、屏障功能障碍和细胞凋亡[17]。然而,关于乳果糖-凝结芽孢杆菌合生素如何缓解LPS引起的仔猪肠道损伤的机制目前还不清楚。因此,本试验以断奶仔猪为研究对象,通过研究TLR4/MyD88/NF-κB信号通路,探讨乳果糖-凝结芽孢杆菌合生素改善LPS引起的断奶仔猪肠道炎症的作用。
研究表明,在断奶仔猪中,腹腔注射100 μg/kg BW LPS 3 h后,血浆IL-1β、IL-6和TNF-α含量显著提高[19]。本试验得到相似的研究结果,与CON组相比,LPS刺激显著提高断奶仔猪血清促炎因子IL-1β、IL-6、IL-8、IL-12、IFN-γ和TNF-α以及抗炎因子IL-10含量。Cao等[20]研究显示,腹腔注射LPS(100 μg/kg BW)7 d后,可显著提高断奶仔猪(21日龄断奶)空肠黏膜IL-6、IL-8、TNF-αIL-1β基因表达水平。此外,LPS(100 μg/kg BW)刺激断奶仔猪4 h后,其空肠黏膜IL-1βIL-6、IL-8、TNF-αIFN-γ的基因表达量显著提高,对仔猪肠道屏障功能造成损伤[21]。本研究得到类似的结果,与CON组相比,LPS刺激不仅显著提高断奶仔猪空肠黏膜促炎因子IL-6、IL-12和IFN-γ以及抗炎因子IL-4、IL-10和TGF-β1含量,还显著提高空肠黏膜TLR4、MyD88和NF-κB mRNA和蛋白相对表达量。此外,研究还表明,LPS刺激可显著提高断奶仔猪空肠促炎细胞因子(如TNF-αIL-1β)的mRNA表达量及/或其血清含量,同时显著降低空肠抗炎细胞因子IL-10 mRNA表达量及/或其血清含量[22-24]。然而,在本试验中,LPS刺激导致断奶仔猪促炎因子TNF-αIL-1β及抗炎因子IL-10的mRNA相对表达量(空肠黏膜)和含量(血清)均显著提高。这可能是由于LPS刺激导致仔猪产生免疫应激,使得机体上调了抗炎细胞因子IL-10的mRNA表达水平,进而提高了空肠黏膜和血清中的抗炎细胞因子IL-10水平以自我保护,但这个过程不足以抵消LPS引起的促炎细胞因子(如TNF-α、IL-1β和IL-12等)水平上升所导致的炎症损伤[25-26]。本研究结果表明,本试验成功建立了LPS应激模型,并且LPS刺激通过激活空肠中TLR4/MyD88/NF-κB信号通路,最终导致血清和空肠黏膜炎症细胞因子水平的上升。
早期研究表明,饲喂苯甲酸-凝结芽孢杆菌合生素(3 000 mg/kg苯甲酸+400 mg/kg凝结芽孢杆菌)和抗生素(20 mg/kg硫酸黏菌素+40 mg/kg杆菌肽锌)均可降低产肠毒素大肠杆菌(ETEC)引起的仔猪血清TNF-α含量升高,并下调空肠黏膜TLR4、MyD88、NF-κBTNF-α mRNA表达量[27]。金霉素(50 mg/kg)也被证明可以减轻断奶仔猪炎症反应,通过显著降低ETEC引起的断奶仔猪空肠中TLR4 mRNA表达量的升高[28],并且四环素类抗生素对LPS(10 μg/kg BW)注射2 h引起的血清IL-6含量升高表现出显著的抑制作用[29]。本研究的结果与这些研究结果相类似,与LPS组相比,CTC组和SYN组断奶仔猪空肠黏膜炎症相关因子TLR4、NF-κB、IL-6、IL-12、IL-4和IL-10含量出现不同程度降低,并且大多数指标在2组间无显著差异;此外,与LPS组相比,CTC组和SYN组血清IL-1β和IL-10含量也显著降低,且2组间无显著差异。实际上,凝结芽孢杆菌能帮助免疫系统保护宿主免受感染并减少炎症对组织的影响,从而恢复肠道微生物组与免疫位点之间的相互作用,有效减轻LPS诱导的肠道炎症和组织损伤[30]。乳果糖除了具有益生元的特性外,还可能具有间接的免疫调节作用;前期研究结果发现,补充15%乳果糖可显著降低小鼠小肠及血清促炎细胞因子白细胞介素-22(IL-22)和白细胞介素-17α(IL-17α)含量,从而保持高盐饮食小鼠肠道微环境的健康和免疫抵抗能力[31]。有研究表明,嗜酸乳杆菌合生素通过调节TLR4/NF-κB信号通路改善肠道炎症损伤,维护肠道屏障的完整性[32]。凝结芽孢杆菌作为一种益生菌,具有乳酸菌的特性[27]。有试验证明,凝结芽孢杆菌可以通过抑制LPS诱导的小鼠盲肠TLR4、MyD88、NF-κB、IL-1β和IL-6蛋白表达的升高,通过调节TLR4/MyD88/NF-κB信号通路,保护LPS引起的肠道炎症损伤[33]。本研究结果表明,乳果糖-凝结芽孢杆菌合生素可显著缓解LPS导致的断奶仔猪空肠黏膜TLR4、MyD88和NF-κB mRNA和蛋白相对表达量的升高,并与CTC组效果相当。因此,对上述结果分析表明,本研究所用的乳果糖-凝结芽孢杆菌合生素具有与金霉素相似的抗炎效果,即通过TLR4/MyD88/NF-κB信号通路缓解LPS引起的断奶仔猪炎症反应,因此推断可作为饲用抗生素金霉素的可行替代品。尽管乳果糖和凝结芽孢杆菌都具有降低炎症细胞因子水平的作用,但本研究的3个处理无法区分寡糖和益生菌单独以及交互的效应。因此,后续研究可以通过对比乳果糖组、凝结芽孢杆菌组和乳果糖-凝结芽孢杆菌合生素组3个试验组,进一步研究乳果糖和凝结芽孢杆菌单独和交互作用下的效果。
LPS与TLR4相互作用,经由MyD88途径转导,最终激活NF-κB,调控包括TNF-α和IL-1β在内的促炎症因子的表达[34],从而引起仔猪发热、腹泻、甚至休克[35]。所有的Toll样受体(TLR)信号通路均可导致NF-κB蛋白的活化,而NF-κB蛋白是炎性因子基因表达的主效因子[36]。人和动物模型的研究显示,在肠道炎症时,肠道黏膜中的巨噬细胞和中性粒细胞数量显著增加,并表达大量的炎症介质,从而促进血液中淋巴细胞的浸润、T细胞的增殖和分化[37]。肠道炎症可引起血液免疫细胞浸润到向肠道黏膜和下层组织[38]。抗原呈递细胞通过识别抗原并分泌化学趋化因子(如IL-8),活化的巨噬细胞分泌促炎因子[如白细胞介素-1(IL-1)和TNF-α],上调黏附分子配体在黏膜血管内皮上的表达,从而促进白细胞黏附和渗出到肠道组织中,导致肠道炎症损伤和炎症反应[37]。根据乳果糖-凝结芽孢杆菌合生素对LPS刺激断奶仔猪血清和空肠黏膜炎症细胞因子含量以及空肠TLR4/MyD88/NF-κB信号通路相关基因和蛋白表达的相关性分析结果,推测在LPS刺激引起空肠炎症损伤的情况下,空肠促炎因子IL-1β、IL-6、IL-8、IL-12和INF-γ和抗炎因子IL-10和IL-4可能进入血液循环,引起血清中炎症相关因子水平的改变,从而引起全身性炎症反应。据本试验结果推测,血清中的TNF-α、IL-1β、IL-6和IL-10可能作为生物标记物,直接反映仔猪的应激状态。这种高度正相关性也验证了这些炎症因子之间存在着协同或拮抗的关系,它们可能通过相互调控,共同通过TLR4/MyD88/NF-κB炎症信号通路参与炎症反应。因此,金霉素和乳果糖-凝结芽孢杆菌合生素可以通过TLR4/MyD88/NF-κB信号通路,下调炎症相关因子水平,从而缓解LPS引起的肠道炎症损伤。

4 结论

综上所述,在无抗饲粮中添加乳果糖-凝结芽孢杆菌合生素替代金霉素可通过抑制断奶仔猪空肠黏膜TLR4/MyD88/NF-κB信号通路,降低TNF-αIL-1β mRNA相对表达量,改善空肠和血清炎症细胞因子水平,从而缓解LPS诱导的应激反应,提高断奶仔猪的抗应激能力。
[1]
梅华迪, 李袁飞, 田琦, 等. 槲皮素对断奶仔猪生长性能、营养物质表观消化率、血清生化指标、粪便微生物及其代谢产物的影响[J]. 动物营养学报, 2022, 34(5):2884-2895.

DOI

MEI H D, LI Y F, TIAN Q, et al. Effects of quercetin on growth performance,nutrient apparent digestibility,serum biochemical indices,fecal microorganisms and their metabolites of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):2884-2895. (in Chinese)

[2]
LEE S J, SHIN N H, OK J U, et al. Effects of dietary synbiotics from anaerobic microflora on growth performance,noxious gas emission and fecal pathogenic bacteria population in weaning pigs[J]. Asian-Australasian Journal of Animal Sciences, 2009, 22(8):1202-1208.

DOI

[3]
PANDEY K R, NAIK S R, VAKIL B V. Probiotics,prebiotics and synbiotics-a review[J]. Journal of Food Science and Technology, 2015, 52(12):7577-7587.

DOI

[4]
KRUEGER M, SCHROEDL W, ISIK W, et al. Effects of lactulose on the intestinal microflora of periparturient sows and their piglets[J]. European Journal of Nutrition, 2002, 41(Suppl 1):I26-I31.

[5]
柳成东, 肖明霞, 赵平, 等. 饲用凝结芽孢杆菌对感染产肠毒素大肠杆菌K88断奶仔猪生长性能和肠道健康的影响[J]. 动物营养学报, 2021, 33(8):4373-4383.

DOI

LIU C D, XIAO M X, ZHAO P, et al. Effect of dietary Bacillus coagulans on growth performance and intestinal health of weaned piglets challenged with enterotoxigenic Escherichia coli K88[J]. Chinese Journal of Animal Nutrition, 2021, 33(8):4373-4383. (in Chinese)

[6]
BROMFIELD J J, SHELDON I M. Lipopolysaccharide initiates inflammation in bovine granulosa cells via the TLR4 pathway and perturbs oocyte meiotic progression in vitro[J]. Endocrinology, 2011, 152(12):5029-5040.

DOI

[7]
STEINBERGER A, KLINEFELTER G. Sensitivity of sertoli and leydig cells to xenobiotics in in vitro models[J]. Reproductive Toxicology, 1993, 7(Suppl.1):23-37.

DOI

[8]
LIU Y L, HUANG J J, HOU Y Q, et al. Dietary arginine supplementation alleviates intestinal mucosal disruption induced by Escherichia coli lipopolysaccharide in weaned pigs[J]. British Journal of Nutrition, 2008, 100(3):552-560.

DOI

[9]
徐启龙, 汪洋, 李先根, 等. 脂多糖刺激对断奶仔猪空肠形态结构、炎症反应和程序性坏死信号通路相关基因表达的影响[J]. 动物营养学报, 2022, 34(4):2606-2612.

DOI

XU Q L, WANG Y, LI X G, et al. Effects of lipopolysaccharide challenge on jejunal morphology,inflammatory response and necroptosis signaling pathway related gene expression of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2022, 34(4):2606-2612. (in Chinese)

[10]
王慧, 郭俊杰, 李先根, 等. 甘氨酸对脂多糖应激断奶仔猪肠黏膜屏障的调控作用[J]. 中国畜牧杂志, 2022, 58(7):199-203.

WANG H, GUO J J, LI X G, et al. Regulation of glycine on intestinal mucosal barrier induced in weaned pigs challenged lipopolysaccharide[J]. Chinese Journal of Animal Science, 2022, 58(7):199-203. (in Chinese)

[11]
韩云胜. 丁酸梭菌对断奶仔猪生长性能和肠道功能的影响及机理研究[D]. 博士学位论文. 兰州: 兰州大学, 2021.

HAN Y S. Effect and mechanism of Clostridium butyricum on growth performance and gut function of weaned piglets[D]. Ph.D. Thesis. Lanzhou: Lanzhou University, 2021. (in Chinese)

[12]
XU J J, LU C J, LIU Z J, et al. Schizandrin B protects LPS-induced sepsis via TLR4/NF-κB/MyD88 signaling pathway[J]. American Journal of Translational Research, 2018, 10(4):1155-1163.

PMID

[13]
王定荣, 王亚亭, 华山, 等. 五味子乙素对哮喘小鼠肺部炎症的影响及其机制研究[J]. 安徽医科大学学报, 2019, 54(5):735-740.

WANG D R, WANG Y T, HUA S, et al. Effect of schisandrin B on lung inflammation in asthmatic mice and its mechanism[J]. Acta Universitatis Medicinalis Anhui, 2019, 54(5):735-740. (in Chinese)

[14]
康保聚. 血根碱对免疫应激断奶仔猪肠道黏膜损伤的修复作用研究[D]. 硕士学位论文. 长沙: 湖南农业大学, 2019.

KANG B J. A study on the repairing effect of sanguinarine on intestinal mucosal injury in immunological challenge weaned piglets[D]. Master’s Thesis. Changsha: Hunan Agricultural University, 2019. (in Chinese)

[15]
刘日亮, 乔羽, 黄桂青, 等. 凝结芽孢杆菌-乳果糖合生元对DSS诱导的溃疡性结肠炎小鼠肠道健康的影响[J]. 微生物学报, 2022, 62(3):869-881.

LIU R L, QIAO Y, HUANG G Q, et al. Effect of synbiotic containing Bacillus coagulans and lactulose on gut health in mice with DSS-induced ulcerative colitis[J]. Acta Microbiologica Sinica, 2022, 62(3):869-881. (in Chinese)

[16]
赵祖艳, 杨运南, 刘日亮, 等. 乳果糖和凝结芽孢杆菌合生素对断奶仔猪生长性能、养分表观消化率和血液指标的影响[J]. 动物营养学报, 2021, 33(7):3735-3744.

DOI

ZHAO Z Y, YANG Y N, LIU R L, et al. Effects of synbiotic containing lactulose and Bacillus coagulans on growth performance,nutrient apparent digestibilities and blood indexes of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2021, 33(7):3735-3744. (in Chinese)

[17]
ZHENG W J, ZHAO Z Y, YANG Y N, et al. The synbiotic mixture of lactulose and Bacillus coagulans protects intestinal barrier dysfunction and apoptosis in weaned piglets challenged with lipopolysaccharide[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):80.

DOI

[18]
杨运南, 赵祖艳, 刘日亮, 等. 金霉素和乳果糖-凝结芽孢杆菌合生素对断奶仔猪相对生长速率和粪便代谢产物的影响[J]. 动物营养学报, 2021, 33(10):5534-5544.

DOI

YANG Y N, ZHAO Z Y, LIU R L, et al. Effects of chlortetracycline and synbiotic with lactulose and Bacillus coagulans on relative growth rate and fecal metabolites of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2021, 33(10):5534-5544. (in Chinese)

[19]
HAN J, BIAN L A, LIU X J, et al. Effects of Acanthopanax senticosus polysaccharide supplementation on growth performance,immunity,blood parameters and expression of pro-inflammatory cytokines genes in challenged weaned piglets[J]. Asian-Australasian Journal of Animal Sciences, 2014, 27(7):1035-1043.

DOI

[20]
CAO S T, ZHANG Q H, WANG C C, et al. LPS challenge increased intestinal permeability,disrupted mitochondrial function and triggered mitophagy of piglets[J]. Innate Immunity, 2018, 24(4):221-230.

DOI

[21]
焦乐飞. 载铜锌蒙脱石对断奶仔猪肠道微生态和屏障功能的影响及其机理探讨[D]. 博士学位论文. 杭州: 浙江大学, 2020.

JIAO L F. Study on the effects and mechnisms of copper/zinc-loaded montmorillonite on intestinal microbiota and barrier function of weaned pig[D]. Ph.D. Thesis. Hangzhou: Zhejiang University, 2020. (in Chinese)

[22]
CHEN F M, WANG H J, CHEN J Y, et al. Lactobacillus delbrueckii ameliorates intestinal integrity and antioxidant ability in weaned piglets after a lipopolysaccharide challenge[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:6028606.

[23]
XIAO K, JIAO L F, CAO S T, et al. Whey protein concentrate enhances intestinal integrity and influences transforming growth factor-β1 and mitogen-activated protein kinase signalling pathways in piglets after lipopolysaccharide challenge[J]. British Journal of Nutrition, 2016, 115(6):984-993.

DOI

[24]
HUANG B, XIAO D F, TAN B, et al. Chitosan oligosaccharide reduces intestinal inflammation that involves calcium-sensing receptor (CaSR) activation in lipopolysaccharide (LPS)-challenged piglets[J]. Journal of Agricultural and Food Chemistry, 2016, 64(1):245-252.

DOI PMID

[25]
KAMPERSCHROER C, GOLDSTEIN R, SCHNEIDER P A, et al. Utilization of lipopolysaccharide challenge in cynomolgus macaques to assess IL-10 receptor antagonism[J]. Journal of Immunotoxicology, 2019, 16(1):164-172.

DOI PMID

[26]
JAKOBSHAGEN K, WARD B, BASCHUK N, et al. Endogenous IL10 alleviates the systemic antiviral cellular immune response and T cell-mediated immunopathology in select organs of acutely LCMV-infected mice[J]. American Journal of Pathology, 2015, 185(11):3025-3038.

DOI PMID

[27]
PU J N, CHEN D W, TIAN G, et al. Protective effects of benzoic acid,Bacillus coagulans,and oregano oil on intestinal injury caused by enterotoxigenic Escherichia coli in weaned piglets[J]. BioMed Research International, 2018, 2018:1829632.

[28]
XIAO D F, TANG Z R, YIN Y L, et al. Effects of dietary administering chitosan on growth performance,jejunal morphology,jejunal mucosal sIgA,occludin,claudin-1 and TLR4 expression in weaned piglets challenged by enterotoxigenic Escherichia coli[J]. International Immunopharmacology, 2013, 17(3):670-676.

DOI

[29]
HU R Z, HE Z Y, LIU M, et al. Dietary protocatechuic acid ameliorates inflammation and up-regulates intestinal tight junction proteins by modulating gut microbiota in LPS-challenged piglets[J]. Journal of Animal Science and Biotechnology, 2020, 11:92.

DOI PMID

[30]
ZHOU Y H, ZENG Z H, XU Y B, et al. Application of Bacillus coagulans in animal husbandry and its underlying mechanisms[J]. Animals, 2020, 10(3):454.

DOI

[31]
ZHANG Z, ZHAO J T, TIAN C Y, et al. Targeting the gut microbiota to investigate the mechanism of lactulose in negating the effects of a high-salt diet on hypertension[J]. Molecular Nutrition & Food Research, 2019, 63(11):e1800941.

[32]
KANG Y B, KUANG X Y, YAN H, et al. A novel synbiotic alleviates autoimmune hepatitis by modulating the gut microbiota-liver axis and inhibiting the hepatic TLR4/NF-κB/NLRP3 signaling pathway[J]. mSystems, 2023, 8(2):e0112722.

DOI

[33]
WANG Y, LIN J X, CHENG Z Y, et al. Bacillus coagulans TL3 Inhibits LPS-induced caecum damage in rat by regulating the TLR4/MyD88/NF-κB and Nrf2 signal pathways and modulating intestinal microflora[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022:5463290.

[34]
XIE M Y, HOU L J, SUN J J, et al. Porcine milk exosome miRNAs attenuate LPS-induced apoptosis through inhibiting TLR4/NF-κB and p53 pathways in intestinal epithelial cells[J]. Journal of Agricultural and Food Chemistry, 2019, 67(34):9477-9491.

DOI

[35]
赵亚波, 萨茹丽, 那·巴根那, 等. 动物氧化和免疫应激模型的建立方法[J]. 中国畜牧杂志, 2018, 54(9):20-25.

ZHAO Y B, SA R L, NA B G N, et al. Methods of animal oxidation and immune stress models[J]. Chinese Journal of Animal Science, 2018, 54(9):20-25. (in Chinese)

[36]
吴旻. β-胡萝卜素对脂多糖诱导的IPEC-J2细胞炎症的保护作用及其机制[D]. 博士学位论文. 长春: 吉林农业大学, 2016.

WU M. The protective effect and mechanism of β-carotene on LPS induced inflammation of IPEC-J2 cells[D]. Ph.D. Thesis. Changchun: Jilin Agricultural University, 2016. (in Chinese)

[37]
王斌. L-色氨酸缓解动物肠道炎症的作用机制研究[D]. 博士学位论文. 北京: 中国农业大学, 2018.

WANG B. Study of the mechanism for the regulatory role of L-tryptophan in alleviating intestinal inflammation in animals[D]. Ph.D. Thesis. Beijing: China Agricultural University, 2018. (in Chinese)

[38]
XAVIER R J, PODOLSKY D K. Unravelling the pathogenesis of inflammatory bowel disease[J]. Nature, 2007, 448(7152):427-434.

DOI

文章导航

/