研究论文

微生物固态发酵条件的优化及其对菜籽粕品质改善的研究

  • 贾冰玉 , 1 ,
  • 邹峰余 1 ,
  • 宋长春 1 ,
  • 谭肖英 1 ,
  • 赵述淼 2 ,
  • 刘志博 1 ,
  • 徐杰杰 1 ,
  • 罗智 , 1, *
展开
  • 1 华中农业大学水产学院,武汉 430070
  • 2 华中农业大学生命科学学院,武汉 430070
* 罗智,教授,博士生导师, E-mail:

贾冰玉(1997—),女,河南周口人,硕士研究生,从事水产动物分子营养与饲料的研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-07-03

  网络出版日期: 2024-01-12

基金资助

国家重点研发计划项目(2018YFD0900400)

Optimization of Solid-State Fermentation Condition of Microorganisms and Their Roles in Improvement of Quality in Rapeseed Meal

  • JIA Bingyu , 1 ,
  • ZOU Fengyu 1 ,
  • SONG Changchun 1 ,
  • TAN Xiaoying 1 ,
  • ZHAO Shumiao 2 ,
  • LIU Zhibo 1 ,
  • XU Jiejie 1 ,
  • LUO Zhi , 1, *
Expand
  • 1 College of Fisheries, Huazhong Agricultural University, Wuhan 430070, China
  • 2 College of Life Science, Huazhong Agricultural University, Wuhan 430070, China
* professor, E-mail:

Received date: 2023-07-03

  Online published: 2024-01-12

摘要

通过优化菜籽粕固态发酵工艺,并对发酵产物进行品质评价,为菜籽粕在水产养殖业的开发利用提供理论基础。本试验采用枯草芽孢杆菌(Bacillus subtilis)、酿酒酵母(Saccharomyces cerevisiae)和植物乳杆菌(Lactobacillus plantarum)对菜籽粕进行固态发酵,首先对不同混菌比例、外源纤维素酶添加量及植酸酶添加量进行优化,在优化条件下对菜籽粕进行固态发酵,然后以硫甙、单宁、植酸、粗蛋白质、酸溶蛋白、总酸含量和pH为指标,评价菜籽粕发酵前后的品质变化。结果显示:枯草芽孢杆菌、酿酒酵母和植物乳杆菌的最佳混菌比例为1∶1∶2、纤维素酶添加量为1.25%、植酸酶添加量为0.10%时,菜籽粕发酵的效果较好。在最优发酵条件下,发酵菜籽粕的硫甙、植酸及单宁含量分别为33 μmol/g、44.49 mg/g和9.53 mg/g,降解率分别为41.92%、40.10%和59.31%。粗蛋白质和酸溶蛋白含量相较于发酵前分别增加了16.59%和41.85%。发酵菜籽粕的总酸含量增加了109.43%,且pH由6.53降至5.68。本研究为提高菜籽粕的饲用价值提供参考,有利于菜籽粕作为植物蛋白质源饲料应用于水产饲料行业中。

本文引用格式

贾冰玉 , 邹峰余 , 宋长春 , 谭肖英 , 赵述淼 , 刘志博 , 徐杰杰 , 罗智 . 微生物固态发酵条件的优化及其对菜籽粕品质改善的研究[J]. 动物营养学报, 2024 , 36(1) : 650 -657 . DOI: 10.12418/CJAN2024.058

Abstract

This study was conducted to optimize the fermentation process of rapeseed meal and to evaluate the quality of fermented rapeseed meal, so as to provide a theoretical basis for the development and utilization of rapeseed meal in aquaculture industry. In this experiment, Bacillus subtilis, Saccharomyces cerevisiae and Lactobacillus plantarum were used for solid-state fermentation of rapeseed meal. First, the ratio of different mixed strains, the concentration of cellulase and phytase were optimized. Then the contents of glucosinolates, tannins and phytic acid, crude protein, acid-soluble protein, total acid and pH were used as evaluation indicators. Under optimized conditions, rapeseed meal was fermented to evaluate the quality of rapeseed meal before and after fermentation. The results showed as follows: the optimal mixed strains ratio were Bacillus subtilisSaccharomyces cerevisiaeLactobacillus plantarum =1∶1∶2. The optimal cellulose concentration required for fermented rapeseed meal was 1.25% and the phytase concentration was 0.10%. After rapeseed meal was fermented, the contents of glucosinolate, phytic acid and tannins were 33 μmol/g, 44.49 mg/g and 9.53 mg/g, respectively, and the degradation rates were 41.92%, 40.10% and 59.31%, respectively. The crude protein and acid soluble protein contents increased by 16.59% and 41.85% compared with initial rapeseed meal. The total acid content of fermented rapeseed meal increased by 109.43%, and the pH decreased from 6.53 to 5.68. This study provides a reference for improving the value of rapeseed meal. This study is beneficial to the research on the application of rapeseed meal as a plant protein source in animal production.

油菜是我国主要油料作物之一,而菜籽粕(RSM)是油菜籽榨油后产生的副产品,是我国第二大蛋白质原料[1]。RSM不仅营养物质丰富[2-3],而且是维生素和矿物质的良好来源[4-6],可作为蛋白质资源应用于水产饲料行业,用来填补蛋白质源饲料的短缺。然而,RSM含有硫甙、植酸和单宁等大量抗营养因子,这些物质不仅能降低RSM的营养价值,而且会对动物的生长性能及消化吸收功能产生不利影响,极大地限制了RSM在水产饲料中的应用[7-12]。因此,控制RSM的抗营养因子含量,提高蛋白质水平,可以减少RSM资源的浪费。
微生物发酵法具有成本低、发酵产物营养高、安全无污染等优点[13]。研究表明,微生物生长繁殖时分泌的生物活性酶会分解抗营养因子和蛋白质,使发酵菜籽粕(FRSM)中的抗营养因子含量明显降低,营养物质含量增加,适口性也明显改善[14-15]。目前,微生物发酵法成为改善RSM品质的重要研究方向。在以往研究中,尽管多种微生物被用于RSM发酵,但仍存在不足。因此,寻求符合《饲料添加剂品种目录》规定的微生物种类,对于FRSM在水产饲料业的开发和应用具有重大意义[16-17]。本试验通过RSM发酵前后品质的评估,旨在确定枯草芽孢杆菌(Bacillus subtilis)、植物乳杆菌(Lactobacillus plantarum)和酿酒酵母(Saccharomyces cerevisiae)的最适添加比例,优化RSM固态发酵条件,以期为提高RSM的饲用价值提供参考。

1 材料与方法

1.1 试验菌种

枯草芽孢杆菌购自中国典型培养物保藏中心(微生物保藏编号:CCTCC AB 90008);酿酒酵母和植物乳杆菌由华中农业大学生命科学技术学院发酵与酶工程教研室赵述淼教授慷慨提供。

1.2 试验试剂

牛肉膏、氯化钯、钨酸钠-磷钼酸和植酸钠(上海麦克林生化科技有限公司);酚酞和单宁酸(上海阿拉丁生化科技股份有限公司);植酸酶(10 000 U/g,武汉新华扬生物公司);纤维素酶(50 000 U/g,上海源叶生物科技有限公司);其他化学试剂均为分析纯,购自上海国药。
LB培养基(100 mL,枯草芽孢杆菌用):蛋白胨1 g,酵母粉0.5 g,氯化钠0.5 g,121 ℃灭菌20 min。
MRS培养基(100 mL,植物乳杆菌用):蛋白胨1 g,牛肉膏1 g,酵母粉0.5 g,葡萄糖2 g,无水醋酸钠0.5 g,柠檬酸二铵0.2 g,吐温-80 0.1 mL,硫酸镁0.058 g,硫酸锰0.025 g,121 ℃灭菌20 min。
YPD培养基(100 mL,酿酒酵母用):酵母粉1 g,蛋白胨2 g,葡萄糖2 g,121 ℃灭菌20 min。
固体培养基为上述液体培养基中加1.5~2.0 g的琼脂。
RSM固态发酵培养基:RSM经粉碎过60目筛,称取适量后置于250 mL锥形瓶中,121 ℃灭菌20 min,备用。

1.3 菌株制备

使用接种环将保藏在斜面上的单一菌种刮取2~3环,接种于对应培养基中,37 ℃振荡培养24 h,为一级种子液。再以一级种子液的5%接种于250 mL锥形瓶中,37 ℃振荡培养24 h,置于4 ℃冰箱备用。枯草芽孢杆菌菌液浓度为2.08×10⁸ CFU/mL,酿酒酵母菌液浓度为1.25×107 CFU/mL,植物乳杆菌菌液浓度为1.36×108 CFU/mL。

1.4 固态发酵

将枯草芽孢杆菌、酿酒酵母和植物乳杆菌分别以1∶1∶1、2∶1∶1、1∶2∶1、1∶1∶2的比例接种于RSM固体发酵培养基,其中总接种量为12%,添加灭菌水至初始水分含量为60%,37 ℃发酵96 h,以相同处理不接菌种的RSM作为对照,每个处理3个重复。发酵完成后55 ℃烘干,粉碎过40目筛,-20 ℃保存备用。测定样品的硫甙、植酸、单宁、总酸含量及pH,以此选取最优的混菌比例。
按照上述方法,参照最优混菌比例将菌液接种于RSM固态发酵培养基,分别添加纤维素酶(0、0.50%、1.25%、2.00%)和植酸酶(0、0.03%、0.10%、0.33%)至发酵培养基,37 ℃发酵96 h。以相同处理不接菌种的RSM作为对照,每个处理3个重复。发酵完成后,55 ℃烘干粉碎过40目筛,-20 ℃保存备用。测定硫甙、植酸、单宁、粗蛋白质、总酸的含量及pH,以此选取最优的纤维素酶和植酸酶添加量。
参照优化的发酵条件对RSM进行固态发酵。其中,以相同处理不接菌种的RSM作为对照,每个处理3个重复。发酵完成后,55 ℃烘干粉碎过40目筛,-20 ℃保存备用。测定未发酵RSM和FRSM的硫甙、植酸、单宁、粗蛋白质、酸溶蛋白、总酸的含量及pH,以此评价FRSM的品质。

1.5 测定指标及方法

按照氯化钯法[16]测定硫甙的含量;按照Gao等[18]的方法测定植酸的含量;采用GB/T 27985—2011方法测定单宁的含量;采用GB/T 6432—2018方法测定粗蛋白质的含量;采用NY/T 3801—2020方法测定酸溶蛋白的含量;采用滴定法测定总酸的含量[19];采用pH计测定发酵前后的pH。

1.6 统计分析

采用SPSS 17.0软件对试验数据进行统计分析,所有数据结果均用平均值±标准误(n=3)表示,使用one-way ANOVA程序进行单因素方差分析,若差异显著,则采用Duncan氏多重比较法检验不同处理间的差异显著性,P<0.05为差异显著。

2 结果与分析

2.1 混菌比例对固态FRSM的影响

图1可知,与对照相比,混菌发酵可显著降低RSM的植酸含量(P<0.05),但不同混菌接种比例对植酸含量没有显著影响(P>0.05)。混菌比例为1∶1∶2时,总酸含量最高,且硫甙含量和pH最低。综合考虑,枯草芽孢杆菌、酿酒酵母及植物乳杆菌的比例选取1∶1∶2时发酵效果较好,此时,RSM的抗营养因子得到有效降解,总酸含量得到显著提高。
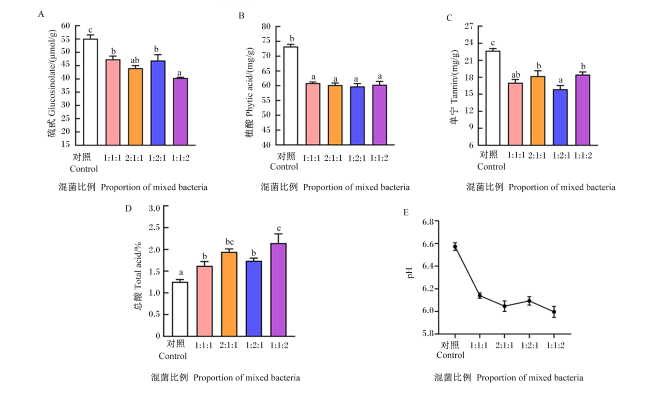
图1 枯草芽孢杆菌、酿酒酵母及植物乳杆菌比例对固态发酵菜籽粕的影响

不同字母表示差异显著(P<0.05)。

Fig.1 Effects of proportion of Bacillus subtilis, Saccharomyces cerevisiae and Lactobacillus plantarum on solid fermented rapeseed meal

Different letters mean significant difference (P<0.05).

2.2 纤维素酶添加对RSM混菌发酵效果的影响

图2可知,与未添加纤维素酶相比,添加纤维素酶发酵的RSM的硫甙含量显著降低(P<0.05),总酸含量也显著增加(P<0.05)。随着纤维素酶添加量的增加,FRSM的植酸含量逐渐降低,粗蛋白质含量逐渐增加,纤维素酶添加量达到1.25%时,粗蛋白质含量趋于稳定。因此,综合考虑经济成本,在RSM发酵工艺中纤维素酶添加量为1.25%较合适。
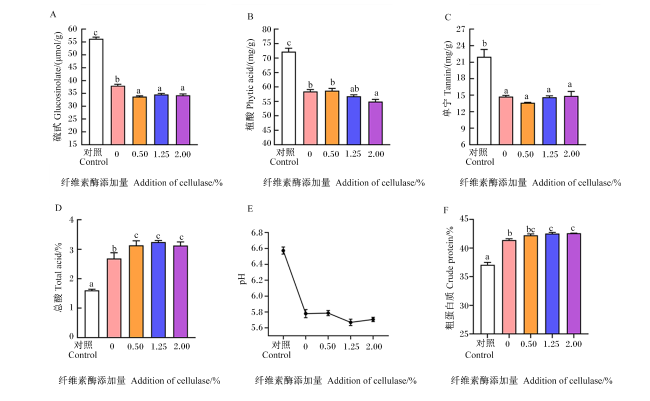
图2 纤维素酶添加对菜籽粕混菌发酵效果的影响

Fig.2 Effects of cellulase addition on fermentation of rapeseed meal by mixed bacteria

2.3 植酸酶添加对RSM混菌发酵效果的影响

图3可知,与未添加植酸酶相比,添加植酸酶发酵的FRSM的抗营养因子含量显著降低(P<0.05),总酸及粗蛋白质含量显著升高(P<0.05)。添加植酸酶发酵的FRSM的硫甙含量显著降低(P<0.05)。随着植酸酶添加量的增加,植酸及单宁含量逐渐降低,总酸及粗蛋白质含量逐渐增加,植酸酶添加量达到0.10%时趋于稳定。因此,RSM固态发酵选取0.10%的植酸酶添加量较合适。
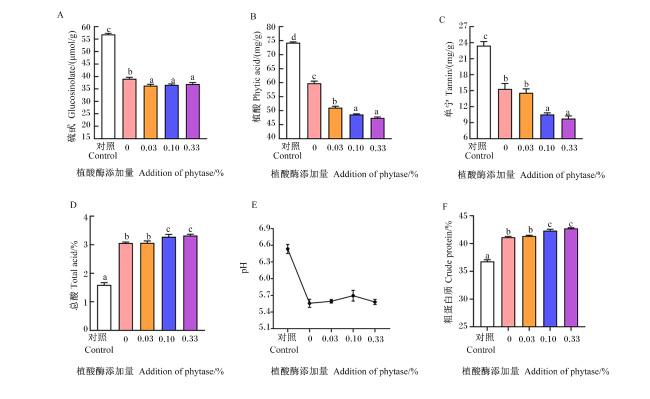
图3 植酸酶添加对菜籽粕混菌发酵效果的影响

Fig.3 Effects of phytase addition on fermentation of rapeseed meal by mixed bacteria

2.4 FRSM的品质评价

RSM发酵前后的抗营养因子及营养成分含量如表1所示。固态发酵后,RSM中的硫甙、植酸和单宁含量分别降解了41.92%、40.10%和59.31%。与未发酵RSM相比,FRSM的粗蛋白质含量增加了16.59%,酸溶蛋白含量增加了41.85%,总酸含量增加了109.43%,pH由发酵前的6.53左右下降到5.68左右。上述结果说明,RSM可通过微生物发酵有效降低抗营养因子含量,增加粗蛋白质和总酸含量,从而改善适口性,提高RSM的营养价值。
表1 菜籽粕发酵前后抗营养因子及营养成分含量的变化

Table 1 Changes of contents of anti-nutritional factors and nutritional composition in rapeseed meal before and after fermentation

项目
Items
菜籽粕
RSM
发酵菜籽粕
FRSM
变化率
Rate of change/%
硫甙Glucosinolate/(μmol/g) 56.91±0.42 33.05±0.40 -41.92
植酸Phytic acid/(mg/g) 74.27±0.32 44.49±0.50 -40.10
单宁Tannin/(mg/g) 23.43±0.77 9.53±0.39 -59.31
粗蛋白质Crude protein/% 36.81±0.29 42.99±0.04 16.59
酸溶蛋白Acid-soluble protein/% 3.31±0.20 4.70±0.14 41.85
总酸Total acid/% 1.59±0.08 3.33±0.05 109.43
pH 6.53±0.07 5.68±0.03 -13.06

3 讨论

固态发酵是在没有或含少量游离水的情况下,微生物在固体培养基上生长繁殖的发酵方式[20]。与液态发酵相比,固态发酵不仅加工工艺流程简单、成本低、能源消耗小、发酵过程中产生的废液和次级代谢产物较少,而且产生的酶不易受底物抑制[21]。因此,本研究对RSM进行固态发酵,结果表明FRSM的抗营养因子含量降低,品质得到提升。有研究结果表明,采用黑曲霉固态发酵可使RSM硫甙和植酸含量分别降低43.07%和86.09%[14]。何小丽[16]通过固态发酵也发现,FRSM的硫甙、单宁和粗纤维含量得到大幅降解,且酸溶蛋白含量增加。
混菌发酵对抗营养因子的降解效果比单菌发酵好,主要原因可能是混菌产生的酶系比单菌更复杂,因此能够分解更多种的抗营养因子[14,22]。另外,不同的菌种接种比例对RSM的发酵存在差异[16,23]。在本研究中,FRSM的最佳接种比例为枯草芽孢杆菌∶酿酒酵母∶植物乳杆菌=1∶1∶2。枯草芽孢杆菌、植物乳杆菌和酿酒酵母均为《饲料添加剂品种目录》中允许添加的微生物。枯草芽孢杆菌生长繁殖时会产生蛋白酶、纤维素酶、植酸酶、维生素等多种物质,部分芽孢杆菌产生的酶可以裂解植物细胞壁,增加营养物质内外的流动性,从而增加蛋白质含量[24-25]。酵母菌本身含有丰富的蛋白质及维生素,其在生长繁殖时不仅能转化尿素和硫酸铵等物质,增加发酵培养基中的营养,而且产生的代谢物能刺激乳酸菌的生长繁殖[26]
在固体发酵前期,枯草芽孢杆菌和酿酒酵母消耗氧气用于生长繁殖,可以为乳酸菌的生长增殖和代谢提供良好的厌氧环境[27]。黄茜等[22]通过单菌及混菌FRSM的试验发现,混菌发酵后RSM的植酸、芥子碱及中性洗涤纤维含量显著低于单菌发酵。
在饲料的实际生产中,微生物产生的酶可能酶量不足或活性低,这使RSM不能被完全分解。而酶解RSM并不能产生有用的微生物代谢物,如柠檬酸、草酸和乳酸[5]。菌酶协同发酵改善了单纯微生物发酵或酶解发酵的不足,它不仅能显著分解饲料中的大分子物质,而且能得到有机酸等微生物代谢产物,具有很高的实际生产价值。动物没有粗纤维降解相关酶,过量粗纤维不仅会增加动物饱腹感,降低摄食量,还会降低饲料转化率[28]。RSM含有大量的粗纤维,纤维素酶通过破坏植物细胞壁降解RSM中的粗纤维,可以增加RSM的利用率[29]。本研究结果表明,添加纤维素酶发酵的RSM的硫甙和植酸含量明显降低,粗蛋白质和总酸含量也得到增加。这与张妮娅等[30]的研究结果相似。植酸能和金属阳离子或蛋白质发生螯合作用,从而降低矿物质的生物效能,影响水解酶的活性,降低蛋白质的利用率并影响动物的消化吸收功能[6]。发酵RSM前添加外源植酸酶可以降解植酸,促进微生物生长繁殖时对RSM的分解利用,并提高有效磷含量[31]。在本研究中,添加植酸酶发酵的RSM的硫甙、植酸和单宁含量明显降低,粗蛋白质和总酸含量增加。朱秋华等[31]通过对酶解条件进行优化,发现植酸酶能够明显降低RSM中的植酸含量。
虽然RSM在我国资源丰富,但添加RSM至饲料中的水平过高会导致水产动物的生长性能和饲料系数降低,损伤鱼体的消化能力及抗氧化功能[32-33]。有研究表明,FRSM可以提高水产动物饲料中蛋白质的替代水平[34]。与未发酵RSM替代组相比,FRSM替代组可明显增加鱼类的生长性能及饲料利用率[29,35]。因此,研究FRSM有利于RSM在水产饲料行业的开发应用。在优化条件下,对RSM进行固态发酵,研究表明RSM中的抗营养因子(硫甙、单宁和植酸)含量均下降,粗蛋白质和总酸含量上升。这与姚晓红等[36]的研究结果类似,通过菌酶协同处理RSM,结果显示FRSM的硫甙、单宁和植酸含量分别降低了74.23%、31.17%和16.39%,粗蛋白质含量增加了1.92%。在发酵前提前使用酶分解RSM中微生物难以利用的大分子物质,可以促进微生物的生长繁殖,缩短发酵周期[17]。对其他植物性蛋白质源进行菌酶发酵,也得到了类似的结果,通过菌酶协同处理豆粕,表明发酵豆粕中的粗蛋白质、小肽及总酸含量都明显高于未发酵豆粕[35]。本研究表明,枯草芽孢杆菌、酿酒酵母和植物乳杆菌联合纤维素酶和植酸酶对RSM进行固态发酵,能够显著提升RSM的品质,缩短发酵周期,有效解决RSM作为蛋白质原料受限的问题。

4 结论

发酵所用混菌比例为枯草芽孢杆菌∶酿酒酵母∶植物乳杆菌=1∶1∶2、纤维素酶添加量为1.25%、植酸酶添加量为0.10%时,RSM发酵的效果较好。采用优化条件对RSM进行固态发酵,FRSM的硫甙、植酸和单宁含量分别降低了41.92%、40.10%和59.31%,粗蛋白质、酸溶蛋白和总酸含量分别增加了16.59%、41.85%和109.43%。RSM经纤维素酶和植酸酶水解,再采用枯草芽孢杆菌、酿酒酵母和植物乳杆菌进行固态发酵,降低了RSM中的硫甙、单宁和植酸含量,提高了粗蛋白质和总酸含量。因此,FRSM的营养价值改善,适口性增加,其品质大大提升,具有较高的饲用价值。但是,FRSM在水产饲料行业的应用仍需进一步研究。
[1]
LONG C, QI X L, VENEMA K. Chemical and nutritional characteristics,and microbial degradation of rapeseed meal recalcitrant carbohydrates:a review[J]. Frontiers in Nutrition, 2022, 9:948302.

DOI

[2]
LOMASCOLO A, UZAN-BOUKHRIS E, SIGOILLOT J C, et al. Rapeseed and sunflower meal:a review on biotechnology status and challenges[J]. Applied Microbiology and Biotechnology, 2012, 95(5):1105-1114.

DOI

[3]
LIU W C, LEE S I, HONG S T, et al. Comparison of apparent total tract and ileal digestibility in growing and finishing pigs fed soybean meal,rapeseed meal,and canola meal[J]. Journal of Applied Animal Research, 2018, 46(1):55-59.

DOI

[4]
BELL J M. Nutrients and toxicants in rapeseed meal:a review[J]. Journal of Animal Science, 1984, 58(4):996-1010.

DOI

[5]
COUTO S R, SANROMÁN M Á. Application of solid-state fermentation to food industry—a review[J]. Journal of Food Engineering, 2006, 76(3):291-302.

DOI

[6]
GOŁEBIEWSKA K, FRAŚ A, GOŁEBIEWSKI D. Rapeseed meal as a feed component in monogastric animal nutrition—a review[J]. Annals of Animal Science, 2022, 22(4):1163-1183.

DOI

[7]
HU Y N, WANG Y W, LI A K, et al. Effects of fermented rapeseed meal on antioxidant functions,serum biochemical parameters and intestinal morphology in broilers[J]. Food and Agricultural Immunology, 2016, 27(2):182-193.

DOI

[8]
YUN H M, LEI X J, LEE S I, et al. Rapeseed meal and canola meal can partially replace soybean meal as a protein source in finishing pigs[J]. Journal of Applied Animal Research, 2018, 46(1):195-199.

DOI

[9]
HAO Y N, WANG Z G, ZOU Y C, et al. Effect of static-state fermentation on volatile composition in rapeseed meal[J]. Journal of the Science of Food and Agriculture, 2020, 100(5):2145-2152.

DOI PMID

[10]
BARBA F J, NIKMARAM N, ROOHINEJAD S, et al. Bioavailability of glucosinolates and their breakdown products:impact of processing[J]. Frontiers in Nutrition, 2016, 3:24.

[11]
NEGA T, WOLDES Y. Review on nutritional limitations and opportunities of using rapeseed meal and other rape seed by-products in animal feeding[J]. Journal of Nutritional Health & Food Engineering, 2018, 8(1):43-48.

[12]
MANSOORI B, ACAMOVIC T. The effect of tannic acid on the excretion of endogenous methionine,histidine and lysine with broilers[J]. Animal Feed Science and Technology, 2007, 134(3/4):198-210.

DOI

[13]
胡永娜. 微生物发酵菜籽粕营养价值的评定及其对肉仔鸡生长发育的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2012.

HU Y N. Nutritional value evaluation of fermented rapeseed meal and its effects on growth and development of broilers[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2012. (in Chinese)

[14]
SHI C Y, HE J, YU J, et al. Physicochemical properties analysis and secretome of Aspergillus niger in fermented rapeseed meal[J]. PLoS One, 2016, 11(4):e0153230.

DOI

[15]
GRELA E R, CZECH A, KIESZ M, et al. A fermented rapeseed meal additive:effects on production performance,nutrient digestibility,colostrum immunoglobulin content and microbial flora in sows[J]. Animal Nutrition, 2019, 5(4):373-379.

DOI

[16]
何小丽. 生物发酵法改善菜粕品质的研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2015.

HE X L. The study on biological fermentation to improve thequality of rapeseed meal[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2015. (in Chinese)

[17]
王刚, 蔡国林, 陆健. 微生物发酵改善菜籽粕品质的研究[J]. 中国油脂, 2011, 36(7):24-28.

WANG G, CAI G L, LU J. Improving the quality of rapeseed meal by microbial fermentation[J]. China Oils and Fats, 2011, 36(7):24-28. (in Chinese)

[18]
GAO Y, SHANG C, MAROOF M A S, et al. A modified colorimetric method for phytic acid analysis in soybean[J]. Crop Science, 2007, 47(5):1797-1803.

DOI

[19]
朱少华, 曲露, 李小定, 等. 菜籽粕固态分步发酵的工艺研究[J]. 中国油脂, 2014, 39(7):37-41.

ZHU S H, QU L, LI X D, et al. Two-step solid fermentation process of rapeseed meal[J]. China Oils and Fats, 2014, 39(7):37-41. (in Chinese)

[20]
RENGE V C, KHEDKAR S V, NANDURKAR N R. Enzyme synthesis by fermentation method:a review[J]. Scientific Reviews & Chemical Communications, 2012, 2(4):585-590.

[21]
BARRIOS-GONZÁLEZ J. Solid-state fermentation:physiology of solid medium,its molecular basis and applications[J]. Process Biochemistry, 2012, 47(2):175-185.

DOI

[22]
黄茜, 钮琰星, 倪光远, 等. 菜籽饼粕饲用品质改良菌株的筛选与混合发酵[J]. 食品与发酵工业, 2009, 35(10):73-76.

HUANG Q, NIU Y X, NI G Y, et al. The study of screening and mixing the strains improving feeding quality of rapeseed meal[J]. Food and Fermentation Industries, 2009, 35(10):73-76. (in Chinese)

[23]
吴正可, 刘国华, 李阳, 等. 混菌固态发酵菜籽粕工艺优化[J]. 中国农业科学, 2019, 52(24):4603-4612.

DOI

WU Z K, LIU G H, LI Y, et al. Optimization of solid state fermentation for rapeseed meal with mixed strains[J]. Scientia Agricultura Sinica, 2019, 52(24):4603-4612. (in Chinese)

DOI

[24]
SUN H, TANG J W, YAO X H, et al. Improvement of the nutritional quality of cottonseed meal by Bacillus subtilis and the addition of papain[J]. International Journal of Agriculture & Biology, 2012, 14(4):563-568.

[25]
MIRZAPOUR-REZAEE S S, FARHANGI M, RAFIEE G. Combined effects of dietary mannan- and fructo-oligosaccharide on growth indices,body composition,intestinal bacterial flora and digestive enzymes activity of regal peacock (Aulonocara stuartgranti)[J]. Aquaculture Nutrition, 2017, 23(3):629-636.

DOI

[26]
宁亚丽, 吴跃, 何嫱, 等. 基于高通量测序技术分析朝鲜族传统米酒及其酒曲中微生物群落多样性[J]. 食品科学, 2019, 40(16):107-114.

DOI

NING Y L, WU Y, HE Q, et al. Analysis of microbial community diversity in Chinese Korean traditional rice wine and its starter culture using high-throughput sequencing[J]. Food Science, 2019, 40(16):107-114. (in Chinese)

DOI

[27]
王赫, 朱风华, 陈甫, 等. 不同发酵时间对乳酸菌发酵饲料中主要营养物质、乳酸菌和乳酸含量的影响[J]. 中国家禽, 2017, 39(10):27-31.

WANG H, ZHU F H, CHEN F, et al. Effects of different fermentation time on main nutrients,lactic acid bacteria and lactic acid in feed fermented with lactic acid bacteria[J]. China Poultry, 2017, 39(10):27-31. (in Chinese)

[28]
谢燕娟. 低粗纤维饲粮对仔鹅生长发育及盲肠微生物的影响[D]. 硕士学位论文. 扬州: 扬州大学, 2016.

XIE Y J. Effects of low-fiber diet on growth development and cecal microbial of geese[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2016. (in Chinese)

[29]
邓荟芬, 赵文河, 龙平, 等. 纤维素酶不同添加量对饲用苎麻与麦麸混合青贮品质的影响[J]. 湖南畜牧兽医, 2022(6):34-37.

DENG H F, ZHAO W H, LONG P, et al. Effects of different supplemental levels of cellulase on the quality of mixed silage of forage ramie and wheat bran[J]. Hunan Journal of Animal Science & Veterinary Medicine, 2022(6):34-37. (in Chinese)

[30]
张妮娅, 齐德生. 添加酶制剂改善“双低”菜籽粕营养物质及能量代谢的研究[J]. 中国粮油学报, 2004, 19(5):69-74.

ZHANG N Y, QI D S. Efficacy of enzyme supplementation on nutriment metabolism of double-low rapeseed meal[J]. Journal of the Chinese Cereals and Oils Association, 2004, 19(5):69-74. (in Chinese)

[31]
朱秋华, 郑超, 高有领, 等. 外源植酸酶对菜籽粕中植酸的酶解条件优化[J]. 中国饲料, 2013(13):4-7.

ZHU Q H, ZHENG C, GAO Y L, et al. Optimization of enzymolysis conditions for phytic acid in rapeseed meal by exogenous phytase[J]. China Feed, 2013(13):4-7. (in Chinese)

[32]
WU F, TIAN J, YU L J, et al. Effects of dietary rapeseed meal levels on growth performance,biochemical indices and flesh quality of juvenile genetically improved farmed tilapia[J]. Aquaculture Reports, 2021, 20:100679.

DOI

[33]
ZHANG X D, WANG H Z, ZHANG J W, et al. Assessment of rapeseed meal as fish meal alternative in diets for juvenile Asian red-tailed catfish (Hemibagrus wyckioides)[J]. Aquaculture Reports, 2020, 18:100497.

DOI

[34]
JANNATHULLA R, DAYAL J S, AMBASANKAR K, et al. Evaluation of fungal fermented rapeseed meal as a fishmeal substitute in the diet of Penaeus vannamei[J]. Journal of Coastal Research, 2019, 86(sp1):82-89.

DOI

[35]
毛银, 陆春波, 李国辉, 等. 菌酶协同发酵豆粕工艺的优化[J]. 食品与发酵工业, 2019, 45(14):108-114.

MAO Y, LU C B, LI G H, et al. Optimized fermentation process of soybean meal by bacteria with enzymes[J]. Food and Fermentation Industries, 2019, 45(14):108-114. (in Chinese)

[36]
姚晓红, 吴逸飞, 王新, 等. 菌酶协同制备菜籽肽工艺的优化及其营养成分分析[J]. 饲料工业, 2011, 32(18):47-51.

YAO X H, WU Y F, WANG X, et al. Study on fermentation conditions of the rapeseed meal by cooperation of bacteria and enzyme for peptide and analysis of nutrition composition[J]. Feed Industry, 2011, 32(18):47-51. (in Chinese)

文章导航

/