研究论文

塔里木马鹿生茸不同阶段营养物质表观消化率及瘤胃内环境变化规律的研究

  • 盛月云 , 1 ,
  • 黄建智 1 ,
  • 薛鹏飞 1 ,
  • 于东辉 1 ,
  • 古力皮叶木·阿布都克然木 1 ,
  • 钱文熙 , 1, 2, *
展开
  • 1 塔里木大学动物科学与技术学院,阿拉尔 843300
  • 2 新疆建设兵团塔里木畜牧科技重点实验室,阿拉尔 843300
* 钱文熙,教授,博士生导师,E-mail:

盛月云(1999—),女,新疆伊犁人,硕士研究生,从事反刍动物营养研究。E-mail:

Copy editor: 武海龙

收稿日期: 2023-08-31

  网络出版日期: 2024-02-01

基金资助

肉用马鹿繁育及高效养殖技术集成与示范(2023AB007-02)

Study on Change Rules of Nutrient Apparent Digestibility and Rumen Environment of Tarim Wapiti in Different Stages of Antler Growth

  • SHENG Yueyun , 1 ,
  • HUANG Jianzhi 1 ,
  • XUE Pengfei 1 ,
  • YU Donghui 1 ,
  • GULPIYEMU Abdulkaranmu 1 ,
  • QIAN Wenxi , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Tarim University, Aral 843300, China
  • 2 Key Laboratory of Animal Husbandry Science and Technology, Xinjiang Construction Corps, Aral 843300, China
* professor, E-mail:

Received date: 2023-08-31

  Online published: 2024-02-01

摘要

本试验旨在研究塔里木马鹿生茸不同阶段营养物质表观消化率及瘤胃内环境变化规律。选择体况良好、年龄相同的雄性塔里木马鹿5只,饲养水平一致,采用单因素试验设计,分为4个生茸阶段(脱盘前期、生茸高峰期、生茸后期和锯茸后期)。每期21 d,其中预试期15 d,正试期6 d。结果表明:1)塔里木马鹿生茸高峰期的粗蛋白质(CP)表观消化率显著高于生茸后期和锯茸后期(P<0.05),生茸高峰期的有机物(OM)和酸性洗涤纤维(ADF)表观消化率显著高于锯茸后期(P<0.05)。2)塔里木马鹿生茸高峰期和生茸后期的瘤胃微生物蛋白(MCP)和丙酸含量显著高于脱盘前期和锯茸后期(P<0.05),生茸高峰期的瘤胃乙酸、丁酸及总挥发性脂肪酸(TVFA)含量显著高于脱盘前期、生茸后期和锯茸后期(P<0.05),生茸后期的瘤胃异丁酸含量显著低于脱盘前期和锯茸后期(P<0.05),脱盘前期和锯茸后期的瘤胃异戊酸含量显著高于生茸高峰期和生茸后期(P<0.05)。3)在门水平上,塔里木马鹿生茸不同阶段瘤胃中拟杆菌门(Bacteroidetes)和厚壁菌门(Firmicutes)为优势菌门;生茸高峰期的瘤胃拟杆菌门相对丰度显著高于脱盘前期(P<0.05),脱盘前期瘤胃厚壁菌门和变形菌门(Proteobacteria)相对丰度显著高于生茸高峰期(P<0.05)。在属水平上,塔里木马鹿生茸不同阶段瘤胃中未注释的拟杆菌目(unidentified-Bacteroidales)、解琥珀酸菌属(Succiniclasticum)为优势菌属;生茸后期的瘤胃未注释的瘤胃球菌科(unidentified-Ruminococcaceae)相对丰度显著高于生茸高峰期(P<0.05),脱盘前期的瘤胃未注释的毛螺菌科(unidentified-Lachnospiraceae)和厌氧弧菌属(Anaerovibrio)相对丰度显著高于生茸高峰期(P<0.05)。由此可见,塔里木马鹿在生茸高峰期表现出对蛋白质的高效利用能力,瘤胃未注释的毛螺菌科、厌氧弧菌属和未注释的瘤胃球菌科是影响塔里木马鹿生茸阶段营养物质表观消化率和发酵参数的主要菌属。

本文引用格式

盛月云 , 黄建智 , 薛鹏飞 , 于东辉 , 古力皮叶木·阿布都克然木 , 钱文熙 . 塔里木马鹿生茸不同阶段营养物质表观消化率及瘤胃内环境变化规律的研究[J]. 动物营养学报, 2024 , 36(2) : 1127 -1138 . DOI: 10.12418/CJAN2024.102

Abstract

This experiment was conducted to study on change rules of nutrient apparent digestibility and rumen environment of Tarim wapiti in different stages of antler growth. Five male Tarim wapiti with good body condition and the same age were selected, with the same feeding level, and a single factor experimental design was conducted, which divided into 4 antler growth stages (early stage of antler plate, peak period of antler growth, late stage of antler growth and late stage of sawing antler). Each stage lasted for 21 days, with a pre-trial period of 15 days and a trial period of 6 days. The results showed as follows: 1) the crude protein (CP) apparent digestibility of Tarim wapiti in peak period of antler growth was significantly higher than that in late stage of antler growth and late stage of sawing antler (P<0.05), and the organic matter (OM) and acidic detergent fiber (ADF) apparent digestibilities in peak period of antler growth were significantly higher than those in late stage of sawing antler (P<0.05). 2) The contents of microbial protein (MCP) and propionic acid in rumen of Tarim wapiti in peak period of antler growth and late stage of antler growth were significantly higher than those in early stage of antler plate and late stage of sawing antler (P<0.05), the contents of acetic acid, butyric acid and total volatile fatty acids (TVFA) in rumen in peak period of antler growth were significantly higher than those in early stage of antler plate, late stage of antler growth and late stage of sawing antler (P<0.05), the rumen isobutyric acid content in late stage of antler growth was significantly lower than that in early stage of antler plate and late stage of sawing antler (P<0.05), and the rumen isovaleric acid content in early stage of antler plate and late stage of sawing antler was significantly higher than that in peak period of antler growth and late stage of antler growth (P<0.05). 3) At the phylum level, the Bacteroidetes and Firmicutes were the dominant phyla in rumen of Tarim wapiti in different stages of antler growth; the rumen Bacteroidetes relative abundance in peak period of antler growth was significantly higher than that in early stage of antler plate (P<0.05), and the relative abundances of Firmicutes and Proteobacteria in rumen in early stage of antler plate were significantly higher than those in peak period of antler growth (P<0.05). At the genus level, the Unidentified-Ruminococcaceae and Succiniclasticum were the dominant genera in rumen of Tarim wapiti in different stages of antler growth; the rumen unidentified-Ruminococcaceae relative abundance in late stage of antler plate was sgnificantly higher than that in peak period of antler growth (P<0.05), and the relative abundances of unidentified-Lachnospiraceae and Anaerovibrio in rumen in early stage of antler plate were significantly higher than those in peak period of antler growth (P<0.05). In conclusion, the Tarim wapiti show the efficient utilization capacity of protein in peak period of antler growth, the remen unidentified-Lachnospiraceae, Anaerovibrio and unidentified-Ruminococcaceae are the main genera that affects the nutrient apparent digestibility and fermentation parameters Tarim wapiti in antler growth stage.

塔里木马鹿是新疆重点养殖的特色经济动物,其野生种群是唯一栖息在荒漠生境中的马鹿亚种。塔里木马鹿通过采食低质粗饲料获取能量和蛋白质,长期处于营养匮乏状态,因此展现出了极高且强大的营养生态适应特征[1]。鹿茸是哺乳动物中唯一可再生(一年一脱落)的器官,成年雄性马鹿在生产上一般分为生茸期、配种期和生茸恢复期3个阶段,生茸期是公鹿养殖的关键期[2]。在不到70 d的生茸期里,公鹿不仅要恢复配种期间失去的体重,每天还能增加800~900 g的体重和120~160 g的鹿茸[3]。特别的是,随着饲喂水平和采食量的增加,饲料利用率一直保持很高。
研究发现,在相同的喂养条件下,相比新疆褐牛、绵羊,塔里木马鹿对粗饲料有更强的适应性,这种特性与塔里木马鹿瘤胃菌群中纤维降解菌相对丰度较高有关,提高了其对饲草料的利用效率[4]。马鹿在生茸期具有较高的饲料利用率,尤其是对蛋白质的利用,其机理尚不清楚,其原因可能与体内蛋白质(氨基酸)周转效率、瘤胃菌群等有关。有关对公鹿生茸期消化生理特点的研究报导非常少。所以,研究塔里木马鹿生茸不同阶段瘤胃内环境的规律变化,不仅有助于后期为系统挖掘马鹿对饲粮蛋白质分配模式和体内蛋白质代谢特征提供前期研究,也可为鹿茸生产调控研究提供重要理论依据。

1 材料与方法

1.1 试验时间和地点

试验于2018年3—7月在塔里木大学动物科学与技术学院实验站进行。

1.2 试验设计及饲养管理

本试验采用单因素试验设计。根据各时期鹿茸的生产特性,把塔里木马鹿分为4个生产时期,分别为脱盘前期(角盘脱落前21 d)、生茸高峰期(茸型由冰枝开始向三杈生长的21 d)、生茸后期(茸型由三杈开始向四杈生长的21 d)和锯茸后期(锯茸后待马鹿恢复3~5 d后的21 d)。试验选用5只成年体况接近、健康的雄性塔里木马鹿为试验动物。预试期前10 d使用阿苯达挫统一驱虫,每日08:00、19:00各饲喂1次,保证自由采食和饮水。共分4期进行试验,每期21 d,其中预试期15 d,正试期6 d,每期正试期第1天开始收集粪样,正试期第6天晨饲后3 h采集瘤胃液。试验采用外源指示剂法测定消化率,每日08:00、19:00各饲喂1次,每次饲喂2.0 g三氧化二铬(Cr2O3),与饲粮充分混匀后饲喂。
试验饲粮参照《中国养鹿学》[5]和《新疆马鹿饲养技术》[2]中建议的马鹿营养需要进行配方设计。采用全混合日粮饲喂,饲粮精粗比为5:5,脱盘前期、生茸高峰期、生茸后期和锯茸后期干物质采食量分别为4.00、6.25、7.56和4.50 kg。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
苜蓿颗粒 Alfalfa granules 20.00
棉籽壳 Cottonseed hull 27.00
玉米粉 Com four 10.00
豆粕 Soybean meal 20.00
棉籽粕 Cottonseed meal 10.00
麸皮 Bran 10.00
磷酸氢钙 CaHPO4 0.20
碳酸钙 CaCO3 1.50
碳酸氢钠 NaHCO3 0.50
氯化钠 NaC1 0.50
预混料 Premix1) 0.30
合计 Total 100.00
营养水平 Nutrient levels2)
干物质 DM 94.02
有机物 OM 90.83
粗蛋白质 CP 21.00
消化能 DE/(MJ/kg) 14.20
钙 Ca 0.55
磷 P 0.30

1)预混料为每千克饲粮提供 Premix provides the following per kg of the diet:VA 940 IU,VE 20 IU,S 200 mg,Fe 24 mg,Cu 8 mg,Mn 40 mg,Zn 40 mg,I 0.3 mg,Se 0.2 mg,Co 0.1 mg。

2)消化能为计算值,由于鹿用饲料缺失消化能数据,因此参照了羊用饲料消化能;其他营养水平为实测值。DE is a calculated value, due to the deer feed lacks the data of DE, so refers to the DE of sheep feed; while other nutrient levels are measured values.

1.3 样品采集及指标测定

1.3.1 营养物质表观消化率

每期正试期第1天开始收集新鲜粪样100 g左右,加入10%的硫酸进行固氮,放入-20 ℃冰箱保存,用于营养物质表观消化率的测定。测定样品之前,将粪样放入65 ℃烘箱中烘干48 h后粉碎并过40目筛,计算营养物质表观消化率,计算公式如下:
某营养物质表观消化率(%)=100×[1-(饲粮中指示剂含量×饲粮中该营养物质含量)/(粪中指示剂含量×粪中该营养物质含量)][6]
饲粮样品及粪样中干物质(DM)、粗灰分(Ash)、粗蛋白质(CP)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、钙(Ca)、磷(P)含量分别参照GB/T 6435—2006、GB/T 6438—2007、GB/T 6432—2018、GB/T 6434—2022、NY/T 1459—2022、GB/T 6436—2018和GB/T 6437—2018的方法测定。有机物(OM)含量计算公式如下:
OM=1-Ash。

1.3.2 瘤胃液的采集及处理

在正试期第5天晨饲3 h后,麻醉后使用口腔插管采集瘤胃液,在经4层无菌纱布过滤后立即测定pH,之后将瘤胃液转移至灭菌离心管,放入-80 ℃冰箱中保存,用于发酵参数及微生物的测定。pH采用pH计(pH-FE28)测定。氨态氮(NH3-N)含量采用酚-次氯酸钠比色法进行测定,参照冯宗慈等[7]的方法。挥发性脂肪酸(VFAs)含量采用气相色谱法进行测定,参照曹庆云等[8]的方法。微生物蛋白(MCP)含量采用差速离心法进行测定,参照Broderick等[9]的方法。

1.3.3 样本DNA的提取及PCR扩增

使用北京天根生化科技有限公司试剂盒,按照说明提取瘤胃液微生物总DNA,利用1%琼脂糖凝胶进行电泳检测总DNA的质量和浓度,使用细菌通用引物515F(5'-GTGCCAGCMGCCGCGG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')对细菌16S rRNA可变区V4区进行PCR扩增,使用Thermo Fisher公司的Ion Plus Fragment Library Kit 48 rxns建库试剂盒进行文库的构建,构建好的文库经过Qubit定量和文库检测合格后,使用Thermo Fisher的IonS5TMXL进行上机测序,对微生物多样性进行分析。

1.4 数据统计与分析

试验数据采用SPSS 23.0中onw-way ANOVA程序进行单因素方差分析,用Duncan氏法进行多重比较。试验数据用平均值和均值标准误(SEM)表示,P<0.05表示差异显著。

2 结果

2.1 塔里木马鹿生茸不同阶段营养物质表观消化率的变化规律

表2可知,塔里木马鹿生茸高峰期的CP表观消化率显著高于生茸后期和锯茸后期(P<0.05),生茸高峰期的OM和ADF表观消化率显著高于锯茸后期(P<0.05)。塔里木马鹿生茸不同阶段的DM和NDF表观消化率差异不显著(P>0.05)。
表2 塔里木马鹿生茸不同阶段的营养物质表观消化率

Table 2 Nutrient apparent digestibilities of Tarim wapiti in different stages of antler growth%

项目
Items
生茸不同阶段 Different stages of antler growth SEM P
P-value
生茸高峰期
Peak period of
antler growth
生茸后期
Late stage of
antler growth
锯茸后期
Late stage of
sawing antler
粗蛋白质CP 74.74a 66.56b 63.44b 2.35 0.049
干物质 DM 47.79 37.89 34.33 3.28 0.236
有机物 OM 51.74a 42.69ab 37.29b 3.13 0.047
中性洗涤纤维 NDF 46.20 34.23 46.71 3.21 0.137
酸性洗涤纤维 ADF 44.37a 32.68ab 25.40b 3.84 0.043

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 塔里木马鹿生茸不同阶段瘤胃发酵参数的变化规律

表3可知,塔里木马鹿生茸不同阶段的瘤胃pH和NH3-N含量差异不显著(P>0.05)。塔里木马鹿生茸高峰期和生茸后期的瘤胃MCP和丙酸含量显著高于脱盘前期和锯茸后期(P<0.05),脱盘前期显著高于锯茸后期(P<0.05);生茸高峰期的瘤胃乙酸、丁酸及总挥发性脂肪酸(TVFA)含量显著高于脱盘前期、生茸后期和锯茸后期(P<0.05),生茸后期的瘤胃异丁酸含量显著低于脱盘前期和锯茸后期(P<0.05),脱盘前期和锯茸后期的瘤胃异戊酸含量显著高于生茸高峰期和生茸后期(P<0.05)。
表3 塔里木马鹿生茸不同阶段的瘤胃发酵参数

Table 3 Rumen fermentation parameters of Tarim wapiti in different stages of antler growth

项目
Items
生茸不同阶段 Different stages of antler growth SEM P
P-value
脱盘前期
Early stage of
antler plate
生茸高峰期
Peak period of
antler growth
生茸后期
Late stage of
antler growth
锯茸后期
Late stage of
sawing antler
pH 5.97 6.21 6.18 6.09 0.07 0.644
氨态氮 NH3-N/(mg/dL) 18.19 17.86 18.44 17.75 0.13 0.209
微生物蛋白
MCP/(mg/dL)
92.43b 108.46a 109.23a 87.64c 2.20 <0.001
乙酸
Acetic acid/(mmol/L)
44.02c 54.75a 48.18b 46.04bc 1.01 <0.001
丙酸
Propionic acid/(mmol/L)
23.86b 26.99a 27.30a 24.95c 0.38 <0.001
丁酸
Butyric acid/(mmol/L)
14.47c 24.39a 20.16b 14.97c 1.12 <0.001
异丁酸
Isobutyric acid/(mmol/L)
1.29ab 1.15bc 1.06c 1.36a 0.04 0.220
戊酸
Valeric acid/(mmol/L)
2.07b 2.26a 2.05b 2.15ab 0.03 0.023
异戊酸
Isovaleric acid/(mmol/L)
1.58a 1.19b 1.22b 1.64a 0.06 0.030
总挥发性脂肪酸
TVFA/(mmol/L)
87.29c 110.73a 99.97b 91.11c 2.30 <0.001

2.3 塔里木马鹿生茸不同阶段瘤胃微生物菌群丰度和多样性变化规律

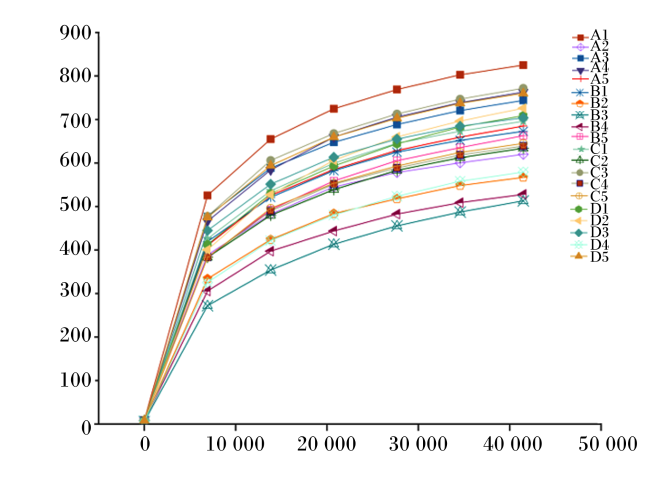
图1可见,随着序列数目的增加,大部分样品在序列数目达到25 000时,稀释曲线已经接近平缓,这说明取样的数量合理,可以进行后续数据分析。
图1 稀释曲线

A:脱盘前期 early stage of antler plate;B:生茸高峰期 peak period of antler growth;C:生茸后期 late stage of antler growth;D:锯茸后期 late stage of sawing antler。下图同 the same as below。

横坐标为序列数目,纵坐标为OTU数目。

Fig.1 Dilution curve

The horizontal coordinate is sequence number, and the vertical coordinate is the OTU number.

表4可知,塔里木马鹿脱盘前期、锯茸后期的观测物种数和Chaol指数均显著高于生茸高峰期(P<0.05),而与生茸后期差异不显著(P>0.05);脱盘前期的Shannon指数显著高于生茸高峰期(P<0.05),而与生茸后期和锯茸后期差异均不显著(P>0.05)。
表4 塔里木马鹿生茸不同阶段的瘤胃菌群丰富度和多样性指数

Table 4 Rumen flora richness and diversity index of Tarim wapiti in different stages of antler growth

项目
Items
生茸不同阶段 Different stages of antler growth SEM P
P-value
脱盘前期
Early stage of
antler plate
生茸高峰期
Peak period of
antler growth
生茸后期
Late stage of
antler growth
锯茸后期
Late stage of
sawing antler
观测物种数
Observed species
727.40a 588.80b 677.20ab 695.60a 18.67 0.039
Chao1指数
Chao1 index
796.19a 665.60b 742.84ab 793.81a 19.55 0.048
Shannon指数
Shannon index
6.26a 5.25b 5.85ab 5.58ab 0.14 0.045
覆盖率
Goods coverage/%
99.72 99.74 99.70 99.70 <0.01 0.547
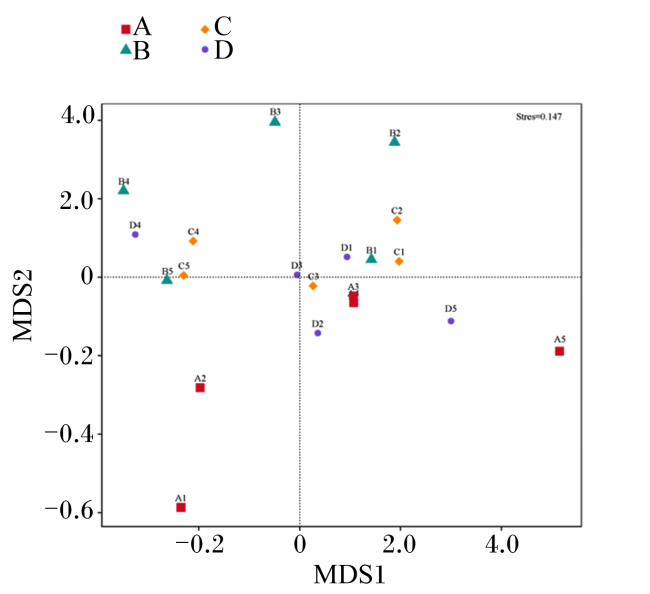
图2可见,塔里木马鹿脱盘前期、生茸高峰期及生茸后期的瘤胃菌群存在明显差距。
图2 瘤胃微生物非度量尺度分析

Stress:应力值,该值越小越好,一般认为当该值小于0.2时,非度量尺度分析的结果较可靠。

Fig.2 Non-metric scale analysis of rumen microorganisms

Stress: stress value, the smaller the value, the better, it is generally believed that when the value is less than 0.2, the non-metric scale analysis result is more reliable.

2.4 塔里木马鹿生茸不同阶段瘤胃微生物门、属水平相对丰度变化规律

表5可知,在门水平上,塔里木马鹿生茸不同阶段瘤胃中拟杆菌门(Bacteroidetes)和厚壁菌门(Firmicutes)为优势菌门。塔里木马鹿生茸高峰期的瘤胃拟杆菌门(Bacteroidetes)相对丰度显著高于脱盘前期(P<0.05),而与生茸后期和锯茸后期无显著差异(P>0.05);脱盘前期瘤胃厚壁菌门和变形菌门(Proteobacteria)相对丰度显著高于生茸高峰期(P<0.05),而与生茸后期和锯茸后期无显著差异(P>0.05)。塔里木马鹿生茸不同阶段的瘤胃其他菌门相对丰度无显著差异(P>0.05)。
表5 塔里木马鹿生茸不同阶段的瘤胃微生物门水平相对丰度

Table 5 Relative abundance of rumen microbiota at phylum level of Tarim wapiti in different stages of antler growth%

项目
Items
生茸不同阶段 Different stages of antler growth SEM P
P-value
脱盘前期
Early stage of
antler plate
生茸高峰期
Peak period of
antler growth
生茸后期
Late stage of
antler growth
锯茸后期
Late stage of
sawing antler
拟杆菌门 Bacteroidetes 62.15b 87.02a 73.19ab 75.43ab 3.31 0.049
厚壁菌门 Firmicutes 32.31a 11.25b 21.80ab 19.94ab 2.93 0.042
广古菌门 Euryarchaeota 0.81 0.28 2.71 1.80 0.55 0.440
变形菌门 Proteobacteria 1.76a 0.53b 0.90ab 1.09ab 0.20 0.044
放线菌门 Actinobacteria 0.89 0.05 0.07 0.08 0.17 0.209
无壁菌门 Tenericutes 0.74 0.24 0.56 0.63 0.09 0.199
酸杆菌门 Acidobacteria 0.18 0.01 0.00 0.02 0.04 0.433
互养菌门 Synergistetes 0.30 0.05 0.04 0.12 0.05 0.205
未分类的细菌门
Unidentified-bacteria
0.32 0.12 0.24 0.22 0.04 0.420
黑色素杆菌门
Melainabacteria
0.03 0.12 0.11 0.11 0.02 0.271
表6可知,在属水平上,塔里木马鹿生茸不同阶段瘤胃中未注释的拟杆菌目(unidentified-Bacteroidales)、解琥珀酸菌属(Succiniclasticum)为优势菌属。塔里木马鹿生茸后期的瘤胃未注释的瘤胃球菌科(unidentified-Ruminococcaceae)相对丰度显著高于生茸高峰期(P<0.05),而与生茸后期和锯茸后期无显著差异(P>0.05);脱盘前期的瘤胃未注释的毛螺菌科(unidentified-Lachnospiraceae)和厌氧弧菌属(Anaerovibrio)相对丰度显著高于生茸高峰期(P<0.05),而与生茸后期和锯茸后期无显著差异(P>0.05)。塔里木马鹿生茸不同阶段的瘤胃其他菌属相对丰度无显著差异(P>0.05)。
表6 塔里木马鹿生茸不同阶段的瘤胃微生物属水平相对丰度

Table 6 Relative abundance of rumen microbiota at genus level of Tarim wapiti in different stages of antler growth%

项目
Items
生茸不同阶段 Different stages of antler growth SEM P
P-value
脱盘前期
Early stage of
antler plate
生茸高峰期
Peak period of
antler growth
生茸后期
Late stage of
antler growth
锯茸后期
Late stage of
sawing antler
粪杆菌属 Faecalibacterium 3.910 0.005 0.008 0.014 0.970 0.411
琼脂杆菌属 Agathobacter 2.710 0.004 0.006 0.010 0.670 0.407
甲烷短杆菌属
Methanobrevibacter
0.790 0.280 2.690 1.800 0.550 0.441
未注释的拟杆菌目
Unidentified-Bacteroidales
1.580 3.770 4.080 3.470 0.650 0.552
解琥珀酸菌属
Succiniclasticum
2.420 1.820 1.530 2.480 0.350 0.747
无甾醇支原体属
Asteroleplasma
0.340 0.060 0.810 0.890 0.260 0.672
未注释的瘤胃球菌科
Unidentified-
Ruminococcaceae
1.430ab 0.650b 1.800a 1.470ab 0.180 0.043
未注释的毛螺菌科
Unidentified-
Lachnospiraceae
1.910a 0.510b 1.150ab 1.530ab 0.200 0.044
厌氧弧菌属 Anaerovibrio 1.560a 0.610b 0.930ab 1.070ab 0.150 0.049
拟杆菌属 Bacteroides 0.810 0.006 0.004 0.012 0.200 0.417

3 讨论

3.1 塔里木马鹿生茸不同阶段营养物质表观消化率的变化规律

塔里木马鹿在生态逆境自然选择压力下,保持着对饲料蛋白质极强的消化利用能力,尤其在生茸阶段,随着饲喂水平和采食量的显著增加,饲料利用率一直维持着较高的水平。一些动物在特殊的生理期,对饲料养分的利用效率均会有所提高,如母猪孕期合成代谢[10]和肉牛生长补偿等[11]。通常情况下,动物对饲料的消化率随采食量的增加而呈现下降趋势[12]。本试验中,由于公鹿在脱盘前期攻击性强,无法收粪,因此缺失脱盘前期的消化率数据;塔里木马鹿采食量由生茸高峰期至锯茸后期呈现先上升后下降趋势,且锯茸后期低于前2期,NDF表观消化率变化规律符合这一规律。拟杆菌门的主要作用是分解可发酵碳水化合物和蛋白质及纤维细胞壁的多糖[13]。本研究中,生茸高峰期的瘤胃拟杆菌门相对丰度高于生茸后期和锯茸后期,呈现降低趋势,且CP、OM、ADF表观消化率从生茸高峰期至锯茸后期呈现同样的下降趋势,说明拟杆菌门是塔里木马鹿在生茸阶段保持着对饲料蛋白质极强的消化利用能力的主要因素之一。高秀华等[14]研究发现,梅花鹿鹿茸产量和体增重均不受饲粮粗蛋白质水平影响,但提高饲粮粗蛋白质水平可显著提高生茸期蛋白质的消化率[14]。这说明生茸阶段蛋白质消化率的提高对鹿茸的生长起重要作用。李长生等[15]研究发现,雄性梅花鹿全年外周血浆中睾丸酮和雌二醇的含量出现明显的变化规律。因此,生茸阶段消化率的变化特点可能与性激素水平变化有关。

3.2 塔里木马鹿生茸不同阶段瘤胃发酵参数的变化规律

瘤胃pH是瘤胃发酵情况的综合表现,主要受唾液分泌、饲粮结构、VFAs含量及瘤胃上皮对VFAs吸收速率、瘤胃食糜流通速率等因素影响。此前对茸鹿瘤胃pH研究发现,瘤胃pH保持在5.6~6.6[16]。通常情况下,TVFA含量上升,瘤胃pH会下降[17]。本研究中,塔里木马鹿生茸不同阶段瘤胃pH维持在5.97~6.21,属于正常范围,由脱盘前期至锯茸后期,瘤胃pH虽然差异不显著,但呈现先上升后下降趋势,而瘤胃TVFA含量也呈现先上升后下降趋势,且生茸高峰期达到最高(110.73 mmol/L),瘤胃pH和TVFA含量并未表现出相应的负相关变化。研究发现,茸鹿的瘤胃食糜通过速度与季节存在很大关系,最低速度系数在2月份,最高速度系数在12月份[16]。本试验中,在不改变饲粮结构的条件下,随着瘤胃TVFA含量变化,瘤胃pH并未表现出显著变化。这可能是由于塔里木马鹿在脱盘前期瘤胃食糜流通速度处于较低水平,TVFA向后肠道流通较慢,使得瘤胃pH也处于较低水平。此外,塔里木马鹿也表现出一种维持瘤胃pH稳定的能力。
瘤胃NH3-N含量的高低反映瘤胃微生物对饲粮蛋白质、氨基酸、尿素、多肽等的利用程度,同时也是MCP合成的主要来源物质[18]。瘤胃NH3-N含量的高低反映出特定饲粮组成条件下蛋白质降解与MCP合成的动态平衡关系,即NH3-N的产生和MCP的合成[19]。MCP是反刍动物的重要蛋白质供应来源之一,它能够满足40%~80%的动物蛋白质需求量。其合成效率直接影响着反刍动物对饲料蛋白质的利用程度[20]。茸鹿处于脱盘前期时,食欲和消化机能相应提高,此时,不仅要恢复配种期下降的体重,同时要为生茸储备营养[16]。生茸高峰期时,体内睾酮含量最低,消化代谢能力强,生茸速度达到高峰,营养需要量比其他时期更多,特别是对蛋白质的需求[16]。本试验中,在饲喂过程中不改变饲粮组成,仅改变采食量,即保持饲粮等能等氮情况下,由脱盘前期至锯茸后期,瘤胃NH3-N含量并未出现显著变化,但MCP含量呈现先上升后下降趋势,MCP含量依次为92.43、108.46、109.23、87.64 mg/dL,生茸高峰期和生茸后期差异不显著。这说明在塔里木马鹿处于生茸期时,MCP合成效率增加,对蛋白质利用效率提高,以满足生茸的需求。脱盘前期的瘤胃MCP含量也显著高于锯茸后期,相比锯茸后期,脱盘前期为恢复损失的体重和为生茸储能,需要更多的能量和蛋白质需求,理应具有相对较高的蛋白质利用效率,与试验结果相呼应。
瘤胃发酵是一项复杂而高效的生理过程,通过微生物发酵产生大量VFAs以作为能量供储。VFAs主要包括乙酸、丙酸和丁酸,其中的乙酸、丙酸和丁酸比例约占整个TVFA的95%[21]。这些VFAs提供的能量占据了反刍动物总能量需求的70%~80%[22]。碳水化合物中对乙酸产量影响最大的是纤维素的降解量,而可溶性碳水化合物降解量主要影响到丙酸产生量,乙酸和丁酸是合成乳脂的前体物,丙酸是合成葡萄糖的前体物[23]。本试验中,瘤胃乙酸、丙酸、丁酸及TVFA含量在生茸高峰期和生茸后期显著高于脱盘前期,而异戊酸恰恰相反。拟杆菌门是降解可发酵碳水化合物的主要细菌[13]。厚壁菌门[24]和瘤胃球菌科(Ruminococcaceae)[25]是反刍动物瘤胃中主要的纤维降解菌。毛螺菌科(Lachnospiraceae)表现强烈的水解活性,促进丁酸的产生[26]。本研究中,生茸高峰期和生茸后期的瘤胃拟杆菌门相对丰度也随丙酸含量呈现相同的变化,但厚壁菌门和未注释的瘤胃球菌科相对丰度在生茸高峰期低于脱盘前期,而乙酸含量却呈现相反的变化,说明机体在此时期发酵产生更多的乙酸为生茸而供能,可能是由于采食量剧增引起的。研究表明,睾酮的合成和代谢紊乱将通过相关代谢通路影响肠道菌群的变化或不稳定以及多样性改变,进而影响代谢[27]。异丁酸、异戊酸是含4或5个碳原子的直链挥发性脂肪酸的异构体,称异位酸。瘤胃微生物能够利用异位酸作为碳骨架的来源,合成支链氨基酸,进一步促进了瘤胃微生物的生长[28-29]。在脱盘前期,体内睾酮含量处于自交配季节由高降低过程中,且相比生茸高峰期和生茸后期具有较高的异戊酸含量,可能能够刺激瘤胃微生物活性并促进瘤胃代谢恢复,为了补偿机体配种期的消耗。

3.3 生塔里木马鹿生茸不同阶段瘤胃微生物的变化规律

Alpha多样性可以反映微生物群落丰富度和多样性。研究发现,雄激素剥夺会减少利用雄激素的肠道细菌,且雄性激素过多也会影响Beta多样性[30]。去势3 d后的犊牛,体内的微生物群落结构发生显著改变,并且Shannon指数明显降低[31]。此前研究发现,雄性梅花鹿全年外周血浆中睾丸酮含量出现明显的变化规律[15],生茸高峰期睾酮含量最低[16]。本试验中,生茸高峰期观测物种数、Chaol指数及Shannon指数均低于其他3个时期,且显著低于锯茸前期,与生茸后期无显著差异,且脱盘前期和生茸高峰期、生茸后期微生物群落间存在明显差异。因此,生茸高峰期微生物丰富度和多样处于最低,可能与体内睾酮含量及利用雄激素的微生物数量的减少有关。
此前,对塔里木马鹿瘤胃微生物研究发现,第一优势菌门为拟杆菌门,第二优势菌门为厚壁菌门,且二者相对丰度和超过75%[32-33]。本试验中,塔里木马鹿由脱盘前期至锯茸后期,瘤胃液中优势菌门为拟杆菌门和厚壁菌门,且相对丰度和超过90%,与此前研究结果一致。拟杆菌门和厚壁菌门相对丰度呈现相反的变化趋势。拟杆菌门能分解饲粮中蛋白质和糖类大分子物质,提高对养分的消化吸收效率[34],且与瘤胃中丙酸含量成正比[35]。本试验中,相对于脱盘前期,生茸高峰期具有更高相对丰度的拟杆菌门,且在这2个时期拟杆菌门相对丰度与瘤胃内丙酸含量也成正比,与已有研究结果一致。生茸高峰期较高相对丰度的拟杆菌门可能提高塔里木马鹿在生茸高峰期对蛋白质和糖类的消化利用效率,为机体供应更多的蛋白质和能量。厚壁菌门可以分解饲料中纤维物质。异位酸对于反刍动物瘤胃内的纤维降解菌具有促进作用,能够提高饲料纤维的降解消化率[36]。研究发现,睾酮会使厚壁菌门的相对丰度更高,而使拟杆菌门的相对丰度更低[37]。本试验中,脱盘前期的瘤胃厚壁菌门相对丰度显著高于生茸高峰期,同时发现异戊酸也具有相同的变化趋势,与前期研究结果变化相符合,这些变化原因可能由生茸期睾酮激素水平变化引起的。研究发现,厚壁菌门与拟杆菌门比例与脂肪沉积密切相关,在肥胖人群中厚壁菌门相对丰度比瘦弱人群高,而拟杆菌门相对丰度比瘦弱人群低[38]。本试验中,厚壁菌门与拟杆菌门比例也存在明显变化,脱盘前期相较生茸高峰期和生茸后期具有更高的比例。由此而见,较高的厚壁菌门与拟杆菌门比例在塔里木马鹿脱盘前期体况恢复方面发挥重要作用。
在属水平,生茸期塔里木马鹿瘤胃未注释的拟杆菌目、解琥珀酸菌属为优势菌属。厌氧弧菌属能够利用甘油、核糖发酵,产生丙酸、乙酸和琥珀酸[39]。毛螺菌科表现强烈的水解活性,能够发酵葡萄糖和果胶,促进丁酸的产生[26]。本试验中,在相对丰度排名前10细菌属中,仅未注释的毛螺菌科在脱盘前期显著高于生茸高峰期,与异丁酸含量呈现正相关变化。此前研究发现睾酮含量会增加厚壁菌门含量[37]。这说明未注释的毛螺菌科和厌氧弧菌属可能是睾酮含量随季节时间变化对瘤胃液细菌在属水平影响较大的菌属。虽然相对丰度不高,但这些微生物可能在脱盘前期降解营养物质,为机体提供能量方面发挥重要作用。

4 结论

① 塔里木马鹿对CP、OM、ADF表观消化率从生茸高峰期至锯茸后期呈现下降趋势。
② 塔里木马鹿在生茸高峰期和生茸后期具有更高的MCP合成效率,对蛋白质有更高的利用能力。
③ 塔里木马鹿生茸不同阶段瘤胃中拟杆菌门和厚壁菌门为优势菌门,呈现相反变化趋势;未注释的拟杆菌目、解琥珀酸菌属为优势菌属。
④ 瘤胃未注释的毛螺菌科、厌氧弧菌属和未注释的瘤胃球菌科是影响塔里木马鹿生茸阶段营养物质表观消化率和发酵参数的主要菌属。
[1]
董晓宇, 单文娟, 于丽娟, 等. 塔里木马鹿(Cervus elaphus yarkandensis)遗传结构及遗传多样性分析[J]. 生物技术, 2010, 20(5):16-20.

DONG X Y, SHAN W J, YU L J, et al. Structure of the mitochondrial DNA control region and population genetic diversity analysis of Tarim red deer (C. e. yarkandensis)[J]. Biotechnology, 2010, 20(5):16-20. (in Chinese)

[2]
蒋洁. 新疆马鹿饲养技术[M]. 乌鲁木齐: 新疆科技卫生出版社, 1993:69-74.

JIANG J. Breeding techniques of Xinjiang red deer[M]. Urumqi: Xinjiang Science and Technology Health Publishing House, 1993:69-74. (in Chinese)

[3]
杨福合. 中国鹿产业发展战略研究[D].硕士学位论文. 长春: 吉林大学, 2012.

YANG F H. Chinese deer industry development strategy research[D].Master's Thesis. Changchun: Jilin University, 2012. (in Chinese)

[4]
钱文熙. 塔里木马鹿对低质粗饲料适应机制研究[D].博士学位论文. 兰州: 甘肃农业大学, 2017.

QIAN W X. Adaptation mechanism of Tarim wapiti deer to low quality roughage[D].Ph.D.Thesis. Lanzhou: Gansu Agricultural University, 2017. (in Chinese)

[5]
韩坤, 梁凤锡, 王树志. 中国养鹿学[M]. 长春: 吉林科学技术出版社, 1993.

HAN K, LIANG F X, WANG S Z. Deer husbandry in China[M]. Changchun: Jilin Science and Technology Press, 1993. (in Chinese)

[6]
计成. 动物营养学[M]. 北京: 高等教育出版社, 2008.

JI C. Animal nutrition[M]. Beijing: Higher Education Press, 2008. (in Chinese)

[7]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(增刊1):37.

FENG Z C, GAO M. Improvement of ammonia nitrogen content in rumen by colorimetric method[J]. Animal Husbandry and Feed Science, 2010, 31(S1):37. (in Chinese)

[8]
曹庆云, 周武艺, 朱贵钊, 等. 气相色谱测定羊瘤胃液中挥发性脂肪酸方法研究[J]. 中国饲料, 2006(24):26-28.

CAO Q Y, ZHOU W Y, ZHU G Z, et al. Study on the methods of determination of volatile fatty acid in the rumen liquid of lambs by gas chromatography[J]. China Feed, 2006(24):26-28. (in Chinese)

[9]
BRODERICK G, CRAIG W M. Metabolism of peptides and amino acids during in vitro protein degradation by mixed rumen organisms[J]. Journal of Dairy Science, 1989, 72(10):2540-2548.

DOI

[10]
白彩霞, 李华, 王云霞, 等. 香猪经产母猪妊娠期营养物质需要量和能量、蛋白质消化率的测定[J]. 黑龙江畜牧兽医, 1996(7):18-19.

BAI C X, LI H, WANG Y X, et al. Determination of nutrient requirements and energy and protein digestibility of pregnant sows in Xiangzhu[J]. Heilongjiang Journal of Animal Science and Veterinary Medicine, 1996(7):18-19. (in Chinese)

[11]
刘发央, 李玉珠, 龙瑞军. 牛羊补偿生长的研究进展[J]. 草业科学, 2005, 22(5):53-58.

LIU F Y, LI Y Z, LONG R J. Research progress of compensatory growth in cattle and sheep[J]. Pratacultural Science, 2005, 22(5):53-58. (in Chinese)

[12]
杨凤. 动物营养学[M]. 北京: 中国农业出版社, 1993.

YANG F. Animal nutrition[M]. Beijing: China Agriculture Press, 1993. (in Chinese)

[13]
DWORKIN M, FALKOW S, ROSENBERG E, et al. The prokaryotes:Vol. 5:Proteobacteria:alpha and beta subclasses[M]. New York: Springer, 2006.

[14]
高秀华, 金顺丹, 杨福合, 等. 饲粮营养水平对五岁以上生茸期梅花鹿公鹿的影响[J]. 特产研究, 2001, 23(3):1-4.

GAO X H, JIN S D, YANG F H, et al. Effects of dietary protein and energy levels on five years old male sika deer during the antler growth period[J]. Special Wild Economic Animal and Plant Research, 2001, 23(3):1-4. (in Chinese)

[15]
李长生, 王喜萍, 马丽娟. 梅花鹿茸角生长规律与体内激素关系的研究进展[J]. 中国草食动物, 2001, 3(6):36-38.

LI C S, WANG X P, MA L J. Research progress on the relationship between the growth regularity of antler horn and hormones in vivo[J]. China Herbivores, 2001, 3(6):36-38. (in Chinese)

[16]
钱文熙, 李光玉. 茸鹿生产学[M]. 北京: 中国农业出版社, 2018.

QIAN W X, LI G Y. Deer production science[M]. Beijing: China Agriculture Press, 2018. (in Chinese)

[17]
冯仰廉. 反刍动物营养学[M]. 北京: 科学出版社, 2004.

FENG Y L. Ruminant nutrition[M]. Beijing: Science Press, 2004. (in Chinese)

[18]
CHEN T Y, XIAO J X, LI T T, et al. Effect of the initial time of providing oat hay on performance,health,behavior and rumen fermentation in Holstein female calves[J]. Agriculture, 2021, 11(9):862.

DOI

[19]
李永福. 不同氮源对瘤胃发酵和可利用粗蛋白影响的研究[D].硕士学位论文. 北京: 中国农业大学, 2004.

LI Y F. Effects of different nitrogen sources on utilizable crude protein (uCP) and rumen fermentation in vitro[D].Master’s Thesis. Beijing: China Agricultural University, 2004. (in Chinese)

[20]
程曾, 张晓娟, 唐福, 等. 应用CNCPS-S模型预测瘤胃微生物蛋白合成量的研究[J]. 现代畜牧兽医, 2020(5):1-8.

CHENG Z, ZHANG X J, TANG F, et al. Prediction of rumen microbial protein synthesis by CNCPS-S model[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2020(5):1-8. (in Chinese)

[21]
李旺. 瘤胃挥发性脂肪酸的作用及影响因素[J]. 中国畜牧杂志, 2012, 48(7):63-66.

LI W. The effect and influence factors of rumen volatile fatty acid[J]. Chinese Journal of Animal Science, 2012, 48(7):63-66. (in Chinese)

[22]
郭冬生, 彭小兰. 反刍动物挥发性脂肪酸消化代谢规律刍议[J]. 畜牧与饲料科学, 2005, 26(1):1-3.

GUO D S, PENG X L. A review on digestion and metabolism of volatile fatty acids in ruminants[J]. Animal Husbandry and Feed Science, 2005, 26(1):1-3. (in Chinese)

[23]
陈喜斌, 冯仰廉. 瘤胃VFA产量与瘤胃可发酵有机物质关系的研究[J]. 动物营养学报, 1996, 8(2):32-36.

CHEN X B, FENG Y L. A study on the relationship between VFA production and fermentable organic matter in the rumen[J]. Chinese Journal of Animal Nutrition, 1996, 8(2):32-36. (in Chinese)

[24]
HAO W L, LEE Y K. Microflora of the gastrointestinal tract:a review[J]. Methods in Molecular Biology, 2004, 268:491-502.

[25]
高星, 李永丽, 燕亚平, 等. 瘤胃纤维素降解细菌的研究进展[J/OL]. 微生物学杂志:1-8[2023-06-01]. http://kns.cnki.net/kcms/detail/21.1186.Q.20230601.1225.002.html.

GAO X, LI Y L, YAN Y P, et al. Advances in rumen cellulose-degradable bacteria[J/OL]. Journal of Microbiology:1-8[2023-06-01]. http://kns.cnki.net/kcms/detail/21.1186.Q.20230601.1225.002.html. (in Chinese)

[26]
MEEHAN C J, BEIKO R G. A phylogenomic view of ecological specialization in the Lachnospiraceae,a family of digestive tract-associated bacteria[J]. Genome Biology and Evolution, 2014, 6(3):703-713.

DOI

[27]
李应雯, 刘敏, 袁浩, 等. 睾酮与肠道菌群关系的研究进展[J]. 中国微生态学杂志, 2023, 35(4):473-476.

LI Y W, LIU M, YUAN H, et al. Relationship between testosterone and intestinal flora:research progress[J]. Chinese Journal of Microecology, 2023, 35(4):473-476. (in Chinese)

[28]
ALLISON M J, BRYANT M P, KATZ I, et al. Metabolic function of branched-chain volatile fatty acids,growth factors for ruminococci.Ⅱ.Biosynthesis of higher branched-chain fatty acids and aldehydes[J]. Journal of Bacteriology, 1962, 83(5):1084-1093.

DOI

[29]
YANG C M J. Response of forage fiber degradation by ruminal microorganisms to branched-chain volatile fatty acids,amino acids,and dipeptides[J]. Journal of Dairy Science, 2002, 85(5):1183-1190.

DOI

[30]
TORRES P J, SIAKOWSKA M, BANASZEWSKA B, et al. Gut microbial diversity in women with polycystic ovary syndrome correlates with hyperandrogenism[J]. The Journal of Clinical Endocrinology & Metabolism, 2018, 103(4):1502-1511.

DOI

[31]
MIR R A, KLEINHENZ M D, COETZEE J F, et al. Fecal microbiota changes associated with dehorning and castration stress primarily affects light-weight dairy calves[J]. PLoS One, 2019, 14(1):e0210203.

DOI

[32]
QIAN W X, AO W P, JIA C H, et al. Bacterial colonisation of reeds and cottonseed hulls in the rumen of Tarim red deer (Cervus elaphus yarkandensis)[J]. Antonie Van Leeuwenhoek, 2019, 112(9):1283-1296.

DOI

[33]
关鹏, 任建刚, 黄建智, 等. 不同中性洗涤纤维水平饲粮对塔里木马鹿瘤胃微生物种群结构的影响[J]. 动物营养学报, 2023, 35(2):1206-1218.

DOI

GUAN P, REN J G, HUANG J Z, et al. Effects of diets with different neutral detergent fiber levels on rumen microbial population structure of Tarim wapiti[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1206-1218. (in Chinese)

DOI

[34]
TREMAROLI V, BÄCKHED F. Functional interactions between the gut microbiota and host metabolism[J]. Nature, 2012, 489(7415):242-249.

DOI

[35]
曾钰. 日粮中发酵杂粕替代豆粕和添加小肽产品对肉牛生长性能、养分消化、瘤胃发酵和菌群组成的影响[D].硕士学位论文. 成都: 西南民族大学, 2020.

ZENG Y. Effects of fermented mixed meals to replace soybean meal and small peptide products supplementation in diets on growth performance,nutrient digestion,rumen fermentation and bacterial composition of beef cattle[D].Master’s Thesis. Chengdu: Southwest Minzu University, 2020. (in Chinese)

[36]
张振威, 朱明霞, 王长法. 异位酸影响反刍动物瘤胃代谢和生产性能的研究进展[J]. 动物营养学报, 2022, 34(3):1408-1415.

DOI

ZHANG Z W, ZHU M X, WANG C F. Effects of isoacids on ruminal metabolism and performance in rumiants:a review[J]. Chinese Journal of Animal Nutrition, 2022, 34(3):1408-1415. (in Chinese)

[37]
ZHOU L, NI Z X, CHENG W, et al. Characteristic gut microbiota and predicted metabolic functions in women with PCOS[J]. Endocrine Connections, 2020, 9(1):63-73.

DOI PMID

[38]
LEY R E, TURNBAUGH P J, KLEIN S, et al. Human gut microbes associated with obesity[J]. Nature, 2006, 444(7122):1022-1023.

DOI

[39]
STRÖMPL C, JARVIS G N. Anaerovibrio[M]//TRUJILLO M E,DEDYSH S,DEVOS P,et al.Bergey’s manual of systematics of archaea and bacteria. Hoboken: John Wiley & Sons,Inc., 2015:1-5.

文章导航

/