研究论文

不同大口黑鲈群体生长性能、肌肉营养成分、肠道形态结构及菌群组成的比较研究

  • 黄仁善 , 1 ,
  • 钟纯怡 2 ,
  • 张帝 1 ,
  • 强俊 , 1, 2, * ,
  • 陶易凡 2 ,
  • 李岩 2 ,
  • 董亚伦 2 ,
  • 路思琪 2 ,
  • 徐跑 , 1, 2, *
展开
  • 1 南京农业大学无锡渔业学院,无锡 214128
  • 2 中国水产科学研究院淡水渔业研究中心,农业农村部淡水渔业和种质资源利用重点实验室,无锡 214081
* 强俊,研究员,硕士生导师,E-mail: ;
徐跑,研究员,博士生导师,E-mail:

黄仁善(2000—),男,山东临沂人,硕士研究生,研究方向水产生物技术。E-mail:

Copy editor: 田艳明

收稿日期: 2023-09-08

  网络出版日期: 2024-02-01

基金资助

江苏省种业振兴“揭榜挂帅”项目(JBGS[2021]130)

加州鲈产业重大技术协同推广计划项目(2022-ZYXT-07)

苏州市科技计划项目(SNG2021009)

Comparative Study on Growth Performance, Muscle Nutrients, Intestinal Morphology and Structure and Microflora Composition of Different Largemouth Bass (Micropterus salmoides) Populations

  • HUANG Renshan , 1 ,
  • ZHONG Chunyi 2 ,
  • ZHANG Di 1 ,
  • QIANG Jun , 1, 2, * ,
  • TAO Yifan 2 ,
  • LI Yan 2 ,
  • DONG Yalun 2 ,
  • LU Siqi 2 ,
  • XU Pao , 1, 2, *
Expand
  • 1 Wuxi Fisheries College, Nanjing Agricultural University, Wuxi 214128, China
  • 2 Key Laboratory of Freshwater Fisheries and Germplasm Resources Utilization, Ministry of Agriculture and Rural Affairs, Freshwater Fisheries Research Center, Chinese Academy of Fishery Sciences, Wuxi 214081, China
* QIANG Jun, professor, E-mail: ;
XU Pao, professor, E-mail:

Received date: 2023-09-08

  Online published: 2024-02-01

摘要

本试验旨在比较不同大口黑鲈群体生长性能、肌肉营养成分、肠道形态结构及菌群组成的差异。试验选用4个国内主要大口黑鲈养殖群体:“优鲈3号”[YL3,(18.91±1.54) g]、“优鲈1号”[YL1,(19.54±2.23) g]、台湾群体[CTW,(18.31±1.76) g]与杂交群体(HYB,地方选育种♀×北方亚种,(18.80±1.72) g]各180尾,每群3个重复,每个重复60尾。养殖120 d后,对4个大口黑鲈群体的生长性能、肌肉营养成分、肠道形态结构以及菌群组成进行比较分析。结果表明:HYB和CTW的终末体质量、增重率和特定生长率均显著高于YL1和YL3(P<0.05),且HYB的脏体比、肝体比和饲料系数最低。HYB的肥满度、后肠绒毛宽度以及肌肉中饱和脂肪酸、单不饱和脂肪酸和多不饱和脂肪酸含量显著高于其他3个群体(P<0.05)。基于16S rRNA测序对肠道菌群进行alpha多样性分析、物种差异分析和功能预测发现,大口黑鲈肠道优势菌门是厚壁菌门、变形菌门、梭杆菌门以及放线菌门,肠道鲸杆菌属显著富集于HYB;PICRUSt2功能预测表明新陈代谢、遗传信息处理以及环境信息处理等功能在HYB中的平均丰度更高;通过斯皮尔曼相关性分析发现,肠道菌群功能与后肠的绒毛高度和绒毛宽度呈显著正相关(P<0.05)。综上所述,相较于其他群体,HYB大口黑鲈生长性能提高,肌肉中各类脂肪酸积累增多,肠道形态结构也得到显著改善,肠道菌群的多样性和有益菌丰度提高。

本文引用格式

黄仁善 , 钟纯怡 , 张帝 , 强俊 , 陶易凡 , 李岩 , 董亚伦 , 路思琪 , 徐跑 . 不同大口黑鲈群体生长性能、肌肉营养成分、肠道形态结构及菌群组成的比较研究[J]. 动物营养学报, 2024 , 36(2) : 1158 -1172 . DOI: 10.12418/CJAN2024.105

Abstract

The purpose of this experiment was to compare the growth performance, muscle nutrients, intestinal morphology and structure and microflora composition of different largemouth bass (Micropterus salmoides) populations. Four major domestic largemouth bass breeding populations were selected in the experiment which were “Youlu No.3” [YL3, (18.91±1.54) g], “Youlu No.1” [YL1, (19.54±2.23) g], Taiwan population [CTW, (18.31±1.76) g] and hybrid population (HYB, local breeding species♀×northern subspecies, (18.80±1.72) g] with 180 tails in each population, 3 replicates in each population and 60 tails in each replicate. After 120 days of breeding, the growth performance, muscle nutrients, intestinal morphology and structure and microflora composition of four largemouth bass populations were compared and analyzed. The results showed that the final body weight, weight gain rate and specific growth rate of HYB and CTW were significantly higher than those of YL1 and YL3 (P<0.05), and HYB had the lowest viscerosomatic index, hepatosomatic index and feed conversion rate. Compared with the other three groups, the condition factor, hindgut villus width and contents of saturated fatty acid, monounsaturated fatty acid and polyunsaturated fatty acid in muscle of HYB were significantly increased (P<0.05). The alpha diversity analysis, species difference analysis and function prediction of intestinal microflora based on 16S rRNA sequencing showed that Firmicutes, Proteobacteria, Fusobacteriota and Actinobacteriota were the dominant intestinal bacteria of largemouth bass at phylum level, and the intestinal Cetobacterium was significantly enriched in HYB. PICRUSt2 function prediction showed that intestinal microflora functions such as metabolism, genetic information processing and environmental information processing were more abundant in HYB, and Spearman correlation analysis found that these intestinal microflora functions were significantly positively correlated with the villus height and villus width of hindgut (P<0.05). In conclusion, compared with the other populations, the growth performance of HYB largemouth bass is improved, the accumulation of various fatty acids in muscle is increased, the intestinal morphology and structure is also significantly improved, and the diversity of intestinal microflora and abundance of beneficial bacteria are increased.

大口黑鲈(Micropterus salmoides),又名加州鲈,隶属于鲈形目(Perciformes)、鲈亚目(Porcoidei)、太阳鱼科(Cehtrachidae)、黑鲈属(Micropterus)[1]。大口黑鲈由于具有养殖周期短、生长速度快、抗病能力强、肉质鲜嫩、无肌间刺以及营养丰富等优点,我国于1983年将大口黑鲈引入大陆[2],并且得到了非常成功的养殖推广,使其备受消费者和养殖人员欢迎。据统计,2022年我国大口黑鲈养殖产量突破80万t[3],大口黑鲈也成为我国重要的经济性淡水养殖鱼品种之一,被称为中国的“第五大家鱼”。我国大口黑鲈的主要养殖区域有广东、江苏、湖南、湖北和河南等地,所养殖的品种主要包括“优鲈3号”、“优鲈1号”和台湾群体。经过多年的养殖,目前国内养殖的大口黑鲈群体的遗传多样性已显著下降,种质退化严重[4]
随着营养消费的升级,人们更加偏向于购买营养价值高、味道鲜美的鱼肉,而鱼类肌肉中的脂肪酸如亚油酸、二十二碳六烯酸等,在改善鱼肉口感、满足人类营养需求以及预防疾病等方面发挥着不可或缺的作用[5]。研究表明,鱼类肌肉营养成分组成与品系、遗传、生长速度以及生活环境等因素有关[6]。目前对于鱼类肌肉营养方面的研究多集中于改良饲料成分来提升肌肉品质[7-8]或对比不同养殖模式下鱼类肌肉的营养差异[9-10],但对鱼类不同群体的肌肉营养成分对比的研究较少。肠道作为鱼类消化吸收的主要场所[11],其形态结构的完整性是营养物质消化吸收的前提条件和维持黏膜正常生理功能的重要保障[12]。鱼类肠道内存在大量微生物,这些微生物与宿主之间存在复杂的相互作用,在鱼体消化吸收、预防免疫等方面起到重要作用[13]。近年来,集约化养殖模式逐渐扩大,高密度养殖再加上使用大量植物性蛋白质原料等,使得养殖环境逐渐恶化,导致鱼类肠道健康受到很大影响,这成为限制我国水产养殖业持续健康发展的短板之一,因此越来越多的研究开始关注肠道结构、肠道微生物等与鱼类生长性能的关联[14-17]
本课题组于2020年从美国引进大口黑鲈北方亚种群体,并进行了群体遗传多样性分析,结果发现引进群体与目前国内主要养殖品种存在极显著遗传分化[4]。因此,本试验以引进大口黑鲈北方亚种为父本与当地选育种群进行杂交,通过对“优鲈3号”、“优鲈1号”、台湾群体以及杂交群体4个养殖群体在生长性能、肌肉营养成分、肠道形态结构以及菌群组成方面进行对比分析,以期为大口黑鲈良种选育和品种改良提供基础资料和参考依据。

1 材料与方法

1.1 试验设计与饲养管理

本试验所用4个大口黑鲈群体选自中国水产科学研究院淡水渔业研究中心室外养殖池,分别为:本课题组以美国原种和地方选育种杂交得到的杂交群体[HYB,地方选育种♀×北方亚种,平均体质量为(18.80±1.72) g]、由珠江水产研究所选育的新品种群体“优鲈1号”[YL1,平均体质量为(19.54±2.23) g]和“优鲈3号”[YL3,平均体质量为(18.91±1.54) g]以及台湾地区的台湾群体[CTW,平均体质量为(18.31±1.76) g]。试验开始前将鱼种暂养在室外水泥池1周,并用3‰的盐水对鱼种体表消毒。暂养结束后,选择规格整齐、体表完整以及健壮活泼的鱼种各180尾用于试验,每群3个重复(网箱),每个重复60尾,网箱规格为2.0 m×2.0 m×1.5 m,养殖周期为120 d。前期(6—8月)每天在08:00、12:00和16:00定时各投喂1次;后期(8—10月)每天在06:00和18:00定时各投喂1次,投饵量为鱼体质量的2%~5%。试验过程每天记录饲料投喂量及试验鱼死亡情况,水体溶氧量在4.5 mg/L以上,每隔1周换注新水1/3。

1.2 试验饲料

试验所用饲料购自浙江某水产饲料股份有限公司。饲料颗粒大小随饲养苗种规格变化而变化,饲料营养水平见表1
表1 饲料营养水平(风干基础)

Table 1 Nutrient levels of diets (air-dry basis)%

饲料种类
Diet types
编号
No.
粗蛋白质
CP
粗脂肪
EE
粗纤维
CF
粗灰分
Ash
赖氨酸
Lys


苗种料
Seedling diet
A1 50.0 10.0 3.0 16.0 2.70
A2 50.0 10.0 3.0 16.0 2.70
A3 50.0 10.0 3.0 16.0 2.70

颗粒料
Pellet diet
1#~2# 46.0 10.0 4.0 16.0 2.60
3#~8# 45.0 10.0 5.0 16.0 2.50

1.3 样品采集

养殖试验结束后,禁食24 h后开始采样。使用丁香酚(1:1 000)对大口黑鲈进行深度麻醉后,记录每个网箱内试验鱼的数量、体质量和体长;然后在每个群体随机抽取15尾大口黑鲈,用消过毒的解剖刀剖离其背部肌肉,分别测量其肌肉重、内脏重和肝脏重,肌肉称重后立即使用液氮冷冻,后转入-80 ℃冰箱暂存,用于营养成分测定;另外在每个群体中随机抽取10尾大口黑鲈,分别取其前肠(胃后3 cm)和后肠(肛门前5 cm),用10%福尔马林固定,用于观察肠道结构形态;最后在每个群体中随机抽取6尾大口黑鲈,取其肠道内容物装入2 mL冻存管中,用液氮速冻4 h后,放入-80 ℃暂存,用于检测肠道微生物群落。

1.4 指标测定

1.4.1 生长性能指标测定

增重率(weight gain rate,WGR,%)=100×(Wt-W0)/W0;
特定生长率(specific growth rate,SGR,%/d)=100×(lnWt-lnW0)/t;
脏体比(viscerosomatic index,VSI,%)=100×Wv/Wf;
肝体比(hepatosomatic index,HSI,%)=100×Wh/Wf;
饲料系数(feed conversion rate,FCR)=F/(Wt-W0);
肥满度(condition factor,CF,g/cm3)=100×Wt/L3
式中:W0为鱼的平均初始体质量(g);Wt为鱼的平均终末体质量(g);t为试验的饲养天数(d);F为每尾鱼的平均总摄食量(湿重,g);Wv为每尾鱼的终末内脏重(g);Wh为每尾鱼的终末肝脏重(g);Wf为鱼的终末体质量(g);L为鱼的终末体长(cm)。

1.4.2 肌肉营养成分测定

肌肉水分含量测定参考GB 5009.3—2016,粗灰分含量测定参考GB 5009.4—2016,粗蛋白质含量测定参考GB 5009.5—2016,粗脂肪含量测定参考GB 5009.6—2019,脂肪酸含量测定参考GB 5009.168—2016。

1.4.3 肠道形态结构指标测定

肠道组织在10%福尔马林中固定1~2 d后,在各级乙醇脱水后再进行包埋和切片,晾干烘烤之后利用二甲苯和各级乙醇溶液脱蜡,最后进行染色和封片。切片制作完成后,通过Eclipse Ci-L拍照显微镜40×成像进行观察和拍照,最后利用Image-Pro Plus 6.0分析软件测量绒毛高度、绒毛宽度和肌层厚度,根据绒毛数量和对应黏膜层面积,计算绒毛密度:
绒毛密度=绒毛数量/黏膜层面积。

1.4.4 肠道菌群测序和分析

取肠道内容物于冰上解冻,利用十六烷基三甲基溴化铵(CTAB)法对肠道菌群的总DNA进行提取,经过电泳检测和定量后进行PCR扩增,引物为341F(5'-CCTACGGGNGGCWGCAG-3')和805R(5'-GACTACHVGGGTATCTAATCC-3')。扩增产物经过AMPure XT beads纯化和Qubit定量。纯化后的扩增产物经Agilent 2100生物分析仪(Agilent,美国)和Illumina (Kapa Biosciences,美国)的文库定量试剂盒进行评估后,利用NovaSeq 6000测序仪进行双端测序,相应试剂为NovaSeq 6000 SP Reagent Kit (500 cycles)。测序获得的双端数据经拆分、拼接和过滤之后,再通过qiime dada2 denoise-paired调用DADA2去噪,从而获得最终的扩增子序列变异(ASV)特征序列和ASV丰度表格。基于获得的ASV特征序列和丰度表格进行alpha多样性分析、物种差异分析和功能预测。alpha多样性显著性检验采用Kruskal-Wallis检验;肠道差异菌群的筛选采用线性判别分析效应大小(LEfSe)分析,设定差异判断标准为P<0.05、线性判别分析(LDA)值>4;利用PICRUSt2软件对肠道菌群功能进行预测。

1.5 数据统计分析

试验所得数据采用Excel 2021进行处理后,再用SPSS 26.0对所得数据进行正态性检验(Shapiro-Wilk)和方差齐性检验(Levene tests),然后再进行单因素方差分析(one-way ANOVA)和Duncan氏法多重比较检验,结果数据以平均值±标准差(mean±SD)表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 4个大口黑鲈群体生长性能指标差异

表2可知,杂交群体和台湾群体大口黑鲈终末体质量、增重率和特定生长率显著高于优鲈1号和优鲈3号(P<0.05),优鲈3号终末体质量、增重率和特定生长率显著高于优鲈1号(P<0.05);台湾群体终末体长显著高于优鲈1号(P<0.05);杂交群体脏体比显著低于优鲈1号和台湾群体(P<0.05);杂交群体肝体比显著低于优鲈3号(P<0.05);杂交群体肥满度显著高于其他3个群体,台湾群体肥满度显著高于优鲈1号和优鲈3号(P<0.05);杂交群体饲料系数率显著低于其他3个群体(P<0.05)。
表2 4个大口黑鲈群体生长性能指标差异

Table 2 Differences in growth performance of four Micropterus salmoides populations

项目
Items
杂交群体
HYB
优鲈1号
YL1
优鲈3号
YL3
台湾群体
CTW
初始体质量 Initial body weight/g 18.80±1.72 19.54±2.23 18.91±1.54 18.31±1.76
终末体质量 Final body weight/g 316.73±41.00a 218.63±22.83c 264.24±30.65b 279.19±30.68a
初始体长 Initial body length/cm 9.22±0.31 9.33±0.52 9.27±0.29 9.17±0.34
终末体长 Final body length/cm 22.46±1.26ab 21.99±1.09b 22.21±1.25ab 22.70±1.06a
增重率 WGR/% 1 578.83±64.49a 1 018.88±4.47c 1 293.34±48.67b 1 422.76±21.19a
特定生长率 SGR/(%/d) 2.33±0.22a 1.95±0.20c 2.18±0.19b 2.31±0.18a
脏体比 VSI/% 9.98±1.51b 11.08±1.53a 10.63±1.20ab 11.24±1.22a
肝体比 HSI/% 2.87±0.61b 3.23±0.73ab 3.45±0.57a 3.20±0.60ab
肥满度 CF/(g/cm3) 2.93±0.43a 2.33±0.17c 2.37±0.17c 2.53±0.19b
饲料系数 FCR 1.16±0.03b 1.22±0.03a 1.22±0.02a 1.28±0.03a

同行数据肩标不同小写字母表差异显著(P<0.05)。下表同。

Values in the same row with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 4个大口黑鲈群体肌肉常规营养成分差异

表3可知,台湾群体大口黑鲈肌肉水分含量显著高于杂交群体和优鲈1号(P<0.05),杂交群体肌肉水分含量显著低于其他3个群体(P<0.05);4个群体间肌肉粗灰分含量无显著差异(P>0.05);杂交群体和优鲈1号肌肉粗脂肪含量显著高于台湾群体(P>0.05);台湾群体肌肉粗蛋白质含量显著高于优鲈3号(P<0.05)。
表3 4个大口黑鲈群体肌肉常规营养成分差异

Table 3 Differences in conventional nutrients in muscle of four Micropterus salmoides populations%

项目
Items
杂交群体
HYB
优鲈1号
YL1
优鲈3号
YL3
台湾群体
CTW
水分 Moisture 64.52±0.47c 70.90±0.45b 72.80±1.28ab 73.64±0.79a
粗灰分 Ash 1.28±0.37 1.28±0.37 1.38±0.37 1.30±0.45
粗脂肪 Ether extract 6.40±1.25a 6.94±0.80a 4.71±2.35ab 3.13±0.13b
粗蛋白质 Crude protein 19.92±0.36ab 20.06±0.33ab 19.48±0.17b 20.44±0.28a

2.3 4个大口黑鲈群体肌肉脂肪酸组成差异

表4可知,大口黑鲈肌肉中共测出20种脂肪酸,包括7种饱和脂肪酸(SFA),5种单不饱和脂肪酸(MUFA),以及8种多不饱和脂肪酸(PUFA)。其中,杂交群体和优鲈1号肌肉各类脂肪酸含量均显著高于优鲈1号和台湾群体(P<0.05),且杂交群体肌肉SFA、MUFA和PUFA含量显著高于其他3个群体(P<0.05)。4个群体中肌肉脂肪酸含量较多的均为PUFA,其次是MUFA和SFA。
表4 4个大口黑鲈群体肌肉脂肪酸组成差异

Table 4 Differences in fatty acid composition in muscle of four Micropterus salmoides populationsg/kg

项目
Items
杂交群体
HYB
优鲈1号
YL1
优鲈3号
YL3
台湾群体
CTW
C14:0 0.80±0.17a 0.46±0.25a 0.27±0.05b 0.36±0.02b
C15:0 0.12±0.02a 0.09±0.04a 0.06±0.01b 0.07±0.01b
C16:0 9.54±2.28a 5.49±2.82a 3.29±0.64b 4.11±0.40b
C17:0 0.14±0.03a 0.09±0.04a 0.07±0.01b 0.08±0.01b
C18:0 2.30±0.55a 1.51±0.65a 1.02±0.20b 1.16±0.08b
C20:0 0.15±0.03a 0.11±0.04a 0.09±0.02b 0.09±0.01b
C22:0 0.11±0.02a 0.09±0.02a 0.08±0.01b 0.08±0.01b
总饱和脂肪酸 SFA 13.15±3.09a 7.84±3.86b 4.84±1.01b 5.96±0.50b
C16:1 1.53±0.36a 0.78±0.38a 0.44±0.09b 0.58±0.08b
C20:1 0.50±0.08a 0.30±0.14a 0.20±0.04b 0.23±0.02b
C24:1 0.15±0.02a 0.12±0.03a 0.10±0.03b 0.10±0.01b
C18:1n9c 12.77±3.22a 6.98±3.90a 3.84±0.75b 4.94±0.51b
C22:1n9 0.24±0.03a 0.18±0.03a 0.14±0.04b 0.12±0.02b
单不饱和脂肪酸 MUFA 15.19±3.69a 8.35±4.46b 4.74±0.93b 5.96±0.59b
C18:2n6c 12.18±2.73a 7.66±4.27a 4.25±0.83b 5.52±0.45b
C18:3n3 0.99±0.23a 0.63±0.36a 0.33±0.06b 0.47±0.03b
C20:2 0.38±0.06a 0.24±0.10a 0.18±0.04b 0.19±0.02b
C20:3n3 0.14±0.03a 0.09±0.04a 0.06±0.01b 0.07±0.01b
C20:4n6 0.31±0.05a 0.26±0.07a 0.22±0.04b 0.21±0.02b
C20:5n3 0.28±0.06a 0.22±0.07a 0.16±0.03b 0.19±0.01b
C22:6n3 2.64±0.32a 1.87±0.50a 1.55±0.30b 1.53±0.14b
C20:3n6 0.12±0.01a 0.08±0.02a 0.07±0.02b 0.07±0.01b
多不饱和脂肪酸 PUFA 17.05±3.46a 11.06±5.43b 6.83±1.34b 8.25±0.64b

2.4 4个大口黑鲈群体肠道形态结构差异

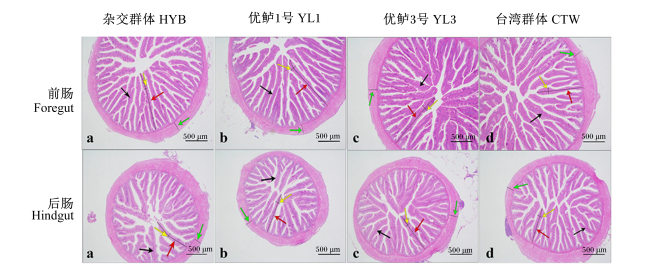
4个大口黑鲈群体肠道形态结构如图1表5所示,杂交群体大口黑鲈前肠绒毛宽度和后肠绒毛高度、绒毛宽度以及肌层厚度均显著高于优鲈1号(P<0.05);杂交群体前肠绒毛密度和后肠绒毛宽度显著高于优鲈3号和台湾群体(P<0.05),并且杂交群体后肠肌层厚度也显著高于优鲈3号(P<0.05)。台湾群体前肠绒毛高度和后肠肌层厚度均显著高于优鲈3号(P<0.05);台湾群体后肠绒毛高度、绒毛宽度和肌层厚度显著高于优鲈1号(P<0.05);台湾群体前肠肌层厚度显著高于其他3个群体(P<0.05)。优鲈3号后肠绒毛高度、绒毛宽度和肌层厚度均显著高于优鲈1号(P<0.05),但前肠绒毛高度显著低于优鲈1号(P<0.05)。
图1 4个大口黑鲈群体肠道形态结构

红色箭头:绒毛高度;黄色箭头:绒毛宽度;绿色箭头:肌层厚度;黑色箭头:完整绒毛。

Fig.1 Intestinal morphology and structure of four Micropterus salmoides populations (40×)

Red arrow: villus height; yellow arrow: villus width; green arrow: muscular thickness; black arrow: intact villus.

表5 4个大口黑鲈群体肠道形态结构差异

Table 5 Differences in intestinal morphology and structure of four Micropterus salmoides populations

项目
Items
杂交群体
HYB
优鲈1号
YL1
优鲈3号
YL3
台湾群体
CTW


前肠
Foregut
绒毛高度 Villus height/mm 1.27±0.12ab 1.34±0.09a 1.17±0.12b 1.30±0.07a
绒毛宽度 Villus width/mm 0.17±0.01a 0.14±0.01b 0.15±0.01ab 0.15±0.01ab
肌层厚度 Muscular thickness/mm 0.23±0.02b 0.22±0.02b 0.23±0.02b 0.29±0.02a
绒毛密度 Villus density/(根/mm2) 13.73±1.55a 12.72±0.97ab 12.24±1.31b 11.73±1.27b


后肠
Hindgut
绒毛高度 Villus height/mm 0.94±0.10a 0.79±0.05b 0.88±0.05a 0.89±0.03a
绒毛宽度 Villus width/mm 0.17±0.01a 0.13±0.01c 0.15±0.01b 0.15±0.02b
肌层厚度 Muscular thickness/mm 0.25±0.01a 0.19±0.02c 0.21±0.01b 0.26±0.01a
绒毛密度 Villus density/(根/mm2) 15.94±2.56 16.15±3.79 14.54±1.72 15.49±0.79

2.5 4个大口黑鲈群体肠道菌群差异

2.5.1 4个大口黑鲈群体肠道菌群alpha多样性分析
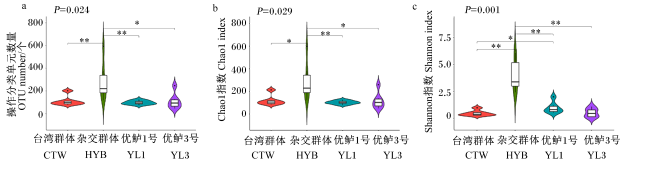
图2所示,杂交群体大口黑鲈肠道菌群Chao1指数和操作分类单元(OTU)数量显著高于优鲈3号和台湾群体(P<0.05),极显著高于优鲈1号(P<0.01);杂交群体肠道菌群Shannon指数极显著高于其他3个群体(P<0.01),且优鲈1号肠道菌群Shannon指数显著高于台湾群体(P<0.05);优鲈3号肠道菌群alpha多样性各指标与优鲈1号和台湾群体相比均无显著差异(P>0.05)。
图2 4个大口黑鲈群体肠道菌群alpha多样性分析

*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。图3同。

Fig.2 Alpha diversity analysis of intestinal microflora of four Micropterus salmoides populations

* mean significant difference (P<0.05), and ** mean extremely significant difference (P<0.01). The same as Table 3.

2.5.2 4个大口黑鲈群体肠道菌群组成分析

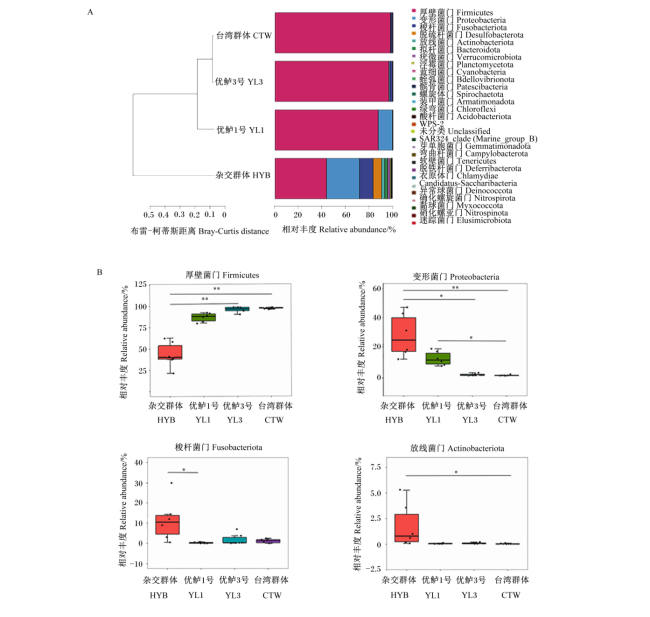
本试验中,选取门水平相对丰度前30的菌门进行分析发现(图3-A),4个大口黑鲈群体肠道菌群的优势菌门为厚壁菌门(Firmicutes)、变形菌门(Proteobacteria)、梭杆菌门(Fusobacteriota)以及放线菌门(Actinobacteriota)。另外,通过布雷-柯蒂斯(Bray-Curtis)距离聚类发现,台湾群体、优鲈3号和优鲈1号聚类较近,杂交群体聚类较远,表明杂交群体的微生物组成与其他3个群体差异较大。差异分析表明(图3-B),优鲈3号和台湾群体大口黑鲈肠道厚壁菌门相对丰度极显著高于杂交群体(P<0.01)。杂交群体肠道变形菌门相对丰度显著高于优鲈3号(P<0.05),极显著高于台湾群体(P<0.01);优鲈1号肠道变形菌门相对丰度显著高于台湾群体(P<0.05)。杂交群体肠道梭杆菌门相对丰度显著高于优鲈1号(P<0.05),肠道放线菌门相对丰度显著高于台湾群体(P<0.05)。
图3 4个大口黑鲈群体肠道菌群组成门水平分析

A:布雷-柯蒂斯距离聚类树及相对丰度前30的菌门分布图;B: 肠道核心菌门的差异分析。

Fig.3 Analysis of intestinal microflora composition at phylum level of four Micropterus salmoides populations

A: Bray-Curtis distance clustering tree and distribution map of relative abundance of top 30 species at phylum level; B: difference analysis of core intestinal microflora at phylum.

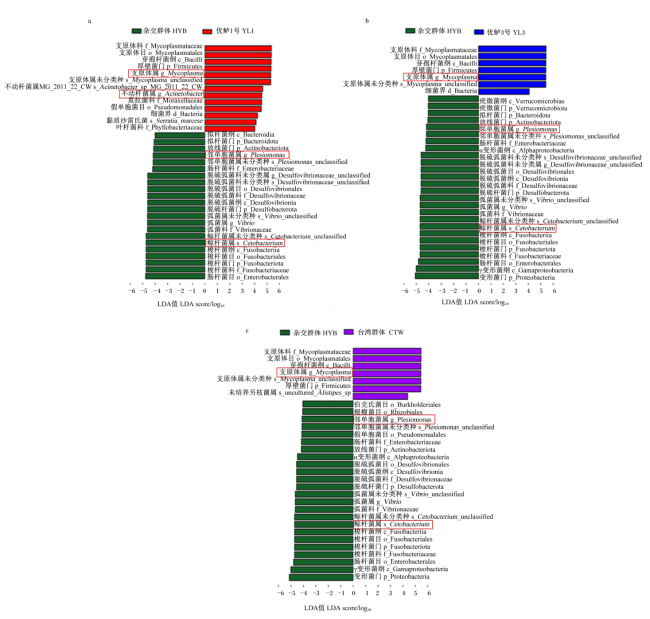
为进一步确定不同群体大口黑鲈肠道内的核心菌群,本试验通过LEfSe分析比较了杂交群体分别与优鲈1号、优鲈3号以及台湾群体间所有检测到的细菌类群的丰度(图4),设定P<0.05、LDA值>4为差异显著判断标准,筛选出的核心差异菌属是显著富集于杂交群体的鲸杆菌属(Cetobacterium)和邻单胞菌属(Plesiomonas),显著富集于优鲈1号、优鲈3号和台湾群体的支原体属(Mycoplasma)以及显著富集于优鲈1号的不动杆菌属(Acinetobacter)。
图4 4个大口黑鲈群体肠道菌群组成LEfSe分析

Fig.4 LEfSe analysis of intestinal microflora composition of four Micropterus salmoides populations

2.5.3 4个大口黑鲈群体肠道菌群功能预测及相关性分析

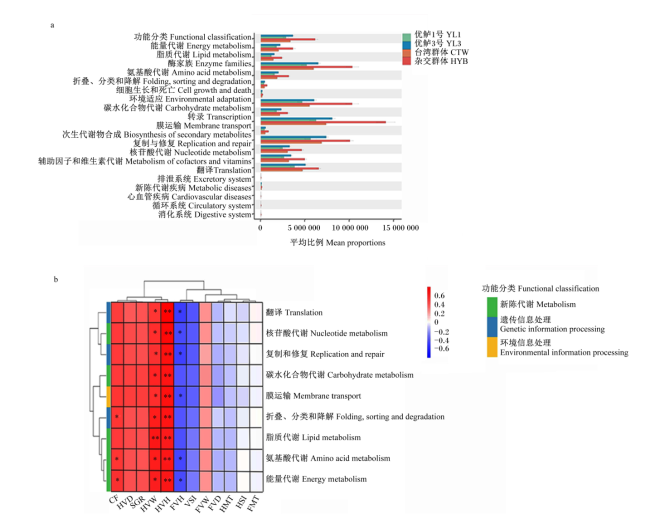
基于获得的ASV采用PICRUSt2软件进行菌群功能分析(图5-a),利用京都基因与基因组百科全书(KEGG)数据库对获得的数据进行比对,4个大口黑鲈群体中最丰富的肠道菌群功能类别是膜转运、碳水化合物代谢、氨基酸代谢、复制和修复、翻译以及能量代谢,并且各功能分类在4个大口黑鲈中的平均比例变化趋势均为:杂交群体>优鲈3号>台湾群体>优鲈1号。此外,通过斯皮尔曼相关性分析发现(图5-b),各肠道菌群功能与后肠绒毛高度呈极显著正相关(P<0.01);脂质代谢与后肠绒毛宽度呈极显著正相关(P<0.01),其他功能与后肠绒毛宽度显著正相关(P<0.05);大口黑鲈肥满度与能量代谢、氨基酸代谢以及折叠、分类和降解呈显著正相关(P<0.05)。
图5 4个大口黑鲈群体肠道菌群功能预测及相关性分析

a:肠道菌群功能预测;b: 相关性分析。

CF:肥满度 condition factor;HVD:后肠绒毛密度 hindgut villus density;SGR:特定生长率 specific growth rate;HVW:后肠绒毛宽度 hindgut villus width;HVH:后肠绒毛高度 hindgut villus heigh;FVH:前肠绒毛高度 foregut villus heigh;VSI:脏体比 viscerosomatic index;FVW:前肠绒毛宽度 foregut villus width;FVD:前肠绒毛密度 foregut villus density;HMT:后肠肌层厚度 hindgut muscular thickness;HSI:肝体比 hepatosomatic index;FMT:前肠肌层厚度 foregut muscular thickness。

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.5 Function prediction of intestinal microflora and correlation analysis of four Micropterus salmoides populations

a: function prediction of intestinal microflora; b: correlation analysis.

* indicated significant association (P<0.05), and ** indicated extremely significant association (P<0.01).

3 讨论

生长性能和形态指标是鱼类良种选育和品种改良过程中重要的选种参数[18]。不同大口黑鲈群体的生长性能存在差异,李江涛等[19]以大口黑鲈台湾群体和佛山群体为亲本进行自交和正反交,发现正反交群体的生长性能和形态指标显著优于2个自交群体。周家辉等[20]通过对大口黑鲈北方亚种、“优鲈1号”及其正反交后代群体的生长性能进行综合分析,发现杂交群体的生长性能要优于自交群体,并且北方亚种的生长性能优于“优鲈1号”。在形态指标方面,脏体比、肝体比和肥满度是衡量鱼体能量状态的重要指标,在一定程度上可以反映鱼体的健康状况[7]。本试验通过美国北方亚种和地方选育种进行正交,得到的杂交群体生长性能和形态指标均优于国内养殖群体,依次为:杂交群体、台湾群体、“优鲈3号”和“优鲈1号”,这是因为本研究中杂交群体的父本为新引进的美国北方亚种,遗传结构相对独立,具有较高的遗传多样性,而“优鲈3号”和“优鲈1号”是在台湾群体的基础上经过多代选育而来,其在选育的过程中可能存在遗传混杂现象,也可能会出现一些基因所决定的生长性状存在连锁现象,导致遗传多样性降低和种质退化,因此基于北方亚种群体开展群体选育或与其他群体开展种内杂交育种可能具有较好的应用前景[4]
本试验中,4种养殖大口黑鲈群体的肌肉常规营养成分中的水分、粗蛋白质和粗灰分含量与宋立民等[21]及樊佳佳等检测结果一致,但宋立民等[21]所测“优鲈3号”和台湾群体肌肉粗脂肪含量(分别为2.60%和1.83%)明显低于本试验所测“优鲈3号”和台湾群体肌肉粗脂肪含量(分别为6.00%和3.01%);樊佳佳等[22]所测“优鲈1号”肌肉粗脂肪含量为4.45%,明显低于本试验所测“优鲈1号”肌肉粗脂肪含量(6.94%)。本试验所测杂交群体肌肉粗脂肪含量为6.40%,与王广军等[23]的检测冰鲜鱼组肌肉粗脂肪含量(6.41%)一致,高于其饲料组所测结果(2.12%)。推测这一结果与养殖过程中饲料营养成分、养殖模式、养殖周期和养殖温度等因素有关。根据世界卫生组织和联合国粮农组织提出的脂肪酸平衡要求,SFA、MUFA和PUFA比例(S:M:P)越接近1:1:1,越有助于人体营养均衡[24]。本试验4种大口黑鲈群体肌肉的S:M:P接近1.0:1.1:1.4,相比于鳙鱼(Aristichthys nobilis)[25]、鲤鱼(Cyprinus carpio)[8]等其他鱼类更接近于理想比值,因此食用大口黑鲈更有助于人体摄入均衡的营养。另外,4个大口黑鲈群体肌肉脂肪酸中均以PUFA含量最高,其次为MUFA和SFA。大口黑鲈作为肉食性鱼类,其激烈的抢食行为使得大量SFA和MUFA优先分解供能,同时降低了大口黑鲈体内脂肪沉积,提高生长性能[26];并且,穆小平[27]研究发现,鱼类在适当的运动强度下能增加肌肉PUFA含量,而PUFA含量与鱼肉口感鲜嫩程度成正比[5]。有报道指出,鱼类肌肉脂肪酸含量和组成差异是评价其营养价值的重要指标,同时提高肌肉营养价值也是选育优良品种的主要目标之一,其组成及含量主要与养殖模式、饲料类型和生活环境等因素有关[28]。本试验在相同的养殖条件下,发现杂交群体的肌肉脂肪酸含量显著高于目前国内主要养殖群体,表明杂交可以促进大口黑鲈肌肉中脂肪酸的积累,优化肌肉品质。
肠道是鱼类消化吸收营养物质的主要部位,绒毛高度、绒毛宽度以及肌层厚度与鱼类肠道的生长发育和吸收能力密切相关[11]。绒毛高度和宽度的增加会增大与食物的接触面积,从而促进对营养物质的消化吸收;肌层厚度则可反映肠道的收缩能力,通过肠道收缩推动食物,形成肠道蠕动,使食物与消化液在肠道内充分混匀,提高消化吸收效率[16]。4种大口黑鲈群体的前肠绒毛高度和宽度均高于后肠,前肠可能是其主要的消化场所[29]。本试验中,杂交群体肠道结构最优,其次为台湾群体、“优鲈3号”和“优鲈1号”,与生长变化趋势一致。因此,大口黑鲈肠道绒毛发育越完善,形态结构越完整,在维持肠道内环境稳态方面发挥的作用越大,有利于肠道微生物的定植和增殖,从而有助于对营养物质消化吸收,降低饲料系数,提高生长性能。
不同鱼类肠道优势菌群存在差异,但是厚壁菌门、变形菌门和梭杆菌门更多的以优势菌门的身份出现[13]。这与本试验在门水平上的分析结果一致,大口黑鲈肠道内的优势菌群为厚壁菌门、变形菌门、梭杆菌门以及放线菌门。厚壁菌门可以参与机体内蛋白质、脂肪等复杂大分子有机物质的转化,被认为是评价动物机体肥胖程度的重要指标,哺乳动物的肥胖、糖尿病等常常与其丰度上升密切相关[30]。本试验中,厚壁菌门在杂交群体中比例显著低于其他3个群体,可能是因为杂交群体在养殖过程中对于脂类和碳水化合物等营养物质的代谢更加旺盛,这有利于大口黑鲈的健康生长。目前研究表明,变形菌门中包含大量潜在致病菌,对于哺乳动物来说,其丰度提高是宿主肠道菌群失调的重要标志之一[31],但是Sun等[32]研究发现,变形菌门始终参与蛋白质的消化过程,与宿主的具有复杂的相互作用,并且变形菌门对于鱼类作用机制研究较少,还需要进一步明确。另外,本试验中梭杆菌门和放线菌门在杂交群体的相对丰度较高,梭杆菌门和放线菌门具有降解多糖和蛋白质、缓解肠道炎症以及增强对致病菌的抵抗力等作用,有助于维持肠道内稳态[33]。通过进一步分析大口黑鲈肠道内的核心菌群发现,所占比例较大的属是厚壁菌门的支原体属、梭杆菌门的鲸杆菌属以及变形菌门的不动杆菌属和邻单胞菌属。鲸杆菌属作为一种益生菌,能改善鱼类肠道健康,可以一定程度上抑制潜在致病菌的活性[34-35];不动杆菌属是多数淡水鱼类的优势菌属,具有抵抗病原菌感染、产生胞外酶等作用,可以增强鱼体对蛋白质等营养物质的消化吸收[36];而支原体属和邻单胞菌属中大多都是致病菌和机会致病菌,这些潜在致病菌会在鱼类内外环境发生改变时导致鱼类发病,影响鱼类生长[37]。肠道微生物多样性与宿主的健康情况和代谢能力密切相关,肠道微生物多样性高说明肠道功能的稳定性高,宿主的抗病能力强[38]。本试验中,杂交群体的物种组成与其他3个群体相差较大,物种数量更丰富且含量更高,目前研究表明肠道微生物之间复杂的相互作用能够加速脂肪代谢及脂肪酸的积累[39],并且在维持肠道稳态从而促进肠道健康等方面发挥重要作用[40]。杂交育种可能不仅仅改善大口黑鲈的生长性能和肌肉品质,而且在提高肠道微生物的多样性上发挥一定的杂交优势。
本试验采用PICRUSt2软件预测分析了4个大口黑鲈群体的肠道微生物功能,表明不同群体之间存在相似的功能通路分布特征,主要集中在新陈代谢、遗传信息处理以及环境信息处理等方面,这与大口黑鲈具有相同的优势菌群有关,然而杂交群体在各通路的丰度均显著高于其他群体,笔者认为这与杂交群体肠道微生物多样性高于其他群体有关,而鱼类肠道菌群结构差异与不同群体肠道内的选择压力密切相关,且宿主与肠道菌群之间相互作用,共同选择进化[41],这也进一步说明杂交育种在提高肠道微生物多样性上发挥了杂交优势,并且使肠道为微生物的生理活动更加活跃,从而对宿主营养代谢产生一定的影响。通过斯皮尔曼相关性分析进一步发现,这些肠道微生物功能有利于后肠绒毛的发育,从而促进大口黑鲈对营养物质的消化吸收,降低饲料系数,提高肥满度,这一结果也与上文的生长性能和肠道菌群组成结果一致,更加证实了肠道菌群的多样性与鱼体生长代谢紧密相连。

4 结论

相较于其他群体,杂交群体大口黑鲈增重率、特定生长率以及肥满度提高,并且肌肉中各类脂肪酸的积累增多,肌肉口感和品质得到提升。此外,杂交群体的肠道形态结构也得到显著改善,肠道菌群的多样性提高,肠道鲸杆菌属相对丰度提高,从而促进了大口黑鲈对营养物质的消化吸收,降低了饲料系数,提高了生长性能,提升了选育的综合效果。
[1]
TSUNODA H, MITSUO Y. Variations in piscivory of invasive largemouth bass Micropterus salmoides associated with pond environments[J]. Limnology, 2018, 19(3):271-276.

DOI

[2]
HU C H, BIE H Q, LU Z Y, et al. Out-of-season spawning of largemouth bass in a controllable recirculating system[J]. Frontiers in Physiology, 2023, 14:1175075.

DOI

[3]
农业农村部渔业渔政管理局. 全国水产技术推广总站,中国水产学会. .中国渔业统计年鉴-2023[M]. 北京: 中国农业出版社, 2023:17-37.

Bureau of fisheries,Ministry of agriculture and rural affairs, National Fisheries Technology Extension Center,China Society of Fisheries. China fisheries statistical yearbook 2023[M]. Beijing: China Agriculture Press, 2023:17-37. (in Chinese)

[4]
张帝, 强俊, 傅建军, 等. 基于微卫星标记和线粒体D-loop序列的5个大口黑鲈群体遗传变异分析[J]. 中国水产科学, 2022, 29(9):1277-1289.

ZHANG D, QIANG J, FU J J, et al. Genetic analysis of five stocks of largemouth bass (Micropterus salmoides) with microsatellite and mitochondrial D-loop sequences[J]. Journal of Fishery Sciences of China, 2022, 29(9):1277-1289. (in Chinese)

[5]
强俊, 杨弘, 徐跑, 等. 吉富罗非鱼与奥利亚罗非鱼完全双列杂交后代生长性能与肌肉营养成分的比较[J]. 中国水产科学, 2015, 22(4):654-665.

QIANG J, YANG H, XU P, et al. Comparative study of the growth and nutrient composition of muscle tissue of two species of tilapia and their reciprocal hybrids[J]. Journal of Fishery Sciences of China, 2015, 22(4):654-665. (in Chinese)

[6]
王冰柯, 王延晖, 冯建新, 等. 黄河鲤新品系F3和F4群体的生长和肌肉营养成分差异分析[J]. 水产科学, 2023, 42(3):488-495.

WANG B K, WANG Y H, FENG J X, et al. Analysis of difference in growth and muscle nutrient composition between F3 and F4 populations of Yellow River common carp Cyprinus carpio new strain[J]. Fisheries Science, 2023, 42(3):488-495. (in Chinese)

[7]
魏广莲, 徐钢春, 顾若波, 等. 饲料中添加不饱和脂肪酸对刀鲚幼鱼脂肪代谢酶活性和肌肉成分的影响[J]. 动物营养学报, 2014, 26(1):270-278.

DOI

WEI G L, XU G C, GU R B, et al. Effects of unsaturated fatty acids on lipid metabolism enzyme activities and muscle components of juvenile Coilia nasus[J]. Chinese Journal of Animal Nutrition, 2014, 26(1):270-278. (in Chinese)

[8]
吴雨晨, 周锐东, 夏腾, 等. 高脂日粮对鲤鱼生长及肌肉营养成分的影响[J]. 饲料研究, 2021, 44(6):66-69.

WU Y C, ZHOU R D, XIA T, et al. Effect of high-fat diet on growth and muscle nutritional ingredients of common carp (Cyprinus carpio)[J]. Feed Research, 2021, 44(6):66-69. (in Chinese)

[9]
李玲雪, 高春山, 彭思博, 等. 稻田与池塘养殖瓯江彩鲤肌肉营养成分对比分析[J]. 水产科技情报, 2023, 50(2):116-120.

LI L X, GAO C S, PENG S B, et al. Contrastive analysis on muscle nutrient composition of Cyprinus carpio var. color cultured in paddy field and pond[J]. Fisheries Science & Technology Information, 2023, 50(2):116-120. (in Chinese)

[10]
唐雪, 徐钢春, 徐跑, 等. 野生与养殖刀鲚肌肉营养成分的比较分析[J]. 动物营养学报, 2011, 23(3):514-520.

TANG X, XU G C, XU P, et al. A comparison of muscle nutrient composition between wild and cultured Coilia nasus[J]. Chinese Journal of Animal Nutrition, 2011, 23(3):514-520. (in Chinese)

[11]
荣华, 张雷, 王晓雯, 等. 四种不同食性鱼类的消化酶活性及肠道组织形态学比较研究[J]. 淡水渔业, 2023, 53(2):29-35.

RONG H, ZHANG L, WANG X W, et al. Comparative study on digestive enzyme activity and intestinal tissue morphology of four fishes with different feeding habits[J]. Freshwater Fisheries, 2023, 53(2):29-35. (in Chinese)

[12]
张卫, 谭北平, 庞奥博, 等. 珍珠龙胆石斑鱼豆粕诱导型肠炎肠道潜在生物标志物筛选[J]. 广东海洋大学学报, 2022, 42(4):1-12.

ZHANG W, TAN B P, PANG A B, et al. Screening of potential biomarkers for soybean meal induced enteritis in pearl gentian grouper (Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂)[J]. Journal of Guangdong Ocean University, 2022, 42(4):1-12. (in Chinese)

[13]
肖善势, 张爱菊, 刘金殿, 等. 千峡湖三种肉食性鱼类肠道微生物群落结构分析[J]. 水产学杂志, 2022, 35(3):73-79.

XIAO S S, ZHANG A J, LIU J D, et al. Analysis on intestine microbial community structure of three carnivorous fishes in Qianxia lake,China[J]. Chinese Journal of Fisheries, 2022, 35(3):73-79. (in Chinese)

[14]
LI B, ZHANG X X, GUO F, et al. Characterization of tetracycline resistant bacterial community in saline activated sludge using batch stress incubation with high-throughput sequencing analysis[J]. Water Research, 2013, 47(13):4207-4216.

DOI PMID

[15]
陈倪慧, 杨霞, 孙珊珊, 等. 发酵植物蛋白复配替代豆粕对青鱼生长、免疫、抗氧化及肠道菌群结构的影响[J]. 动物营养学报, 2023, 35(4):2478-2489.

DOI

CHEN N H, YANG X, SUN S S, et al. Effects of soybean meal replaced by fermented plant protein compound on growth,immune,antioxidant and intestinal microflora structure of black carp (Mylopharyngodon piceus)[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2478-2489. (in Chinese)

[16]
卞宇豪, 杨航, 许晓莹, 等. 发酵豆粕、肉骨粉及其混合物替代鱼粉对大口黑鲈生长、血清生化指标和肠道组织学的影响[J]. 水产学报, 2022, 46(10):1813-1823.

BIAN Y H, YANG H, XU X Y, et al. Effects of replacing dietary fish meal with fermented soybean meal,meat and bone meal and their mixture on growth,serum biochemical indices and intestinal histology of largemouth bass (Micropterus salmoides)[J]. Journal of Fisheries of China, 2022, 46(10):1813-1823. (in Chinese)

[17]
王梦华, 李国立, 黄文庆, 等. 饲料中添加复合植物提取物对大口黑鲈生长性能、血清生化指标和肝脏、肠道健康的影响[J]. 水产学报, 2022, 46(10):1892-1901.

WANG M H, LI G L, HUANG W Q, et al. Effects of plant extract compound on growth performance,serum biochemical indices,liver and intestinal health of largemouth bass (Micropterus salmoides)[J]. Journal of Fisheries of China, 2022, 46(10):1892-1901. (in Chinese)

[18]
HWANG E K, YOTSUKURA N, PANG S J, et al. Seaweed breeding programs and progress in eastern Asian countries[J]. Phycologia, 2019, 58(5):484-495.

DOI

[19]
李江涛, 杨凯宇, 邱晓桐, 等. 大口黑鲈佛山和台湾群体自交与杂交子代的生长和形态差异分析[J]. 南方水产科学, 2021, 17(5):1-9.

LI J T, YANG K Y, QIU X T, et al. Comparison of growth and morphological characteristics of inbred and hybrid families of Micropterus salmoides from Foshan and Taiwan populations[J]. South China Fisheries Science, 2021, 17(5):1-9. (in Chinese)

[20]
周家辉, 李胜杰, 姜鹏, 等. 大口黑鲈北方亚种群体和“优鲈1号”群体及其正反杂交子代的遗传和生长性能比较[J]. 海洋渔业, 2020, 42(3):324-331.

ZHOU J H, LI S J, JIANG P, et al. Comparison analysis of genetic diversity and growth traits among “Youlu No.1” and their reciprocal hybrids of northern Micropterus salmoides[J]. Marine Fisheries, 2020, 42(3):324-331. (in Chinese)

[21]
宋立民, 姜巨峰, 王宇, 等. 不同养殖模式下2个群体大口黑鲈肌肉营养成分比较[J]. 中国农学通报, 2022, 38(14):118-123.

DOI

SONG L M, JIANG J F, WANG Y, et al. Comparison of muscle nutritional components of Micropterus salmoides from 2 populations under different culture modes[J]. Chinese Agricultural Science Bulletin, 2022, 38(14):118-123. (in Chinese)

[22]
樊佳佳, 白俊杰, 李胜杰, 等. 大口黑鲈“优鲈1号”选育群体肌肉营养成分和品质评价[J]. 中国水产科学, 2012, 19(3):423-429.

FAN J J, BAI J J, LI S J, et al. Nutrient composition and nutritive quality of the muscle of Micropterus salmoides,“Youlu No.1”[J]. Journal of Fishery Sciences of China, 2012, 19(03):423-429. (in Chinese)

DOI

[23]
王广军, 关胜军, 吴锐全, 等. 大口黑鲈肌肉营养成分分析及营养评价[J]. 海洋渔业, 2008, 30(3):239-244.

WANG G J, GUAN S J, WU R Q, et al. Analysis and evaluation on nutritional composition in muscles of big mouth bass,Micropterus salmoides[J]. Marine Fisheries, 2008, 30(3):239-244. (in Chinese)

[24]
周陆, 张国奇, 张友良. 不同水系翘嘴鲌群体肌肉营养成分分析与评价[J]. 水产科技情报, 2022, 49(5):278-283.

ZHOU L, ZHANG G Q, ZHANG Y L. Evaluation on nutritional components of Culter alburnus collected from different basins[J]. Fisheries Science & Technology Information, 2022, 49(5):278-283. (in Chinese)

[25]
类延菊, 徐文思, 杨品红, 等. 饲料不同脂肪源对鳙鱼生长性能及肉品质的影响[J]. 动物营养学报, 2022, 34(11):7317-7331.

DOI

LEI Y J, XU W S, YANG P H, et al. Effects of dietary different lipid sources on growth performance and flesh quality of bighead carp[J]. Chinese Journal of Animal Nutrition, 2022, 34(11):7317-7331. (in Chinese)

DOI

[26]
汪涛, 沈勇, 孙龙生, 等. 梭鲈与加州鲈、鳜鱼的肌肉品质比较[J]. 水产养殖, 2020, 41(7):17-23.

WANG T, SHEN Y, SUN L S, et al. Comparison of muscle quality among pikeperch,largemouth bass and mandarin fish[J]. Journal of Aquaculture, 2020, 41(7):17-23. (in Chinese)

[27]
穆小平. 逆流运动及饲料脂肪对吉富罗非鱼生长及体成分等的影响[D].硕士学位论文. 广州: 暨南大学, 2014.

MU X P. Effects of upstream exercise and diet lipid on growth and body composition of GIFT Oreochromis niloticus[D].Master’s Thesis. Guangzhou: Jinan University, 2014. (in Chinese)

[28]
田娟, 许巧情, 田罗, 等. 洞庭湖克氏原螯虾肌肉成分分析及品质特性分析[J]. 水生生物学报, 2017, 41(4):870-877.

TIAN J, XU Q Q, TIAN L, et al. The muscle composition analysis and flesh quality of Procambarus clarkia in the Dongting lake[J]. Acta Hydrobiologica Sinica, 2017, 41(4):870-877. (in Chinese)

[29]
赵柳兰, 陈侨兰, 杨淞, 等. 大口黑鲈消化道组织结构及黏液细胞的类型和分布[J]. 四川农业大学学报, 2018, 36(4):549-554.

ZHAO L L, CHEN Q L, YANG S, et al. Analysis of the histological structure,the types and distribution of mucous cells of digestive tract in largemouth bass (Micropterus samoides)[J]. Journal of Sichuan Agricultural University, 2018, 36(4):549-554. (in Chinese)

[30]
BRADLOW H L. Obesity and the gut microbiome:pathophysiological aspects[J]. Hormone Molecular Biology and Clinical Investigation, 2014, 17(1):53-61.

DOI

[31]
MAHARSHAK N, PACKEY C D, ELLERMANN M, et al. Altered enteric microbiota ecology in interleukin 10-deficient mice during development and progression of intestinal inflammation[J]. Gut Microbes, 2013, 4(4):316-324.

DOI PMID

[32]
SUN Y, HE M W, CAO Z J, et al. Effects of dietary administration of Lactococcus lactis HNL12 on growth,innate immune response,and disease resistance of humpback grouper (Cromileptes altivelis)[J]. Fish&Shellfish Immunology, 2018, 82:296-303.

[33]
KESARCODI-WATSON A, KASPAR H, LATEGAN M J, et al. Probiotics in aquaculture:the need,principles and mechanisms of action and screening processes[J]. Aquaculture, 2008, 274(1):1-14.

DOI

[34]
何明. 大口黑鲈饲料中发酵豆粕替代鱼粉的效果及谷氨酰胺、丁酸梭菌提升其效价的营养策略研究[D].博士学位论文. 上海: 上海海洋大学, 2020.

HE M. Study on the effects of fermented soybean meal in fish meal replacement and the improvement of glutamine and Clostridium butyricum on its effectiveness in the diet of largemouth bass (Micropterus salmoides)[D].Ph.D. Thesis. Shanghai: Shanghai Ocean University, 2020. (in Chinese)

[35]
ZHOU W, XIE M X, XIE Y D, et al. Effect of dietary supplementation of Cetobacterium somerae XMX-1 fermentation product on gut and liver health and resistance against bacterial infection of the genetically improved farmed tilapia (GIFT,Oreochromis niloticus)[J]. Fish & Shellfish Immunology, 2022, 124:332-342.

[36]
张涵, 周涛, 王岩. 综合养殖池塘中三角帆蚌和鱼类肠道细菌的组成[J]. 水生生物学报, 2013, 37(5):824-835.

ZHANG H, ZHOU T, WANG Y. Bacterial composition in the intestine of freshwater pearl mussel and co-cultured fishes in an integrated culture pond[J]. Acta Hydrobiologica Sinica, 2013, 37(5):824-835. (in Chinese)

[37]
李全杰, 朱昊俊, 强俊, 等. 饲料中添加刺五加对吉富罗非鱼脂质沉积、抗氧化能力及肠道消化酶和微生物的影响[J]. 水生生物学报, 2023, 47(9):1396-1407.

LI Q J, ZHU H J, QIANG J, et al. Fat deposition,antioxidant capacity,digestive enzymes and gut microbiome associated with diets containing Siberian ginseng in genetically improved farmed tilapia (GIFT,Oreochromis niloticus)[J]. Acta Hydrobiologica Sinica, 2023, 47(9):1396-1407. (in Chinese)

[38]
金若晨, 江敏, 孙世玉, 等. 凡纳滨对虾养殖环境及肠道微生物群落特征分析[J]. 水产学报, 2020, 44(12):2037-2054.

JIN R C, JIANG M, SUN S Y, et al. Microbial community in Litopenaeus vannamei intestine and its aquaculture environment[J]. Journal of Fisheries of China, 2020, 44(12):2037-2054. (in Chinese)

[39]
丁皓天, 徐一力, 催祥宇, 等. 发酵豆粕饲料对鲫鱼生长、肌肉品质和健康状况的影响[J]. 饲料研究, 2023, 46(13):50-55.

DING H T, XU Y L. Effect of fermented soybean meal feed on growth performance,flesh quality and health condition of Carassius auratus[J]. Feed Research, 2023, 46(13):50-55. (in Chinese)

[40]
张冬梅, 颜浩骁, 罗茂林, 等. 饲料中添加枯草芽孢杆菌对大口黑鲈幼鱼生长、肠道组织结构、抗氧化能力、免疫能力和肠炎的影响[J]. 动物营养学报, 2022, 34(1):575-588.

DOI

ZHANG D M, YAN H X, LUO M L, et al. Effects of dietary Bacillus subtilis on growth,intestinal tissue structure,antioxidant capacity,immunity and enteritis of juvenile largemouth bass (Micropterus salmoides)[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):575-588. (in Chinese)

[41]
刘燕云. 大西洋鲑感染杀鲑气单胞菌后肠道菌群变化机制的初步研究[D].硕士学位论文. 大连: 大连海洋大学, 2023.

LIU Y Y. Changes of gut microbial of Atlantic salmon infected with aeromonas salmonidis and its intestinal mechanism[D].Master’s Thesis. Dalian: Dalian Ocean University, 2023. (in Chinese)

文章导航

/