研究论文

驴脂肪酸去饱和酶2基因克隆及组织表达规律的研究

  • 黄飞 ,
  • 杜心怡 ,
  • 刘桂芹 ,
  • 王长法 ,
  • 周苗苗 , *
展开
  • 聊城大学农学与农业工程学院,毛驴高效繁育与生态饲养研究院,聊城 252000
* 周苗苗,副教授,硕士生导师,E-mail:

黄飞(2000—),男,安徽马鞍山人,硕士研究生,从事草食动物泌乳生理研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-09-11

  网络出版日期: 2024-02-01

基金资助

国家重点研发计划子课题(2022YFD1600103)

山东省自然科学基金(ZR2023MC149)

山东省重点研发计划(2021TZXD012)

聊城大学畜牧学学科开放课题(319462207-9)

Cloning and Tissue Expression Rule of Fatty Acid Desaturase 2 Gene in Donkeys

  • HUANG Fei ,
  • DU Xinyi ,
  • LIU Guiqin ,
  • WANG Changfa ,
  • ZHOU Miaomiao , *
Expand
  • Liaocheng Research Institute of Donkey High-Efficiency Breeding and Ecological Feeding, School of Agricultural Science and Engineering, Liaocheng University, Liaocheng 252000, China
* associate professor, E-mail:

Received date: 2023-09-11

  Online published: 2024-02-01

摘要

本研究克隆了驴脂肪酸去饱和酶2(FADS2)基因并进行了生物信息学分析,检测了其在驴不同组织中的表达。通过设计FADS2基因引物,PCR克隆得到其CDS序列,然后对FADS2基因编码产物进行生物信息学预测,同时使用实时荧光定量PCR(RT-qPCR)检测驴心脏、肝脏、脾脏、肺脏、肾脏、肌肉、脂肪、乳腺内FADS2基因相对表达量。结果显示:驴FADS2基因CDS长1 335 bp,可编码444个氨基酸,FADS2蛋白分子质量为52.43 ku,等电点为8.29,不稳定指数为37.22,疏水性总平均值为-0.231,属于稳定碱性亲水蛋白;FADS2蛋白二级结构主要由α-螺旋(51.80%)和无规则卷曲(37.61%)构成。FADS2基因在所检测驴组织中均有表达,其中在脂肪和乳腺中相对表达量最高,其次为脾脏、肺脏、肾脏、心脏和肝脏,肌肉中相对表达量最低。结果提示,FADS2可能在驴脂肪和乳腺等组织不饱和脂肪酸的合成过程中发挥重要作用。本研究可为进一步探究驴脂肪和驴乳中高不饱和脂肪酸的合成机理提供基础。

本文引用格式

黄飞 , 杜心怡 , 刘桂芹 , 王长法 , 周苗苗 . 驴脂肪酸去饱和酶2基因克隆及组织表达规律的研究[J]. 动物营养学报, 2024 , 36(2) : 1204 -1212 . DOI: 10.12418/CJAN2024.109

Abstract

In this study, the donkey fatty acid desaturase 2 (FADS2) gene was cloned and its expression in different tissues of the donkey was detected by bioinformatics analysis. The FADS2 gene primers were designed and the CDS sequence of FADS2 gene was obtained by PCR cloning, and then the coding products of FADS2 gene were predicted by bioinformatics. The relative expression levels of FADS2 gene in heart, liver, spleen, lung, kidney, muscle, fat and mammary gland was detected by real-time fluorescent quantitative PCR (RT-qPCR). The results showed that the donkey FADS2 gene’s CDS was 1 335 bp which may encode a peptide with 444 amino acid residues; the molecular mass, isoelectric point, instability index, and hydrophobicity average value of FADS2 protein were 52.43 ku, 8.29, 37.22, and -0.231, respectively, and it was a alkaline hydrophilic protein with an stable secondary structure. The secondary structure of FADS2 protein was mainly composed of α-helix (51.80%) and random coil (37.61%). The FADS2 gene were expressed in all tested tissues of donkeys, and the relative expression level was the highest in fat and mammary gland, followed by spleen, lung, kidney, heart, liver, and the relative expression level in muscle was the lowest. The results suggest that FADS2 plays an important role in the synthesis of unsaturated fatty acids in fat and mammary gland of donkeys. This study provided a basis for further exploring the synthesis mechanism of high unsaturated fatty acids in fat and milk of donkeys.

脂肪酸去饱和酶2(fatty acid desaturase 2,FADS2)是脂肪酸去饱和酶家族成员之一,是多不饱和脂肪酸(polyunsaturated fatty acids,PUFAs)合成代谢途径中关键的限速酶[1]。众多研究表明,FADS2在脂肪酸代谢过程中发挥重要作用。欧小倩等[2]研究发现,FADS2能调节鸡肉中不饱和脂肪酸含量,进而影响鸡肉的品质和风味。陈兴勇等[3]研究发现,育肥期皖西白鹅肝脏中FADS2基因相对表达量上升伴随着肌肉中单不饱和脂肪酸(monounsaturated fatty acid,MUFA)含量的增加和不饱和脂肪酸(unsaturated fatty acid,UFA)/饱和脂肪酸(saturated fatty acid,SFA)比值的上升。马小娅等[4]研究发现,FADS2可以调控奶牛乳腺上皮细胞中脂质的合成,干扰或过表达FADS2基因均可降低奶牛乳腺细胞中甘油三酯的含量。王梦琦等[5]研究了中国荷斯坦牛FADS2基因c.908 C>T突变对泌乳性能和乳中脂肪酸组成的影响,结果发现FADS2基因编码区c.908 C>T有CC、CT和TT 3种基因型,其中TT基因型具有较高的日产奶量、总固体和C16:1含量及C16和C18不饱和指数。邬娇等[6]研究了原代奶山羊乳腺上皮细胞中PUFAs及其衍生物合成的代谢调控,结果发现FADS2能够调控奶山羊乳腺中PUFAs合成及甘油三酯代谢。此外,很多研究证实FADS2参与了鱼[7-10]、猪[11-13]、豚鼠[14]等动物体内的脂肪酸代谢调控。亦有研究表明,FADS2与人肥胖、胰岛素抵抗和皮肤病等疾病有关[1]
驴肉中的SFAs含量较低,PUFAs含量较高,营养指标优于传统的牛肉和猪肉[15]。驴乳脂肪酸组成也主要以UFAs为主,含量高达62.9%,其中C18:2与C18:3的含量约占24%,与人乳和牛乳分别占8%和4%相比,驴乳的脂肪酸组成是比较理想的[16];此外,驴乳中乳脂共轭亚油酸含量高,具有抗肿瘤、抗氧化等功效[17]。目前关于驴UFAs合成调控方面的研究较少,鉴于此,本研究拟通过设计驴FADS2基因引物,PCR克隆得到其CDS序列,进行生物信息学分析并检测其在驴不同组织中的相对表达量,初步探讨FADS2在驴UFAs合成中的作用,旨在为进一步研究驴UFAs的合成调控机理奠定基础。

1 材料与方法

1.1 试验材料

1.1.1 样本采集

选取4头健康的德州驴母驴,屠宰后采集心脏、肝脏、脾脏、肺脏、肾脏、肌肉、乳腺和皮下脂肪,液氮速冻,-80 ℃冷冻保存。

1.1.2 主要试剂

Trizol试剂、Lipofectamine 3000、pcDNA3.1/Myc-His 载体,购自美国 Invitrogen公司;PrimeScript® RT反转录试剂盒、大肠杆菌DH5α感受态细胞,购自TaKaRa公司;Pfu高保真聚合酶,购自北京Transgen Biotech公司;胶回收试剂盒,购自广州Magen公司;EcoR Ⅰ和Xho Ⅰ酶,购自Bio-Lab公司;胎牛血清,购自杭州四季青生物工程材料有限公司;Ham’s F12培养液,购自美国Gibco公司;细胞裂解液,购自瑞士Roche公司。

1.2 试验方法

1.2.1 总RNA的提取和全长cDNA克隆

Trizol法提取驴肝脏总RNA。PrimeScript® RT反转录试剂盒合成cDNA。使用高保真酶以FADS2基因的cDNA为模板扩增;PCR引物见表1,本试验所用PCR反应体系总体积为50 μL:5×Buffer 10 μL、脱氧核糖核苷三磷酸(2.5 mmol/L)4 μL、上游引物(10 μmol/L)1.5 μL、下游引物(10 μmol/L)1.5 μL、酶(2.5 U/μL)0.5 μL、模板2.0 μL、双蒸水30.5 μL。PCR反应条件为:98 ℃ 10 s→55 ℃ 5 s→72 ℃ 1.75 min(扩增35个循环)→72 ℃ 5 min。PCR产物在电泳检测后,用胶回收试剂盒(Magen)回收并纯化目的产物。胶回收产物连接克隆载体pTOPO-Blunt cloning kit(CV16)转化DH5α感受态细胞,涂布于含100 μg/mL的氨苄青霉素LB平板于37 ℃培养过夜后,挑取阳性菌落PCR鉴定,并交由公司测序。
表1 试验中所用引物

Table 1 Primers used in this experiment

基因
Genes
引物序列
Primers sequence
(5'—3')
退火温度
Annealing
temperature/℃
产物大小
Product
size/bp
用途
Purpose

脂肪酸去饱和酶2
FADS2
F:ATGGGGAAGGGGGGGAAC 55
1 335

cDNA克隆
R:TCATTTGTGGAGGTAGGCGTC 55

脂肪酸去饱和酶2
FADS2
F:GCTGCTCATCCCTCTGTATTT 62
112

实时荧光定量PCR
R:AGTGATGAAGAATCGGGCATAG 62

甘油醛-3-磷酸脱氢酶
GAPDH
F:GTCATCATCTCTGCTCCTTCTG 62
99

实时荧光定量PCR
R:GGAGGCATTGCTGACAATCT 62

1.2.2 FADS2生物信息学分析

通过ORF Finder推导氨基酸序列;利用计算机pI/Mw工具(ExPASy Proteomics Server)、NetNglyc、NetPhos等在线预测工具,预测FADS2蛋白的分子质量、理论等电点、二级结构、跨膜区等,生物信息学分析见表2;通过Clustalx、DNAstar等工具对FADS2基因编码区进行多重比对和同源性分析,再利用MEGA11构建系统进化树[18]
表2 生物信息学分析

Table 2 Bioinformatics analysis

在线软件 Online software 网址 Website 用途 Purpose
ORF Finder http://www.ncbi.nlm.nih.gov/gorf/orfig.cgi 推导氨基酸序列
ExPASy Proteomics Server https://web.expasy.Org/ compyte_pi/ 预测FADS2蛋白的分子质量和
理论等电点
SCRATCH Protein Predictor http://scratch.proteomics.ics.uci.edu/ 预测FADS2蛋白的二级结构
Lyngby TMHMM Server https://www.novopro.cn/tools/tmhmm.html 预测FADS2的跨膜区
NetNglyc https://services.healthtech.dtu.dk/service.php?NetNGlyc-1.0 N糖基化的AA序列
SignalIP-5.0 https://www.novopro.cn/tools/signalp.html 信号肽的AA序列
NovoPro http://scratch.proteomics.ics.uci.edu/ 二硫键位点的AA序列

1.2.3 FADS2基因组织表达分析

Trizol法分别提取各组织的总RNA,参考文献[19]中操作流程,取1 mg RNA,用Prime Script® RT试剂盒合成cDNA。然后用SYBR® TrimeScriptTM试剂盒在ABI 7500上测定FADS2基因相对表达量。RT-qPCR反应体系为20 μL。PCR引物序列见表1。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参,采用2-△△Ct的方法计算FADS2基因相对表达量[20-21]。每个样品重复3次,超纯水替代样品做阴性对照。

1.3 统计与分析

本研究所有数据用SAS 9.2进行分析,2组数据间比较采用t检验,多组数据间采用单因素方差分析,数据用柱状图表示,误差线为标准差。当P<0.05时认为差异显著。

2 结果与分析

2.1 FADS2基因的提取及克隆
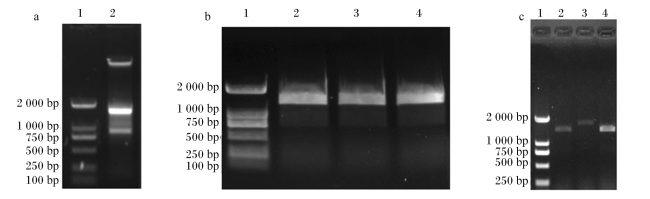
Trizol法提取驴肝脏组织总RNA,RNA电泳图见图1-a。PCR特异性扩增FADS2基因,然后将PCR扩增产物进行电泳检测并回收。目的基因进行PCR后,进行琼脂糖凝胶电泳,可见1条约1 500 bp大小的条带(图1-b)。重组后菌液PCR产物电泳结果如图1-c
图1 FADS2基因提取及克隆

a:1为Marker DL2000,2为FADS2 RNA;b:1为Marker DL2000,2~4为FADS2扩增产物;c:1为Marker DL2000,2~4为FADS2菌液PCR结果。

Fig.1 Extraction and cloning of FADS2 gene

a: 1 was Marker DL2000, 2 was FADS2 RNA; b: 1 was Marker DL2000, 2 to 4 were amplified products of FADS2; c: 1 was Marker DL2000, 2 to 4 were FADS2 PCR products of recombinant bacteria.

2.2 生物信息学分析

2.2.1 FADS2基因序列同源性比对及系统进化树分析

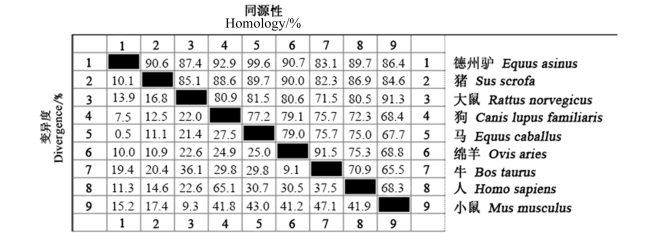
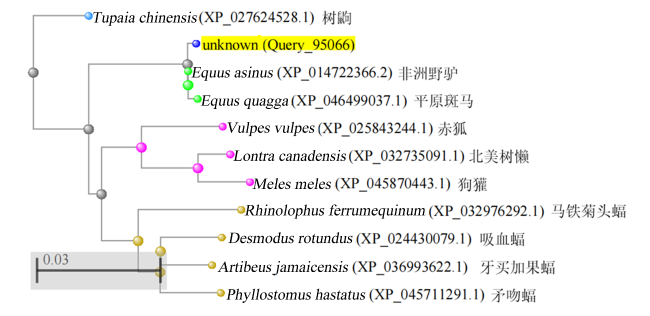
经测序验证成功扩增FADS2基因。序列比对分析表明FADS2的开放阅读框为1 335 bp,可编码444个氨基酸残基组成的多肽链(图2)。首先,运用DNASTAR中的MegAlign软件将驴FADS2基因与GenBank中猪(Sus scrofa,登录号:NM_001171750.1)、大鼠(Rattus norvegicus,登录号:NM_031344.2)、狗(Canis lupus familiaris,登录号:XM_014120904.3)、马(Equus caballus,登录号:XM_023654186.1)、绵羊(Ovis aries,登录号:XM_015103138.3)、牛(Bos taurus,登录号:XM_015461240.2)、人(Homo sapiens,登录号:NM_004265.4)、小鼠(Mus musculus,登录号:NM_019699.2)序列进行同源比对,结果如图3所示。运用MEGA11生成的驴FADS2基因编码序列与不同动物FADS2基因序列构建的系统进化树如图4所示。
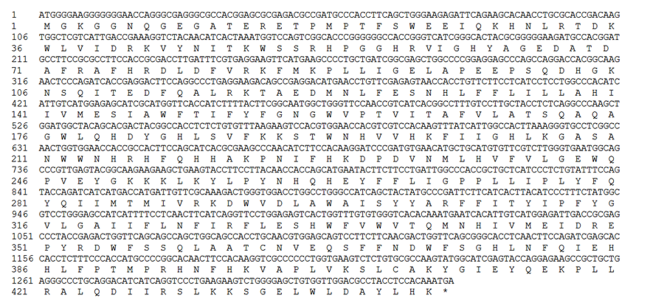
图2 驴FADS2基因CDS及对应氨基酸序列

Fig.2 CDS and corresponding amino acid sequences of donkey FADS2 gene

图3 驴与8个物种FADS2基因编码序列同源性比对

Fig.3 Comparison of coding sequence homology of FADS2 gene between donkey and eight species

图4 基于不同动物FADS2的氨基酸序列的系统进化树

Fig.4 Phylogenic tree constructed based on amino acid sequences of FADS2 from different animals

2.2.2 FADS2蛋白理化性质及亲/疏水性表达分析

利用ProtParam软件对FADS2蛋白进行预测,得出其分子式为C2451H3614N638O625S13;分子质量为52.43 ku;脂肪族指数为85;带负电荷残基总数(色氨酸、谷氨酸)为43个;带正电荷残基(精氨酸、赖氨酸)总数为45个;等电点为8.29,属于碱性蛋白;不稳定指数37.22,基因编码产物不稳定指数小于40,表明该基因编码产物稳定[22],属于稳定蛋白。氨基酸组成分析结果显示,FADS2蛋白含有20种氨基酸,其中占比最高的是亮氨酸(Leu),占9.0%;其次是苯丙氨酸(Phe),占7.9%;最低的是半胱氨酸(Cys),仅占0.5%。
利用ProScale分析驴FADS2蛋白亲/疏水性,发现在该蛋白质138位点上存在最大疏水值3.1;在102位点上存在最小疏水值-2.7(亲水);疏水性平均值为-0.231,属于亲水蛋白质(图5)。
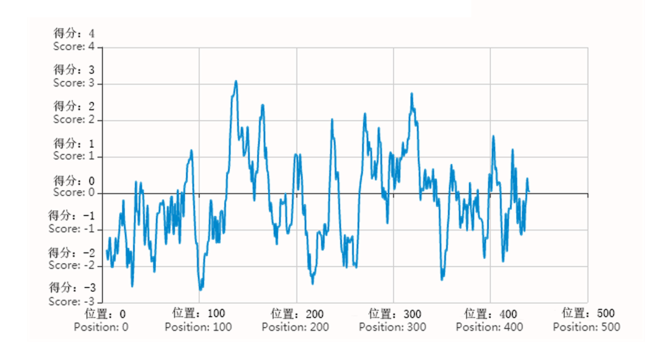
图5 FADS2蛋白疏水性分析

Fig.5 Hydrophobicity analysis of FADS2 protein

2.2.3 FADS2蛋白二级结构及二硫键预测

通过NovoPro在线工具预测FADS2蛋白二级结构,发现FADS2蛋白二级结构中有230个α-螺旋(Hh)、47个β-折叠(Ee)和167个无规则卷曲(Cc),占比分别为51.80%、10.59%和37.61%(图6)。利用SCRATCH Protein Predictor在线工具预测,FADS2蛋白存在2个Cys和1个二硫键。二硫键的位置可能在蛋白质的364和407个氨基酸残基之间,可知2个Cys也分别位于肽链的364和407位置。
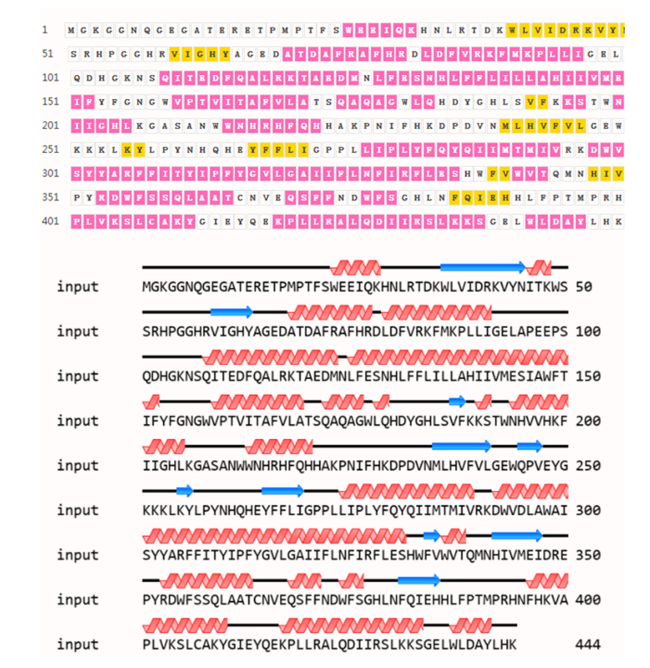
图6 FADS2蛋白二级结构预测

Fig.6 Prediction of FADS2 protein secondary structure

2.2.4 FADS2蛋白修饰位点预测

通过NetNGlyc 1.0、NetPhos 3.1预测驴FADS2蛋白糖基化修饰位点和磷酸化位点。发现在第45位氨基酸处存在N-糖基化位点,存在的可能性高达0.798 8;预测FADS2蛋白磷酸化位点结果显示FADS2蛋白有14个丝氨酸(Ser)、10个苏氨酸(Thr)和2个酪氨酸(Tyr)磷酸化位点,共26个。

2.3 FADS2基因组织表达分析

通过实时荧光定量PCR技术检测驴8个组织中FADS2基因相对表达量,发现在所有被检测组织中均检测到了FADS2基因。其中脂肪和乳腺组织中相对表达量最高,显著高于肺脏、肾脏、心脏、肝脏和肌肉组织(P<0.05);肝脏中FADS2基因相对表达量较低,仅显著高于肌肉组织(P<0.05)(图7)。
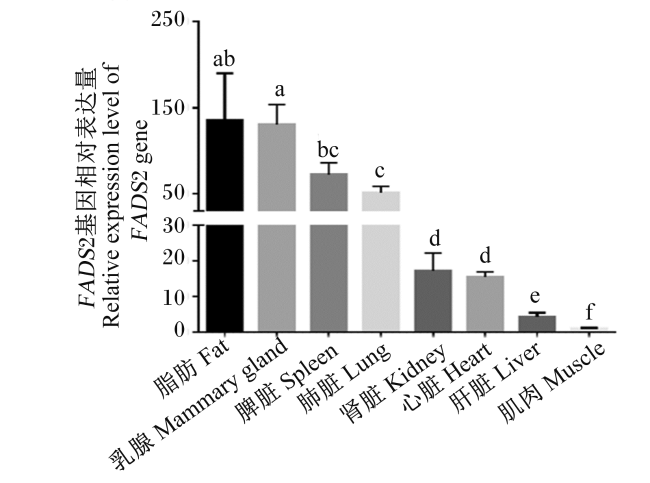
图7 FADS2基因在驴不同组织中的相对表达量

数据柱标注不同字母表示差异显著(P<0.05)。

Fig.7 Relative expression level of FADS2 gene in different tissues of donkey

Data bars with different letters mean significant difference (P<0.05).

3 讨论

FADS2是合成PUFAs过程中的第1个限速酶,在PUFAs的合成调控中起关键作用[23]。有研究表明,在高能量饲粮中添加藻类,可以通过上调FADS2等脂质代谢相关基因表达增加绵羊肝脏和肌肉中PUFA的含量[24]。给奶牛饲喂含有鱼油或微藻类饲粮,则下调了FADS2基因表达,降低了脂肪酸去饱和酶活性,最终降低了乳中UFAs的含量[25]。Huang等[26]研究表明,在山羊乳腺上皮细胞中miR-145通过调节FADS2等基因表达量来降低或升高UFAs比例,从而改善羊奶品质。Shi等[27]在山羊乳腺上皮细胞中的研究表明,抑制FADS2基因的表达,可以降低16碳UFAs的含量。另有研究表明,FADS2缺失会显著降低斑马鱼脂肪酸的去饱和作用,FADS2是高UFA合成过程中的必需酶[28]
驴脂肪具有UFAs含量高的特点[15,29],但目前关于其形成机理研究较少。鉴于此,本试验进行了驴FADS2基因克隆及组织表达规律研究,结果发现,驴FADS2基因CDS长1 335 bp,可编码444个氨基酸,蛋白质分子质量为52.43 ku,等电点为8.29,不稳定指数为37.22,疏水性总平均值为-0.231,属于稳定碱性亲水蛋白。现有研究表明,FADS2基因在人、牛、水牛、小鼠、火鸡、鸡、瓦氏黄颡鱼、鲈鱼和山羊中普遍存在,在蜥蜴和腔棘鱼中不存在或尚未被注释[6,11,24-25,30-32]。覃川杰等[30]研究表明,瓦氏黄颡鱼FADS2 cDNA片段长2 041 bp,编码447个氨基酸。邬娇等[6]研究发现,在奶山羊中FADS2基因可编码443个氨基酸,比驴中少编码1个氨基酸;Geay等[9]研究发现,在欧亚鲈鱼中FADS2基因则可编码445个氨基酸;Li等[33]研究发现,人FADS2蛋白分子质量52.2 ku,比驴少230 u;在水牛中,马小娅等[34]研究发现,FADS2蛋白的分子质量比驴多80 u。
组织表达研究结果发现,在所有检测驴组织中均有FADS2基因表达,其相对表达量从高到低依次为脂肪、乳腺、脾脏、肺脏、肾脏、心脏、肝脏和肌肉。已有研究表明,FADS2表达受组织类型、生长周期、饲粮和激素等众多因素的影响。在奶牛中,泌乳期不同,FADS2表达量不同[35]。覃川杰等[30]研究发现,FADS2在瓦氏黄颡鱼脑和肝脏的表达量最高,显著高于肠道、脾脏、肾脏和鳃等组织。张丁丁等[31]研究亦发现,FADS2在鸡肝脏中的表达水平最高,在肾脏中的表达水平相对较高。Geay等[9]研究表明,在欧亚鲈鱼中FADS2主要在肝脏中表达。上述研究认为具有合成高UFAs的关键酶FADS2在肝脏中表达较高,这与肝脏为合成高UFAs的主要场所相符[30]。但是与上述研究结果不同,驴肝脏中FADS2相对表达量较低。推测其原因可能是受饲粮等其他因素的影响,具体分子机制有待进一步研究。本研究中,FADS2在驴脂肪和乳腺组织中相对表达量最高,提示驴脂肪和乳腺是合成高UFAs的主要场所。众多研究表明,驴脂肪和乳脂中UFAs含量较高,本研究结果表明,FADS2在驴脂肪和乳腺等组织脂肪酸代谢过程中可能发挥重要作用。

4 结论

① 本试验成功扩增出驴FADS2基因,序列分析表明FADS2基因的开放阅读框为1 335 bp,可编码444个氨基酸残基组成的多肽链。
② 研究证实,FADS2基因在驴组织中普遍表达,其相对表达量从高到低依次为脂肪、乳腺、脾脏、肺脏、肾脏、心脏、肝脏和肌肉。
[1]
LEE H, PARK W J. Unsaturated fatty acids,desaturases,and human health[J]. Journal of Medicinal Food, 2014, 17(2):189-197.

DOI

[2]
欧小倩, 王莹, 何程实, 等. FADS2对鸡前脂肪细胞脂肪酸代谢相关基因表达的影响[J]. 合肥工业大学学报(自然科学版), 2020, 43(9):1269-1275.

OU X Q, WANG Y, HE C S, et al. Effect of FADS2 on the expression of genes related to fatty acid metabolism in chicken preadipocytes[J]. Journal of Hefei University of Technology(Natural Science), 2020, 43(9):1269-1275. (in Chinese)

[3]
陈兴勇, 赵宁, 张燕, 等. 皖西白鹅育肥期肌肉脂肪酸组成及肝PPARαFADS2和ME1基因表达规律的研究[J]. 畜牧兽医学报, 2017, 48(10):1912-1919.

CHEN X Y, ZHAO N, ZHANG Y, et al. The fatty acid profile in muscles and expression of PPARα,FADS2 and ME1 genes in liver of Chinese Wanxi white geese in fattening period[J]. Acta Veterinaria et Zootechnica Sinica, 2017, 48(10):1912-1919. (in Chinese)

[4]
马小娅, 庞春英, 邓廷贤, 等. FADS2基因在奶牛乳腺细胞中的过表达和干扰研究[J]. 中国畜牧兽医, 2019, 46(3):652-660.

DOI

MA X Y, PANG C Y, DENG T X, et al. Overexpression and interference of FADS2 gene in mammary gland cells of dairy cows[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(3):652-660. (in Chinese)

[5]
王梦琦, 朱小瑞, 邢世宇, 等. 中国荷斯坦牛FADS2基因c.908C>T突变对泌乳性能和乳中脂肪酸组成的影响[J]. 西北农林科技大学学报(自然科学版), 2017, 45(3):1-6.

WANG M Q, ZHU X R, XING S Y, et al. Effects of FADS2 c.908 C>T mutation on milk production traits and fatty acids composition in milk of Chinese Holstein[J]. Journal of Northwest A&F University(Natural Science Edition), 2017, 45(3):1-6. (in Chinese)

[6]
邬娇, 赫秋亚, 李壮, 等. 干扰FADS2基因对奶山羊乳腺上皮细胞脂肪酸组成的影响[J]. 农业生物技术学报, 2019, 27(11):1973-1984.

WU J, HE Q Y, LI Z, et al. Effects of FADS2 interference on fatty acid composition of mammary epithelial cells in dairy goats (Capra hircus)[J]. Journal of Agricultural Biotechnology, 2019, 27(11):1973-1984. (in Chinese)

[7]
ZOU W G, LIN Z D, HUANG Y S, et al. Molecular cloning and functional characterization of elongase (elovl5) and fatty acyl desaturase (fads2) in sciaenid,Nibea diacanthus (Lacepède,1802)[J]. Gene, 2019, 695:1-11.

DOI

[8]
SOO H J, SAM K K, CHONG J, et al. Functional characterisation of fatty acyl desaturase,fads2,and elongase,elovl5,in the Boddart’s goggle-eyed goby Boleophthalmus boddarti (Gobiidae) suggests an incapacity for long-chain polyunsaturated fatty acid biosynthesis[J]. Journal of Fish Biology, 2020, 97(1):83-99.

DOI

[9]
GEAY F, TINTI E, MELLERY J, et al. Cloning and functional characterization of Δ6 fatty acid desaturase (FADS2) in Eurasian perch (Perca fluviatilis)[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2016, 191:112-125.

DOI

[10]
LI Y Y, YIN Z Y, DONG Y W, et al. Pparγ is involved in the transcriptional regulation of liver LC-PUFA biosynthesis by targeting the Δ6Δ5 fatty Acyl desaturase gene in the marine teleost Siganus canaliculatus[J]. Marine Biotechnology, 2019, 21(1):19-29.

DOI

[11]
XING K, WANG K J, AO H, et al. Comparative adipose transcriptome analysis digs out genes related to fat deposition in two pig breeds[J]. Scientific Reports, 2019, 9(1):12925.

DOI PMID

[12]
PAWLAK P, MALYSZKA N, SZCZERBAL I, et al. Fatty acid induced lipolysis influences embryo development,gene expression and lipid droplet formation in the porcine cumulus cells[J]. Biology of Reproduction, 2020, 103(1):36-48.

DOI

[13]
LIU Y, LIU X L, ZHENG Z W, et al. Genome-wide analysis of expression QTL (eQTL) and allele-specific expression (ASE) in pig muscle identifies candidate genes for meat quality traits[J]. Genetics Selection Evolution, 2020, 52(1):59.

DOI

[14]
JOUGLEUX J L, RIOUX F M, FISET S, et al. Influence of iron-deficient diets during gestation and lactation on cerebral fatty acids and eicosanoids in Guinea pig offspring-comparison of studies with different sources of dietary lipids[J]. Prostaglandins,Leukotrienes,and Essential Fatty Acids, 2019, 149:37-45.

DOI

[15]
MARINO R, ALBENZIO M, DELLA MALVA A, et al. Nutritional properties and consumer evaluation of donkey bresaola and salami:comparison with conventional products[J]. Meat Science, 2015, 101:19-24.

DOI

[16]
张岩春, 尤娟, 郑喆, 等. 驴乳的营养成分与功能特性[J]. 农产品加工, 2009(2):71-72,87.

ZHANG Y C, YOU J, ZHENG Z, et al. Nutritional composition and function of donkey milk[J]. Academic Periodical of Farm Products Processing, 2009(2):71-72,87. (in Chinese)

[17]
钟彩霞. 共轭亚油酸生物学功能及提高其在牛乳中含量的营养措施[J]. 黑龙江畜牧兽医, 2015(17):168-170.

ZHONG C X. Biological functions of conjugated linoleic acid and nutritional measures to increase its content in milk[J]. Heilongjiang Animal Science and Veterinary Medicine, 2015(17):168-170. (in Chinese)

[18]
MUSLIJI Z S, POLLOZHANI A K, LISICHKOV K, et al. Comparative analysis of genes associated with obesity in humans using bioinformatic data and tools[J]. Balkan Journal of Medical Genetics, 2021, 24(1):35-40.

DOI PMID

[19]
周苗苗, 刘桂芹, 刘文强, 等. 驴小肽转运载体1基因的克隆、序列分析及组织表达研究[J]. 动物营养学报, 2021, 33(7):4030-4037.

DOI

ZHOU M M, LIU G Q, LIU W Q, et al. Cloning,sequence analysis and tissue expression of donkey (Equus asinus) oligopeptide transporter 1 gene[J]. Chinese Journal of Animal Nutrition, 2021, 33(7):4030-4037. (in Chinese)

[20]
HARSHITHA R, ARUNRAJ D R. Real-time quantitative PCR:a tool for absolute and relative quantification[J]. Biochemistry and Molecular Biology Education, 2021, 49(5):800-812.

DOI

[21]
AGGARWAL K. Weyl bound for GL(2) in t-aspect via a simple delta method[J]. Journal of Number Theory, 2020, 208:72-100.

DOI

[22]
ABBASI W A, ABBAS S A, ANDLEEB S. PANDA:predicting the change in proteins binding affinity upon mutations by finding a signal in primary structures[J]. Journal of Bioinformatics and Computational Biology, 2021, 19(4):2150015.

DOI

[23]
LUO R S, ZHENG Z, YANG C R, et al. Comparative transcriptome analysis provides insights into the polyunsaturated fatty acid synthesis regulation of Fat-1 transgenic sheep[J]. International Journal of Molecular Sciences, 2020, 21(3):1121.

DOI

[24]
FAN Y X, REN C F, MENG F X, et al. Effects of algae supplementation in high-energy dietary on fatty acid composition and the expression of genes involved in lipid metabolism in Hu sheep managed under intensive finishing system[J]. Meat Science, 2019, 157:107872.

DOI

[25]
VAHMANI P, GLOVER K E, FREDEEN A H. Effects of pasture versus confinement and marine oil supplementation on the expression of genes involved in lipid metabolism in mammary,liver,and adipose tissues of lactating dairy cows[J]. Journal of Dairy Science, 2014, 97(7):4174-4183.

DOI

[26]
HUANG L, TIAN H B, LUO J, et al. CRISPR/Cas9 based knockout of miR-145 affects intracellular fatty acid metabolism by targeting INSIG1 in goat mammary epithelial cells[J]. Journal of Agricultural and Food Chemistry, 2020, 68(18):5138-5146.

DOI

[27]
SHI H B, DU Y, ZHANG C H, et al. Fatty acid elongase 5 (ELOVL5) alters the synthesis of long-chain unsaturated fatty acids in goat mammary epithelial cells[J]. Journal of Dairy Science, 2018, 101(5):4586-4594.

DOI PMID

[28]
王玉梅, 任天应, 高坚. 不同脂肪源饲料对斑马鱼elovl5、elovl2和fads2在高度不饱和脂肪酸合成中的作用影响[J]. 华中农业大学学报, 2021, 40(5):138-145.

WANG Y M, REN T Y, GAO J. Effects of dietary different lipid sources on elovl5,elovl2 and fads2 in highly unsaturated fatty acids biosynthesis in zebrafish[J]. Journal of Huazhong Agricultural University, 2021, 40(5):138-145. (in Chinese)

[29]
RAGONA G, CORRIAS F, BENEDETTI M, et al. Amiata donkey milk chain:animal health evaluation and milk quality[J]. Italian Journal of Food Safety, 2016, 5(3):5951.

[30]
覃川杰, 文正勇, 袁登越, 等. 瓦氏黄颡鱼 (Pelteobagrus vachellii) 脂肪酸去饱和酶FAD2和延伸酶ELOVL5的克隆及表达分析[J]. 海洋与湖沼, 2017, 48(4):884-893.

QIN C J, WEN Z Y, YUAN D Y, et al. Molecular cloning and expression of fatty acid desaturase and elongase genes in darkbarbel catfish Pelteobagrus vachellii[J]. Oceanologia et Limnologia Sinica, 2017, 48(4):884-893. (in Chinese)

[31]
张丁丁, 李转见, 韩瑞丽, 等. 鸡FADS基因家族的生物信息学分析及表达调控[J]. 农业生物技术学报, 2020, 28(2):270-281.

ZHANG D D, LI Z J, HAN R L, et al. Bioinformatics analysis and expression regulation of chicken (Gallus gallus) FADS gene family[J]. Journal of Agricultural Biotechnology, 2020, 28(2):270-281. (in Chinese)

[32]
WU J, LUO J, XIA Y Y, et al. Goat FADS2 controlling fatty acid metabolism is directly regulated by SREBP1 in mammary epithelial cells[J]. Journal of Animal Science, 2023, 101:skad030.

DOI

[33]
LI Y L, TIAN H, JIANG J, et al. Multifaceted regulation and functions of fatty acid desaturase 2 in human cancers[J]. American Journal of Cancer Research, 2020, 10(12):4098-4111.

[34]
马小娅, 庞春英, 梁莎莎, 等. 水牛FADS2基因的电子克隆及序列分析[J]. 中国畜牧兽医, 2017, 44(10):2829-2836.

DOI

MA X Y, PANG C Y, LIANG S S, et al. Cloning and bioinformatics analysis of FADS2 gene in buffalo[J]. China Animal Husbandry & Veterinary Medicine, 2017, 44(10):2829-2836. (in Chinese)

[35]
FU Y H, JIA R K, XU L N, et al. Fatty acid desaturase 2 affects the milk-production traits in Chinese Holsteins[J]. Animal Genetics, 2022, 53(3):422-426.

DOI

文章导航

/