综述

冷应激下褐色脂肪细胞线粒体生物发生研究进展

  • 张学凯 ,
  • 姜敏 ,
  • 邢仲耘 ,
  • 金晓 , *
展开
  • 内蒙古农业大学动物科学学院,呼和浩特 010018
* 金晓,副教授,硕士生导师,E-mail:

张学凯(1999—),男,内蒙古赤峰人,硕士研究生,从事动物环境与营养研究。E-mail:

Copy editor: 武海龙

收稿日期: 2023-08-14

  网络出版日期: 2024-02-01

基金资助

国家自然科学基金(32260811)

内蒙古自治区高等学校青年科技人才发展项目(NJYT23014)

内蒙古农业大学动物科学学院高水平成果培育专项(QT202204)

内蒙古自治区重点研发和成果转化计划国际科技合作项目(2022YFYZ0001)

Research Progress of Mitochondrial Biogenesis in Brown Adipocytes under Cold Stress

  • ZHANG Xuekai ,
  • JIANG Min ,
  • XING Zhongyun ,
  • JIN Xiao , *
Expand
  • College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
* associate professor, E-mail:

Received date: 2023-08-14

  Online published: 2024-02-01

摘要

褐色脂肪组织(BAT)主要由褐色脂肪细胞(BA)组成,普遍存在于哺乳动物体内,是冷应激环境下非颤栗产热(NST)的主要能量来源,可以通过线粒体生物发生产热过程调节机体能量平衡,对维持体温至关重要。为更深层次地了解冷应激下BA线粒体生物发生过程,本文综述了冷应激下BA产热的作用、腺苷酸活化蛋白激酶(AMPK)信号通路诱导线粒体生物发生机理等以及线粒体生物发生与线粒体自噬之间对BA线粒体生物发生产热影响的研究进展,可为通过降低家畜机体维持能量提高寒冷地区家畜生产性能和生产效益提供理论依据。

本文引用格式

张学凯 , 姜敏 , 邢仲耘 , 金晓 . 冷应激下褐色脂肪细胞线粒体生物发生研究进展[J]. 动物营养学报, 2024 , 36(2) : 737 -746 . DOI: 10.12418/CJAN2024.067

Abstract

Brown adipose tissue (BAT), which consists of brown adipocytes (BA) and is ubiquitously found in mammals, is the main energy source of non-shivering thermogenesis (NST) under cold stress, which can regulate the energy balance of the organism through the process of mitochondrial biogenesis, and is crucial for the maintenance of body temperature. For a deeper understanding of BA mitochondrial biogenesis under cold stress, this paper reviews the role of BA thermogenesis under cold stress, the mechanism of mitochondrial biogenesis induced by adenylate-activated protein kinase (AMPK) signaling pathway, and the research progress of the influence of mitochondrial biogenesis and mitochondrial autophagy on BA mitochondrial biogenesis, which can provide a theoretical basis for improving the performance and production efficiency of livestock in cold regions by reducing the energy of the livestock body for maintenance and improving the energy efficiency of the mitochondria. It can provide a theoretical basis for improving the performance and production efficiency of livestock in cold regions by reducing the energy maintained by the body of livestock.

长时间暴露在低于最低适温区且无法维持自身体温恒定的冷环境中动物会遭受冷应激。冷应激下动物对能量的摄入从原来的维持生产为主转变为维持体温为主,使其生长减慢,对动物的免疫功能造成一定程度的抑制,使免疫功能下降、发病率增加[1]。Young[2]研究表明,长期处于寒冷环境下的动物内环境稳态会发生改变,同时也会增加体增热,降低动物生产性能及饲料利用率,严重制约畜牧业发展。因此,增加产热维持机体稳态对动物克服冷应激至关重要。
线粒体生物发生是指通过增加线粒体内酶的表达及活性,形成新的线粒体的复杂过程,该过程涉及到线粒体内各种活性物质的合成与转运、蛋白质与脂质的结合及线粒体DNA(mitochondrial DNA,mtDNA)的复制等[3]。褐色脂肪细胞(brown adipocytes,BA)中线粒体的质量和数量是保证冷应激下非颤栗性产热(non-shivering thermogenesis,NST)的基础,BA产热量约占NST总量的70%,因此BA主要负责机体NST[4]
BA产热过程受解偶联蛋白1(uncoupling protein 1,UCP1)、腺苷酸活化蛋白激酶(AMP-activated protein kinase,AMPK)、PR结构域蛋白16(PR domain containing 16,PRDM16)等蛋白的调控[5]。研究表明,冷应激下BA可以通过AMPK信号通路诱导线粒体生物发生,增加线粒体数量,从而增加产热量,维持机体体温恒定,使动物可以抵抗严寒[6]。基于AMPK信号通路在BA产热过程中调控线粒体生物发生,本文就冷应激下BA线粒体生物发生研究进展及其机理进行了总结。

1 褐色脂肪组织(brown adipose tissue,BAT)

脂肪是机体良好的储能物质,其主要功能是为动物机体提供热能、保护内脏、寒冷刺激下维持体温和参与机体各方面的代谢活动等[7]。动物体内存在白色脂肪组织(white adipose tissue,WAT)和BAT,其中WAT为常见的脂肪,广泛分布于皮下组织和内脏周围,是将多余的能量以脂粒形式储藏起来的能量仓库,同时还可以作为内分泌器官,调节机体能量代谢,维持机体稳态[8];BAT主要分布于肩胛骨间,呈棕色蝴蝶状;部分分布于颈背部、纵隔及肾脏周围,大多存在于新生儿和幼小哺乳动物体内,近期研究表明成年人椎骨和锁骨附近也存在少量功能性BAT[9]。BAT由BA组成,其细胞体积小,细胞表面密布交感神经纤维和毛细血管,细胞内富含线粒体和细胞色素[10-11]。线粒体通过呼吸作用将糖类等有机物转化为丙酮酸,再分解为乳酸并释放能量;还通过氧化磷酸化过程将二磷酸腺苷(adenosine diphosphate,ADP)和无机磷转化为三磷酸腺苷(adenosine triphosphate,ATP)[12]。所以,BA线粒体生物发生可为机体在冷应激下提供热量,有助于维持冬眠动物、啮齿动物和新生哺乳动物的体温。

2 冷应激下BA产热的作用

产热是冷应激下哺乳动物产生的适应性反应,是维持生命体征稳定性的关键[13]。线粒体是细胞内负责产生能量的细胞器,也是产生热量的主要场所。在冷应激下,幼小哺乳动物BA需要产生更多热量来维持身体的体温平衡。具体来说,BA线粒体生物发生可以增加细胞内线粒体数量和线粒体呼吸链的活性,从而提高细胞代谢速率和热量产生能力[14]。此外,冷应激可通过调控BA产热相关蛋白UCP1的表达和机体能量代谢活性来促进体内产热[15]

2.1 交感神经系统产热

冷应激可通过激活交感神经系统,提高BA线粒体生物发生,增加BA产热[16]。去甲肾上腺素(norepinephrine,NE)和肾上腺素(epinephrine,E)是交感神经的主要递质,当接收到冷应激信号时,交感神经末梢释放NE激活BA是产热增加的生理基础[17]。NE和E能诱导β3-肾上腺素能受体(β3-adrenergic receptors,β3-AR)被激活,使脂肪分解为甘油和脂肪酸,进入线粒体进行产热;并且β3-AR的激活使一磷酸腺苷(adenosine monophosphate,AMP)/ATP比值增加,进而改变细胞内第二信使分子环磷酸腺苷(cyclic adenosine monophosphate,cAMP)的浓度,通过激活蛋白激酶A(protein kinase A,PKA)进一步激活UCP1上游过氧化物酶体增殖物激活受体γ辅激活因子-1α(peroxisome proliferators activated receptor-γ coactivator-1α,PGC-1α),PGC-1α通过上调线粒体中UCP1 mRNA的表达而发挥转录活性,因此BA产热增加[18-19]。NE在冷应激下不仅分解脂肪调控产热,还缓慢引起BA的增殖与分化,促进线粒体生物发生[20]。但是交感神经系统仅控制各种生理过程自上而下调节的产热,仅允许对极端寒冷的短暂耐受,不足以作为长期冷应激下机体的热量来源[21]

2.2 脂肪酸氧化产热

长期冷应激下线粒体脂肪酸氧化也在能量代谢中起重要作用。脂肪酸是机体在饥饿或长期应激等状态下通过线粒体内的β-氧化为机体提供能量的主要来源[22]。在生理条件下,骨骼肌线粒体的脂肪酸β-氧化是体内产生ATP的主要途径[23]。在哺乳动物细胞中线粒体和过氧化物酶体这2种细胞器具有降解脂肪酸链的能力,促使脂肪酸氧化;同时,过氧化物酶体β-氧化途径参与细胞产热[24]。除了在脂质代谢中的调节作用外,过氧化物酶体增殖物激活受体α(peroxisome proliferators activated receptor α,PPARα)还能通过对其上游因子PGC-1α的激活,以相互依赖的方式调节脂肪酸氧化,激活线粒体内UCP1的NST,维持长期冷应激下能量平衡[25]。PPARα的激活能够降低甘油三酯水平并参与能量稳态的调节。雌激素相关受体α(estrogen related receptor α,ERRα)也参与脂肪酸氧化,激活线粒体内UCP1的NST,并在各种组织中表达,参与能量代谢调节[26]。ERRα不仅是PGC-1α的下游靶点,而且还被该转录因子共激活。PGC-1α诱导增加ERRα表达可以控制线粒体生物发生、脂肪酸氧化和氧化呼吸[26]。长期冷应激下雌激素相关受体(estrogen related receptor,ERR)能够通过直接行动来为产热提供能量维持体温[27]。而缺乏ERR的小鼠在长时间暴露于寒冷环境下无法维持体温,证明了ERR对适应寒冷环境至关重要[28]。因此,长期冷应激下动物可以通过线粒体脂肪酸氧化激活UCP1的NST维持机体稳态。

2.3 UCP1产热

UCP1又名增温素[19],是一种重要的线粒体内膜蛋白,在BA产热过程中起着重要作用,其主要功能为热量调节和能量代谢。UCP1作为BAT主要的产热因子,具有转运脂肪酸阴离子和催化质子沿浓度梯度向下转运的功能,使BA出现依赖UCP1而不依赖ATP的产热[29]。UCP1调节BA线粒体生物发生、线粒体动力学稳态和线粒体自噬,而三者的动态平衡有助于维持线粒体正常功能[30]。UCP1负责BA的NST,在被长链脂肪酸(long-chain fatty acid,LCFA)激活后,UCP1增加线粒体内膜(inner mitochondrial membrane,IMM)的热传导[31]。已有研究证明UCP1基因敲除的小鼠NST几乎消失,对寒冷敏感,不能维持体温[32];并且冷应激下交感神经系统产热和脂肪酸氧化产热等都可激活UCP1的NST,维持体温恒定。因此,UCP1在NST中起着关键作用,UCP1对BAT产热功能的重要性已被广泛应用[33]。此外,UCP1也可以通过AMPK信号通路促进线粒体生物发生,调节BA内脂质过氧化及能量代谢稳态。UCP1既可以促进BA线粒体生物发生,还可以维持BA线粒体稳态。BA线粒体生物发生的关键转录调节因子如PGC-1α、核呼吸因子1(nuclear respiratory factor 1,NRF1)等都可激活UCP1,促进BA线粒体生物发生和产热;而这些激活因子被敲除后,UCP1表达水平下降,抑制线粒体生物发生并减少线粒体数量[34]。因此,BA线粒体的含量与其产热活性成正比,BA线粒体生物发生通过调控线粒体数量和质量来增加动物机体产热[35]

3 AMPK信号通路诱导BA线粒体生物发生机理

线粒体数量依赖于线粒体生物发生。线粒体生物发生是将组成线粒体的脂质、蛋白和mtDNA等物质不断融汇到已有的线粒体中,使线粒体物质增加,再通过线粒体分裂,实现数量上的增长[14]。线粒体生物发生过程还受一些蛋白的调控,其中PGC-1α、NRF1和线粒体转录因子A(mitochondrial transcription factor A,TFAM)是BA的细胞核表达与线粒体生物发生有关的主要因子[36],共同参与诱导线粒体生物发生过程的信号通路。线粒体生物发生过程由多条信号通路诱导,而AMPK信号通路是目前线粒体生物发生过程中研究最深入、最广泛的通路之一[37]

3.1 AMPK

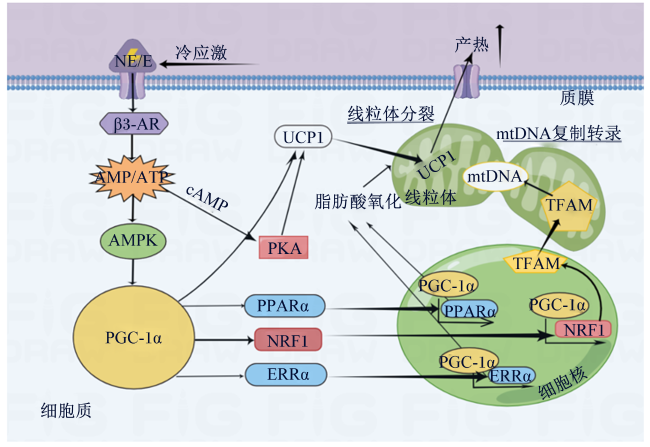
AMPK是一种维持细胞能量稳态的能量传感器,通过激活PGC-1α调控多种生物过程,包括线粒体生物发生和氧化功能[38]。如图1所示,冷应激下交感神经元释放NE和E,激活BA质膜上的β3-AR,导致脂肪分解为甘油和脂肪酸;同时,β3-AR也提高了AMP/ATP比值,从而激活AMPK[39]。被激活的AMPK通过上调下游蛋白PGC-1α的表达,进而完成AMPK信号通路BA线粒体生物发生。而抑制AMPK已被证明对线粒体生物发生有一定的抑制作用[40]。Barbatelli等[41]研究表明,冷应激下β3-AR敲除的小鼠AMPK无法被激活,导致BA线粒体生物发生功能受到抑制。此外,AMPK不仅是线粒体功能的重要调节剂,还参与调节线粒体稳态[42]
图1 线粒体生物发生AMPK信号通路

NE:去甲肾上腺素 norepinephrine;E:肾上腺素 epinephrine;β3-AR:β3-肾上腺素能受体 β3-adrenergic receptors;AMP:一磷酸腺苷 adenosine monophosphate;ATP:三磷酸腺苷 adenosine triphosphate;cAMP:环磷酸腺苷 cyclic adenosine monophosphate;AMPK:腺苷酸活化蛋白激酶 AMP-activated protein kinase;PGC-1α:过氧化物酶体增殖物受体γ辅激活因子-1α peroxisome proliferators-activated receptor γ coactivator-1α;UCP1:解偶联蛋白1 uncoupling protein 1;PKA:蛋白激酶A protein kinase A;PPAR:过氧化物酶体增殖物激活受体α peroxisome proliferators-activated receptor α;NRF1:核呼吸因子1 nuclear respiratory factor1;ERRα:雌激素相关受体α estrogen related receptor α;mtDNA:线粒体DNA mitochondrial DNA;TFAM:线粒体转录因子A mitochondrial transcription factor A。

Fig.1 Mitochondrial biogenesis AMPK signaling pathway

3.2 主要激活因子PGC-1α

PGC-1α是一种被冷应激快速和高度诱导的核受体转录辅助活化因子,AMPK被激活后会增加细胞内AMP/ATP比值,并最终催化PGC-1α的脱乙酰化[43-45]。另外,PGC-1α的活性已被证明是AMPK介导线粒体活化所必需的,AMPK可直接促进PGC-1α磷酸化,是其信号通路中的关键环节,并激活下游因子诱导线粒体DNA复制,促进线粒体生物发生(图1)[39]。有研究表明,转录因子PGC-1α通过上调UCP1 mRNA的表达,调节BA产热能力及能量代谢稳态[46],从而促进线粒体生物发生。PGC-1α还在理解控制线粒体生物发生的转录因子共同调控机制中扮演着重要角色[44]。牟彩莹等[47]研究发现,敲除小鼠的PGC-1α基因抑制了线粒体生物发生相关蛋白表达。此外,BA适应性产热中的线粒体增殖和呼吸活动也由转录共激活剂PGC-1α介导[48]

3.3 NRF1-TFAM调控AMPK信号通路线粒体DNA复制

PGC-1α还可以通过诱导解偶联蛋白2(uncoupling protein 2,UCP2)和调节核呼吸因子(nuclear respiratory factor,NRF)来刺激BA线粒体生物发生[49-50]。细胞质中被激活的PGC-1α与PPAR、ERR和NRF1/2等转录因子通过核孔进入细胞核后相互作用和共激活,并在核内发挥作用。在细胞核里PGC-1α与下游转录因子NRF1结合并辅激活,参与线粒体呼吸基因的调节,反之NRF1显性失活也可以阻断PGC-1α发挥作用[51]。TFAM作为NRF1的下游基因含有其结合位点,被激活的TFAM可以直接调控mtDNA的复制转录,在核基因组中进行编码[52-53],促使线粒体分裂,增加线粒体数量,从而增加产热量(图1)。Piantadosi等[54]对小鼠的试验研究表明,BA线粒体中TFAM的损伤或NRF1的沉默都使mtDNA拷贝数下降,影响mtDNA的复制转录。当然TFAM被敲除后也会导致mtDNA复制显著减少,导致线粒体生成量降低[55]
综上所述,冷应激下AMPK信号通路诱导BA线粒体生物发生过程受AMPK、PGC-1α、NRF1和TFAM的共同调控,诱导BA线粒体数量增加,增加产热量,可为幼龄动物在寒冷环境下抵御冷应激。

4 BA线粒体自噬维持线粒体功能稳态

4.1 线粒体自噬

线粒体作为细胞的“发电站”,在细胞中起着举足轻重的作用。BA中损伤的线粒体需要及时准确地进行清除,以保证线粒体功能正常运行[56]。线粒体生物发生、线粒体的融合和分裂、线粒体自噬对线粒体数量和质量的动态平衡发挥着重要作用[57-58]。线粒体自噬指受损伤的线粒体被特异性的包裹进自噬体中并与溶酶体融合,从而完成线粒体的降解,维持细胞内环境稳定的过程[59]。近几年的研究表明,线粒体自噬是一个特异性的选择过程,受到多种因素的影响,通过消除功能失调的线粒体和减少线粒体数量维持细胞内稳态[60]

4.2 线粒体质量和数量维持线粒体功能稳态

线粒体含量是维持能量代谢,以响应细胞代谢状态、应激和其他细胞内外环境信号的关键[3]。线粒体生物发生和线粒体自噬是2种相反的细胞途径,共同协调线粒体的数量和质量,确保线粒体正常功能[61]。长期冷应激下,小鼠为维持体温恒定,体内的BA过量产热会引起氧化应激,导致蛋白、核酸和脂质的直接或间接损伤[62]。尹圆圆[63]研究表明,活性氧自由基(reactive oxygen species,ROS)的增加会破坏线粒体呼吸链,线粒体膜电位和ATP水平因通透性转换孔开放而下降,使线粒体功能出现障碍,最终导致细胞死亡。为了防止氧化损伤的累积,BA利用线粒体自噬来移除和回收受损的线粒体,从而有效调控BA内线粒体数量和质量。冷应激下BA通过调节磷酸酯酶与张力蛋白同源物诱导的激酶1(phosphatase and tensin homolog induced putative kinase 1,PINK1)-帕金蛋白(parkin protein,Parkin)信号通路介导线粒体选择性自噬,消除伴随产热生成的ROS及损伤和无用的线粒体[64],从而缓解BA氧化损伤,维持线粒体动能稳态。除此之外,冷应激下BA产热也会受细胞内线粒体的数量和质量的影响[65]。Kim等[66]研究发现,改善小鼠的线粒体质量和数量可以增强脂肪细胞适应性产热。有报道称线粒体数量和分布情况与供能活动有关,因为肌肉细胞比脂肪细胞需要能量多,所以肌肉细胞中线粒体数目多于脂肪细胞中线粒体数目;还使得肌肉细胞比脂肪细胞产热能力强[67]

4.3 AMPK双向反应过程调节线粒体质量和数量稳态

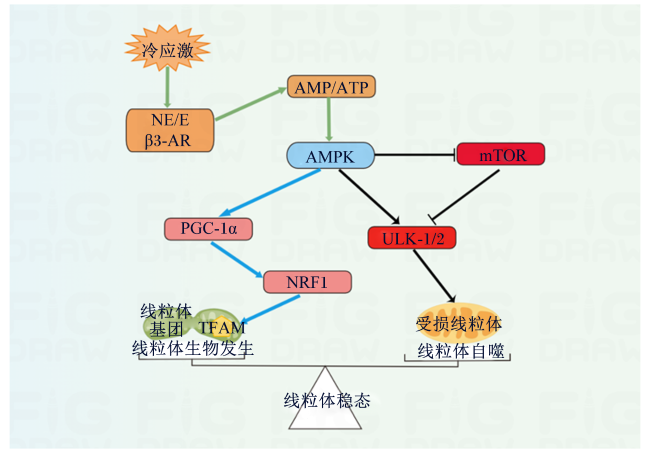
Laker等[68]研究表明,AMPK不仅调控线粒体生物发生,也直接调控线粒体自噬。糖尿病药物卡格列净(canagliflozin,Cana)通过AMPK-PGC-1α信号通路促进线粒体生物发生,增强线粒体氧化磷酸化、脂肪酸氧化和产热,并通过线粒体自噬清除受损伤线粒体[38]。如图2所示,BA中的AMPK响应于冷应激并被激活,AMPK磷酸化并激活Unc-51样自噬活化激酶-1/2(Unc-51 like autophagy activating kinase-1/2,ULK-1/2),促进线粒体自噬,清除损伤的线粒体[61]。Egan等[69]通过对哺乳动物细胞的研究表明,AMPK或ULK1的损失导致线粒体自噬缺陷。杨春丽等[70]研究表明,AMPK可以负调控下游因子哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)。活化的AMPK可以抑制mTOR以减少其在丝氨酸(serine,Ser)757上ULK-1的磷酸化,导致ULK-1-AMPK相互作用,最终诱导线粒体自噬[71]。因此,AMPK可以启动促进线粒体更新的双向反应[72],自噬的同时并通过激活PGC-1α-NRF1-TFAM触发线粒体生物发生,通过此过程维持BA内线粒体数量平衡保证其质量,发挥线粒体功能,增加产热量,调节机体稳态。
图2 线粒体生物发生和线粒体自噬的动态平衡

NE:去甲肾上腺素 norepinephrine;E:肾上腺素 epinephrine;β3-AR:β3-肾上腺素能受体 β3-adrenergic receptors;AMP:一磷酸腺苷 adenosine monophosphate;ATP:三磷酸腺苷 adenosine triphosphate;AMPK:腺苷酸活化蛋白激酶 AMP-activated protein kinase;PGC-1α:过氧化物酶体增殖物受体γ辅激活因子-1α peroxisome proliferators-activated receptor γ coactivator-1α;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;ULK-1/2:Unc-51样自噬活化激酶1/2 Unc-51 like autophagy activating kinase-1/2;NRF1:核呼吸因子1 nuclear respiratory factor1;TFAM:线粒体转录因子A mitochondrial transcription factor A。

Fig.2 Dynamic balance between mitochondrial biogenesis and mitochondrial autophagy

5 小结

冷应激下BA线粒体生物发生产热对哺乳动物维持体温、抵御寒冷至关重要。在长期或超强冷应激下,幼龄动物细胞中UCP1可介导BAT过量产热,从而造成氧化损伤,受损伤线粒体可激活线粒体自噬过程维持BA内线粒体质量。同时冷应激可以激活AMPK信号通路诱导BA线粒体生物发生,发挥线粒体机能,增加BA产热,维持体温恒定。然而,目前对于冷应激下BA线粒体生物发生的研究还局限在细胞及大鼠和小鼠等模型动物层面上,关于在幼龄家畜方面的研究极少。对于幼龄家畜研究较少的原因较小鼠相比一方面在于其繁殖周期过长、能量来源不同,此研究又受到环境因素控制,饲养采样较为困难;另一方面在于其褐色脂肪并不发达,主要通过体毛和运动在寒冷环境下维持体温,而且测量褐色脂肪含量的技术应用比较复杂。
因此,借鉴小鼠BA产热的有效蛋白和分子机制的认识,通过增加繁殖效率和环境温度控制进一步研究幼龄家畜在冷应激下通过AMPK信号通路激活BA线粒体生物发生过程,对增加产热抗寒机制、保护机体免受冷应激损伤、降低死亡率和突破技术屏障是非常有必要的,可为提高北方地区冬季寒冷环境下肉用家畜的增重速度和产肉量提供理论基础。
[1]
李宝贵, 贾光荣, 江浩, 等. 冷应激对畜禽的危害及抗冷应激[J]. 畜禽业, 2017, 28(8):66-68.

LI B G, JIA G R, JIANG H, et al. Harm of cold stress on livestock and its resistance[J]. Livestock and Poultry Industry, 2017, 28(8):66-68. (in Chinese)

[2]
YOUNG B A. Ruminant cold stress:effect on production[J]. Journal of Animal Science, 1983, 57(6):1601-1607.

DOI

[3]
PALIKARAS K, LIONAKI E, TAVERNARAKIS N. Balancing mitochondrial biogenesis and mitophagy to maintain energy metabolism homeostasis[J]. Cell Death and Differentiation, 2015, 22(9):1399-1401.

DOI PMID

[4]
张艳梅, 金海, 李长青. 褐色脂肪组织发育规律及生热作用研究进展[J]. 动物营养学报, 2021, 33(10):5416-5423.

DOI

ZHANG Y M, JIN H, LI C Q. Research progress of ontogeny and thermogenesis of brown adipose tissue[J]. Chinese Journal of Animal Nutrition, 2021, 33(10):5416-5423. (in Chinese)

[5]
张睿, 黄启亚. PRDM16与肥胖关系的研究进展[J]. 海南医学, 2022, 33(23):3121-3124.

ZHANG R, HUANG Q Y. Research progress on correlation between PRDM16 and obesity[J]. Hainan Medical Journal, 2022, 33(23):3121-3124. (in Chinese)

[6]
WU J, LI J S, FENG B H, et al. Activation of AMPK-PGC-1α pathway ameliorates peritoneal dialysis related peritoneal fibrosis in mice by enhancing mitochondrial biogenesis[J]. Renal Failure, 2022, 44(1):1545-1557.

[7]
魏殿华. 急性冷应激下miRNA对绵羊脂肪代谢影响的研究进展[J]. 现代畜牧兽医, 2020(10):55-60.

WEI D H. Research progress of the effect of miRNA on fat metabolism in sheep under acute cold stress[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2020(10):55-60. (in Chinese)

[8]
SHORE A M, KARAMITRI A, KEMP P, et al. Cold-induced changes in gene expression in brown adipose tissue,white adipose tissue and liver[J]. PLoS One, 2013, 8(7):e68933.

DOI

[9]
ROSENWALD M, PERDIKARI A, RÜLICKE T, et al. Bi-directional interconversion of brite and white adipocytes[J]. Nature Cell Biology, 2013, 15(6):659-667.

DOI PMID

[10]
BLACKBURN S. Brown adipose tissue[J]. The Journal of Perinatal & Neonatal Nursing, 2011, 25(3):222-223.

[11]
韩志鹏, 徐元庆, 苏日古嘎, 等. 冷暴露下下丘脑调节脂肪组织褐变产热研究进展[J]. 饲料研究, 2023, 46(2):126-130.

HAN Z P, XU Y Q, SU R G G, et al. Research progress on hypothalamus regulates adipose tissue browning and thermogenesis under cold exposure[J]. Feed Research, 2023, 46(2):126-130. (in Chinese)

[12]
江泽洲, 林竞荣, 阎旭东. 热力学在线粒体能量转换中的应用[J]. 湖北工学院学报, 1997, 12(4):98-102.

JIANG Z Z, LIN J R, YAN X D. The application of thermodynamics in mitochondria energy conversion[J]. Journal of Hubei Polytechnic University, 1997, 12(4):98-102. (in Chinese)

[13]
王申元. 脂肪组织转录组揭示蒙古羊抗寒的分子机制[D].博士学位论文. 呼和浩特: 内蒙古农业大学, 2021.

WANG S Y. Molecular mechanism of cold resistance revealed by adipose tissue transcriptome in Mongolian sheep[D].Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2021. (in Chinese)

[14]
赵永才, 高炳宏. 运动诱导骨骼肌线粒体生物合成调控机制研究进展[J]. 中国运动医学杂志, 2020, 39(1):79-84.

ZHAO Y C, GAO B H. Research progress on regulation mechanism of exercise-induced skeletal muscle mitochondrial biosynthesis[J]. Chinese Journal of Sports Medicine, 2020, 39(1):79-84. (in Chinese)

[15]
BAO W, XIAO Y, CHEN X, et al. Cold-induced p38 MAPK activation mediates brown fat induction via induction of the β-adrenergic receptor agonist mirabegron[J]. Cell Death & Disease, 2019, 10(4):298.

[16]
LIU J H, WU J J, QIAO C Y, et al. Impact of chronic cold exposure on lung inflammation,pyroptosis and oxidative stress in mice[J]. International Immunopharmacology, 2023, 115:109590.

DOI

[17]
BAUMURATOV A S, ABZHALELOV B B, KRAMAROVA L I, et al. Cold adaptation modulates Ca2+ signaling in brown preadipocytes[J]. Bulletin of Experimental Biology and Medicine, 2004, 138(1):50-53.

PMID

[18]
方勤圆, 付绍印, 王标, 等. 苏尼特羔羊褐色脂肪鉴定及特征研究[J]. 畜牧兽医学报, 2023, 54(2):563-571.

FANG Q Y, FU S Y, WANG B, et al. Identification and characterization of brown adipose tissue in Sonid lambs[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(2):563-571. (in Chinese)

[19]
关璐, 刘川川, 张瑞霞. UCP1调控棕色脂肪组织能量代谢及线粒体稳态[J]. 生理科学进展, 2022, 53(5):342-346.

GUAN L, LIU C C, ZHANG R X. UCP1 regulates energy metabolism and mitochondrial homeostasis in brown adipose tissue[J]. Progress in Physiological Sciences, 2022, 53(5):342-346. (in Chinese)

[20]
吕艺, 杜桂仙. 对冷适应大鼠棕色脂肪和肝脏在非寒颤产热机制中作用的评价[J]. 中国应用生理学杂志, 1992, 8(3):237-241.

LYU Y, DU G X. Evaluation of the role of brown adipose tissue and liver of cold-adapted rats in non-shivering thermogenesis[J]. Chinese Journal of Applied Physiology, 1992, 8(3):237-241. (in Chinese)

[21]
MUZIK O, REILLY K T, DIWADKAR V A. “Brain over body”—a study on the willful regulation of autonomic function during cold exposure[J]. NeuroImage, 2018, 172:632-641.

DOI

[22]
刘丽, 张学红, 陆彪, 等. 线粒体脂肪酸β-氧化障碍的研究新进展[J]. 中国优生与遗传杂志, 2014, 22(5):4-7.

LIU L, ZHANG X H, LU B, et al. Novel progress in mitochondrial fatty acid β-oxidation disorders[J]. Chinese Journal of Birth Health & Heredity, 2014, 22(5):4-7. (in Chinese)

[23]
PEREVOSHCHIKOVA I V, QUINLAN C L, ORR A L, et al. Sites of superoxide and hydrogen peroxide production during fatty acid oxidation in rat skeletal muscle mitochondria[J]. Free Radical Biology & Medicine, 2013, 61:298-309.

DOI

[24]
TAHRI-JOUTEY M, ANDREOLETTI P, SURAPUREDDI S, et al. Mechanisms mediating the regulation of peroxisomal fatty acid beta-oxidation by PPARα[J]. International Journal of Molecular Sciences, 2021, 22(16):8969.

DOI

[25]
SHAMS S, AMIRINEJAD M, AMANI-SHALAMZARI S, et al. Swimming in cold water upregulates genes involved in thermogenesis and the browning of white adipose tissues[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2023, 265:110834.

DOI

[26]
YAN M, AUDET-WALSH É, MANTEGHI S, et al. Chronic AMPK activation via loss of FLCN induces functional beige adipose tissue through PGC-1α/ERRα[J]. Genes & Development, 2016, 30(9):1034-1046.

DOI

[27]
GIRALT A, HONDARES E, VILLENA J A, et al. Peroxisome proliferator-activated receptor-gamma coactivator-1alpha controls transcription of the Sirt3 gene,an essential component of the thermogenic brown adipocyte phenotype[J]. Journal of Biological Chemistry, 2011, 286(19):16958-16966.

DOI

[28]
GANTNER M L, HAZEN B C, EURY E, et al. Complementary roles of estrogen-related receptors in brown adipocyte thermogenic function[J]. Endocrinology, 2016, 157(12):4770-4781.

PMID

[29]
LU H Y, WANG N, LI X, et al. Identification of new potent human uncoupling protein 1 (UCP1) agonists using virtual screening and in vitro approaches[J]. Molecular Informatics, 2019, 38(10):1900030.

DOI

[30]
PARK S J, PARK M, SHARMA A, et al. Black ginseng and ginsenoside Rb1 promote browning by inducing UCP1 expression in 3T3-L1 and primary white adipocytes[J]. Nutrients, 2019, 11(11):2747.

DOI

[31]
FEDORENKO A, LISHKO P V, KIRICHOK Y. Mechanism of fatty-acid-dependent UCP1 uncoupling in brown fat mitochondria[J]. Cell, 2012, 151(2):400-413.

DOI PMID

[32]
KEIPERT S, JASTROCH M. Brite/beige fat and UCP1-is it thermogenesis?[J]. Biochimica et Biophysica Acta:Bioenergetics, 2014, 1837(7):1075-1082.

DOI

[33]
OELKRUG R, GOETZE N, MEYER C W, et al. Antioxidant properties of UCP1 are evolutionarily conserved in mammals and buffer mitochondrial reactive oxygen species[J]. Free Radical Biology & Medicine, 2014, 77:210-216.

DOI

[34]
SHABALINA I G, PETROVIC N, DE JONG J M A, et al. UCP1 in brite/beige adipose tissue mitochondria is functionally thermogenic[J]. Cell Reports, 2013, 5(5):1196-1203.

DOI PMID

[35]
KIM D, KIM J H, KANG Y H, et al. Suppression of brown adipocyte autophagy improves energy metabolism by regulating mitochondrial turnover[J]. International Journal of Molecular Sciences, 2019, 20(14):3520.

DOI

[36]
陈珂. Vanin-1在小鼠白色脂肪组织中调控线粒体生物合成及脂肪酸氧化的功能研究[D].硕士学位论文. 南京: 南京师范大学, 2018.

CHEN K. The function of Vanin-1 in regulating mitochondrial biosynthesis and fatty acid oxidation in mouse white adipose tissue[D].Master’s Thesis. Nanjing: Nanjing Normal University, 2018. (in Chinese)

[37]
SUN J L, LENG P, LI X, et al. Salvianolic acid A promotes mitochondrial biogenesis and mitochondrial function in 3T3-L1 adipocytes through regulation of the AMPK-PGC1α signalling pathway[J]. Adipocyte, 2022, 11(1):562-571.

DOI PMID

[38]
YANG X P, LIU Q H, LI Y P, et al. The diabetes medication canagliflozin promotes mitochondrial remodelling of adipocyte via the AMPK-Sirt1-Pgc-1α signalling pathway[J]. Adipocyte, 2020, 9(1):484-494.

DOI PMID

[39]
FERNANDEZ-MARCOS P J, AUWERX J. Regulation of PGC-1α,a nodal regulator of mitochondrial biogenesis[J]. The American Journal of Clinical Nutrition, 2011, 93(4):884S-890 S.

[40]
余晓岚. 抵抗素下调线粒体数量的受体信号途径研究[D].硕士学位论文. 武汉: 华中农业大学, 2013.

YU X L. The signaling pathways of resist in downregulating mitochondrial content[D].Master’s Thesis. Wuhan: Huazhong Agricultural University, 2013. (in Chinese)

[41]
BARBATELLI G, MURANO I, MADSEN L, et al. The emergence of cold-induced brown adipocytes in mouse white fat depots is determined predominantly by white to brown adipocyte transdifferentiation[J]. American Journal of Physiology:Endocrinology and Metabolism, 2010, 298(6):E1244-E1253.

DOI

[42]
RABINOVITCH R C, SAMBORSKA B, FAUBERT B, et al. AMPK maintains cellular metabolic homeostasis through regulation of mitochondrial reactive oxygen species[J]. Cell Reports, 2017, 21(1):1-9.

DOI PMID

[43]
LARSON C, OPICHKA M, MCGLYNN M L, et al. Exercise- and cold-induced human PGC-1α mRNA isoform specific responses[J]. International Journal of Environmental Research and Public Health, 2020, 17(16):5740.

DOI

[44]
SCARPULLA R C. Metabolic control of mitochondrial biogenesis through the PGC-1 family regulatory network[J]. Biochimica et Biophysica Acta, 2011, 1813(7):1269-1278.

DOI PMID

[45]
张春妮, 王沪旭. PGC-1——一种新的核受体辅助活化因子[J]. 生命的化学, 2003, 23(5):379-381.

ZHANG C N, WANG H X. A new transcriptional coactivator of nuclear receptor,PGC-1[J]. Chemistry of Life, 2003, 23(5):379-381. (in Chinese)

[46]
ABUDULI M, OHMINAMI H, OTANI T, et al. Effects of dietary phosphate on glucose and lipid metabolism[J]. American Journal of Physiology:Endocrinology and Metabolism, 2016, 310(7):E526-E538.

DOI

[47]
牟彩莹, 王松. PGC-1α对线粒体生物合成功能的调控[J]. 四川解剖学杂志, 2011, 19(1):36-38,44.

MU C Y, WANG S. Regulation of PGC-lα on mitochondria biogenesis[J]. Sichuan Journal of Anatomy, 2011, 19(1):36-38,44. (in Chinese)

[48]
BUTOW R A, BAHASSI E M. Adaptive thermogenesis:orchestrating mitochondrial biogenesis[J]. Current Biology, 1999, 9(20):R767-R769.

DOI

[49]
WU Z, PUIGSERVER P, ANDERSSON U, et al. Mechanisms controlling mitochondrial biogenesis and respiration through the thermogenic coactivator PGC-1[J]. Cell, 1999, 98(1):115-124.

DOI PMID

[50]
PUIGSERVER P, WU Z, PARK C W, et al. A cold-inducible coactivator of nuclear receptors linked to adaptive thermogenesis[J]. Cell, 1998, 92(6):829-839.

DOI PMID

[51]
ISLAM H, EDGETT B A, GURD B J. Coordination of mitochondrial biogenesis by PGC-1α in human skeletal muscle:a re-evaluation[J]. Metabolism, 2018, 79:42-51.

DOI

[52]
苏雪, 王利, 王云满, 等. 中药活性成分促进线粒体生物合成的研究进展[J]. 医学综述, 2020, 26(8):1457-1461.

SU X, WANG L, WANG Y M, et al. Research progress in active components of traditional Chinese medicine on mitochondrial biogenesis[J]. Medical Recapitulate, 2020, 26(8):1457-1461. (in Chinese)

[53]
POPOV L D. Mitochondrial biogenesis:an update[J]. Journal of Cellular and Molecular Medicine, 2020, 24(9):4892-4899.

DOI

[54]
PIANTADOSI C A, SULIMAN H B. Mitochondrial transcription factor A induction by redox activation of nuclear respiratory factor 1[J]. The Journal of Biological Chemistry, 2006, 281(1):324-333.

DOI

[55]
SCARPULLA R C. Transcriptional paradigms in mammalian mitochondrial biogenesis and function[J]. Physiological Reviews, 2008, 88(2):611-638.

DOI PMID

[56]
LI A Q, GAO M, LIU B L, et al. Mitochondrial autophagy:molecular mechanisms and implications for cardiovascular disease[J]. Cell Death & Disease, 2022, 13(5):444.

[57]
CAMPOS J C, BOZI L H M, BECHARA L R G, et al. Mitochondrial quality control in cardiac diseases[J]. Frontiers in Physiology, 2016, 7:479.

PMID

[58]
NI H M, WILLIAMS J A, DING W X. Mitochondrial dynamics and mitochondrial quality control[J]. Redox Biology, 2015, 4:6-13.

DOI

[59]
HAO T S, YU J L, WU Z D, et al. Hypoxia-reprogramed megamitochondrion contacts and engulfs lysosome to mediate mitochondrial self-digestion[J]. Nature Communications, 2023, 14(1):4105.

DOI PMID

[60]
SPRINGER M Z, MACLEOD K F. In brief:mitophagy:mechanisms and role in human disease[J]. The Journal of Pathology, 2016, 240(3):253-255.

DOI

[61]
PALIKARAS K, TAVERNARAKIS N. Mitochondrial homeostasis:the interplay between mitophagy and mitochondrial biogenesis[J]. Experimental Gerontology, 2014, 56:182-188.

DOI

[62]
MARTINEZ-LOPEZ N, GARCIA-MACIA M, SAHU S, et al. Autophagy in the CNS and periphery coordinate lipophagy and lipolysis in the brown adipose tissue and liver[J]. Cell Metabolism, 2016, 23(1):113-127.

DOI

[63]
尹圆圆. 纳米氧化锌颗粒通过扰动NRF2信号通路破坏自噬反应引起人角质形成细胞毒性[D].硕士学位论文. 沈阳: 中国医科大学, 2020.

YIN Y Y. Zinc oxide nanoparticles disrupt autophagy and induce toxicity in human keratinocytes by perturbation of NRF2 signal pathway[D].Master’s Thesis. Shenyang: China Medical University, 2020. (in Chinese)

[64]
KO M S, YUN J Y, BAEK I J, et al. Mitophagy deficiency increases NLRP3 to induce brown fat dysfunction in mice[J]. Autophagy, 2021, 17(5):1205-1221.

DOI

[65]
PARK A, KIM K E, PARK I, et al. Mitochondrial matrix protein LETMD1 maintains thermogenic capacity of brown adipose tissue in male mice[J]. Nature Communications, 2023, 14(1):3746.

DOI PMID

[66]
KIM H S, PARK M Y, YUN N J, et al. Targeting PLD2 in adipocytes augments adaptive thermogenesis by improving mitochondrial quality and quantity in mice[J]. Journal of Experimental Medicine, 2022, 219(2):e20211523.

DOI

[67]
REVERTER A, OKIMOTO R, SAPP R, et al. Chicken muscle mitochondrial content appears co-ordinately regulated and is associated with performance phenotypes[J]. Biology Open, 2017, 6(1):50-58.

DOI PMID

[68]
LAKER R C, DRAKE J C, WILSON R J, et al. AMPK phosphorylation of Ulk1 is required for targeting of mitochondria to lysosomes in exercise-induced mitophagy[J]. Nature Communications, 2017, 8(1):548.

DOI PMID

[69]
EGAN D F, SHACKELFORD D B, MIHAYLOVA M M, et al. Phosphorylation of ULK1 (hATG1) by AMP-activated protein kinase connects energy sensing to mitophagy[J]. Science, 2011, 331(6016):456-461.

DOI PMID

[70]
杨春丽, 薛姝婧, 武晓敏, 等. 间断性热暴露导致自发性高血压大鼠的胸主动脉损伤:基于激活AMPK/mTOR/ULK1通路[J]. 南方医科大学学报, 2023, 43(2):191-198.

YANG C L, XUE S J, WU X M, et al. Intermittent heat exposure induces thoracic aorta injury in spontaneously hypertensive rats by activating the AMPK/mTOR/ULK1 pathway[J]. Journal of Southern Medical University, 2023, 43(2):191-198. (in Chinese)

[71]
WANG J F, MEI Z G, YANG F, et al. Puerarin protects rat brain against ischemia/reperfusion injury by suppressing autophagy via the AMPK-mTOR-ULK1 signaling pathway[J]. Neural Regeneration Research, 2018, 13(6):989-998.

DOI

[72]
BIRKENFELD A L, LEE H Y, GUEBRE-EGZIABHER F, et al. Deletion of the mammalian INDY homolog mimics aspects of dietary restriction and protects against adiposity and insulin resistance in mice[J]. Cell Metabolism, 2011, 14(2):184-195.

DOI PMID

文章导航

/