综述

白细胞介素-6调控动物采食和能量代谢的研究进展

  • 周颖 ,
  • 王丽娜 , *
展开
  • 华南农业大学动物科学学院,广东省动物营养调控重点实验室,广州 510642
* 王丽娜,副教授,硕士生导师,E-mail:

周颖(1998—),女,江西萍乡人,硕士研究生,从事动物采食调控研究。E-mail:

Copy editor: 武海龙

收稿日期: 2023-07-26

  网络出版日期: 2024-02-01

基金资助

国家自然科学基金面上项目(32072779)

国家重点研发项目(2022YFD1300401)

Research Progress of Interleukin-6 on Regulating Animal Feeding and Energy Metabolism

  • ZHOU Ying ,
  • WANG Lina , *
Expand
  • Guangdong Provincial Key Laboratory of Animal Nutrition Control, College of Animal Science, South China Agricultural University, Guangzhou 510642, China
* associate professor, E-mail:

Received date: 2023-07-26

  Online published: 2024-02-01

摘要

白细胞介素-6(IL-6)是一种独特的细胞因子,在不同的器官和系统中发挥多向性作用。现有的研究已证实,IL-6不仅可以造成慢性炎症和各种病理情况,也对动物的生理功能起到一定的调控作用。动物的生长发育与其对营养物质的摄入及机体能量代谢密切相关,而近年来越来越多的研究发现IL-6对动物的采食行为和能量代谢具有广泛影响,可见动物体内的IL-6水平对动物生长发育具有重要的调控作用。因此,本文就动物中枢和外周IL-6调节采食和能量代谢的生物学功能进行综述,明确IL-6在动物体内能量稳态平衡中的作用,为动物养殖生产实践提供参考。

本文引用格式

周颖 , 王丽娜 . 白细胞介素-6调控动物采食和能量代谢的研究进展[J]. 动物营养学报, 2024 , 36(2) : 747 -756 . DOI: 10.12418/CJAN2024.068

Abstract

Interleukin-6 (IL-6) is a unique cytokine that plays a multi-directional role in different organs and systems. Existing research has confirmed that IL-6 can not only cause chronic inflammation and various pathological conditions, but also play a certain regulatory role in animal physiological functions. The growth and development of animals are closely related to their intake of nutrients and energy metabolism. In recent years, more and more studies have found that IL-6 has a broad impact on animal feeding behavior and energy metabolism, indicating that IL-6 levels in animals have an important regulatory role in animal growth and development. Therefore, this article reviews the biological functions of central and peripheral IL-6 in regulating feeding and energy metabolism in animals, clarifying the role of IL-6 in animal energy homeostasis, and providing reference for animal breeding production practices.

白细胞介素-6(interleukin-6,IL-6)是可以由机体外周和中枢的多种细胞产生的一种多效性细胞因子,在动物健康和疾病中扮演着不同的角色[1-3]。由IL-6、白细胞介素-6受体(interleukin-6 receptor,IL-6R)和糖蛋白130(glycoprotein 130,gp130)组成的六聚体复合物通过激活不同的信号机制来执行各种生理功能,如促进炎症反应、控制慢性炎症性疾病的发展和调控代谢过程等[4]。在慢性炎症和肥胖相关的代谢性炎症中,IL-6的长期持续作用会使机体免疫功能下降和代谢失调,从而导致机体免疫功能与组织和器官的损伤[5]。然而,在早期感染中IL-6的快速激活在宿主保护中具有有益作用。IL-6不仅在多发性硬化症、类风湿性关节炎、炎症性肠病、克罗恩病和阿尔茨海默病等多种疾病的生理和病理过程中发挥重要作用[6],而且近年来有文献报道IL-6水平的变化可以影响动物的采食和能量代谢水平。例如,运动背景下产生的IL-6可以作用于下丘脑,减少肥胖相关的炎症,恢复小鼠对食物摄入量和能量消耗的控制[7]。IL-6也可以直接作用于大脑减少小鼠对普通饲粮的摄入量和调控能量代谢[8-9]。当动物机体同时产生IL-6和能量代谢有关的激素时,IL-6似乎对动物采食和能量调控都有积极影响[8-10]。此外,小鼠敲除IL-6R后,中枢IL-6R信号效应减弱,小鼠的葡萄糖代谢稳态也随之失调[11]
下丘脑作为调节动物能量和葡萄糖稳态的关键脑区,整合了控制食欲和体重的不同激素和神经元信号[12]。大脑分泌的神经肽Y(neuropeptide Y,NPY)、刺鼠基因相关蛋白(agouti gene-related protein,AgRP)、可卡因安非他明调节转录本(amphetamine-regulated transcript,CART)、前阿片黑素皮质素(proopiomelanocortin,POMC)和食欲素(orexin,ORX)等激素直接调节动物食欲[13-14]。外周组织通过感知机体能量代谢的变化,产生一系列与食欲相关的激素,如胃肠道分泌的胃饥饿素(ghrelin)、胆囊收缩素(cholecystokinin,CCK)、酪酪肽YY(peptide tyrosine tyrosine,PYY)和胰高血糖素样肽-1(glucagon-like peptide-1,GLP-1)等通过神经或内分泌途径将食欲信号传递给大脑,进而调控动物采食[15]。此外,下丘脑是能量代谢的主要调节中心之一,可以通过释放甲状腺激素(thyroid hormone,TH)和促肾上腺皮质激素(adrenocorticotropic hormone,ACTH)等激素来影响动物能量代谢[16],还可以通过释放促肾上腺皮质激素释放因子(corticotropin releasing factor,CRF)刺激垂体前叶分泌ACTH,ACTH再刺激肾上腺分泌皮质醇等激素,从而影响动物能量代谢[17]。另外,许多外周采食调节分子,如GLP-1、CCK、瘦素(leptin)和胰岛素(insulin)等通过循环系统直接作用于下丘脑,调节动物长期和短期的能量稳态[18]
近年来,存在于中枢和外周的IL-6被广泛报道,IL-6能够通过多种调控途径影响动物食物摄入和能量消耗。因此,本文就IL-6对动物采食和能量代谢的调控作用作一综述。

1 IL-6及IL-6R

1.1 IL-6的合成与分布

IL-6能够被多种类型的细胞分泌。在外周,如肝脏、肌肉和脂肪组织等,IL-6主要由单核细胞、巨噬细胞和B细胞产生[19-20]。而在中枢,IL-6主要由中枢神经系统(central nervous system,CNS)的神经元和神经胶质细胞产生[21-22]。据报道,在中枢神经系统外侧下丘脑(lateral hypothalamus,LH)和臂旁外侧核(lateral parabrachial nucleus,LPBN)核团中,神经元、星形胶质细胞和小胶质细胞均可以分泌IL-6[9,23]。虽然在生理条件下大脑中的IL-6水平很低,但是在阿尔茨海默病或一些神经炎症性疾病等神经疾病中会促进神经细胞和神经胶质细胞中IL-6的分泌[9];此外,在LPBN外或在细胞培养物中,神经元、星形胶质细胞和小胶质细胞能够响应外周肠道信号产生IL-6[8,10,24]。有文献也表明瘦素、胰淀素(amylin)和Mimecan(脂肪组织中大量表达的一种激素,可抑制食欲)等外周激素可以激活小胶质细胞,增加IL-6的表达,从而改善体内激素信号传导[25]

1.2 IL-6R类型及信号机制

与IL-6相似,IL-6R也在许多组织中表达[26]。IL-6有2种类型的受体,一种是膜结合型白细胞介素-6受体(mIL-6R),也是IL-6Ra编码的典型受体,会在不同的细胞类型中大量表达[27]。mIL-6R含有一个短的胞质结构域,不参与连接衍生信号,mIL-6R也称为IL-6Ra[28]。IL-6通过与mIL-6R结合来产生信号,而mIL-6R需要与跨膜蛋白gp130结合才能产生功能信号复合体,这条途径也被称为经典的IL-6至mIL-6R途径[29]
IL-6的另一种类型的受体是可溶性白细胞介素-6受体(sIL-6R),也是IL-6st编码的反式信号受体,同样会在不同的细胞类型中大量表达。sIL-6R的产生有2条途径,一条是通过mIL-6R mRNA的选择性剪接产生,另一条是通过金属蛋白酶(ADAM)10和17的空间效应产生[28]。在啮齿类动物中,sIL-6R能够在缺乏mIL-6R的细胞中传递IL-6信号[29]。IL-6与血浆和脑脊液中sIL-6R的结合使该复合体与广泛表达的gp130结合,并引发依赖于IL-6的下游信号[29]。为了区别于经典途径,这种替代的IL-6途径被称为反式信号转导。
在这2种情况下,IL-6首先与IL-6R结合,然后通过CBD结构域与gp130结合,但根据受体类型的不同而产生不同的生物学效应[30-31]。经典信号主要存在于白细胞和肝细胞,它们同时表达mIL-6Rgp130,并产生抗炎反应。相反,反式信号可以表现在所有表达gp130的细胞中,从而导致促炎反应[32]

2 IL-6调控动物采食

2.1 中枢IL-6对动物采食的调控作用

2.1.1 中枢IL-6的直接调控作用

在中枢神经系统中,IL-6主要发挥着抑制食欲的作用。在小鼠脑室内注射IL-6时,会抑制小鼠采食[33-34]。而在腹腔内注射相同剂量的IL-6,并不影响小鼠对食物的摄入,这充分证明了中枢神经系统中IL-6的作用[33]。Timper等[33]研究表明,虽然在肥胖状态下外周IL-6的增加会引起炎症等的发生,但中枢IL-6可以缓解胰岛素抵抗,并起到减少食物摄入的作用。此前也有报道称,与正常小鼠相比,IL-6对瘦素抵抗的肥胖小鼠具有更为显著的抑制采食作用。
事实上,IL-6的采食调控作用主要集中在下丘脑[33,35]IL-6敲除小鼠中下丘脑POMC神经元数量减少,这也间接说明IL-6与调控动物采食有关[27]。LH是一个含有IL-6的脑区,是食物摄入和食物奖赏控制的关键部位。向LH内微量注射IL-6减少了雄性大鼠的食物摄入量,而且当饲喂高脂或高糖饲粮时,LH中IL-6敲除的雄性大鼠采食量增加[23]。有研究表明,LPBN和中央杏仁核(central amygdala,CeA)被认为介导了IL-6对食物摄入的调控作用[9]。向CeA内注射微量IL-6也可以减少隔夜禁食大鼠再进食的采食量[36]
通常情况下,IL-6主要通过IL-6R发挥采食调控作用。有研究表明,敲除IL-6R以减少其介导的IL-6信号,小鼠的食物摄入量会显著增加[11]。阻断中枢IL-6反式信号传导,中枢IL-6介导的厌食效应也会消失[33]。然而,也有研究表明[33],在下丘脑或前脑敲除IL-6R的小鼠中,中枢注射IL-6后的食物摄入依旧减少,提示除了IL-6R,中枢IL-6对食欲的调控作用可能存在其他途径。然而,中枢IL-6介导这些效应的神经解剖学基础和机制还知之甚少,还有待发掘。

2.1.2 中枢IL-6与外周信号的协同调控作用

除了直接作用,大脑产生的IL-6也是肠道/脂肪与大脑沟通的关键介质之一。经典的外周采食调控信号,如瘦素、GLP-1和胰淀素等,需要完整的中枢IL-6来调控动物食欲[8-10,37]
据报道,下丘脑腹内侧的瘦素信号通过诱导IL-6的分泌而增强,然后IL-6与IL-6R相互作用,可以激活信号转导和转录激活因子3(signal transducer and activator of transcription 3,STAT3)信号和瘦素受体下游的基因转录[10]。此外,Anesten等[38]之前也已经证明,脑室内注射IL-6和瘦素都能在弓状核诱导STAT3磷酸化。Mishra等[9]在LPBN中评估了IL-6和脂肪产生的瘦素在采食调控过程中的协同作用,并且有研究表明瘦素受体与IL-6R共享部分下游信号[39]。这表明瘦素和IL-6都能通过作用于LPBN而产生厌食症,最终可能协同减少动物对食物的摄入量。然而也有报道称,瘦素对运动小鼠或用IL-6处理的小鼠的食物摄入没有累加效应[7],这也表明瘦素与IL-6的协同作用尚存在争议。
另一个被报道与IL-6具有协同作用的外周激素是厌食性肠道/神经激素GLP-1。有研究表明,在LH中的GLP-1可以减少动物的采食量和采食行为,并且这些效应与IL-6有关[8]。然而LH是GLP-1对食物摄入和奖励影响的关键部位[24],也间接表明在炎症或感染背景之外,LH中产生的IL-6可能是采食调控的关键因素。除此之外,胰淀素可以通过与小胶质细胞结合增加下丘脑腹内侧的IL-6水平,升高的IL-6水平可以通过STAT3的磷酸化改善神经元中的瘦素信号,从而减少食物摄入[10]。此外,与以往依赖于瘦素效应不同的是,脂肪细胞分泌的Mimecan可以独立于瘦素信号减少食物摄入,其作用与下丘脑中的小胶质细胞IL-6释放有关[40]。尽管下丘脑中IL-6水平的增加主要与炎症反应有关,但越来越多的证据表明,中枢IL-6与参与采食调控的激素之间存在关联。由此可见,中枢IL-6可以抑制食物摄入,并且各种激素信号通过不同机制与IL-6表达相关。但是中枢IL-6的采食调控作用机理研究尚浅,其具体机制还需进一步研究。

2.2 外周IL-6对动物采食的调控作用

有研究表明,与大脑相比,腹腔内注射相同剂量的IL-6对小鼠食物摄入没有影响。然而,当小鼠外周注射的IL-6水平比中枢注射的高4倍时,高水平的IL-6与禁食后再饲喂期间食物摄入量的显著减少有关[33]。该研究提示,高水平的外周来源的IL-6可能通过血脑屏障(blood brain barrier,BBB),并通过中枢机制抑制动物采食。
此外,有几项研究表明,体育锻炼后肌肉产生的IL-6可以通过不同的机制刺激下丘脑中的减食欲信号[7,34,41]。体育锻炼后肌肉产生的IL-6可以通过激活双面神激酶2(Janus kinase 2,JAK2)从而诱导STAT3磷酸化,可以改善瘦素信号通路和减少食物摄入量[41]。另一项研究报道急性运动产生的IL-6增加了瘦小和肥胖小鼠下丘脑中鞘氨醇-1-磷酸受体1(sphingosine-1-phosphate receptor 1,S1PR1)蛋白含量和STAT3磷酸化,表明运动也可以通过IL-6激活下丘脑S1PR1-STAT3轴减少小鼠的食物消耗[34]。之后还有文献报道急性运动释放的IL-6还可以通过诱导小鼠Tubby基因(Tub)酪氨酸磷酸化与其下丘脑中JAK2的关联,从而减少食物摄入,也间接表明IL-6可以通过激活JAK2诱导Tub酪氨酸磷酸化的机制来抑制小鼠采食[7]
此外,骨骼肌中IL-6的特异性减少改变了小鼠隔夜禁食后重新喂食的时间[42]。肌肉IL-6敲除小鼠再喂食表型也表明,高水平肌肉来源的IL-6在抑制采食方面发挥着关键作用[43],这也表明了肌肉和大脑之间的关联性。除此以外,脂肪细胞特异性分泌的IL-6可以作用于脂肪组织以增加瘦素分泌并抑制饱腹感[44],并且脂肪细胞特异性IL-6信号转导也参与运动介导的高脂饲粮饲喂小鼠食物摄入的调节[45]。综上表明,除了中枢作用外,IL-6对动物采食的外周调控作用仍然重要。
值得注意的是,有研究表明脑室内注射IL-6对雏鸡的采食无显著影响[46]。在金鱼中,短期运动可能会通过增加中枢和外周IL-6表达来减少采食[47]。显而易见,IL-6影响不同动物采食存在争议,并且具体的食欲调控环路和信号通路还有待进一步研究。

3 IL-6调控动物能量代谢

动物的采食和能量代谢密切相关。动物需要通过采食摄入营养物质,以维持正常的生命活动。同时,动物机体还需要将所摄入的营养物质转化为能量,以维持正常的代谢运作。IL-6除了对动物采食的影响之外,还有研究表明IL-6也参与了能量代谢的调节过程。IL-6是重要的代谢调节因子,能够影响大脑、肌肉和脂肪的能量代谢。如在脂肪组织中,IL-6能够抑制脂肪细胞的分化和脂肪堆积,从而降低体重和改善能量代谢[44]。而在肌肉中,IL-6也能够促进肌肉的糖代谢和葡萄糖摄取,从而提高身体的能量消耗和代谢[48]。另外,IL-6还能够影响大脑中能量代谢的调节参与调节下丘脑-垂体-肾上腺轴(hypothalamic-pituitary-adrenal axis,HPA轴)和交感神经系统的活动,从而影响采食和能量消耗[33]。具体而言,目前的研究报道主要集中于IL-6对动物机体糖代谢和脂代谢的影响[49]

3.1 IL-6影响动物糖代谢

糖代谢是动物体内主要的能量供应途径之一。通过糖原储备和血液中的葡萄糖,动物可以快速获得能量,维持其生命活动的正常进行。与感染和慢性炎症条件下的产生模式不同,在运动中,IL-6的产生时间很短,不受先前肿瘤坏死因子-α(tumor necrosis factor α,TNF-α)的刺激,并且仅伴随着其他炎症物质的中等或低水平增加[50]。因此,这种特殊的IL-6产生模式已被证明介导了促进动物健康的作用,如增强全身胰岛素作用[51-52]和减少肝脏葡萄糖产生[52]
当在小鼠脑室内注射IL-6时,会提高小鼠的葡萄糖耐量[33-34]。此外,IL-6还可以延缓胃排空,从而对人类餐后血液葡萄糖控制产生影响[53]。研究表明,用IL-6处理后增强了小鼠蛋白激酶B(protein kinase B,AKT)信号转导,并减少了低脂和高脂饲粮饲喂小鼠肝脏中糖异生基因的表达,表明IL-6对动物体内葡萄糖和胰岛素动态平衡的有益影响[52]。对小鼠巨噬细胞和肝细胞的研究也表明,IL-6改善了小鼠的葡萄糖稳态[2]。也有研究表明,IL-6可以通过刺激GLP-1的分泌来改善小鼠葡萄糖耐量[54]。此外,还有一项研究表明,IL-6介导的信号传导足以改变小鼠全身能量、葡萄糖和体内平衡[11],在这项研究中,IL-6R敲除小鼠也表现出能量消耗和自主运动活动减少,这强调了中枢IL-6信号在维持动物能量稳态中的重要性。事实上,血浆IL-6水平因肥胖和运动而升高,被认为是维持葡萄糖和能量稳态的适应性反应的一部分。然而,脂肪组织产生的IL-6在动物葡萄糖代谢中的确切作用还存在争议[55]

3.2 IL-6影响动物脂代谢

脂肪是动物体内重要的能量储备物质。脂肪分解后产生的游离脂肪酸能够被肌肉等组织利用,为动物机体提供能量和维持其正常的生理活动。有文献证明,肌肉收缩后血浆IL-6水平升高[56-57]。运动诱导的IL-6对动物脂代谢的影响已有许多文章报道[58-60]。有研究表明,运动产生的IL-6被证明可以增加脂肪组织脂肪分解[44]和减少肝脏脂肪变性[61]。体外研究和对啮齿动物的研究表明,IL-6可以通过激活腺苷酸活化蛋白激酶(adenosine 5’-monophosphate activated protein kinase,AMPK)的机制来促进脂肪分解和脂肪氧化[50]。体内研究也表明,重组人IL-6增强了健康成人的脂肪分解和脂肪氧化[62-64],并且全身性IL-6敲除小鼠会积累脂肪组织[65]。此外,阻断IL-6R可以消除运动引起的内脏脂肪组织质量减少[66-67]
IL-6不仅参与脂代谢的调节,最近也有证据表明,运动中产生的IL-6也可能具有诱导白色脂肪组织(white adipose tissue,WAT)褐变的能力,并刺激米色脂肪产热相关基因的表达,进一步刺激能量消耗[68-70]。下丘脑核内微量注射IL-6通过向棕色脂肪组织(brown adipose tissue,BAT)增加甲状腺和交感神经的流出,从而增加了BAT的产热[9]。有研究表明,进行1周腹腔注射IL-6的小鼠,腹股沟WAT中解偶联蛋白1(uncoupling protein 1,UCP1)基因的表达增加[71]。Kristóf等[72]的一项研究也发现,当IL-6R在分化过程中被阻断时,导致UCP1、诱导细胞死亡的DNA片段化因子-α样效应物A(cell death-inducing DNA fragmentation factorα-like effector A,CIDEA)和超长链脂肪酸延伸酶(elongase of very long chain fatty acid 3,ELOVL3)等褐色标记基因的下调。此外,IL-6介导GLP-1类似物对脂肪组织褐色脂肪生成和适应性产热具有刺激作用[73]
目前研究表明,IL-6参与了能量代谢的调节过程,特别是在肥胖、糖尿病和代谢综合征等代谢性疾病的发生和发展中扮演着重要的角色。然而,IL-6介导的信号对全身能量稳态的有益作用的机制仍不清楚。总而言之,还需要更多的研究来了解全身能量平衡变化的确切分子基础和神经通路。

4 IL-6调控体重和预防肥胖作用

流行病学研究表明,伴随着肥胖症和Ⅱ型糖尿病等慢性炎症的发生,机体IL-6水平升高[43],而且代谢综合征通常与人类全身性IL-6水平升高有关[74]。然而,IL-6也被证明有益地影响新陈代谢活动。令人惊讶的是,与在脂肪组织和血浆中观察到的IL-6水平升高相反,啮齿动物的研究报告了大脑中IL-6水平的降低,这表明了外周和中枢IL-6在肥胖症中的不同作用方式[9]。Wallenius等[75]研究表明,中枢缺乏IL-6的小鼠会呈现肥胖的表型,与碳水化合物和脂代谢紊乱有关。这些数据随后得到了Matthews等[65]的支持,观察到IL-6敲除小鼠体重增加,葡萄糖耐量受损和胰岛素抵抗加剧,IL-6敲除导致脂肪组织的积累。与此一致的是,IL-6敲除小鼠体重较重[27]。小干扰RNA(small interfering RNA,siRNA)介导的LPBN中IL-6水平的减少也会导致体重增加、肥胖增加和BAT产热减少[9]。这些结果表明,IL-6在体重控制中起重要作用。但值得注意的是,IL-6R在饮食诱导的肥胖小鼠的体重和能量代谢调节中没有发挥必要的作用,其不直接参与饮食诱导肥胖症的体重调节[76]
IL-6可能通过调节参与能量稳态[35,77]的下丘脑神经肽而引起上述效应。IL-6在小鼠下丘脑中的过表达与脂肪含量减少和体重增加的抑制作用有关[77-78]。Mishra等[9]也表明,IL-6在LPBN中通过增加产热和减少食物摄入来减轻体重。有研究发现,超重和肥胖者的脑脊液中IL-6水平与体脂质量呈负相关[79],这一发现符合在肥胖程度更严重的个体中会存在IL-6水平不足的情况,也表明CNS中IL-6的抗肥胖作用也随之减弱,而且IL-6可能会通过CNS影响人类肥胖,人类的脑脊液中IL-6水平与肥胖呈负相关。肥胖啮齿动物的中枢IL-6表达减少[9],这也与之前肥胖抵抗小鼠下丘脑IL-6表达增加的报道[27]一致。除此之外,神经元和星形胶质细胞中的IL-6信号在体重平衡中起着重要作用。在喂食高脂饲粮的小鼠中,IL-6只从神经元或星形胶质细胞中删除,神经元IL-6缺失的小鼠表现出肥胖,而且星形胶质细胞IL-6缺失的小鼠更容易体重增加,导致肥胖[80]
IL-6除了调控体重以外,有一篇文献的联合分析也证明了IL-6对小鼠饮食诱导肥胖的保护作用,即在喂食普通饲粮的小鼠中,外源性IL-6既不会导致体重增加,也不会导致能量摄入发生变化。然而,在饲喂高脂饲粮的小鼠中,IL-6可以防止体重增加而且不影响能量摄入量[27]。当外周注射IL-6时,未出现肥胖减少的结果,这更加表明了IL-6的特定中枢作用[75]。雄性小鼠肌肉中缺乏IL-6会导致体重减轻,这表明肌肉IL-6对中枢神经系统有影响,不仅在运动期间对小鼠的采食有作用,而且在基础状态和能量平衡改变的情况下也有作用[42]。此外,脂联素水平升高对肥胖症的胰岛素敏感性也有积极影响,IL-6R阻断剂可增加肥胖患者的循环脂联素水平[81]。相比之下,在饮食诱导和遗传性肥胖的情况下,脂肪细胞特异性缺失IL-6对体重和脂肪含量、葡萄糖耐量及胰岛素抵抗没有影响[82]。然而也有报道称脂肪细胞中特异性IL-6信号转导可以诱导肠道GLP-1释放以增强胰岛素分泌,从而抵消肥胖症中的胰岛素抵抗[83]。这也说明了外周IL-6在肥胖症的不同作用方式。
综上所述,目前尚不清楚IL-6是否是肥胖和胰岛素抵抗发展的主要触发因素,或者是否真的需要它来抵消与肥胖相关的炎症增加。因此,CNS中产生的IL-6参与体重调控的神经回路和机制及其在肥胖中的作用还有待继续探究。

5 小结与展望

以往,对于IL-6作用的认识大多数都被认为是促进炎症相关疾病的发生,然而随着研究的深入,IL-6有益的生物学功能已逐渐被证实。特别是近年来IL-6对动物采食调控和能量代谢的研究越来越得以重视(图1)。外周和中枢IL-6通过减少食物摄入量和能量消耗,对葡萄糖和能量平衡起重要作用。此外,血浆IL-6水平的升高和中枢IL-6信号的增强也有助于控制胰岛素的分泌和葡萄糖代谢。IL-6还与脂肪代谢有关,通过增加产热和减少食物摄入来减轻体重,从而达到预防肥胖作用。大量文献证明了IL-6对食物摄入和能量稳态的重要性,并揭示了IL-6的体重控制和饮食诱导肥胖的保护作用,这可能有助于开发未来对肥胖症治疗的方法。然而,目前关于IL-6的相应调控机制研究尚不充分,IL-6对畜禽生产性能的研究较少,具有广阔的研究和应用前景。因此,今后需要进一步深入探索IL-6对动物采食和能量代谢调控的潜在机制,以指导动物生产实践。
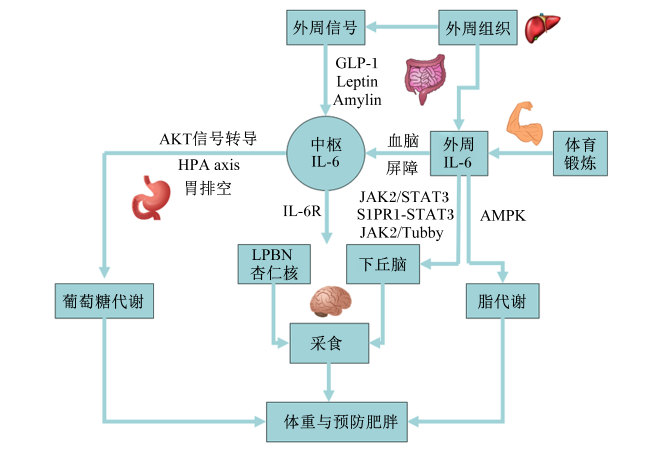
图1 IL-6对采食和能量代谢的调控途径

IL-6:白细胞介素-6 interleukin-6;IL-6R:白细胞介素-6受体 interleukin-6 receptor;LPBN:臂旁外侧核 lateral parabrachial nucleus;Leptin:瘦素;Amylin:胰淀素;GLP-1:胰高血糖素样肽-1 glucagon-like peptide-1;JAK2:双面神激酶2 Janus kinase 2;STAT3:信号转导和转录激活因子3 signal transducer and activator of transcription 3;S1PR1:鞘氨醇-1-磷酸受体1 sphingosine-1-phosphate receptor 1;HPA axis:下丘脑-垂体-肾上腺轴hypothalamic-pituitary-adrenal axis;AKT:蛋白激酶B protein kinase B;AMPK:腺苷酸活化蛋白激酶adenosine 5’-monophosphate activated protein kinase。

Fig.1 Regulatory pathways of IL-6 on feeding and energy metabolism

[1]
KANG S J, TANAKA T, NARAZAKI M, et al. Targeting interleukin-6 signaling in clinic[J]. Immunity, 2019, 50(4):1007-1023.

DOI PMID

[2]
MAUER J, DENSON J L, BRÜNING J C. Versatile functions for IL-6 in metabolism and cancer[J]. Trends in Immunology, 2015, 36(2):92-101.

DOI PMID

[3]
ROSE-JOHN S. Interleukin-6 signalling in health and disease[J]. F1000Research, 2020, 9:1013.

DOI

[4]
BARAN P, HANSEN S L A, WAETZIG G H, et al. The balance of interleukin (IL)-6,IL-6·soluble IL-6 receptor (sIL-6R),and IL-6·sIL-6R·sgp130 complexes allows simultaneous classic and trans-signaling[J]. The Journal of Biological Chemistry, 2018, 293(18):6762-6775.

DOI

[5]
LEE Y H, PRATLEY R E. The evolving role of inflammation in obesity and the metabolic syndrome[J]. Current Diabetes Reports, 2005, 5(1):70-75.

DOI

[6]
KAUR S, BANSAL Y, KUMAR R, et al. A panoramic review of IL-6:structure,pathophysiological roles and inhibitors[J]. Bioorganic & Medicinal Chemistry, 2020, 28(5):115327.

DOI

[7]
DE OLIVEIRA MICHELETTI T, CASSIA DOS SANTOS A, ROCHA G Z, et al. Acute exercise reduces feeding by activating IL-6/Tubby axis in the mouse hypothalamus[J]. Frontiers in Physiology, 2022, 13:956116.

DOI

[8]
SHIRAZI R, PALSDOTTIR V, COLLANDER J, et al. Glucagon-like peptide 1 receptor induced suppression of food intake,and body weight is mediated by central IL-1 and IL-6[J]. Proceedings of the National Academy of Sciences of the United States of America, 2013, 110(40):16199-16204.

[9]
MISHRA D, RICHARD J E, MARIC I, et al. Parabrachial interleukin-6 reduces body weight and food intake and increases thermogenesis to regulate energy metabolism[J]. Cell Reports, 2019, 26(11):3011-3026.e5.

DOI PMID

[10]
LE FOLL C, JOHNSON M D, DUNN-MEYNELL A A, et al. Amylin-induced central IL-6 production enhances ventromedial hypothalamic leptin signaling[J]. Diabetes, 2015, 64(5):1621-1631.

DOI PMID

[11]
MCNEILLY A D, YIANAKAS A, GALLAGHER J G, et al. Central deficiency of IL-6Ra in mice impairs glucose-stimulated insulin secretion[J]. Molecular Metabolism, 2022, 61:101488.

DOI

[12]
COLL A P, YEO G S. The hypothalamus and metabolism:integrating signals to control energy and glucose homeostasis[J]. Current Opinion in Pharmacology, 2013, 13(6):970-976.

DOI

[13]
KLOCKARS A, LEVINE A S, OLSZEWSKI P K. Hypothalamic integration of the endocrine signaling related to food intake[J]. Current Topics in Behavioral Neurosciences, 2019, 43:239-269.

DOI PMID

[14]
THOMAS M A, XUE B Z. Mechanisms for AgRP neuron-mediated regulation of appetitive behaviors in rodents[J]. Physiology & Behavior, 2018, 190:34-42.

DOI

[15]
ABDALLA M M I. Central and peripheral control of food intake[J]. Endocrine Regulations, 2017, 51(1):52-70.

DOI PMID

[16]
LÓPEZ M, VARELA L, VÁZQUEZ M J, et al. Hypothalamic AMPK and fatty acid metabolism mediate thyroid regulation of energy balance[J]. Nature Medicine, 2010, 16(9):1001-1008.

DOI PMID

[17]
RICHARD D, LIN Q, TIMOFEEVA E. The corticotropin-releasing factor family of peptides and CRF receptors:their roles in the regulation of energy balance[J]. European Journal of Pharmacology, 2002, 440(2/3):189-197.

DOI

[18]
KIM K S, SEELEY R J, SANDOVAL D A. Signalling from the periphery to the brain that regulates energy homeostasis[J]. Nature Reviews Neuroscience, 2018, 19(4):185-196.

DOI

[19]
GARBERS C, HEINK S, KORN T, et al. Interleukin-6:designing specific therapeutics for a complex cytokine[J]. Nature Reviews Drug Discovery, 2018, 17(6):395-412.

DOI

[20]
ANDERSSON C X, GUSTAFSON B, HAMMARSTEDT A, et al. Inflamed adipose tissue,insulin resistance and vascular injury[J]. Diabetes/Metabolism Research and Reviews, 2008, 24(8):595-603.

DOI

[21]
GADIENT R A, OTTEN U. Identification of interleukin-6 (IL-6)-expressing neurons in the cerebellum and hippocampus of normal adult rats[J]. Neuroscience Letters, 1994, 182(2):243-246.

DOI PMID

[22]
SCHÖBITZ B, DE KLOET E R, SUTANTO W, et al. Cellular localization of interleukin 6 mRNA and interleukin 6 receptor mRNA in rat brain[J]. European Journal of Neuroscience, 1993, 5(11):1426-1435.

DOI PMID

[23]
LÓPEZ-FERRERAS L, LONGO F, RICHARD J E, et al. Key role for hypothalamic interleukin-6 in food-motivated behavior and body weight regulation[J]. Psychoneuroendocrinology, 2021, 131:105284.

DOI

[24]
LÓPEZ-FERRERAS L, RICHARD J E, NOBLE E E, et al. Lateral hypothalamic GLP-1 receptors are critical for the control of food reinforcement,ingestive behavior and body weight[J]. Molecular Psychiatry, 2018, 23(5):1157-1168.

DOI

[25]
BOBBO V C D, JARA C P, MENDES N F, et al. Interleukin-6 expression by hypothalamic microglia in multiple inflammatory contexts:a systematic review[J]. BioMed Research International, 2019, 2019:1365210.

[26]
KRAAKMAN M J, KAMMOUN H L, ALLEN T L, et al. Blocking IL-6 trans-signaling prevents high-fat diet-induced adipose tissue macrophage recruitment but does not improve insulin resistance[J]. Cell Metabolism, 2015, 21(3):403-416.

DOI PMID

[27]
BOBBO V C, ENGEL D F, JARA C P, et al. Interleukin-6 actions in the hypothalamus protects against obesity and is involved in the regulation of neurogenesis[J]. Journal of Neuroinflammation, 2021, 18(1):192.

DOI PMID

[28]
CHALARIS A, GARBERS C, RABE B, et al. The soluble Interleukin 6 receptor:generation and role in inflammation and cancer[J]. European Journal of Cell Biology, 2011, 90(6/7):484-494.

DOI

[29]
WOLF J, ROSE-JOHN S, GARBERS C. Interleukin-6 and its receptors:a highly regulated and dynamic system[J]. Cytokine, 2014, 70(1):11-20.

DOI

[30]
BOUSOIK E, MONTAZERI ALIABADI H. "Do we know jack"about JAK?A closer look at JAK/STAT signaling pathway[J]. Frontiers in Oncology, 2018, 8:287.

DOI

[31]
AKBARI M, HASSAN-ZADEH V. IL-6 signalling pathways and the development of type 2 diabetes[J]. Inflammopharmacology, 2018, 26(3):685-698.

DOI PMID

[32]
MASJEDI A, HASHEMI V, HOJJAT-FARSANGI M, et al. The significant role of interleukin-6 and its signaling pathway in the immunopathogenesis and treatment of breast cancer[J]. Biomedicine & Pharmacotherapy, 2018, 108:1415-1424.

DOI

[33]
TIMPER K, DENSON J L, STECULORUM S M, et al. IL-6 improves energy and glucose homeostasis in obesity via enhanced central IL-6 trans-Signaling[J]. Cell Reports, 2017, 19(2):267-280.

DOI PMID

[34]
SILVA V R R, MICHELETTI T O, KATASHIMA C K, et al. Exercise activates the hypothalamic S1PR1-STAT3 axis through the central action of interleukin 6 in mice[J]. Journal of Cellular Physiology, 2018, 233(12):9426-9436.

DOI PMID

[35]
SCHÉLE E, BENRICK A, GRAHNEMO L, et al. Inter-relation between interleukin (IL)-1,IL-6 and body fat regulating circuits of the hypothalamic arcuate nucleus[J]. Journal of Neuroendocrinology, 2013, 25(6):580-589.

DOI

[36]
ANESTEN F, DALMAU GASULL A, RICHARD J E, et al. Interleukin-6 in the central amygdala is bioactive and co-localised with glucagon-like peptide-1 receptor[J]. Journal of Neuroendocrinology, 2019, 31(6):e12722.

DOI

[37]
LARSEN L, LE FOLL C, DUNN-MEYNELL A A, et al. IL-6 ameliorates defective leptin sensitivity in DIO ventromedial hypothalamic nucleus neurons[J]. American Journal of Physiology:Regulatory,Integrative and Comparative Physiology, 2016, 311(4):R764-R770.

DOI

[38]
ANESTEN F, SANTOS C, GIDESTRAND E, et al. Functional interleukin-6 receptor-α is located in tanycytes at the base of the third ventricle[J]. Journal of Neuroendocrinology, 2017, 29(12):e12546.

DOI

[39]
DUNN-MEYNELL A A, LE FOLL C, JOHNSON M D, et al. Endogenous VMH amylin signaling is required for full leptin signaling and protection from diet-induced obesity[J]. American Journal of Physiology:Regulatory,Integrative and Comparative Physiology, 2016, 310(4):R355-R365.

DOI

[40]
CAO H M, YE X P, MA J H, et al. Mimecan,a hormone abundantly expressed in adipose tissue, reduced food intake independently of leptin signaling[J]. EBioMedicine, 2015, 2(11):1718-1724.

DOI

[41]
ROPELLE E R, FLORES M B, CINTRA D E, et al. IL-6 and IL-10 anti-inflammatory activity links exercise to hypothalamic insulin and leptin sensitivity through IKKβ and ER stress inhibition[J]. PLoS Biology, 2010, 8(8):e1000465.

DOI

[42]
MOLINERO A, FERNANDEZ-PEREZ A, MOGAS A, et al. Role of muscle IL-6 in gender-specific metabolism in mice[J]. PloS One, 2017, 12(3):e0173675.

DOI

[43]
PEDERSEN B K, FEBBRAIO M A. Muscles, exercise and obesity:skeletal muscle as a secretory organ[J]. Nature Reviews Endocrinology, 2012, 8(8):457-465.

DOI

[44]
WUEEST S, KONRAD D. The role of adipocyte-specific IL-6-type cytokine signaling in FFA and leptin release[J]. Adipocyte, 2018, 7(3):226-228.

DOI PMID

[45]
ODERMATT T S, DEDUAL M A, BORSIGOVA M, et al. Adipocyte-specific gp130 signalling mediates exercise-induced weight reduction[J]. International Journal of Obesity, 2020, 44(3):707-714.

DOI PMID

[46]
TACHIBANA T, KODAMA T, YAMANE S, et al. Possible role of central interleukins on the anorexigenic effect of lipopolysaccharide in chicks[J]. British Poultry Science, 2017, 58(3):305-311.

DOI PMID

[47]
NADERMANN N, VOLKOFF H. Effects of short-term exercise on food intake and the expression of appetite-regulating factors in goldfish[J]. Peptides, 2020, 123:170182.

DOI

[48]
SEVERINSEN M C K, PEDERSEN B K. Muscle-organ crosstalk:the emerging roles of myokines[J]. Endocrine Reviews, 2020, 41(4):594-609.

DOI

[49]
LEHRSKOV L L, CHRISTENSEN R H. The role of interleukin-6 in glucose homeostasis and lipid metabolism[J]. Seminars in Immunopathology, 2019, 41(4):491-499.

DOI PMID

[50]
PEDERSEN B K, FEBBRAIO M A. Muscle as an endocrine organ:focus on muscle-derived interleukin-6[J]. Physiological Reviews, 2008, 88(4):1379-1406.

DOI

[51]
KURAUTI M A, COSTA-JÚNIOR J M, FERREIRA S M, et al. Interleukin-6 increases the expression and activity of insulin-degrading enzyme[J]. Scientific Reports, 2017, 7:46750.

DOI PMID

[52]
PEPPLER W T, TOWNSEND L K, MEERS G M, et al. Acute administration of IL-6 improves indices of hepatic glucose and insulin homeostasis in lean and obese mice[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2019, 316(1):G166-G178.

DOI

[53]
LANG LEHRSKOV L, LYNGBAEK M P, SOEDERLUND L, et al. Interleukin-6 delays gastric emptying in humans with direct effects on glycemic control[J]. Cell Metabolism, 2018, 27(6):1201-1211.e3.

DOI PMID

[54]
MCGLONE E R, TAN T M. Of mice not men?Actions of interleukin-6 on glucose tolerance[J]. Cell Metabolism, 2018, 27(6):1157-1158.

DOI

[55]
WUEEST S, KONRAD D. The controversial role of IL-6 in adipose tissue on obesity-induced dysregulation of glucose metabolism[J]. American Journal of Physiology:Endocrinology and Metabolism, 2020, 319(3):E607-E613.

DOI

[56]
KARSTOFT K, PEDERSEN B K. Skeletal muscle as a gene regulatory endocrine organ[J]. Current Opinion in Clinical Nutrition and Metabolic Care, 2016, 19(4):270-275.

DOI PMID

[57]
PEDERSEN B K. Anti-inflammatory effects of exercise:role in diabetes and cardiovascular disease[J]. European Journal of Clinical Investigation, 2017, 47(8):600-611.

DOI

[58]
PEDERSEN B K. Muscle as a secretory organ[J]. Comprehensive Physiology, 2013, 3(3):1337-1362.

DOI PMID

[59]
GIUDICE J, TAYLOR J M. Muscle as a paracrine and endocrine organ[J]. Current Opinion in Pharmacology, 2017, 34:49-55.

DOI PMID

[60]
PEDERSEN B K. The physiology of optimizing health with a focus on exercise as medicine[J]. Annual Review of Physiology, 2019, 81:607-627.

DOI PMID

[61]
TOWNSEND L K, MEDAK K D, PEPPLER W T, et al. High-saturated-fat diet-induced obesity causes hepatic interleukin-6 resistance via endoplasmic reticulum stress[J]. Journal of Lipid Research, 2019, 60(7):1236-1249.

DOI PMID

[62]
PETERSEN E W, CAREY A L, SACCHETTI M, et al. Acute IL-6 treatment increases fatty acid turnover in elderly humans in vivo and in tissue culture in vitro[J]. American Journal of Physiology:Endocrinology and Metabolism, 2005, 288(1):E155-E162.

DOI

[63]
GARCÍA J G, DE MIGUEL C, MILAGRO F I, et al. Endothelial NOX5 expression modulates thermogenesis and lipolysis in mice fed with a high-fat diet and 3T3-L1 adipocytes through an interleukin-6 dependent mechanism[J]. Antioxidants, 2021, 11(1):30.

DOI

[64]
HAN J, MENG Q Y, SHEN L, et al. Interleukin-6 induces fat loss in cancer cachexia by promoting white adipose tissue lipolysis and browning[J]. Lipids in Health and Disease, 2018, 17(1):14.

DOI PMID

[65]
MATTHEWS V B, ALLEN T L, RISIS S, et al. Interleukin-6-deficient mice develop hepatic inflammation and systemic insulin resistance[J]. Diabetologia, 2010, 53(11):2431-2441.

DOI PMID

[66]
WEDELL-NEERGAARD A S, LANG LEHRSKOV L, CHRISTENSEN R H, et al. Exercise-induced changes in visceral adipose tissue mass are regulated by IL-6 signaling:a randomized controlled trial[J]. Cell Metabolism, 2019, 29(4):844-855.e3.

DOI

[67]
CHRISTENSEN R H, WEDELL-NEERGAARD A S, LEHRSKOV L L, et al. The role of exercise combined with tocilizumab in visceral and epicardial adipose tissue and gastric emptying rate in abdominally obese participants:protocol for a randomised controlled trial[J]. Trials, 2018, 19(1):266.

DOI

[68]
ECKEL J. Myokines in metabolic homeostasis and diabetes[J]. Diabetologia, 2019, 62(9):1523-1528.

DOI PMID

[69]
RODRÍGUEZ A, BECERRIL S, EZQUERRO S, et al. Crosstalk between adipokines and myokines in fat browning[J]. Acta Physiologica, 2017, 219(2):362-381.

DOI

[70]
EGECIOGLU E, ANESTEN F, SCHÉLE E, et al. Interleukin-6 is important for regulation of core body temperature during long-term cold exposure in mice[J]. Biomedical Reports, 2018, 9(3):206-212.

DOI PMID

[71]
KNUDSEN J G, MURHOLM M, CAREY A L, et al. Role of IL-6 in exercise training- and cold-induced UCP1 expression in subcutaneous white adipose tissue[J]. PloS One, 2014, 9(1):e84910.

DOI

[72]
KRISTÓF E, KLUSÓCZKI Á, VERESS R, et al. Interleukin-6 released from differentiating human beige adipocytes improves browning[J]. Experimental Cell Research, 2019, 377(1/2):47-55.

DOI

[73]
GUTIERREZ A D, GAO Z G, HAMIDI V, et al. Anti-diabetic effects of GLP1 analogs are mediated by thermogenic interleukin-6 signaling in adipocytes[J]. Cell Reports Medicine, 2022, 3(11):100813.

DOI

[74]
WEDELL-NEERGAARD A S, KROGH-MADSEN R, PETERSEN G L, et al. Cardiorespiratory fitness and the metabolic syndrome:roles of inflammation and abdominal obesity[J]. PLoS One, 2018, 13(3):e0194991.

DOI

[75]
WALLENIUS V, WALLENIUS K, AHRÉN B, et al. Interleukin-6-deficient mice develop mature-onset obesity[J]. Nature Medicine, 2002, 8(1):75-79.

PMID

[76]
MINAFRA A R, CHADT A, RAFII P, et al. Interleukin 6 receptor is not directly involved in regulation of body weight in diet-induced obesity with and without physical exercise[J]. Frontiers in Endocrinology, 2022, 13:1028808.

DOI

[77]
SEÑARÍS R M, TRUJILLO M L, NAVIA B, et al. Interleukin-6 regulates the expression of hypothalamic neuropeptides involved in body weight in a gender-dependent way[J]. Journal of Neuroendocrinology, 2011, 23(8):675-686.

DOI PMID

[78]
LI G, KLEIN R L, MATHENY M, et al. Induction of uncoupling protein 1 by central interleukin-6 gene delivery is dependent on sympathetic innervation of brown adipose tissue and underlies one mechanism of body weight reduction in rats[J]. Neuroscience, 2002, 115(3):879-889.

PMID

[79]
STENLÖF K, WERNSTEDT I, FJÄLLMAN T, et al. Interleukin-6 levels in the central nervous system are negatively correlated with fat mass in overweight/obese subjects[J]. The Journal of Clinical Endocrinology and Metabolism, 2003, 88(9):4379-4383.

DOI

[80]
FERNÁNDEZ-GAYOL O, SANCHIS P, AGUILAR K, et al. Different responses to a high-fat diet in IL-6 conditional knockout mice driven by constitutive GFAP-Cre and synapsin 1-Cre expression[J]. Neuroendocrinology, 2019, 109(2):113-130.

DOI

[81]
WUEEST S, SEELIG E, TIMPER K, et al. IL-6 receptor blockade increases circulating adiponectin levels in people with obesity:an explanatory analysis[J]. Metabolites, 2021, 11(2):79.

DOI

[82]
WHITHAM M, PAL M, PETZOLD T, et al. Adipocyte-specific deletion of IL-6 does not attenuate obesity-induced weight gain or glucose intolerance in mice[J]. American Journal of Physiology-Endocrinology and Metabolism, 2019, 317(4):E597-E604.

DOI

[83]
WUEEST S, LAESSER C I, BÖNI-SCHNETZLER M, et al. IL-6-type cytokine signaling in adipocytes induces intestinal GLP-1 secretion[J]. Diabetes, 2018, 67(1):36-45.

DOI PMID

文章导航

/