特约稿

猪肠道病毒感染的致病机理与营养调控研究进展

  • 陈代文 ,
  • 伍爱民 ,
  • 余冰
展开
  • 四川农业大学动物营养研究所,动物抗病营养教育部重点实验室,成都 611130

陈代文(1962—),男,四川广安人,教授,博士,从事猪抗病营养研究。E-mail:

CHEN Daiwen, professor, E-mail:

Copy editor: 菅景颖

收稿日期: 2024-02-19

  网络出版日期: 2024-04-15

基金资助

国家自然科学基金区域创新发展联合基金(U22A20513)

Pathogenic Mechanisms and Advances in Nutritional Regulation in Porcine Enteric Virus Infections

  • CHEN Daiwen ,
  • WU Aimin ,
  • YU Bing
Expand
  • Key Laboratory for Animal Disease-Resistance Nutrition of Ministry of Education, Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China

Received date: 2024-02-19

  Online published: 2024-04-15

摘要

腹泻是养猪业面临的世界性难题,由猪肠道病毒感染导致的仔猪腹泻更是如此。营养与动物健康关系十分密切,营养干预已是防控肠道病毒感染的重要措施。营养干预的理论基础是弄清病毒的致病机制及营养对病毒及其感染与动物康复过程的调节作用。本文在简述猪主要肠道病毒特征基础上,重点围绕免疫、细胞命运和肠道微生物等方面总结了病毒的致病机制和营养调控作用研究进展,旨在为深入认识和研究营养与猪肠道病毒的关系,开发肠道保健和抗病营养技术提供参考。

本文引用格式

陈代文 , 伍爱民 , 余冰 . 猪肠道病毒感染的致病机理与营养调控研究进展[J]. 动物营养学报, 2024 , 36(4) : 2041 -2056 . DOI: 10.12418/CJAN2024.178

Abstract

Diarrhea is a global challenge in the pig farming industry, especially when it comes to piglet diarrhea caused by porcine enteric viruses. The relationship between nutrition and animal health is extremely close, and nutritional intervention has become a crucial measure in preventing and controlling enteric virus infections. The theoretical foundation of nutritional intervention lies in understanding the pathogenic mechanisms of the virus and the regulatory role of nutrition in the virus, its infection, and the animal recovery process. This article, while briefly describing the main characteristics of porcine enteric viruses, focuses on summarizing research progress in the pathogenic mechanisms of the virus and the regulatory effects of nutrition on aspects such as immune, cell fate and intestinal microbiota. The aim is to provide a reference for a deeper understanding and research on the relationship between nutrition and porcine enteric viruses, and to develop nutritional technologies for intestinal health and disease resistance.

编者按:陈代文,男,四川广安人,四川农业大学动物营养研究所教授,博士生导师。主要从事猪抗病营养研究,在营养与肠道健康、营养与病原互作等方面开展了系统研究。曾任中国畜牧兽医学会动物营养学分会第十届理事长,现任四川省饲料工业协会会长、动物抗病营养教育部重点实验室主任。先后荣获国家百千万人才工程一二层次人选、国家级教学名师、国家农业科研杰出人才、全国优秀科技工作者、四川省首批天府杰出科学家等荣誉称号及四川省科技杰出贡献奖、第十三届光华工程科技奖和全国创新争先奖奖章。主持项目获国家科技进步二等奖2项、省部级奖14项,发表论文300余篇,主编教材5部。本刊特邀陈代文教授就猪肠道病毒感染的致病机理与营养调控研究进展撰写综述,供参考。
仔猪的生长与健康直接影响整个生猪的养殖效益。疾病高发是仔猪养殖面临的主要问题,仔猪80%的疾病与肠道健康相关。肠道病毒感染是仔猪最常见的肠道疾病,严重危害仔猪的健康,全球每年造成上百亿美元的经济损失。仔猪常见的腹泻性病毒主要是猪轮状病毒(RV)、猪传染性胃肠炎病毒(TGEV)、猪流行性腹泻病毒(PEDV)、猪德尔塔冠状病毒(PDCoV)、猪急性腹泻综合征冠状病毒(SADS-CoV)等。如何通过综合措施保障仔猪肠道健康、降低发病率、提高生长效率乃是行业的重大需求。营养是一切生命活动的物质基础,营养与动物健康关系十分密切,营养已是防控肠道病毒感染的重要措施。因此,深入研究病毒的致病机制及营养与病毒的互作规律,对开发猪肠道病原感染高效药物和构建营养干预技术从而建立综合防控措施十分重要。

1 猪肠道病毒感染特征

RV是仔猪发生严重腹泻疾病相关的最主要的肠道病毒。RV是一种非包膜病毒,具有3层蛋白质,其中包含11段基因组dsRNA,编码6个结构蛋白(VP1-6)和6个非结构蛋白(Nsp1-6)。RV感染小肠成熟的肠上皮细胞和肠内内分泌细胞,导致肠上皮细胞的稳态紊乱,表现为绒毛萎缩、上皮细胞增生和凋亡以及肠上皮细胞形成大的空泡[1]
PEDV感染主要导致仔猪消化不良、严重呕吐与明显腹泻等症状,10 d内感染仔猪腹泻率与死亡率接近100%[2]。PEDV的基因组大小约为28 kb,与人冠状病毒229E(HCoV-229E)、人冠状病毒NL63(HCoV-NL63)和TGEV同属α-冠状病毒[3]
TGEV引起的仔猪感染主要通过口腔、鼻腔黏膜。病毒从口腔、鼻腔黏膜进入仔猪体内,随后通过血液循环侵入小肠内皮细胞并进行复制,导致空肠绒毛急剧缩短,出现呕吐、腹泻与脱水等临床症状;感染后无抵抗能力的仔猪的死亡率几乎达到100%;TGEV的基因组序列长度约为28.5 kb,其S蛋白与其他冠状病毒类似,决定了TGEV的组织病毒性和毒力[4]
PDCoV是2012年确定的一种冠状病毒,具有强烈的致病性,导致母猪和仔猪出现水样腹泻和呕吐,感染后乳猪的死亡率达到30%~40%[5]。由于PDCoV感染引起的临床症状与PEDV、TGEV相似,因此在首次出现时并未引起关注,对新生仔猪的危害通常被忽视。
与PEDV和TGEV类似,SADS-CoV也属于α-冠状病毒,是2017年在广东才被发现的一种新型猪冠状病毒。SADS-CoV导致5日龄以下的新生仔猪呕吐、水样腹泻、脱水和死亡,死亡率高达90%;8日龄以上的仔猪感染后的死亡率显著降低,母猪感染后则仅表现轻度腹泻;SADS-CoV基因组序列与一种与HKU2相关的蝙蝠冠状病毒(HKU2-CoV)的相似性超过90%[6],推测SADS-CoV可能是从蝙蝠传播给仔猪的跨物种传播。到目前为止,该病毒在其他国家尚未报道。

2 猪肠道病毒感染的致病机理

2.1 破坏机体的先天免疫

先天免疫是一种保守的免疫反应,对于肠道病毒的识别、限制和随后激活适应性免疫至关重要,被认为是对抗肠道病毒感染的第1道防线[7]。猪肠道病毒对宿主先天免疫的影响主要是改变宿主干扰素(IFN)的分泌及后续的抗病毒效应。如PEDV的S蛋白与表皮生长因子受体(EGFRs)相互作用,通过下游Janus激酶2-信号传导与活化转录因子3(JAK2-STAT3)信号途径削弱Ⅰ型IFN活性,从而增强PEDV复制[8]。在MARC-145细胞中外源表达PEDV编码的E、M和N蛋白能够拮抗IFN-β和干扰素调节因子3(IRF3)的活性[9]。其他猪肠道病毒也采取类似的方式来抑制IFN的产生。例如,TGEV的M和E蛋白在诱导IFN-α方面起着重要作用,体外过表达M和E蛋白的细胞诱导IFN-α的效果几乎与TGEV感染的细胞一样[10];SADS-CoV的N蛋白通过靶向TANK结合激酶1(TBK1)干扰肿瘤坏死因子受体相关因子(TRAF3)与TBK1结合,从而抑制IFN-β的产生[11];PDCoV的N蛋白通过k63连接的多聚泛素化干扰猪Riplet(pRiplet)与猪视黄酸诱导型基因-Ⅰ(pRIG-Ⅰ)的结合,从而抑制IFN-β的产生[12]
猪腹泻性病毒编码的非结构蛋白(Nsps)和辅助蛋白也参与到宿主的先天免疫调节中。研究表明,多种猪腹泻性病毒编码的Nsps具有参与病毒RNA合成、抑制先天免疫,从而为病毒入侵和复制创造机会的作用[13-14]。例如,PEDV Nsp1干扰干扰素调节因子(IRF)并通过核因子-κB(NF-κB)阻断Ⅰ型和Ⅲ型IFN的产生[15-16];PEDV Nsp3强烈抑制由视黄酸诱导基因蛋白-Ⅰ(RIG-Ⅰ)和干扰素基因刺激器(STING)激活的Ⅰ型IFN的表达[15],Nsp5基因编码的蛋白酶拮抗Ⅰ型IFN的产生和下游RIG-Ⅰ/黑素瘤分化相关基因5(MDA5)信号途径的激活[17];TGEV Nsp14在调节先天免疫方面发挥着重要作用,可激活NF-κB信号途径诱导IFN-β的产生[18];SADS-CoV Nsp1显著抑制STAT1(S727)的磷酸化,有干扰Ⅰ型IFN的作用,这种现象可能存在于所有α-冠状病毒中[19]。PDCoV的Nsp5通过降低NF-κB必需调节剂(NEMO)的表达来阻止IFN-β的产生[20],同时通过针对性剪切STAT2来阻碍干扰素刺激基因(ISG)的抗病毒功能[21]。PDCoV Nsp6与RIG-Ⅰ和MDA5相互作用,从而干扰RIG-Ⅰ/MDA5与dsRNA结合,抑制IFN-β的产生[22]
猪腹泻性病毒编码的辅助蛋白也在宿主-肠道病毒相互作用以及病毒的发病机制中发挥重要作用。作为PEDV基因组编码的唯一辅助蛋白,PEDV ORF3已被证明能够在体外抑制Ⅰ型IFN的诱导[9]。TGEV ORF7通过结合蛋白磷酸酶1催化亚单位(PP1c)来拮抗宿主抗病毒反应,从而抑制真核翻译起始因子2α(eIF2α)的磷酸化和核糖核酸酶L(RNase L)的活化[23]

2.2 改变肠细胞的命运

猪肠道病毒通常定植在猪的小肠(主要是空肠与回肠),随后导致小肠细胞命运发生改变,出现严重的细胞凋亡、自噬、铁死亡与肠道干细胞分化发育明显受阻等现象。

2.2.1 细胞凋亡

猪肠道病毒感染通过复杂的机制引发细胞凋亡,而细胞凋亡对病毒复制有不同的影响。一方面,促进凋亡可使病毒从感染细胞释放和传播;另一方面,抑制凋亡可防止细胞过早死亡,有利于病毒复制。
恒河猴轮状病毒(RRV)感染除引起细胞胱天蛋白酶-3(Caspase-3)激活、DNA断裂和聚合酶剪切现象外,同时还诱导了线粒体向细胞质释放细胞色素C,表明启动了线粒体凋亡途径[24]。其中A组轮状病毒(RVA)编码的Nsp1与Nsp4在RV诱导细胞凋亡的过程中发挥关键作用[25]
研究显示,PEDV在哺乳和断奶仔猪肠上皮细胞上诱导细胞凋亡、抑制细胞增殖,并降低肠道绒毛高度与隐窝深度的比值[26-27]。PEDV可同时激活天胱蛋白酶(Caspase)依赖与非依赖的细胞凋亡[28]。在IPEC-J2细胞中,PEDV诱导的细胞凋亡则与磷脂酰肌醇3-激酶(PI3K)/丝氨酸/苏氨酸激酶(Akt)/哺乳动物雷帕霉素靶蛋白(mTOR)途径有关[29];而在Vero细胞中,PEDV通过p53-p53上调凋亡调节因子(PUMA)信号通路诱导细胞凋亡[30]
TGEV感染导致空肠绒毛急剧缩短,凋亡是其重要的致病机理。TGEV感染上调p38丝裂原活化蛋白激酶(MAPK)/Akt2信号通路,通过外源性(由细胞表明死亡受体介导)和内源性途径(通过非死亡受体介导的刺激产生细胞内信号,并使线粒体外膜通透变化而被激活,简称由线粒体介导),以Caspase依赖和非依赖的方式激活细胞凋亡[31-32];TGEV通过上调miRNA-4331的表达抑制视网膜母细胞瘤1(RB1)的表达、促进白细胞介素-1受体辅助蛋白(IL1RAP)和激活p38 MAPK通路来加重TGEV诱导的线粒体损伤,最后导致细胞凋亡[33];p53和活性氧(ROS)介导的凋亡诱导因子(AIF)通路也参与到TGEV诱导的细胞凋亡过程中[34]
PDCoV也可通过p38 MAPK信号通路在7日龄仔猪的小肠细胞中诱导细胞凋亡,p38抑制剂在体外可以抑制PDCoV的复制[35]。体外PDCoV还可在ST细胞上通过内在线粒体途径诱导Caspase依赖性细胞凋亡[36]。SADS-CoV通过Caspase依赖的外源性和内源性途径诱导细胞凋亡,Caspase抑制剂的使用抑制了SADS-CoV诱导的细胞凋亡,同时也减少了SADS-CoV的复制[37]

2.2.2 细胞自噬

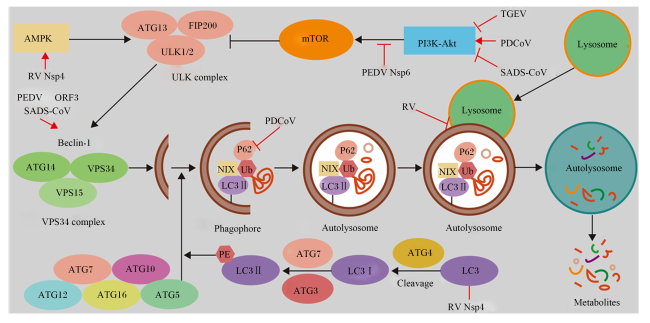
自噬是一种自我降解且高度调节的过程,对肠道病毒感染具有先天保护作用,因为自噬的降解过程可以杀死肠道病毒并将其呈递给免疫系统[38]。猪肠道病毒可通过多种方式抑制或“劫持”自噬以进行病毒的复制与传播。研究表明,RV、PEDV、TGEV和PDCoV可能通过诱导细胞自噬来促进自身病毒的复制[39],细胞自噬与猪肠道病毒的互作关系见图1。RV引发腹泻的完整机制尚不清楚,但在一定程度上是由Nsp4触发的,Nsp4刺激内质网腔钙释放到宿主细胞的胞浆中,从而刺激钙/钙调神经酰胺激酶激酶-β,该激酶磷酸化腺苷酸活化蛋白激酶(AMPK)以启动自噬[40]。但是,RV诱导的自噬体无法与溶酶体融合,阻碍了自噬体的成熟,这可能有助于RV逃避自噬的抗病毒功能。PEDV编码的Nsp6蛋白通过抑制PI3K/Akt/mTOR途径诱导自噬[39];而ORF3蛋白则通过蛋白激酶样内质网激酶(PERK)和肌醇需要激酶1(IRE1)途径激活内质网应激,PEDV ORF3是一种定位于内质网的跨膜蛋白,通过上调葡萄糖调节蛋白78(GRP78)和激活PERK-eIF2α信号通路触发内质网应激,诱导LC3-Ⅰ向LC3-Ⅱ的转化,随后发生自噬[41-42]。TGEV则通过激活线粒体自噬,以对抗氧化应激和细胞凋亡,从而促进自身病毒的复制[43]。有趣的是,多西环素可以诱导线粒体自噬,并促进TGEV在IPEC-J2细胞中的复制[44]。在PK-15和ST细胞中,TGEV感染也可诱导自噬,但自噬可负面调节TGEV复制[45]
图1 细胞自噬与猪肠道病毒的互作关系

RV:猪轮状病毒 porcine rotavirus;PEDV:猪流行性腹泻病毒 porcine epidemic diarrhea virus;SADS-CoV:猪急性腹泻综合征冠状病毒 swine acute diarrhea syndrome coronavirus;TGEV:猪传染性胃肠炎病毒 transmissible gastroenteritis virus of swine;PDCoV:猪德尔塔冠状病毒 porcine delta coronavirus;AMPK:腺苷酸活化蛋白激酶 adenosine 5'-monophosphate (AMP)-activated protein kinase;Nsp4:非结构蛋白4 non-structural protein 4;Beclin-1:苄氯素-1;ATG14:自噬相关基因14 autophagy related gene 14;VPS34:液泡分选蛋白34 vacuolar protein sorting 34;VPS15:液泡分选蛋白15 vacuolar protein sorting 15;VPS34 complex:VPS34复合体;ATG7:自噬相关基因7 autophagy related gene 7;ATG10:自噬相关基因10 autophagy related gene 10;ATG12:自噬相关基因12 autophagy related gene 12;ATG16:自噬相关基因16 autophagy related gene 16;ATG5:自噬相关基因5 autophagy related gene 5;ATG13:自噬相关基因13 autophagy related gene 13;FIP200:200 kD的黏附斑激酶家族相互作用蛋白 focal adhesion kinase family interacting protein of 200 kD;ULK1/2:unc-51样激酶1/2 unc-51-like kinase 1/2;ULK complex:ULK复合体;NIX:NIP3样蛋白X NIP3-like protein X;Ub:泛素 ubiquitin;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;Nsp6:非结构蛋白6 non-structural protein 6;PI3K:磷脂酰肌醇3-激酶 phosphoinositide 3-kinase;Akt:丝氨酸/苏氨酸激酶 serine/threonine kinase;Lysosome:溶酶体;Phagophore:吞噬泡;Autolysosome:自噬溶酶体;PE:磷脂酰乙醇胺 phosphatidylethanolamine;LC3-Ⅱ:微管关联蛋白轻链3-Ⅱ microtubule-associated protein light chain 3-Ⅱ;LC3-Ⅰ:微管关联蛋白轻链3-Ⅰ microtubule-associated protein light chain 3-Ⅰ;LC3:微管关联蛋白轻链3 microtubule-associated protein light chain 3;ATG3:自噬相关基因3 autophagy related gene 3;ATG4:自噬相关基因4 autophagy related gene 4;Cleavage:分裂;Metabolites:代谢物。

Fig.1 Interaction between autophagy and porcine enterovirus[39-49]

在PDCoV感染的IPEC-J2细胞中,利用蛋白质组学研究发现,自噬相关通路PI3K/Akt/mTOR被激活,表明PDCoV感染诱导了IPEC-J2细胞中的自噬[46]。此外,在LLC-PK1细胞中的研究则表明,PDCoV可能通过诱导自噬增强病毒的复制和感染[47]。SADS-CoV表达的病毒膜相关木瓜蛋白酶样蛋白酶与宿主的GRP78相互作用后,通过IRE1-c-Jun氨基末端激酶(JNK)-Beclin1信号通路诱导自噬[48]。SADS-CoV也可通过Akt/mTOR通路诱导自噬促进其增殖[49]

2.2.3 细胞铁死亡

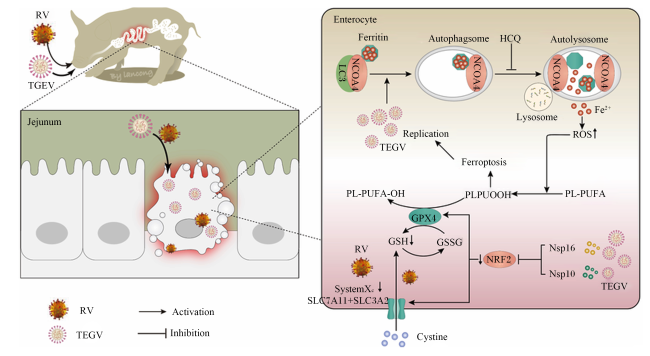
铁死亡是一种铁依赖性的以细胞内ROS堆积为特征的非凋亡形式的细胞死亡,由Dixon等[50]于2012年提出。尽管在癌症、炎症、神经系统疾病和发育中细胞铁死亡是一个热门话题,但其在肠道病毒感染中的作用被严重低估了[51]。事实上,越来越多的证据表明,肠道病毒感染与细胞铁死亡密切相关[52]。肠道病毒操纵铁死亡以从宿主细胞内获得足够多的铁,为自身病毒基因组的复制、蛋白质的翻译、毒力的形成提供条件。新型冠状病毒(SARS-CoV-2)通过抑制还原型谷胱甘肽(GSH)或谷胱甘肽过氧化物酶4(GPX4)表达诱导铁死亡以进行复制或传播;此外,SARS-CoV-2感染会导致人类SAN样起搏器细胞功能障碍并诱导铁死亡[53]。乙型肝炎病毒(HBV)通过下调溶质载体家族7成员11(SLC7A11)的表达,促使肝细胞发生铁死亡,从而诱导急性肝损伤[54]。与人和小鼠类似,猪肠道病毒也可以靶定于其他铁代谢关键调控蛋白,如TGEV与PEDV均可利用转铁蛋白受体1(TFR1)作为其入侵宿主的受体[55]。病毒对宿主TFR1的改变很容易破坏宿主细胞内铁的稳态平衡,导致细胞铁死亡发生。本实验室前期针对TGEV的研究发现,TGEV感染显著激活猪空肠上皮细胞铁死亡,导致空肠绒毛急剧缩短,抑制细胞铁死亡可明显减少TGEV的感染与复制,从而缓解TGEV感染造成的细胞损伤;Banerjee等[56]的研究显示,RV感染通过抑制SLC7A11-AS1/xCT轴激活细胞铁死亡,以促进其自身复制与传播(图2)。最新的研究发现,铁死亡激活剂伊拉斯汀(erastin)与Ras选择性致死小分子3(RSL3)在进入细胞后显著抑制了PEDV的复制[57-58]。其他猪肠道病毒与细胞铁死亡的互作关系几乎没有被报道,因为新探索的细胞铁死亡方式尚未在养殖动物领域进行研究。
图2 细胞铁死亡与猪肠道病毒的互作关系

RV:猪轮状病毒 porcine rotavirus;TGEV:猪传染性胃肠炎病毒 transmissible gastroenteritis virus of swine;Jejunum:空肠;Activation:激活;Inhibition:抑制;Enterocyte:肠上皮细胞;Ferritin:铁蛋白;Autophagsome:自噬小体;LC3:微管关联蛋白轻链3 microtubule-associated protein light chain 3;NCOA4:核受体共激活因子4 nuclear receptor coactivator 4;Ferroptosis:铁死亡;Replication:复制;Lysosome:溶酶体;ROS:活性氧 reactive oxygen species;PL-PUFA:磷脂-多不饱和脂肪酸 phospholipid-polyunsaturated fatty acids;PLPUOOH:多不饱和脂肪酸磷脂氢过氧化物 polyunsaturated fatty acids-containing phospholipid hydroperoxides;PL-PUFA-OH:多不饱和脂肪酸磷脂醇 polyunsaturated fatty acids-phospholipid alcohol;SystemXc:胱氨酸/谷氨酸逆向转运蛋白 cystine/glutamate antiporter;SLC7A11:溶质载体家族7成员11 solute carrier family 7 member 11;SLC3A2:溶质载体家族3成员2 solute carrier family 3 member 2;GPX4:谷胱甘肽过氧化物酶4 glutathione peroxidase 4;GSH:谷胱甘肽 glutathione;GSSG:氧化型谷胱甘肽 oxidized glutathione;NRF2:核因子E2相关因子2 nuclear factor erythroid-2-related factor 2;Nsp16:非结构蛋白16 non-structural protein 16;Nsp10:非结构蛋白10 non-structural protein 10;Cystine:胱氨酸。

Fig.2 interaction between ferroptosis and porcine enterovirus[56]

2.2.4 肠上皮细胞的更新与修复

肠上皮是肠道病毒和共生菌的物理屏障,在维持宿主与肠道微环境之间的平衡中发挥着重要作用[59]。在哺乳动物的组织中,肠上皮细胞的生命周期只有3~5 d,其自我更新能力非常强,特别是在肠道损伤的情况下,这种能力依赖于小肠隐窝中的肠道干细胞[60]
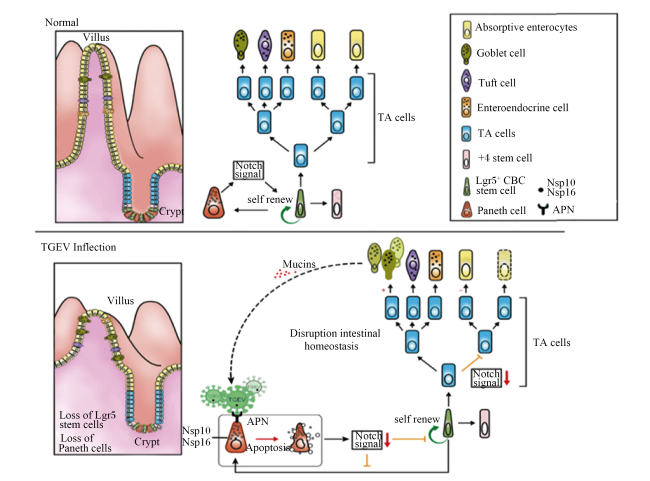
猪肠道病毒经消化道或呼吸道感染猪,主要病变部位在小肠,通常表现为小肠绒毛的急剧缩短,严重影响肠道的完整性与黏膜屏障功能的发挥,导致“肠道稳态”失衡。例如,TGEV感染仔猪后,TGEV率先进入潘氏细胞[具有TGEV的结合受体氨基肽酶N(APN)]并诱导ROS大量产生,随后导致潘氏细胞大量凋亡,严重抑制Notch信号的配体Delta样配体4(Dii4)以及下游Notch信号分子Hes5的表达,Notch的减少可促进肠道干细胞向杯状细胞分化,同时抑制肠吸收型细胞的产生,最后导致肠绒毛急剧萎缩(图3)[61]。RV感染会破坏绒毛顶端的上皮细胞,但不会直接损害肠道干细胞,RV还会感染簇状细胞,簇状细胞通过干扰素相关途径对病毒感染产生响应[62]
图3 TGEV介导的肠道内稳态破坏的机制图

Normal:正常;Villus:绒毛;Crypt:隐窝;Notch signal:Notch信号;自我更新;Absorptive enterocytes:吸收型肠上皮细胞;Goblet cell:杯状细胞;Tuft cell:簇细胞;Enteroendocrine cell:肠内分泌细胞;TA cells:过渡放大细胞 transient amplifying cells;+4 stem cell:+4干细胞;Lgr5+ CBC stem cell:Lgr5+隐窝基底柱状干细胞 Lgr5+ crypt-base columnar stem cell;Paneth cell:潘氏细胞;Nsp10:非结构蛋白10 non-structural protein 10;Nsp16:非结构蛋白16 non-structural protein 16;APN:氨基肽酶N aminopeptidase N;TGEV:猪传染性胃肠炎病毒 transmissible gastroenteritis virus of swine;Inflection:感染;Loss of Lgr5 stem cells:Lgr5干细胞减少;Loss of Paneth cells:潘氏细胞减少;Apoptosis:凋亡;Mucins:黏蛋白;Disruption intestinal homeostasis:破坏肠道稳态。

Fig.3 Model of proposed mechanism of TGEV-mediated disruption of intestinal homeostasis[61]

2.3 扰乱肠道微生物平衡和代谢

在哺乳动物的胃肠道内存在约1014个微生物,对人类与动物的健康以及宿主免疫系统的发育至关重要[63]。肠道微生物可影响宿主淋巴结的发育、免疫细胞成熟、抗菌肽的产生、炎症的激活以及上皮的功能,还影响宿主对维生素、激素和神经递质的生物合成,以及短链脂肪酸(SCFAs)与次级胆汁酸等细菌代谢产物的生成,从而影响肠道的屏障功能与机体整体的健康[64]
肠道病毒感染动物后直接与肠道微生物接触,一方面,肠道微生物可以充当物理屏障来阻碍病毒感染;另一方面,肠道病毒也可利用肠道微生物来促进自身的复制、发病和传播[65]。例如,仔猪在PEDV感染期间,拟杆菌属(Bacteroides)、丁酸梭菌(Clostridium butyricum)和嗜冷杆菌属(Psychrobacter)等有益菌的丰度减少,而肠球菌属(Enterococcus)、梭杆菌属(Fusobacterium)、埃希氏菌属(Escherichia)和脱硫弧菌科(Desulfovibrionaceae)等有害菌的丰度增加[66]。值得注意的是,已知的拟杆菌属、丁酸梭菌(Clostridium butyricum)和柔嫩梭菌(Clostridium leptum)可分泌短链脂肪酸(SCFAs)[67-68],这些SCFAs已被证明通过G蛋白耦联受体(GPRs)保护肠道完整性,帮助修复受损的肠黏膜,并减轻炎症引起的损害[69-70]。与此同时,某些细菌在PEDV感染后在肠道中增多,可能会进一步加剧肠道损伤。例如,已知的肠球菌属能引起人体发炎和多种感染,如尿路感染、细菌性心内膜炎和脑膜炎[71];梭杆菌门(Fusobacteria)分泌的白细胞毒素可阻碍机体清除细菌的能力,并导致组织破坏[72]。肠致病性大肠杆菌(EPEC)已被发现可干扰吞噬作用,破坏细胞运输,诱导细胞凋亡,并破坏细胞连接;肠产毒性大肠杆菌(ETEC)可抑制抗菌肽的产生,并通过鞭毛和外膜蛋白紧密结合到宿主细胞上[73]。SADS-CoV可利用微生物组来源的代谢产物胆汁酸迅速在肠道微环境中建立病毒感染并加速复制[74]。肠道微生物可能通过增强病毒的热稳定性[75]、增加病毒附着到宿主细胞[76]、促进病毒基因重组[77]、促进病毒免疫逃避[78]等机制加剧病毒感染。

3 营养干预猪肠道病毒感染的机理

营养是动物生产和健康维护的物质基础,对机体的健康有着深远的影响,因为特定营养素的含量、性质和摄入时间与机体代谢、免疫及主要疾病的发展进程密切相关[79]。营养与肠道病毒感染存在明显的互作关系,营养主要通过以下4条途径干预肠道病毒感染。

3.1 影响免疫功能

营养素供给的量和时机被认为是机体健康和各种疾病的关键调节因素,并涉及与黏膜免疫系统的复杂相互作用。营养素可以影响猪免疫系统的发育和免疫细胞的成熟,蛋白质、氨基酸、维生素、微量元素等均可影响免疫细胞功能。这些营养素通过NF-κB、MAPK、线粒体抗病毒信号蛋白(MAVS)、RIG-Ⅰ、Toll样受体(TLR)、核苷酸结合寡聚化结构域(NOD)等信号通路影响免疫活性因子的表达,改善仔猪空肠组织免疫反应,从而调控机体的特异性抗病力和一般抗病力。
饲粮添加适宜维生素D显著缓解RV攻毒仔猪肠道绒毛的萎缩,显著提高血清IFN-β水平,降低白细胞介素-6(IL-6)和白细胞介素-2(IL-2)水平,显著提高RV感染细胞的RIG-Ⅰ和IFN-β等抗病基因的表达水平[80]。在RV感染的仔猪奶粉中添加人乳低聚糖(HMO),血液中PBMC嗜碱细胞数量增加5倍,肠系膜淋巴结(MLN)中效应性记忆T细胞数量增加36%,浆细胞样树突状细胞数量增加3倍,正是这些免疫细胞群的改变介导了HMO对RV感染易感性的影响[81]。视黄酸(RA)增强了猪肠黏膜免疫[肠黏膜免疫球蛋白A(IgA)滴度]和系统免疫[血清免疫球蛋白G(IgG)滴度],显著改善了TGEV疫苗的预防效果[82]
硒代蛋氨酸对PDCoV的抑制与其增强细胞免疫(如上调MAVS表达、促进IRF3磷酸化和IFN-α/β产生)和抗氧化能力[如增加谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶(SOD)活性以及降低过氧化氢(H2O2)含量]有关[83]。胆酸是由肝脏胆固醇氧化产生并在肠道经微生物代谢的产物,与肠道稳态密切相关。在体外细胞培养中,鹅去氧胆酸(CDCA)和石胆酸(LCA)已被证明干扰PDCoV的复制,CDCA和LCA通过G蛋白偶联受体-IFN-λ3-IFN刺激基因15(ISG15)信号通路发挥作用,诱导IFN-λ3和ISG15的产生,在进入后阶段抑制PDCoV复制[84]
营养干预也可显著缓解SADS-CoV感染带来的肠道损失。例如,芦荟提取物可以在体外Vero和IPI-FX细胞中强烈抑制SADS-CoV的感染;芦荟提取物来源的大黄素抗SADS-CoV活性可能是通过阻断病毒附着和激活TLR3-IFN-λ3-ISG15信号通路实现的[85]

3.2 调节肠道微生物

肠道微生物在宿主-营养素交流中发挥重要的枢纽作用。研究表明,营养素可改变肠道微生物的平衡和代谢,而微生物是保障仔猪肠道健康、缓解肠道病毒感染危害的重要因素。例如,PEDV感染打破了仔猪空肠内容物和空肠黏膜中微生物群的平衡,未感染的仔猪空肠中厚壁菌门(Firmicutes)的丰度高于感染的仔猪,而变形菌门(Proteobacteria)的丰度低于感染的仔猪;主坐标分析显示了不同组别之间空肠微生物群的显著差异;LEfSe分析确定了唾液乳杆菌(Lactobacillus salivarius)可作为PEDV感染在种水平上的潜在生物标志物;体外细胞试验显示Lactobacillus salivarius能显著抑制PEDV对IPEC-J2细胞的感染,并降低GRP78的表达,减少PEDV感染引起的内质网应激[86]。另一项研究也表明,PEDV感染导致仔猪肠道微生物群严重失调,而N-乙酰半胱氨酸在调节PEDV感染期间的肠道微生物群方面发挥了积极作用[87]。在新生仔猪配方奶粉中添加4 g/L HMO和益生元虽未能阻止RV感染的发生,但在一定程度上通过调节结肠菌群和对RV感染的免疫应答减少了仔猪RV感染引起的腹泻持续时间[88]

3.3 直接干预病毒

抗病毒药物的机制可以分为2类:一类针对参与病毒生命周期的重要宿主因子,另一类针对病毒本身。日本地木耳提取物(HJ)对PEDV的体内外抗病毒效果显著,HJ主要在病毒生命周期的后期直接抑制PEDV感染,这种效果不仅与HJ可以直接抑制病毒有关,还与HJ可调节肠道微生物群的结构有密切联系[89]。此外,麦角淄醇过氧化物对PEDV感染具有显著的抑制作用,它能够显著抑制Vero细胞中PEDV生命周期的多个阶段,包括内吞、复制和释放,并且能够直接失活PDCoV的传染性[90]。番茄甙碱是从西红柿的皮和叶子中提取的一种类固醇生物碱,可以与PEDV 3C样蛋白酶(3CLpro)结合并抑制3CLpro的活性,对PEDV的复制表现出明显的抑制效果[91]。槲皮素是一种黄酮类分子,槲皮素7-鼠李糖苷通过干扰PEDV复制影响PEDV感染的初始阶段[92]。芦荟提取物可以抑制PEDV在体外和体内的复制,在PEDV生命周期的后期阶段产生抑制作用,还可以在不影响病毒基因组和S1蛋白的情况下直接失活病毒颗粒[93]。Caerin1.1是一种阳离子两栖动物抗菌肽,具有25个氨基酸,它可以破坏病毒膜的完整性并直接失活PEDV[94]
茶叶的提取物儿茶素在体外对TGEV的增殖具有直接抑制作用[95]。姜黄素是姜黄中的主要多酚化合物,对TGEV感染的早期阶段,特别是对病毒吸附具有抑制作用,并且还对TGEV具有直接的灭活作用[96]。地木耳素通过抑制3CLpro活性来抑制TGEV复制,更重要的是3CLpro的结合结构域在α-冠状病毒中高度保守,这意味着地木耳素可能是一种全面抗α-冠状病毒的物质[97]。枯草芽孢杆菌表面活性肽可以通过直接作用于病毒而不破坏病毒完整性来灭活TGEV,它作用于病毒脂质,增加脂质单分子层的正曲率,从而抑制病毒与细胞膜的融合[98]。麦角淄醇过氧化物阻断了PDCoV的附着和进入,并在病毒进入后的早期和中期阶段发挥作用;此外,它还可以直接灭活PDCoV的感染力并缓解细胞凋亡[47]

3.4 改变肠细胞命运

肠道病毒感染破坏了肠道的完整性,扰乱了肠道的消化和吸收能力,增加了肠道氧化应激和疾病易感性。改善肠道发育和健康对于提高断奶仔猪的消化能力和疾病抵抗力至关重要,营养干预是增强断奶仔猪肠道健康的一种重要的措施[99]
饲粮中添加乳糖增加了断奶仔猪的生长性能,并有缓解RV感染引起的腹泻的趋势,这是由于乳糖改善了营养物质的利用、增强了肠道屏障功能和免疫力[100]。饲粮中添加香菇多糖(lentinan,LNT)或鼠李糖乳杆菌GG(Lactobacillus rhamnosus GG,LGG)可明显缓解仔猪RV感染引起的腹泻,这可能是由于LNT与LGG提高了机体的抗氧化能力、减少了细胞凋亡并改善了肠道微生物群落,从而增强了肠道屏障[101-102]。饲粮中添加1%亮氨酸(Leu)可通过激活mTOR信号通路减轻RV感染引起的断奶仔猪空肠黏膜中黏液产生减少和高尔基细胞数量减少[103]。饲粮中添加苹果果胶寡糖(APOS)可通过改善抗氧化能力,减轻RV感染介导的内质网应激、自噬和凋亡的发生来预防RV感染仔猪的腹泻和肠道屏障功能的损伤[104]。维生素D也具有类似的抗病毒作用,饲粮中添加5 000 IU的维生素D3可通过调节自噬成熟和抗菌肽基因表达来减轻RV感染带来的仔猪肠道损伤[105]
银杏果皮多糖通过作用于病毒的附着和入侵有效缓解PEDV诱导的Vero细胞病理效应[106]。过氧化麦角固醇可限制PEDV的内吞、复制和释放,并可失活PEDV颗粒和减轻PEDV诱导凋亡的能力[90]。辣木叶水提物(MOE)能够抑制PEDV诱导的氧化应激,恢复GSH-Px的活性并抑制细胞凋亡[107]。氯化锂可以阻碍PEDV的入侵和复制,并减轻细胞凋亡[108]。PEDV通过诱导G0/G1期停滞以促进病毒复制,而1,25-二羟维生素D3[1,25(OH)2D3]可通过细胞外调节蛋白激酶(ERK)1/2途径调控细胞周期进程,减少G0/G1期并扩大S期,从而产生抗PEDV的效果,1,25(OH)2D3还可改善PEDV引起的细胞凋亡和线粒体损伤,降低IPEC-J2细胞中PEDV核衣壳基因和蛋白质水平[109]
丁香酚不仅能提高TGEV感染仔猪血清中免疫球蛋白G(IgG)的水平,还能显著降低血清中炎性细胞因子肿瘤坏死因子-α(TNF-α)的水平,减轻细胞的病变效应与炎症反应,丁香酚通过增加闭锁小带蛋白-1(ZO-1)和闭合蛋白(Occludin)的表达来缓解TGEV感染诱导的肠道损伤[110],其机理可能与丁香酚抑制了TGEV感染诱导的肠上皮细胞氧化应激、细胞凋亡和降低NLRP3炎症小体的活化有关[111-112]。全反式视黄酸(ATRA)是维生素A的活性代谢物,ATRA通过改善抗氧化能力减轻了TGEV诱导的IPEC-J2细胞凋亡,机制与抑制ROS介导的p38 MAPK信号通路和TGEV介导的维甲酸诱导基因蛋白样受体(RLRs)/NF-κB信号通路的激活有关[113-114]。此外,本实验室研究发现ATRA还可通过抑制铁自噬,降低TGEV感染介导的细胞铁死亡,从而缓解TGEV感染介导的肠道损伤。研究显示,枯草芽孢杆菌可将TGEV颗粒附着在其表面,从而降低病毒与宿主细胞结合的数量[98];此外,枯草芽孢杆菌表面活性肽还通过上调TLR6的表达并降低凋亡细胞的百分比,从而增强IPEC-J2细胞的抵抗力[115]
表1总结了具有抗猪肠道病毒活性的部分营养物质和生物活性物质可能具有的作用机制。
表1 具有抗猪肠道病毒活性的营养物质和生物活性物质及其可能的作用机制

Table 1 Nutrients and bioactive substances with anti-porcine enteric virus activity and their possible action mechanisms

项目
Items
病毒名称
Virus names
抗病毒机制
Antiviral mechanisms
参考文献
References
维生素D VD RV 激活RIG-Ⅰ和IFN-β等抗病基因的表达,调节
自噬成熟和猪抗菌肽基因表达
[80,105]
人乳低聚糖 HMO RV 增加T细胞、NK细胞、浆细胞样树突状
细胞和PBMC嗜碱细胞的数目
[81]
香菇多糖 LNT RV 增强机体抗氧化能力,减少细胞凋亡 [101]
鼠李糖乳杆菌GG LGG RV 增强机体抗氧化能力,减少细胞凋亡 [102]
亮氨酸 Leu RV 激活mTOR信号通路 [103]
苹果果胶寡糖 APOS RV 改善抗氧化能力,减轻内质网
应激、细胞自噬和凋亡
[104]
视黄酸 RA TGEV 增强肠黏膜免疫和系统免疫,抑制促炎细胞
因子的释放,抑制细胞凋亡、自噬与铁死亡
[82,113-114]
儿茶素 Catechin TGEV 促进机体抗氧化 [95]
姜黄素 Curcumin TGEV 抑制病毒吸附和直接灭活病毒 [96]
地木耳素 Hypericin TGEV 抑制3CLpro活性 [97]
丁香酚 Eugenol TGEV 减轻细胞病变效应,抑制炎症
反应、细胞凋亡与焦亡
[110-112]
枯草芽孢杆菌表面活性肽
Surfactin from Bacillus subtilis
TGEV 抑制病毒与细胞膜的融合
上调TLR6的表达并降低细胞凋亡
[98,115]
唾液乳杆菌 Lactobacillus salivarius PEDV 调节肠道微生物群,抑制内质网应激 [86]
N-乙酰半胱氨酸
N-acetylcysteine
PEDV 调节肠道微生物菌群 [87]
日本地木耳提取物 HJ PEDV 病毒生命周期的后期直接抑制与
调节肠道微生物群
[89]
麦角淄醇过氧化物
Ergosterol peroxide
PEDV 显著抑制PEDV的内吞、复制和释放,
限制病毒的内吞、复制和释放,减轻细胞凋亡
[90]
番茄甙碱 Tomatidine PEDV 与3CLpro结合后,显著抑制3CLpro的活性 [91]
槲皮素7-鼠李糖苷
Quercetin 7 rhamnoside
PEDV 影响PEDV感染的初始阶段 [92]
芦荟提取物 Aloe extract PEDV 直接失活病毒颗粒 [93]
Caerin1.1 PEDV 破坏病毒膜的完整性并直接失活PEDV [94]
银杏果皮多糖
Polysaccharide from Ginkgo biloba exocarp
PEDV 抑制病毒的附着和入侵 [106]
辣木叶水提物 MOE PEDV 减少氧化应激,抑制细胞凋亡 [107]
氯化锂 Lithium chloride PEDV 阻碍PEDV的入侵和复制,并减轻细胞凋亡 [108]
1,25-二羟维生素D3
1,25(OH)2D3
PEDV 调控细胞周期进程,减少细胞
凋亡和线粒体损伤
[109]
硒代蛋氨酸 Selenomethionine PDCoV 增强细胞免疫和抗氧化能力 [83]
鹅去氧胆酸 CDCA PDCoV 激活IFN-λ3和ISG15的表达 [84]
石胆酸 LCA PDCoV 通过G蛋白偶联受体-IFN-λ3-ISG15
信号通路发挥作用
[84]
麦角淄醇过氧化物
Ergosterol peroxide
PDCoV 阻断病毒附着、进入和直接灭活病毒 [47]
大黄素 Emodin SADS-CoV 阻断病毒附着和激活TLR3-IFN-λ3-
ISG15信号通路
[85]

RV:猪轮状病毒 porcine rotavirus;TGEV:猪传染性胃肠炎病毒 transmissible gastroenteritis virus of swine;PEDV:猪流行性腹泻病毒 porcine epidemic diarrhea virus;PDCoV:猪德尔塔冠状病毒 porcine delta coronavirus;SADS-CoV:猪急性腹泻综合征冠状病毒 swine acute diarrhea syndrome coronavirus;RIG-Ⅰ:视黄酸诱导基因蛋白-Ⅰ retinoic acid inducible gene-Ⅰ;IFN-β:β-干扰素 interferon-β;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;3CLpro:3C样蛋白酶 3C-like protease;TLR6;Toll样受体6 Toll-like receptor 6;TLR3:Toll样受体3 Toll-like receptor 3;IFN-λ3:λ3-干扰素 interferon-λ3;ISG15:干扰素刺激基因15 interferon-stimulated gene 15。

4 小结与展望

猪的健康是高效绿色生产的前提和保障。实际生产中,肠道疾病占整个猪病的2/3,成为猪健康问题的重点和难点。肠道病毒感染是导致肠道疾病的重要因素,动物医学已做了大量研究,构建了系统防控技术,包括系列疫苗和药物,但生产中问题依然突出,通过多学科交叉融合,从不同角度研究致病机制和防控措施十分必要。近几年,营养与肠道病毒互作研究正在兴起,进展迅速。本文总结了这方面的研究进展,从机体免疫、肠道微生物、肠道细胞命运3个方面解析了肠道病毒的致病机制,而营养与这3个方面的关系十分密切,因而可以干预疾病的发生发展过程和结果,影响病毒感染的危害程度和康复程度。营养可影响免疫系统的发育和免疫反应的效率;决定动物的抗病力;调节肠道微生物,影响微生物平衡及代谢,保障肠道健康;改变肠细胞的命运,修复受损细胞。此外,营养还可直接作用于病毒,影响病毒复制和传播,减弱病毒致病力。
然而,由于营养与病毒互作研究历史不长以及病毒生物学结构和致病机制的复杂性,很多问题尚不清楚,完整成熟的实践方案尚未建立,未来需要深入研究的内容包括病毒分子生物结构及其变异性、致病靶点及分子机制、感染免疫学机制、被感染动物细胞命运及信号通路、肠道微生物与病毒互作机制、病毒感染对营养物质代谢的影响、干预致病过程和修复损伤组织的营养素及其需要量、抗感染系统营养技术等。尽管需要研究的内容很多,但已有研究成果可以及时用于指导生产实践,未来研究可以采用边研究边应用的思路,不断完善应用方案。营养抗病在应用层面的基本措施是:根据动物健康状况和感染情况,调整营养物质供给量,合理使用饲料添加剂,优化饲料营养素搭配,配制抗感染专用饲料添加剂预混料或全价配合饲料,科学饲养,使动物采食量与动物健康状况相匹配。科学应用研究成果,既可增强动物免疫力和抗病力,减少发病,又可干预致病过程,缓解感染的危害,从而实现养猪业的高效健康生产。
[1]
AMIMO J O, RAEV S A, CHEPNGENO J, et al. Rotavirus interactions with host intestinal epithelial cells[J]. Frontiers in Immunology, 2021, 12:793841.

DOI

[2]
SUN Y S, GONG T, WU D D, et al.Isolation,identification, and pathogenicity of porcine epidemic diarrhea virus[J]. Frontiers in Microbiology, 2023, 14:1273589.

DOI

[3]
TANG X C, ZHANG J X, ZHANG S Y, et al. Prevalence and genetic diversity of coronaviruses in bats from China[J]. Journal of Virology, 2006, 80(15):7481-7490.

PMID

[4]
GUO R L, FAN B C, CHANG X J, et al. Characterization and evaluation of the pathogenicity of a natural recombinant transmissible gastroenteritis virus in China[J]. Virology, 2020, 545:24-32.

DOI PMID

[5]
WANG L Y, BYRUM B, ZHANG Y. Porcine coronavirus HKU15 detected in 9 US states,2014[J]. Emerging Infectious Diseases, 2014, 20(9):1594-1595.

DOI

[6]
ZHOU P, FAN H, LAN T, et al. Fatal swine acute diarrhoea syndrome caused by an HKU2-related coronavirus of bat origin[J]. Nature, 2018, 556(7700):255-258.

DOI

[7]
HSU A P, HOLLAND S M. Host genetics of innate immune system in infection[J]. Current Opinion in Immunology, 2022, 74:140-149.

DOI PMID

[8]
YANG L J, XU J Y, GUO L J, et al. Porcine epidemic diarrhea virus-induced epidermal growth factor receptor activation impairs the antiviral activity of type I interferon[J]. Journal of Virology, 2018, 92(8):e02095-17.

[9]
ZHANG Q Z, SHI K C, YOO D W. Suppression of type I interferon production by porcine epidemic diarrhea virus and degradation of CREB-binding protein by nsp1[J]. Virology, 2016, 489:252-268.

DOI PMID

[10]
BAUDOUX P, CARRAT C, BESNARDEAU L, et al. Coronavirus pseudoparticles formed with recombinant M and E proteins induce alpha interferon synthesis by leukocytes[J]. Journal of Virology, 1998, 72(11):8636-8643.

PMID

[11]
DING Z, FANG L R, JING H Y, et al. Porcine epidemic diarrhea virus nucleocapsid protein antagonizes beta interferon production by sequestering the interaction between IRF3 and TBK1[J]. Journal of Virology, 2014, 88(16):8936-8945.

DOI PMID

[12]
JI L K, LI S S, ZHU W X, et al. Porcine deltacoronavirus nucleocapsid protein suppressed IFN-β production by interfering porcine RIG-I dsRNA-binding and K63-linked polyubiquitination[J]. Frontiers in Immunology, 2019, 10:1024.

DOI PMID

[13]
AHN D G, CHOI J K, TAYLOR D R, et al. Biochemical characterization of a recombinant SARS coronavirus nsp12 RNA-dependent RNA polymerase capable of copying viral RNA templates[J]. Archives of Virology, 2012, 157(11):2095-2104.

DOI

[14]
HU T T, CHEN C, LI H Y, et al. Structural basis for dimerization and RNA binding of avian infectious bronchitis virus nsp9[J]. Protein Science, 2017, 26(5):1037-1048.

DOI PMID

[15]
ZHANG Q Z, MA J Y, YOO D W. Inhibition of NF-κB activity by the porcine epidemic diarrhea virus nonstructural protein 1 for innate immune evasion[J]. Virology, 2017, 510:111-126.

DOI PMID

[16]
ZHANG Q Z, KE H Z, BLIKSLAGER A, et al. Type III interferon restriction by porcine epidemic diarrhea virus and the role of viral protein nsp1 in IRF1 signaling[J]. Journal of Virology, 2018, 92(4):e01677-17.

[17]
WANG D, FANG L R, SHI Y L, et al. Porcine epidemic diarrhea virus 3C-like protease regulates its interferon antagonism by cleaving NEMO[J]. Journal of Virology, 2016, 90(4):2090-2101.

DOI PMID

[18]
ZHOU Y R, WU W, XIE L L, et al. Cellular RNA helicase DDX1 is involved in transmissible gastroenteritis virus nsp14-induced interferon-beta production[J]. Frontiers in Immunology, 2017, 8:940.

DOI PMID

[19]
SHEN Z, YANG Y L, YANG S Q, et al. Structural and biological basis of alphacoronavirus nsp1 associated with host proliferation and immune evasion[J]. Viruses, 2020, 12(8):812.

DOI

[20]
ZHU X Y, FANG L R, WANG D, et al. Porcine deltacoronavirus nsp5 inhibits interferon-β production through the cleavage of NEMO[J]. Virology, 2017, 502:33-38.

DOI PMID

[21]
ZHU X Y, WANG D, ZHOU J W, et al. Porcine deltacoronavirus nsp5 antagonizes type I interferon signaling by cleaving STAT2[J]. Journal of Virology, 2017, 91(10):e00003-17.

[22]
FANG P X, FANG L R, REN J, et al. Porcine deltacoronavirus accessory protein NS6 antagonizes interferon beta production by interfering with the binding of RIG-I/MDA5 to double-stranded RNA[J]. Journal of Virology, 2018, 92(15):e00712-18.

[23]
CRUZ J L G, SOLA I, BECARES M, et al. Coronavirus gene 7 counteracts host defenses and modulates virus virulence[J]. PLoS Pathogens, 2011, 7(6):e1002090.

DOI

[24]
MARTIN-LATIL S, MOUSSON L, AUTRET A, et al. Bax is activated during rotavirus-induced apoptosis through the mitochondrial pathway[J]. Journal of Virology, 2007, 81(9):4457-4464.

DOI

[25]
SOLIMAN M, SEO J Y, BAEK Y B, et al. Opposite effects of apoptotic and necroptotic cellular pathways on rotavirus replication[J]. Journal of Virology, 2022, 96(1):e0122221.

DOI

[26]
KIM Y, LEE C. Porcine epidemic diarrhea virus induces caspase-independent apoptosis through activation of mitochondrial apoptosis-inducing factor[J]. Virology, 2014, 460/461:180-193.

DOI

[27]
CURRY S M, SCHWARTZ K J, YOON K J, et al. Effects of porcine epidemic diarrhea virus infection on nursery pig intestinal function and barrier integrity[J]. Veterinary Microbiology, 2017, 211:58-66.

DOI PMID

[28]
ZHANG H, LIU Q, SU W, et al. Genome-wide analysis of differentially expressed genes and the modulation of PEDV infection in Vero E6 cells[J]. Microbial Pathogenesis, 2018, 117:247-254.

DOI PMID

[29]
SHEN X H, YIN L, PAN X C, et al. Porcine epidemic diarrhea virus infection blocks cell cycle and induces apoptosis in pig intestinal epithelial cells[J]. Microbial Pathogenesis, 2020, 147:104378.

DOI

[30]
YANG L, WANG C Y, SHU J Q, et al. Porcine epidemic diarrhea virus induces Vero cell apoptosis via the p53-PUMA signaling pathway[J]. Viruses, 2021, 13(7):1218.

DOI

[31]
YANG Y, YU Q H, SONG H, et al. Decreased NHE3 activity and trafficking in TGEV-infected IPEC-J2 cells via the SGLT1-mediated P38 MAPK/Akt2 pathway[J]. Virus Research, 2020, 280:197901.

DOI

[32]
ELEOUET J F, CHILMONCZYK S, BESNARDEAU L, et al. Transmissible gastroenteritis coronavirus induces programmed cell death in infected cells through a caspase-dependent pathway[J]. Journal of Virology, 1998, 72(6):4918-4924.

PMID

[33]
ZHAO X M, BAI X Y, GUAN L J, et al. microRNA-4331 promotes transmissible gastroenteritis virus (TGEV)-induced mitochondrial damage via targeting RB1, upregulating interleukin-1 receptor accessory protein (IL1RAP),and activating p38 MAPK pathway in vitro[J]. Molecular & Cellular Proteomics, 2018, 17(2):190-204.

DOI

[34]
DING L, LI J W, LI W H, et al. p53- and ROS-mediated AIF pathway involved in TGEV-induced apoptosis[J]. The Journal of Veterinary Medical Science, 2018, 80(11):1775-1781.

DOI

[35]
DUAN C, WANG J C, LIU Y, et al. Antiviral effects of ergosterol peroxide in a pig model of porcine deltacoronavirus (PDCoV) infection involves modulation of apoptosis and tight junction in the small intestine[J]. Veterinary Research, 2021, 52(1):86.

DOI PMID

[36]
LEE Y J, LEE C. Porcine deltacoronavirus induces caspase-dependent apoptosis through activation of the cytochrome c-mediated intrinsic mitochondrial pathway[J]. Virus Research, 2018, 253:112-123.

DOI PMID

[37]
ZHANG J Y, HAN Y R, SHI H Y, et al. Swine acute diarrhea syndrome coronavirus-induced apoptosis is caspase- and cyclophilin D- dependent[J]. Emerging Microbes & Infections, 2020, 9(1):439-456.

[38]
ENGLISH L, CHEMALI M, DURON J, et al. Autophagy enhances the presentation of endogenous viral antigens on MHC class Ⅰ molecules during HSV-1 infection[J]. Nature Immunology, 2009, 10(5):480-487.

DOI

[39]
CHEN Y M, BURROUGH E. The effects of swine coronaviruses on ER stress,autophagy,apoptosis,and alterations in cell morphology[J]. Pathogens, 2022, 11(8):940.

DOI

[40]
CRAWFORD S E, HYSER J M, UTAMA B, et al. Autophagy hijacked through viroporin-activated calcium/calmodulin-dependent kinase kinase-β signaling is required for rotavirus replication[J]. Proceedings of the National Academy of Sciences of the United States of America, 2012, 109(50):E3405-E3413.

[41]
LIN H X, LI B, LIU M X, et al. Nonstructural protein 6 of porcine epidemic diarrhea virus induces autophagy to promote viral replication via the PI3K/Akt/mTOR axis[J]. Veterinary Microbiology, 2020, 244:108684.

DOI

[42]
ZOU D H, XU J X, DUAN X L, et al. Porcine epidemic diarrhea virus ORF3 protein causes endoplasmic reticulum stress to facilitate autophagy[J]. Veterinary Microbiology, 2019, 235:209-219.

DOI PMID

[43]
ZHU L Q, MOU C X, YANG X, et al. Mitophagy in TGEV infection counteracts oxidative stress and apoptosis[J]. Oncotarget, 2016, 7(19):27122-27141.

DOI PMID

[44]
YANG X, ZHU L Q, LIN J, et al. Doxycycline induces mitophagy and suppresses production of interferon-β in IPEC-J2 cells[J]. Frontiers in Cellular and Infection Microbiology, 2017, 7:21.

DOI PMID

[45]
GUO L J, YU H D, GU W H, et al. Autophagy negatively regulates transmissible gastroenteritis virus replication[J]. Scientific Reports, 2016, 6:23864.

DOI PMID

[46]
ZHOU X R, ZHOU L, GE X N, et al. Quantitative proteomic analysis of porcine intestinal epithelial cells infected with porcine deltacoronavirus using iTRAQ-coupled LC-MS/MS[J]. Journal of Proteome Research, 2020, 19(11):4470-4485.

DOI PMID

[47]
DUAN C, GE X N, WANG J C, et al. Ergosterol peroxide exhibits antiviral and immunomodulatory abilities against porcine deltacoronavirus (PDCoV) via suppression of NF-κB and p38/MAPK signaling pathways in vitro[J]. International Immunopharmacology, 2021, 93:107317.

DOI

[48]
SHI D, ZHOU L, SHI H Y, et al. Autophagy is induced by swine acute diarrhea syndrome coronavirus through the cellular IRE1-JNK-Beclin 1 signaling pathway after an interaction of viral membrane-associated papain-like protease and GRP78[J]. PLoS Pathogens, 2023, 19(3):e1011201.

DOI

[49]
ZENG S Y, ZHAO Y, PENG O Y, et al. Swine acute diarrhea syndrome coronavirus induces autophagy to promote its replication via the Akt/mTOR pathway[J]. iScience, 2022, 25(11):105394.

DOI

[50]
DIXON S J, LEMBERG K M, LAMPRECHT M R, et al. Ferroptosis:an iron-dependent form of nonapoptotic cell death[J]. Cell, 2012, 149(5):1060-1072.

DOI

[51]
CHEN X, KANG R, KROEMER G, et al. Ferroptosis in infection,inflammation,and immunity[J]. The Journal of Experimental Medicine, 2021, 218(6):e20210518.

DOI

[52]
WANG M P, JOSHUA B, JIN N Y, et al. Ferroptosis in viral infection:the unexplored possibility[J]. Acta Pharmacologica Sinica, 2022, 43(8):1905-1915.

DOI

[53]
HAN Y L, ZHU J J, YANG L L, et al. SARS-CoV-2 infection induces ferroptosis of sinoatrial node pacemaker cells[J]. Circulation Research, 2022, 130(7):963-977.

DOI

[54]
LIU G Z, XU X W, TAO S H, et al. HBx facilitates ferroptosis in acute liver failure via EZH2 mediated SLC7A11 suppression[J]. Journal of Biomedical Science, 2021, 28(1):67.

DOI

[55]
ZHANG S, HU W W, YUAN L F, et al. Transferrin receptor 1 is a supplementary receptor that assists transmissible gastroenteritis virus entry into porcine intestinal epithelium[J]. Cell Communication and Signaling, 2018, 16(1):69.

DOI PMID

[56]
BANERJEE S, SARKAR R, MUKHERJEE A, et al. Rotavirus-induced lncRNA SLC7A11-AS1 promotes ferroptosis by targeting cystine/glutamate antiporter xCT (SLC7A11) to facilitate virus infection[J]. Virus Research, 2024, 339:199261.

DOI

[57]
ZHANG H L, LI Y G, YANG R M, et al. Erastin inhibits porcine epidemic diarrhea virus replication in Vero cells[J]. Frontiers in Cellular and Infection Microbiology, 2023,13:1142173.

[58]
LI Y G, BAO Y W, LI Y, et al. RSL3 inhibits porcine epidemic diarrhea virus replication by activating ferroptosis[J]. Viruses, 2023, 15(10):2080.

DOI

[59]
YANG N, ZHANG Y H, FU Y G, et al. Transmissible gastroenteritis virus infection promotes the self-renewal of porcine intestinal stem cells via Wnt/β-catenin pathway[J]. Journal of Virology, 2022, 96(18):e0096222.

DOI

[60]
SATO T, VAN ES J H, SNIPPERT H J, et al. Paneth cells constitute the niche for Lgr5 stem cells in intestinal crypts[J]. Nature, 2011, 469(7330):415-418.

DOI

[61]
WU A M, YU B, ZHANG K Y, et al. Transmissible gastroenteritis virus targets Paneth cells to inhibit the self-renewal and differentiation of Lgr5 intestinal stem cells via Notch signaling[J]. Cell Death & Disease, 2020, 11(1):40.

[62]
BOMIDI C, ROBERTSON M, COARFA C, et al. Single-cell sequencing of rotavirus-infected intestinal epithelium reveals cell-type specific epithelial repair and tuft cell infection[J]. Proceedings of the National Academy of Sciences of the United States of America, 2021, 118(45):e2112814118.

[63]
HOOPER L V, LITTMAN D R, MACPHERSON A J. Interactions between the microbiota and the immune system[J]. Science, 2012, 336(6086):1268-1273.

DOI PMID

[64]
LYNCH S V, PEDERSEN O. The human intestinal microbiome in health and disease[J]. The New England Journal of Medicine, 2016, 375(24):2369-2379.

DOI PMID

[65]
ROBINSON C M. Enteric viruses exploit the microbiota to promote infection[J]. Current Opinion in Virology, 2019, 37:58-62.

DOI PMID

[66]
YANG S S, LIU G L, SAVELKOUL H F J, et al. Mini-review:microbiota have potential to prevent PEDV infection by improved intestinal barrier[J]. Frontiers in Immunology, 2023, 14:1230937.

DOI

[67]
ONDERDONK A B, MARKHAM R B, ZALEZNIK D F, et al. Evidence for T cell-dependent immunity to Bacteroides fragilis in an intraabdominal abscess model[J]. The Journal of Clinical Investigation, 1982, 69(1):9-16.

DOI

[68]
CHEN L, LI S, ZHENG J, et al. Effects of dietary Clostridium butyricum supplementation on growth performance,intestinal development,and immune response of weaned piglets challenged with lipopolysaccharide[J]. Journal of Animal Science and Biotechnology, 2018, 9:62.

DOI

[69]
JIANG H Y, LING Z X, ZHANG Y H, et al. Altered fecal microbiota composition in patients with major depressive disorder[J]. Brain,Behavior,and Immunity, 2015, 48:186-194.

DOI

[70]
MIQUEL S, MARTÍN R, ROSSI O, et al. Faecalibacterium prausnitzii and human intestinal health[J]. Current Opinion in Microbiology, 2013, 16(3):255-261.

DOI

[71]
FISHER K, PHILLIPS C. The ecology,epidemiology and virulence of Enterococcus[J]. Microbiology, 2009, 155(Pt 6):1749-1757.

DOI

[72]
RAMOS H C, RUMBO M, SIRARD J C. Bacterial flagellins:mediators of pathogenicity and host immune responses in mucosa[J]. Trends in Microbiology, 2004, 12(11):509-517.

DOI

[73]
CROXEN M A, FINLAY B B. Molecular mechanisms of Escherichia coli pathogenicity[J]. Nature Reviews Microbiology, 2010, 8(1):26-38.

DOI

[74]
YANG Q Y, YANG Y L, TANG Y X, et al. Bile acids promote the caveolae-associated entry of swine acute diarrhea syndrome coronavirus in porcine intestinal enteroids[J]. PLoS Pathogens, 2022, 18(6):e1010620.

DOI

[75]
BERGER A K, YI H, KEARNS D B, et al. Bacteria and bacterial envelope components enhance mammalian reovirus thermostability[J]. PLoS Pathogens, 2017, 13(12):e1006768.

DOI

[76]
ROBINSON C M, JESUDHASAN P R, PFEIFFER J K. Bacterial lipopolysaccharide binding enhances virion stability and promotes environmental fitness of an enteric virus[J]. Cell Host & Microbe, 2014, 15(1):36-46.

[77]
ERICKSON A K, JESUDHASAN P R, MAYER M J, et al. Bacteria facilitate enteric virus co-infection of mammalian cells and promote genetic recombination[J]. Cell Host & Microbe, 2018, 23(1):77-88.e5.

[78]
BELKAID Y, HAND T W. Role of the microbiota in immunity and inflammation[J]. Cell, 2014, 157(1):121-141.

DOI PMID

[79]
NOBS S P, ZMORA N, ELINAV E. Nutrition regulates innate immunity in health and disease[J]. Annual Review of Nutrition, 2020, 40:189-219.

DOI PMID

[80]
ZHAO Y, YU B, MAO X B, et al. Dietary vitamin D supplementation attenuates immune responses of pigs challenged with rotavirus potentially through the retinoic acid-inducible gene Ⅰ signalling pathway[J]. British Journal of Nutrition, 2014, 112(3):381-389.

DOI

[81]
COMSTOCK S S, LI M, WANG M, et al. Dietary human milk oligosaccharides but not prebiotic oligosaccharides increase circulating natural killer cell and mesenteric lymph node memory T cell populations in noninfected and rotavirus-infected neonatal piglets[J]. The Journal of Nutrition, 2017, 147(6):1041-1047.

DOI

[82]
CHEN X J, TU C Z, QIN T, et al. Retinoic acid facilitates inactivated transmissible gastroenteritis virus induction of CD8+ T-cell migration to the porcine gut[J]. Scientific Reports, 2016, 6:24152.

DOI

[83]
REN Z H, JIA G L, HE H Y, et al. Antiviral effect of selenomethionine on porcine deltacoronavirus in pig kidney epithelial cells[J]. Frontiers in Microbiology, 2022, 13:846747.

DOI

[84]
KONG F Z, NIU X Y, LIU M D, et al. Bile acids LCA and CDCA inhibited porcine deltacoronavirus replication in vitro[J]. Veterinary Microbiology, 2021, 257:109097.

DOI

[85]
ZHENG S M, WANG X W, HU H Q, et al. Emodin from Aloe inhibits swine acute diarrhea syndrome coronavirus in cell culture[J]. Frontiers in Veterinary Science, 2022, 9:978453.

DOI

[86]
DONG W T, DING N, ZHANG Y, et al. Alterations of suckling piglet jejunal microbiota due to infection with porcine epidemic diarrhea virus and protection against infection by Lactobacillus salivarius[J]. Frontiers in Veterinary Science, 2021, 8:771411.

DOI

[87]
WU T, LYU Y, LI X N, et al. Impact of N-acetylcysteine on the gut microbiota in the piglets infected with porcine epidemic diarrhea virus[J]. Frontiers in Veterinary Science, 2020, 7:582338.

DOI

[88]
LI M, MONACO M H, WANG M, et al. Human milk oligosaccharides shorten rotavirus-induced diarrhea and modulate piglet mucosal immunity and colonic microbiota[J]. The ISME Journal, 2014, 8(8):1609-1620.

DOI

[89]
RAO H Y, SU W W, ZHANG X L, et al. Hypericum japonicum extract inhibited porcine epidemic diarrhea virus in vitro and in vivo[J]. Frontiers in Pharmacology, 2023, 14:1112610.

DOI

[90]
LIU Y, WANG X, WANG J, et al. Ergosterol peroxide inhibits porcine epidemic diarrhea virus infection in Vero cells by suppressing ROS generation and p53 activation[J]. Viruses, 2022, 14(2):402.

DOI

[91]
WANG P C, BAI J, LIU X W, et al. Tomatidine inhibits porcine epidemic diarrhea virus replication by targeting 3CL protease[J]. Veterinary Research, 2020, 51(1):136.

DOI PMID

[92]
CHOI H J, KIM J H, LEE C H, et al. Antiviral activity of quercetin 7-rhamnoside against porcine epidemic diarrhea virus[J]. Antiviral Research, 2009, 81(1):77-81.

DOI

[93]
XU Z C, LIU Y, PENG P, et al. Aloe extract inhibits porcine epidemic diarrhea virus in vitro and in vivo[J]. Veterinary Microbiology, 2020, 249:108849.

DOI

[94]
GUO N, ZHANG B Z, HU H, et al. Caerin1.1 suppresses the growth of porcine epidemic diarrhea virus in vitro via direct binding to the virus[J]. Viruses, 2018, 10(9):507.

DOI

[95]
LIANG W L, HE L, NING P B, et al. (+)-Catechin inhibition of transmissible gastroenteritis coronavirus in swine testicular cells is involved its antioxidation[J]. Research in Veterinary Science, 2015, 103:28-33.

DOI PMID

[96]
LI Y M, WANG J, LIU Y C, et al. Antiviral and virucidal effects of curcumin on transmissible gastroenteritis virus in vitro[J]. The Journal of General Virology, 2020, 101(10):1079-1084.

DOI

[97]
ZHANG Y, CHEN H J, ZOU M M, et al. Hypericin inhibit alpha-coronavirus replication by targeting 3CL protease[J]. Viruses, 2021, 13(9):1825.

DOI

[98]
YUAN L F, ZHANG S, WANG Y H, et al. Surfactin inhibits membrane fusion during invasion of epithelial cells by enveloped viruses[J]. Journal of Virology, 2018, 92(21):e00809-18.

[99]
XIONG X, TAN B, SONG M, et al. Nutritional intervention for the intestinal development and health of weaned pigs[J]. Frontiers in Veterinary Science, 2019, 6:46.

DOI PMID

[100]
YU W, XIAO X C, CHEN D W, et al. Effect of dietary lactose supplementation on growth performance and intestinal epithelium functions in weaned pigs challenged by rotavirus[J]. Animals, 2022, 12(18):2336.

DOI

[101]
MAO X B, HU H Y, XIAO X C, et al. Lentinan administration relieves gut barrier dysfunction induced by rotavirus in a weaned piglet model[J]. Food & Function, 2019, 10(4):2094-2101.

[102]
MAO X B, GU C S, HU H Y, et al. Dietary Lactobacillus rhamnosus GG supplementation improves the mucosal barrier function in the intestine of weaned piglets challenged by porcine rotavirus[J]. PLoS One, 2016, 11(1):e0146312.

DOI

[103]
MAO X B, LIU M H, TANG J, et al. Dietary leucine supplementation improves the mucin production in the jejunal mucosa of the weaned pigs challenged by porcine rotavirus[J]. PLoS One, 2015, 10(9):e0137380.

DOI

[104]
MAO X B, XIAO X J, CHEN D W, et al. Dietary apple pectic oligosaccharide improves gut barrier function of rotavirus-challenged weaned pigs by increasing antioxidant capacity of enterocytes[J]. Oncotarget, 2017, 8(54):92420-92430.

DOI PMID

[105]
TIAN G, LIANG X F, CHEN D W, et al. Vitamin D3 supplementation alleviates rotavirus infection in pigs and IPEC-J2 cells via regulating the autophagy signaling pathway[J]. The Journal of Steroid Biochemistry and Molecular Biology, 2016, 163:157-163.

DOI

[106]
LEE J H, PARK J S, LEE S W, et al. Porcine epidemic diarrhea virus infection:inhibition by polysaccharide from Ginkgo biloba exocarp and mode of its action[J]. Virus Research, 2015, 195:148-152.

DOI

[107]
CAO Y N, ZHANG S S, HUANG Y J, et al. The aqueous leaf extract of M. oleifera inhibits PEDV replication through suppressing oxidative stress-mediated apoptosis[J]. Animals, 2022, 12(4):458.

DOI

[108]
LI H J, GAO D S, LI Y T, et al. Antiviral effect of lithium chloride on porcine epidemic diarrhea virus in vitro[J]. Research in Veterinary Science, 2018, 118:288-294.

DOI

[109]
YANG J W, TIAN G, CHEN D W, et al. 1,25-Dihydroxyvitamin D3 inhibits porcine epidemic diarrhea virus replication by regulating cell cycle resumption in IPEC-J2 porcine epithelial cells[J]. Microbial Pathogenesis, 2021, 158:105017.

DOI

[110]
WANG K, CHEN D W, YU B, et al. Eugenol alleviates transmissible gastroenteritis virus-induced intestinal epithelial injury by regulating NF-κB signaling pathway[J]. Frontiers in Immunology, 2022, 13:921613.

DOI

[111]
WANG K, TANG Y, WU X, et al. Eugenol attenuates transmissible gastroenteritis virus-induced oxidative stress and apoptosis via ROS-NRF2-ARE signaling[J]. Antioxidants, 2022, 11(9):1838.

DOI

[112]
WANG K, CHEN D W, YU B, et al. Eugenol alleviates TGEV-induced intestinal injury via suppressing ROS/NLRP3/GSDMD-dependent pyroptosis[J]. Journal of Agricultural and Food Chemistry, 2023, 71(3):1477-1487.

DOI PMID

[113]
PU J N, CHEN D W, TIAN G, et al. All-trans retinoic acid attenuates transmissible gastroenteritis virus-induced inflammation in IPEC-J2 cells via suppressing the RLRs/NF-κB signaling pathway[J]. Frontiers in Immunology, 2022, 13:734171.

DOI

[114]
PU J N, CHEN D W, TIAN G, et al. All-trans retinoic acid attenuates transmissible gastroenteritis virus-induced apoptosis in IPEC-J2 cells via inhibiting ROS-mediated P38MAPK signaling pathway[J]. Antioxidants, 2022, 11(2):345.

DOI

[115]
WANG X Q, HU W W, ZHU L Q, et al. Bacillus subtilis and surfactin inhibit the transmissible gastroenteritis virus from entering the intestinal epithelial cells[J]. Bioscience Reports, 2017, 37(2):BSR20170082.

文章导航

/