综述

多酚调控动物肠道健康的作用机制及植物多酚在猪生产中的应用研究进展

  • 寇鸿千 , 1 ,
  • 秦彤 2 ,
  • 刘明 1 ,
  • 夏冰 , 1, *
展开
  • 1 .北京农学院动物科学技术学院,北京 102206
  • 2 中国农业科学院北京畜牧兽医研究所,北京 100193
*夏 冰,副教授,E-mail:

寇鸿千(2000—),女,内蒙古赤峰人,硕士研究生,从事猪营养与天然功能开发利用研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-10-19

  网络出版日期: 2024-04-15

基金资助

国家自然科学基金青年科学基金项目(32302777)

北京农学院科技创新“火花行动”支持计划(BUA-HHXD2023003)

北京农学院青年教师科研创新能力提升计划(QJKC2022051)

北京农学院科技经费支持项目(QNTJ2023004)

Research Progress on Mechanism of Polyphenols Regulating Animal Intestinal Health and Application of Plant Polyphenols in Pig Production

  • KOU Hongqian , 1 ,
  • QIN Tong 2 ,
  • LIU Ming 1 ,
  • XIA Bing , 1
Expand
  • 1 College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
  • 2 Institute of Animal Sciences, Chinese Academy of Agricultural Sciences, Beijing 100193, China
*associate professor, E-mail:

Received date: 2023-10-19

  Online published: 2024-04-15

摘要

多酚作为植物次级代谢产物,具有较好的抗氧化及抗菌等特性。研究表明,多酚可通过增强肠道屏障功能、与肠道微生物互作、调控抗氧化性能以实现对机体的保护作用,作为绿色饲料添加剂在养猪生产中具有广阔的应用前景。本文从多酚的定义及分类、调控动物肠道健康的作用机制及植物多酚在猪生产中的应用等方面进行综述,为其今后在猪生产绿色健康养殖中的应用提供参考。

本文引用格式

寇鸿千 , 秦彤 , 刘明 , 夏冰 . 多酚调控动物肠道健康的作用机制及植物多酚在猪生产中的应用研究进展[J]. 动物营养学报, 2024 , 36(4) : 2104 -2117 . DOI: 10.12418/CJAN2024.183

Abstract

Polyphenols, as plant secondary metabolites, have good antioxidant and antibacterial properties. Studies have shown that polyphenols can enhance the intestinal barrier function, interact with intestinal microorganisms, and regulate antioxidant properties to achieve a protective effect on the organism, and have a broad application prospect as green feed additives in pig production. This paper reviews the definition and classification of plant polyphenols, the role and mechanism of regulating animal intestinal health and their application in swine production to provide a reference for their future application in green and healthy farming in swine production.

多酚是一类具有多元酚化学结构的物质的总称,又称为植物次级代谢产物,广泛存在于自然界中,包括水果、蔬菜、谷物以及豆类等,通常是在应对生物或非生物胁迫下发生的防御反应而产生[1]。多酚可以与肠道微生物互作,调控机体抗氧化性能,缓解肠道屏障损伤,增强肠道屏障功能[2]。植物多酚因其具有的抗氧化、抗菌等多种生物学功能日益成为畜牧行业中的研究焦点,其主要通过调节氧化应激、抗炎、调节脂质代谢、保护肠道屏障功能以及与肠道微生物的互作实现对机体的营养保护作用。本文从多酚的定义及分类、调控动物肠道健康的作用机制及植物多酚在猪生产中的应用等方面进行综述,为其今后在猪生产绿色健康养殖中的应用提供参考。

1 多酚的定义及分类

多酚的结构特点是至少含有2个苯环和1个及以上羟基取代物,其结构复杂、种类繁多,根据其碳骨架的结构性质可分为黄酮类化合物和非黄酮类化合物[3]

1.1 黄酮类化合物

黄酮类化合物是由2个苯环(A和B)和1个杂环(C)通过三碳桥连接而成的具有C6(A)-C3(C)-C6(B)骨架结构的化合物(图1)[2]。根据C环的氧化程度和羟基化模式以及C3位置被其他基团取代的特点,黄酮类化合物可划分为6类:黄烷醇、黄酮醇、异黄酮、黄酮、黄烷酮和花青素[4-5]。黄烷醇在红酒、巧克力及莲叶中含量丰富,又被称为儿茶素。黄酮醇是黄酮类化合物的羟基衍生物,主要分布于洋葱、西蓝花、茶、苹果、西红柿、葡萄、浆果等一些水果、蔬菜和红酒中,常见的黄酮醇类物质包括山奈酚、槲皮素和杨梅素等。异黄酮主要存在于豆科植物中。黄酮的基本结构是2-苯基-苯并吡喃酮核,且在C环的C3位置没有发生羟基化,黄酮以O-糖苷形式广泛存在于多种食物中,柑橘类水果是黄酮最丰富的来源,还存在于芹菜、红辣椒、洋甘菊和薄荷等植物中,常见的黄酮是橙皮苷、柚皮苷、芹菜素等[6-7]。黄烷酮具有C6-C3-C6的结构,在自然界中广泛分布,是甜根子和红蓝花等药用植物的有效成分之一[8]。花青素主要以糖苷的形式存在于植物中,如草莓、蓝莓和樱桃。
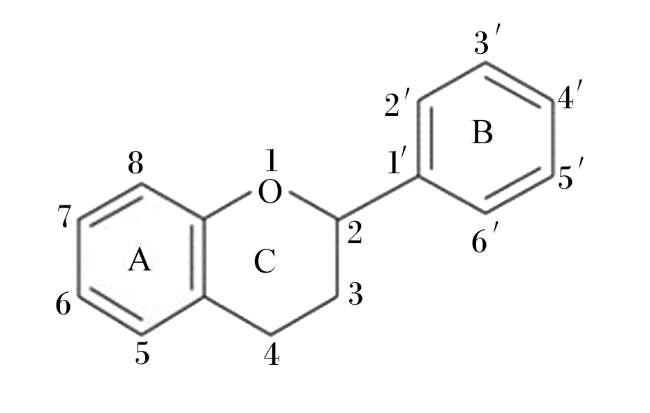
图1 黄酮类化合物结构

Fig.1 Flavonoids compounds structure[2]

1.2 非黄酮类化合物

非黄酮类化合物包括木酚素、芪类和酚酸[9]。木酚素是由2,3-二苄基丁烷结构组成,是一个含有C6-C3骨架的酚酸二聚体,主要存在于亚麻、芝麻和很多谷物中。芪类的结构特点是由1个双碳亚甲基桥将2个苯环连接,具有共同的C6-C2-C6的骨架结构,芪类常见于葡萄、浆果、菠菜、红卷心菜、花生以及红酒中,代表性物质是白藜芦醇。酚酸类物质中羟基肉桂酸和羟基苯甲酸所占比例较高,如原儿茶酸、香草酸等[10]

2 多酚调控动物肠道健康的作用机制

作为植物次级代谢产物,多酚具有较好的抗氧化及抗菌特性,以帮助植物组织免受活性氧的毒副作用以及抵御病原菌的感染。近年来越来越多的研究表明,多酚具有多种生物学功能,在维持肠道健康过程中发挥重要作用,主要表现在以下几个方面。

2.1 多酚增强肠道屏障功能

完整的肠道上皮屏障对维持机体正常的生理功能具有至关重要的作用,一旦屏障受损,肠腔内的有害物质如细菌和毒素等会进入上皮组织,进而引起炎症反应甚至炎症性肠道疾病。酚类化合物能够促进屏障功能,采用结肠炎小鼠模型的动物研究表明,补充富含玉米黄烷-4-醇和花青素酚类化合物可降低肠道通透性和促炎细胞因子分泌,并增强黏液分泌[11-12]。酚酸类物质在保护肠道屏障功能中发挥关键作用,有研究利用Caco2和LS174T细胞模型探索不同酚酸物质对肠道黏膜屏障的调控作用及机制,发现绿原酸、5-咖啡酰奎宁酸、原儿茶酸和咖啡酸能增加闭锁小带蛋白-1(ZO-1)和黏蛋白(Muc)2的表达,缓解脂多糖(LPS)诱导的肠道屏障损伤;此外,绿原酸还能增加细胞跨膜电阻,降低细胞间通透性,Ruan等[13]研究表明,口服绿原酸增加了空肠和结肠中闭合蛋白(Claudin)和ZO-1的蛋白表达水平。阿魏酸能增加T84结肠细胞中ZO-1和Claudin-4的转录[14]。紧密连接蛋白可封闭邻近细胞以调节通透性并维持屏障完整性[15]。进一步探索其作用机制发现,绿原酸是通过抑制肌球蛋白轻链激酶和Rho激酶1(ROCK1)信号进而下调其下游分子磷酸化肌球蛋白磷酸酶靶亚基1(p-MYPT1)、肌球蛋白轻链激酶(MLCK)和磷酸化肌球蛋白轻链的表达,同时上调紧密连接蛋白的表达。研究还发现,绿原酸可以抑制内质网标志蛋白葡萄糖调节蛋白78(GPR78)、CCAAT/增强子结合蛋白同源蛋白(CHOP)和激活转录因子6(ATF6)的表达缓解内质网应激,进而促进Muc2、黏蛋白5AC(Muc5AC)和三叶因子3(TFF3)的表达以保护肠道屏障功能[16]。另一项研究表明,在猪小肠上皮细胞(IPEC-1)模型中也证实了植物多酚保护肠道屏障功能的作用,原儿茶酸和槲皮素能降低肠毒素性致病性大肠杆菌(ETEC)K88对细胞黏附及细胞上清中内毒素的水平,缓解由于ETEC K88感染引起的肠道屏障损伤,深入研究发现这2种多酚化合物还能通过抑制细胞坏死和凋亡信号通路缓解ETEC K88诱导的炎症反应[17]
位于肠腔表面的黏液层能保护肠道上皮免受肠道内病原和机械碎片的损伤,其骨架结构是由Muc交联组成的网状结构,包括分泌型和膜结合型Muc 2种类型[18]。分泌型Muc2是形成黏液层的主要成分,膜结合型Muc如Muc1、Muc3A/B、Muc4和Muc12等主要锚定在细胞表面形成糖萼,限制有害大分子与肠道上皮细胞的接触。Feng等[19]利用Caco2/HT29-MTX细胞共培养模型,研究表儿茶素(EC)、表没食子儿茶素没食子酸酯(EGCG)和单宁酸对肠道Muc及黏液屏障的影响,研究发现,EGCG和单宁酸表现出较强的结合肠道Muc的能力,同时还能增强黏液屏障,还发现EGCG和单宁酸能缓解麦角蛋白诱导的细胞毒性和炎症反应;多酚与Muc亲核巯基可进行化学结合,这一效应表明这些多酚还可作为促进Muc网状结构形成的交联剂,进而调控肠道黏液屏障的功能。此外,EGCG和槲皮素等酚类化合物已显示出调节肠道Muc(Muc2、Muc3、Muc13和Muc17)表达和分泌的能力[20]。在内质网中,Muc2互相交联形成多聚体,然后进行O-型糖基化,O-型糖基化是单糖在多种O-型糖基转移酶的作用下连接至特定氨基酸序列形成O-型糖链,O-型糖链能保护Muc不被内源酶降解,同时还可通过免疫调控及与微生物互作等方式维持肠道黏膜屏障功能,而内质网应激会导致蛋白错误折叠,进而影响黏液屏障的形成[18-21]。研究表明,富含多酚的柑橘皮不仅能有效地降低高脂饮食诱导的小鼠体重和脂肪含量增加以及系统性炎症,还可缓解肠道黏液屏障的损伤,能增加小鼠肠道杯状细胞数量、Muc2蛋白表达及结肠黏液层的厚度,增强结肠黏液屏障功能,同时还可降低内质网应激蛋白GPR78和CHOP的表达,增强肠道Muc糖链形成过程中的限制酶胸苷酸合成酶(T-synthase)及其伴侣蛋白C1GALT1特异性伴侣1的表达[22]。有研究表明,槲皮素可促进杯状细胞中Muc基因表达,增强细胞外调节蛋白激酶1/2(ERK1/2)、蛋白激酶C(PKC)和磷酸肌醇特异性磷脂酶C(PLC)的磷酸化水平[23],并提高紧密连接蛋白表达量,降低肠道通透性[15-20]。肠道细胞在氧化剂和促炎介质刺激下引发肠道氧化应激和炎症诱导的肠道损伤,肠道细胞自我保护包括分泌黏液(杯状细胞分泌的Muc以提供物理屏障)和由紧密连接蛋白表达指示的肠道通透性降低(图2)[15,20]。紧密连接蛋白(如Claudin、ZO和其他黏附复合物)可封闭邻近细胞,以调节通透性并维持屏障完整性[24]。黄酮类化合物可能通过干扰炎症介质与受体的结合来抑制信号级联反应的诱导(图2)。这些研究均表明,多酚类物质可通过调控肠道黏液屏障功能进而有效维持肠道稳态,促进机体健康。
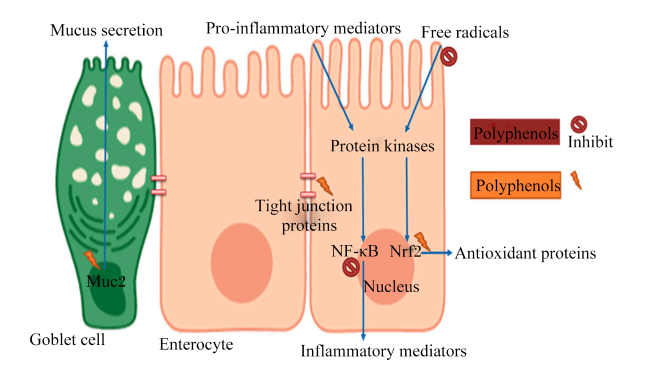
图2 参与多酚调节肠道屏障功能的潜在机制

Mucus secretion:黏液分泌;Pro-inflammatory mediators:促炎介质;Free radicals:自由基;Muc2:黏蛋白2;Protein kinases:蛋白激酶;Tight junction proteins:紧密连接蛋白;Polyphenols:多酚;Inhibit:抑制;NF-κB:核因子-κB nuclear factor kappa-B;Nrf2:核转录因子红系2相关因子2 nuclear factor-erythroid 2-related factor 2;Antioxidant proteins:抗氧化蛋白;Nucleus:细胞核;Goblet cell:杯状细胞;Enterocyte:肠细胞;Inflammatory mediators:炎症介质。

Fig.2 Potential mechanisms involved in regulation of intestinal barrier function by polyphenol[15,25]

2.2 多酚与肠道微生物互作

多酚的生物利用度是影响其在动物体内发挥功能的关键因素。美国食品药品管理局(FDA)将生物利用度定义为“药品治疗性部分被吸收并进入作用部位的速度和利用程度”[26]。很多因素如食物的生物可及性、在胃肠道中的化学稳定性、吸收效率、代谢转化以及代谢物的生物循环能力等都会影响多酚在人体内的生物利用度[27]。事实上,除黄烷醇外,由于大多数多酚都以糖苷、酯或聚合物的形式存在,而在机体内的生物利用度较低。仅有少部分β-糖基化多酚可在β-葡萄糖苷酶作用下转化成苷元被小肠吸收[27],进入体内的多酚大部分直接进入大肠内,在肠道微生物的作用下进行代谢,肠道微生物在将复杂的多酚结构降解成低分子代谢物的转换和代谢过程中发挥重要作用,进而有助于多酚被机体吸收发挥有益作用[6]
例如,微生物可根据前体结构的不同(如苯基戊内酯、苯基戊酸、苯基丙酸、苯基乙酸和苯甲酸等)将低聚和高聚原花青素降解为不同羟基化模式和侧链长度的内酯、芳香酸及酚酸[28-30]。鞣花酸在梭菌属、瘤胃球菌科、真杆菌属、戈登菌属及异尿酸杆菌等的作用能降解为尿石素[31-32]。在体外猪回肠和结肠发酵模型中发现,与回肠微生物相比,结肠微生物在对多酚的转化过程中发挥更关键的作用,芦丁在富含编码α-鼠李糖酶和β-葡萄糖苷酶的结肠微生物群(特别是厚壁菌门)的作用下转化为槲皮素,进而被吸收利用,这也表明其可通过调控回肠内可编码上述糖苷酶的微生物丰度进而促进芦丁在消化道的吸收和利用[33]。黄豆苷元在肠道微生物如梭菌属、拟杆菌属和链球菌属的作用下转化为雌马酚和去氧甲基安哥拉紫檀素(O-DMA)[34]。木脂素在肠道微生物的作用下可转化为肠木质素即肠内酯和肠二醇,这些化合物又称为哺乳动物木质素,与其前体相比,它们具有更高的生物利用度,进而对机体健康发挥有益作用[35]。这些研究结果表明,即使相同饮食的不同个体由于其肠道微生物组成的不同也会导致多酚代谢物的差异。
肠道微生物可将多酚类物质代谢为具有生物活性的低分子酚类代谢物进而调节机体代谢活动,反之,多酚也能通过改变肠道微生物的组成进而影响宿主代谢[6,36]。摄入体内的多酚可通过促进有益菌的生长及抑制有害菌的增殖以调节肠道微生物群,进而使宿主受益。研究表明,在高脂饮食中补充茶多酚和表没食子儿茶素没食子酸酯(EGCG)能显著重塑肠道菌群组成,茶多酚可促进有益菌如拟杆菌门、阿克曼氏菌、粪杆菌门等的增殖,而EGCG能促进产酸细菌如丁酸单胞菌属和脱硫弧菌属的生长进而调控肠道健康,并降低血清胆固醇、甘油三酯含量及体重,缓解高脂饮食诱导的代谢综合征[37]。小鼠口服EGCG还可通过调控肠道微生物组成,增加有益菌的丰度,重塑聚苯乙烯微塑料引起的肝脏代谢紊乱,同时改善结肠炎和全身炎症[38]。在体外利用人类粪便进行批次培养发酵试验证实,槲皮素可通过抑制放线菌门的增殖及促进双歧杆菌的生长以调控微生物的组成[39],Etxeberria等[40]研究发现,给予肥胖大鼠槲皮素可缓解肠道菌群失调,并通过降低厚壁菌门和拟杆菌门比例及抑制芽孢杆菌、圆柱形真杆菌等细菌的比例调控肠道细菌组成。Porras等[41]进一步证明,摄入槲皮素降低了高脂饮食小鼠的体重,同时有效调控其肠道菌群组成,从而进一步降低了血浆LPS的水平以及提高了微生物代谢产物短链脂肪酸的生成。由此可见,多酚不仅能影响肠道菌群的组成,还能调控其功能。Lin等[42]研究发现,黄酒多酚能改善心脏和线粒体功能,降低炎症反应和心肌凋亡水平,缓解阿霉素导致的心脏毒副作用,这一作用除通过调控肠道菌群失衡之外,还通过影响微生物代谢物的水平发挥作用,显著降低花生四烯酸和亚油酸水平,提高色氨酸代谢物的水平。脊髓损伤引起菌群失调和丁酸盐降低,通过粪菌移植结合免疫荧光染色等技术发现,白芦藜醇可以逆转肠道菌群失调及提高微生物代谢产物丁酸含量,进而修复炎症损伤[43]。Cao等[44]根据外源性代谢物和微生物代谢产物探究4种不同结构的多酚(咖啡酸、原花青素、葛根素和白藜芦醇)对健康小鼠肠道微生物的调控作用,发现摄入咖啡酸、原花青素和葛根素都能显著提高阿克曼氏菌和瘤胃菌属UCG-014的丰度,白芦藜醇可促进乳酸菌和拟杆菌的增殖,相关性分析和外源性代谢物预测结果揭示咖啡酸、原花青素和葛根素是通过尿苷促进阿克曼氏菌的生长,白藜芦醇对菌群的调控作用或依赖于岩芹酸的水平。除此之外,在人类和动物模型中的研究表明,多酚与肠道微生物的相互作用在缓解结肠炎、抑制结直肠癌中也发挥重要作用。Wu等[45]研究发现,绿茶多酚表没食子儿茶素-3-没食子酸酯可介导小鼠肠道微生物和丁酸的产生以发挥抗炎效应,维持结肠黏膜屏障完整性,进而缓解葡聚糖硫酸钠(DSS)诱导的结肠炎损伤。二氢杨梅素是一种从藤茶中提取的多酚,被证实可以通过恢复失调的肠道菌群和胆汁酸代谢来缓解DSS导致的小鼠结肠炎,从而改善肠道屏障功能和结肠炎症,进一步发现二氢杨梅素通过肠道微生物-胆汁酸-法尼酯X受体/G蛋白胆汁酸偶联受体5(FXR/TGR5)轴保护肠道,维持肠道完整性[46]。除此之外,最新研究还发现,二氢杨梅素还可缓解由于DSS诱导炎症而引起的苯丙氨酸代谢、精氨酸生物合成及花生四烯酸代谢途径紊乱,维护肠道功能[47]

2.3 多酚调控抗氧化性能

氧化应激被定义为抗氧化系统和氧化系统之间的失衡,导致活性氧(ROS)过量,破坏细胞信号传递和功能。在正常状态下,机体内ROS维持在一定水平,过量的自由基通常会被超氧化物歧化酶(SOD)、过氧化氢酶(CAT)和谷胱甘肽过氧化物酶(GPH-Px)等抗氧化酶清除。肠道功能的基础是肠道完整性,在抗氧化系统和氧化系统失衡的情况下,过量的ROS会破坏上皮细胞的完整性和降低细胞间紧密连接,导致肠道屏障受损[48],因此,氧化应激会破坏肠道屏障,导致炎症性肠病(IBD)和结肠癌等肠道疾病[49-50]。寻找合适的多酚作为治疗氧化应激引起的肠道屏障损伤是目前的研究热点。动物机体在外界不同应激源的刺激下,会生成大量的ROS,打破体内氧化系统和抗氧化系统间的平衡,进而对细胞内大分子物质如核酸、蛋白质等造成损伤暨发生氧化应激,进一步引起机体的组织和器官功能障碍如肠上皮屏障损伤[51]。因此,将细胞的ROS水平维持在一个基础水平及氧化还原稳态对肠道健康具有关键作用;细胞内的抗氧化防御系统是保护动物机体内大分子物质免受氧化应激的主要机制,其中的酶类(GPH-Px、SOD和CAT)和非酶类抗氧化剂能够中和过量的ROS[52]。多酚因其苯环上含有羟基这一结构而具有较强的抗氧化作用。多酚通过把-OH上的H原子转移至自由基生成一些无毒性的中间产物,特别是亲电形式的对苯二酚和醌,清除自由基而间接激活抗氧化反应[53]。多酚还能直接抑制自由基前体的形成,降低氧化速率,最终抑制自由基的生成;此外,多酚还能通过转移电子以中和自由基,使其保持相对稳定的状态,阻止其对机体的破坏作用[6]。Banc等[54]研究发现,红酒多酚能够提升抗氧化酶CAT和SOD的活性进而缓解聚丙烯酰胺诱导的大鼠氧化应激。
多酚除直接调控抗氧化防御系统的抗氧化物活性外,还能通过调控一系列信号通路提升动物机体抗氧化性能,进而维持氧化还原稳态。研究发现,绿茶中的EGCG能促进Nrf2核转位及其下游抗氧化酶血红素氧合酶-1(HO-1)和醌氧化还原酶-1(NQO-1)的表达,缓解HepG2细胞的氧化应激[55]。Zhou等[56]利用大鼠模型研究发现,EGCG也可通过调控Nrf2信号通路缓解硫代乙酸胺诱导的肝脏氧化应激。Zhuang等[57]研究发现,白藜芦醇可以通过磷脂酰肌醇3激酶/蛋白激酶B(PI3K/Akt)介导的Nrf2信号通路直接保护IPEC-J2细胞免受氧化应激,表明白藜芦醇可能是猪对抗肠道氧化损伤的有效饲料添加剂。Nrf2是一种多功能的转录因子,在对抗氧化应激和外源性应激中发挥关键作用。Nrf2/抗氧化反应元件(ARE)信号通路是人体抗氧化应激的中枢防御机制,在维持氧化还原稳态及机体健康过程中发挥至关重要的作用[58]。Kelch样环氧氯丙烷相关蛋白1(Keap1)是Nrf2的负向调控因子,正常生理状态下,Keap1与Nrf2结合形成复合体位于细胞质中,抑制Nrf2的转录。受到氧化应激时,Nrf2-Keap1复合物发生解耦连,Nrf2易位至细胞核与ARE结合,进而调节下游抗氧化相关基因和蛋白的水平,以消除氧化应激[59-60]。Nrf2能激活参与活性氧清除的酶如GPH-Px和SOD以及与氧化应激反应相关的蛋白HO-1以帮助细胞抵御活性氧的攻击,进而保护肠道细胞免受氧化应激、炎症及凋亡等的损伤。研究表明,木犀草素能缓解DSS诱导的结肠炎小鼠肠道疾病指数及结肠组织损伤,显著促进Nrf2及其下游蛋白HO-1和NQO1的表达,提高抗氧化酶SOD和CAT的活性,这表明木犀草素可通过激活Nrf2/HO-1及Nrf2/NQO1通路缓解DSS诱导的小鼠结肠炎[61]。羟基酪醇是一种存在于橄榄果实、树叶及橄榄油中的多酚类化合物,可抑制MDA的产生,具有较强的清除自由基能力,表现出强抗氧化特性[62-63]。在敌草快诱导的小鼠氧化应激模型中发现,羟基酪醇可提高小鼠血清T-AOC、SOD、GSH-Px和CAT的活性,降低MDA的含量,研究结果还表明,羟基酪醇还能提高小鼠小肠中Nrf2及其下游基因如NQO1和CAT的表达进而缓解氧化损伤[64]。其他黄酮类化合物如高良姜黄素和葛根素也被发现具有抗炎、抗氧化等多种功能,可以通过激活Nrf2通路和提高抗氧化酶活性缓解DSS诱导的小鼠结肠损伤[65-66]。在体外使用高浓度葡萄糖诱导肝脏细胞糖尿病模型的研究中发现,鞣花酸可以降低ROS和超氧阴离子自由基的产生以及MDA的含量,同时增加SOD的活性,进一步研究发现,鞣花酸是通过上调miR-233表达激活Keap1-Nrf2信号通路,上调Nrf2、HO-1、超氧化物歧化酶(SOD)1和SOD2蛋白的表达,同时抑制Keap1的蛋白和基因表达水平,进而缓解氧化应激[67]

3 植物多酚在猪生产中的应用

3.1 提高生长性能及肉品质

植物多酚作为一类新型的绿色饲料添加剂和抗生素替代物,能提高动物生产性能。Zheng等[68]在育肥猪饲粮中添加红山茱萸多酚提取物,结果表明饲粮添加红山茱萸多酚提取物对育肥猪生长性能如平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)无显著影响。在育肥猪饲粮中添加绿原酸的研究表明,添加0.04%绿原酸组育肥猪ADG最大,且较0.02%绿原酸组显著提高,与对照组相比,饲粮中添加0.04%绿原酸对猪的生长性能有影响,但饲粮绿原酸水平与育肥猪生长无显著相关性。断奶仔猪饲粮中补充鞣花酸可显著提高断奶仔猪的ADG[69]。在断奶仔猪饲粮中添加单宁的研究表明,0.11%、0.23%和0.45%可水解的单宁对仔猪的体重(BW)和ADFI无显著影响,然而,同一项研究报告称,与对照组(未补充单宁)相比,在试验的28 d内,ADG更高,饲料转化效率更高[70]。这些研究提示,不同植物多酚、同种植物多酚不同剂量对猪生长性能的影响不同,这可能与植物多酚的来源、提取工艺、试验条件以及猪的生长环境等多种因素相关。植物多酚还能显著改善肉品质。Xu等[71]在育肥猪饲粮中分别添加50、100和200 mg/kg葡萄籽原花青素,发现50 mg/kg原花青素显著增加肌肉48 h红度(a*)值和滴水损失,100 mg/kg的添加量也显著降低屠宰后48 h滴水损失,200 mg/kg的原花青素显著增加屠宰后24 h肌肉pH、a*值以及α-亚麻酸、亚油酸、二十碳五烯酸、多不饱和脂肪酸、n-3多不饱和脂肪酸含量以及多不饱和脂肪酸与饱和脂肪酸的比值,降低肌肉剪切力,同时还影响肌纤维的发育以及肌纤维类型的转化,200 mg/kg原花青素显著增加肌球蛋白重链1 、肌球蛋白重链2和肌球蛋白重链4的mRNA表达量以及慢肌蛋白水平。向育肥猪饲喂7周含800 mg/kg苹果多酚的饲粮后发现,其背膘厚度和腹脂含量下降,背最长肌的亮度(L*)和黄度(b*)值也降低,提高了背最长肌粗蛋白质、必需氨基酸、风味氨基酸含量以及氨基酸转运载体([溶质载体家族7成员1(SLC7A1)、溶质载体家族7成员2(SLC7A2)、溶质载体家族7成员7(SLC7A7)和溶质载体家族1成员2(SLC1A2)]的mRNA表达[72]。200 mg/kg番茄红素显著提高育肥猪肌肉a*值、肌内脂肪和粗蛋白质含量,降低肌肉L*和b*值,此外,还显著增加慢肌蛋白水平,降低快肌蛋白水平[73],这表明植物多酚通过调控肉色、嫩度和风味物质等改善猪肉品质,促进肌纤维类型由快肌纤维向慢肌纤维的转化。葡萄籽原花青素在促进肌纤维类型转化的同时,还激活了腺苷酸激活蛋白激酶(AMPK)信号通路,而使用AMPK特异性抑制剂或siRNA抑制腺苷酸活化蛋白激酶α1(AMPKα1)抑制了葡萄籽原花青素对AMPK通路以及肌纤维类型的调控作用,表明了原花青素能通过AMPK信号通路调控猪肌纤维的发育及肌纤维类型的转化[74-75]。除此之外,还有研究发现,植物多酚对抗肥胖也有一定的调控作用,AdipoQ可促进甘油三酯的水解和脂肪酸分解以降低甘油三酯的合成[76],其通过与脂联素受体1(AdipoR1)和脂联素受体2(AdipoR2)激活AMPK和过氧化物酶体增殖物激活受体α(PPARα)促进脂肪酸氧化、抑制脂质合成,是脂肪细胞分化的关键调节因子[77]。在饲粮中添加200、400和600 mg/kg的白藜芦醇均能降低公猪背膘厚度、胴体脂肪率以及皮下脂肪组织内脂肪细胞的大小,深入研究发现,白藜芦醇可通过AdipoQ信号通路(AdipoQ-AdipoR1-AMPKα和AdipoQ-AdipoR2-PPARα)调控脂滴的形成和脂代谢[78]

3.2 维持肠道健康

植物多酚对猪肠道健康的改善作用在于对猪肠道黏膜发育、屏障功能以及微生态平衡的调控。在断奶仔猪饲粮中分别添加不同比例富含多酚类物质的米糠油,经过3周的饲喂后发现0.02%米糠油能显著提高空肠绒毛高度、绒隐比以及Claudin-1的表达,同时降低空肠上皮细胞的凋亡,进而缓解LPS诱导的肠道损伤。0.1%黄芩苷显著提高仔猪肠道绒毛高度和绒隐比,缓解呕吐毒素对仔猪肠道的损伤[79]。Chen等[80]发现,1 000 mg/kg绿原酸可通过降低仔猪血清中D-乳酸和二胺氧化酶的水平降低肠道通透性,增加小肠中Claudin-1的表达,增强黏膜屏障功能,进一步探究发现,这一调控作用可能是通过抑制Toll 样受体4/核因子-κB(TLR4/NF-κB)通路而实现。在仔猪基础饲粮中添加500 g/t鞣花酸也能降低肠道通透性,显著降低断奶仔猪腹泻率,利用16s高通量测序技术发现鞣花酸能调控后肠微生物的组成,促进一些有益菌如乳酸杆菌在肠道中的增殖,此外,在体外使用IPEC-J2细胞模型发现鞣花酸也能增强OccludinZO-1的表达,增强屏障功能[69]。在另一种猪肠道上皮细胞IPEC-1的研究中也得到了类似的结果,研究发现白芦藜醇能缓解ETEC K88诱导的细胞损伤,增加紧密连接蛋白的表达,缓解线粒体损伤[81]。除仔猪外,植物多酚也可调控生长猪的肠道屏障功能,0.01%二氢杨梅素能显著提高生长猪空肠Occludin和Claudin-1的蛋白水平以及Muc1和Muc2的mRNA水平,同时还可降低后肠大肠杆菌的丰度、增加乳酸杆菌的比例,进而增强肠道屏障功能[82]。以上研究表明,植物多酚在改善猪肠道健康中发挥关键作用,然而不同多酚类物质的使用剂量各有差异,因此,在今后的研究中应更侧重筛选适宜的添加量,为不同植物多酚在猪生产中的应用提供更多科学依据。

3.3 缓解氧化应激

植物多酚可通过直接调控抗氧化防御系统的抗氧化酶活性、清除过量自由基以及通过调控氧化还原信号通路维持机体氧化还原稳态以及缓解氧化应激。在(23±1)日龄断奶仔猪饲粮中添加0.1%鞣花酸能提高空肠内抗氧化指标谷胱甘肽/氧化型谷胱甘肽(GSH/GSSG)、T-AOC以及CAT活性,降低氧化代谢物MDA的含量,同时还可调控Nrf2通路中基因的表达进而缓解仔猪肠道氧化应激[83]。在妊娠期母猪饲粮中添加200 mg/kg黄豆苷元能提高窝产仔数和窝重,提高妊娠第35天其血清中SOD、GSH-Px的活性,同时还提高妊娠第85天在妊娠期母猪饲粮中添加200 mg/kg黄豆苷元能提高窝产仔数和窝重,提高妊娠第35天其血清中SOD和GSH-Px的活性,同时还提高妊娠第85天血清SOD活性和T-AOC,进而提升母猪的抗氧化性能[84]。Sun等[85]研究表明,饲粮中添加辣木叶粉能显著降低产程和死胎数,而活胎数则呈上升趋势。补充8%辣木叶粉可显著提高初乳中的蛋白质水平,添加4%辣木叶粉组母猪血清MDA含量显著下降,添加8%辣木叶粉显著提高妊娠60 d后血清CAT活性同时降低泌乳10 d母猪血清MDA含量,增加血清GSH-Px活性。在仔猪中发现,相对于对照组和4%的添加量,添加8%辣木叶粉的仔猪血清具有最高的CAT和SOD活性。这表明添加辣木叶粉可以提高母猪的繁殖性能,提高初乳中的蛋白质水平,改善血清抗氧化指数。Hu等[86]在母猪妊娠后期和泌乳期分别添加15、30和45 mg/kg黄豆黄素,发现可显著提高母猪泌乳期血浆T-AOC、SOD、CAT和GSH-Px的活性,MDA含量线性降低,同时,猪乳中的SOD和GSH-Px活性也增加,MDA含量与血浆中结果一致,也显著降低。其他多酚类物质如儿茶素[87]、山竹多酚(藤黄醇)[88]、绿原酸(育肥猪)[89]等也可通过清除过量自由基以及提高抗氧化酶活性缓解氧化应激,提高母猪抗氧化能力。Jiang等[90]研究发现,从妊娠第108天到哺乳期第20天,饲粮中添加40 g/d的水飞蓟素可增强母猪在泌乳期第18天的血清CAT活性和母猪在泌乳期第7天的血清GSH-Px活性。适宜剂量的阿魏酸能显著提高仔猪肠道CAT活性以及Nrf2和NAD(P)H的表达进而调控其肠道抗氧化能力[91]。在仔猪饲粮中添加300 mg/kg白藜芦醇能上调空肠中SOD1、谷氨酸-半胱氨酸连接酶(GCLC)、HO-1等基因的表达,降低MDA的表达,进而提高仔猪空肠抗氧化能力,同时还通过降低肠道中促炎性细胞因子肿瘤坏死因子-α(TNF-α)和白细胞介素-1β(IL-1β)的表达缓解肠道炎症[92]。在体外研究还发现,白藜芦醇不仅能提高SOD、CAT和GSH-Px的活性,而且能降低ROS的含量,以缓解过氧化氢诱导的氧化应激,同时发现,白藜芦醇还能调控Akt磷酸化、Nrf2磷酸化以及抗氧化基因HO-1、SOD1和CAT的表达激活Nrf2信号通路,进一步使用shRNA技术敲除Nrf2发现白藜芦醇无法缓解过氧化氢诱导的氧化应激和细胞凋亡,同时使用PI3K/Akt抑制剂能显著抑制白藜芦醇对Nrf2通路的介导作用,这表明白藜芦醇能通过PI3K/Akt介导的Nrf2信号通路缓解细胞氧化应激,是猪生产中一种潜在的有效抗氧化剂[57]。多项研究已证实,在猪生产中植物多酚可以作为Nrf2激活剂以缓解氧化应激[93]。使用IPEC-1细胞为模型发现槲皮素能激活Nrf2信号通路,缓解敌草快诱导的氧化损伤[94],同样的,黄芩苷也表现出了相似的抗氧化特性,能通过激活PEC-J4细胞Nrf2信号通路以及抑制NF-κB通路缓解氧化应激和炎症反应[95]

3.4 调节免疫功能

植物多酚可以抑制炎症因子的产生并提高免疫球蛋白和溶菌酶的水平以增强猪肠道免疫功能。研究表明,白藜芦醇可通过激活Sirt1抑制炎症因子的产生[96]。Sirt1是一种重要的去乙酰化酶,参与免疫耐受[97-98]。Sirt1可维持外周T细胞耐受性。Sirt1减少会导致T细胞活化增强和自发性自身免疫疾病的发生[99]。研究表明,白藜芦醇与Sirt1的结合可调节Sirt1的结构并增强与其底物的结合活性[100],Cong等[101]使用MnCl2诱导小鼠发生神经炎症,同时添加白藜芦醇以探究Sirt1信号传导缓解锰(Mn)引起的神经炎症,结果表明,白藜芦醇降低了NF-κB和信号转导和转录活化因子3(STAT3)的磷酸化和乙酰化水平,并通过激活Sirt1信号传导减弱了Mn诱导的炎性细胞因子含量增加。因此,白藜芦醇通过激活Sirt1缓解了Mn诱导的小鼠神经炎症。多酚还能通过提高免疫球蛋白A(IgA)、免疫球蛋白M(IgM)以及β-防御素和溶菌酶的水平进而增强仔猪肠道免疫功能[102]。近年来大量研究表明,植物多酚也可有效地调控母猪的免疫功能[103]。妊娠晚期饲粮中加入100 mg/kg富含多酚的连翘提取物会降低分娩时母猪血清中的白细胞介素-6(IL-6)含量并增加白细胞介素-10(IL-10)含量和GSH-Px活性[104]。具有多酚结构的水飞蓟素也被证明可以调节母猪的免疫状态,补充水飞蓟素可以降低母猪泌乳期第18天血清IL-1β含量和泌乳期第7天母猪血清TNF-α含量[90]。另有研究表明,添加300 mg/kg白藜芦醇会激活母猪胎盘中的Sirt1和Keap1/Nrf2通路,上调Sirt1和Nrf2的蛋白表达以及下调Keap1的蛋白表达,激活Keap1/Nrf2通路后,白藜芦醇显著上调胎盘组织中下游Nrf2调节基因的表达,包括CAT、谷胱甘肽过氧化物酶1(GPX1)、谷胱甘肽过氧化物酶4(GPX4)、SOD1、HO-1、谷氨酸-半胱氨酸连接酶修饰亚基(GCLM)、微粒体谷胱甘肽S-转移酶1(MGST1)和UDP葡萄糖醛酸转移酶家族1成员A1(UGT1A1)[105]。这些结果表明,白藜芦醇等多酚在调节妊娠母猪胎盘免疫功能方面具有巨大潜力。
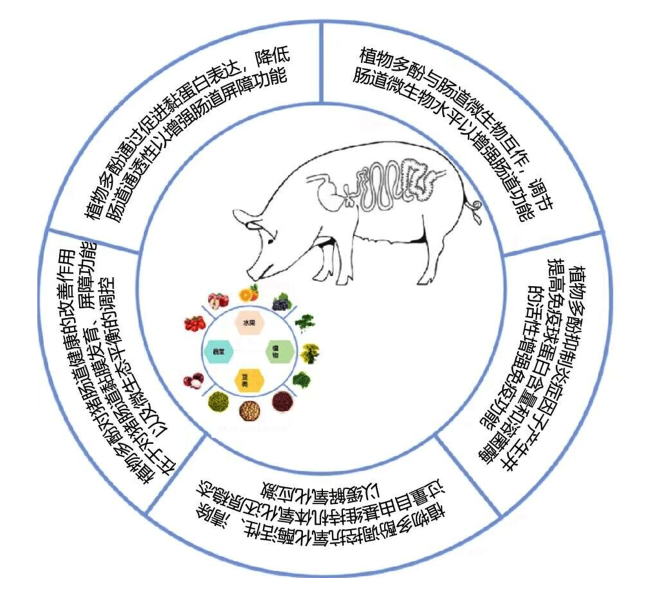
植物多酚在猪生产中的应用见图3
图3 植物多酚在猪生产中的应用

Fig.3 Application of plant polyphenols in pig production

4 小结与展望

植物多酚因其具有的抗氧化、抗菌等多种生物学功能日益成为畜牧行业中的研究焦点,其主要通过调节氧化应激、抗炎、调节脂质代谢、保护肠道屏障功能以及与肠道微生物的互作实现对机体的营养保护作用,植物多酚在养猪业中具有极大的应用前景,可用于饲料添加剂甚至药物治疗等更多样化的应用,但各作用机制之间是否存在相互作用以及存在怎样的复杂相互作用仍有待阐明。此外,从植物中提取出的多酚化合物成分复杂,在今后的研究中应结合多酚的生物活性和构效关系深入探索其在猪生产中的应用效果。同时,目前规模化生产的植物多酚仍然较少,远不能满足在畜牧行业中的广泛应用,今后应以促进机体健康特别是改善肠道屏障功能为出发点,结合高效的植物多酚分离纯化技术,开发有效的植物多酚,为其在畜牧养殖业中的广泛应用奠定基础。
[1]
MINATEL I O, BORGES C V, FERREIRA M I, et al. Phenolic compounds:functional properties,impact of processing and bioavailability[M]//SOTO-HERNANDEZ M,PALMA-TENANGO M,GARCIA-MATEOS M D R.Phenolic Compounds-Biological Activity. Rijeka: IntechOpen, 2017:1-24.

[2]
KUMAR S, PANDEY A K. Chemistry and biological activities of flavonoids:an overview[J]. The Scientific World Journal, 2013, 2013:162750.

[3]
LAMPORT D J, WILLIAMS C M. Polyphenols and cognition in humans:an overview of current evidence from recent systematic reviews and meta-analyses[J]. Brain Plasticity, 2021, 6(2):139-153.

DOI

[4]
TSAO R. Chemistry and biochemistry of dietary polyphenols[J]. Nutrients, 2010, 2(12):1231-1246.

DOI PMID

[5]
LU M F, XIAO Z T, ZHANG H Y. Where do health benefits of flavonoids come from?Insights from flavonoid targets and their evolutionary history[J]. Biochemical and Biophysical Research Communications, 2013, 434(4):701-704.

DOI

[6]
WANG X F, QI Y, ZHENG H. Dietary polyphenol,gut microbiota,and health benefits[J]. Antioxidants, 2022, 11(6):1212.

DOI

[7]
BAKY M H, ELSHAHED M, WESSJOHANN L, et al. Interactions between dietary flavonoids and the gut microbiome:a comprehensive review[J]. The British Journal of Nutrition, 2022, 128(4):577-591.

DOI

[8]
赵淑慧, 赵艳敏, 杨家俊. 黄烷酮类化合物药理活性及应用研究[J]. 粮食与食品工业, 2016, 23(6):50-51,55.

ZHAO S H, ZHAO Y M, YANG J J. Application and pharmacological activity of flavanone compounds[J]. Cereal & Food Industry, 2016, 23(6):50-51,55. (in Chinese)

[9]
DI LORENZO C, COLOMBO F, BIELLA S, et al. Polyphenols and human health:the role of bioavailability[J]. Nutrients, 2021, 13(1):273.

DOI

[10]
ZHANG Y, BALASOORIYA H, SIRISENA S, et al. The effectiveness of dietary polyphenols in obesity management:a systematic review and meta-analysis of human clinical trials[J]. Food Chemistry, 2023, 404(Pt B):134668.

[11]
WU B N, LI S Y, CHANG H T, et al. Maize flavan-4-ols and anthocyanins alleviated dextran sulfate sodium-induced colitis in mice via intestinal barrier function restoration[J]. Current Developments in Nutrition, 2020, 4(Suppl.2):nzaa045_121.

[12]
WU B N, BHATNAGAR R, INDUKURI V V, et al. Intestinal mucosal barrier function restoration in mice by maize diet containing enriched flavan-4-ols[J]. Nutrients, 2020, 12(4):896.

DOI

[13]
RUAN Z, LIU S Q, ZHOU Y, et al. Chlorogenic acid decreases intestinal permeability and increases expression of intestinal tight junction proteins in weaned rats challenged with LPS[J]. PLoS One, 2014, 9(6):e97815.

DOI

[14]
BERGMANN H, ROGOLL D, SCHEPPACH W, et al. The ussing type chamber model to study the intestinal transport and modulation of specific tight-junction genes using a colonic cell line[J]. Molecular Nutrition & Food Research, 2009, 53(10):1211-1225.

[15]
VALDEZ J C, CHO J, BOLLING B W. Aronia berry inhibits disruption of Caco-2 intestinal barrier function[J]. Archives of Biochemistry and Biophysics, 2020, 688:108409.

DOI

[16]
SONG L Q, WU T, ZHANG L, et al. Chlorogenic acid improves the intestinal barrier by relieving endoplasmic reticulum stress and inhibiting ROCK/MLCK signaling pathways[J]. Food & Function, 2022, 13(8):4562-4575.

[17]
XIAO K, ZHOU M H, LV Q Q, et al. Protocatechuic acid and quercetin attenuate ETEC-caused IPEC-1 cell inflammation and injury associated with inhibition of necroptosis and pyroptosis signaling pathways[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):5.

DOI PMID

[18]
LUIS A S, HANSSON G C. Intestinal mucus and their glycans:a habitat for thriving microbiota[J]. Cell Host & Microbe, 2023, 31(7):1087-1100.

[19]
FENG G X, HAN K N, YANG Q, et al. Interaction of pyrogallol-containing polyphenols with mucin reinforces intestinal mucus barrier properties[J]. Journal of Agricultural and Food Chemistry, 2022, 70(30):9536-9546.

DOI

[20]
VOLSTATOVA T, MARCHICA A, HRONCOVA Z, et al. Effects of chlorogenic acid,epicatechin gallate,and quercetin on mucin expression and secretion in the Caco-2/HT29-MTX cell model[J]. Food Science & Nutrition, 2019, 7(2):492-498.

[21]
GREY M J, DE LUCA H, WARD D V, et al. The epithelial-specific ER stress sensor ERN2/IRE1β enables host-microbiota crosstalk to affect colon goblet cell development[J]. The Journal of Clinical Investigation, 2022, 132(17):e153519.

DOI

[22]
HAN P H, YU Y J, ZHANG L, et al. Citrus peel ameliorates mucus barrier damage in HFD-fed mice[J]. The Journal of Nutritional Biochemistry, 2023, 112:109206.

DOI

[23]
DAMIANO S, SASSO A, DE FELICE B, et al. Quercetin increases MUC2 and MUC5AC gene expression and secretion in intestinal goblet cell-like LS174T via PLC/PKCα/ERK1-2 pathway[J]. Frontiers in Physiology, 2018, 9:357.

DOI PMID

[24]
SRINIVASAN B, KOLLI A R, ESCH M B, et al. TEER measurement techniques for in vitro barrier model systems[J]. Journal of Laboratory Automation, 2015, 20(2):107-126.

DOI

[25]
ED NIGNPENSE B, FRANCIS N, BLANCHARD C, et al. Bioaccessibility and bioactivity of cereal polyphenols:a review[J]. Foods, 2021, 10(7):1595.

DOI

[26]
HOLST B, WILLIAMSON G. Nutrients and phytochemicals:from bioavailability to bioefficacy beyond antioxidants[J]. Current Opinion in Biotechnology, 2008, 19(2):73-82.

DOI

[27]
DEL RIO D, RODRIGUEZ-MATEOS A, SPENCER J P E, et al. Dietary (poly) phenolics in human health:structures,bioavailability,and evidence of protective effects against chronic diseases[J]. Antioxidants & Redox Signaling, 2013, 18(14):1818-1892.

[28]
CARDONA F, ANDRÉS-LACUEVA C, TULIPANI S, et al. Benefits of polyphenols on gut microbiota and implications in human health[J]. The Journal of Nutritional Biochemistry, 2013, 24(8):1415-1422.

DOI

[29]
MANACH C, SCALBERT A, MORAND C, et al. Polyphenols:food sources and bioavailability[J]. The American Journal of Clinical Nutrition, 2004, 79(5):727-747.

DOI

[30]
SAURA-CALIXTO F, SERRANO J, GOÑI I. Intake and bioaccessibility of total polyphenols in a whole diet[J]. Food Chemistry, 2007, 101(2):492-501.

DOI

[31]
IGLESIAS-AGUIRRE C E, GARCÍA-VILLALBA R, BELTRÁN D, et al. Gut bacteria involved in ellagic acid metabolism to yield human urolithin metabotypes revealed[J]. Journal of Agricultural and Food Chemistry, 2023, 71(9):4029-4035.

DOI

[32]
BELTRÁN D, ROMO-VAQUERO M, ESPÍN J C, et al. Ellagibacter isourolithinifaciens gen.nov.,sp.nov.,a new member of the family Eggerthellaceae,isolated from human gut[J]. International Journal of Systematic and Evolutionary Microbiology, 2018, 68(5):1707-1712.

DOI

[33]
ULLUWISHEWA D, MONTOYA C A, MACE L, et al. Biotransformation of rutin in in vitro porcine ileal and colonic fermentation models[J]. Journal of Agricultural and Food Chemistry, 2023, 71(33):12487-12496.

DOI

[34]
UEHARA M. Isoflavone metabolism and bone-sparing effects of daidzein-metabolites[J]. Journal of Clinical Biochemistry and Nutrition, 2013, 52(3):193-201.

DOI PMID

[35]
BALDI S, TRISTÁN ASENSI M, PALLECCHI M, et al. Interplay between lignans and gut microbiota:nutritional,functional and methodological aspects[J]. Molecules, 2023, 28(1):343.

DOI

[36]
LIU J H, HE Z Y, MA N, et al. Beneficial effects of dietary polyphenols on high-fat diet-induced obesity linking with modulation of gut microbiota[J]. Journal of Agricultural and Food Chemistry, 2020, 68(1):33-47.

DOI PMID

[37]
WEN J J, LI M Z, CHEN C H, et al. Tea polyphenol and epigallocatechin gallate ameliorate hyperlipidemia via regulating liver metabolism and remodeling gut microbiota[J]. Food Chemistry, 2023, 404(Pt A):134591.

[38]
ZHANG K K, YANG J Z, CHEN L J, et al. Gut microbiota participates in polystyrene microplastics-induced hepatic injuries by modulating the gut-liver axis[J]. ACS Nano, 2023, 17(15):15125-15145.

DOI

[39]
HUANG J C, CHEN L, XUE B, et al. Different flavonoids can shape unique gut microbiota profile in vitro[J]. Journal of Food Science, 2016, 81(9):H2273-H2279.

[40]
ETXEBERRIA U, ARIAS N, BOQUÉ N, et al. Reshaping faecal gut microbiota composition by the intake of trans-resveratrol and quercetin in high-fat sucrose diet-fed rats[J]. The Journal of Nutritional Biochemistry, 2015, 26(6):651-660.

DOI

[41]
PORRAS D, NISTAL E, MARTÍNEZ-FLÓREZ S, et al. Protective effect of quercetin on high-fat diet-induced non-alcoholic fatty liver disease in mice is mediated by modulating intestinal microbiota imbalance and related gut-liver axis activation[J]. Free Radical Biology & Medicine, 2017, 102:188-202.

DOI

[42]
LIN H, MENG L P, SUN Z Z, et al. Yellow wine polyphenolic compound protects against doxorubicin-induced cardiotoxicity by modulating the composition and metabolic function of the gut microbiota[J]. Circulation.Heart Failure, 2021, 14(10):e008220.

[43]
HE N, SHEN G R, JIN X Q, et al. Resveratrol suppresses microglial activation and promotes functional recovery of traumatic spinal cord via improving intestinal microbiota[J]. Pharmacological Research, 2022, 183:106377.

DOI

[44]
GAO X X, YUE C B, TIAN R C, et al. The regulatory effects of specific polyphenols on Akkermansia are dependent on uridine[J]. Food Chemistry, 2023, 410:135367.

DOI

[45]
WU Z H, HUANG S M, LI T T, et al. Gut microbiota from green tea polyphenol-dosed mice improves intestinal epithelial homeostasis and ameliorates experimental colitis[J]. Microbiome, 2021, 9(1):184.

DOI PMID

[46]
DONG S J, ZHU M, WANG K, et al. Dihydromyricetin improves DSS-induced colitis in mice via modulation of fecal-bacteria-related bile acid metabolism[J]. Pharmacological Research, 2021, 171:105767.

DOI

[47]
WEN C Y, ZHANG F, YANG K, et al. Dihydromyricetin alleviates intestinal inflammation by changing intestinal microbial metabolites and inhibiting the expression of the MyD88/NF-κB signaling pathway[J]. Animal Research and One Health, 2023, 1(2):219-232.

DOI

[48]
WAN Y, FU Y Q, WANG F L, et al. Protective effects of a lipid extract from hard-shelled mussel (Mytilus coruscus) on intestinal integrity after lipopolysaccharide challenge in mice[J]. Nutrients, 2018, 10(7):860.

DOI

[49]
SAIDOUNE-MALEK I, AIT-LOUNIS A, LARABA-DJEBARI F. TNF-α antagonist improves oxidative stress and lipid disorders induced by scorpion venom in the intestinal tissue[J]. Acta Tropica, 2018, 185:307-313.

DOI

[50]
QIAO R X, SHENG C, LU Y F, et al. Microplastics induce intestinal inflammation,oxidative stress,and disorders of metabolome and microbiome in zebrafish[J]. The Science of the Total Environment, 2019, 662:246-253.

DOI

[51]
LI X, WANG C C, ZHU J, et al. Sodium butyrate ameliorates oxidative stress-induced intestinal epithelium barrier injury and mitochondrial damage through AMPK-mitophagy pathway[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022:3745135.

[52]
SURAWEERA T L, RUPASINGHE H P V, DELLAIRE G, et al. Regulation of Nrf2/ARE pathway by dietary flavonoids:a friend or foe for cancer management?[J]. Antioxidants, 2020, 9(10):973.

DOI

[53]
SARKER U, OBA S. Polyphenol and flavonoid profiles and radical scavenging activity in leafy vegetable Amaranthus gangeticus[J]. BMC Plant Biology, 2020, 20(1):499.

DOI

[54]
BANC R, POPA D S, COZMA-PETRUT A, et al. Protective effects of wine polyphenols on oxidative stress and hepatotoxicity induced by acrylamide in rats[J]. Antioxidants, 2022, 11(7):1347.

DOI

[55]
MI Y S, ZHANG W T, TIAN H Y, et al. EGCG evokes Nrf2 nuclear translocation and dampens PTP1B expression to ameliorate metabolic misalignment under insulin resistance condition[J]. Food & Function, 2018, 9(3):1510-1523.

[56]
ZHOU Z M, LI K, GUO J K, et al. Green tea catechin EGCG ameliorates thioacetamide-induced hepatic encephalopathy in rats via modulation of the microbiota-gut-liver axis[J]. Molecular Nutrition & Food Research, 2023, 67(8):e2200821.

[57]
ZHUANG Y, WU H R, WANG X X, et al. Resveratrol attenuates oxidative stress-induced intestinal barrier injury through PI3K/Akt-mediated Nrf2 signaling pathway[J]. Oxidative Medicine and Cellular Longevity, 2019, 2019:7591840.

[58]
PIOTROWSKA M, SWIERCZYNSKI M, FICHNA J, et al. The Nrf2 in the pathophysiology of the intestine:molecular mechanisms and therapeutic implications for inflammatory bowel diseases[J]. Pharmacological Research, 2021, 163:105243.

DOI

[59]
LIU H, JOHNSTON L J, WANG F L, et al. Triggers for the Nrf2/ARE signaling pathway and its nutritional regulation:potential therapeutic applications of ulcerative colitis[J]. International Journal of Molecular Sciences, 2021, 22(21):11411.

DOI

[60]
LI B T, WANG Y X, JIANG X L, et al. Natural products targeting Nrf2/ARE signaling pathway in the treatment of inflammatory bowel disease[J]. Biomedicine & Pharmacotherapy, 2023, 164:114950.

DOI

[61]
LI Y, SHEN L, LUO H S. Luteolin ameliorates dextran sulfate sodium-induced colitis in mice possibly through activation of the Nrf2 signaling pathway[J]. International Immunopharmacology, 2016, 40:24-31.

DOI PMID

[62]
ROBLES-ALMAZAN M, PULIDO-MORAN M, MORENO-FERNANDEZ J, et al. Hydroxytyrosol:bioavailability,toxicity,and clinical applications[J]. Food Research International, 2018, 105:654-667.

DOI

[63]
BERTELLI M, KIANI A K, PAOLACCI S, et al. Hydroxytyrosol:a natural compound with promising pharmacological activities[J]. Journal of Biotechnology, 2020, 309:29-33.

DOI

[64]
HAN H, ZHONG R Q, ZHANG S F, et al. Hydroxytyrosol attenuates diquat-induced oxidative stress by activating Nrf2 pathway and modulating colonic microbiota in mice[J]. The Journal of Nutritional Biochemistry, 2023, 113:109256.

DOI

[65]
SANGARAJU R, NALBAN N, ALAVALA S, et al. Protective effect of galangin against dextran sulfate sodium (DSS)-induced ulcerative colitis in Balb/c mice[J]. Inflammation Research, 2019, 68(8):691-704.

DOI

[66]
JEON Y D, LEE J H, LEE Y M, et al. Puerarin inhibits inflammation and oxidative stress in dextran sulfate sodium-induced colitis mice model[J]. Biomedicine & Pharmacotherapy, 2020, 124:109847.

DOI

[67]
DING X Q, JIAN T Y, WU Y X, et al. Ellagic acid ameliorates oxidative stress and insulin resistance in high glucose-treated HepG2 cells via miR-223/keap1-Nrf2 pathway[J]. Biomedicine & Pharmacotherapy, 2019, 110:85-94.

DOI

[68]
ZHENG S G, SONG J C, QIN X, et al. Dietary supplementation of red-osier dogwood polyphenol extract changes the ileal microbiota structure and increases Lactobacillus in a pig model[J]. AMB Express, 2021, 11(1):145.

DOI

[69]
LU Y J, ZHAO M W, MO J Y, et al. Dietary supplementation ellagic acid on the growth,intestinal immune response,microbiota,and inflammation in weaned piglets[J]. Frontiers in Veterinary Science, 2022, 9:980271.

DOI

[70]
CAPRARULO V, GIROMINI C, ROSSI L. Review:chestnut and quebracho tannins in pig nutrition:the effects on performance and intestinal health[J]. Animal, 2021, 15(1):100064.

DOI

[71]
XU M, CHEN X L, HUANG Z Q, et al. Effects of dietary grape seed proanthocyanidin extract supplementation on meat quality,muscle fiber characteristics and antioxidant capacity of finishing pigs[J]. Food Chemistry, 2022, 367:130781.

DOI

[72]
XU X J, CHEN X L, CHEN D W, et al. Effects of dietary apple polyphenol supplementation on carcass traits,meat quality,muscle amino acid and fatty acid composition in finishing pigs[J]. Food & Function, 2019, 10(11):7426-7434.

[73]
WEN W X, CHEN X L, HUANG Z Q, et al. Dietary lycopene supplementation improves meat quality,antioxidant capacity and skeletal muscle fiber type transformation in finishing pigs[J]. Animal Nutrition, 2022, 8:256-264.

DOI

[74]
XU M, CHEN X L, HUANG Z Q, et al. Grape seed proanthocyanidin extract promotes skeletal muscle fiber type transformation via AMPK signaling pathway[J]. The Journal of Nutritional Biochemistry, 2020, 84:108462.

DOI

[75]
XU M, CHEN X L, HUANG Z Q, et al. Procyanidin B2 promotes skeletal slow-twitch myofiber gene expression through the AMPK signaling pathway in C2C12 myotubes[J]. Journal of Agricultural and Food Chemistry, 2020, 68(5):1306-1314.

DOI PMID

[76]
JIANG H, PU Y, LI Z H, et al. Adiponectin,may be a potential protective factor for obesity-related osteoarthritis[J]. Diabetes,Metabolic Syndrome and Obesity, 2022, 15:1305-1319.

DOI

[77]
唐妮, 王书瑶, 齐锦雯, 等. 脂联素调控脂质代谢的研究进展[J]. 畜牧兽医学报, 2018, 49(12):2550-2557.

TANG N, WANG S Y, QI J W, et al. Research progress on adiponectin regulating lipid metabolism[J]. Acta Veterinaria et Zootechnica Sinica, 2018, 49(12):2550-2557. (in Chinese)

[78]
ZHANG S B, CUI Y Y, GAO X T, et al. Resveratrol inhibits the formation and accumulation of lipid droplets through AdipoQ signal pathway and lipid metabolism lncRNAs[J]. The Journal of Nutritional Biochemistry, 2023, 117:109351.

DOI

[79]
LIAO P, LI Y H, LI M J, et al. Baicalin alleviates deoxynivalenol-induced intestinal inflammation and oxidative stress damage by inhibiting NF-κB and increasing mTOR signaling pathways in piglets[J]. Food and Chemical Toxicology, 2020, 140:111326.

DOI PMID

[80]
CHEN J L, YU B, CHEN D W, et al. Chlorogenic acid improves intestinal barrier functions by suppressing mucosa inflammation and improving antioxidant capacity in weaned pigs[J]. The Journal of Nutritional Biochemistry, 2018, 59:84-92.

DOI

[81]
LUO X, WU S Z, JIA H, et al. Resveratrol alleviates enterotoxigenic Escherichia coli K88-induced damage by regulating SIRT-1 signaling in intestinal porcine epithelial cells[J]. Food & Function, 2022, 13(13):7346-7360.

[82]
WEI C, CHEN X L, CHEN D W, et al. Effects of dietary dihydromyricetin supplementation on intestinal barrier and humoral immunity in growing-finishing pigs[J]. Animal Biotechnology, 2022, 33(7):1398-1406.

DOI

[83]
QIN W X, XU B Y, CHEN Y W, et al. Dietary ellagic acid supplementation attenuates intestinal damage and oxidative stress by regulating gut microbiota in weanling piglets[J]. Animal Nutrition, 2022, 11:322-333.

DOI PMID

[84]
LI Y, HE G R, CHEN D W, et al. Supplementing daidzein in diets improves the reproductive performance,endocrine hormones and antioxidant capacity of multiparous sows[J]. Animal Nutrition, 2021, 7(4):1052-1060.

DOI

[85]
SUN J J, WANG P, CHEN G P, et al. Effect of Moringa oleifera supplementation on productive performance,colostrum composition and serum biochemical indexes of sow[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(1):291-299.

DOI

[86]
HU Y J, GAO K G, ZHENG C T, et al. Effect of dietary supplementation with glycitein during late pregnancy and lactation on antioxidative indices and performance of primiparous sows[J]. Journal of Animal Science, 2015, 93(5):2246-2254.

DOI PMID

[87]
FAN Z Y, XIAO Y, CHEN Y H, et al. Effects of catechins on litter size,reproductive performance and antioxidative status in gestating sows[J]. Animal Nutrition, 2015, 1(4):271-275.

DOI

[88]
WANG T X, YAO W L, XIA J, et al. Dietary supplementation with garcinol during late gestation and lactation facilitates acid-base balance and improves the performance of sows and newborn piglets1[J]. Journal of Animal Science, 2019, 97(11):4557-4566.

DOI PMID

[89]
XIE K H, SUN Y X, DENG L L, et al. Effects of dietary chlorogenic acid supplementation on growth performance,meat quality,and muscle flavor substances in finishing pigs[J]. Foods, 2023, 12(16):3047.

DOI

[90]
JIANG X J, LIN S, LIN Y, et al. Effects of silymarin supplementation during transition and lactation on reproductive performance,milk composition and haematological parameters in sows[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(6):1896-1903.

DOI

[91]
CHEN X L, WANG Y X, CHEN D W, et al. Dietary ferulic acid supplementation improves intestinal antioxidant capacity and intestinal barrier function in weaned piglets[J]. Animal Biotechnology, 2022, 33(2):356-361.

DOI

[92]
QIU Y Q, YANG J, WANG L, et al. Dietary resveratrol attenuation of intestinal inflammation and oxidative damage is linked to the alteration of gut microbiota and butyrate in piglets challenged with deoxynivalenol[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):71.

DOI PMID

[93]
CHEN J, HUANG Z Y, CAO X H, et al. Plant-derived polyphenols as Nrf2 activators to counteract oxidative stress and intestinal toxicity induced by deoxynivalenol in swine:an emerging research direction[J]. Antioxidants, 2022, 11(12):2379.

DOI

[94]
JIA H, ZHANG Y C, SI X M, et al. Quercetin alleviates oxidative damage by activating nuclear factor erythroid 2-related factor 2 signaling in porcine enterocytes[J]. Nutrients, 2021, 13(2):375.

DOI

[95]
BAO M L, LIANG M, SUN X Y, et al. Baicalin alleviates LPS-induced oxidative stress via NF-κB and Nrf2-HO1 signaling pathways in IPEC-J2 cells[J]. Frontiers in Veterinary Science, 2021, 8:808233.

DOI

[96]
SAQIB U, KELLEY T T, PANGULURI S K, et al. Polypharmacology or promiscuity?structural interactions of resveratrol with its bandwagon of targets[J]. Frontiers in Pharmacology, 2018, 9:1201.

DOI

[97]
KWON H S, LIM H W, WU J, et al. Three novel acetylation sites in the Foxp3 transcription factor regulate the suppressive activity of regulatory T cells[J]. The Journal of Immunology, 2012, 188(6):2712-2721.

DOI

[98]
GAO B X, KONG Q F, KEMP K, et al. Analysis of sirtuin 1 expression reveals a molecular explanation of IL-2-mediated reversal of T-cell tolerance[J]. Proceedings of the National Academy of Sciences of the United States of America, 2012, 109(3):899-904.

DOI PMID

[99]
ZHANG J P, LEE S M, SHANNON S, et al. The type III histone deacetylase Sirt1 is essential for maintenance of T cell tolerance in mice[J]. The Journal of Clinical Investigation, 2009, 119(10):3048-3058.

DOI

[100]
BORRA M T, SMITH B C, DENU J M. Mechanism of human SIRT1 activation by resveratrol[J]. The Journal of Biological Chemistry, 2005, 280(17):17187-17195.

DOI

[101]
CONG L, LEI M Y, LIU Z Q, et al. Resveratrol attenuates manganese-induced oxidative stress and neuroinflammation through SIRT1 signaling in mice[J]. Food and Chemical Toxicology, 2021, 153:112283.

DOI PMID

[102]
HUANG J C, QIN W X, XU B Y, et al. Rice bran oil supplementation protects swine weanlings against diarrhea and lipopolysaccharide challenge[J]. Journal of Zhejiang University Science B, 2023, 24(5):430-441.

DOI

[103]
CHEN J, HUANG Z Y, CAO X H, et al. Plant-derived polyphenols in sow nutrition:an update[J]. Animal Nutrition, 2023, 12:96-107.

DOI

[104]
LONG S F, WU D, HE T F, et al. Dietary supplementation with Forsythia suspensa extract during late gestation improves reproductive performance,colostrum composition,antioxidant status,immunoglobulin,and inflammatory cytokines in sows and newborn piglets[J]. Animal Feed Science and Technology, 2021, 271:114700.

DOI

[105]
MENG Q W, GUO T, LI G Q, et al. Dietary resveratrol improves antioxidant status of sows and piglets and regulates antioxidant gene expression in placenta by Keap1-Nrf2 pathway and Sirt1[J]. Journal of Animal Science and Biotechnology, 2018, 9(3):639-651.

文章导航

/