综述

硒代蛋氨酸的生物学功能及其在畜禽生产中的应用

  • 唐煌尧 , 1, 2 ,
  • 魏浩 2 ,
  • 张伟 2 ,
  • 贾刚 , 1, *
展开
  • 1 四川农业大学动物营养研究所,动物抗病营养教育部重点实验室,成都 611130
  • 2 四川新一美生物科技有限公司,绵阳 622650
*贾 刚,教授,博士生导师,E-mail:

唐煌尧(1995—),男,四川绵阳人,助理畜牧师,硕士,从事饲料资源开发及高效利用研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2023-11-10

  网络出版日期: 2024-04-15

基金资助

四川省科技计划资助(2021ZDZX0009)

四川省自然科学基金项目(2022 NSFSC 0060)

Biological Functions and Application in Livestock and Poultry Production of Selenomethionine

  • TANG Huangyao , 1, 2 ,
  • WEI Hao 2 ,
  • ZHANG Wei 2 ,
  • JIA Gang , 1
Expand
  • 1 Key Laboratory for Animal Disease-Resistance Nutrition of Ministry of Education, Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Sichuan Sinyiml Biotechnology Co., Ltd., Mianyang 622650, China
*professor, E-mail:

Received date: 2023-11-10

  Online published: 2024-04-15

摘要

硒代蛋氨酸(Se-Met)是动物从植物性饲料原料中获取硒的主要形式,具有抗氧化、抗炎、抗病毒等多种生物学功能,在提高畜禽生产性能、改善畜产品品质、缓解畜禽应激等方面发挥着积极作用。本文通过分析近年来国内外文献,对硒代蛋氨酸的抗氧化、抗炎、抗病毒等主要生物学功能、作用机理及其在畜禽生产中的应用概况进行综述,旨在为硒代蛋氨酸在畜禽生产中的高效应用提供参考依据。

本文引用格式

唐煌尧 , 魏浩 , 张伟 , 贾刚 . 硒代蛋氨酸的生物学功能及其在畜禽生产中的应用[J]. 动物营养学报, 2024 , 36(4) : 2155 -2162 . DOI: 10.12418/CJAN2024.187

Abstract

Selenomethionine (Se-Met) is the main form of selenium obtained by animals from plant feed materials, and it has a variety of biological functions such as anti-oxidation, anti-inflammation, anti-virus. It plays a positive role in improving the performance of livestock and poultry, improving the quality of animal products, and alleviating the stress in these animals. In this paper, by analyzing domestic and international literatures in recent years, the main biological functions of selenomethionine such as anti-oxidation, anti-inflammation, anti-virus, and its mechanism of action, and its application in livestock and poultry production, in order to provide theoretical reference for the efficient application of selenomethionine in livestock and poultry production.

硒是维持动物正常生命活动不可或缺的微量元素之一,亚硒酸钠等无机硒由于成本低廉而被广泛应用于畜牧生产中,但因其生物学利用率低、毒性较大、污染环境等,已被日本和瑞典等国家明令禁止或限制使用[1]。与亚硒酸钠相比,有机硒如L-硒代蛋氨酸(L-selenomethionine,L-Se-Met)的生物学利用率更高[2],能够通过氨基酸的代谢途径,非特异性的沉积在动物机体的组织蛋白中,增强机体的抗氧化能力,缓解畜禽应激[3-5]。当动物遭受外部不利环境影响时,其采食量会下降或停止进食,储存在体内的L-硒代蛋氨酸会随蛋白质分解代谢过程释放出硒,为合成谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)和其他硒酶提供硒源,避免体内硒缺乏[6],增强动物的抗病能力。因此,硒代蛋氨酸在畜牧生产中受到越来越多的关注,本文就硒代蛋氨酸的抗氧化、抗炎、抗病毒等主要生物学功能、作用机理及其在畜禽生产中的应用概况进行综述,旨在为硒代蛋氨酸在畜禽生产中的高效应用提供参考依据。

1 硒代蛋氨酸简介

1.1 硒代蛋氨酸的来源和结构
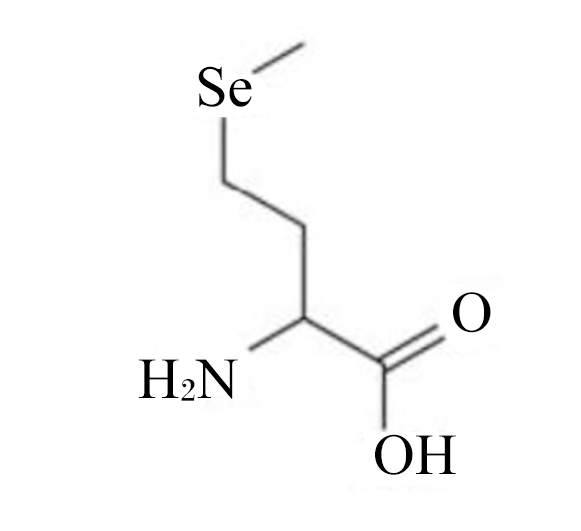
饲粮中硒的含量通常低于0.1 mg/kg,动物只能从自然环境或食物中摄取,因此需要在饲粮中额外添加硒来满足动物对硒的需求。小麦、大麦、玉米等谷物是饲粮中硒代蛋氨酸的天然来源之一。发酵产生的酵母硒有19.0%~71.8%是以硒代蛋氨酸的形式存在,平均为55.8%[7],而化工合成的硒代蛋氨酸纯度能达到99%以上[8]。因此,植物性原料、酵母硒以及化工合成等是硒代蛋氨酸的主要来源。硒代蛋氨酸主要有L型、D型以及DL混合型3种旋光形式存在,其化学结构式如图1所示。
图1 硒代蛋氨酸的化学结构式

Fig.1 Chemical structure formula of selenomethionine[9]

1.2 硒代蛋氨酸的吸收和代谢

无机硒和有机硒的吸收机制存在差异。无机硒被动物摄入后,主要在小肠部位通过简单的扩散方式被吸收,而有机硒(如硒代蛋氨酸)主要通过钠离子(Na+)依赖性中性氨基酸转运系统被小肠吸收入血[10],其中十二指肠和空肠前段是硒代蛋氨酸的主要吸收部位[11];进入血液后的硒代蛋氨酸能参与机体组织器官蛋白质的合成与降解或在肝脏中经过转化合成硒蛋白;机体无法利用的硒化物可以甲基化生成二甲基硒和三甲基硒离子,分别通过呼吸和尿液排出体外,硒在机体内的代谢过程[12]图2所示。研究表明,21日龄肉仔鸡红细胞、肝脏、胰脏和胸肌硒含量及肾脏、胰脏GSH-Px活性等可作为评价肉仔鸡对不同硒源生物学利用率的敏感指标。肉仔鸡对各硒源生物学利用率平均值的高低顺序为:硒代蛋氨酸>酵母硒>硒代蛋氨酸羟基类似物>亚硒酸钠>纳米硒[13],表明硒代蛋氨酸是目前生物学利用率最高的硒化合物。硒代蛋氨酸在缓解氧化应激[14]、抗癌[15]、抑制病毒复制[16]等方面发挥着重要作用,因其毒性小、吸收效率高、安全环保等优点,是畜牧生产中一种十分理想的硒补充剂。
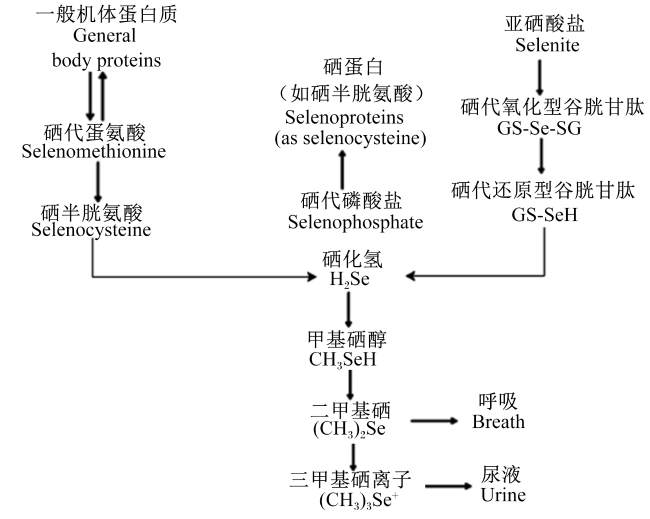
图2 硒在体内的代谢途径

Fig.2 Metabolism of selenium in body[12]

2 硒代蛋氨酸的生物学功能及其作用机理

2.1 硒代蛋氨酸的抗氧化功能及其作用机理

硒作为GSH-Px、硫氧还蛋白还原酶(thioredoxin reductase,TrxR)和脱碘酶(iodothyronine deiodinase,DIO)等的辅助因子,在提高机体抗氧化能力方面发挥着重要作用[17]。大量研究表明,在一些氧化应激模型中,硒代蛋氨酸均能发挥良好的抗氧化作用。氨气是一种无色但有强烈刺鼻气味的有害气体,长时间暴露于高浓度氨气的养殖环境中,会严重损害动物的生长发育和机体健康[18]。据Zhou等[5]报道,氨气暴露会使育肥猪脾脏GSH-Px和超氧化物歧化酶(superoxide dismutase,SOD)活性显著下降(降低约50%),丙二醛(malondialdehyde,MDA)含量显著增加,导致育肥猪发生氧化应激,而添加0.5 mg/kg的硒代蛋氨酸后,能够显著提高氨气暴露猪脾脏的抗氧化酶活性以及降低脂质过氧化物的含量,进一步研究发现,硒代蛋氨酸可能通过Kelch样环氧氯丙烷相关蛋白-1(Kelch-like ECH-associated protein 1,Keap1)/核因子E2相关因子2(nuclear factor-E2-related factor 2,Nrf2)/血红素氧合酶-1(heme oxygenase-1,HO-1)信号通路缓解过量吸入氨气引起的脾脏氧化应激损伤。Wang等[19]在氨气诱导的育肥猪肺组织氧化应激中也有类似发现。T-2毒素是毒性最大的A型单端孢霉烯族化合物,常见于小麦和玉米等谷物中,可引起免疫抑制、神经毒性、细胞凋亡,甚至诱导肿瘤发生[20]。Liu等[21]在应用T-2毒素建立氧化应激模型的研究中发现,硒代蛋氨酸能提高肉兔空肠SOD和GSH-Px活性,降低活性氧(reactive oxygen species,ROS)、MDA含量,提高肠道的抗氧化能力。紧密连接(tight junction,TJ)是肠上皮细胞之间的主要连接,在调节肠黏膜通透性,防止细菌、内毒素和有毒大分子进入血液中发挥关键作用[22],TJ主要由Claudin家族、Occludin和连接黏附分子以及ZO-1、ZO-2、ZO-3等闭合小环蛋白组成[23]。缺硒会导致这些紧密连接蛋白的基因表达水平下降,破坏肠道的物理屏障[24]。研究表明,硒代蛋氨酸可通过提高肠道绒毛高度,改善肠道结构,上调空肠ZO-1和Occludin等紧密连接蛋白的表达,保护肠道屏障的完整性,减弱T-2毒素诱导的肠道氧化应激[21]。Chen等[25]在氟诱导的肉鸡慢性氧化应激模型中也有类似发现,硒代蛋氨酸能提高十二指肠和空肠中Claudin-1、OccludinZO-1的mRNA和蛋白表达水平,缓解肉鸡由于氧化应激引起的肠道损伤,改善肠道健康。以上研究结果表明,硒代蛋氨酸可能通过Keap1/Nrf2/HO-1信号通路,提高机体组织的抗氧化酶活性,增强肠道的物理屏障功能,改善动物的肠道健康,并缓解各种应激对机体组织造成的不利影响,但是否还存在其他作用机制有待进一步研究。

2.2 硒代蛋氨酸的抗炎功能及其作用机理

细胞因子主要介导免疫反应和炎症反应,其中肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、白细胞介素(interleukin,IL)-1β和IL-6等均为促炎细胞因子,可诱导组织细胞产生严重的炎症[26]。Wang等[27]在PM2.5诱导的炎症模型中研究发现,PM2.5处理后,A549细胞中TNF-α、IL-6和IL-8等炎症因子的蛋白表达水平显著提高,进一步研究发现,这些炎症因子蛋白表达水平的上调与环状GMP-AMP合成酶(cyclic GMP-AMP synthase,cGAS)/干扰素基因刺激因子(stimulator of interferon genes,STING)/核转录因子-κB(nuclear transcription factor-κB,NF-κB)信号通路密切相关,硒代蛋氨酸预处理可以通过阻断PM2.5诱导的A549细胞的cGAS/STING/NF-κB信号通路,下调炎症因子的蛋白表达水平,抑制炎症反应,防止细胞衰老。Zhang等[28]研究也发现,与赭曲霉毒素A(ochratoxin A,OTA)处理相比,添加0.4 mg/kg的硒代蛋氨酸能显著降低家兔空肠中NF-κBTNF-αIL-1βIL-6等炎症因子的基因和蛋白表达水平,表明硒代蛋氨酸可能通过抑制NF-κB信号通路缓解OTA引起的肠道炎症反应。另外,Th1/Th2细胞失衡也与炎症的发生密切相关[29]。Th1细胞主要分泌IL-2、干扰素-γ(interferon-γ,IFN-γ)、TNF-α等细胞因子参与调节细胞免疫,引起炎症反应[30-31]。Th2细胞主要分泌IL-4、IL-5、IL-10、IL-13等细胞因子,这些细胞因子可促进Th2细胞增殖,抑制Th1细胞增殖,辅助B细胞活化,发挥体液免疫的作用[32]。IL-4/IFN-γ比值是Th1/Th2失衡的重要指标[33]。Zhang等[34]研究发现,硒代蛋氨酸能通过调节猪小肠上皮细胞Th1/Th2之间的平衡,抑制炎症因子的分泌,拮抗氨诱导的肠道炎症反应。以上研究结果表明,硒代蛋氨酸能通过抑制NF-κB信号通路降低炎症因子的基因和蛋白表达,调节Th1/Th2之间的平衡,缓解肠道炎症。

2.3 硒代蛋氨酸的抗病毒功能及其作用机理

硒代蛋氨酸具有一定的抗病毒作用。猪德尔塔冠状病毒(porcine deltacoronavirus,PDCoV)是近年来新出现的一种猪肠道冠状病毒,主要引起仔猪不同程度的呕吐和腹泻,目前还没有商业化的疫苗和抗病毒药物在养殖行业中普遍使用,该病毒自报道以来对世界范围内的养猪业造成了极大的危害[35-36]。干扰素(interferons,IFNs)是一个多样化的细胞因子家族,具有抗病毒和免疫调节功能等多种活性[37]。Ren等[38]以猪肾上皮细胞(pig kidney epithelial cells,LLC-PK)为试验对象的研究发现,添加不同水平的硒代蛋氨酸能显著抑制PDCoV在LLC-PK中的复制,并呈剂量依赖效应,硒代蛋氨酸还能提高细胞的抗氧化酶活性,增强线粒体抗病毒信号蛋白(mitochondrial antiviral signal protein,MAVS)的表达和干扰素调节因子-3(interferon regulatory factor-3,IRF-3)的磷酸化,促进IFNα/β的分泌,因此,硒代蛋氨酸的抗病毒作用机制可能是通过激活MAVS通路,促进IFNs的分泌来抑制病毒的复制。宿主细胞能为病毒感染提供所需的能量,己糖激酶2(hexokinase 2,HK2)是糖酵解途径中的关键限速酶[39]。Ren等[40]研究发现,硒代蛋氨酸能通过降低HK2活性调节糖酵解过程,抑制PDCoV的复制。综上所述,硒代蛋氨酸能够促进IFNs的分泌和抑制糖酵解的关键限速酶HK2的基因表达,从而抑制病毒的复制,但有关硒代蛋氨酸的抗病毒作用研究多集中在细胞分子层面,在动物体内的试验效果还有待进一步验证。

3 硒代蛋氨酸在畜禽生产中的应用

3.1 硒代蛋氨酸在猪生产中的应用

硒在畜禽饲粮中的添加量很少,最高限量为0.5 mg/kg,所以在使用过程中需注意硒在饲粮中的混合均匀度问题。硒代蛋氨酸对猪生长性能影响的报道较少且各有差异。Falk等[2]研究表明,添加0.26和0.43 mg/kg的硒代蛋氨酸(以硒计)能提高仔猪的体重;而据Chao等[41]报道,添加0.1、0.2、0.3、0.4和0.5 mg/kg的羟基硒代蛋氨酸(以硒计)对断奶仔猪的生长性能无显著影响;此外,蒋宗勇等[42]报道,添加0.15和0.3 mg/kg的硒代蛋氨酸(以硒计)对肥育猪的生长性能也无显著影响。结果出现差异的可能原因是基础饲粮中的硒含量不同,同时与动物处于不同的生长阶段和饲养管理水平存在差异也有一定关系。pH、肉色、滴水损失等是评价肉品质的重要指标,硒代蛋氨酸能更有效地沉积在猪肉中,提高肌肉的pH、改善肉色、降低肌肉的滴水损失等提高肉品质[43]。据蒋宗勇等[42]报道,在体重约60 kg的育肥猪饲粮中添加0.3 mg/kg的硒代蛋氨酸(以硒计)降低了背最长肌中乳酸的含量,显著提高了背最长肌12 h pH,提高了氧合肌红蛋白的含量,增加了肉色红度值,在一定程度上延长了猪肉货架期,改善了猪肉品质。Zhang等[44]利用高效液相色谱-电感耦合等离子体质谱(HPLC-ICP-MS)仪进一步研究发现,沉积在猪肉中的硒主要是硒代蛋氨酸的形式,占肌肉中总硒的70%以上。因此,使用硒代蛋氨酸不但能提高猪肉品质,其也是生产富硒猪肉进而提高人类膳食硒摄入量的良好来源。此外,硒代蛋氨酸还能提高泌乳母猪的采食量,促进仔猪的生长发育。Falk等[45]研究表明,与亚硒酸钠相比,饲粮添加0.26和0.43 mg/kg的硒代蛋氨酸(以硒计)能显著提高泌乳第13天直至泌乳结束时母猪的采食量(7.47~7.86 kg/d),进而提高仔猪的平均体重,这可能是由于硒代蛋氨酸的特殊气味引起母猪采食量的增加。进一步研究发现,给母猪饲喂0.43 mg/kg的硒代蛋氨酸(以硒计),能显著提高仔猪血浆中总硒含量和抗氧化酶活性,表明硒代蛋氨酸能更有效地通过母猪的胎盘屏障增强新生仔猪的抗氧化应激能力,且硒代蛋氨酸相对于亚硒酸钠具有更高的生物利用度[2]。Mou等[46]以羟基硒代蛋氨酸作为硒源的研究发现,母猪饲粮中添加羟基硒代蛋氨酸增加了总产仔数,缩短了母猪产仔间隔,提高了母猪及其子代的抗氧化能力,并改善了哺乳仔猪第1周的生长性能。以上研究结果表明,硒代蛋氨酸能提高猪肉的pH和红度值,改善生长育肥猪的肉品质;提高母体和后代的抗氧化能力,改善母猪的繁殖性能和后代的健康。

3.2 硒代蛋氨酸在家禽生产中的应用

硒代蛋氨酸在提高肉鸡生长性能、改善鸡肉品质、提高蛋品质和种鸡繁殖性能等方面发挥着重要作用。在生长性能和肉品质方面,沈雨甜等[47]报道,在基础饲粮中添加0.15 mg/kg的硒代蛋氨酸(以硒计)能改善肉鸡的肠道形态,增强肠道抗氧化功能和免疫功能,减轻肠道氧化损伤和细胞凋亡,提高肉鸡的生长性能。随着硒代蛋氨酸水平(0.3、0.4、0.5、0.6 mg/kg,以硒计)的提高,白羽肉鸡胸肌的滴水损失呈线性降低[48];Tang等[49]在黄羽肉鸡的基础饲粮中添加0.4、0.6和0.8 mg/kg羟基硒代蛋氨酸(以硒计)后也有类似的研究发现,并且羟基硒代蛋氨酸还增加了肌肉的pH,降低了胸肌的剪切力,其机制可能是增加了硒的沉积量,促进了硒蛋白的合成,从而提高了肌肉的抗氧化能力,羟基硒代蛋氨酸的推荐添加量为0.42~0.66 mg/kg(以硒计)。在鸡蛋品质方面,给处于热应激条件下的50~70周龄蛋鸡饲粮中补充0.3 mg/kg的硒代蛋氨酸(以硒计)可提高蛋鸡的抗氧化能力和产蛋性能,延长产蛋高峰期,提高鸡蛋的哈夫单位,延长鸡蛋的货架期,并对蛋鸡的骨骼健康具有一定的改善作用,其效果优于亚硒酸钠[50]。在36周京粉蛋鸡的基础饲粮中添加0.5 mg/kg的硒代蛋氨酸(以硒计),能显著提高种公鸡肾脏和睾丸中总超氧化物歧化酶(total superoxide dismutase,T-SOD)、过氧化氢酶(catalase,CAT)、GSH-Px活性和超氧阴离子清除能力,显著降低肾脏和睾丸中MDA含量;进一步研究发现,与对照组相比,饲粮添加硒代蛋氨酸显著提高了肾脏和睾丸中硫氧还蛋白还原酶2(thioredoxin reductase 2,TrxR2)和谷胱甘肽过氧化物酶4(glutathione peroxidase 4,GPx4)以及肝脏和肾脏中DNA结合抑制因子1(inhibitor of DNA binding 1,ID1)的mRNA表达水平[51]。以上研究表明,饲粮中添加适量的硒代蛋氨酸能通过提高种公鸡体内硒蛋白的基因表达,进而提高种公鸡的抗氧化能力,保护机体免受过氧化物和自由基的损伤,从而改善种公鸡的繁殖性能。另外,有机硒在增强肉鸡疾病抵抗力方面也有一定效果。据报道,有机硒能显著提高注射禽流感灭活疫苗肉鸡血清中的抗体滴度,降低禽流感病毒感染后第5天的病毒滴度,增强禽流感灭活疫苗对肉鸡的保护效价[52],表明有机硒对禽流感灭活疫苗有一定的增效作用。综上所述,硒代蛋氨酸能促进肉鸡生长,提高鸡肉和鸡蛋品质,改善种鸡的繁殖性能,增强肉鸡的免疫力与抗病能力。

3.3 硒代蛋氨酸在反刍动物生产中的应用

硒代蛋氨酸能提高奶牛的抗氧化能力,改善奶品质。研究发现,与添加0.3 mg/kg亚硒酸钠(以硒计)相比,饲粮添加相同水平的羟基硒代蛋氨酸能显著提高荷斯坦奶牛[基础泌乳量为(28.9±1.5) kg/d]血清中总硒含量以及GSH-Px和SOD的活性与总抗氧化能力,改善奶牛的抗氧化能力[4]。还有研究发现,饲喂羟基硒代蛋氨酸的妊娠奶牛血浆中硒含量更高,且主要是以硒代蛋氨酸的形式存在,表明奶牛体内硒状态的改善是由于硒代蛋氨酸在体内沉积的原因[53]。此外,与酵母硒相比,饲喂羟基硒代蛋氨酸后,牛奶和血浆中总硒含量更高,牛奶中的体细胞数更低,据估计,添加0.2 mg/kg的羟基硒代蛋氨酸就能达到与0.3 mg/kg酵母硒(均以硒计)相当的奶中硒含量[54]。以上研究结果表明,相比其他硒源,硒代蛋氨酸在提高奶牛抗氧化能力和改善奶品质等方面效果更好。此外,在育肥初期徐准白山羊饲粮中添加0.3 mg/kg硒代蛋氨酸(以硒计),可提高山羊的抗氧化能力、营养物质表观消化率和生长性能[55]。以上研究表明,硒代蛋氨酸能在反刍动物体内大量沉积,可改善反刍动物的抗氧化能力和提高奶品质。

4 小结与展望

综上所述,硒代蛋氨酸是目前已知生物学利用率最高的硒化合物,因其具有高抗氧化性、抗炎、抗病毒等多种生物学活性,在提高畜禽生长性能,改善肉、蛋、奶品质和缓解畜禽应激等方面发挥着重要作用。但是,目前硒代蛋氨酸在畜禽生产中的应用还存在以下问题:硒代蛋氨酸提高畜禽生长性能的报道多有差异,出现差异的深层次原因和作用机制还有待研究;硒代蛋氨酸能够改善肠道屏障功能,提高动物肠道健康,但其作用机制还有待进一步研究;硒代蛋氨酸在抗病毒方面的研究仅局限在细胞层面,缺乏在畜禽体内的相关研究报道。对以上这些问题进行深入研究将为硒代蛋氨酸在畜禽生产中的进一步高效利用提供理论依据。
[1]
余丹, 邹成义, 屈东, 等. 不同硒源对猪生长繁殖和硒沉积的影响[J]. 饲料工业, 2010, 31(6):48-50.

YU D, ZOU C Y, QU D, et al. Effects of different selenium sources on growth,reproduced,and selenium retention for sow[J]. Feed Industry, 2010, 31(6):48-50. (in Chinese)

[2]
FALK M, BERNHOFT A, REINOSO-MASET E, et al. Beneficial antioxidant status of piglets from sows fed selenomethionine compared with piglets from sows fed sodium selenite[J]. Journal of Trace Elements in Medicine and Biology, 2020, 58:126439.

DOI

[3]
JING J Z, ZENG H J, SHAO Q J, et al. Selenomethionine alleviates environmental heat stress induced hepatic lipid accumulation and glycogen infiltration of broilers via maintaining mitochondrial and endoplasmic reticulum homeostasis[J]. Redox Biology, 2023, 67:102912.

DOI

[4]
SUN P, WANG J, LIU W, et al. Hydroxy-selenomethionine:a novel organic selenium source that improves antioxidant status and selenium concentrations in milk and plasma of mid-lactation dairy cows[J]. Journal of Dairy Science, 2017, 100(12):9602-9610.

DOI

[5]
ZHOU S T, ZHANG X H, FU Q, et al. The use of selenomethionine to reduce ammonia toxicity in porcine spleen by inhibiting endoplasmic reticulum stress and autophagy mediated by oxidative stress[J]. Ecotoxicology and Environmental Safety, 2022, 242:113887.

DOI

[6]
SCHRAUZER G N. The nutritional significance, metabolism and toxicology of selenomethionine[J]. Advances in Food and Nutrition Research, 2003, 47:73-112.

PMID

[7]
HACHEMI M A, CARDOSO D, DE MARCO M, et al. Inorganic and organic selenium speciation of seleno-yeasts used as feed additives: new insights from elemental selenium determination[J]. Biological Trace Element Research, 2023, 201(12):5839-5847.

DOI

[8]
MATSUKAWA T, HASEGAWA H, SHINOHARA Y, et al. Synthesis of D- and L-selenomethionine double-labeled with deuterium and selenium-82[J]. Chemical & Pharmaceutical Bulletin, 2010, 58(12):1658-1660.

[9]
юORGEIRSDÓTTIR D Ý, ANDERSEN J H, PERCH-NIELSEN M, et al. Selenomethionine as alternative label to the fluorophore TAMRA when exploiting cell-penetrating peptides as blood-brain barrier shuttles to better mimic the physicochemical properties of the non-labelled peptides[J]. European Journal of Pharmaceutical Sciences, 2023, 183:106400.

DOI

[10]
NICKEL A, KOTTRA G, SCHMIDT G, et al. Characteristics of transport of selenoamino acids by epithelial amino acid transporters[J]. Chemico-Biological Interactions, 2009, 177(3):234-241.

DOI PMID

[11]
SURAI P F. Selenium in poultry nutrition and health[M]. Wageningen: Wageningen Academic Publishers, 2018.

[12]
TAPIERO H, TOWNSEND D M, TEW K D. The antioxidant role of selenium and seleno-compounds[J]. Biomedicine & Pharmacotherapy, 2003, 57(3/4):134-144.

DOI

[13]
刘国庆. 肉仔鸡实用饲粮中硒适宜水平、生物学利用率及其在小肠中的吸收规律研究[D].博士学位论文. 北京: 中国农业科学院, 2021.

LIU G Q. Study on optimal dietary selenium level,bioavailability and absorption regularity in small intestine for broilers fed a practical diet[D].Ph.D.Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2021. (in Chinese)

[14]
XIE L Y, XU Y B, DING X Q, et al. Selenomethionine attenuated H2O2-induced oxidative stress and apoptosis by Nrf2 in chicken liver cells[J]. Antioxidants, 2023, 12(9):1685.

DOI

[15]
BURKE K E, CLIVE J, COMBS G F,Jr, et al. Effects of topical L-selenomethionine with topical and oral vitamin E on pigmentation and skin cancer induced by ultraviolet irradiation in Skh:2 hairless mice[J]. Journal of the American Academy of Dermatology, 2003, 49(3):458-472.

DOI

[16]
PECORARO B M, LEAL D F, FRIAS-DE-DIEGO A, et al. The health benefits of selenium in food animals:a review[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):58.

DOI

[17]
GUILLIN O M, VINDRY C, OHLMANN T, et al. Selenium, selenoproteins and viral infection[J]. Nutrients, 2019, 11(9):2101.

DOI

[18]
CHENG Z, SHU Y F, LI X, et al. Evaluation of potential cardiotoxicity of ammonia:L-selenomethionine inhibits ammonia-induced cardiac autophagy by activating the PI3K/AKT/mTOR signaling pathway[J]. Ecotoxicology and Environmental Safety, 2022, 233:113304.

DOI

[19]
WANG A Q, ZHANG X X, WANG H, et al. Recent evidence for toxic effects of NH3 exposure on lung injury:protective effects of L-selenomethionine[J]. Ecotoxicology and Environmental Safety, 2022, 242:113937.

DOI

[20]
YUNUS A W, KRÖGER S, TICHY A, et al. Electrophysiological response of chicken’s jejunal epithelium to increasing levels of T-2 toxin[J]. Mycotoxin Research, 2013, 29(1):23-27.

DOI

[21]
LIU Y M, YANG Y X, DONG R Q, et al. Protective effect of selenomethionine on intestinal injury induced by T-2 toxin[J]. Research in Veterinary Science, 2020, 132:439-447.

DOI

[22]
LEE B, MOON K M, KIM C Y. Tight junction in the intestinal epithelium:its association with diseases and regulation by phytochemicals[J]. Journal of Immunology Research, 2018, 2018:2645465.

[23]
AWAD W A, HESS C, HESS M. Enteric pathogens and their toxin-induced disruption of the intestinal barrier through alteration of tight junctions in chickens[J]. Toxins, 2017, 9(2):60.

DOI

[24]
XUE Y, WANG H H, TIAN B W, et al. Selenium deficiency promotes the expression of lncRNA-MORC3,activating NLRP3-Caspase-1/IL-1β signaling to induce inflammatory damage and disrupt tight junctions in piglets[J]. Biological Trace Element Research, 2023, 201(5):2365-2376.

DOI

[25]
CHEN S Y, XUE Y J, SHEN Y T, et al. Effects of different selenium sources on duodenum and jejunum tight junction network and growth performance of broilers in a model of fluorine-induced chronic oxidative stress[J]. Poultry Science, 2022, 101(3):101664.

DOI

[26]
WEBER A, SCHWIEBS A, SOLHAUG H, et al. Nanoplastics affect the inflammatory cytokine release by primary human monocytes and dendritic cells[J]. Environment International, 2022, 163:107173.

DOI

[27]
WANG X F, LU W Z, XIA X Y, et al. Selenomethionine mitigate PM2.5-induced cellular senescence in the lung via attenuating inflammatory response mediated by cGAS/Sting/NF-κB pathway[J]. Ecotoxicology and Environmental Safety, 2022, 247:114266.

DOI

[28]
ZHANG Z Q, WANG J J, WANG J N, et al. Selenomethionine attenuates ochratoxin A-induced small intestinal injury in rabbits by activating the Nrf2 pathway and inhibiting NF-κB activation[J]. Ecotoxicology and Environmental Safety, 2023, 256:114837.

DOI

[29]
HU X Y, CHI Q R, LIU Q Q, et al. Atmospheric H2S triggers immune damage by activating the TLR-7/MyD88/NF-κB pathway and NLRP3 inflammasome in broiler thymus[J]. Chemosphere, 2019, 237:124427.

DOI

[30]
YIMING Z, QINGQING L, HANG Y, et al. Selenium deficiency causes immune damage by activating the DUSP1/NF-κB pathway and endoplasmic reticulum stress in chicken spleen[J]. Food & Function, 2020, 11(7):6467-6475.

[31]
ZHANG H Y, JI W B, LI X, et al. Immunosuppression,oxidative stress,and apoptosis in pig kidney caused by ammonia:application of transcriptome analysis in risk assessment of ammonia exposure[J]. Toxicology and Applied Pharmacology, 2021, 428:115675.

DOI

[32]
JONES A C, ANDERSON D, TROY N M, et al. Rewiring of gene networks underlying mite allergen-induced CD4+ Th-cell responses during immunotherapy[J]. Allergy, 2020, 75(9):2330-2341.

DOI

[33]
ABDI H, AGANJ Z, HOSSEINZADEH H, et al. Crocin restores the balance of Th1/Th2 immune cell response in ConA-treated human lymphocytes[J]. Pharmacological Reports, 2022, 74(3):513-522.

DOI PMID

[34]
ZHANG X X, WANG A Q, CHEN Y, et al. Intestinal barrier dysfunction induced by ammonia exposure in pigs in vivo and in vitro:the protective role of L-selenomethionine[J]. Ecotoxicology and Environmental Safety, 2022, 248:114325.

DOI

[35]
LI J Z, ZHOU J Z, ZHAO S Q, et al. Pathogenicity,infective dose and altered gut microbiota in piglets infected with porcine deltacoronavirus[J]. Virology, 2022, 567:26-33.

DOI

[36]
YIN L D, CHEN J F, LI L, et al. Aminopeptidase N expression,not interferon responses,determines the intestinal segmental tropism of porcine deltacoronavirus[J]. Journal of Virology, 2020, 94(14):e00480-20.

[37]
ZHOU P, LIU D J, ZHANG Q X, et al. Antiviral effects of duck type Ⅰ and type Ⅲ interferons against Duck Tembusu virus in vitro and in vivo[J]. Veterinary Microbiology, 2023, 287:109889.

DOI

[38]
REN Z H, JIA G L, HE H Y, et al. Antiviral effect of selenomethionine on porcine deltacoronavirus in pig kidney epithelial cells[J]. Frontiers in Microbiology, 2022, 13:846747.

DOI

[39]
GUO D, TONG Y Y, JIANG X M, et al. Aerobic glycolysis promotes tumor immune evasion by hexokinase 2-mediated phosphorylation of IκBα[J]. Cell Metabolism, 2022, 34(9):1312-1324.e6.

DOI

[40]
REN Z H, DING T, HE H Y, et al. Mechanism of selenomethionine inhibiting of PDCoV replication in LLC-PK1 cells based on STAT3/miR-125b-5p-1/HK2 signaling[J]. Frontiers in Immunology, 2022, 13:952852.

DOI

[41]
CHAO Y M, YU B, HE J, et al. Effects of different levels of dietary hydroxy-analogue of selenomethionine on growth performance,selenium deposition and antioxidant status of weaned piglets[J]. Archives of Animal Nutrition, 2019, 73(5):374-383.

DOI

[42]
蒋宗勇, 王燕, 林映才, 等. 硒代蛋氨酸对肥育猪生产性能和肉品质的影响[J]. 动物营养学报, 2010, 22(2):293-300.

JIANG Z Y, WANG Y, LIN Y C, et al. Effects of dietary selenomethionine supplementation on performance and meat quality of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2010, 22(2):293-300. (in Chinese)

[43]
SILVA V A, BERTECHINI A G, CLEMENTE A H S, et al. Different levels of selenomethionine on the meat quality and selenium deposition in tissue of finishing pigs[J]. Journal of Animal Physiology and Animal Nutrition, 2019, 103(6):1866-1874.

DOI PMID

[44]
ZHANG K, GUO X Q, ZHAO Q Y, et al. Development and application of a HPLC-ICP-MS method to determine selenium speciation in muscle of pigs treated with different selenium supplements[J]. Food Chemistry, 2020, 302:125371.

DOI

[45]
FALK M, LEBED P, BERNHOFT A, et al. Effects of sodium selenite and L-selenomethionine on feed intake,clinically relevant blood parameters and selenium species in plasma,colostrum and milk from high-yielding sows[J]. Journal of Trace Elements in Medicine and Biology, 2019, 52:176-185.

DOI

[46]
MOU D L, DING D J, LI S, et al. Effect of maternal organic selenium supplementation during pregnancy on sow reproductive performance and long-term effect on their progeny[J]. Journal of Animal Science, 2020, 98(12):skaa366.

[47]
沈雨甜, 张小东, 张玲, 等. 不同硒源对黄羽肉鸡生长性能和肠道形态及抗氧化功能、免疫功能和细胞凋亡的影响[J]. 动物营养学报, 2022, 34(12):7711-7722.

DOI

SHEN Y T, ZHANG X D, ZHANG L, et al. Effects of different selenium sources on growth performance and intestinal morphology,antioxidant function,immune function and apoptosis of yellow-feathered broilers[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7711-7722. (in Chinese)

[48]
SILVA V A, CLEMENTE A H S, NOGUEIRA B R F, et al. Supplementation of selenomethionine at different ages and levels on meat quality,tissue deposition,and selenium retention in broiler chickens[J]. Poultry Science, 2019, 98(5):2150-2159.

DOI

[49]
TANG J Y, HE Z, LIU Y G, et al. Effect of supplementing hydroxy selenomethionine on meat quality of yellow feather broiler[J]. Poultry Science, 2021, 100(10):101389.

DOI

[50]
DE BRITO A N E F, KANEKO I N, CAVALCANTE D T, et al. Hydroxy-selenomethionine enhances the productivity and egg quality of 50- to 70-week-old semi-heavy laying hens under heat stress[J]. Poultry Science, 2023, 102(2):102320.

DOI

[51]
LONG C, ZHU G Y, SHENG X H, et al. Dietary supplementation with selenomethionine enhances antioxidant capacity and selenoprotein gene expression in layer breeder roosters[J]. Poultry Science, 2022, 101(11):102113.

DOI

[52]
SHOJADOOST B, TAHA-ABDELAZIZ K, ALKIE T N, et al. Supplemental dietary selenium enhances immune responses conferred by a vaccine against low pathogenicity avian influenza virus[J]. Veterinary Immunology and Immunopathology, 2020, 227:110089.

DOI PMID

[53]
JUNIPER D T, RYMER C, BRIENS M. Bioefficacy of hydroxy-selenomethionine as a selenium supplement in pregnant dairy heifers and on the selenium status of their calves[J]. Journal of Dairy Science, 2019, 102(8):7000-7010.

DOI PMID

[54]
HACHEMI M A, SEXTON J R, BRIENS M, et al. Efficacy of feeding hydroxy-selenomethionine on plasma and milk selenium in mid-lactation dairy cows[J]. Journal of Dairy Science, 2023, 106(4):2374-2385.

DOI

[55]
王兵, 石丰运, 朱广琴. 不同硒源对育肥初期徐淮白山羊抗氧化能力、表观消化率及生长性能影响的研究[J]. 畜牧与兽医, 2022, 54(3):35-40.

WANG B, SHI F Y, ZHU G Q. Effects of different selenium sources on the antioxidant capacity,apparent digestibility and growth performance of Xuhuai white goats in the early stage of fattening[J]. Animal Husbandry & Veterinary Medicine, 2022, 54(3):35-40. (in Chinese)

文章导航

/