研究论文

饲粮中添加复合油脂等量替代大豆油对保育猪生长性能和肠道健康的影响

  • 沈铭 , 1 ,
  • 闫恩法 2 ,
  • 何琳娟 2 ,
  • 万波扬 2 ,
  • 赖州文 3 ,
  • 黄艺珠 3 ,
  • 尚秀国 , 1, * ,
  • 尹靖东 , 2, *
展开
  • 1 佛山科学技术学院生命科学与工程学院,佛山 528231
  • 2 中国农业大学动物科学技术学院,畜禽营养与饲养全国重点实验室,北京 100193
  • 3 徐州新奥生物科技有限公司,徐州 221000
*尚秀国,教授,硕士生导师,E-mail: ;
尹靖东,教授,博士生导师,E-mail:

沈 铭(1998—),男,浙江杭州人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-10-31

  网络出版日期: 2024-04-15

基金资助

国家重点研发专项(2018YFD0500400)

横向课题(202105410411188)

Effects of Replacement of Equivalent Amounts of Soybean Oil with Compound Oil in Diets on Growth Performance and Intestinal Health of Nursery Pigs

  • SHEN Ming , 1 ,
  • YAN Enfa 2 ,
  • HE Linjuan 2 ,
  • WAN Boyang 2 ,
  • LAI Zhouwen 3 ,
  • HUANG Yizhu 3 ,
  • SHANG Xiuguo , 1 ,
  • YIN Jingdong , 2
Expand
  • 1 School of Life Science and Engineering, Foshan University, Foshan 528231, China
  • 2 State Key Laboratory of Animal Nutrition and Feeding, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
  • 3 Xuzhou Xinao Biotechnology Co., Ltd., Xuzhou 221000, China
*SHANG Xiuguo, professor, E-mail: ;
YIN Jingdong, professor, E-mail:

Received date: 2023-10-31

  Online published: 2024-04-15

摘要

本研究采用了2个能值体系(代谢能、净能)×2种油脂来源(大豆油、复合油脂)的析因试验,探讨了在保育猪饲粮中添加复合油脂等量替代大豆油的可行性。试验选用了192头初始体重为(8.40±1.04) kg的健康杜×长×大三元断奶仔猪,根据初始体重按照随机区组的原则分为4个处理,每个处理6个重复(栏),每个重复8头猪(公母各占1/2)。根据NRC(2012)推荐,分别采用净能和代谢能2套能值体系,配制7~11 kg和12~25 kg 2个阶段饲粮。对照组为玉米-豆粕型基础饲粮,试验组用2%的复合油脂等量替代2%的大豆油,饲喂35 d。饲养结束后,从饲喂净能体系饲粮的2个组中分别选择6头体重接近重复平均体重的猪屠宰,采集空肠组织做形态学观测,收集空肠黏膜、结肠内容物和新鲜粪便,分别用于检测紧密连接蛋白表达、抗氧化指标、挥发性脂肪酸含量以及微生物组成。结果表明:饲粮中添加2%的复合油脂替代等量的大豆油对保育猪的生长性能和腹泻率没有显著影响(P>0.05);复合油脂代替大豆油有提高血清免疫球蛋白G(IgG)(P=0.09)和免疫球蛋白M(IgM)含量(P=0.06)的趋势,但对血清中炎症因子含量没有显著影响(P>0.05),血清中脂质过氧化物丙二醛(MDA)含量显著降低(P<0.05),而且血清总抗氧化能力(T-AOC)(P=0.06)和谷胱甘肽过氧化物酶(GSH-Px)活性(P=0.06)也有升高的趋势。代谢能体系饲粮饲喂的猪的血清总超氧化物歧化酶(T-SOD)、过氧化氢酶(CAT)和GSH-Px活性以及T-AOC显著高于净能体系饲粮饲喂的猪(P<0.05)。净能体系下,复合油脂等量替代大豆油显著升高了猪肠道黏膜中GSH-Px活性(P<0.05),有升高T-AOC(P=0.09)和CAT活性(P=0.08)的趋势;复合油脂组紧密连接蛋白-1(Claudin-1)和闭锁小带蛋白-2(ZO-2)的蛋白表达显著提高(P<0.05),闭合蛋白(Occludin)的蛋白表达也有升高的趋势(P=0.09);复合油脂等量代替大豆油显著提高了猪结肠内容物中乙酸的含量(P<0.05),而且粪便微生物门水平的Beta多样性显著变化(P<0.05),表现为采食复合油脂显著提高了厚壁菌门(Firmicutes)的相对丰度(P<0.05),显著降低了拟杆菌门(Bacteroidota)的相对丰度(P<0.05)。综上所述,保育猪饲粮中添加2%的复合油脂等量替代大豆油,不影响保育猪的生长性能和健康,而且有助于提高机体免疫力、抗氧化能力和维护肠道屏障功能。

本文引用格式

沈铭 , 闫恩法 , 何琳娟 , 万波扬 , 赖州文 , 黄艺珠 , 尚秀国 , 尹靖东 . 饲粮中添加复合油脂等量替代大豆油对保育猪生长性能和肠道健康的影响[J]. 动物营养学报, 2024 , 36(4) : 2218 -2233 . DOI: 10.12418/CJAN2024.193

Abstract

In this study, the factorial test of 2 energy systems (metabolizable energy and net energy) × 2 oil sources (soybean oil and compound oil) was used to investigate the effects of compound oil replacing soybean oil in equal amount on growth performance and intestinal health of nursery pigs. A total of 192 healthy Duroc × Landrace × Yorkshire weaned piglets with an initial body weight of (8.40±1.04) kg were randomly divided into 4 treatments with 6 replicates per treatment and 8 pigs (equal number of males and females) per replicate according to the initial body weight. According to NRC (2012), two energy systems of net energy and metabolizable energy were designed, and two diets of 7 to 11 kg and 12 to 25 kg were formulated, respectively. The control group was fed a corn-soybean meal basal diet, and the experimental group was fed a 2% compound oil equivalent diet instead of 2% soybean oil for 35 days. At the end of the feeding, six pigs with body weight close to the repeated average body weight were selected from each of the two treatments fed net energy diet, and slaughtered. Jejunal tissues were collected for morphological observation, jejunal mucosa, colonic contents, and fresh feces were collected for detection of tight junction protein expression, antioxidant indexes, volatile fatty acid contents, and microbial composition. The results showed that dietary supplementation of 2% compound oil instead of the same amount of soybean oil did not affect the growth performance and diarrhea rate (P>0.05). Replacing soybean oil with complex oil had a tendency to increase the contents of immunoglobulin G (IgG) (P=0.09) and immunoglobulin M (IgM) (P=0.06), but had no effect on the contents of serum inflammatory factors (P>0.05), serum lipid peroxide malonaldehyde (MDA) content was significantly decreased (P<0.05)), and serum total antioxidant capacity (T-AOC) (P=0.06) and glutathione peroxidase (GSH-Px) activity (P=0.06) were increased. The serum total superoxide dismutase (T-SOD), catalase (CAT), GSH-Px activities and T-AOC of pigs fed the metabolizable energy system diet were significantly higher than those of pigs fed the net energy system diet (P<0.05). Compound oil group significantly increased Claudin-1 and ZO-2 protein expression (P<0.05), the protein expression of Occludin also showed an increasing trend (P=0.09); the content of acetic acid in pig colon contents was significantly increased by replacing soybean oil with compound oil (P<0.05), and the Beta diversity of fecal microbiome level changed significantly (P<0.05), showed that feeding complex oil significantly increased the flora relative abundance of Firmicutes (P<0.05), significantly decreased the relative abundance of Bacteroidota (P<0.05). In conclusion, supplementation of 2% compound oil in the diet of nursery pigs instead of soybean oil does not affect the growth performance and health of nursery pigs, and helps to improve immunity, antioxidant capacity and maintain intestinal barrier function.

现代养猪业中,猪生长性能达到了非常高的水平,其对饲粮的品质和营养水平要求也很高。饲粮能量水平决定着猪遗传潜力的发挥[1],通常需要在玉米-豆粕型饲粮中补充油脂以满足猪对能量摄入的需要。油脂的价格比较高,我国油料市场高度依赖进口,进口的油料作物主要以大豆为主[2-3]。近些年国际大豆价格持续高涨,大豆油也节节攀升,预计在很长的一段时期内油脂价格将给饲料行业带来巨大的成本压力[4]。为了有效满足猪的能量需要,通常会在饲粮中添加低成本的油类作物籽实的粗提油脂(又称毛脚油)。粗提油脂杂质含量高,易发生氧化和酸败而变质,给猪的健康和生长带来严重的威胁[5]。因此,如何安全、有效、低成本地满足能量需要是养猪业关注的问题之一。
近年来,学者们对长链脂肪酸生理功能及其消化和有效能值已经基本了解,另外在中链脂肪酸和短链脂肪酸的生理功能和为机体供能方面也有了进一步的研究[6-9]。给动物提供高不饱和脂肪酸[二十碳五烯酸(EPA)、二十二碳六烯酸(DHA)]和中短链脂肪酸,可以丰富饲粮的脂肪酸谱,通过调节机体免疫、改善幼龄动物在养殖环境中的抗应激能力,从而满足动物对油脂更加多元化的需求[5,10]。因此,立足脂类营养研究进展,通过丰富和定向改造油脂脂肪酸结构、组成,开发新型油脂产品成为油脂行业的重要发展方向。养猪业中,通过使用这类产品,赋予油脂更高的利用率和有效能值水平,对于有效满足猪的生长需求、降低饲料成本、提高养猪生产效益具有重要意义。
鉴于目前国内大、中型农牧公司配制猪饲粮多使用净能(NE)体系,而中、小型公司则大多兼用代谢能(ME)和消化能(DE)体系,本研究在NE和ME 2个能值体系中,考察了复合油脂等量替代大豆油对保育猪生长性能和健康的影响,为其在实际生产中的应用提供参考。

1 材料与方法

1.1 试验材料

试验用的复合油脂的主要成分为大豆油、鱼油、糖浆、糊精、丁酸、益生元和乳化剂等,其中粗脂肪≥25%、碳水化合物≥16%;大豆油为超市售卖的食用级大豆油。

1.2 试验设计

试验选取体重为(8.40±1.04) kg、健康的杜×长×大三元断奶仔猪192头,根据窝别和初始体重按照随机区组的原则分为4个处理,每个处理6个重复(栏),每栏8头猪(公母各占1/2)。采用2个能值体系(ME和NE)和2种油脂来源(大豆油和复合油脂)的2×2析因试验,按照NRC(2012)[11]配制7~11 kg(饲喂2周)和12~25 kg (饲喂3周) 2阶段的颗粒试验饲粮。对照组为玉米-豆粕型基础饲粮,基础饲粮组成及营养水平见表1;试验组用2%的复合油脂等量替代2%的大豆油,复合油脂和豆油脂肪酸组成(实测值)见表2。试验期35 d。
表1 基础饲粮组成及营养水平(饲喂基础)

Table 1 Composition and nutrient levels of basal diets (as-fed basis)%

项目
Items
净能 NE 代谢能 ME
7~11 kg 12~25 kg 7~11 kg 12~25 kg
原料 Ingredients
玉米 Corn 54.00 54.00 52.00 59.00
豆粕 Soybean meal 24.15 20.80 22.00 19.00
膨化全脂大豆 Extruded full-fat soybean 3.00 2.50 9.00 6.30
鱼粉 Fish meal 4.50 4.00 4.00 4.00
低蛋白质乳清粉 Low protein whey powder 3.50 4.00 2.00 2.00
小麦麸 Wheat bran 4.43 8.42 3.23 3.23
大豆油 Soybean oil 2.00 2.00 3.10 2.20
L-赖氨酸盐酸盐 L-Lys·HCl 0.70 0.65 0.67 0.63
苏氨酸 Thr 0.26 0.24 0.25 0.23
蛋氨酸 Met 0.08 0.08 0.10 0.07
色氨酸 Trp 0.01 0.01 0.03 0.01
缬氨酸 Val 0.14 0.11 0.13 0.11
半胱氨酸 Cys 0.09 0.05 0.08 0.07
异亮氨酸 Ile 0.01
石粉 Limestone 1.10 0.90 1.10 0.90
磷酸氢钙 CaHPO4 0.45 0.45 0.45 0.45
沸石粉 Zeolite powder 0.64 0.83 0.91 0.85
氯化钠 NaCl 0.40 0.40 0.40 0.40
氯化胆碱 Choline chloride (50%) 0.12 0.12 0.12 0.12
预混料 Premix1) 0.43 0.43 0.43 0.43
合计 Total 100.00 100.00 100.00 100.00
营养水平 Nutrient levels2)
净能 NE/(MJ/kg) 10.32 10.23 10.67 10.58
代谢能 ME/(MJ/kg) 13.84 13.66 14.25 14.05
粗蛋白质 CP 20.50 18.90 21.05 19.30
粗脂肪 EE 5.53 5.36 7.21 5.91
总能 GE/(MJ/kg) 16.58 16.81 17.41 16.78
赖氨酸 Lys 1.53 1.15 1.50 1.24
蛋氨酸+胱氨酸 Met+Cys 0.72 0.68 0.67 0.69
苏氨酸 Thr 0.90 0.69 0.83 0.77
色氨酸 Trp 0.20 0.19 0.24 0.20
异亮氨酸 Ile 0.71 0.58 0.68 0.62
缬氨酸 Val 1.02 0.76 0.95 0.86

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 11 000 IU,VD3 3 250 IU,VE 15 IU,VK3 1.5 mg,VB1 0.8 mg,VB2 3 mg,VB6 1.5 mg,VB12 0.01 mg,生物素 biotin 0.025 mg,叶酸 folic acid 0.4 mg,泛酸 pantothenic acid 9.5 mg,烟酰胺 nicotinamide 18 mg,Cu 95 mg,Fe 415 mg,Mn 50 mg,Zn 90 mg,I 0.45 mg,Se 0.35 mg。

2)NE和ME为计算值,其余均为实测值。本试验研究复合油脂等量替代大豆油的可行性,根据这一假设,在计算饲粮的NE和ME时,复合油脂的NE和ME按照大豆油的相关能值计算。NE and ME were calculated values, and the rest were measured values. The purpose of this study was to investigate the feasibility of replacing soybean oil with the same amount of compound oil. According to this hypothesis, the NE and ME of compound oil were calculated according to the energy values of soybean oil when calculating the NE and ME of diet.

表2 复合油脂和大豆油脂肪酸组成

Table 2 Compound oil and soybean oil fatty acid compositionmg/g

项目
Items
大豆油
Soybean oil
复合油脂
Compound oil
辛酸 C8∶0 0.06 0.26
癸酸 C10∶0 0.12 0.29
月桂酸 C12∶0 0.08 0.14
肉蔻酸 C14∶0 0.89 2.72
十五烷酸 C15∶0 0.16 0.23
棕榈酸 C16∶0 107.27 49.56
棕榈油酸 C16∶1 0.90 2.51
十七烷酸 C17∶0 0.88 0.45
硬脂酸 C18∶0 37.78 9.48
油酸 C18∶1n9c 245.98 80.06
亚油酸 C18∶2n6c 496.58 92.32
亚麻酸 C18∶3n3 58.50 7.73
花生酸 C20∶0 4.06 1.58
二十碳烯酸 C20∶1 2.61 1.08
花生四烯酸 C20∶4n6 ND 0.25
二十碳五烯酸 C20∶5n3 ND 3.73
二十一烷酸 C21∶0 0.67 0.13
二十二烷酸 C22∶0 4.74 1.12
芥酸 C22∶1n9 0.23 ND
二十二碳六烯酸 C22∶6n3 ND 3.06
二十二碳烯酸 C22∶2 ND 0.06
二十三碳烷酸 C23∶0 0.81 0.13
二十四碳烷酸 C24∶0 1.85 1.43
神经酸 C24∶1 ND 0.16

ND为未检出。

ND stands for not detected.

1.3 饲养管理

保育猪饲养试验在河北丰宁中国农业大学农业农村部饲料工业中心动物试验基地开展。本试验所使用的动物和所有操作符合《中国动物福利和实验操作指南》,并经中国农业大学动物伦理和使用委员会批准(ID:SKLAB-B-2010-003)。试验前使用高压水枪对猪舍圈舍进行清洗、熏蒸消毒,通风后转入猪群。试验期间,保证猪自由采食和饮水,按照猪场的规范化流程进行驱虫和免疫接种,严格遵循猪场的饲养和管理制度。每日巡查猪舍,观察采食及健康状况,对采食量及生病情况及时进行记录并处理。

1.4 屠宰与采样

饲养试验结束后,前腔静脉采血,制备血清,用于分析血清炎症因子和免疫球蛋白等含量。鉴于ME体系和NE体系配制饲粮对保育猪的生长性能没有显著影响,所以饲养试验结束后,从饲喂NE体系饲粮的2个处理的每个栏中挑选1头体重接近该重复平均体重的猪进行屠宰。采集空肠肠段,固定于多聚甲醛中,常温下保存,用于观测肠道组织形态;分别刮取收集空肠黏膜和结肠内容物于冻存管中,-80 ℃保存,用于空肠黏膜的紧密连接蛋白表达的测定和结肠内容物挥发性脂肪酸含量的测定;采集新鲜粪便,保存于-80 ℃,用于分析粪便微生物组成。

1.5 检测指标和检测方法

1.5.1 生长性能和腹泻率

在试验开始前和第35天,对各栏猪进行称重并记录体重(BW)。根据初始体重及终末体重,计算每头猪的平均日增重(ADG),并根据各栏饲粮的消耗情况来计算平均日采食量(ADFI)和增重耗料比(G∶F)。每日巡查猪舍,对猪舍内的粪便及猪尾部进行观察,统计腹泻猪的数量。腹泻率计算公式[12]如下:
腹泻率(%)=[腹泻头次数/(试验猪头数×试验天数)]×100。

1.5.2 试验颗粒饲料的含粉率和粉化率

饲料制粒后在接料口采样,利用10目(2 mm)筛测定含粉率,计算公式[13-14]如下:
含粉率(%)=[粉料重/(颗粒料重+粉料重)]×100。
饲粮运送至猪场后(大约150 km),在饲喂前,利用四分法采样,运回实验室测定粉化率,计算公式同上。

1.5.3 饲粮成分检测

分别参照标准GB/T 6432—2018[15]和GB/T 6433—2006[16],利用凯氏定氮仪测定饲粮中粗蛋白质含量,利用Ankom脂肪分析仪测定饲粮中粗脂肪含量;总能参照国际标准ISO9831:1998方法[17],使用氧弹式热量仪(Parr 6300 Calorimeter,美国)进行测定。饲粮经氢氧化锂碱水解后使用高效液相色谱仪(Agilent 1200,Agilent,美国)测定色氨酸含量。饲粮经盐酸水解后测定苏氨酸、缬氨酸、异亮氨酸和赖氨酸含量。饲粮经过甲酸氧化水解后测定半胱氨酸和蛋氨酸含量,均使用氨基酸分析仪(L-8900,Hitachi,日本)测定。大豆油和复合油脂中肪酸酸组成用气相色谱仪(Agilent 6890,Agilent,美国)分析。

1.5.4 血清免疫球蛋白和炎症因子含量

血清免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)、肿瘤坏死因子-α(TNF-α)、干扰素-γ(IFN-γ)、白细胞介素-1β(IL-1β)、白细胞介素-2(IL-2)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)含量用相应试剂盒(北京华英生物科技有限公司),采用比色法,在半自动生化仪(A6,松上公司)中检测分析。

1.5.5 血清和肠道黏膜抗氧化指标

使用相应试剂盒(北京华英生物科技有限公司)测定血清和肠道黏膜中总超氧化物歧化酶(T-SOD)、过氧化氢酶(CAT)和谷胱甘肽过氧化物酶(GSH-Px)活性以及总抗氧化能力(T-AOC)和丙二醛(MDA)的含量,依照使用说明,用酶标仪(DR-200BS,华卫德朗公司)进行检测分析。

1.5.6 肠道形态分析

猪肠道样品经过4%多聚甲醛固定后,经过修块、脱水、透明、包埋后进行石蜡切片,载玻片承载着切片再进行苏木精-伊红染色。每张切片在4×和10×显微镜下选择有代表性的视野进行拍照,观察测定20个视野的肠道绒毛高度和隐窝深度并做测量记录。

1.5.7 肠黏膜紧密连接蛋白表达的Western Blot检测

取50~100 mg空肠黏膜样品于液氮中研磨,加入0.5~1.0 mL RIPA蛋白裂解液(含50×蛋白酶抑制剂和100×磷酸酶抑制剂)充分混匀,加入4颗研磨珠,使用预冷-20 ℃研磨仪进行充分研磨裂解(70 Hz,180 s)。混合液于4 ℃离心机13 000 r/min下离心15 min,取上清;使用BCA蛋白定量试剂盒用于蛋白浓度的测定。取50 μg蛋白用10%浓度分离胶进行聚丙烯酰胺凝胶电泳(SDS-PAGE),使用湿转法转印到聚偏二氟乙烯(PVDF)印迹膜上,经封闭后,加一抗[分别为1∶1 000紧密连接蛋白-1(Claudin-1)多克隆抗体,1∶5 000闭合蛋白(Occludin)单克隆抗体,1∶250闭锁小带蛋白-2(ZO-2)多克隆抗体,1∶10 000甘油醛-3-磷酸脱氢酶(GAPDH)单克隆抗体],4 ℃孵育过夜。经漂洗加荧光兔二抗(1∶10 000),室温孵育1 h,再次漂洗后。采用Odyssey Clx荧光系统进行曝光和成像,使用ImageJ图像处理软件对蛋白条带进行灰度分析。

1.5.8 肠道和血清挥发性脂肪酸含量测定

采用离子色谱(Ionpac AS11,Dionex,美国)测定结肠内容物和血清中的挥发性脂肪酸含量。结肠内容物置于4 ℃解冻后,取0.5 g样品加去离子水稀释成30 mL混合液,上下颠倒混匀后,40~50 ℃水浴超声30 min,再定容到50 mL,颠倒混匀。随后将样品于离心机中10 000 r/min离心10 min,取上清液稀释50倍,取上清液过0.22 μm滤膜,并将上清液转移至进样瓶中,随后进行离子色谱测定。血清解冻后,取200 μL于1.5 mL离心管中,并加入600 μL的甲醇∶乙腈=1∶1混合液,振荡混匀,在离心机12 000 r/min离心10min,吸上清,稀释到100倍,随后过0.22 μm滤膜加入进样瓶中,进行离子色谱分析。上机:色谱柱为ICS-3000(250 mm×4 mm),氢氧化钾的流速为1.0 mL/min,梯度分离条件为0~5 min,0.8~1.5 mmo/L;5~10 min,1.5~2.5 mmo/L;10~15 min,2.5 mmo/L。

1.5.9 微生物多样性检测

采用16S rDNA基因测序分析猪粪便微生物组成。根据试剂盒DNeasy® PowerSoil® Pro Kit(QIAGEN,美国)说明书进行微生物群落总基因组DNA的抽提,使用1%的琼脂糖凝胶电泳检测抽提的基因组DNA的质量,使用NanoDrop2000(Thermo Scientific,美国)测定DNA浓度和纯度。以上述提取的DNA为模板,使用携带Barcode序列的上游引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和下游引物806R (5'-GGACTACHVGGGTWTCTAAT-3')对16S rRNA基因V3~V4可变区进行PCR扩增。使用NEXTFLEX Rapid DNA-Seq Kit对纯化后的PCR产物进行建库: 1)接头链接;2)使用磁珠筛选去除接头自连片段;3)利用PCR扩增进行文库模板的富集;4)磁珠回收PCR产物得到最终的文库。利用Illumina公司的MiSeq Reagent Kit平台进行测序(上海美吉生物医药科技有限公司)。操作分类单元(OTU)聚类和分类学分析,使用UPARSE软件,根据97%的相似度对序列进行OTU聚类,对优化序列提取非重复序列,去除没有重复的单序列,将所有优化序列map至OTU代表序列,选出与OTU代表序列相似性在97%以上的序列,生成OTU表格。所有的数据分析均在美吉生物云平台(https://cloud.majorbio.com)上进行。

1.6 统计分析

采用SAS 9.4统计软件对试验数据进行2×2双因素统计分析,组织样品的分析数据采用t检验,腹泻率使用卡方检验,结果用平均值和均值标准误(SEM)表示。微生物多样性检测中的所有数据分析均在美吉生物云平台(https://cloud.majorbio.com)上进行,采用mothur软件计算Alpha多样性的Ace、Chao、Sobs指数等,并采用Wilcoxon秩和检验进行Alpha多样性的组间差异分析;使用基于Bray-Curtis距离算法的主坐标分析(PCoA)检验样本间微生物群落结构的相似性,并结合Adonis多元方差分析样本组间微生物群落结构差异是否显著。P<0.05表示差异显著,0.05≤P<0.10为有差异趋势。

2 结果与分析

2.1 颗粒饲料含粉情况

表3可知,NE体系+大豆油、NE体系+复合油脂、ME体系+大豆油、ME体系+复合油脂4个处理的颗粒猪饲料含粉率分别为5.28%、3.31%、16.09%、8.04%;粉化率分别为12.95%、10.93%、14.85%、15.05%。结果表明,利用NE体系配制饲粮,添加复合油脂的饲粮含粉率和粉化率分别比添加大豆油的饲粮降低了37.31%和15.60%;利用ME体系配制饲粮,添加复合油脂的饲粮含粉率比添加大豆油的饲粮降低了50.03%,粉化率没有变化。
表3 颗粒猪饲料含粉情况

Table 3 Powder content of pig pelleted feed

项目
Items
粉料重
Powder weight/g
颗粒料总重
Pellet feed total weight/g
比例
Proportion/%
含粉率 Percentage of powder content
净能 NE 大豆油 SBO 79.1 1 498.5 5.28
复合油脂 CPO 41.8 1 263.6 3.31
代谢能 ME 大豆油 SBO 216.2 1 344.1 16.09
复合油脂 CPO 96.4 1 198.6 8.04
粉化率 Percentage of powdered pellets
净能 NE 大豆油 SBO 120.2 928.4 12.95
复合油脂 CPO 108.4 992.2 10.93
代谢能 ME 大豆油 SBO 123.2 829.4 14.85
复合油脂 CPO 152.7 1 014.8 15.05

2.2 生长性能和腹泻率

在NE和ME 2个能值体系下,饲粮中添加复合油脂等量替代大豆油对保育猪的终末体重、平均日增重和平均日采食量和增重耗料比均无显著影响(P>0.05)(表4),而且各处理中腹泻率也无显著差异(P>0.05)(表5)。
表4 饲粮中添加复合油脂对保育猪生长性能的影响

Table 4 Effects of dietary supplementation of compound oil on growth performance of nursery pigs (n=6)

项目
Items
净能 NE 代谢能 ME SEM PP-value
能值体系
Energy
system
油脂来源
Oil source
能值体系×
油脂来源
Energy system×
oil source
大豆油
SBO
复合油脂
CPO
大豆油
SBO
复合油脂
CPO
初始体重 Initial weight/kg 8.40 8.39 8.39 8.41 0.45 0.99 0.99 0.99
终末体重 Final weight/kg 27.92 28.36 28.12 26.82 1.12 0.56 0.71 0.44
平均日采食量 ADFI/(g/d)
第1~14天 Days 1 to 14 549 550 538 554 24 0.90 0.72 0.76
第15~35天 Days 15 to 35 956 960 974 934 34 0.90 0.60 0.52
第1~35天 Days 1 to 35 762 764 768 756 29 0.98 0.86 0.80
平均日增重 ADG/(g/d) 481 488 496 478 21 0.91 0.80 0.55
增重耗料比 G∶F 0.63 0.64 0.65 0.63 0.01 0.58 0.58 0.31
表5 饲粮中添加复合油脂对保育猪腹泻率的影响

Table 5 Effects of dietary supplementation of compound oil on diarrhea rate of nursery pigs (n=6)%

项目
Items
净能 NE 代谢能 ME SEM P
P-value
大豆油 SBO 复合油脂 CPO 大豆油 SBO 复合油脂 CPO
第1~14天 Days 1 to 14 0.00 0.23 0.70 0.28 0.002 0.07
第15~35天 Days 15 to 35 0.64 0.21 0.41 0.85 0.002 0.27
第1~35天 Days 1 to 35 0.34 0.22 0.55 0.59 0.001 0.29

2.3 血清免疫球蛋白及炎症因子含量、抗氧化指标和挥发性脂肪酸含量

表6可知,复合油脂在NE和ME体系中均有提高保育猪血清IgG(P=0.09)和IgM含量(P=0.06)的趋势。在2种能值体系中,保育猪饲粮中添加复合油脂,对血清中的IL-1β、IL-2、IL-6和IL-10含量没有显著影响(P>0.05);与ME体系相比,NE体系饲喂的保育猪有升高血清IL-2含量的趋势(P=0.08)。此外,饲粮能值体系和油脂来源对血清免疫球蛋白、炎症因子含量及抗氧化指标均无显著交互作用(P<0.05)。
表6 饲粮中添加复合油脂对保育猪血清免疫球蛋白和炎症因子含量、抗氧化指标和挥发性脂肪酸含量的影响

Table 6 Effects of dietary supplementation of compound oil on serum immunoglobulin and inflammatory factor contents, antioxidant indexes and volatile fatty acid contents of nursery pigs (n=6)

项目
Items
净能 NE 代谢能 ME SEM PP-value
能值体系
Energy
system
油脂
来源
Oil
source
能值体系×
油脂来源
Energy system×
oil source
大豆油
SBO
复合油脂
CPO
大豆油
SBO
复合油脂
CPO
免疫球蛋白 Immunoglobulin
免疫球蛋白G IgG/(g/L) 23.93 27.17 23.51 24.22 1.12 0.15 0.09 0.27
免疫球蛋白M IgM/(g/L) 1.90 2.01 1.62 1.95 0.11 0.14 0.06 0.30
免疫球蛋白A IgA/(g/L) 2.78 3.08 2.75 2.96 0.24 0.76 0.30 0.85
炎症因子 Inflammatory factors
肿瘤坏死因子-α
TNF-α/(pg/mL)
53.65 49.69 53.20 51.24 3.04 0.86 0.34 0.74
干扰素-γ IFN-γ/(pg/mL) 39.60 40.49 39.39 38.97 2.08 0.68 0.91 0.76
白细胞介素-1β IL-1β/(pg/mL) 24.78 24.17 24.92 23.75 0.97 0.89 0.37 0.78
白细胞介素-2 IL-2/(pg/mL) 210.32 208.35 201.35 191.00 7.10 0.08 0.40 0.56
白细胞介素-6 IL-6/(pg/mL) 129.02 114.94 124.42 119.47 9.55 1.00 0.33 0.64
白细胞介素-10 IL-10/(pg/mL) 12.16 12.15 13.24 12.31 0.59 0.31 0.43 0.44
抗氧化指标 Antioxidant indices
总抗氧化能力 T-AOC/(U/mL) 8.16 8.87 9.50 10.69 0.48 <0.01 0.06 0.62
总超氧化物歧化酶
T-SOD/(U/mL)
69.94 77.51 84.53 87.37 3.34 <0.01 0.14 0.49
过氧化氢酶 CAT/(U/mL) 37.72 38.74 40.61 44.64 1.81 0.02 0.18 0.41
谷胱甘肽过氧化物酶
GSH-Px/(U/mL)
235.42 302.69 360.08 378.84 21.96 <0.01 0.06 0.28
丙二醛 MDA/(nmol/mL) 3.82 3.32 3.79 3.03 0.27 0.55 0.03 0.64
挥发性脂肪酸 Volatile fatty acids
乙酸 Acetic acid/(mg/mL) 0.33 0.34 0.39 0.41 0.02 <0.01 0.26 0.95
丙酸 Propionic acid/(mg/mL) 0.029 0.029 0.032 0.033 0.002 0.05 0.67 0.77
复合油脂等量替代大豆油有提高猪血清中T-AOC(P=0.06)和GSH-Px(P=0.06)活性的趋势,且显著降低了MDA含量(P<0.05);在2种能值体系中,ME体系相较于NE体系均显著提高了猪血清T-AOC及T-SOD、CAT、GSH-Px活性(P<0.05)。
添加复合油脂对保育猪血清挥发性脂肪酸含量变化没有显著影响(P>0.05);但ME体系比NE体系显著升高了血清中乙酸和丙酸的含量(P<0.05)。

2.4 肠道黏膜抗氧化指标

表7可知,在NE体系下,饲粮中添加复合油脂等量替代大豆油显著提高了肠道黏膜中的GSH-Px活性(P<0.05);同时,CAT活性(P=0.08)和T-AOC(P=0.09)也有升高的趋势。
表7 饲粮中添加复合油脂在净能体系下对保育猪肠道黏膜抗氧化指标的影响

Table 7 Effects of dietary supplementation of compound oil in net energy system on intestinal mucosal antioxidant indices of nursery pigs (n=6)

项目
Items
油脂来源 Oil source SEM P
P-value
豆油 SBO 复合油脂 CPO
总抗氧化能力 T-AOC/(U/mg prot) 0.61 0.73 0.07 0.09
总超氧化物歧化酶 T-SOD/(U/mg prot) 6.46 6.90 0.34 0.21
过氧化氢酶 CAT/(U/mg prot) 3.27 4.14 0.45 0.08
谷胱甘肽过氧化物酶 GSH-Px/(U/mg prot) 32.54 38.13 1.62 <0.01
丙二醛 MDA/(nmol/mg prot) 1.92 1.73 0.24 0.46

2.5 肠道形态

表8图1可知,在NE体系下,饲粮中添加复合油脂对猪空肠绒毛高度、隐窝深度以及二者比值没有显著影响(P>0.05)。
表8 饲粮中添加复合油脂在净能体系下对保育猪空肠形态的影响

Table 8 Effects of dietary supplementation of compound oil in net energy system on jejunum morphology of nursery pigs (n=6)

项目
Items
油脂来源 Oil source SEM P
P-value
大豆油 SBO 复合油脂 CPO
绒毛高度 Villus height/μm 372.18 374.59 22.31 0.92
隐窝深度 Crypt depth/μm 274.25 293.58 20.34 0.36
绒毛高度/隐窝深度 Villus height/crypt depth 1.31 1.29 0.08 0.80
图1 保育猪空肠形态代表性图像

SBO:大豆油 soybean oil;CPO:复合油脂 compound oil。下图同 the same as below。

Fig.1 Representative image of jejunum morphology of nursery pigs (n=6)

2.6 肠道紧密连接蛋白的表达

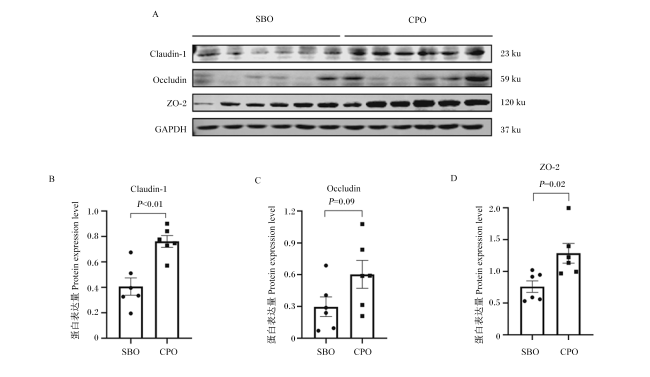
图2所示,在NE体系下,复合油脂等量替代大豆油显著提高了保育猪空肠黏膜的紧密连接蛋白Claudin-1和ZO-2的表达(P<0.05),且紧密连接蛋白Occludin的表达也有升高的趋势(P=0.09)。
图2 饲粮中添加复合油脂对净能体系下保育猪空肠黏膜紧密连接蛋白表达的影响

Claudin-1:紧密连接蛋白-1;Occludin:闭合蛋白;ZO-2:闭锁小带蛋白-2 zonula occludens protein-2;GAPDH: 甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase。

Fig.2 Effects of dietary supplementation of compound oil in net energy system on tight junction protein expression in jejunal mucosa of nursery pigs (n=6)

2.7 结肠挥发性脂肪酸含量

表9可知,在净能体系下,饲粮中添加复合油脂显著提高了结肠内容物中乙酸的含量(P<0.05),但对丙酸、丁酸、戊酸以及总挥发性脂肪酸的含量无显著影响(P>0.05)。
表9 饲粮中添加复合油脂在净能体系下对保育猪结肠内容物短链脂肪酸含量的影响

Table 9 Effects of dietary supplementation of compound oil in net energy system on short-chain fatty acid contents in colon contents of nursery pigs (n=6)mg/g

项目
Items
油脂来源 Oil source SEM P
P-value
大豆油 SBO 复合油脂 CPO
乳酸 Lactic acid 0.54 0.37 0.11 0.16
乙酸 Acetic acid 5.10 5.74 0.18 <0.01
丙酸 Propionic acid 3.14 3.15 0.24 0.97
丁酸 Butyric acid 1.45 1.25 0.29 0.50
戊酸 Valeric acid 0.18 0.18 0.06 0.91
总挥发性脂肪酸 Total VFA 9.87 10.32 0.55 0.63

表中总挥发性脂肪酸含量不包含乳酸。

The total volatile fatty acid content in the table do not include lactic acid.

2.8 微生物多样性

2.8.1 粪便微生物Alpha多样性指数分析

表10可知,饲粮中添加复合油脂等量替代大豆油对保育猪肠道粪便微生物的Ace指数、Chao指数、Sobs指数、香农指数和辛普森指数均没有显著影响(P>0.05)。
表10 饲粮中添加复合油脂对粪便微生物Alpha多样性的影响

Table 10 Effects of dietary supplementation of compound oil on Alpha diversity of fecal microorganisms (n=6)

项目
Items
油脂来源 Oil source SEM P
P-value
大豆油 SBO 复合油脂 CPO
覆盖率 Coverage 0.997 0.997 0.00 0.65
Ace指数 Ace index 612.15 544.99 34.55 0.20
Chao指数 Chao index 597.19 539.25 33.53 0.25
Sobs指数 Sobs index 534.83 469.17 30.19 0.16
香农指数 Shannon index 4.16 3.77 0.16 0.13
辛普森指数 Simpson index 0.05 0.09 0.02 0.16

2.8.2 粪便微生物Beta多样性分析

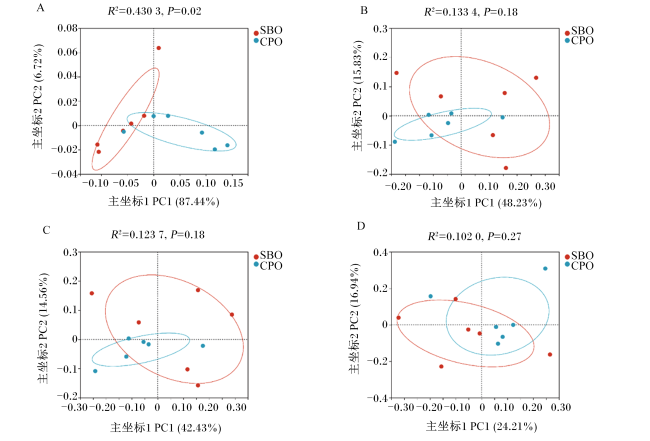
利用PCoA解析了微生物结构的相似性,再通过Adonis分析进一步解析处理间微生物构成的差异。由图3可知,在门水平上,复合油脂与大豆油处理之间存在显著差异(R2=0.430 3,P=0.02);但是在科水平、属水平和OTU水平上各处理间没有显著差异(P>0.05)。
图3 粪便微生物Beta多样性分析

A:门水平 phylum level;B:科水平 family level;C:属水平genus level;D:OTU水平OTU level。

Fig.3 Beta diversity analysis of fecal microorganisms

2.8.3 粪便微生物物种组成分析

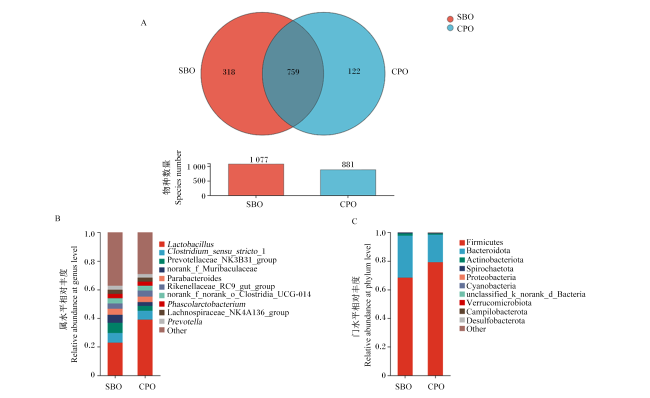
图4-A展示的是OTU水平Venn图,2个组共检测到的1 958个OTU,其中2个组共有的核心OTU有759个,318个为豆油处理中所特有,122个为复合油脂处理中特有。图4-B所示,在微生物属水平上,乳杆菌属(Lactobacillus)、狭义梭菌属_1(Clostridium_sensu_stricto_1)、普雷沃氏菌科NK3B31群(Prevotellaceae_NK3B31_group)为2个处理中的优势菌属,相对丰度分别为30.93%、6.50%和5.32%。图4-C所示,粪便微生物在门水平上的3种优势微生物分别为厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)和放线菌门(Actinobacteriota),相对丰度分别为73.74%、24.30%和1.25%,复合油脂处理和大豆油处理在门水平上不同微生物群落的相对丰度相似,但是2个处理中厚壁菌门相对丰度远高于其他门。
图4 粪便微生物OTU Venn图(A)及其在属水平(B)和门水平(C)上的相对丰度

Lactobacillus:乳杆菌属;Clostridium_sensu_stricto_1:狭义梭菌属_1;Prevotellaceae_NK3B31_group:普雷沃氏菌科NK3B31群;Parabacteroides:副拟杆菌;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;norank_f_norank_o_Clostridia_UCG-014:未分类梭状芽胞杆菌_UCG-014;Phascolarctobacterium:考拉杆菌属;Lachnospiraceae_NK4A136_group:毛螺菌科NK4A136群;Prevotella:普氏菌属;Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Actinobacteriota:放线菌门;Spirochaetota:螺旋菌门;Proteobacteria:变形菌门;Cyanobacteria:蓝绿藻;unclassified_k_norank_d_Bacteria:未分类细菌;Verrucomicrobiota:疣微菌门;Other:其他;Campilobacterota:弯曲杆菌门;Desulfobacterota:脱硫杆菌门。

Fig.4 OTU Venn diagram (A) of fecal microorganisms and their relative abundance at genus(B) and phylum (C) levels

2.8.4 粪便微生物物种差异分析

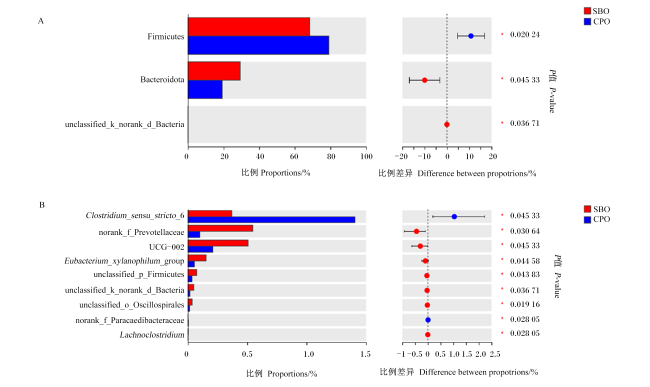
进一步使用Wilcoxon秩和检验对2个处理微生物的门水平和属水平进行分析(图5)。结果发现,在门水平上,在复合油脂处理中的厚壁菌门相对丰度显著高于大豆油处理中的菌群相对丰度(P<0.05);此外,大豆油处理中的拟杆菌门的相对丰度显著高于复合油脂处理(P<0.05)(图5-A),这2个菌群在门水平上都属于优势菌,且二者相对丰度达98.04%。属水平上经过筛选分析,2个处理之间有10种菌属相对丰度存在显著差异(P<0.05),其中狭义梭菌属_6(Clostridium_sensu_stricto_6)在复合油脂处理中的相对丰度为1.41%,在大豆油处理中的相对丰度为0.37%,是2个处理中相对丰度差异最大的微生物。此外,还有未分类普雷沃氏菌科(norank_f_Prevotellaceae)和尚未命名的微生物UCG-002的相对丰度在2个处理中存在较大差异,2种菌相对丰度在大豆油处理中都显著高于复合油脂处理(P<0.05)(图5-B)。
图5 粪便微生物物种差异分析

A:门水平 phylum level;B:属水平 genus level。Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;unclassified_k_norank_d_Bacteria:未分类细菌;Clostridium_sensu_stricto_6:狭义梭菌属_6;norank_f_Prevotellaceae:未分类普雷沃氏菌科;Eubacterium_xylanophilum_group:嗜木聚糖真杆菌群;unclassified_p_Firmicutes:未分类厚壁菌门;unclassified_o_Oscillospirales:未分类颤螺菌目;Lachnoclostridium:蓝绿藻菌属。

Fig.5 Analysis of fecal microbial species differences

3 讨论

饲粮中的油脂除了满足机体能量需要、促进动物生长外,还在提供必需脂肪酸、维护细胞结构、增强免疫力和作为亲脂溶剂等方面也发挥着重要作用[18-20]。饲粮中添加的油脂,通常为大豆油、玉米油、棕榈油以及动物油脂等。食用油脂的品质高、杂质少,但因为价格很高,限制了其在猪饲粮中添加用以补充饲粮能量水平[21-22]。目前我国饲料用油脂因为价格限制,一些油脂粗提物在广泛使用,增加了氧化变质的风险。因此,开发安全、高效的油脂类产品对于提高猪生长性能、降低养猪成本具有重要的经济价值。当前专门的饲料用油脂的发展很快,如利用动物油脂和植物油脂开发的脂肪粉类产品,因为添加的便利性而受到欢迎,大大促进了复合类油脂产品的开发,但是这类产品的有效能值还不清楚,特别是有关脂肪营养的研究为这类产品的技术升级提供了可能性。本研究中使用的复合油脂,是根据脂肪消化、吸收以及大肠能量利用营养的最新研究进展,并采用专利技术和生产工艺开发的新型复合油脂产品,通过乳化将油脂粒径揉小至5 μm以下母乳型小分子,提高其进入消化道后与脂肪酶接触的机会;同时,复合油脂中的乳化功能在饲料混合过程中乳化饲粮中的固有油脂,提高饲粮油脂和脂溶性维生素、色素的吸收,实现提升油脂可利用性、降低饲料成本的目的[23-24]
本研究模拟了国内大型和中、小型农牧企业分别使用NE和ME体系配制猪饲粮的实际情况,通过考察保育猪生长性能、腹泻率、机体免疫水平、抗氧化水平、小肠形态结构和结肠食糜的挥发性脂肪酸组成以及粪便菌群多样性等,全面评估了复合油脂等量替代大豆油的可行性。研究发现,饲粮中2%的复合油脂等量替代大豆油不影响保育猪全期的平均日增重、平均日采食量、增重耗料比和腹泻率。这表明在实际生产中,在保育猪的饲粮中使用复合油脂替代大豆油,可以达到与大豆油一样的效果。特别是在保育猪饲粮中,添加复合油脂等量替代2%的大豆油大幅度降低颗粒饲料的含粉率,这表明饲粮中添加复合油脂更有利于制粒,这也是复合油脂维持较高的保育猪的生长性能和饲料转化率的重要因素并且对改善饲料生产环境都有很大的帮助。
本研究中,不同饲粮能值体系下饲喂的保育猪,其血清抗氧化水平存在显著差异,在ME体系下,保育猪血清T-AOC和T-SOD、CAT和GSH-Px活性显著高于NE体系。ME体系配制的饲粮能量水平高于NE体系,有研究表明,长期高能量饮食会导致胰岛素抵抗,这与氧化应激和炎症反应有关[25]。高能量的饮食也会导致机体代谢活跃度增加,从而促进更多的自由基生成和体脂肪沉积,过多脂肪沉积也会释放更多的脂质代谢产物和炎症因子[26],因此,采食高能饲粮的猪体内抗氧化水平相对高可能与此有关。另外也可能是机体采食高能量饲粮抗氧化水平升高,更有利于保育猪对氧化应激的反应,其生物学意义有待于进一步研究。
IgG、IgM和IgA是机体内重要的免疫球蛋白,可以通过非特异性免疫反应起到预防和中和病原体的作用,对提高保育猪的免疫力发挥重要作用[27]。本研究发现,复合油脂等量替代大豆油,有升高血清中IgG和IgM含量的趋势,而且还显著降低了保育猪血清MDA的含量,并有提高血清和肠道黏膜中抗氧化水平的趋势。特别是在NE体系中,复合油脂代替大豆油还显著提高了肠道黏膜中的GSH-Px活性。综上所述,饲粮中添加复合油脂有助于提高保育猪的免疫能力和抗氧化能力。
肠道既是动物消化和吸收营养物质的重要场所,又是保持机体内环境稳定的先天屏障,肠道的完整性对肠道的功能和健康密切相关[28]。复合油脂等量替代大豆油虽然对保育猪绒毛高度、隐窝深度及二者比值没有影响,但显著提高了肠道黏膜中Claudin-1和ZO-2的蛋白表达,Occludin的蛋白表达有升高的趋势。肠黏膜上皮细胞及其紧密连接蛋白构成的保护在肠道屏障中尤为重要,紧密连接蛋白可以阻挡有毒大分子和微生物的入侵,还能有选择性地调节小分子的渗透性[29]。因此,复合油脂添加对保育猪有助于改善肠道黏膜的屏障功能,促进肠道的健康。
饲粮中添加复合油脂替代大豆油显著增加了结肠内容物中乙酸的含量。复合油脂对盲肠微生物的Alpha多样性没有显著改变,但显著改变了微生物门水平的Beta多样性,显著提高了粪便微生物中厚壁菌门相对丰度和降低了拟杆菌门相对丰度。厚壁菌门参与机体对食物能量的利用和脂肪吸收,并产生短链脂肪酸等代谢产物。乙酸作为肠道菌群发酵的产物之一,在被吸收后也可以提供能量,同时参与脂肪的代谢。研究表明,乙酸有助于抑制脂肪合成,促进脂肪氧化,从而对脂肪代谢起到一定的调节作用[30]。相比之下,拟杆菌门在肠道中更倾向于帮助分解和吸收蛋白质和多糖类物质,而不直接参加脂肪代谢过程[31]。厚壁菌门与拟杆菌门的比值大可能与体脂肪沉积增加有关系,这提示了宿主的脂肪代谢转向高效率的沉积和利用,这一现象还有待于进一步研究[32-33]
本试验中使用的复合油脂产品,其粗脂肪含量≥25%,在为期35 d的饲养试验中,保育猪生长性能没有受到负面影响。能量在体内不仅为维持、生长供能,还要为机体的免疫反应、应激等提供能量。Williams等[34]报道,免疫系统激活的猪平均采食量降低5.4%,日增重降低16.7%,上市天数增加37 d。Liu等[35]也证明,饲粮中添加鱼油,通过缓解仔猪免疫应激,可提高日增重8.12%、日均采食量提高15.86%。这些研究结果都表明,机体处于一个免疫稳态有助于动物发挥生长潜能。本试验中使用的复合油脂中含高比例的鱼油、丁酸以及益生元等,结合前面免疫指标和抗氧化指标,我们推测该复合油脂可能通过降低保育猪的免疫应激和提高抗氧化水平,并利用丁酸为大肠上皮细胞提供能量而促进仔猪生长。因此,本研究对我们理解猪的能量需要量提出了新的启示,为改善仔猪能量利用效率提供了新的思路。

4 结论

综上所述,饲粮中添加复合油脂可以有效降低颗粒饲料的含粉率,从生长性能、肠道健康、机体免疫、抗氧化等方面的结果综合判断,保育猪饲粮中添加2%复合油脂等量替代大豆油是可行的,该复合油脂产品的设计路线是有效的;保育猪饲粮配制中,复合油脂的NE和ME可以分别为31.50和35.80 MJ/kg。
[1]
ZHANG L, GENGLER N, DEHARENG F, et al. Can we observe expected behaviors at large and individual scales for feed efficiency-related traits predicted partly from milk mid-infrared spectra?[J]. Animals, 2020, 10(5):873.

DOI

[2]
REN D D, YANG H, ZHOU L F, et al. The land-water-food-environment nexus in the context of China’s soybean import[J]. Advances in Water Resources, 2021, 151:103892.

DOI

[3]
LIU W F, YANG H, CIAIS P, et al. China’s food supply sources under trade conflict with the United States and limited domestic land and water resources[J]. Earth’s Future, 2020, 8(3):e2020EF001482.

[4]
数据中心. 2022年大豆价格行情汇[EB/OL]. 2022. https://www.cngrain.com/#/home

Data Center. “2022 soybean price summary”[EB/OL]. 2022. https://www.cngrain.com/#/homein Chinese)

[5]
GUO Y, WANG L, HANSON A, et al. Identification of protective amino acid metabolism events in nursery pigs fed thermally oxidized corn oil[J]. Metabolites, 2023, 13(1):103.

DOI

[6]
杨元森, 王璐, 胡奇乐, 等. 猪的必需脂肪酸营养研究进展[J]. 中国畜牧杂志, 2023, 59(8):30-35.

YANG Y S, WANG L, HU Q L, et al. Advances in essential fatty acid nutrition in pigs[J]. Chinese Journal of Animal Science, 2023, 59(8):30-35. (in Chinese)

[7]
赖长华. 共轭亚油酸对断奶仔猪免疫应激的调控[D].博士学位论文. 北京: 中国农业大学, 2004.

LAI C H. Modulation of conjugated linoleic acid on immunological stress of weaned pigs[D].Ph.D.Thesis. Beijing: China Agricultural University, 2004. (in Chinese)

[8]
GUO J, YAN E, HE L, et al. Dietary supplementation with lauric acid improves aerobic endurance in sedentary mice via enhancing fat mobilization and glyconeogenesis[J]. Journal of Nutrition, 2023, 153(11):3207-3219.

DOI

[9]
尹靖东, 赖州文. 油脂的营养生理功能及其在动物饲粮中的高效利用[J]. 动物营养学报, 2022, 34(10):6235-6241.

DOI

YIN J D, LAI Z W. Nutritional and physiological functions of oils and fats and their efficient use in animal diets[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6235-6241. (in Chinese)

DOI

[10]
CARTONI MANCINELLI A, MATTIOLI S, TWINING C, et al. Poultry meat and eggs as an alternative source of n-3 long-chain polyunsaturated fatty acids for human nutrition[J]. Nutrients, 2022, 14(9):1969.

DOI

[11]
National Research Council. Nutrient requirements of swine[S].11th ed. Washington,D.C.: The National Academies Press, 2012.

[12]
SUN Y W, MA N, QI Z K, et al. Coated zinc oxide improves growth performance of weaned piglets via gut microbiota[J]. Frontiers in Nutrition, 2022, 9:819722.

DOI

[13]
KARIM A, NAILA B, KHWAJA S, et al. Evaluation of different starch binders on physical quality of fish feed pellets[J]. Brazilian Journal of Biology, 2022, 84:e256242.

DOI

[14]
WANG T X, LI S M, NING J X, et al. Effects of different processing techniques of palm kernel cake on processing quality of pellet feed,nutrient digestibility,and intestinal microbiota of pigs[J]. Journal of Animal Science, 2023, 101:skad217.

DOI

[15]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude protein in feeds-Kjeldahl method[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[16]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料中粗脂肪的测定:GB/T 6433—2006[S]. 北京: 中国标准出版社, 2006.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China, Standardization Administration of the People’s Republic of China. Determinaiion of crude fat in feeds:GB/T 6433—2006[S]. Beijing: Standards Press of China, 2006. (in Chinese)

[17]
International Organization for Standardization. Animal feeding stuffs,animal products,and faeces or urine.Determination of gross calorific value.Bomb calorimeter method:ISO 9831:1998[S]. Geneva: International Organization for Standardization, 1998.

[18]
O’HARA E, KELLY A, MCCABE M S, et al. Effect of a butyrate-fortified milk replacer on gastrointestinal microbiota and products of fermentation in artificially reared dairy calves at weaning[J]. Scientific Reports, 2018, 8(1):14901.

DOI PMID

[19]
CHU D T, PHUONG T N T, TIEN N L B, et al. The effects of adipocytes on the regulation of breast cancer in the tumor microenvironment:an update[J]. Cells, 2019, 8(8):857.

DOI

[20]
MATSUSHITA Y, NAKAGAWA H, KOIKE K. Lipid metabolism in oncology:why it matters,how to research,and how to treat[J]. Cancers, 2021, 13(3):474.

DOI

[21]
TALLENTIRE C W, MACKENZIE S G, KYRIAZAKIS I. Can novel ingredients replace soybeans and reduce the environmental burdens of European livestock systems in the future?[J]. Journal of Cleaner Production, 2018, 187:338-347.

DOI

[22]
GATRELL S, LUM K, KIM J, et al. Nonruminant nutrition symposium:potential of defatted microalgae from the biofuel industry as an ingredient to replace corn and soybean meal in swine and poultry diets[J]. Journal of Animal Science, 2014, 92(4):1306-1314.

DOI

[23]
章亮, 赖州文, 姜飞, 等. 一种油脂的乳化处理工艺:CN202310707781.7[P]. 2023-06-15.

ZHANG L, LAI Z W, JIANG F, et al. Emulsification process for a type of oil:CN202310707781.7[P]. 2023-06-15. (in Chinese)

[24]
赖州文, 章亮, 杨育淦, 等. 一种饲用乳化油:CN202210142338.5[P]. 2022-02-16.

LAI Z W, ZHANG L, YANG Y G, et al. A feed emulsified oil:CN202210142338.5[P]. 2022-02-16. (in Chinese)

[25]
AHMED B, SULTANA R, GREENE M W. Adipose tissue and insulin resistance in obese[J]. Biomedicine & Pharmacotherapy, 2021, 137:111315.

DOI

[26]
WANG T T, HE C Q. Pro-inflammatory cytokines:the link between obesity and osteoarthritis[J]. Cytokine & Growth Factor Reviews, 2018, 44:38-50.

[27]
LONGHIN E, GRØNBERG C, HU Q X, et al. Isolation and characterization of nanobodies against a zinc-transporting P-type ATPase[J]. Antibodies, 2018, 7(4):39.

DOI

[28]
LIU C M, CHI K M, YANG M, et al. Staphylococcal enterotoxin a induces intestinal barrier dysfunction and activates NLRP3 inflammasome via NF-κB/MAPK signaling pathways in mice[J]. Toxins, 2022, 14(1):29.

DOI

[29]
MAITY G, CHAKRABORTY J, GHOSH A, et al. Aspirin suppresses tumor cell-induced angiogenesis and their incongruity[J]. Journal of Cell Communication and Signaling, 2019, 13(4):491-502.

DOI PMID

[30]
YAMASHITA H. Biological function of acetic acid-improvement in obesity and glucose tolerance by acetic acid in type 2 diabetic rats[J]. Critical Reviews in Food Science and Nutrition, 2016, 56(Suppl.1):S171-S175.

[31]
LI Y H, YAN Y J, FU H G, et al. Does diet or macronutrients intake drive the structure and function of gut microbiota?[J]. Frontiers in Microbiology, 2023, 14:1126189.

DOI

[32]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

DOI

[33]
RIDAURA V K, FAITH J J, REY F E, et al. Gut microbiota from twins discordant for obesity modulate metabolism in mice[J]. Science, 2013, 341(6150):1241214.

DOI

[34]
WILLIAMS N H, STAHLY T S, ZIMMERMAN D R. Effect of level of chronic immune system activation on the growth and dietary lysine needs of pigs fed from 6 to 112 kg[J]. Journal of Animal Science, 1997, 75(9):2481-2496.

DOI PMID

[35]
LIU Y L, LI D F, GONG L M, et al. Effects of fish oil supplementation on the performance and the immunological,adrenal,and somatotropic responses of weaned pigs after an Escherichia coli lipopolysaccharide challenge[J]. Journal of Animal Science, 2003, 81(11):2758-2765.

DOI

文章导航

/