研究论文

单宁对断奶前犊牛瘤胃发酵参数与菌群结构的影响

  • 刘洁 , 1, 2 ,
  • 沈宜钊 1, 2 ,
  • 徐宏建 1, 2 ,
  • 张志宏 3 ,
  • 王美美 1, 2 ,
  • 李妍 2, 4 ,
  • 赵晓静 5 ,
  • 赵玉萍 1, 2 ,
  • 梁紫恒 1, 2 ,
  • 王猛 1, 2 ,
  • 孙凤莉 6 ,
  • 李建国 , 1, 2, 7, 8, * ,
  • 高艳霞 , 1, 2, 7, 8, *
展开
  • 1 河北农业大学动物科技学院,保定 071001
  • 2 农业农村部奶牛健康养殖重点实验室(部省共建),保定 071001
  • 3 君乐宝乳业集团有限公司,石家庄 050000
  • 4 河北农业大学动物医学院,保定 071001
  • 5 保定职业技术学院,保定 071001
  • 6 河北省畜牧兽医研究所,保定 071001
  • 7 河北省牛羊胚胎技术创新中心,保定 071001
  • 8 河北省乳制品产业技术研究院,石家庄 050000
*李建国,教授,博士生导师,E-mail: ;
高艳霞,研究员,硕士生导师,E-mail:

刘 洁(1996—),女,河北保定人,硕士研究生,研究方向为动物营养学。E-mail:

Copy editor: 菅景颖

收稿日期: 2023-09-19

  网络出版日期: 2024-04-15

基金资助

财政部和农业农村部-国家现代农业产业技术体系资助(CARS-36-20)

河北省现代农业产业技术体系奶牛创新团队项目(HBCT2023180207)

河北省高端人才项目(6012018)

河北农业大学精准畜牧学科群建设项目(1090064)

Effects of Tannin on Rumen Fermentation Parameters and Microflora Structure of Preweaning Calves

  • LIU Jie , 1, 2 ,
  • SHEN Yizhao 1, 2 ,
  • XU Hongjian 1, 2 ,
  • ZHANG Zhihong 3 ,
  • WANG Meimei 1, 2 ,
  • LI Yan 2, 4 ,
  • ZHAO Xiaojing 5 ,
  • ZHAO Yuping 1, 2 ,
  • LIANG Ziheng 1, 2 ,
  • WANG Meng 1, 2 ,
  • SUN Fengli 6 ,
  • LI Jianguo , 1, 2, 7, 8 ,
  • GAO Yanxia , 1, 2, 7, 8
Expand
  • 1 College of Animal Science and Technology, Agricultural University of Hebei, Baoding 071001, China
  • 2 Key Laboratory of Healthy Dairy Breeding of Dairy Cattle of the Ministry of Agriculture and Rural Affairs (Jointly Established by the Ministry and Province), Baoding 071001, China
  • 3 Junlebao Dairy Group Co., Ltd., Shijiazhuang 050000, China
  • 4 College of Veterinary Medicine, Agricultural University of Hebei, Baoding 071001, China
  • 5 Baoding Vocational and Technical College, Baoding 071001, China
  • 6 Institute of Animal Husbandry and Veterinary Medicine of Hebei Province, Baoding 071001, China
  • 7 Hebei Province Cattle and Sheep Embryo Technology Innovation Center, Baoding 071001, China
  • 8 Hebei Dairy Industry Technology Research Institute, Shijiazhuang 050000, China
*LI Jianguo, professor, E-mail: ;
GAO Yanxia, professor, E-mail:

Received date: 2023-09-19

  Online published: 2024-04-15

摘要

本试验旨在研究开食料中添加单宁对断奶前犊牛瘤胃发酵参数与菌群结构的影响。选取60头健康且初生重[(39.9±1.9) kg]相近的1日龄中国荷斯坦母犊牛,随机分为4组,每组15头,每头单栏饲养。对照组(CON组)饲喂开食料,试验组在对照组开食料基础上添加由白坚木单宁提取物(缩合单宁)和栗木单宁提取物(水解单宁)按照2∶1比例混合制成的白坚木单宁与栗木单宁混合物(QTE,单宁总含量≥73%),添加量分别为0.30%(QTE1组)、0.45%(QTE2组)、0.60%(QTE3组)。试验期63 d,试验期间所有犊牛统一断奶,试验最后1天采集瘤胃液。结果显示:1)各QTE添加组的终末体重均显著高于CON组(P<0.05)。2)开食料中添加不同水平的QTE对瘤胃液pH、微生物蛋白浓度、总挥发性脂肪酸浓度、乙酸摩尔比例、戊酸摩尔比例以及乙酸/丙酸比值均无显著影响(P>0.05);随着QTE添加量的增加,瘤胃液中氨态氮浓度呈二次降低趋势(P=0.05),丙酸摩尔比例有线性升高趋势(P=0.10),丁酸摩尔比例呈二次升高(P=0.03),异丁酸和异戊酸摩尔比例有线性降低趋势(P=0.08和P=0.05)。氨态氮浓度以QTE2组最低,丙酸摩尔比例以QTE2组最高;QTE2组丁酸摩尔比例显著高于CON组和QTE3组(P<0.05);QTE2组异戊酸摩尔比例显著低于CON组和QTE3组(P<0.05)。3)QTE1组、QTE2组和QTE3组的Shannon指数显著高于CON组(P<0.05),且以QTE2组最高。4)在门水平上,随着QTE添加量的增加,放线菌门(Actinobacteria)的相对丰度线性升高(P=0.01),且QTE2组和QTE3组显著高于CON组和QTE1组(P<0.05);厚壁菌门/拟杆菌门比值线性降低(P=0.01),且QTE1组、QTE2组和QTE3组均显著低于CON组(P<0.05)。在属水平上,随着QTE添加量的增加,普雷沃氏菌属的相对丰度线性升高(P=0.01),且QTE2组和QTE3组显著高于CON组(P<0.05);丁酸弧菌属的相对丰度线性降低(P=0.01);欧陆森氏菌属(Olsenella)的相对丰度呈线性升高趋势(P=0.05)。综上所述,单宁可通过提高瘤胃菌群多样性和有益菌相对丰度,优化瘤胃菌群结构,改善瘤胃发酵模式,促进断奶前犊牛的生长。在本试验条件下,犊牛开食料中QTE的适宜添加量为0.45%。

本文引用格式

刘洁 , 沈宜钊 , 徐宏建 , 张志宏 , 王美美 , 李妍 , 赵晓静 , 赵玉萍 , 梁紫恒 , 王猛 , 孙凤莉 , 李建国 , 高艳霞 . 单宁对断奶前犊牛瘤胃发酵参数与菌群结构的影响[J]. 动物营养学报, 2024 , 36(4) : 2497 -2511 . DOI: 10.12418/CJAN2024.215

Abstract

This study was conducted to study the effects of starter supplemented with tannin on rumen fermentation parameters and microflora structure of preweaning calves. Sixty healthy 1-day-old Chinese Holstein female calves with similar birth weight [(39.9±1.9) kg] were randomly divided into 4 groups with 15 calves per group, and each calf was raised in a single pen. Calves in control group (CON group) were fed starter, and those in experimental groups were fed the starter supplemented with 0.30% (QTE1 group), 0.45% (QTE2 group) and 0.60% (QTE3 group) quebracho tannin-chestnut tannin extracts (QTE, total tannin content≥73%). The QTE was composed of quebracho tannin extract (condensed tannin) and chestnut tannin extract (hydrolyzed tannin), and the ratio of them was 2∶1. The experiment lasted for 63 days. All calves were weaned uniformly during the experiment and rumen fluid was collected on the last day of the experiment. The results showed that: 1) the final body weight of calves in experimental groups was significantly higher than that in CON group (P<0.05). 2) Although rumen fluid pH, the concentrations of microbial protein and total volatile fatty acid, the molar ratios of acetic acid and valeric acid, and acetic acid/propionic acid ratio were not significantly affected by QTE supplemental level in starter (P>0.05), the concentration of ammonia-nitrogen showed a quadratic decreasing trend (P=0.05), the molar proportion of propionic acid tended to increase linearly (P=0.10), the molar proportion of butyric acid showed a significant quadratic increasing (P=0.03), and the molar proportions of isobutyric acid and isovaleric acid showed a trend to decrease linearly (P=0.08 and P=0.05) with the increase of QTE supplemental level. The ammonia nitrogen concentration in QTE2 group was the lowest, and the molar proportion of propionic acid in QTE2 group was the highest. The molar proportion of butyric acid in QTE2 group was significantly higher than that in CON group and QTE3 group (P<0.05); the molar proportion of isovaleric acid in QTE2 group was significantly lower than that in CON group and QTE3 group (P<0.05). 3) The Shannon index in QTE1 group, QTE2 group and QTE3 group was significantly higher than that in CON group (P<0.05), and the highest value was found in the QTE2 group. 4) At the phylum level, the relative abundance of Actinobacteria increased linearly with the increase of QTE supplemental level (P=0.01), and the QTE2 group and QTE3 group were significantly higher than CON group and QTE1 group (P<0.05); the ratio of the relative abundance of Firmicutes/Bacteroidetes decreased linearly with the increase of QTE supplemental level (P=0.01), and the QTE1 group, QTE2 group and QTE3 group were significantly lower than CON group (P<0.05). At the genus level, the relative abundance of Prevotella increased linearly with the increase of QTE supplemental level (P=0.01), and the QTE2 group and QTE3 group were significantly higher than CON group (P<0.05); the relative abundance of Butyrivibrio tended to decrease linearly with the increase of QTE supplemental level (P=0.01); the relative abundance of Olsenella tended to increase linearly (P=0.05). In conclusion, tannin improves the rumen fermentation pattern and growth of preweaning calves by increasing the diversity of rumen microflora and relative abundances of beneficial bacteria of calves, optimizing the structure of rumen microflora. The optimal supplemental level of QTE in the starter of preweaning calves under the condition of this study is 0.45%.

瘤胃是反刍动物消化吸收利用营养物质的关键器官,瘤胃的发育对反刍动物来说是至关重要的[1]。反刍动物瘤胃内有复杂的微生物区系,包括原核生物和真核生物,它们与宿主细胞存在互利共生关系[2]。因此,调控瘤胃微生物区系,促进瘤胃发育,对改善犊牛生长性能有重要作用。
单宁(tannin),又称鞣酸、丹宁、单宁酸、没食子酸、鞣质,广泛存在于植物茎叶、果壳、果肉及其种皮中[3],是一类分子质量一般在500~3 000 Da的植物多元酚类化合物。根据单宁化学结构的不同,可将其分为水解单宁和缩合单宁两大类物质[4]。近年来,人们发现单宁具有抗氧化、抑菌、抗炎等生物调节功能,能够改善肠道健康、防止腹泻、提高动物生长性能,可作为抗生素替代品应用于动物生产[5]。陈丽娟等[6]发现,在饲粮中分别添加0.42%、0.85%、1.27%、1.69%单宁,可促进安格斯母牛瘤胃菌群增殖。魏欢等[7]在体外试验中发现,添加0.1%水解单宁可降低瘤胃pH和氨态氮(NH3-N)浓度,但对乙酸/丙酸比值并无显著影响。McMahon等[8]研究表明,添加低剂量的缩合单宁可降低泽西阉牛瘤胃中可溶性氮和NH3-N浓度,并在不影响其采食量和碳水化合物消化率的基础上提高蛋白质消化率。Henke等[9]研究显示,在饲粮中添加白坚木单宁提取物(3.0% DM)降低了泌乳奶牛的产奶量、乳脂和乳蛋白含量。Woodward等[10]研究发现,添加来源于百脉根的缩合单宁可以提高产奶量和乳蛋白产量,且并未影响泌乳奶牛的采食量。也有研究表明,饲粮中添加来源于开心果壳的单宁(105 g/kg DM)可在不影响荷斯坦公牛采食量和营养物质消化率的情况下提高平均日增重(ADG)和饲料效率[11]。Chacón等[12]在体外试验中发现,从葡萄籽中提取的单宁通过对细胞因子的表达进行调控降低机体的轻度炎症。Serri等[13]在牛乳中添加水解单宁提取物(4 g/d),发现其可提高犊牛血浆总抗氧化能力(T-AOC),线性降低肠道中大肠杆菌数量,增加乳酸菌数量,降低腹泻持续时间,犊牛健康状况有所改善。也有研究表明在饲粮中添加出生体重0.02%(约10 g/d)的栗木提取物对犊牛肝脏功能有负面影响[14]。目前,研究热点主要集中于植物提取物单宁对家畜泌乳性能和生长性能以及幼龄动物免疫和抗氧化功能的影响等方面,而关于单宁对断奶前犊牛瘤胃发酵和菌群结构影响的报道较少。因此,本试验旨在研究开食料中添加单宁对断奶前犊牛瘤胃发酵和菌群结构的影响,以期确定开食料中单宁的适宜添加量,为犊牛生产提供理论指导。

1 材料与方法

1.1 试验材料

本试验中单宁的实际添加物为白坚木单宁与栗木单宁混合物(QTE),由白坚木单宁提取物(缩合单宁)与栗木单宁提取物(水解单宁)按照2∶1的比例混合制成,其单宁总含量≥73%。

1.2 试验设计

采用完全随机试验设计,将60头初生重[(39.9±1.9) kg]相近且健康的1日龄中国荷斯坦母犊牛随机分为4组,每组15头。犊牛从3日龄开始自由采食开食料,对照组(CON组)为常规开食料,试验组在对照组开食料中分别添加0.30%(QTE1组)、0.45%(QTE2组)、0.60%(QTE3组)的QTE(根据生产公司推荐剂量设置试验梯度)。饲养试验于2022年7月1日至2022年9月1日在河北省乐源君享牧业威县有限公司开展,试验期63 d。

1.3 开食料配制

犊牛开食料的营养成分满足NRC(2001)推荐的荷斯坦犊牛的营养需要,其组成及营养水平见表1。开食料中的粗蛋白质(CP)、粗脂肪(EE)、粗灰分(Ash)、酸性洗涤纤维(ADF)、钙(Ca)、磷(P)含量分别参考AOAC(2005)[15]中的方法996.11、方法920.39、方法942.05、方法973.18、方法968.08、方法946.06测定,中性洗涤纤维(NDF)含量参考Van Soest等[16]的方法测定。
表1 犊牛开食料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of calf starter (DM basis)%

项目 Items 含量 Content
原料 Ingredients
玉米 Corn 42.16
豆粕 Soybean meal 20.29
棉粕 Cottonseed meal 5.02
大豆皮 Soybean hull 9.13
小麦麸 Wheat bran 4.96
干酒糟及其可溶物 DDGS 4.96
玉米胚芽粕 Corn germ meal 9.03
石粉 Limestone 2.23
磷酸二氢钙 Ca(H2PO4)2 1.12
预混料 Premix1) 1.10
合计 Total 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 9.98
粗蛋白质 CP 24.10
粗脂肪 EE 5.05
中性洗涤纤维 NDF 22.90
酸性洗涤纤维 ADF 12.20
粗灰分 Ash 7.88
钙 Ca 1.67
磷 P 0.64

1)预混料为每千克饲粮干物质提供 The premix provided the following per kg of the dietary dry matter:Ca 1.90 g,P 0.84 g,Mg 1.06 g,Mn 14.56 mg,Zn 51.52 mg,Fe 8.176 mg,Cu 8.4 mg,Co 0.11 mg,I 0.45 mg,Se 0.11 mg,VA 616 IU,VD 61.6 IU,VE 16.8 IU。

2)代谢能为参考NRC(2001)所得计算值,其余为实测值。ME was a calculated value with reference to NRC (2001), while the others were measured values.

1.4 饲养管理

试验犊牛出生后1 h内立即灌服4 L初乳,间隔6~8 h第2次灌服2 L初乳。2日龄后每日饲喂2次(07:00和17:00)常乳(经巴氏消毒后),加电解质水2次(08:00和18:00)。在整个试验期内,分阶段对常乳饲喂量进行调整,每天每头犊牛常乳饲喂量为:2~7日龄饲喂6 L、8~57日龄饲喂8 L,58日龄饲喂6 L,59~63日龄常乳开始递减,每天饲喂量分别为5、4、3、2、1 L,64日龄时完全断奶。犊牛3日龄自由采食开食料与饮水,单栏饲养,饲养管理条件一致。

1.5 样品采集与分析

1.5.1 体重测定

在试验第1天和第63天晨饲前对犊牛进行称重,分别记为初始体重和终末体重。

1.5.2 瘤胃液采集

在试验第63天时,每组随机选择8头健康犊牛,于晨饲前经口腔采集瘤胃液。采集的瘤胃液立即分装,其中1份转移至5 mL冻存管中,立即存放于液氮中,转运回实验室,-80 ℃超低温存放,待测瘤胃菌群;剩余4份用于测定瘤胃液pH及NH3-N、挥发性脂肪酸(VFA)和微生物蛋白(MCP)浓度,其中用于测定NH3-N浓度的瘤胃液立即加入0.1 mL 6 mol/L盐酸,-20 ℃低温保存待测。

1.5.3 瘤胃发酵参数测定

瘤胃液pH使用酸度计(Denver UB-7,美国)测定,NH3-N浓度采用比色法[17]测定,VFA浓度参考文献[18]中方法使用气相色谱仪(Agilent 7890A,美国)测定,MCP浓度参考文献[19]中方法进行测定。

1.5.4 瘤胃菌群测定

将瘤胃液样品送至上海派森诺生物科技有限公司进行菌群测定。利用Illumina NovaSeq平台对微生物群落DNA片段进行双端测序。对样本数据进行质控,舍弃未匹配引物序列、重复序列及低质量序列等,获取高质量有效序列,在97%相似度下对有效序列进行聚类。使用R软件(Version 2.15.3)进行稀释曲线、Venn图、主坐标分析(PCoA)图、相关性热图和菌群功能预测注释热图的绘制。

1.6 统计分析

试验数据用SAS 9.4统计软件的Mixed过程进行数据分析,Mixed模型为Yijk=μ+Ti+Dj(i)iik。其中,Yijk为因变量;i代表试验处理;j代表犊牛;μ为总体均数;T为第i个处理;Dj(i)为第i头犊牛在处理内的随机效应;εiik为第j头犊牛分配到第i个处理的随机误差。模型内试验处理为固定效应,犊牛为随机效应。试验结果以最小二乘均数和最小二乘均数的标准误表示。采用Contrast语句对单宁添加量的线性和二次效应进行分析。P<0.05表示差异显著,0.05≤P≤0.10表示有显著趋势。

2 结果与分析

2.1 开食料中添加不同水平QTE对断奶前犊牛体重的影响

表2可知,各组犊牛的初始体重差异不显著(P>0.05);各QTE添加组的终末体重均显著高于CON组(P<0.05)。随着QTE添加量的增加,犊牛的终末体重呈线性升高(P=0.01)和二次升高趋势(P=0.05)。
表2 开食料中添加不同水平QTE对断奶前犊牛体重的影响

Table 2 Effects of starter supplemented with different levels of QTE on body weight of preweaning calveskg

项目
Items
组别 Groups SEM PP-value
CON QTE1 QTE2 QTE3 Trt L Q
初始体重 IBW 39.9 40.2 40.1 40.2 0.93 0.99 0.78 0.90
终末体重 FBW 89.1b 93.0a 93.7a 92.5a 1.01 0.02 0.01 0.05

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。Trt=处理效应,L=线性,Q=二次。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). Trt=treatment effect, L=linear, and Q=quadratic. The same as below.

2.2 开食料中添加不同水平QTE对断奶前犊牛瘤胃发酵参数的影响

表3可知,开食料中添加不同水平QTE对犊牛瘤胃液pH、MCP浓度、总挥发性脂肪酸(TVFA)浓度、乙酸摩尔比例、戊酸摩尔比例和乙酸/丙酸比值均无显著影响(P>0.05)。随着QTE添加量的增加,NH3-N浓度呈二次降低趋势(P=0.05),以QTE2组最低;丙酸摩尔比例有线性升高趋势(P=0.10),以QTE2组最高;丁酸摩尔比例呈二次升高(P=0.03),且QTE2组显著高于CON组和QTE3组(P<0.05);异丁酸摩尔比例有线性降低趋势(P=0.08);异戊酸摩尔比例有线性降低趋势(P=0.05),且QTE2组显著低于CON组和QTE3组(P<0.05)。
表3 开食料中添加不同水平QTE对断奶前犊牛瘤胃发酵参数的影响

Table 3 Effects of starter supplemented with different levels of QTE on rumen fermentation parameters of preweaning calves

项目
Items
组别 Groups SEM PP-value
CON QTE1 QTE2 QTE3 Trt L Q
pH 6.76 6.55 6.46 6.58 0.12 0.36 0.18 0.28
氨态氮 NH3-N/(mg/dL) 11.52 10.54 10.46 11.04 0.35 0.14 0.21 0.05
微生物蛋白 MCP/(μg/mL) 79.63 92.03 89.28 83.72 5.66 0.42 0.51 0.13
总挥发性脂肪酸
TVFA/(mmol/L)
60.04 60.46 64.71 60.42 2.35 0.46 0.56 0.51
乙酸 Acetic acid/% 58.69 57.78 56.12 58.24 2.17 0.84 0.70 0.59
丙酸 Propionic acid/% 24.92 26.90 30.17 27.85 1.74 0.21 0.10 0.45
丁酸 Butyric acid/% 5.85b 6.34ab 7.14a 5.69b 0.36 0.04 0.59 0.03
戊酸 Valeric acid/% 2.33 2.27 2.34 2.07 0.21 0.78 0.48 0.61
异丁酸 Isobutyric acid/% 3.81 2.66 1.84 2.55 0.63 0.19 0.08 0.30
异戊酸 Isovaleric acid/% 4.39a 4.02a 2.37b 3.58ab 0.47 0.03 0.05 0.37
乙酸/丙酸
Acetic acid/propionic acid
2.56 2.28 2.10 2.15 0.27 0.66 0.24 0.75

2.3 开食料中添加不同水平QTE对断奶前犊牛瘤胃菌群alpha多样性的影响
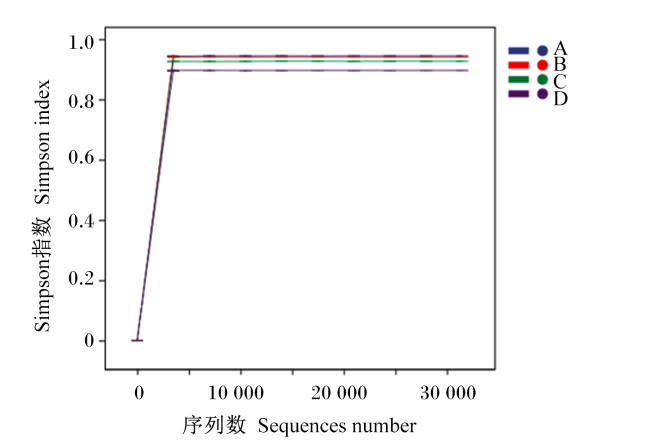
图1可知,随测序深度增加,各组瘤胃菌群稀释曲线末端均趋向平稳,表明样本量能够反映瘤胃菌群结构。
图1 瘤胃菌群稀释曲线

A代表CON组样本,B代表QTE1组样本,C代表QTE2组样本,D代表QTE3组样本。下图同。

Fig.1 Dilution curve of rumen microflora

A represented the CON group sample, B represented the QTE1 group sample, C represented the QTE2 group sample, and D represented the QTE3 group sample. The same as below.

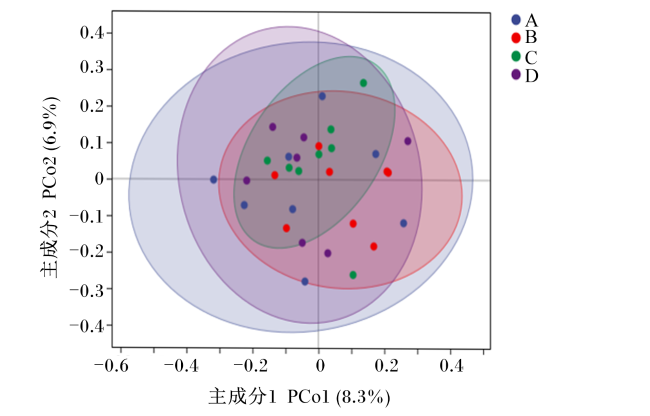
图2可知,主成分1的贡献率为8.3%,主成分2的贡献率为6.9%,CON组、QTE1组、QTE2组、QTE3组相对分散,说明CON组、QTE1组、QTE2组、QTE3组瘤胃菌群结构存在差异。
图2 基于Unweighted Unifrac距离的PCoA

Fig.2 PCoA based on Unweighted Unifrac distance

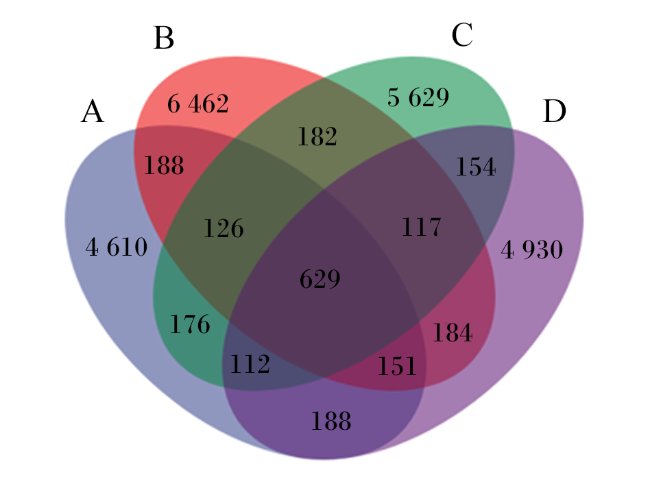
图3可知,CON组、QTE1组、QTE2组和QTE3组的扩增子序列变体(ASV)数目分别为6 180、8 039、7 125、6 465个,表现为QTE1组>QTE2组>QTE3组>CON组;CON组、QTE1组、QTE2组和QTE3组共有的ASV数目为629个,分别占各自ASV数目的10.2%、7.82%、8.82%、9.72%;CON组、QTE1组、QTE2组和QTE3组各自独有的ASV数目分别为4 610、6 462、5 629和4 930个,分别占各自ASV数目的74.6%、80.3%、79.0%和76.2%;CON组与QTE1组、QTE2组和QTE3组共有的ASV数目分别为1 094、1 043、1 080个,分别占各自ASV数目的13.6%、14.6%和16.7%。
图3 瘤胃菌群Venn图

Fig.3 Venn diagram of rumen microflora

表4可知,开食料中添加不同水平QTE对犊牛瘤胃菌群的Chao1、Observed_species、Faith_pd、Goods_coverage、Pielou_e和Simpson指数均无显著影响(P>0.05)。随着QTE添加量的增加,Shannon指数呈线性(P=0.01)和二次升高(P=0.04),且QTE1组、QTE2组和QTE3组的Shannon指数显著高于CON组(P<0.05),并以QTE2组最高。
表4 开食料中添加不同水平QTE对断奶前犊牛瘤胃菌群alpha多样性的影响

Table 4 Effects of starter supplemented with different levels of QTE on rumen microflora alpha diversity of preweaning calves

项目
Items
组别 Groups SEM PP-value
CON QTE1 QTE2 QTE3 Trt L Q
Chao1指数 Chao1 index (×103) 1.17 1.32 1.17 1.11 0.14 0.84 0.79 0.45
Observed_species指数
Observed_species index (×103)
1.07 1.21 1.10 1.00 0.15 0.81 0.75 0.38
Faith_pd指数
Faith_pd index (×102)
1.21 1.29 1.23 1.13 0.11 0.79 0.69 0.36
Goods_coverage指数
Goods_coverage index
0.99 0.99 0.99 0.99 <0.01 0.80 0.95 0.92
Pielou_e指数 Pielou_e index 0.64 0.61 0.63 0.61 0.03 0.76 0.44 0.77
Shannon指数 Shannon index 4.96b 6.20a 6.37a 5.98a 0.33 0.02 0.01 0.04
Simpson指数 Simpson index 0.91 0.94 0.92 0.89 0.03 0.76 0.73 0.31

2.4 开食料中添加不同水平QTE对断奶前犊牛瘤胃菌群丰富度的影响

表5可知,各组犊牛瘤胃菌群中均以厚壁菌门(Firmicutes)为第一优势菌门,拟杆菌门(Bacteroidetes)为第二优势菌门。随着QTE添加量的增加,厚壁菌门的相对丰度线性降低(P=0.04),以QTE2组最低,但各组间差异不显著(P>0.05);拟杆菌门的相对丰度有线性升高的趋势(P=0.09),QTE2组高于CON组、QTE1组和QTE3组,但各组间差异不显著(P>0.05);放线菌门(Actinobacteria)的相对丰度线性升高(P=0.01),且QTE2组和QTE3组显著高于CON组和QTE1组(P<0.05);疣微菌门(Verrucomicrobia)的相对丰度有线性(P=0.06)和二次升高的趋势(P=0.10);厚壁菌门/拟杆菌门比值线性降低(P=0.01),并有二次降低趋势(P=0.05),且QTE1组、QTE2组和QTE3组均显著低于CON组(P<0.05)。此外,开食料中添加不同水平QTE对变形菌门(Proteobacteria)、柔壁菌门(Tenericutes)、互养菌门(Synergistetes)、螺旋体门(Spirochaetes)、TM7和丝状杆菌门(Fibrobacteres)的相对丰度均没有显著影响(P>0.05)。
表5 开食料中添加不同水平QTE对断奶前犊牛瘤胃菌群门水平组成的影响

Table 5 Effects of starter supplemented with different levels of QTE on rumen microflora composition at phylum level of preweaning calves

项目
Items
组别 Groups SEM PP-value
CON QTE1 QTE2 QTE3 Trt L Q
厚壁菌门 Firmicutes/% 59.83 54.49 53.76 54.62 1.95 0.12 0.04 0.21
拟杆菌门 Bacteroidetes/% 26.00 31.12 32.20 29.78 2.01 0.16 0.09 0.12
放线菌门 Actinobacteria/% 5.64b 5.59b 9.02a 8.21a 0.87 0.01 0.01 0.65
变形菌门 Proteobacteria/% 5.17 3.75 3.98 4.97 1.79 0.92 0.86 0.51
柔壁菌门 Tenericutes/% 1.15 1.22 1.24 1.06 0.26 0.95 0.90 0.61
互养菌门 Synergistetes/% 0.69 0.59 0.37 0.54 0.31 0.90 0.60 0.78
螺旋体门 Spirochaetes/% 0.29 0.68 0.18 0.69 0.29 0.49 0.55 0.94
TM7/% 0.08 0.15 0.02 0.09 0.07 0.59 0.78 0.72
疣微菌门 Verrucomicrobia/% <0.01 <0.01 0.02 0.14 0.04 0.10 0.06 0.10
丝状杆菌门 Fibrobacteres/% <0.01 0.02 <0.01 0.07 0.02 0.27 0.14 0.38
厚壁菌门/拟杆菌门
Firmicutes/Bacteroidetes
2.58a 1.76b 1.69b 1.88b 0.20 0.02 0.01 0.05
表6可知,各组犊牛瘤胃菌群中的优势菌属均为普雷沃氏菌属(Prevotella)和丁酸弧菌属(Butyrivibrio)。随着QTE添加量的增加,普雷沃氏菌属的相对丰度线性升高(P=0.01),且QTE2组和QTE3组显著高于CON组(P<0.05);丁酸弧菌属的相对丰度线性降低(P=0.01);欧陆森氏菌属(Olsenella)的相对丰度呈线性升高趋势(P=0.05);梭菌属(Clostridium)的相对丰度有二次降低趋势(P=0.06)。此外,开食料中添加不同水平QTE对瘤胃球菌属(Ruminococcus)、夏普氏菌属(Sharpea)、颤螺菌属(Oscillospira)、不动杆菌属(Acinetobacter)、拟杆菌属(Bacteroides)、解琥珀酸菌属(Succiniclasticum)的相对丰度均没有显著影响(P>0.05)。
表6 开食料中添加不同水平QTE对断奶前犊牛瘤胃菌群属水平组成的影响

Table 6 Effects of starter supplemented with different levels of QTE on rumen microflora composition at genus level of preweaning calves%

项目
Items
组别 Groups SEM PP-value
CON QTE1 QTE2 QTE3 Trt L Q
普雷沃氏菌属 Prevotella 20.28b 23.94ab 25.87a 25.21a 1.32 0.03 0.01 0.30
丁酸弧菌属 Butyrivibrio 7.86 5.96 5.37 5.74 0.66 0.06 0.01 0.23
瘤胃球菌属 Ruminococcus 2.17 3.73 2.95 3.50 0.88 0.61 0.34 0.57
夏普氏菌属 Sharpea 4.81 4.44 2.79 1.44 1.81 0.53 0.18 0.58
颤螺菌属 Oscillospira 2.25 3.53 3.15 3.57 1.08 0.81 0.41 0.73
欧陆森氏菌属 Olsenella 1.95 3.23 3.97 3.07 0.51 0.07 0.05 0.11
梭菌属 Clostridium 3.16 2.01 2.55 3.11 0.49 0.29 0.86 0.06
不动杆菌属 Acinetobacter 2.41 2.07 1.81 1.59 0.99 0.94 0.54 0.96
拟杆菌属 Bacteroides 1.82 2.17 1.19 2.62 0.71 0.54 0.69 0.55
解琥珀酸菌属 Succiniclasticum 1.75 1.08 1.19 1.27 0.44 0.69 0.38 0.42

2.5 犊牛瘤胃菌群与瘤胃发酵参数和体重的相关性分析

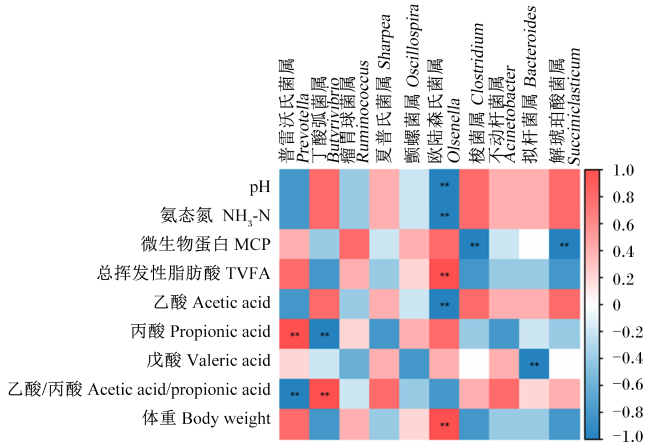
为进一步探究犊牛瘤胃菌群对瘤胃发酵功能和体重的影响,将在属水平上排名前10的菌属与瘤胃发酵参数和体重进行相关性分析。由犊牛瘤胃菌群与瘤胃发酵参数和体重相关性热图(图4)可知,普雷沃氏菌属、丁酸弧菌属、欧陆森氏菌属、梭菌属、解琥珀酸菌属相对丰度与瘤胃发酵参数及体重具有相关性,其中普雷沃氏菌属相对丰度与丙酸摩尔比例呈极显著正相关(P<0.01),与乙酸/丙酸比值呈极显著负相关(P<0.01);丁酸弧菌属相对丰度与丙酸摩尔比例呈极显著负相关(P<0.01),与乙酸/丙酸比值呈极显著正相关(P<0.01);欧陆森氏菌属相对丰度与pH、NH3-N浓度及乙酸摩尔比例呈极显著负相关(P<0.01),与TVFA浓度和体重呈极显著正相关(P<0.01);梭菌属、解琥珀酸菌属相对丰度与MCP浓度呈极显著负相关(P<0.01);拟杆菌属相对丰度与戊酸摩尔比例呈极显著负相关(P<0.01)。
图4 犊牛瘤胃菌群与瘤胃发酵参数和体重的相关性热图

“**”表示存在极显著相关性(P<0.01)。

Fig.4 Correlation heatmap between rumen microflora and rumen fermentation parameters and body weight of calves

“**” indicated that there was an extremely significant correlation (P<0.01).

2.6 瘤胃菌群功能预测

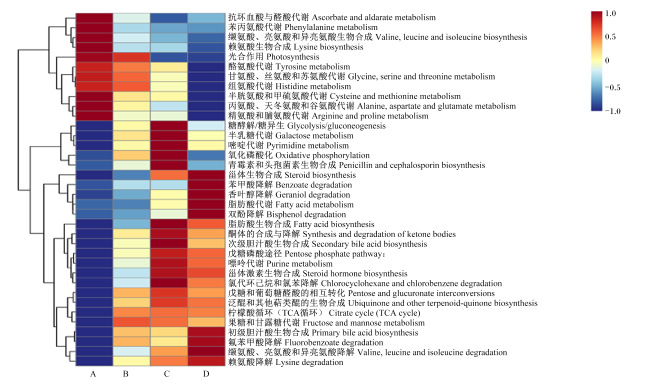
利用PICRUSt预测工具富集了35条主要的瘤胃微生物代谢通路。由图5可知,开食料中QTE的添加量与糖酵解/糖异生、半乳糖代谢、嘧啶代谢、氧化磷酸化、青霉素和头孢菌素的生物合成相关菌群的丰度存在正相关关系,与机体氨基酸代谢通路相关菌群的丰度存在负相关关系。
图5 菌群功能预测注释热图

Fig.5 Annotated heat map of bacterial function prediction

3 讨论

3.1 开食料中添加不同水平QTE对断奶前犊牛体重的影响

饲粮中添加单宁对动物生长性能的研究结果并不一致。Peng等[20]的研究指出,饲喂低剂量缩合单宁对羔羊的生长性能并无显著影响。而Jolazadeh等[11]的研究则表明,饲粮中添加提取自开心果壳的单宁(105 g/kg DM)可提高荷斯坦公牛的平均日增重。另有研究发现,在牛乳中添加4 g/d水解单宁提取物,犊牛体重显著升高[13],这与本研究结果一致。
本研究表明,开食料中添加0.30%、0.45%和0.60%的QTE均可显著提高犊牛体重,可能的原因是,单宁通过调控瘤胃微生物区系优化了瘤胃菌群结构[21-23],促进了有益菌增殖,改善了瘤胃发酵[22],进而促进了犊牛消化,最终提高了犊牛的体重。本研究结果与Xu等[21]的报道一致,Xu等[21]在犊牛开食料中添加没食子酸,没食子酸可通过增加瘤胃菌群中有益菌的丰度改善犊牛的营养物质消化率,进而提高犊牛体重。并且,我们通过探究瘤胃菌群与犊牛体重之间的相关性,发现欧陆森氏菌属相对丰度与犊牛体重呈极显著正相关。本研究中,随着犊牛开食料中QTE添加量的增加,欧陆森氏菌属的相对丰度呈线性升高趋势,在QTE2组其相对丰度最大,这与犊牛体重在QTE2组有最大值相符。

3.2 开食料中添加不同水平QTE对断奶前犊牛瘤胃发酵参数的影响

瘤胃液pH及VFA、MCP和NH3-N浓度是衡量瘤胃内环境的关键指标。一般瘤胃液pH正常范围为5.5~7.5[24]。本试验中,各组犊牛瘤胃液pH在6.46~6.76,处于正常范围内,可反映犊牛正常的瘤胃微生物系统[25]。Peng等[20]发现,饲喂不同剂量的缩合单宁对羔羊瘤胃液pH无显著影响;赵渊[26]给育肥牛饲喂含有不同剂量单宁酸的饲粮时,其瘤胃液pH无显著变化。上述研究结果与本试验结果一致,说明犊牛瘤胃内环境的pH并未受到单宁的影响。开食料内的碳水化合物在犊牛瘤胃中发酵后生成VFA,为犊牛生长发育和机体活动提供所需能量。本试验中,犊牛瘤胃液中TVFA浓度不受QTE添加量的显著影响,与Theodorido等[27]的试验结果相一致。这可能是试验设计的QTE添加量未影响到犊牛瘤胃液pH及瘤胃微生物区系活动,保证了饲粮中碳水化合物在瘤胃中的正常发酵。本试验中,随着QTE添加量的增加,丁酸摩尔比例呈显著的二次升高,这与Xu等[21]的研究结果一致,其原因可能是单宁对瘤胃微生物群落具有刺激作用,提高了参与糖代谢的疣微菌门的相对丰度,促进了瘤胃内碳水化合物的降解,进而促进了丙酸和丁酸的生物合成。本研究中,随着开食料中QTE添加量的增加,虽没有改变犊牛瘤胃液中乙酸/丙酸比值,但丙酸摩尔比例有线性升高的趋势,这与杨凯[22]的研究结果一致。由于单宁具有与纤维形成复合物的特性,添加QTE后可能通过减少瘤胃纤维降解导致瘤胃更趋向于丙酸发酵,导致丙酸摩尔比例升高。异丁酸和异戊酸主要来源于蛋白质的脱氨基反应,在本试验中,随着开食料中QTE添加量的增加,异丁酸和异戊酸摩尔比例有线性降低趋势,表明QTE的应用降低了蛋白质在瘤胃中的降解,这与Peng等[20]和Wang等[28]的研究结果一致。
瘤胃液NH3-N浓度可反映出饲粮中蛋白质、非蛋白氮降解和微生物利用氮的合成情况,其浓度主要与饲粮蛋白质降解率和微生物利用率相关[29]。研究发现,瘤胃液NH3-N适宜浓度为6.3~27.5 mg/dL[30],适宜的NH3-N浓度可促进微生物在瘤胃中的生长和繁殖,进而有利于MCP的合成。王敬尧等[31]在体外发酵试验中发现,在人工瘤胃装置中添加单宁酸可显著降低发酵24 h后NH3-N浓度;McMahon等[8]报道,添加低剂量缩合单宁可使泽西阉牛瘤胃中可溶性氮和NH3-N浓度降低。本试验中,随开食料中QTE添加量的增加,瘤胃液中NH3-N浓度降低,且NH3-N浓度为10.4~11.5 mg/dL,均处于适宜浓度范围中,与上述研究结果一致。Jolazadeh等[11]研究发现,在荷斯坦公牛饲粮中添加来源于开心果壳的单宁,瘤胃原虫数量减少并导致NH3-N浓度降低。据此推测,本试验中犊牛瘤胃液NH3-N浓度降低也可能与瘤胃原虫数量降低相关,同时由于单宁具有与饲粮中蛋白质形成复合物的特性,因此,QTE可能通过减少瘤胃可降解蛋白质,从而在不影响MCP浓度的情况下降低NH3-N浓度和异丁酸、异戊酸摩尔比例。

3.3 开食料中添加不同水平QTE对断奶前犊牛瘤胃菌群alpha多样性的影响
反刍动物瘤胃内的微生物在其消化过程中具有重要意义,瘤胃微生物组成复杂,主要由细菌、古菌、原生动物和真菌组成,瘤胃微生物的种类及数量与动物品种、饲粮组成和饲养环境密不可分[32-33]。瘤胃菌群的Goods_coverage指数反映出群落中物种的覆盖度,稀释曲线的平缓程度反映出测序深度。本试验中,各组瘤胃菌群的Goods_coverage指数均达到0.99,即覆盖率达到了99%,表明本次测序结果能够真实反映犊牛瘤胃微生物种类及结构多样性。Chao1和Observed_species指数反映群落丰富度,数值越高,说明群落丰富度越高;Shannon和Simpson指数反映物种多样性,数值越高,说明群落多样性越高。Wang等[34]报道,在荷斯坦公牛饲粮中添加单宁酸可显著提高瘤胃微生物群落多样性。本试验中,各组犊牛瘤胃菌群的Chao1和Observed_species指数无显著变化,而各QTE添加组的Shannon指数显著高于CON组,说明开食料中添加QTE不影响瘤胃菌群丰富度,但可提高瘤胃菌群多样性,与上述研究结果一致。本试验中瘤胃菌群多样性的改善表明在开食料中添加QTE有利于优化犊牛的瘤胃发酵模式和菌群结构。

3.4 开食料中添加不同水平QTE对断奶前犊牛瘤胃菌群丰富度的影响

研究显示,厚壁菌门和拟杆菌门是犊牛瘤胃菌群中的优势菌门[35-37],本试验所得结果与上述研究结果一致,说明本试验中添加的QTE不影响犊牛瘤胃菌群的整体组成。有报道称,纤维降解菌对单宁较为敏感[38];赵梦迪[23]在体外试验中也发现,缩合单宁抑制革兰氏阳性菌的活性,对分解纤维素类物质的微生物具有抑制作用,会降低纤维素类物质的降解。厚壁菌门属于革兰氏阳性菌[39],其是促进胃肠道对纤维素分解的主要菌群[40]。因此,本试验中厚壁菌门相对丰度随着QTE添加量的增加线性降低可能是由于单宁的抑制作用直接引起的,也可能与瘤胃液NH3-N浓度降低相关,因为瘤胃液中的NH3-N是纤维降解菌的首选氮源[41]。放线菌门属于革兰氏阳性菌,该菌门下的欧陆森氏菌属具有降解低聚糖的作用[42],还可显著增强免疫治疗效果,提高机体免疫力[43]。本试验中,QTE2组欧陆森氏菌属相对丰度增加,导致放线菌门相对丰度增加,说明添加QTE可以提高瘤胃对糖类物质的分解利用,同时还可能提高犊牛机体的免疫力,这与Serri等[13]的研究结果一致。拟杆菌门主要分解淀粉、蛋白质和多糖等物质[44],主要产物为丙酸,为机体提供能量,属于革兰氏阴性菌[39]。本试验中,拟杆菌门相对丰度随着QTE添加量的增加有线性升高的趋势,这可能是因为单宁抑制了厚壁菌门的生长和繁殖。Delgado等[45]报道,奶牛饲粮消化率的提高与拟杆菌门相对丰度的增加密切相关。Peng等[20]报道了低剂量缩合单宁可提高羔羊的干物质、有机物和粗蛋白质消化率。Xu等[21]在犊牛上的研究也发现没食子酸能提高犊牛的营养物质消化率,进而改善其生长性能。有研究报道,厚壁菌门/拟杆菌门比值的降低与反刍动物对营养物质的消化吸收以及脂肪沉积紧密相关[46]。本试验中,当开食料中QTE添加量为0.45%时,厚壁菌门/拟杆菌门比值最低,丙酸摩尔比例最高,意味着开食料中添加0.45%的QTE能够优化瘤胃菌群结构,改善瘤胃发酵,可能有促进犊牛消化、改善犊牛生长的潜力,因此0.45%可能是犊牛开食料中QTE的适宜添加量。
在属水平上,普雷沃氏菌属是反刍动物瘤胃中的优势菌属[47],其可降解非纤维碳水化合物,主要产物为丙酸,同时对瘤胃内环境改善有一定的积极影响[48]。本试验中,各组瘤胃菌群中普雷沃氏菌属的相对丰度最高,与上述研究结果一致;并且,随着开食料中QTE添加量的增加,犊牛瘤胃菌群中普雷沃氏菌属的相对丰度线性升高,其原因可能是普雷沃氏菌属对单宁有降解作用[49]。丁酸弧菌属是一种革兰氏阳性菌,属于厚壁菌门。本试验中,丁酸弧菌属相对丰度随着开食料中QTE添加量的增加线性降低,这可能是由于丁酸弧菌属对于单宁特别敏感[50],单宁会降低丁酸弧菌属的活性并对其生长和繁殖具有抑制作用[23],也可能是单宁具有与细菌[51]、蛋白质或酶类物质形成复合物的特性,减少了丁酸弧菌属生长发育所必需的氮源[52],抑制了其生长和繁殖,导致了丁酸弧菌属相对丰度降低。本试验通过探究犊牛瘤胃菌群与瘤胃发酵参数之间的相关关系,发现普雷沃氏菌属相对丰度与丙酸摩尔比例呈极显著正相关,与乙酸/丙酸比值呈极显著负相关,而丁酸弧菌属与这2个指标的相关性则相反。本试验中,随着QTE添加量的增加,普雷沃氏菌属的相对丰度增加,丁酸弧菌属的相对丰度降低,这与犊牛瘤胃液中丙酸摩尔比例升高相对应,而乙酸/丙酸比值无显著变化,可能是由于与乙酸摩尔比例呈显著负相关的欧陆森氏菌属在犊牛瘤胃菌群中占比较小,其相对丰度升高并未导致乙酸摩尔比例明显降低,这也可能是瘤胃液pH未降低和TVFA浓度未升高的原因之一。

3.5 PICRUSt菌群功能预测

瘤胃通过微生物发酵提供MCP和VFA,MCP是反刍动物重要的蛋白质来源,VFA则是反刍动物主要的能量来源[53],因此,积极探索与反刍动物营养生理功能密切相关的瘤胃菌群功能具有重要意义,如与碳水化合物代谢、氨基酸代谢、核苷酸代谢和能量代谢等相关的菌群。本试验利用PICRUSt预测工具分析了哺乳犊牛瘤胃微生物区系可能的功能途径,预测功能集中在糖酵解/糖异生、半乳糖代谢、嘧啶代谢、氧化磷酸化、青霉素和头孢菌素的生物合成以及机体氨基酸代谢通路上。普雷沃氏菌属在的碳水化合物降解中发挥着重要作用[48]。本研究中,普雷沃氏菌属的相对丰度与丙酸的摩尔比例呈极显著正相关的结果也证明了普雷沃氏菌属对碳水化合物降解具有积极影响,说明QTE中的单宁通过促进普雷沃氏菌属的增殖影响了丙酸生成的相关途径,增加了瘤胃中碳水化合物的降解和丙酸形成,使瘤胃发酵模式趋向于丙酸型发酵,提高了机体的能量利用,这可能是添加适宜剂量单宁提高反刍动物生产性能的原因之一[10]。丁酸弧菌属与蛋白质降解有关,具有蛋白质降解酶活性[54]。QTE中的单宁通过降低丁酸弧菌属相对丰度影响瘤胃氨基酸代谢通路,减少蛋白质在瘤胃内的降解,这与瘤胃液中NH3-N浓度降低相对应。此外,QTE中的单宁还可能通过影响机体中其他氨基酸代谢通路,降低反刍动物乳尿素氮和血尿素氮含量,提高氮利用率[9,55]

4 结论

在开食料中添加QTE(单宁总含量≥73%)可提高断奶前犊牛瘤胃菌群多样性和有益菌相对丰度,优化菌群结构,提高丙酸和丁酸的摩尔比例,降低异丁酸和异戊酸的摩尔比例,改善瘤胃发酵,从而促进犊牛瘤胃发育。在本试验条件下,QTE适宜添加量为0.45%。
[1]
MORGAVI D P, KELLY W J, JANSSEN P H, et al. Rumen microbial (meta)genomics and its application to ruminant production[J]. Animal, 2013, 7(Suppl 1):184-201.

DOI

[2]
YEOMAN C J, WHITE B A. Gastrointestinal tract microbiota and probiotics in production animals[J]. Annual Review of Animal Biosciences, 2014, 2:469-486.

DOI PMID

[3]
LONG R J, APORI S O, CASTRO F B, et al. Feed value of native forages of the Tibetan Plateau of China[J]. Animal Feed Science and Technology, 1999, 80(2):101-113.

DOI

[4]
任建存. 单宁的营养特性及其对反刍动物的影响研究[J]. 饲料研究, 2021, 44(20):146-150.

REN J C. Research on the nutritional properties and effect on ruminants of tannins[J]. Feed Research, 2021, 44(20):146-150. (in Chinese)

[5]
池永宽, 赵德刚, 宋月华, 等. 植物单宁在反刍动物生产中的应用研究进展[J]. 中国草地学报, 2022, 44(3):105-112.

CHI Y K, ZHAO D G, SONG Y H, et al. Research progress on application of plant tannin in ruminant production[J]. Chinese Journal of Grassland, 2022, 44(3):105-112. (in Chinese)

[6]
陈丽娟, 李道捷, 张云华. 不同比例构树与苜蓿混合对安格斯母牛瘤胃细菌多样性的影响[J]. 草业科学, 2020, 37(8):1579-1587.

CHEN L J, LI D J, ZHANG Y H. Effects of different combination ratios of paper mulberry and alfalfa on rumen bacterial diversity in Angus cows[J]. Pratacultural Science, 2020, 37(8):1579-1587. (in Chinese)

[7]
魏欢, 李翔宇, 于全平, 等. 添加5种植物酚类化合物对高精料底物瘤胃体外发酵及产甲烷的影响[J]. 草业学报, 2018, 27(11):192-199.

DOI

WEI H, LI X Y, YU Q P, et al. Effects of five plant phenolics on in vitro ruminal fermentation and methane production of a high concentrate-based substrate[J]. Acta Prataculturae Sinica, 2018, 27(11):192-199. (in Chinese)

[8]
MCMAHON L R, MAJAK W, MCALLISTER T A, et al. Effect of sainfoin on in vitro digestion of fresh alfalfa and bloat in steers[J]. Canadian Journal of Animal Science, 1999, 79(2):203-212.

DOI

[9]
HENKE A, DICKHOEFER U, WESTREICHER-KRISTEN E, et al. Effect of dietary Quebracho tannin extract on feed intake,digestibility,excretion of urinary purine derivatives and milk production in dairy cows[J]. Archives of Animal Nutrition, 2017, 71(1):37-53.

DOI

[10]
WOODWARD S L, AULDIST M J, LABOYRIE P J, et al. Effect of Lotus corniculatus and condensed tannins on milk yield and milk composition of dairy cows[J]. Proceedings of the New Zealand Society of Animal Production, 1999, 59:152-155.

[11]
JOLAZADEH A R, DEHGHAN-BANADAKY M, REZAYAZDI K. Effects of soybean meal treated with tannins extracted from pistachio hulls on performance,ruminal fermentation,blood metabolites and nutrient digestion of Holstein bulls[J]. Animal Feed Science and Technology, 2015, 203:33-40.

DOI

[12]
CHACÓN M R, CEPERUELO-MALLAFRÉ V, MAYMÓ-MASIP E, et al. Grape-seed procyanidins modulate inflammation on human differentiated adipocytes in vitro[J]. Cytokine, 2009, 47(2):137-142.

DOI

[13]
SERRI M A, MAHDAVI A H, RIASI A, et al. The addition of hydrolyzable tannin extract to milk affects calves’ performance,health,blood metabolites,and pathogen shedding[J]. Animal Feed Science and Technology, 2022, 292:115451.

DOI

[14]
WIELAND M, WEBER B K, HAFNER-MARX A, et al. A controlled trial on the effect of feeding dietary chestnut extract and glycerol monolaurate on liver function in newborn calves[J]. Journal of Animal Physiology and Animal Nutrition, 2015, 99(1):190-200.

DOI PMID

[15]
AOAC. Official method of analysis[S]. 18th ed.Gaithersburgs, MD: Association of Official Analytical Chemists, 2006.

[16]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[17]
WEATHERBURN M W. Phenol-hypochlorite reaction for determination of ammonia[J]. Analytical Chemistry, 1967, 39(8):971-974.

DOI

[18]
ERWIN E S, MARCO G J, EMERY E M. Volatile fatty acid analyses of blood and rumen fluid by gas chromatography[J]. Journal of Dairy Science, 1961, 44(9):1768-1771.

DOI

[19]
周奕毅. 茶皂素抑制湖羊甲烷生成的微生物学机制研究[D].硕士学位论文. 杭州: 浙江大学, 2009.

ZHOU Y Y. The research of microbiology mechanism of tea saponins inhibiting ruminal methane production in Hu sheep[J]. Chinese Journal of Animal Nutrition, 2016, 28(8):2485-2496. (in Chinese)

[20]
PENG K, SHIRLEY D C, XU Z J, et al. Effect of purple prairie clover (Dalea purpurea Vent.) hay and its condensed tannins on growth performance,wool growth,nutrient digestibility,blood metabolites and ruminal fermentation in lambs fed total mixed rations[J]. Animal Feed Science and Technology, 2016, 222:100-110.

DOI

[21]
XU H J, ZHANG Q Y, WANG L H, et al. Growth performance,digestibility,blood metabolites,ruminal fermentation,and bacterial communities in response to the inclusion of gallic acid in the starter feed of preweaning dairy calves[J]. Journal of Dairy Science, 2022, 105(4):3078-3089.

DOI

[22]
杨凯. 单宁酸对肉牛瘤胃发酵、微生物区系、甲烷排放及氮排泄的调控规律[D].博士学位论文. 北京: 中国农业大学, 2017.

YANG K. Manipulation of tannic acid on rumen fermentation,microbial flora,methane emission and nitrogen excretion in beef cattle[D].Ph.D.Thesis. Beijing: China Agricultural University, 2017. (in Chinese)

[23]
赵梦迪. 添加低水平缩合单宁对青贮野火球发酵品质及延边黄牛瘤胃体外发酵影响[D].硕士学位论文. 延吉: 延边大学, 2020.

ZHAO M D. Effects of adding low-level condensed tannin on the fermentation quality of silage fireball and the rumen fermentation of Yanbian yellow cattle in vitro[D].Master’s Thesis. Yanji: Yanbian University, 2020. (in Chinese)

[24]
HOOVER W H, KINCAID C R, VARGA G A, et al. Effects of solids and liquid flows on fermentation in continuous cultures.Ⅳ.pH and dilution rate[J]. Journal of Animal Science, 1984, 58(3):692-699.

DOI

[25]
ZEIDALI-NEJAD A, GHORBANI G R, KARGAR S, et al. Nutrient intake,rumen fermentation and growth performance of dairy calves fed extruded full-fat soybean as a replacement for soybean meal[J]. Animal, 2018, 12(4):733-740.

DOI

[26]
赵渊. 不同剂量单宁酸对育肥牛生产性能、瘤胃发酵、血液生化及免疫功能的影响[D].硕士学位论文. 长沙: 湖南农业大学, 2021.

ZHAO Y. Effects of different doses of tannic acid on the production performance,rumen fermentation,blood biochemistry and immune function of fattening cattle[D].Master’s Thesis. Changsha: Hunan Agricultural University, 2021. (in Chinese)

[27]
THEODORIDOU K, AUFRÈRE J, NIDERKORN V, et al. In vitro study of the effects of condensed tannins in sainfoin on the digestive process in the rumen at two vegetation cycles[J]. Animal Feed Science and Technology, 2011, 170(3/4):147-159.

DOI

[28]
WANG Y, DOUGLAS G B, WAGHORN G C, et al. Effect of condensed tannins upon the performance of lambs grazing Lotus corniculatus and lucerne (Medicago sativa)[J]. The Journal of Agricultural Science, 1996, 126(1):87-98.

DOI

[29]
BENCHAAR C, ROMERO-PÉREZ G A, CHOUINARD P Y, et al. Supplementation of increasing amounts of linseed oil to dairy cows fed total mixed rations:effects on digestion,ruminal fermentation characteristics,protozoal populations,and milk fatty acid composition[J]. Journal of Dairy Science, 2012, 95(8):4578-4590.

DOI

[30]
MURPHY J J, KENNELLY J J. Effect of protein concentration and protein source on the degradability of dry matter and protein in situ[J]. Journal of Dairy Science, 1987, 70(9):1841-1849.

DOI

[31]
王敬尧, 解湧芳, 丽丽, 等. 添加不同水平单宁酸对绵羊体外发酵参数和甲烷产量的影响[J]. 中国畜牧兽医, 2020, 47(5):1428-1435.

DOI

WANG J Y, XIE Y F, LI L, et al. Effects of adding different levels of tannic acid on rumen fermentation parameters and methane production of sheep in vitro method[J]. China Animal Husbandry & Veterinary Medicine, 2020, 47(5):1428-1435. (in Chinese)

[32]
WRIGHT A D G, KLIEVE A V. Does the complexity of the rumen microbial ecology preclude methane mitigation?[J]. Animal Feed Science and Technology, 2011,166-167:248-253.

[33]
NEWBOLD C J, RAMOS-MORALES E. Review:ruminal microbiome and microbial metabolome:effects of diet and ruminant host[J]. Animal, 2020, 14(Supplement 1):s78-s86.

DOI

[34]
WANG Z, ZHAO Y, LAN X Y, et al. Tannic acid supplementation in the diet of Holstein bulls:impacts on production performance,physiological and immunological characteristics,and ruminal microbiota[J]. Frontiers in Nutrition, 2022, 9:1066074.

DOI

[35]
GUO W, VAN NIEKERK J K, ZHOU M, et al. Longitudinal assessment revealed the shifts in rumen and colon mucosal-attached microbiota of dairy calves during weaning transition[J]. Journal of Dairy Science, 2021, 104(5):5948-5963.

DOI PMID

[36]
王庆, 张巧娥, 张转弟, 等. 复合菌颗粒料对犊牛瘤胃发酵参数及菌群结构的影响[J]. 中国饲料, 2022(19):55-61.

WANG Q, ZHANG Q E, ZHANG Z D, et al. Effects of compound bacterial granules on rumen fermentation parameters and microflora structure of calves[J]. China Feed, 2022(19):55-61. (in Chinese)

[37]
李岚捷, 成述儒, 刁其玉, 等. 不同NFC/NDF水平饲粮对犊牛瘤胃发酵参数和微生物区系多样性的影响[J]. 畜牧兽医学报, 2017, 48(12):2347-2357.

LI L J, CHENG S R, DIAO Q Y, et al. Effects of diets with different NFC/NDF levels on the rumen fermentation parameters and bacterial community in male calves[J]. Acta Veterinaria et Zootechnica Sinica, 2017, 48(12):2347-2357. (in Chinese)

[38]
MCSWEENEY C S, PALMER B, MCNEILL D M, et al. Microbial interactions with tannins:nutritional consequences for ruminants[J]. Animal Feed Science and Technology, 2001, 91(1/2):83-93.

DOI

[39]
牛建康. 活性干酵母对泌乳牛生产性能、瘤胃发酵及甲烷排放的影响[D].硕士学位论文. 保定: 河北农业大学, 2019.

NIU J K. Effects of active dry yeasts on performance,rumen fermentation and methane production of lactating dairy cows[D].Master’s Thesis. Baoding: Hebei Agricultural University, 2019. (in Chinese)

[40]
LA REAU A J, SUEN G. The ruminococci:key symbionts of the gut ecosystem[J]. Journal of Microbiology, 2018, 56(3):199-208.

DOI

[41]
COTTA M A, RUSSELL J B. Effect of peptides and amino acids on efficiency of rumen bacterial protein synthesis in continuous culture[J]. Journal of Dairy Science, 1982, 65(2):226-234.

DOI

[42]
毛丙永. 功能性低聚糖对肠道细菌的影响及机制[D].博士学位论文. 无锡: 江南大学, 2015.

MAO B Y. Effects of functional oligosaccharides on the gut bacteria and the mechanism[D].Ph.D.Thesis. Wuxi: Jiangnan University, 2015. (in Chinese)

[43]
MAGER L F, BURKHARD R, PETT N, et al. Microbiome-derived inosine modulates response to checkpoint inhibitor immunotherapy[J]. Science, 2020, 369(6510):1481-1489.

DOI PMID

[44]
NAAS A E, MACKENZIE A K, MRAVEC J, et al. Do rumen Bacteroidetes utilize an alternative mechanism for cellulose degradation?[J]. mBio, 2014, 5(4):e01401-14.

[45]
DELGADO B, BACH A, GUASCH I, et al. Whole rumen metagenome sequencing allows classifying and predicting feed efficiency and intake levels in cattle[J]. Scientific Reports, 2019, 9(1):11.

DOI PMID

[46]
CHANG J, WANG T, WANG P, et al. Compound probiotics alleviating aflatoxin B1 and zearalenone toxic effects on broiler production performance and gut microbiota[J]. Ecotoxicology and Environmental Safety, 2020, 194:110420.

DOI

[47]
SHARMA A, PRASAD S, SINGH Y, et al. Effect of polyherbal preparation supplementation on immunity and udder health of periparturient Karan-Fries crossbred dairy cows[J]. Journal of Applied Animal Research, 2014, 42(2):217-221.

DOI

[48]
张洁, 张力莉, 徐晓锋. 反刍动物瘤胃内普雷沃氏菌的研究进展[J]. 中国饲料, 2020(7):17-21.

ZHANG J, ZHANG L L, XU X F. Research progress of Prevotella in the rumen of ruminants[J]. China Feed, 2020(7):17-21. (in Chinese)

[49]
LI Z P, LIU H L, LI G Y, et al. Molecular diversity of rumen bacterial communities from tannin-rich and fiber-rich forage fed domestic Sika deer (Cervus nippon) in China[J]. BMC Microbiology, 2013, 13:151.

DOI PMID

[50]
VASTA V, YÁÑEZ-RUIZ D R, MELE M, et al. Bacterial and protozoal communities and fatty acid profile in the rumen of sheep fed a diet containing added tannins[J]. Applied and Environmental Microbiology, 2010, 76(8):2549-2555.

DOI PMID

[51]
SMITH A H, ZOETENDAL E, MACKIE R I. Bacterial mechanisms to overcome inhibitory effects of dietary tannins[J]. Microbial Ecology, 2005, 50(2):197-205.

DOI PMID

[52]
MUELLER-HARVEY I. Unravelling the conundrum of tannins in animal nutrition and health[J]. Journal of the Science of Food and Agriculture, 2006, 86(13):2010-2037.

DOI

[53]
MITSUMORI M, SUN W B. Control of rumen microbial fermentation for mitigating methane emissions from the rumen[J]. Asian-Australasian Journal of Animal Sciences, 2008, 21(1):144-154.

DOI

[54]
邓露, 张俊, 姚军虎. 胃肠道-肝脏-乳腺协同调节奶牛乳成分的机制[J]. 动物营养学报, 2022, 34(10):6193-6202.

DOI

DENG L, ZHANG J, YAO J H. Mechanism of gastrointestinal tract-liver-mammary gland co-regulating milk components of dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6193-6202. (in Chinese)

DOI

[55]
DSCHAAK C M, WILLIAMS C M, HOLT M S, et al. Effects of supplementing condensed tannin extract on intake,digestion,ruminal fermentation,and milk production of lactating dairy cows[J]. Journal of Dairy Science, 2011, 94(5):2508-2519.

DOI

文章导航

/