研究论文

降解霉菌毒素乳酸菌的筛选及鉴定

  • 姚有莉 , 1, 2, 3 ,
  • 张朋 1, 2, 3 ,
  • 王永奔 1, 2, 3 ,
  • 卢博雨 1, 2, 3 ,
  • 吴国芳 1, 3, 4 ,
  • 张剑搏 1, 3, 4 ,
  • 王磊 , 1, 2, 3, *
展开
  • 1 青海省畜牧兽医科学院(青海大学),西宁 810016
  • 2 青海大学青海省高原放牧家畜动物营养与饲料科学重点实验室,西宁 810016
  • 3 青海省高原家畜遗传资源保护与创新利用重点实验室,西宁 810016
  • 4 农业农村部青藏高原畜禽遗传育种重点实验室,西宁 810016
*王 磊,副研究员,硕士生导师,E-mail:

姚有莉(1998—),女,青海海东人,硕士研究生,从事微生物降解毒素的研究。E-mail:

Copy editor: 田艳明

收稿日期: 2023-10-10

  网络出版日期: 2024-04-15

基金资助

益生菌在八眉猪产业链中的应用与示范(2023-NK-137)

Screening and Identification of Mycotoxin-Degrading Lactic Acid Bacteria

  • YAO Youli , 1, 2, 3 ,
  • ZHANG Peng 1, 2, 3 ,
  • WANG Yongben 1, 2, 3 ,
  • LU Boyu 1, 2, 3 ,
  • WU Guofang 1, 3, 4 ,
  • ZHANG Jianbo 1, 3, 4 ,
  • WANG Lei , 1, 2, 3
Expand
  • 1 Qinghai Academy of Animal Husbandry and Veterinary Sciences (Qinghai University), Xining 810016, China
  • 2 Key Laboratory of Plateau Livestock Nutrition and Feed Science of Qinghai Province, Qinghai University, Xining 810016, China
  • 3 Plateau Livestock Genetic Resources Protection and Innovative Utilization Key Laboratory of Qinghai Province, Xining 810016, China
  • 4 Key Laboratory of Livestock and Poultry Genetics and Breeding on the Tibetan Plateau, Ministry of Agriculture and Rural Affairs, Xining 810016, China
*associate professor, E-mail:

Received date: 2023-10-10

  Online published: 2024-04-15

摘要

本试验旨在获得可高效降解霉菌毒素和具有益生特性的乳酸菌,为后期其作为饲料添加剂在饲料中应用奠定基础。试验通过对分离自青海牦牛和藏羊瘤胃中的169株乳酸菌进行霉菌毒素降解能力比较,以及形态学、生理生化特性、分子生物学、益生性和安全性的综合评定,最终获得4株可以同时降解饲料原料中4种真菌毒素的菌株(菌株C2、E28、C16和A16)。在本研究中,初筛获得的15株乳酸菌对黄曲霉毒B1(AFB1)、呕吐毒素(DON)、玉米赤霉烯酮(ZEA)和硫代葡萄糖苷(GLUS)的降解率最高分别为70.95%、60.11%、64.00%和59.18%;复筛获得的4株乳酸菌对AFB1、DON、ZEA和GLUS的降解率分别为33.53%、60.18%、51.45%和43.41%。16S rRNA测序结果表明:菌株C2和E28为乳酸片球菌,菌株A16为戊糖片球菌,菌株C16为乳肠球菌;这4株乳酸菌起酵时间短,产酸能力强(pH<4.5),能在pH 3.5和胆盐浓度为0.1%的环境中正常生长,且有良好的自凝集力和疏水性。通过安全性试验得知,4株乳酸菌均不溶血,其中乳肠球菌C16和戊糖片球菌A16对红霉素和青霉素敏感,乳酸片球菌C2和E28对红霉素和青霉素敏感或中度敏感,且乳酸片球菌C2和E28对金黄色葡萄球菌有强抑菌性,抑菌圈直径≥20 mm,是优良的候选菌株。

本文引用格式

姚有莉 , 张朋 , 王永奔 , 卢博雨 , 吴国芳 , 张剑搏 , 王磊 . 降解霉菌毒素乳酸菌的筛选及鉴定[J]. 动物营养学报, 2024 , 36(4) : 2674 -2689 . DOI: 10.12418/CJAN2024.230

Abstract

The aim of this experiment was to obtain lactic acid bacteria which could degrade mycotoxin efficiently and had probiotic properties, so as to lay a foundation for their application in feed additives in the future. By comparing the mycotoxin degrading ability of 169 strains of lactic acid bacteria isolated from the rumen of Qinghai yak and Tibetan sheep, and comprehensively evaluating the morphology, physiological and biochemical properties, molecular biology, probiotics and security, 4 strains were obtained which could simultaneously degrade 4 mycotoxins in feed materials which were strains C2, E28, C16 and A16. In this study, the highest degradation rates of aflatoxin B1 (AFB1), deoxynivalenol (DON), zearalenone (ZEA) and glucosinolate (GLUS) were 70.95%, 60.11%, 64.00% and 59.18%, respectively, among the 15 strains of lactic acid bacteria obtained from the primary screening; and the degradation rates of AFB1, DON, ZEA and GLUS were 33.53%, 60.18%, 51.45% and 43.41% by 4 strains obtained from the secondary screening, respectively. The results of 16S rRNA sequencing showed that strains C2 and E28 were Pediococcus acidilactici, strain A16 was Pediococcus pentosaceus, and strain C16 was Enterococcus lactis. These 4 strains of lactic acid bacteria had short fermentation time, strong acid production ability (pH<4.5), could grow normally in an environment with pH 3.5 and bile salt concentration of 0.1%, and had good self-agglutination and hydrophobicity. According to the safety test, all the 4 strains of lactic acid bacteria were non-hemolytic, among which Enterococcus lactis C16 and Laptococcus pentosus A16 were sensitive to erythromycin and penicillin, while Laptococcus lactis C2 and E28 were sensitive or moderately sensitive to erythromycin and penicillin, and Laptococcus lactis C2 and E28 had strong antibacterial activity against Staphylococcus aureus, with antibacterial zone diameter was ≥20 mm, and overall there are all excellent candidate strains.

饲料及其原料在加工、储存和运输过程中容易发生霉变,产生霉菌。霉菌不仅降低饲料的营养价值,影响适口性,导致畜禽采食量下降,而且还会造成动物生长停滞、免疫力降低、生产性能下降,甚至中毒死亡[1-3]。根据最近一项全球调查,90%的饲料和原料至少有1种霉菌毒素污染,64%的饲料中存在多种霉菌毒素的污染,从国内多个地区采集的玉米样品中黄曲霉毒B1(aflatoxin B1,AFB1)、玉米赤霉烯酮(zearalenone,ZEA)和呕吐毒素(deoxynivalenol,DON)的阳性检出率分别是94.9%、93.4%和98.4%,其中有92.4%的样品同时检出了这3种毒素[4],该研究表明多霉菌毒素共污染情况非常普遍。
日常生活中,常见的霉菌毒素有AFB1、ZEA、DON、硫代葡萄糖苷(glucosinolate,GLUS)、T-2毒素(T-2 toxin,T-2)、赭曲霉毒素A(ochratoxin A,OTA)、伏马毒素(fumonisin,FUM)、环匹阿尼酸(cyclopiazonic acid,CPA)等[5]。不同霉菌毒素的来源、生理反应和临床症状都不同:其中AFB1源于黄曲霉,可损伤动物肝脏、抑制免疫机能,长期接触可引发动物和人类癌变致死[6]。ZEA是镰刀菌产生的雌激素毒素,中毒表现为饲料转化率降低、器官重量变化、动物繁殖力下降及行为异常等[7]。DON和T-2来自镰刀菌属,分别为B型和A型毛鞘菌,可直接损伤动物消化道黏膜,一般表现为食欲减退、出血、呕吐及腹泻等[8-9]。OTA来源于曲霉和青霉,是免疫抑制剂、致畸剂和肾毒性化合物,其靶器官是肾脏,中毒会引起肾皮质变性、髓质出血等病变[10]
近年来,乳酸菌(lactic acid bacteria,LAB)在青贮饲料中作为微生物接种剂被广泛应用,可产生有机酸,比如乙酸和乳酸[11],导致环境pH降低;此外,乳酸菌还可以产生生物活性物质抑制产毒真菌生长,从而抑制真菌毒素的产生,具有解毒效率高、特异性强和无污染等优势[12]。有研究报道,细菌素或者细菌素样物质对扩展青霉(Penicillium expansum)等有害菌的生长具有一定的抑制作用[13]。Ma等[14]首次在玉米青贮饲料中使用乳酸菌探究细菌清除AFB1的功效,发现乳酸菌在2 h内将AFB1浓度从30 μg/kg降低到2 μg/kg,并且在青贮过程中,AFB1浓度持续下降。Zielińska等[15]研究发现,多种乳酸菌之间协同作用可以在48 d内将青贮饲料的AFB1和OTA浓度降低80%。此外,乳酸菌还可改善肠道微生态平衡、促进动物生长发育、提高机体免疫力和用于抗菌防病,具有营养保健等功能[16]。研究表明,动物肠道作为特殊生态微环境,从中筛选分离出的乳酸菌多具有益菌性和耐受性[17]。基于此,本试验旨在从青海牦牛和藏羊瘤胃中分离筛选出可高效降解常见霉菌毒素和具有益生特性的乳酸菌,为后续乳酸菌作为饲料添加剂提供一定的参考依据。

1 材料与方法

1.1 试验材料

本试验以从牦牛和藏羊瘤胃中分离得到的169株乳酸菌为研究对象,本研究的前期工作由青海省畜牧兽医科学院动物营养实验室完成。
试验主要试剂:AFB1、DON、ZEA和GLUS标准品购自Sigma公司,毒素检测试剂盒购自江苏酶标生物科技有限公司,革兰氏染色试剂盒购自北京索莱宝科技有限公司,细菌基因组DNA提取试剂盒购自OMEGA公司,引物由生工生物工程(上海)股份有限公司合成,DNA 2000 marker购自西安沃尔森生物技术有限公司,Pfu DNA酶购自Promega公司。
培养基:MRS培养基和LB培养基。

1.2 试验方法

1.2.1 乳酸菌的初筛

将分离出的169株菌按1%接种于MRS液体培养基中,37 ℃培养24 h后,取900 μL发酵液和100 μL毒素标准品溶液,使AFB1、DON、ZEA和GLUS的终浓度为分别为1 mg/L、1 mg/L、1 mg/L和2.5 mg/L。避光孵育72 h后使用酶联免疫吸附试验(ELISA)试剂盒分别检测样品中毒素的浓度,初筛出毒素降解率高的菌株。

1.2.2 乳酸菌的复筛

将初筛获得的菌株按1%接种于MRS液体培养基中,37 ℃培养24 h后与4种毒素分别培养,分别在0 h、2 h、4 h、8 h、12 h、1 d、3 d、7 d和14 d时间点测定毒素浓度,并以培养时间为横坐标,降解率为纵坐标,绘制脱毒曲线,分析在不同时间段毒素降解率变化情况,筛选出短时间内降解率高的菌株。

1.2.3 乳酸菌的鉴定

1.2.3.1 形态学鉴定

将筛选后的菌株分别接种于MRS固体和液体培养基中,37 ℃培养24 h后观察单菌落尺寸、形状、表面特征、边缘形状、色泽及透明程度等。用接种环挑取适量新鲜单菌落,小心涂布,根据革兰氏染色试剂盒说明书进行初染、媒染、脱色和复染,在光学显微镜下观察菌株的颜色、形态和大小。

1.2.3.2 生理生化鉴定

用细菌生理生化鉴定试剂盒进行部分生理生化试验,包括七叶苷、甘露醇、蔗糖、麦芽糖、纤维二糖、水杨苷、山梨醇和棉子糖测定;过氧化氢酶试验、运动性试验、硫化氢试验、葡萄糖产气试验、明胶液化试验和吲哚试验参照《食品安全国家标准食品微生物学检验乳酸菌检验》(GB 4789.35—2016)对菌株进行初步鉴定。

1.2.3.3 分子生物学鉴定

用OMEGA细菌基因组DNA提取试剂盒提取乳酸菌基因组DNA。16S rRNA基因扩增引物由生工生物工程(上海)股份有限公司合成,序列如下:16S F,5'-AGAGTTTGATCCTGGCTCAG-3';16S R,5'-GGTTACCTTGTTACGACTT-3'。将上述制备的基因组DNA作为PCR扩增的模板,采用50 μL反应体系进行PCR扩增。循环参数如下:95 ℃预变性1 min,95 ℃变性30 s,55 ℃退火30 s,72 ℃延伸2 min,72 ℃末端延伸5 min,30个循环,扩增得到的产物送测序公司测序。将测序结果通过拼接处理后,在BLAST软件中进行比对,选取相似度超过97.00%的典型菌株序列,用MEGA软件构建系统发育树。

1.2.4 乳酸菌益生特性的测定

1.2.4.1 生长能力和产酸能力测定

将待测菌液按照3%接种量分别接种于MRS液体培养基中,37 ℃恒温培养,每组3个重复,分别在0、2、4、6、8、12、16、24、36和48 h,以空白培养基作为对照,测定600 nm吸光度(OD600)和pH,然后以菌液培养时间为横坐标,OD600和pH为纵坐标绘制生长曲线和产酸曲线。

1.2.4.2 酸和胆盐耐受性

将待测菌液按1%接种量接种到pH分别为2.5、3.0、3.5、4.0和6.0的MRS液体培养基中,37 ℃恒温培养24 h后,分别测定各组菌液的OD600;将待测菌液按1%接种量接种到牛胆盐浓度分别为0、0.1%、0.2%和0.3%的MRS液体培养基中,37 ℃恒温培养24 h后,分别测定各组菌液的OD600,以同pH和胆盐浓度的空白培养基作为对照。

1.2.4.3 耐渗透压性

向MRS液体培养基分别加入2.0%、4.0%、6.0%和8.0%的氯化钠(NaCl),将待测菌液按1%接种量接种到不同NaCl浓度的MRS液体培养基中,37 ℃恒温培养24 h后,分别测定各组菌液的OD600,每组3个重复,以同NaCl浓度的空白培养基作为对照。

1.2.4.4 自凝集率和表面疏水率测定

根据李龙[18]和石超[19]的方法,取1 mL培养24 h的细胞培养液,4 ℃下、8 000 r/min离心5 min,弃上清,用无菌磷酸盐缓冲液(PBS)洗涤3次,重悬细胞到合适OD600(A0);取4 mL调整好吸光度的细胞悬液37 ℃培养5 h后测OD600(At);同样,取3 mL调整好吸光度的细胞悬液,再加入1 mL二甲苯,室温培养10 min后快速涡旋混合2 min,室温静置15 min使之分层,吸取下层水相,测OD600(At)。乳酸菌细胞的自凝集率和表面疏水率的计算公式为:
自凝集率或表面疏水率(%)=100×(A0-At)/A0

1.2.5 安全性检验

1.2.5.1 乳酸菌溶血试验

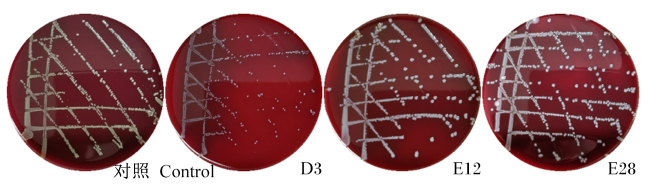
所有筛选菌株在哥伦比亚血平板上划线,孵育24~48 h,观察菌落周围是否存在溶血圈(α-溶血、β-溶血和γ-溶血)[20],并拍照记录。

1.2.5.2 乳酸菌抗生素敏感性试验

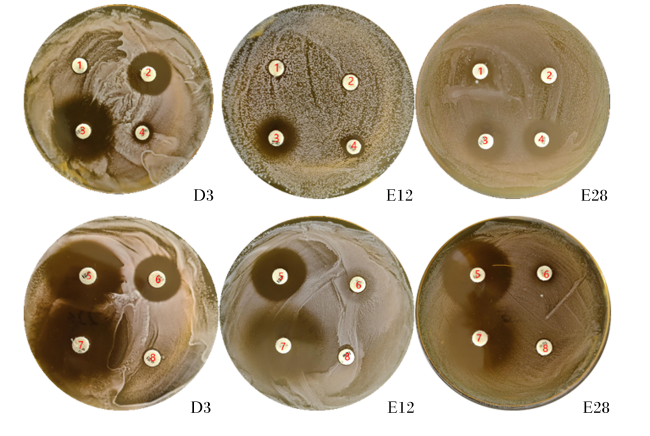
利用药敏纸片法对筛选的菌株进行8种抗生素的药敏试验,包括多黏菌素B、环丙沙星、四环素、庆大霉素、红霉素、氧氟沙星、青霉素和链霉素。

1.2.5.3 乳酸菌抑菌性试验

采用牛津杯法测定菌株发酵上清液对大肠杆菌、沙门氏菌和金黄色葡萄球菌等致病菌的抑菌圈直径。

1.3 数据统计分析

试验数据经Excel 2010整理后,采用SPSS 20.0统计软件中的ANOVA过程进行单因素方差分析(one-way ANOVA),并进行LSD多重比较,显著水平为P<0.05,试验结果数据用“平均值±标准差”表示。

2 结果与分析

2.1 乳酸菌初筛结果

表1可知,通过对从169株菌中筛选出的15株具有较好降解能力的乳酸菌进行AFB1、DON、ZEA和GLUS降解效果的试验发现,菌株B1、B8、C24、C2、C16、C1和E28对AFB1的降解率均在60%以上,且菌株C2对AFB1的降解率最高为70.95%,显著高于除C16和C1外的其他菌株(P<0.05);菌株B1对DON的降解率最高为60.11%,显著高于其他菌株(P<0.05);菌株A7、D3、C1和A17对ZEA的降解率显著高于其他菌株(P<0.05),其中D3对ZEA的降解率最高为64.00%;菌株C16和C1对GLUS的降解率显著高于其他菌株(P<0.05),其中C1对GLUS的降解率最高为59.19%。
表1 乳酸菌对4种毒素的降解率

Table 1 Degradation rates of 4 kinds of toxins by LBA%

菌株编号
Strain numbers
黄曲霉毒B1
AFB1
呕吐毒素
DON
玉米赤霉烯酮
ZEA
硫代葡萄糖苷
GLUS
B1 64.13±3.12bcd 60.11±1.15a 36.02±2.82cde 42.07±2.11cde
B8 64.43±2.44bcd 25.91±0.79ef 40.14±3.30bc 40.31±3.56def
A7 41.30±4.54f 47.39±0.57b 61.31±4.22a 28.24±4.69gh
C24 62.69±2.56cd 27.69±2.78ef 21.69±3.70gh 50.06±4.25b
D4 41.54±2.52f 29.47±2.25de 26.82±3.04fg 34.71±1.68fg
C2 70.95±1.85a 13.50±3.20j 31.44±5.99def 48.44±3.52bc
C16 69.10±3.04ab 45.01±2.35b 38.54±4.26bcd 58.91±2.54a
D3 45.08±1.08f 48.92±3.93b 64.00±5.57a 51.62±1.78b
A16 41.47±2.81f 38.83±3.25c 45.07±4.67b 22.36±3.51hi
C1 66.24±1.38abc 33.69±3.10cd 60.64±2.31a 59.19±4.14a
D17 45.19±5.52f 23.10±0.82f 28.67±3.36efg 45.65±1.31bcd
E12 59.01±2.80d 36.54±1.82c 16.28±0.75h 36.61±2.28ef
E11 59.09±1.89d 35.72±3.14c 33.59±4.85cdef 51.40±3.59b
E28 60.47±1.27d 48.34±2.27b 32.31±1.80def 18.46±4.29i
A17 53.23±0.72e 44.27±3.68b 56.90±1.38a 47.13±2.14bc

同列数据肩标相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。

In the same column, values with the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05).

2.2 乳酸菌脱毒曲线

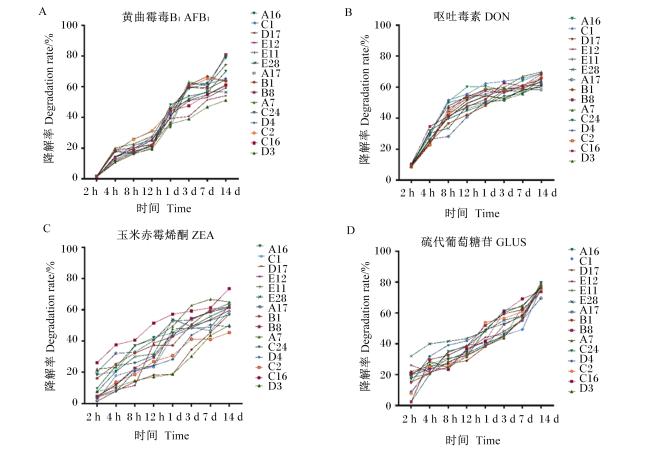
图1所示,乳酸菌对4种毒素的降解率都随着时间的增加呈升高趋势,15株乳酸菌对AFB1的降解率变化趋势几乎一致,均在12 h前缓慢上升,12 h后迅速上升,7 d后逐渐趋于稳定阶段,其中菌株A16和C2在12 h时降解率较高,分别为34.51%和33.53%;菌株C24、C2、A17和A7在24 h时降解率较高,分别为48.19%、44.09%、45.68%和50.18%;菌株B8、C1和A16在14 d时降解率达到最高,分别为81.08%、80.12%和78.96%。15株乳酸菌对DON的降解率变化趋势为12 h前缓慢上升,12 h后逐渐趋于稳定阶段,其中菌株A7、A16、C1和C2在12 h时降解率较高,分别为53.71%、60.18%、55.43%和53.27%;菌株C1、A16和C16在24 h时降解率较高,分别为62.34%、60.59%和58.75%;菌株A7、C1和B8在14 d时降解率较高,分别为69.82%、68.89%和68.38%。15株乳酸菌对ZEA的降解率变化趋势基本一致;其中,菌株C16对ZEA的降解率高于其他菌株,且在12 h、24 h和14 d时的降解率分别为51.45%、57.15%和73.56%。除菌株C24、B8、C1、C2和D4外,其余菌株对GLUS的降解率变化趋势基本一致;菌株C24、B8、C1、C2和D4在8 h前对GLUS的降解率迅速上升,在8~12 h趋于平缓,其余菌株在2~12 h缓慢上升,在12~24 h所有菌株降解率迅速上升,菌株E28和D4在12 h时降解率最高,分别为43.41%和41.94%;菌株C2和B8在24 h时降解率最高,分别为53.84%和51.87%。综上可知,菌株C2、A16、C16和E28分别在12 h时对AFB1、DON、ZEA和GLUS的降解率最高,分别为33.53%、60.18%、51.45%和43.41%。
图1 乳酸菌脱毒曲线

A16、C1、D17、E12、E11、E28、A17、B1、B8、A7、C24、D4、C2、C16和D3为菌株编号。下图同。

Fig.1 Detoxication curves of LAB

A16, C1, D17, E12, E11, E28, A17, B1, B8, A7, C24, D4, C2, C16 and D3 were strain numbers. The same as below.

2.3 乳酸菌鉴定结果

2.3.1 形态学鉴定结果

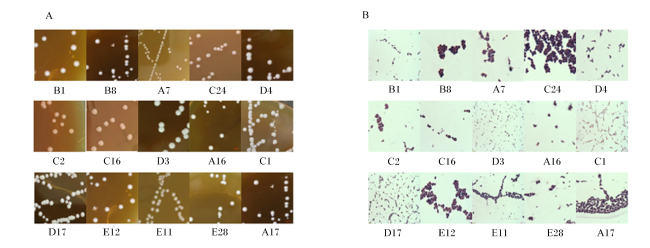
图2表2所示,筛选获得的15株菌株疑似为乳酸菌菌株,经革兰氏染色试验反应呈阳性,确定为革兰氏阳性菌,过氧化氢酶试验反应均为阴性。革兰氏阳性菌在显微镜下颜色呈紫色,菌株形状表现为球状及杆状。菌株B1、A7、E12、E11和E28为乳白色,C24为淡黄色,其他菌均为白色;A7为圆形液滴状,C16为圆形、中央礼帽凸起,其他菌株均为圆形微隆;该15株乳酸菌菌落表面光滑、湿润,边缘整齐,除B1和A7外均不透明。
图2 部分菌株菌落形态及革兰氏染色

A为不同菌株菌落形态,B为对应菌株革兰氏染色。

Fig.2 Colony morphology and Gram staining of some strains (63×)

A showed colony morphology of different strains, and B showed Gram staining of corresponding strains.

表2 乳酸菌形态特征

Table 2 Morphological characteristics of LAB

菌株编号
Strain
numbers
平板观察 Plate observation 显微镜观察
Microscopic
examination
液体培养
Fluid culture
颜色
Colour
形状
Shape
表面
Surface
边缘
Edge
透明度
Transparency
清浊
Pure and
turbid
浮膜
Pellicle
B1 乳白色 圆形微隆 光滑、湿润 整齐 透明 球状 + -
B8 白色 圆形微隆 光滑、湿润 整齐 不透明 杆状 + -
A7 乳白色 圆形液滴状 光滑、湿润 整齐 透明 球状 + -
C24 淡黄色 圆形微隆 光滑、湿润 整齐 不透明 球状 + -
D4 白色 圆形微隆 光滑、湿润 整齐 不透明 杆状 + -
C2 白色 圆形微隆 光滑、湿润 整齐 不透明 球状 + -
C16 白色 圆形、中央凸起 光滑、湿润 整齐 不透明 杆状 + -
D3 白色 圆形微隆 光滑、湿润 整齐 不透明 杆状 + -
A16 白色 圆形微隆 光滑、湿润 整齐 不透明 球状 + -
C1 白色 圆形微隆 光滑、湿润 整齐 不透明 球菌 + -
D17 白色 圆形微隆 光滑、湿润 整齐 不透明 杆状 + -
E12 乳白色 圆形微隆 光滑、湿润 整齐 不透明 球状 + -
E11 乳白色 圆形微隆 光滑、湿润 整齐 不透明 球状 + -
E28 乳白色 圆形微隆 光滑、湿润 整齐 不透明 杆状 + -
A17 白色 圆形微隆 光滑、湿润 整齐 不透明 球状 + -

“+”:阳性 positive;“-”:阴性 negative。表3同 the same as Table 3

2.3.2 生理生化鉴定结果

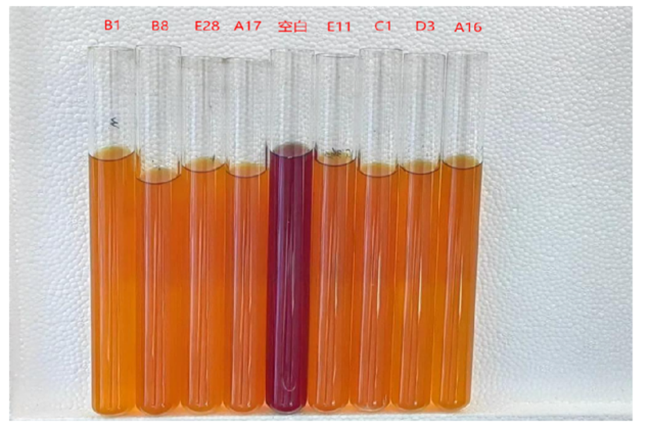
图3表3所示,由试验可以得出15株试验菌均不产气,吲哚试验、过氧化氢酶试验、硫化氢试验呈阴性,不液化明胶。根据《伯杰氏系统细菌学手册》可以推测菌株C1可能为短乳杆菌(Levilactobacillus brevis),A16、A17和E12这3株菌可能为戊糖片球菌(Pediococcus pentosaceus),最终鉴定结果还应结合形态学分析、16S rRNA基因片段序列分析结果来确定。
图3 部分菌株产酸产气情况

Fig.3 Acid and gas production of some strains

表3 乳酸菌生理生化特性

Table 3 Physiological and biochemical characteristics of LAB

菌株编号
Strain
numbers
产酸
Acid
production
产气
Gas
production
七叶苷
Aesculin
甘露醇
Mannitol
蔗糖
Sucrose
麦芽糖
Maltose
纤维
二糖
Cellobiose
水杨苷
Salicin
山梨醇
Sorbitol
棉子糖
Raffinose
吲哚
Indol
明胶
Gelatin
过氧化氢
Hydrogen
peroxide
硫化氢
Hydrogen
sulfide
B1 + - + + + + + + + + - - - -
B8 + - + + + + + + - + - - - -
A7 + - + + + + + + - + - - - -
C24 + - + + + + + + + - - - - -
D4 + - + + + + + + + + - - - -
C2 + - - - + - + - - - - - - -
C16 + - + + + + + + - - - - - -
D3 + - + + + + + + + - - - - -
A16 + - + + + + + + - - - - - -
C1 + - + - + + + - + - - - - -
D17 + - + - + + + - + - - - - -
E12 + - + + + + + + + - - - - -
E11 + - + - + + + - + - - - - -
E28 + - + + + + + + + - - - - -
A17 + - + + + + + + + - - - - -

2.3.3 分子生物学鉴定结果

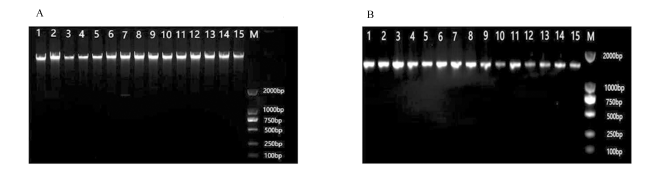
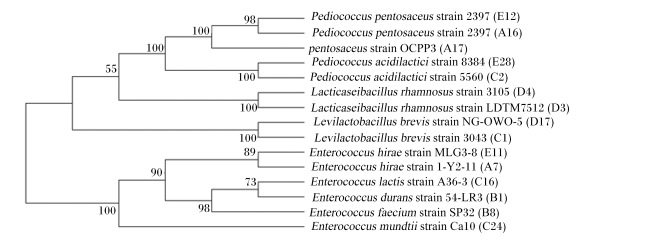
图4所示,扩增片段经电泳检测及凝胶成像分析发现均在1 500 bp处出现单一荧光条带,扩增产物完整性好,无降解、无拖尾以及无非特异性扩增现象,符合测序要求。测序结果经BLAST比对(表4)和系统发育树构建(图5)发现,菌株A16、A17和E12为戊糖片球菌、C2和E28为乳酸片球菌(Pediococcus acidilactici),菌株C1和D17为短乳杆菌,菌株D3和D4为鼠李糖杆菌(Lacticaseibacillus rhamnosus),菌株C24为蒙氏肠球菌(Enterococcus mundtii),菌株A7和E11为海氏肠球菌(Enterococcus hirae),菌株B1为耐久肠球菌(Enterococcus durans),菌株B8为屎肠球菌(Enterococcus faecium),菌株C16为乳肠球菌(Enterococcus lactis)。
图4 基因组DNA扩增前后的琼脂糖凝胶电泳

A为基因组DNA的琼脂糖凝胶电泳图,B为PCR扩增后产物电泳图。M代表DL 2000 marker;1~15分别代表菌株B1、B8、A7、C24、D4、C2、C16、D3、A16、C1、D17、E12、E11、E28和A17。

Fig.4 Agarose gel electrophoresis before and after amplification of genomic DNA

A showed agarose gel electrophoresis of genomic DNA, and B showed electrophoregram of products after PCR amplification. M represented DL 2000 marker; and 1 to 15 represented strains of B1, B8, A7, C24, D4, C2, C16, D3, A16, C1, D17, E12, E11, E28 and A17, respectively.

表4 15株乳酸菌16S rRNA序列同源性比对结果

Table 4 16S rRNA sequence homology comparison results of 15 strains of LAB

菌株编号
Strain numbers
菌种中文名称
Chinese name of strains
菌株拉丁名称
Latin name of strains
同源性
Homology/%
登录号
Access number
B1 耐久肠球菌 Enterococcus durans 99.86 MF077130.1
B8 屎肠球菌 Enterococcus faecium 99.79 JX317638.1
A7 海氏肠球菌 Enterococcus hirae 99.86 MF326336.1
C24 蒙氏肠球菌 Enterococcus mundtii 99.93 MZ869126.1
D4 鼠李糖乳杆菌 Lacticaseibacillus rhamnosus 100.00 MT613492.1
C2 乳酸片球菌 Pediococcus acidilactici 99.93 MT463569.1
C16 乳肠球菌 Enterococcus lactis 100.00 OM570328.1
D3 鼠李糖杆菌 Lacticaseibacillus rhamnosus 99.93 MT318646.1
A16 戊糖片球菌 Pediococcus pentosaceus 100.00 MT604839.1
C1 短乳杆菌 Levilactobacillus brevis 100.00 MT613460.1
D17 短乳杆菌 Levilactobacillus brevis 100.00 OR150693.1
E12 戊糖片球菌 Pediococcus pentosaceus 100.00 MT604839.1
E11 海氏肠球菌 Enterococcus hirae 99.51 MT473347.1
E28 乳酸片球菌 Pediococcus acidilactici 99.78 MT464296.1
A17 戊糖片球菌 Pediococcus pentosaceus 99.86 MK605953.1
图5 乳酸菌系统发育树

Pediococcus pentosaceus:戊糖片球菌;Pediococcus acidilactici:乳酸片球菌;Lacticaseibacillus rhamnosus:鼠李糖杆菌;Levilactobacillus brevis:短乳杆菌;Enterococcus hirae:海氏肠球菌;Enterococcus lactis:乳肠球菌;Enterococcus durans:耐久肠球菌;Enterococcus faecium:乳肠球菌;Enterococcus mundtii:蒙氏肠球菌。

Fig.5 LAB phylogenetic tree

2.4 乳酸菌益生特性

2.4.1 生长曲线和产酸曲线

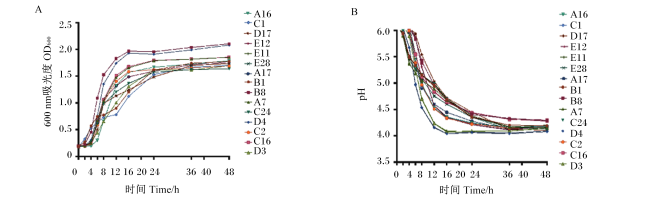
图6-A生长曲线所示,所有菌株均在0~4 h为迟缓生长期,除菌株A16在接种6 h后进入对数生长期外,其余菌株均在接种4 h后进入对数生长期,起酵时间较短,环境适应性较强,生命力较旺盛;除菌株B8和D4在16~48 h为稳定生长期外,其余菌株在24~48 h为稳定生长期,且在48 h时的OD600均在1.5~2.0;其中,菌株B8、D4和D3的OD600最高,具有较强的发酵活性。
图6 乳酸菌生长曲线和产酸曲线

A为乳酸菌生长曲线,B为乳酸菌产酸曲线。

Fig.6 Growth curves and acid production curves of LAB

A showed growth curves of LAB, and B showed acid production curves of LAB.

图6-B产酸曲线所示,15株乳酸菌的pH的变化趋势几乎一致,从稳定状态进入快速下降阶段再逐渐趋于稳定阶段;当菌株进入对数生长期,培养基pH开始下降,菌株生长进入生长稳定期后,pH又开始趋于稳定。除菌株A7、C24、D4和E11在2 h后进入对数生长期外,其余菌株均在4 h后进入对数生长期,且所有菌株在进入对数生长期后pH快速下降,其中菌株D3和D4下降最快,菌株B8和D17下降最慢;所有菌株在24 h后进入稳定生长期,在48 h时的pH均能达到4.5以下,其中,菌株D3和D4的pH较低,说明产酸性能较好

2.4.2 酸和胆盐耐受性

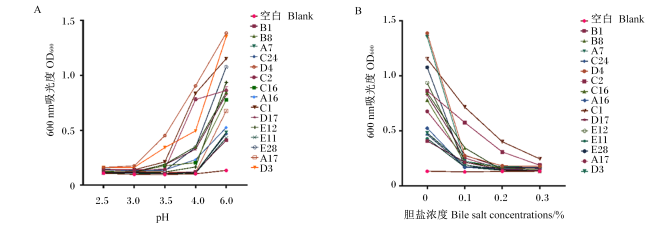
图7-A所示,15株菌株在pH3.5和4.0的酸性环境中,基本能正常生长,其中,菌株C1、C2、D3和D4较其他菌株生长速度较快,菌株E12和E11较其他菌株生长速度较慢;15株菌株对pH 3.0和2.5的酸性环境基本不耐受,生长基本停滞。
图7 乳酸菌在不同pH及胆盐条件下的生长情况

A为乳酸菌在不同pH条件下的生长情况,B为乳酸菌在不同胆盐浓度条件下的生长情况。

Fig.7 Growth of LAB under different pH and bile salts

A showed growth of LAB under different pH conditions, and B showed growth of LAB under different bile salt concentrations.

图7-B所示,15株菌株对0.1%的胆盐环境完全耐受,其中菌株C1和C2耐受性能较好,菌株D3和D4耐受性能较差;在0.2%的胆盐条件下,15株乳酸菌生长受到严重抑制,其中菌株C1和C2耐受性能较好,菌株E28和E11较差;在0.3%的胆盐条件下,除菌株C1和C2外,其他菌株生长基本停滞。

2.4.3 耐渗透压性

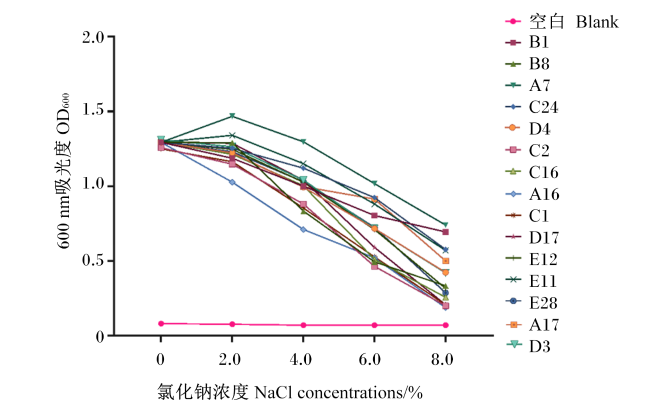
图8所示,15株菌株对2.0%的NaCl浓度完全耐受,在4.0%的NaCl浓度下OD600缓慢下降,在高于6.0%的NaCl浓度下均出现受抑制的情况;在8%的NaCl浓度下,OD600迅速下降,其中菌株C1、C2和D17受到的抑制作用较大,而菌株A7、B7、C24和E11的OD600相对于其他菌株较大,受到的抑制作用较小。
图8 乳酸菌在不同浓度氯化钠下的生长情况

Fig.8 Growth of LAB at different concentrations of NaCl

2.4.4 自凝集率和表面疏水率

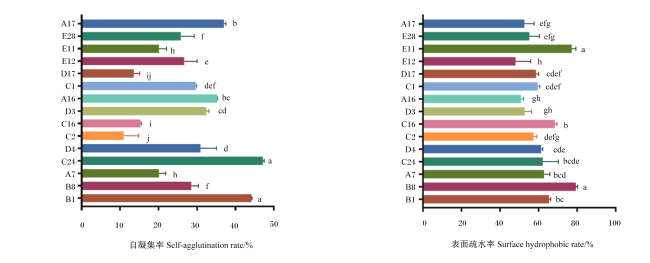
图9-A所示,不同菌株的自凝集率差异较大,其中菌株C24和B1自凝集率较高,达到了47.13%和44.17%,显著高于其余13株乳酸菌(P<0.05),只有菌株D17、C16和C2自凝集率低于20%。
图9 乳酸菌自凝集率和表面疏水率

A为乳酸菌自凝集率,B为乳酸菌表面疏水率。

数据柱标记不同字母表示差异显著(P<0.05)。

Fig.9 Self-agglutination rate and surface hydrophobic rate of LAB

A showed self-agglutination rate of LAB, and B showed surface hydrophobic rate of LAB.

Data columns with different letters indicated significant difference (P<0.05).

图9-B所示,不同菌株的表面疏水率差异较大,其中菌株B8的表面疏水率最高,达到了79.46%;其次是菌株E11,表面疏水率为77.02%,均显著高于其余13株乳酸菌(P<0.05);除此以外,菌株B1和C16的表面疏水率也较高,均在60%以上。

2.5 乳酸菌安全性

2.5.1 溶血性和抗生素敏感性

图10所示,15株乳酸菌在孵育48 h后均未出现溶血症状(γ溶血),菌株B1、D4、C2、E28和A17对红霉素呈中度敏感,其余菌株均高度敏感;菌株A7、C24、D4、D3和E11对氧氟沙星呈高度敏感;15株菌对链霉素和庆大霉素均不敏感;菌株C24、D4、C16、D3、A16、C1、E12、E11和E28对青霉素高度敏感,其余菌株中度敏感;菌株B1、A7、C24、D3、A16、C1和E11对四环素高度敏感,其余菌株不敏感;菌株A7、C2、A16、C1和E28均对多黏菌素B不敏感,其余菌株均中度敏感;菌株A7、C24和E11对环丙沙星高度敏感,菌株B1、D4和D3中度敏感,其余菌株均不敏感。
图10 部分乳酸菌溶血情况

Fig.10 Hemolysis of some LAB

图11 部分乳酸菌耐抗生素情况

1:多黏菌素B polymycin B;2:环丙沙星 ciprofloxacin;3:四环素 tetracycline;4:庆大霉素 gentamicin;5:红霉素 erythromycin;6:氧氟沙星 ofloxacin;7:青霉素 penicillin;8:链霉素 streptomycin。

Fig.11 Antibiotic resistance of some LAB

2.5.2 抑菌性

表6可知,15株乳酸菌对沙门氏菌、大肠杆菌和金黄色葡萄球菌均表现出不同程度的抑制效果。其中,菌株D4、C1和D17对金黄色葡萄球菌的抑菌性能较强;除菌株B8、C24、C16和E11外,其余菌株对大肠杆菌的抑菌性能较强;菌株B1、D4、C2、D3、C1和E28对沙门氏菌的抑菌性能较强;菌株D4、C1、C2、D17和E28对3种指示菌的抑制效果都较好。
表5 乳酸菌安全性测定结果

Table 5 Safety test results of LAB

菌株编号
Strain
numbers
溶血性
Hemolysis
抗生素敏感性 Antibiotics sensitivity
红霉素
Erythromycin
氧氟沙星
Ofloxacin
链霉素
Streptomycin
青霉素
Penicillin
四环素
Tetracycline
庆大霉素
Gentamicin
多黏菌素B
Polymycin
B
环丙沙星
Ciprofloxacin
B1 γ I I R I S R I I
B8 γ S I R I I R I R
A7 γ S S R I S R R S
C24 γ S S R S S R I S
D4 γ I S R S S R I I
C2 γ I R R I I R R R
C16 γ S R R S I R I R
D3 γ S S R S S R I I
A16 γ S R R S S R R R
C1 γ S R R S S R R R
D17 γ S R R I I R I R
E12 γ S R R S I R I R
E11 γ S S R S S R I S
E28 γ I R R S I R R R
D2 γ R R R R R R I R
A17 γ I R R I R R I R

R:耐药 resistant;I:中度敏感 moderately sensitive;S:敏感 sensitive。

表6 乳酸菌抑菌结果

Table 6 Antibacterial results of LAB

菌株编号
Strain numbers
沙门氏菌
Salmonella
大肠杆菌
Escherichia coli
金黄色葡萄球菌
Staphylococcus aureus
B1 ++ ++ +
B8 ++ + ++
A7 + ++ ++
C24 + + ++
D4 ++ ++ +++
C2 ++ ++ ++++
C16 + + ++
D3 ++ ++ +
A16 + ++ ++
C1 ++ ++ +++
D17 + ++ +++
E12 + ++ ++
E11 + + ++
E28 ++ ++ ++++
A17 + ++ ++

“+”表示抑菌圈直径为9.00~12.99 mm,“++”表示抑菌圈直径为13.00~16.99 mm,“+++”表示抑菌圈直径为17.00~19.99 mm,“++++”表示抑菌圈直径≥20.00 mm。

“+” indicated antibacterial zone diameter was 9.00 to 12.99 mm, “++” indicated antibacterial zone diameter was 13.00 to 16.99 mm, “+++” indicated antibacterial zone diameter was 17.00 to 19.99 mm, and “++++” indicated antibacterial zone diameter was ≥20.00 mm.

3 讨论

霉菌毒素作为一种抗营养因子,具有肝毒性、诱变性、肾毒性、免疫抑制和致癌作用,在谷物、农副产品和中药材中污染广泛;生产实践中多种霉菌毒素同时存在,且不同毒素之间作用不同,而协同作用比相加作用和单独一种毒素的危害更大[21]。例如AFB1、OTA和T-2有协同作用,T-2与DON有协同作用,FUM和OTA有相加作用。一项研究发现,饲喂毒素共污染饲粮的鸡有更严重的肝脏病变,包括颗粒状和空泡变性以及肝实质坏死和出血[22]。因此,利用微生物将毒素转化为无毒或低毒的代谢产物是目前去除真菌毒素的重要手段之一[23]。不同的乳酸菌对不同毒素的清除率具有差异,且与菌株自身特性有关,并且在此过程中,受到细菌活性、培养时间、pH及培养温度等因素的影响。
乳酸菌对真菌毒素的生物降解作用主要是通过产生代谢物破坏毒素毒性基团达到对真菌毒素减毒的目的[24],但目前相关研究较少。在本研究中,筛选出来的4株乳酸菌对4种霉菌毒素均有不同程度的降解能力,可能与毒素的特殊结构和乳酸菌的作用机制有关。有研究表明,自然界中,来自生物体的每一种有毒物质几乎都有相应的降解微生物,可能是依靠菌体本身的吸附作用,也有可能是是代谢产生并分泌至胞外的活性物质主导的生物降解作用[25-28]
乳酸菌的产酸性能和生长速率是衡量优良菌种潜能的标准之一,无论是直接投喂还是应用于发酵饲料,迅速的生长速度和强的产酸能力,使乳酸菌能迅速成为发酵环境中的优势菌种,并且能快速产生大量乳酸等有机酸,形成低pH环境,从而阻止病原菌的繁殖[29-30]。因此,筛选在最短时间达到快速生长期的菌株对饲料发酵行业具有重要意义。本试验结果表明,菌株B8、D4和D3在4 h后进入对数生长期,起酵时间短,环境适应性强,具有较强的发酵活性。王蔚淼等[31]研究结果显示,乳酸菌一般在接种后12~24 h进入对数生长阶段,此研究结果与本试验结果不一致,分析原因可能是由于菌株差异所致。
在产酸能力方面,不同种属乳酸菌产酸能力不同,乳酸菌在pH 4.2~4.6正常生长。本研究中,15株乳酸菌发酵48 h后pH均低于4.5,均能在各自产酸环境中正常生长。此外,益生性菌株在被动物摄入后若要发挥其益生性作用,就要耐受动物胃液的强酸和小肠内的高浓度胆盐,益生菌在0.03%~0.30%的牛胆盐浓度内能正常生长是其在动物胃肠道发挥益生作用的衡量标准[32-33]。为了发挥乳酸菌对健康的促进作用,益生性乳酸菌必须具备耐酸特性[34]。乳酸菌耐酸能力结果表明:短乳杆菌C1、乳酸片球菌C2、鼠李糖杆菌D3和鼠李糖杆菌D4能在环境pH为3.5时也能存活生长,说明该乳酸菌具有良好的耐酸性,能够在不利环境中存活生长。胆盐耐受力是乳酸菌的重要特征之一,乳酸菌要到达并定植于肠道,必须对胆盐有一定的耐受性,其耐受力的高低意味着在肠道中存活能力的高低[35]。本试验的乳酸菌在不同胆盐浓度生长环境中表现出良好的抗逆性,其中短乳杆菌C1和乳酸片球菌C2耐受性能较好。Mercha等[36]对骆驼奶中分离的肠球菌菌株研究发现,大多数菌株在胆盐浓度为0.3%、0.5%和1.0%时都表现出了生存能力。乳酸菌自凝集率能间接反映菌株的黏附特性,自凝集率高的菌株有高黏附率[37]。在本试验中,菌株存在特异性,导致不同菌株的自凝集率和表面疏水率存在差异。
乳酸菌通常被认为是一类安全的微生物,但是菌株选择不当对畜禽的健康还是会存在潜在威胁。动物摄入有耐药性的益生菌后可能会产生对抗生素的耐药性,动物机体内的其他菌株也可能会受到所饲喂益生菌耐药性的有害诱导,导致治疗难度加大,这也是筛选优良益生菌要进行安全性检测的原因之一[38-39]。本试验中,15株乳酸菌均无溶血症状,且菌株B1、C24、D4、D3和E11有广泛的药物敏感性,并且菌株B1、D4、C1、C2、D17和E28对沙门氏菌、大肠杆菌和金黄色葡萄球菌的抑制效果都较好,不同菌株表现的不同抑制效果说明各菌株对不同指示菌种的抑制能力有所不同,这可能与乳酸菌种属和不同菌株携带的天然耐药基因不同有关,更有可能与菌株来源密切相关。这些结果与Pieniz等[40]和Reuben等[41]对菌株耐久肠球菌的研究结果一致。

4 结论

本试验通过综合比较不同菌株降解AFB1、DON、ZEA和GLUS的能力及生物学特性,共筛选获得4株优良乳酸菌:乳酸片球菌C2、戊糖片球菌A16、乳肠球菌C16和乳酸片球菌E28,其具有良好的生长能力、产酸能力、益生性及安全性。
[1]
SCARPINO V, REYNERI A, BLANDINO M. Development and comparison of two multiresidue methods for the determination of 17 Aspergillus and fusarium mycotoxins in cereals using HPLC-ESI-TQ-MS/MS[J]. Frontiers in Microbiology, 2019, 10:361.

DOI

[2]
LIAO C D, WONG J W, ZHANG K, et al. Multi-mycotoxin analysis of finished grain and nut products using high-performance liquid chromatography-triple-quadrupole mass spectrometry[J]. Journal of Agricultural and Food Chemistry, 2013, 61(20):4771-4782.

DOI

[3]
杨玉婷, 赵世姣, 程永超. 霉菌毒素危害及其防除[J]. 青海畜牧兽医杂志, 2017, 47(6):60-64.

YANG Y T, ZHAO S J, CHENG Y C. Mycotoxin hazards and their control[J]. Chinese Qighai Journal of Animal and Veterinary Sciences, 2017, 47(6):60-64. (in Chinese)

[4]
MA R, ZHANG L, LIU M, et al. Individual and combined occurrence of mycotoxins in feed ingredients and complete feeds in China[J]. Toxins, 2018, 10(3):113.

DOI

[5]
赵雅茹, 玉柱, 高文俊, 等. 乳酸菌降解饲料中霉菌毒素的研究进展[J]. 草学, 2021(2):1-6,30.

ZHAO Y R, YU Z, GAO W J, et al. Application of lactic acid bacteria in degrading mycotoxin in feed[J]. Prataculture & Animal Husbandry, 2021(2):1-6,30. (in Chinese)

[6]
HUSSEIN H S, BRASEL J M. Toxicity,metabolism,and impact of mycotoxins on humans and animals[J]. Toxicology, 2001, 167(2):101-134.

DOI

[7]
MOSTROM M S, RAISBECK M F. Chapter 94-trichothecenes[M]//GUPTA R C.Veterinary toxicology:basic and clinical principles.2nd ed. New York: Academic Press, 2012:1239-1265.

[8]
WAN Q F, WU G Y, HE Q H, et al. The toxicity of acute exposure to T-2 toxin evaluated by the metabonomics technique[J]. Molecular bioSystems, 2015, 11(3):882-891.

DOI PMID

[9]
HUGHES D M, GAHL M J, GRAHAM C H, et al. Overt signs of toxicity to dogs and cats of dietary deoxynivalenol[J]. Journal of Animal Science, 1999, 77(3):693-700.

PMID

[10]
KURUC J A, SCHWARZ P, WOLF-HALL C. Ochratoxin a in stored U.S. barley and wheat[J]. Journal of Food Protection, 2015, 78(3):597-601.

DOI PMID

[11]
WANG J, SU Y J, GU L P, et al. The inhibition of cell free supernatants of several lactic acid bacteria on the selected psychrophilic spoilage bacteria in liquid whole egg[J]. Food Control, 2021, 123:107753.

[12]
计成. 饲料中霉菌毒素生物降解的研究进展[J]. 中国农业科学, 2012, 45(1):153-158.

DOI

JI C. Advances in research on biodegradation of mycotoxins in feed[J]. Scientia Agricultura Sinica, 2012, 45(1):153-158. (in Chinese)

DOI

[13]
YANG E, FAN L H, JIANG Y M, et al. Antimicrobial activity of bacteriocin-producing lactic acid bacteria isolated from cheeses and yogurts[J]. AMB Express, 2012, 2(1):48.

DOI PMID

[14]
MA Z X, AMARO F X, ROMERO J J, et al. The capacity of silage inoculant bacteria to bind aflatoxin B1 in vitro and in artificially contaminated corn silage[J]. Journal of Dairy Science, 2017, 100(9):7198-7210.

DOI

[15]
ZIELIÑSKA K J, FABISZEWSKA A U. Improvement of the quality of maize grain silage by a synergistic action of selected lactobacilli strains[J]. World Journal of Microbiology and Biotechnology, 2017, 34(1):9.

DOI

[16]
谭子超, 刘浩民, 薛梅, 等. 小麦-豆粕型饲粮添加复合酶制剂对肉鸡肠道微生物菌群和酸度的影响[J]. 中国饲料, 2018(9):19-24.

TAN Z C, LIU H M, XUE M, et al. Effect of different levels of compound enzyme preparation added in wheat-soybean meal diet on broiler's gastrointestinal microbial flora and chyme acidity[J]. China Feed, 2018(9):19-24. (in Chinese)

[17]
樊雪莹, 陈玉连, 李平, 等. 不同来源乳酸菌对青贮饲料品质影响的研究进展[J]. 饲料研究, 2022, 45(4):114-118.

FAN X Y, CHEN Y L, LI P, et al. Progress on the effect of Lactic acid bacteria from different sources on silage quality[J]. Feed Research, 2022, 45(4):114-118. (in Chinese)

[18]
李龙. 藏鸡源乳酸菌和红景天对肉鸡生产性能、腹水敏感性和肠道功能的影响[D].博士学位论文. 杨凌: 西北农林科技大学, 2015.

LI L. Effect of Tibet chicken probiotics and Rhodiola on growth performance ascites susceptibility and intestinal function in broilers[D].Ph.D. Thesis. Yangling: Northwest A&F University. 2015. (in Chinese)

[19]
石超. 传统发酵牦牛酸奶中降胆固醇乳酸菌的筛选及其对高脂模型大鼠的益生作用[D].硕士学位论文. 兰州: 兰州大学, 2014.

SHI C. Screening for cholesterol-lowing lactic acid bacteria in traditionally fermented yak milk and its probiotic effect in rats fed a high-cholesterol diet[D].Master’s Thesis. Lanzhou: Lanzhou University, 2014. (in Chinese)

[20]
ARGYRI A A, ZOUMPOPOULOU G, KARATZAS K A G, et al. Selection of potential probiotic lactic acid bacteria from fermented olives by in vitro tests[J]. Food Microbiology, 2013, 33(2):282-291.

DOI

[21]
SAKHARE P S, HARNE S D, KALOREY D R, et al. Effect of toxiroak polyherbal feed supplement during induced aflatoxicosis,ochratoxicosis and combined mycotoxicoses in broilers[J]. Veterinarski Arhiv, 2007, 77(2):129-146.

[22]
BECKER-ALGERI T A, CASTAGNARO D, DE BORTOLI K, et al. Mycotoxins in bovine milk and dairy products: a review[J]. Journal of Food Science, 2016, 81(3):R544-R552.

[23]
李顺意, 于秋香, 向腊, 等. 真菌毒素玉米赤霉烯酮生物降解的研究进展[J]. 生物工程学报, 2018, 34(4):489-500.

LI S Y, YU Q X, XIANG L, et al. Progress in bio-degradation of mycotoxin zearalenone[J]. Chinese Journal of Biotechnology, 2018, 34(4):489-500. (in Chinese)

[24]
黄若琪, 李瑜玲, 杨恩. 乳酸菌对真菌毒素的脱毒作用研究进展[J]. 微生物学通报, 2023, 50(9):4260-4274.

HUANG R Q, LI Y L, YANG E. Detoxification of lactic acid bacteria to mycotoxin:a review[J]. Microbiology, 2023, 50(9):4260-4274. (in Chinese)

[25]
TAKAHASHI-ANDO N, OHSATO S, SHIBATA T, et al. Metabolism of zearalenone by genetically modified organisms expressing the detoxification gene from Clonostachys rosea[J]. Applied and Environmental Microbiology, 2004, 70(6):3239-3245.

DOI

[26]
LIU D L, YAO D S, LIANG Y Q, et al. Production,purification,and characterization of an intracellular aflatoxin-detoxifizyme from Armillariella tabescens (E-20)[J]. Food and Chemical Toxicology, 2001, 39(5):461-466.

DOI

[27]
孙玲玉, 李超, 郝海玉, 等. 泰山枯草芽孢杆菌的分离鉴定及其对黄曲霉毒素B1的降解研究[J]. 中国畜牧兽医, 2014, 41(8):246-250.

SUN L Y, LI C, HAO H Y, et al. Study on isolation and identification of mountain Tai Bacillus subtilis and its degradation of aflatoxin B1[J]. China Animal Husbandry & Veterinary Medicine, 2014, 41(8):246-250. (in Chinese)

[28]
李超波, 李文明, 杨文华, 等. 黄曲霉毒素B1降解菌的分离鉴定及其降解特性[J]. 微生物学报, 2012, 52(9):1129-1136.

LI C B, LI W M, YANG W H, et al. Isolation and characterisation of an aflatoxin B1-degrading bacterium[J]. Acta Microbiologica Sinica, 2012, 52(9):1129-1136. (in Chinese)

[29]
MISSOTTEN J A M, MICHIELS J, GORIS J, et al. Screening of two probiotic products for use in fermented liquid feed[J]. Livestock Science, 2007, 108(1/2/3):232-235.

DOI

[30]
许女, 王佳丽, 陈旭峰, 等. 优良乳酸菌的筛选、鉴定及在酸奶中的应用[J]. 中国食品学报, 2019, 19(2):98-107.

XU N, WANG J L, CHEN X F, et al. Screening,identification of lactic acid bacteria and application in fermented yogurt[J]. Journal of Chinese Institute of Food Science and Technology, 2019, 19(2):98-107. (in Chinese)

[31]
王蔚淼, 潘玲, 朱玮, 等. 10株乳酸菌产酸性能的研究[J]. 中国生态农业学报, 2007, 15(3):207-208.

WANG W M, PAN L, ZHU W, et al. Acid-producing characteristics of ten lactic acid bacteria[J]. Chinese Journal of Eco-Agriculture, 2007, 15(3):207-208. (in Chinese)

[32]
梁红雁, 蒲万霞, 吴润, 等. 一种新型酵母菌制剂的耐受性分析[J]. 广东农业科学, 2015, 42(3):110-114.

LIANG H Y, PU W X, WU R, et al. Tolerance analysis of a new yeast preparation[J]. Guangdong Agricultural Sciences, 2015, 42(3):110-114. (in Chinese)

[33]
SÁNCHEZ B, DELGADO S, BLANCO-MÍGUEZ A, et al. Probiotics, gut microbiota,and their influence on host health and disease[J]. Molecular Nutrition & Food Research, 2017, 61(1):1600240.

[34]
胡爱华, 敖晓琳, 陈岑, 等. 乳酸菌耐酸耐胆盐机制的研究进展[J]. 食品工业科技, 2015, 36(8):380-383,389.

HU A H, AO X L, CHEN C, et al. Research progress on mechanism of lactic acid bacteria acid and bile salt resistance[J]. Science and Technology of Food Industry, 2015, 36(8):380-383,389. (in Chinese)

[35]
尹杨燕, 潘艳, 李小宁, 等. 1株植物乳杆菌的生物学特性及体外抑菌活性研究[J]. 中国畜牧兽医, 2023, 50(2):666-673.

DOI

YIN Y Y, PAN Y, LI X N, et al. Study on biological characteristics and antibacterial activity in vitro of a Lactobacillus plantarum strain[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(2):666-673. (in Chinese)

[36]
MERCHA I, LAKRAM N, KABBOUR M R, et al. Probiotic and technological features of Enterococcus and Weissella isolates from camel milk characterised by an Argane feeding regimen[J]. Archives of Microbiology, 2020, 202(8):2207-2219.

DOI

[37]
CHEN T H, WANG L L, LI Q X, et al. Functional probiotics of lactic acid bacteria from Hu sheep milk[J]. BMC Microbiology, 2020, 20(1):228.

DOI

[38]
AMMOR M S, MAYO B. Selection criteria for lactic acid bacteria to be used as functional starter cultures in dry sausage production:an update[J]. Meat Science, 2007, 76(1):138-146.

DOI

[39]
JOBBY R, FLORA Y, BORA A, et al. Exploring probiotic activity of Lactobacillus sp. isolated from indigenous breeds of cattle milk and fecal samples in Bhatan village,MH.,IN[J]. Current Microbiology, 2020, 77(7):1184-1190.

DOI

[40]
PIENIZ S, ANDREAZZA R, ANGHINONI T, et al. Probiotic potential,antimicrobial and antioxidant activities of Enterococcus durans strain LAB18s[J]. Food Control, 2014, 37:251-256.

DOI

[41]
REUBEN R C, ROY P C, SARKAR S L, et al. Characterization and evaluation of lactic acid bacteria from indigenous raw milk for potential probiotic properties[J]. Journal of Dairy Science, 2020, 103(2):1223-1237.

DOI PMID

文章导航

/