综述

围产期奶牛酮病的发病机制和预警标志物研究进展

  • 程林 ,
  • 马云 ,
  • 马燕芬 ,
  • 余永涛 , *
展开
  • 宁夏大学动物科技学院,银川 750021
*余永涛,教授,硕士生导师,E-mail:

程 林(1996—),女,重庆人,硕士,从事奶牛酮病早期预警研究。E-mail:

Copy editor: 武海龙

收稿日期: 2023-12-22

  网络出版日期: 2024-06-07

基金资助

宁夏回族自治区重点研发计划项目重大项目“高产奶牛高产期健康控制技术研发与应用”(2021BEF01001)

宁夏回族自治区重点研发计划项目重大项目“高产奶牛高产期健康控制技术研发与应用”(2021BEF02028)

Research Progress on Pathogenesis and Early Warning Markers of Ketosis in Dairy Cows during Perinatal Period

  • CHENG Lin ,
  • MA Yun ,
  • MA Yanfen ,
  • YU Yongtao , *
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
*professor, E-mail:

Received date: 2023-12-22

  Online published: 2024-06-07

摘要

奶牛酮病是围产期最常见的营养代谢病之一,患酮病的奶牛产奶量和繁殖性能下降,且易继发各种疾病,增加了治疗成本,给养殖业造成了巨大的经济损失,严重阻碍了奶牛业的健康发展。早期诊断和预测酮病的发生是防控的关键环节。目前,基于酮病相关的血液、牛乳、尿液、瘤胃液、生理活动、生产管理数据等构建了奶牛酮病预测模型。本文围绕奶牛酮病的发病机制及早期诊断和预测研究进行了综述,以期为健全奶牛酮病风险预警体系提供理论依据。

本文引用格式

程林 , 马云 , 马燕芬 , 余永涛 . 围产期奶牛酮病的发病机制和预警标志物研究进展[J]. 动物营养学报, 2024 , 36(6) : 3462 -3473 . DOI: 10.12418/CJAN2024.296

Abstract

Cow ketosis is one of the most common nutritional metabolic diseases in the perinatal period. Cows with ketosis have reduced milk yield and reproductive performance, they are prone to secondary diseases, which increase the treatment cost, and cause substantial economic losses to the breeding industry and seriously hinder the healthy development of the dairy industry. Early diagnosis and prediction of ketosis is the key to preventing and controlling ketosis. Currently, the prediction model of ketosis has been constructed based on the data of blood, milk, urine, rumen fluid, physiological activity and production management related to ketosis. This paper reviews the pathogenesis, early diagnosis and prediction of ketosis in dairy cows to provide a theoretical basis for improving the early warning system of ketosis risk in dairy cows.

奶牛在围产期经历妊娠、分娩、泌乳的特殊生理阶段[1],摄入的碳水化合物和储备的葡萄糖(glucose,GLU)无法满足胎儿快速生长和泌乳的需要,易发生酮病等营养代谢病。患酮病的奶牛血液、尿液和乳中酮体浓度显著升高,血液GLU浓度、消化机能、体重、产奶量和繁殖效率降低[2],继发真胃变位、低钙血症、胎衣不下、子宫炎等产后疾病,过早淘汰风险增加。根据血液中β-羟基丁酸(β-hydroxybutyric acid,BHBA)浓度,可将酮病分为临床型和亚临床型;在我国,患亚临床酮病(subclinical ketosis,SCK)的奶牛血液BHBA浓度在1.2~1.4 mmol/L,患临床酮病(clinical ketosis,CK)的奶牛血液BHBA浓度大于1.4 mmol/L[3]。在集约化养殖模式中,奶牛酮病具有较高的发病率[4],每年给奶牛养殖业带来严重的经济损失。目前,人们主要通过围产期饲养管理、奶牛体况控制、酮病早期监测等措施来预防酮病的发生。但由于饲养管理水平、养殖模式的差异等诸多因素,奶牛酮病在部分国家、部分地区的牧场中仍未得到有效控制。
酮病主要发生于泌乳早期阶段,随着泌乳量的急剧增加,奶牛体内GLU迅速耗竭,储存的脂肪过度动员而产生大量的丙酮、BHBA和乙酰乙酸等酮体[5]。GLU和脂质代谢紊乱、系统性炎症和氧化应激损伤、瘤胃菌群和代谢的变化等均对奶牛的生理机能和代谢产生一系列影响。相比于健康奶牛,患酮病奶牛在产奶性能、体况、消化机能,以及血液、尿液、乳、瘤胃液中的代谢物和瘤胃菌群均发生一定程度的变化。越来越多的证据表明,这些变化与酮病的发生紧密相关。有研究表明,奶牛在妊娠后期就已经发生了能量负平衡(negative energy balance,NEB)[6],产后患酮病的奶牛在围产前期机体的部分指标就已经发生了变化,并与产后酮病的发生存在联系,围产前期的某些指标可能用于产后酮病的早期预警[7-9]。酮病的控制关键在于早期的群体监测和预防,目前,人们已经根据奶牛围产期的体况评分(body condition scoring,BCS)、反刍等生产数据,以及血液、尿液、乳、瘤胃中的酮病相关生物标志物构建了酮病的预测模型,并应用回归分析及受试者工作特征曲线(receiver operating characteristic curve,ROC曲线)等方法来尝试对奶牛围产期酮病进行早期预警,具有广阔的应用前景。但大多研究基于较小的奶牛群体规模,其预测准确性仍未在大规模群体中得到验证。本文根据近年来奶牛酮病的发病机理、早期诊断和预测研究的相关报道做如下综述,以期为奶牛酮病的早期预警研究和防控提供参考。

1 奶牛酮病的发病机制

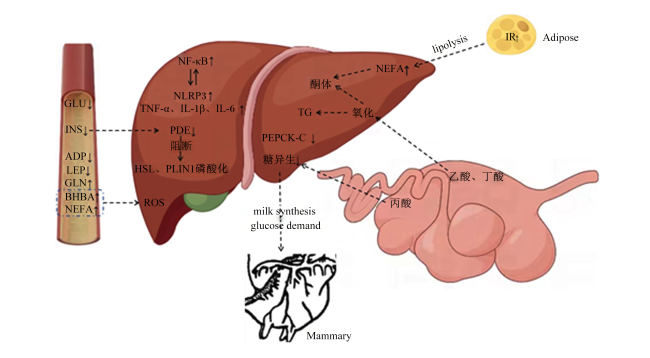
奶牛的能量来源主要是瘤胃微生物发酵饲粮碳水化合物产生的乙酸、丙酸和丁酸等挥发性脂肪酸(volatile fatty acid,VFA)[10-11]。丙酸作为最主要的生糖前体,在肝脏内经糖异生途径合成机体所需50%~60%的GLU,而泌乳奶牛体内60%的GLU用于合成乳糖[12]。乙酸和丁酸在肝脏中一部分在草酰乙酸的协助下经三羧酸循环代谢产生能量,另一部分则生成脂肪酸(fatty acid,FA)和酮体。在奶牛妊娠后期和泌乳早期,胎儿的快速生长和泌乳量的急剧增加使得机体对GLU的需求大幅增加。在该阶段饲粮供给或碳水化合物摄入不足,会使奶牛体内储备的GLU迅速耗竭而出现NEB和酮病。糖、脂代谢紊乱与酮病的关系见图1
图1 糖、脂代谢紊乱与酮病的关系

GLU:葡萄糖 glucose;INS:胰岛素 insulin;ADP:脂联素 adiponectin;LEP:瘦素 leptin;GLN:胰高血糖素 glucagon;BHBA:β-羟基丁酸 β-hydroxybutyric acid;NEFA:非酯化脂肪酸 non-estesterified fatty acid;NF-κB:核因子-κB nuclear factor kappa-B;NLRP3:NOD样受体热蛋白结构域相关蛋白3 NOD-like receptor thermal protein domain associated protein 3;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-1β:白细胞介素-1β interleukin-1β;IL-6:白细胞介素-6 interleukin-6;PDE:磷酸二酯酶 phosphodiesterases;HSL:激素敏感脂肪酶 hormone-sensitive triglyceride lipase;PLIN1:围脂滴蛋白1 perilipin 1;ROS:活性氧 reactive oxygen species;PEPCK-C:磷酸烯醇式丙酮酸羧激酶 phosphoenolpyruvate carboxykinase;TG:甘油三酯 triglycerides;IR:胰岛素抵抗 insulin resistance;Adipose:脂肪细胞;lipolysis:脂解;Mammary:乳房;milk synthesis glucose demand:泌乳合成葡萄糖需求。

Fig.1 Relationship between disorders of glucose and lipid metabolism and ketosis

1.1 糖代谢紊乱

研究表明,在能量代谢负平衡状态下,奶牛糖异生、糖酵解和三羧酸循环受到了显著影响,这与酮病的发生和发展紧密相关。有研究表明,酮病奶牛肝脏中与糖酵解、三羧酸循环和糖异生相关的烯醇化酶1、丙酮酸脱氢酶E1亚基β、磷酸甘油酸激酶1、磷酸丙糖异构酶1、6-磷酸葡萄糖异构酶和磷酸甘油酸变位酶1等基因和编码长链脂肪酰基辅酶A结合蛋白的表达下调,这些基因可能在丙酮酸代谢、糖酵解/糖异生和丁酸代谢中发挥作用[13]。此外,胰岛素(insulin,INS)、胰岛素样生长因子-1(insulin-like growth factor-1,IGF-1)、胰高血糖素(glucagon,GLN)、生长激素(growth hormone,GH)等也可通过调节上述肝脏糖异生关键酶的活性来影响糖异生作用。研究表明,酮病奶牛血浆INS和IGF-1浓度显著下降,GLN浓度显著升高,而脂肪细胞产生胰岛素抵抗(insulin resistance,IR)[14]。INS、IGF-1抑制磷酸烯醇式丙酮酸羧激酶(phosphoenolpyruvate carboxykinase,PEPCK-C)的表达,GLN诱导PEPCK-C的表达,酮病奶牛血浆中INS浓度显著下降,而肝脏PEPCK-C表达水平显著升高[15]PEPCK-C的过度表达可以大幅增加肝脏中GLU的输出并稳定血液GLU浓度,有利于糖异生的增加和NEB的恢复。但随着糖原耗竭和肝脏功能的损伤,酮病奶牛肝脏中PEPCK-C的活性和糖异生能力显著下降。Zhang等[16]研究发现,酮病奶牛血浆中与糖异生相关的生糖氨基酸以及一些通过戊糖磷酸途径进入糖酵解的代谢物浓度降低了,表明酮病奶牛体内的糖酵解、糖异生受到了影响。酮病奶牛血浆中的生糖和生酮氨基酸浓度均显著下降,表明酮病奶牛体内的蛋白质动员加强,需要更多的生糖和生酮氨基酸来补充能量的不足[17]。发生酮病的奶牛血浆山梨醇脱氢酶(iditol dehydrogenase,ID)和甘油醛-3-磷酸脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,G3PDH)表达上调,ID和G3PDH促进糖酵解,这导致丙酮酸的浓度增加和酮体积累[18]

1.2 脂代谢紊乱

为满足泌乳期的能量需要,机体会上调血液糖皮质激素来促进脂肪组织的分解[19],脂联素(adiponectin,ADP)和瘦素(leptin,LEP)参与脂肪分解的调节,与奶牛脂肪动员和酮病的发生紧密相关。研究显示,酮病奶牛血液中LEP和ADP浓度降低[20-21],这可能是脂肪动员加强的结果。据报道,与碳水化合物代谢相关的关键酶如丙酮酸激酶2、丙酮酸脱氢酶E1组分亚基α、乳酸脱氢酶A、磷酸葡萄糖糖化酶1和6-磷酸果糖激酶1,以及脂解关键调控因子如围脂滴蛋白1(perilipin 1,PLIN1)和激素敏感脂肪酶(hormone-sensitive triglyceride lipase,HSL)的表达和磷酸化状态在酮病奶牛中上调[22]。有研究表明,环磷酸鸟苷(cyclic guanosine monophosphate,cGMP)-蛋白激酶G(protein kinase G,PKG)细胞途径与脂质代谢紧密相关,在酮病奶牛中表现增强,肝脏中cGMP/PKG浓度升高,并通过HSL影响肝细胞的脂质代谢[23]。在健康奶牛中,INS与胰岛素受体结合,诱导自磷酸化机制,激活蛋白激酶B(protein kinase B,Akt),从而激活磷酸二酯酶(phosphodiesterases,PDE),增加HSL和PLIN1的磷酸化。PLIN1过表达抑制HSL和脂肪甘油三酯脂肪酶的表达,从而增加FA和甘油三酯(triglycerides,TG)合成,抑制脂肪分解。在患有酮病的奶牛中,INS释放减少,组织对INS的反应性降低,导致Akt活性降低,从而降低PDE活性,阻断了HSL和PLIN1的磷酸化[24]。研究表明,溶酶体功能障碍会加重肝脏损伤和肝细胞脂肪变性,而转录因子EB(transcription factor EB,TFEB)可以通过诱导编码溶酶体蛋白的各种基因转录来调节溶酶体功能。高浓度的BHBA和FA会过度激活雷帕霉素靶蛋白复合体1信号通路,并进一步损害TFEB转录活性和溶酶体功能,导致肝脏损伤和脂肪变性,并加重奶牛酮病[25]。Akt、糖原合成酶激酶-3β和细胞外信号调节蛋白激酶(extracellular signals regulate protein kinases,ERK)1/2可增加TFEB的磷酸化并减少核易位。据报道,在患有酮病的奶牛肝脏中,Akt、糖原合成酶激酶-3β和ERK1/2活性较低,导致它们对TFEB转录活性的调节作用降低[26]。酮病奶牛脂质代谢紊乱的主要病理学特征,表现为肝脏TG沉积和总胆固醇(total cholesterol,TC)含量下降。酰基辅酶A-胆固醇酰基转移酶(acyl-coenzyme A-cholesterol acyltransferase,ACAT)通过将游离胆固醇转化为储存在细胞中的胆固醇酯来调节胆固醇平衡。SCK奶牛肝脏中ACAT2基因表达的下调可抑制TC合成,促进肝脏中TG的蓄积,降低极低密度脂蛋白(very low density lipoprotein,VLDL)和低密度脂蛋白含量,最终导致TG和胆固醇代谢紊乱[27]。在这之前的研究也提到酮病奶牛体内高酮体浓度降低了ACAT的表达[28]

1.3 系统性炎症与氧化应激

酮病奶牛体内普遍存在炎症损伤和氧化应激,并与血液中白细胞介素(interleukin,IL)-6、IL-1β和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)等促炎因子浓度升高有关。TNF-α在调节脂肪细胞内分泌功能中起关键作用,其能够抑制脂蛋白脂酶的活性。研究表明,TNF-α可通过降低牛脂肪细胞中过氧化物酶体增殖物激活受体γ的转录活性来减少ADP的产生[29],但其详细的调节机制仍不清楚。高浓度的BHBA可激活核因子-κB(nuclear factor kappa-B,NF-κB)信号通路,诱导奶牛肝细胞的炎症损伤[30]PLIN1过表达可抑制NF-κB炎症通路的活化,降低脂多糖诱导的TNF-αIL-1βIL-6的表达。酮病奶牛PLIN1低水平的表达导致脂肪组织中的脂质动员加强,NF-κB通路过度诱导炎症因子表达[31]。此外,酮病奶牛肝脏中NOD样受体热蛋白结构域相关蛋白3(NOD-like receptor thermal protein domain associated protein 3,NLRP3)和半胱天冬酶1的表达上调,表明其NLRP3炎性小体也被激活[32]。炎性细胞因子可进一步激活NF-κB炎症通路,这些机制相互作用,共同促进酮病的发展。奶牛围产期脂肪动员的加强和脂质过氧化会导致血浆中脂质过氧化物浓度的升高,并造成过度的氧化应激反应。研究报道,产后发生SCK的奶牛,在分娩前后血浆中的脂质过氧化物丙二醛(malondialdehyde,MDA)浓度均显著高于健康奶牛,表明酮病奶牛在产前的氧化应激反应已经增加了[33]。高浓度BHBA也可引起奶牛肝细胞的氧化应激,导致p38丝裂原活化蛋白激酶的磷酸化和激活,通过活性氧(reactive oxygen species,ROS)-p38-p53/核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)信号通路诱导牛肝细胞凋亡[34]。非酯化脂肪酸(non-estesterified fatty acid,NEFA)浓度升高可促进活性氧的产生和p53转录激活,可能通过NEFA-ROS-c-Jun氨基末端激酶(c-Jun amino-terminal kinase,JNK)/ERK介导的线粒体通路在诱导奶牛肝细胞凋亡中起重要作用[35]。CK奶牛脂肪组织中钙调素(calmodulin,CaM)浓度显著上调[22],CaM通过HSL和PLIN1促进脂肪细胞的脂肪分解,同时激活Toll样受体4(Toll-like receptor 4,TLR4)/核因子-κB抑制蛋白激酶(nuclear factor-κB inhibitor protein kinase,IKK)/NF-κB炎症通路,促进炎症反应[36]

1.4 瘤胃菌群的显著改变

研究表明,瘤胃微生物群落在宿主能量稳态、代谢和生理适应中发挥着重要作用[37]。Wang等[38]基于末端限制性片段长度多态性和实时荧光定量PCR技术对围产期奶牛瘤胃细菌的变化特征进行了分析,结果表明,与健康奶牛相比,酮病奶牛瘤胃菌群显著改变,产丙酸菌反刍兽月形单胞菌(月形单胞菌属)和埃氏巨球型菌(巨球型菌属)丰度显著下降,可能与瘤胃内VFA浓度的变化紧密相关。在反刍动物中,大约90%的GLU是由糖异生作用提供的,其中50%~60%来自丙酸[11],其在瘤胃内的生成依赖于特定微生物类群,丙酸合成菌丰度减少可能会增加奶牛发生酮病的风险。Wang等[39]研究发现,与健康奶牛相比,酮病奶牛瘤胃内琥珀弧菌科UCG1丰度减少,克里斯滕森氏菌、瘤胃球菌科、毛螺菌科和普雷沃菌科丰度较高,说明酮病的发生与瘤胃微生物群发生的变化潜在关联。上述研究表明,奶牛围产期瘤胃菌群的变化与围产后期酮病的发生存在紧密联系,但目前人们对围产前期酮病奶牛瘤胃菌群的动态变化特征和瘤胃菌群与NEB的关系了解仍不充分。

2 奶牛酮病早期诊断与预测

泌乳早期奶牛酮病的发病率较高,尤其是SCK。酮病的发生不仅降低奶牛的产奶性能,还会增加奶牛继发皱胃变位、胎衣不下、乳房炎等疾病和被提早淘汰的风险。早期预警酮病发生的风险,可为监测、评价奶牛营养代谢状况和预警奶牛围产期代谢性疾病的发生提供参考,以及时采取防治措施降低酮病带来的危害和经济损失。

2.1 血液生化指标

发生酮病的奶牛,其体内过度的脂肪动员和肝脏糖异生能力下降,造成BHBA和NEFA浓度升高,血液GLU浓度下降。血液中BHBA具有较好的稳定性,被作为酮病诊断的金标准而广泛应用于酮病诊断和群体监测中[40]。Ospina等[41]运用多元线性回归模型和ROC曲线确定了奶牛群发生CK的监测指标,结果为奶牛产前14 d至产前2 d血液中NEFA浓度≥0.3 mmol/L,产后3 d至产后14 d血液中NEFA浓度≥0.6 mmol/L和BHBA浓度≥10 mg/dL。也有研究评估了产前10 d至产后10 d奶牛血液生化指标的变化及其与产后酮病的关系,通过二元logistic模型和ROC曲线分析表明奶牛产前BSC<2.88,血液GLU浓度<3.97 mmol/L、BHBA浓度>0.43 mmol/L、NEFA浓度>0.27 mmol/L,血浆谷草转氨酶(aspartate aminotransferase,AST)活性>68.0 U/L,产后患SCK风险较高[9]。Ha等[42]分析了奶牛分娩当天血常规和血清生化指标与围产后期酮病发生之间的关系,CK组和SCK组的血液NEFA浓度、平均红细胞体积、平均红细胞血红蛋白含量和总胆红素(total bilirubin,TBIL)浓度均高于健康组,以CK组最高;CK组和SCK组的血液红细胞分布宽度和白细胞计数、单核细胞和嗜酸性粒细胞计数均低于健康组,以CK组最低;且这些指标与酮病的发展和严重程度相关,这些指标可能是识别围产后期奶牛易患酮病的有用指标。有研究利用logistic模型和ROC曲线确定了奶牛产前14 d的血液BHBA浓度>0.42 mmol/L、NEFA浓度>0.47 mmol/L,产前7 d的血液BHBA浓度>0.34 mmol/L、NEFA浓度>0.32 mmol/L,可作为产后酮病的预警指标[43]。泌乳早期发生酮病的奶牛通常伴有脂肪肝或肝脏损伤,一些肝脏功能相关指标的变化与酮病的发生也存在联系。血浆总蛋白、白蛋白、胆碱酯酶(choline esterase,CHE)等生化指标反映肝脏的合成能力,血浆AST、谷丙转氨酶、乳酸脱氢酶、TBIL、直接胆红素等常被作为评估肝细胞是否受损及损伤程度的生物标志物。基于二元logistic回归分析和ROC曲线分析结果,Sun等[44]确定血液中NEFA浓度>0.76 mmol/L、TBIL浓度>3.3 μmol/L、AST活性>104 U/L和CHE活性<140 U/L可作为预测酮病风险的有效参数。越来越多的证据表明,在围产期发生NEB的奶牛通常伴有系统性的炎症,而酮病奶牛血浆中较高的酮体和NEFA浓度可诱导机体的炎症反应。据Zhang等[45]报道,与健康奶牛相比,产后发生酮病奶牛在分娩前8周血清中IL-6、TNF-α、血清淀粉样蛋白A和乳酸等的浓度更高,结果表明,酮病奶牛在发病前几周已经表现出先天性免疫激活,IL-6和乳酸可能作为奶牛酮病早期预测的生物标志物。
近年来,代谢组学分析技术广泛应用于奶牛酮病的研究中,人们从中筛选出大量酮病诊断的潜在生物标志物。Wu等[46]对产前至产后2周的健康奶牛和酮病奶牛进行了血浆代谢组和蛋白质组的比较分析,该研究筛选出了数十种在精氨酸和脯氨酸代谢途径中显著富集的代谢物和在胆固醇代谢和吞噬体相关途径中显著富集的蛋白质,其中4-羟基-6-甲基吡喃-2-酮和肉桂酰甘氨酸可能作为诊断CK的早期标志物。奶牛围产期的脂质代谢状态与酮病的发展关系密切,近年来的研究表明,除了BHBA和NEFA外,酮病奶牛血液中的一些其他脂代谢指标也会发生显著变化。脂质代谢增强可引起血浆甲基乙二醛(methylglyoxal,MGO)浓度升高。Li等[5]研究显示,SCK奶牛血清中MGO浓度显著升高,并与磷酸二羟丙酮、NEFA、BHBA、丙酮等脂质代谢物和炎症标志物触珠蛋白等显著正相关,MGO可能作为奶牛酮病的潜在标志物。MDA也是脂质过氧化的产物,据Senoh等[33]报道,产后发生SCK的奶牛,在分娩前后血浆MDA浓度均显著高于健康奶牛,该结果表明血浆MDA浓度也可作为奶牛SCK早期诊断的潜在标志物。Sun等[47]应用核磁共振法对健康、CK、SCK奶牛的血液代谢组进行了分析,结果表明乙酸、丙酮、乳酸、GLU、胆碱、谷氨酸、谷氨酰胺等25种代谢物浓度在3组间存在显著差异。卵磷脂胆固醇脂酰转移酶(lecithin-cholesterol acyltransferase,LCAT)是参与胆固醇代谢的重要酶,而肝脏中过多的NEFA和脂肪蓄积会损坏LCAT的合成和分泌。有研究表明,酮病奶牛在分娩前20 d血浆中LCAT活性已显著降低,而在该阶段的健康牛LCAT活性几乎不受影响,该研究表明LCAT活性可作为酮病发生的预测指标[48]。脂质代谢紊乱和过度的氧化应激反应是围产期NEB的重要病理学特征。也有研究报告,血清对氧磷酶-1活性和成纤维细胞生长因子-21浓度可能是评估奶牛酮病发生风险的有用标志物[49-50],但这些新的生物标志物尚未得到验证。Zhang等[51]报道,在酮病发生前到发生后,奶牛血清氨基酸、甘油磷脂、鞘脂、酰基肉碱和生物胺等代谢物的浓度均发生了显著变化,ROC曲线分析显示这些差异代谢物可作为奶牛围产期酮病预测的生物标志物。Liu等[52]研究表明,在产前7 d,酮病奶牛血浆中的5种FA含量及C18∶1n9和C12∶0的比值、C18∶1n9和C22∶1n9的比值与健康奶牛相比差异显著,这些FA可能是预测产后酮病的指标。

2.2 乳成分

牛奶酮体和血液BHBA浓度之间存在较强的相关性[53],牛奶BHBA和丙酮浓度也被用于高酮血症(hyperketonemia,HYK)的诊断和监测。目前,已有许多通过乳成分预测奶牛酮病发生风险的模型。如Nielsen等[54]根据牛奶BHBA浓度并结合疾病记录、产犊体脂、产奶量和干物质采食量等信息建立了一个自动化的在线酮病预测模型。Chandler等[55]根据牛奶丙酮、BHBA浓度并结合奶牛日产奶量和产奶性能等多个变量分别构建了多元logistic回归模型和多元线性回归模型,并比较了2种模型对初产和经产的不同品种奶牛产后酮病的预测准确性,结果表明,多元logistic回归模型可显著提高群体水平酮病的预测能力。
奶牛代谢过程中释放到外周循环中的部分游离FA会被直接转移到牛乳中并最终成为乳脂的一部分。在NEB状态下,脂肪的过度动员会导致牛乳中乳脂率升高,但乳蛋白率相对稳定,人们可以通过干物质采食量(dry matter intake,DHI)测定数据轻松获得乳脂率和乳蛋白率信息。已有研究表明,牛乳FA的组成与奶牛的能量代谢水平密切相关,短链和中链FA浓度会随着NEB的降低而增加,而长链FA浓度随着体脂动员的下降而减少[56]。Jorjong等[57]利用logistic回归分析得出牛乳中C18∶1cis-9与C15∶0的比值是HYK诊断的生物标志物,但目前,人们仍缺乏能够准确测量牛奶中C15∶0的简便方法。Puppel等[58]进一步分析了奶牛泌乳早期血液BHBA与牛奶共轭亚油酸的关系,结果表明牛乳中C18∶2 cis-9 trans-11(CLA9)和C18∶2 trans-10 cis-12(CLA10)等共轭亚油酸浓度与奶牛血液BHBA浓度显著负相关,CLA9和CLA10可作为奶牛酮病的早期诊断标志物。Fiore等[59]的研究进一步明确了奶牛泌乳早期乳中FA类型和浓度与血浆BHBA浓度间存在关联关系,通过ROC曲线确定了属于胆固醇酯、游离FA和TG类的14种FA是预测HYK有价值的生物标志物,但牛乳中乳脂较不稳定,在泌乳期的不同阶段会发生较大的变化。再者,饲粮结构也对乳FA浓度有影响,一些饲粮成分的补充能够显著影响牛乳中部分种类FA浓度。因此,为保证以乳FA浓度构建的酮病诊断或预测系统的准确性和适用性,需对奶牛的饲养采取一定的标准限制。

2.3 尿液代谢物

酮病奶牛血液中高浓度的酮体会通过血尿屏障进入尿液,造成尿液酮体浓度升高,故尿液乙酰乙酸的浓度也常被广泛用于奶牛酮病的诊断和群体监测。Krogh等[60]比较了尿液乙酰乙酸浓度、牛乳BHBA浓度、牛乳乳脂率诊断酮病的特异性,结果表明,尿液乙酰乙酸浓度用于酮病群体监测的敏感性和特异性最高,能帮助发现牛群中更多的酮病奶牛。酮病奶牛的代谢机能异常,血液中高浓度的BHBA和NEFA还会造成系统性的炎症反应,可能会造成奶牛尿液成分的显著改变。Xu等[61]比较了CK组奶牛和健康奶牛的尿液,发现包括神经生长因子诱导蛋白(VGF蛋白)、淀粉样前体蛋白、血清淀粉样蛋白A、纤维蛋白原、C1酯酶抑制剂、载脂蛋白C-Ⅲ、胱抑素C、转甲状腺素、铁调素、人中性粒细胞肽和骨桥蛋白在内的11种蛋白质在CK奶牛尿液中的浓度显著降低,这些蛋白质分子可能成为酮病诊断的新标志物。研究显示,SCK奶牛尿液中吲哚-3-乙酸酯、茶碱、对甲酚、3-羟基扁桃酸、龙胆酸盐、N-乙酰氨基葡萄糖、N-亚硝基二甲胺、黄嘌呤和吡哆醇浓度显著升高[62],表明这些代谢物可能是诊断酮病的潜在标志物,但仍需进一步的研究来阐明其与酮病之间的关系。近年来,Zhang等[63]采用多种代谢组学方法比较了酮病奶牛和健康奶牛从产前8周到产后8周不同时间点的尿液代谢物,发现对称二甲基精氨酸等4种代谢物可用于奶牛酮病的早期预测,其ROC曲线下面积为0.994,具有较高的灵敏度和特异性。由于尿液采集是非侵入性的,与目前的血液生物标志物相比,新发现的早期预测和诊断生物标志物具有显著优势。

2.4 牧场生产管理数据

研究表明,BCS、反刍、活动量、泌乳量、胎次、产犊季节、干奶期长度等也与奶牛酮病的发生存在一定程度的联系[64]。BCS是一种广泛用于评估奶牛营养管理的方法,研究表明,分娩前BCS≥3.5的奶牛在产后发生酮病的风险更高,且酮病奶牛在产后BCS下降的更多[65]。Rathbun等[66]研究也表明,干奶期BCS>4或在分娩后BCS损失>1的奶牛血浆中BHBA浓度更高。Li等[67]应用统计过程控制(statistical process control,SPC)技术评估了干奶期奶牛BCS变化与产后SCK发病率的关系,并探讨了SPC在预测产后SCK发生率中的应用价值。研究结果表明,应用该技术预测产后SCK的准确度仅为0.64,但它可为营养策略的调整提供指导。
反刍与瘤胃功能密切相关,其能促进纤维消化和VFA的产生,并有助于唾液产生和稳定瘤胃pH。研究表明,分娩前后的反刍时间与奶牛酮病的发生存在一定联系,酮病奶牛比健康奶牛的反刍时间更短,尤其是产前1周和分娩后1周[68-69]。一项最近的研究通过给奶牛佩戴RumiWatch鼻传感器跟踪监测了奶牛产犊前、分娩当天和产犊后反刍时间、进食时间、饮水时间、饮水量、每分钟咀嚼量、趴卧时间、活动量等的变化,数据分析结果表明,产犊前30 d奶牛反刍和活动模式的变化可用于预测产犊后30 d内的SCK[70]。Steensels等[71]进一步评估了反刍时间、产奶量和活动量与产后酮病发病率的关系,提出可通过给奶牛佩戴有HR-Tag监测系统的项圈监测上述3个指标的变化,利用牛群管理软件建模来诊断和预测产后酮病的发病情况。Wang等[72]基于奶牛的胎次、BCS、日反刍时间、日活动量、难产评分和产犊季节等参数运用R语言构建了XGBoost模型,结果表明该模型具有较高的预测能力和准确率,在该模型中反刍时间和活动量的贡献率最高,酮病的发生率随着每日反刍时间和活动量的减少而增加,基于该模型进一步开发了预测奶牛产后酮病风险的开放式Web程序PreCowKetosis,为研究人员和牧场管理者预防奶牛酮病提供了决策支持。

2.5 瘤胃微生物和代谢物

瘤胃微生物群落在宿主能量稳态以及代谢和生理适应中起重要作用。在围产前期,有的奶牛瘤胃功能低下,瘤胃微生物群生长不良,导致从瘤胃吸收的营养物质不足,容易诱发酮病。据报道,伴随着酮病状态,奶牛的瘤胃细菌群组成发生了巨大变化。产后未发生酮病的健康奶牛瘤胃内普雷沃氏菌属和未分类的琥珀弧菌科的丰度较高[73-74]。普雷沃氏菌属相关物种可能更容易适应围产期饲粮成分的变化,并接替瘤胃杆菌属在淀粉降解中的作用;琥珀酸弧菌科与瘤胃杆菌属的关系更密切,也可能含有淀粉降解剂。研究发现,与健康组相比,CK组奶牛的拟杆菌门和厚壁菌门的丰度较高,琥珀弧菌科的丰度显著降低[39]。琥珀酸弧菌科家族可产生琥珀酸,而琥珀酸是产生丙酸的前体,CK奶牛中该科物种的大量减少表明发酵途径受到抑制,从而导致丙酸的生成减少。Gebreyesus等[37]研究表明,SCK奶牛瘤胃中普雷沃氏菌属、瘤胃球菌属和甲烷短杆菌属的丰度与牛奶BHBA或丙酮浓度呈显著正相关,表明奶牛瘤胃微生物组成对牛奶BHBA和丙酮浓度具有重要的预测能力。最新研究表明,SCK组瘤胃液中丁酸、蔗糖、BHBA、麦芽糖和戊酸浓度显著高于健康组,氮、N-二甲基甲酰胺、乙酸、GLU和丙酸浓度显著低于健康组[75];该研究中奶牛群体很小,但为后续的研究提供了很好的思路。
尽管目前国内外对于奶牛瘤胃微生物和代谢物关于酮病的早期预警研究相对较少,但已经有越来越多的研究证明奶牛酮病的发生与瘤胃微生物和代谢物的变化密切相关。并且瘤胃被认为是影响奶牛各种疾病发生发展的最重要器官之一,瘤胃微生物群发挥着多种重要的生理功能。因此,瘤胃微生物和代谢物对于奶牛酮病预警同样有着重要意义,围产期奶牛瘤胃内容物变化在酮病风险预警方面的研究还有待深耕。

3 小结

酮病作为奶牛最常见的代谢疾病之一,对奶牛的健康、泌乳性能和繁殖性能造成不利影响,给奶牛业带来了巨大的危害和严重的经济损失。GLU和脂质代谢紊乱、系统性炎症和氧化应激损伤是奶牛酮病的主要病理学特征,近年研究表明,瘤胃菌群和瘤胃代谢功能的变化也与奶牛围产期能量代谢负平衡以及产后酮病的发生紧密相关。目前,尽管人们已经确定了奶牛酮病诊断的金标准,并基于酮病相关的血液、牛乳、尿液、瘤胃液、生理活动、生产管理数据等构建了酮病预测模型,但多数研究仍基于较小的试验队列和动物群体,酮病发病机制的复杂性和饲养管理模式的差异等,限制了这些模型在酮病的早期诊断和预警监测中应用。越来越多的证据表明,奶牛在围产前期的生理和代谢机能的变化与产后酮病的发生存在联系,近年来,随着高通量测序技术、基因组学、代谢组学、人工智能等的快速发展,人们整合多组学技术对奶牛酮病的发病机制进行了更加深入的研究。随着奶牛酮病发病机制的逐步阐明,人们可能从围产前期的奶牛体内筛选用于产后酮病早期准确诊断和预测的相关指标和方法,这将为酮病的群体监测和防控提供新的理论支持和技术保障。
[1]
DAI L L, LIU Z X, GUO L L, et al. Multi-tissue transcriptome study of innate immune gene expression profiling reveals negative energy balance altered the defense and promoted system inflammation of dairy cows[J]. Veterinary Sciences, 2023, 10(2):107.

[2]
安彦昊, 马学虎, 孙奕烁, 等. 代谢组学在筛选奶牛酮病生物标志物中的应用[J]. 动物营养学报, 2022, 34(8):4829-4835.

DOI

AN Y H, MA X H, SUN Y S, et al. Application of metabonomics in screening biomarkers of ketosis in dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(8):4829-4835. (in Chinese)

DOI

[3]
HUANG H, CAO J, HANIF Q, et al. Genome-wide association study identifies energy metabolism genes for resistance to ketosis in Chinese Holstein cattle[J]. Animal Genetics, 2019, 50(4):376-380.

DOI PMID

[4]
LOIKLUNG C, SUKON P, THAMRONGYOSWITTAYAKUL C. Global prevalence of subclinical ketosis in dairy cows:a systematic review and meta-analysis[J]. Research in Veterinary Science, 2022,144:66-76.

[5]
LI C, DAI S H, LU J Y, et al. Methylglyoxal:a newly detected and potentially harmful metabolite in the blood of ketotic dairy cows[J]. Journal of Dairy Science, 2018, 101(9):8513-8523.

[6]
吴周林. 围产期奶牛酮病的多组学研究[D]. 博士学位论文. 成都: 四川农业大学, 2020.

WU Z L. Multi-omics approaches to study ketosis in perinatal dairy cows[D]. Ph.D.Thesis. Chengdu: Sichuan Agricultural University, 2020. (in Chinese)

[7]
MCART J A A, NYDAM D V, OETZEL G R. Dry period and parturient predictors of early lactation hyperketonemia in dairy cattle[J]. Journal of Dairy Science, 2013, 96(1):198-209.

DOI PMID

[8]
肖鑫焕, 许楚楚, 王博, 等. 奶牛酮病早期预警指标的确立与评估[J]. 中国畜牧杂志, 2015, 51(15):61-65,82.

XIAO X H, XU C C, WANG B, et al. Establishment and evaluation of early prediction warning on ketosis in dairy cows[J]. Chinese Journal of Animal Science, 2015, 51(15):61-65,82. (in Chinese)

[9]
WANG D, YU D, ZHAO C, et al. Subclinical ketosis risk prediction in dairy cows based on prepartum metabolic indices[J]. Arquivo Brasileiro de Medicina Veterinária e Zootecnia, 2021, 73(1):11-17.

[10]
SALEEM F, BOUATRA S, GUO A C, et al. The bovine ruminal fluid metabolome[J]. Metabolomics, 2013, 9(2):360-378.

[11]
EOM J S, KIM E T, KIM H S, et al. Metabolomics comparison of rumen fluid and milk in dairy cattle using proton nuclear magnetic resonance spectroscopy[J]. Animal Bioscience, 2021, 34(2):213-222.

[12]
DRACKLEY J K, OVERTON T R, DOUGLAS G N. Adaptations of glucose and long-chain fatty acid metabolism in liver of dairy cows during the periparturient period[J]. Journal of Dairy Science, 2001, 84(Suppl.):E100-E112.

[13]
LOOR J J, EVERTS R E, BIONAZ M, et al. Nutrition-induced ketosis alters metabolic and signaling gene networks in liver of periparturient dairy cows[J]. Physiological Genomics, 2007, 32(1):105-116.

DOI PMID

[14]
PIECHOTTA M, MYSEGADES W, LIGGES U, et al. Antepartal insulin-like growth factor 1 and insulin-like growth factor binding protein 2 concentrations are indicative of ketosis in dairy cows[J]. Journal of Dairy Science, 2015, 98(5):3100-3109.

DOI PMID

[15]
XIA C, WANG Z, LIU G W, et al. Changes of plasma metabolites,hormones,and mRNA expression of liver PEPCK-C in spontaneously ketotic dairy cows[J]. Asian-Australasian Journal of Animal Sciences, 2010, 23(1):47-51.

[16]
ZHANG H Y, WU L, XU C, et al. Plasma metabolomic profiling of dairy cows affected with ketosis using gas chromatography/mass spectrometry[J]. BMC Veterinary Research, 2013,9:186.

[17]
WANG Y H, GAO Y, XIA C, et al. Pathway analysis of plasma different metabolites for dairy cow ketosis[J]. Italian Journal of Animal Science, 2016, 15(3):545-551.

[18]
SHU S, XU C C, XIA C, et al. Identification of novel pathways in pathogenesis of ketosis in dairy cows via iTRAQ/MS[J]. Journal of Veterinary Research, 2016, 60(3):309-314.

[19]
ZHANG F J, LI D, WU Q, et al. Prepartum body conditions affect insulin signaling pathways in postpartum adipose tissues in transition dairy cows[J]. Journal of Animal Science and Biotechnology, 2019,10:38.

[20]
XIA C, WANG Z, XU C, et al. Concentrations of plasma metabolites,hormones,and mRNA abundance of adipose leptin and hormone-sensitive lipase in ketotic and nonketotic dairy cows[J]. Journal of Veterinary Internal Medicine, 2012, 26(2):415-417.

[21]
AKGUL G, MECITOGLU Z, KUCUKSEN D, et al. Comparison of adiponectin levels and some metabolic parameters in dairy cows with subclinical and clinical ketosis[J]. Medycyna Weterynaryjna, 2018, 74(3):182-186.

[22]
XU Q S, LI X B, MA L, et al. Adipose tissue proteomic analysis in ketotic or healthy Holstein cows in early lactation[J]. Journal of Animal Science, 2019, 97(7):2837-2849.

[23]
KUO K K, WU B N, LIU C P, et al. Xanthine-based KMUP-1 improves HDL via PPARγ/SR-B1,LDL via LDLRs,and HSL via PKA/PKG for hepatic fat loss[J]. Journal of Lipid Research, 2015, 56(11):2070-2084.

[24]
DIPILATO L M, AHMAD F, HARMS M, et al. The role of PDE3B phosphorylation in the inhibition of lipolysis by insulin[J]. Molecular and Cellular Biology, 2015, 35(16):2752-2760.

DOI PMID

[25]
FANG Z Y, LI X W, WANG S, et al. Overactivation of hepatic mechanistic target of rapamycin kinase complex 1 (mTORC1) is associated with low transcriptional activity of transcription factor EB and lysosomal dysfunction in dairy cows with clinical ketosis[J]. Journal of Dairy Science, 2022, 105(5):4520-4533.

DOI PMID

[26]
DU X L, YANG Y C, XU C, et al. Upregulation of miR-181a impairs hepatic glucose and lipid homeostasis[J]. Oncotarget, 2017, 8(53):91362-91378.

DOI PMID

[27]
ZHOU S D, CHEN M R, MENG M J, et al. Subclinical ketosis leads to lipid metabolism disorder by downregulating the expression of acetyl-coenzyme A acetyltransferase 2 in dairy cows[J]. Journal of Dairy Science, 2023, 106(12):9892-9909.

[28]
XU C, WANG Z, LIU G W, et al. Metabolic characteristic of the liver of dairy cows during ketosis based on comparative proteomics[J]. Asian-Australasian Journal of Animal Sciences, 2008, 21(7):1003-1010.

[29]
YU H, GAO X X, GE Q L, et al. Tumor necrosis factor-α reduces adiponectin production by decreasing transcriptional activity of peroxisome proliferator-activated receptor-γ in calf adipocytes[J]. Journal of Dairy Science, 2023, 106(7):5182-5195.

DOI PMID

[30]
SHI X X, LI X W, LI D D, et al. β-Hydroxybutyrate activates the NF-κB signaling pathway to promote the expression of pro-inflammatory factors in calf hepatocytes[J]. Cellular Physiology and Biochemistry, 2014, 33(4):920-932.

DOI PMID

[31]
ZHANG S Q, LIU G W, XU C, et al. Perilipin 1 mediates lipid metabolism homeostasis and inhibits inflammatory cytokine synthesis in bovine adipocytes[J]. Frontiers in Immunology, 2018,9:467.

[32]
SHEN T Y, LI X W, LOOR J J, et al. Hepatic nuclear factor kappa B signaling pathway and NLR family pyrin domain containing 3 inflammasome is over-activated in ketotic dairy cows[J]. Journal of Dairy Science, 2019, 102(11):10554-10563.

DOI PMID

[33]
SENOH T, OIKAWA S, NAKADA K, et al. Increased serum malondialdehyde concentration in cows with subclinical ketosis[J]. Journal of Veterinary Medical Science, 2019, 81(6):817-820.

DOI PMID

[34]
SONG Y X, LI N, GU J M, et al. β-Hydroxybutyrate induces bovine hepatocyte apoptosis via an ROS-p38 signaling pathway[J]. Journal of Dairy Science, 2016, 99(11):9184-9198.

DOI PMID

[35]
LI Y, DING H Y, LIU L H, et al. Non-esterified fatty acid induce dairy cow hepatocytes apoptosis via the mitochondria-mediated ROS-JNK/ERK signaling pathway[J]. Frontiers in Cell and Developmental Biology, 2020,8:245.

[36]
CHANG J S, WANG Z J, HAO Y, et al. Calmodulin contributes to lipolysis and inflammatory responses in clinical ketosis cows through the TLR4/IKK/NF-κB pathway[J/OL]. Preprints, 2023:2023082049[2023-11-11].https://doi.org/10.20944/preprints202308.2049.v1.DOI:10.20944/preprints202308.2049.v1.

[37]
GEBREYESUS G, DIFFORD G F, BUITENHUIS B, et al. Predictive ability of host genetics and rumen microbiome for subclinical ketosis[J]. Journal of Dairy Science, 2020, 103(5):4557-4569.

DOI PMID

[38]
WANG X X, LI X B, ZHAO C X, et al. Correlation between composition of the bacterial community and concentration of volatile fatty acids in the rumen during the transition period and ketosis in dairy cows[J]. Applied and Environmental Microbiology, 2012, 78(7):2386-2392.

DOI PMID

[39]
WANG Q J, CUI Y Z, INDUGU N, et al. Integrated meta-omics analyses reveal a role of ruminal microorganisms in ketone body accumulation and ketosis in lactating dairy cows[J]. Journal of Dairy Science, 2023, 106(7):4906-4917.

DOI PMID

[40]
SCHULZ K, FRAHM J, MEYER U, et al. Effects of prepartal body condition score and peripartal energy supply of dairy cows on postpartal lipolysis,energy balance and ketogenesis:an animal model to investigate subclinical ketosis[J]. Journal of Dairy Research, 2014, 81(3):257-266.

[41]
OSPINA P A, NYDAM D V, STOKOL T, et al. Evaluation of nonesterified fatty acids and beta-hydroxybutyrate in transition dairy cattle in the northeastern United States:critical thresholds for prediction of clinical diseases[J]. Journal of Dairy Science, 2010, 93(2):546-554.

[42]
HA S, KANG S, HAN M, et al. Predicting ketosis during the transition period in Holstein Friesian cows using hematological and serum biochemical parameters on the calving date[J]. Scientific Reports, 2022, 12(1):853.

DOI PMID

[43]
肖劲邦, 朱颍琨, 钱柏霖, 等. 围产前期奶牛血清相关能量平衡指标和脂肪因子对酮病的预警作用及意义[J]. 中国农业大学学报, 2019, 24(9):79-87.

XIAO J B, ZHU Y K, QIAN B L, et al. Early warning function and significance of serum energy balance index and adipokine levels for ketosis in dairy cows during early prenatal[J]. Journal of China Agricultural University, 2019, 24(9):79-87. (in Chinese)

[44]
SUN Y H, WANG B, SHU S, et al. Critical thresholds of liver function parameters for ketosis prediction in dairy cows using receiver operating characteristic (ROC) analysis[J]. Veterinary Quarterly, 2015, 35(3):159-164.

[45]
ZHANG G S, HAILEMARIAM D, DERVISHI E, et al. Dairy cows affected by ketosis show alterations in innate immunity and lipid and carbohydrate metabolism during the dry off period and postpartum[J]. Research in Veterinary Science, 2016,107:246-256.

[46]
WU Z L, CHEN S Y, HU S Q, et al. Metabolomic and proteomic profiles associated with ketosis in dairy cows[J]. Frontiers in Genetics, 2020,11:551587.

[47]
SUN L W, ZHANG H Y, WU L, et al. 1H-nuclear magnetic resonance-based plasma metabolic profiling of dairy cows with clinical and subclinical ketosis[J]. Journal of Dairy Science, 2014, 97(3):1552-1562.

[48]
NAKAGAWA-UETA H, KATOH N. Reduction in serum lecithin:cholesterol acyltransferase activity prior to the occurrence of ketosis and milk fever in cows[J]. Journal of Veterinary Medical Science, 2000, 62(12):1263-1267.

[49]
CAO Y, ZHANG J, YANG W, et al. Predictive value of plasma parameters in the risk of postpartum ketosis in dairy cows[J]. Journal of Veterinary Research, 2017, 61(1):91-95.

DOI PMID

[50]
XU C, XU Q S, CHEN Y Y, et al. FGF-21:promising biomarker for detecting ketosis in dairy cows[J]. Veterinary Research Communications, 2016, 40(1):49-54.

[51]
ZHANG G S, DERVISHI E, DUNN S M, et al. Metabotyping reveals distinct metabolic alterations in ketotic cows and identifies early predictive serum biomarkers for the risk of disease[J]. Metabolomics, 2017, 13(4):43.

[52]
LIU L, SHEN T Y, YANG W, et al. Ketotic cows display a different serum nonesterified fatty acid composition[J]. Journal of Dairy Research, 2020, 87(1):52-55.

DOI PMID

[53]
ANDERSSON L. Concentrations of blood and milk ketone bodies,blood isopropanol and plasma glucose in dairy cows in relation to the degree of hyperketonaemia and clinical signs[J]. Zentralblatt für Veterin?rmedizin Reihe A, 1984, 31(1):683-693.

[54]
NIELSEN N I, FRIGGENS N C, CHAGUNDA M G G, et al. Predicting risk of ketosis in dairy cows using in-line measurements of beta-hydroxybutyrate:a biological model[J]. Journal of Dairy Science, 2005, 88(7):2441-2453.

[55]
CHANDLER T L, PRALLE R S, DÓREA J R R, et al. Predicting hyperketonemia by logistic and linear regression using test-day milk and performance variables in early-lactation Holstein and Jersey cows[J]. Journal of Dairy Science, 2018, 101(3):2476-2491.

DOI PMID

[56]
GROSS J, VAN DORLAND H A, BRUCKMAIER R M, et al. Milk fatty acid profile related to energy balance in dairy cows[J]. Journal of Dairy Research, 2011, 78(4):479-488.

DOI PMID

[57]
JORJONG S, VAN KNEGSEL A T M, VERWAEREN J, et al. Milk fatty acids as possible biomarkers to diagnose hyperketonemia in early lactation[J]. Journal of Dairy Science, 2015, 98(8):5211-5221.

DOI PMID

[58]
PUPPEL K, GOŁEBIEWSKI M, SOLARCZYK P, et al. The relationship between plasma β-hydroxybutyric acid and conjugated linoleic acid in milk as a biomarker for early diagnosis of ketosis in postpartum Polish Holstein-Friesian cows[J]. BMC Veterinary Research, 2019, 15(1):367.

DOI PMID

[59]
FIORE E, BLASI F, MORGANTE M, et al. Changes of milk fatty acid composition in four lipid classes as biomarkers for the diagnosis of bovine ketosis using bioanalytical Thin Layer Chromatography and Gas Chromatographic techniques (TLC-GC)[J]. Journal of Pharmaceutical and Biomedical Analysis, 2020,188:113372.

[60]
KROGH M A, TOFT N, ENEVOLDSEN C. Latent class evaluation of a milk test,a urine test,and the fat-to-protein percentage ratio in milk to diagnose ketosis in dairy cows[J]. Journal of Dairy Science, 2011, 94(5):2360-2367.

[61]
XU C, SHU S, XIA C, et al. Mass spectral analysis of urine proteomic profiles of dairy cows suffering from clinical ketosis[J]. Veterinary Quarterly, 2015, 35(3):133-141.

[62]
EOM J S, LEE S J, KIM H S, et al. Metabolic profiling of serum and urine in lactating dairy cows affected by subclinical ketosis using proton nuclear magnetic resonance spectroscopy[J]. Journal of Animal Science and Technology, 2022, 64(2):247-261.

DOI PMID

[63]
ZHANG G S, MANDAL R, WISHART D S, et al. A multi-platform metabolomics approach identifies urinary metabolite signatures that differentiate ketotic from healthy dairy cows[J]. Frontiers in Veterinary Science, 2021,8:595983.

[64]
VANHOLDER T, PAPEN J, BEMERS R, et al. Risk factors for subclinical and clinical ketosis and association with production parameters in dairy cows in the Netherlands[J]. Journal of Dairy Science, 2015, 98(2):880-888.

DOI PMID

[65]
GILLUND P, REKSEN O, GRÖHN Y T, et al. Body condition related to ketosis and reproductive performance in Norwegian dairy cows[J]. Journal of Dairy Science, 2001, 84(6):1390-1396.

DOI PMID

[66]
RATHBUN F M, PRALLE R S, BERTICS S J, et al. Relationships between body condition score change,prior mid-lactation phenotypic residual feed intake,and hyperketonemia onset in transition dairy cows[J]. Journal of Dairy Science, 2017, 100(5):3685-3696.

[67]
LI S R, WEI X L, SONG J M, et al. Evaluation of statistical process control techniques in monitoring weekly body condition scores as an early warning system for predicting subclinical ketosis in dry cows[J]. Animals, 2021, 11(11):3224.

[68]
KAUFMAN E I, LEBLANC S J, MCBRIDE B W, et al. Association of rumination time with subclinical ketosis in transition dairy cows[J]. Journal of Dairy Science, 2016, 99(7):5604-5618.

DOI PMID

[69]
PAUDYAL S, MAUNSELL F, RICHESON J, et al. Peripartal rumination dynamics and health status in cows calving in hot and cool seasons[J]. Journal of Dairy Science, 2016, 99(11):9057-9068.

DOI PMID

[70]
ANTANAITIS R, JUOZAITIENĒ V, DŽERMEIKAITÉ K, et al. Change in rumination behavior parameters around calving in cows with subclinical ketosis diagnosed during 30 days after calving[J]. Animals, 2023, 13(4):595.

[71]
STEENSELS M, MALTZ E, BAHR C, et al. Towards practical application of sensors for monitoring animal health:the effect of post-calving health problems on rumination duration,activity and milk yield[J]. Journal of Dairy Research, 2017, 84(2):132-138.

[72]
WANG H R, GUO T X, WANG Z Y, et al. PreCowKetosis:a shiny web application for predicting the risk of ketosis in dairy cows using prenatal indicators[J]. Computers and Electronics in Agriculture, 2023,206:107697.

[73]
ZHU Z G, KRISTENSEN L, DIFFORD G F, et al. Changes in rumen bacterial and archaeal communities over the transition period in primiparous Holstein dairy cows[J]. Journal of Dairy Science, 2018, 101(11):9847-9862.

DOI PMID

[74]
HENDERSON G, COX F, GANESH S, et al. Rumen microbial community composition varies with diet and host,but a core microbiome is found across a wide geographical range[J]. Scientific Reports, 2015,5:14567.

[75]
EOM J S, KIM H S, LEE S J, et al. Metabolic profiling of rumen fluid and milk in lactating dairy cattle influenced by subclinical ketosis using proton nuclear magnetic resonance spectroscopy[J]. Animals, 2021, 11(9):2526.

文章导航

/