综述

硒、铁、锌和铜对动物健康的影响及其对表观遗传调控机制的研究进展

  • 张菁怡 ,
  • 阮记明 ,
  • 殷超 ,
  • 黄建珍 , *
展开
  • 江西农业大学动物科学技术学院,南昌 330045
*黄建珍,教授,博士生导师,E-mail:

张菁怡(2000—),女,江西吉安人,硕士研究生,基础兽医学专业。E-mail:

Copy editor: 武海龙

收稿日期: 2023-12-11

  网络出版日期: 2024-06-07

基金资助

国家自然科学基金(32360867)

国家自然科学基金(31960690)

江西农业大学青年创新团队项目(JXAUCXTD007)

Research Progress on Effects of Selenium, Iron, Zinc and Copper on Animal Health and Their Epigenetic Regulatory Mechanisms

  • ZHANG Jingyi ,
  • RUAN Jiming ,
  • YIN Chao ,
  • HUANG Jianzhen , *
Expand
  • College of Animal Science and Technology, Jiangxi Agricultural University, Nanchang 330045, China
*professor, E-mail:

Received date: 2023-12-11

  Online published: 2024-06-07

摘要

微量矿物元素(微量元素)少量存在于动物机体中,但对机体生理功能至关重要。研究证明,微量元素通过表观遗传调控对动物机体产生影响,起到提高动物生产力、防治动物疾病的作用,可降低饲养成本、提高动物产品(肉、蛋和奶等)质量。表观遗传学的定义为不依赖于DNA序列变化而导致染色体变化的、可遗传基因表达变化的现象和机制,是近年来研究的一大热点,其调控机制包括DNA甲基化、组蛋白修饰和非编码RNA调控等。本文主要论述常见的几种微量元素硒、铁、锌和铜对动物健康的影响及其表观遗传的调控作用和机制,以期为之后的研究和应用提供一定参考。

本文引用格式

张菁怡 , 阮记明 , 殷超 , 黄建珍 . 硒、铁、锌和铜对动物健康的影响及其对表观遗传调控机制的研究进展[J]. 动物营养学报, 2024 , 36(6) : 3563 -3572 . DOI: 10.12418/CJAN2024.307

Abstract

Trace mineral elements (referred to as trace elements) exist in a small amount in the animal body, but they are vital to the physiological function of the body. Research has proved that trace elements through epigenetic regulation on the animal body impact, play a role in improving animal productivity, prevention and control of animal diseases, can reduce feeding costs, improve the quality of animal products (meat, eggs and milk, etc.). Epigenetics is defined as the phenomenon and mechanism of heritable gene expression changes that lead to chromosomal changes independent of DNA sequence changes. It has been a hot research topic in recent years, and its regulatory mechanisms include DNA methylation, histone modification and regulation of non-coding RNA, etc. This paper mainly discusses the effects of common trace elements such as selenium, iron, zinc and copper on animal health and their epigenetic regulation and mechanism, in order to provide some reference for future research and application.

微量矿物元素(微量元素)在动物机体内含量微小,但生物功能强大,在动物生命活动中发挥着重要作用,它们参与体内酶、激素及核酸等的代谢过程,也作为酶活性中心的重要辅助因子,且可维持酶结构并稳定传递遗传信息[1]。我国幅员辽阔,环境差异大,微量元素分布不均,不同地区土壤中的微量元素含量差异很大,其生产的饲料在动物饲养中存在缺乏或过量的问题。饲料中微量元素硒、铁、锌和铜在动物生长发育过程中起到不同的作用。
在生物界中,遗传是一切生物的基本属性。传统遗传学是研究由于DNA序列发生改变,引起基因表达或功能产生变化,从而导致的表型变异;表观遗传学则是对基因表达的可遗传变化的研究,这些变化发生在DNA序列不改变的情况下,与DNA序列本身的变化无关[2]。表观遗传变异被认为是通过核酸和组蛋白的各种共价修饰而实现的,这些修饰主要包括DNA甲基化、组蛋白修饰、染色质重塑和非编码RNA调控,它们协同调节基因功能和表达以及染色质结构[3-4]
历经一个多世纪,微量元素对动物健康的影响机制逐渐被研究发掘并阐释,近年来其对表观遗传的作用机制也成为研究的一大领域。本文综述了微量元素对动物健康的影响,以及硒、铁、锌和铜在动物健康的表观遗传调控机制方面的作用,以便了解微量元素和表观遗传之间更深层的意义。

1 微量元素对动物健康的影响

1.1 硒对动物健康的影响

硒在动物机体中发挥着多种生理功能,已有研究证实,硒具有抗炎、抗氧化和防癌抑癌等作用,从而调节机体生理功能或增强机体抗病、抗应激能力等。例如,断奶犊牛在硒缺乏条件下,体内核因子-κB(nuclear factor-kappa B,NF-κB)通路和丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)通路会被激活,促进其体内氧化应激、炎症、细胞凋亡和坏死性凋亡,导致断奶犊牛的心肌损伤[5];缺硒主要影响鸡空肠抗氧化硒蛋白(如谷胱甘肽过氧化物酶、硫氧还蛋白还原酶等)的表达,诱导氧化应激,降低肠道单磷酸腺苷(adenosine monophosphate,AMP)水平,导致鸡空肠炎症损伤和空肠肠道屏障被破坏[6]。硒还可减轻镉对蛋鸡及其蛋的毒性[7]。缺硒会加剧骨骼肌的氧化应激,导致小鼠肌肉细胞分化能力下降[8]。也有研究表明,硒通过促进抗氧化酶活性的恢复、增强蛋白质修复、缓解炎症反应和恢复肠道微生物群组成,对虹鳟鱼热应激引起的肠道损伤起保护作用[9]。对于硒在癌症上发挥的作用亦有相关报道。Pereira等[10]研究表明,对4T1乳腺肿瘤小鼠饲喂补充硒的饲粮,肿瘤体积从第13天开始减小;另有文献报道,硒结合蛋白1通过干预δ样蛋白4(DLL4)/Notch同源蛋白1(Notch1)信号通路抑制结直肠癌中的肿瘤血管生成,从而起到抑制癌症的作用[11]。硒作为微量元素领域的一大研究热门,其已被证明能促进动物生产、抑制或治疗动物疾病,后文将介绍其通过表观遗传调控动物健康的机制。

1.2 铁对动物健康的影响

铁在调节动物的生命活动上无疑是一把双刃剑。缺铁引起新生仔猪肝脏中酪氨酸代谢、苯丙氨酸代谢、胆汁分泌、原发性胆汁酸生物合成、类固醇生物合成以及尿素循环等一系列的代谢变化,影响新生仔猪的正常代谢[12];而使用铁补充剂能改善猪的血清脂质代谢,通过MAPK和叉形头转录因子O亚型(Forkhead box O,FoXO)途径调节肠道抗氧化能力,并重建猪的肠道微生物群和胆汁酸谱[13]。同样的,在常规鱼类饲料中补充20 mg/kg的纳米铁能促进鱼类的生长[14]。但也有研究发现,铁限制性饲粮会改变小鼠微生物群负荷,并改善肠道完整性,防止了肠道微生物组与炎症因子(如衰老的中性粒细胞)之间的串扰,抑制血管闭塞发作(VOE)和器官损伤[15];地中海贫血小鼠在铁超负荷的情况下,其肠道更容易受到葡聚糖硫酸钠(dextran sulphate sodium,DSS)诱导的菌血症(肠道易位)的影响[16]。从以上研究可以看出,铁缺乏和铁过量均会对动物健康产生影响,而铁对动物健康影响的研究大都聚焦在肠道方面,可能跟动物肠道微生物群有密切联系。

1.3 锌对动物健康的影响

研究发现,小鼠卵泡生长需要锌的参与[17];也有研究表明,锌缺乏通过诱导线粒体自噬的发生降低猪卵母细胞的质量[18],但高剂量的锌会降低血液中总白细胞和粒细胞的数量[19]。在饲粮中补充60 mg/kg甘氨酸锌可以抑制破骨细胞介导的骨吸收,从而改善肉鸭的胫骨质量,其中可能涉及锌对肠道完整性的增强和肠道微生物群的优化[20],饲粮锌状态也会影响小鼠肠道微生物组成[21],低蛋白质饲粮中添加90 mg/kg蛋氨酸羟基类似物螯合锌,可提高肉鸡的生产性能和优化盲肠微生物群[22]。另有研究发现,补锌可以提高老龄蛋鸡的抗氧化活性、采食量和饲料转化率,也能提高鸡蛋质量、增加组织中锌的沉积量,并可增强骨骼强度[23]。综合以上研究,锌对动物生命活动的作用主要体现在抗氧化、调节免疫、促进生长发育和调节肠道微生物的能力等,这些对于动物生产都具有重大意义。

1.4 铜对动物健康的影响

研究发现,过量的铜会诱导鸡、猪大脑线粒体自噬,对鸡和猪的大脑造成损伤[24-25]。最近也有研究表明,过量的铜积聚在线粒体中,导致脂酰化蛋白的聚集,包括二氢脂酰胺S-乙酰转移酶(dihydrolipoamide S-acetyltransferase,DLAT),会损害线粒体功能,从而导致细胞死亡[26]。另外有研究表明,铜诱导小鼠神经元变性和氧化损伤,同时还降低环磷酸腺苷效应原件结合蛋白(cAMP-response element binding protein,CREB)的磷酸化水平,并降低小鼠海马体中脑源性神经影响因子的表达,导致小鼠认知功能障碍[27]。Li等[28]研究发现,不平衡的铜稳态会使斑马鱼类胚胎发育和脂质代谢发生紊乱,表明铜与鱼类脂质代谢密切相关。铜缺乏同样影响动物健康,铜缺乏导致大鼠大脑前额叶皮层的能量代谢失调[29],也会对猪卵母细胞成熟及其后续发育能力造成负面影响[30],还会导致氧化应激,使牛心肌产生显著损伤[31]
目前,在动物疾病上的研究集中在饲粮铜水平诱导疾病的产生,这也许是由于在动物生产上对铜的滥用及其通过排泄导致环境中铜污染,以往的研究同样证明铜缺乏会对动物健康产生损害。
综上所述,硒、铁、锌和铜4种微量元素均在动物健康中发挥重要作用(表1)。
表1 微量元素对动物健康的影响

Table 1 Effects of trace elements on animal health

微量元素
Trace elements
对动物健康的影响
Effects on animal health
参考文献
References


Selenium
提高抗氧化能力(提高过氧化氢酶活性等) [5-6,8-9]
提高抗炎能力(降低环氧化酶、肿瘤坏死因子和核因子-κB等炎症因子mRNA水平) [32-33]
防癌抑癌(减小肿瘤体积、抑制肿瘤血管生成) [10-11]
调节生长发育(提高生长速度、增加体重等) [34]


Iron
提高肠道抗氧化能力 [13]
调节肠道微生物(超负荷铁会扩张肠道致病菌,使肠道菌群失调) [15-16]
调节生长发育(促生长、提高体重) [14]


Zinc
提高抗氧化能力(增强超氧化物歧化酶等活性) [23]
影响免疫力(高剂量锌降低动物血液中白细胞和粒细胞数量) [19]
调节生长发育(参与动物卵泡生长、提高卵母细胞质量) [17]
调节肠道微生物(优化肠道微生物群) [24-25]


Copper
影响线粒体功能(诱导线粒体自噬,导致细胞死亡) [24-25]
影响氧化能力(过量或缺乏均诱导氧化应激) [27,31]
调节生长发育(影响动物胚胎发育、卵母细胞发育) [28]

2 微量元素影响动物健康的表观遗传调控机制

2.1 微量元素与DNA甲基化

DNA甲基化是影响基因表达的主要表观遗传因素,它涉及将甲基转移到胞嘧啶的C5位置以形成5-甲基胞嘧啶(5-methylcytosine,5-mC),其主要发生在鸟嘌呤核苷酸或CpG位点之前的胞嘧啶上,且其调节基因表达的主要方式是招募参与抑制基因表达的蛋白质或抑制转录因子与DNA的结合,通常与基因沉默相关联[35-36]。DNA甲基化由DNA甲基转移酶(DNA methyl transferase,DNMT)家族催化,主要有DNMT1、DNMT3a和DNMT3b[37]。DNMT3a和DNMT3b能使未发生修饰的DNA建立新的甲基化模式;DNMT1则主要在DNA复制上发挥作用,可以将亲本DNA链上的DNA甲基化模式复制到子链上[35]。已有研究表明,微量元素能通过调节DNA甲基化影响动物机体的代谢过程。
研究证明,给亲本虹鳟鱼补充硒,会使亲代鱼及其后代中甲基供体S-腺苷甲硫氨酸(S-adenosyl methionine,SAM)均减少,并且在后代中观察到甲基化模式的显著变化,特别是与信号传递和免疫功能相关的基因[38],其中的可能机制为硒干扰一碳代谢从而影响DNA甲基化,也有研究更进一步证明硒通过影响一碳代谢途径上的酶影响DNA甲基化(图1)[39]。Müller等[40]研究发现,铁的摄取量决定了铁依赖性去甲基化酶的活性,在表观遗传可塑性调节中起核心作用;但也有研究发现,大脑中活性铁水平的增加会损害DNA甲基化能力,从而增强γ-氨基丁酸(gamma-amicability acid,GABA)受体α2亚基的表达,导致小鼠GABA功能受损[41]。Yamamoto等[42]的研究同样表明,铁水平和状态会影响小鼠骨髓细胞的DNA甲基化,因此,用于铁超负荷的铁螯合疗法可能通过控制乌头酸酶1-异柠檬酸脱氢酶(aconitase 1-isocitrate dehydrogenase,ACO1-IDH)通路来减少DNA甲基化,并且可能对骨髓增生异常综合征或急性白血病患者有效。
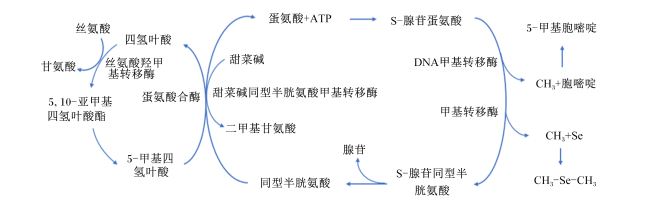
图1 硒影响一碳代谢

Fig.1 Selenium affects one-carbon metabolism[39,47]

锌也会改变动物基因的DNA甲基化水平。有研究证明,游离锌离子(Zn2+)缺乏会诱导与DNA甲基化相关蛋白的基因表达发生变化,从而导致大鼠的海马神经元损失[43]。Khadivi等[44]将雄性大鼠随机分为对照组、博来霉素+依托泊苷+顺铂(BEP)组、BEP+锌组、锌组,研究锌对大鼠精子染色质完整性的保护作用,通过用口服锌或不给锌和腹膜内注射BEP处理雄性大鼠9周,发现不给锌的BEP组大鼠的整体DNA甲基化水平减少,口服锌组大鼠恢复了的正常DNA甲基化和结构,维持了精原干细胞稳态。微量元素不仅影响母体本身的DNA甲基化水平,也会影响子代的DNA甲基化水平。铜暴露诱导草鱼在全基因组水平上发生DNA超甲基化,特别是铜诱导葡萄糖调节蛋白78(glucose-regulated protein 78,GRP78)和过氧化物酶体增殖物激活受体γ共激活因子-1α(peroxisome proliferators-activated receptor γ coactivator-1α,PGC-1α)的高甲基化,导致脂质沉积增加[45]。且铜诱导的斑马鱼精子甲基化组和转录组的改变,可使后代DNA甲基组的位点特异性改变及相关基因转录改变[46]。上述研究表明,微量元素通过调节DNA甲基化,即会对动物生长发育产生积极影响,也会对其产生消极影响,而微量元素通常是通过影响与DNA甲基化相关联的酶活性或影响甲基供体水平来调节DNA甲基化水平。

2.2 微量元素与组蛋白修饰

核小体是染色质的基本单位,由146~147个碱基对的DNA和1个组蛋白八聚体组成,组蛋白八聚体又由1个H2A-H2B四聚体和2个H3-H4二聚体组成[48]。还有一种非核心组蛋白H1,在核小体外表面上起连接作用。核心组蛋白的N-和C-末端尾部可以进行翻译后修饰,包括组蛋白乙酰化、组蛋白甲基化、组蛋白泛素化、组蛋白磷酸化及脱敏、尾部裁剪等[49]。这些修饰会改变组蛋白氨基酸残基的特性或作为某些染色质因子的结合位点,从而影响染色质结构、DNA复制、转录、DNA修复和RNA剪接,所有这些修饰产生的效果取决于核心组蛋白被修饰的残基种类及修饰发生的部位[50-51]。组蛋白甲基化和组蛋白乙酰化是研究最多的2种修饰,组蛋白甲基化通常由组蛋白甲基转移酶(histone melthyltransferases,HMTs)介导,而组蛋白乙酰化是由组蛋白乙酰转移酶(histone acetyltransferase,HAT)和组蛋白脱乙酰酶(histone deacetylase,HDAC)介导,且主要与基因活性转录有关[52-53]
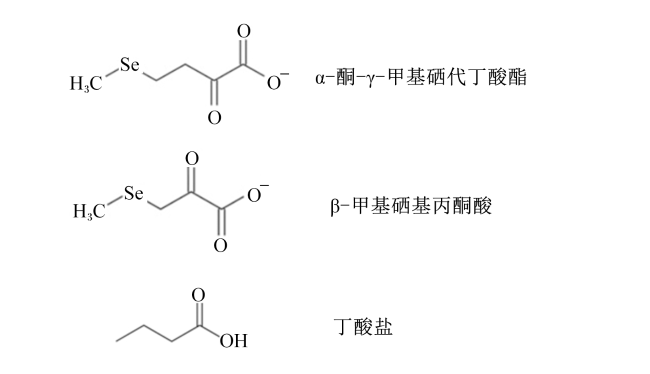
微量元素对组蛋白修饰的表观遗传调控研究主要集中在组蛋白甲基化和乙酰化。Narayan等[54]通过染色质免疫沉淀(chromatin immunoprecipitation,ChIP)测定和免疫印迹在体外和体内炎症模型中观察硒对组蛋白乙酰化的影响,结果发现,补充硒降低了环氧化酶-4(cyclooxygenase-4,COX-4)和肿瘤坏死因子(tumor necrosis factor,TNF)启动子中发生的组蛋白H4K16和K12的乙酰化,表明硒蛋白在促炎基因的表观遗传学调节中具有新的作用。Wang等[55]研究表明,补充硒掺杂碳量子点后,绵羊卵母细胞中H3K9me3和H3K27me3的表达水平显著上调,使其成熟卵母细胞组蛋白甲基化水平增强,提高卵母细胞发育潜力,此研究说明,硒通过组蛋白修饰可影响雌性动物的生殖功能。而硒主要通过调节组蛋白修饰酶的活性或干扰底物可用性影响组蛋白修饰,有研究证明,硒的代谢物β-甲基硒基丙酮酸和α-酮-γ-甲基硒代丁酸酯与HDAC抑制剂丁酸盐的化学结构相似(图2),从而起到抑制HDAC活性的作用[39,47]。Sun等[56]在缺锌母鸡的鸡胚中注射锌后发现锌增强了鸡胚肝脏MT4启动子的H3K9乙酰化,改善了鸡胚的发育。相反,微量元素也会通过组蛋白修饰损害动物机体正常的新陈代谢。有研究证明,小鼠脑中铁蓄积会降低海马体H3K9乙酰化水平,导致记忆障碍的发生,但给小鼠注射丁酸钠(HDAC抑制剂)即可缓解这种记忆障碍[57]。在铜离子(Cu2+)环境中应激的斑马鱼,其胚胎和幼鱼显示出H3K4甲基转移酶Smyd1b转录和H3K4me3蛋白表达的显著降低,使H3K4me3对骨骼肌细胞中mylpfa启动子结合富集也显著降低,从而影响其骨骼肌纤维的正常发育[58]
图2 α-酮-γ-甲基硒代丁酸酯、β-甲基硒基丙酮酸和丁酸盐结构式

Fig.2 Structural formulas of α-keto-γ-methylselenobutyrate, β-methylselenopyruvate and butyrate[39,47]

2.3 微量元素与非编码RNA

非编码RNA是基因组上不编码蛋白质但能通过调节转录和翻译后修饰在生物过程中发挥作用的RNA分子,包括微小RNA(microRNA,miRNA)、PIWI相互作用RNA(PIWI interacting RNA,piRNA)、小干扰RNA(small interfering RNA,siRNA)、核小RNA(small nuclear RNA,snRNA)、长链非编码RNA(long non-coding RNA,lncRNA)等[59-60]。其中研究最多的为miRNA,其5'端带磷酸基团,3'端带羟基基团,是长度约为22个核苷酸的内源性短RNA分子,能够通过抑制信使RNA(mRNA)翻译或促进mRNA降解来调节转录后水平的基因表达[61]。已经发现的几种调节miRNA作用机制有遗传多态性、miRNA启动子的甲基化、不对称的miRNA链选择、与RNA结合蛋白(RBP)或其他RNA的相互作用等[62]
微量元素影响动物健康的miRNA表观遗传调控机制研究最为丰富。研究发现,对成年早期的肥胖诱导大鼠和添加硒的肥胖诱导大鼠附睾脂肪和精子细胞中代谢、表观遗传参数进行测定,添加硒显著降低了氧化应激,使精子细胞发生至关重要的miRNA表达改变(miR-15b和miR-497),表明硒影响了miRNA表达,并对雄性动物的生殖健康及其后代产生积极影响[63]。Zhao等[64]研究发现,蛋氨酸硒通过影响MAPK信号传导,降低miR-155表达,上调肿瘤坏死因子受体作用因子3(tumor necrosis factor receptor-associated factor 3,TRAF3)表达,从而抑制脂多糖诱导的鸡肝坏死性凋亡。Yin等[65]的研究同样表明,硒能拮抗铅通过miR-16-5p下调磷脂酰肌醇-3-激酶调节亚基1(PiK3R1)和胰岛素样生长因子1受体(IGF1R)基因的表达,从而激活线粒体凋亡途径和死亡受体途径,铅暴露后中性粒细胞凋亡显著增加,添加硒后可防止这种反应所引起的鸡中性粒细胞凋亡。综合上述研究,硒通过影响miRNA表达可增强动物生殖健康及缓解细胞凋亡等。
除硒之外,其他的微量元素也会通过影响miRNA来调控动物健康。缺铁可诱导肿瘤细胞中miR-210的表达,但miR-210的过表达会下调转铁蛋白(transferrin1,TFR1)的表达,从而抑制铁的转运和吸收[66],说明铁存在反馈-负反馈的表观遗传调控机制。但铁过载使miR-3074-5p在MC3T3-E1细胞(小鼠胚胎成骨细胞前体细胞)中的表达显著增加,发现其通过直接靶向Smad4基因,在铁过载下的MC3T3-E1细胞中作为凋亡启动子而促进MC3T3-E1细胞的凋亡,从而促进动物骨质疏松症的发展[67]。而锌通过调节miR-3a-374p促进小胶质细胞自噬,诱导含NLR家族Pyrin域蛋白5(NLRP5)炎症小体失活,从而下调Xist基因表达,并产生对脊髓损伤的神经保护作用[68];锌缺乏还会诱导致癌miR-31上调,从而促进鳞状细胞癌的发生[69]。铜通过调控miRNA会对动物健康产生负面影响。MiR-1285通过抑制异柠檬酸脱氢酶2表达,加重了铜诱导的猪空肠上皮细胞线粒体功能障碍和线粒体自噬[70],铜摄入过量也会降低miR-455-3p水平,导致肉鸡干细胞发生自噬[71]。铜暴露使黄颡鱼肝组织的miRNA谱发生显著变化,这些变化的miRNA主要与代谢有关,且铜暴露抑制了miR-205的表达,从而诱导黄颡鱼脂质代谢改变[72]
综合上述所有研究可以发现,常见的几种微量元素通过多种表观遗传调控机制影响动物健康。聚焦动物生产,硒对动物健康的表观遗传调控研究有巨大潜力,其可提高哺乳动物卵母细胞发育潜力、增强雄性动物生殖健康等。而硒通过对抗氧化、抗炎通路等的调节,在一定程度上降低了饲养成本,同时提高动物组织中硒的沉积量,顺应市场需求。
而铁对影响动物健康的表观遗传调控机制研究尚少,但由于肿瘤增殖过程往往对铁的需求量较高,同时影响铁代谢过程相关基因的表达,所以对于铁的表观遗传调控机制研究主要集中在动物肿瘤方面[73-74]
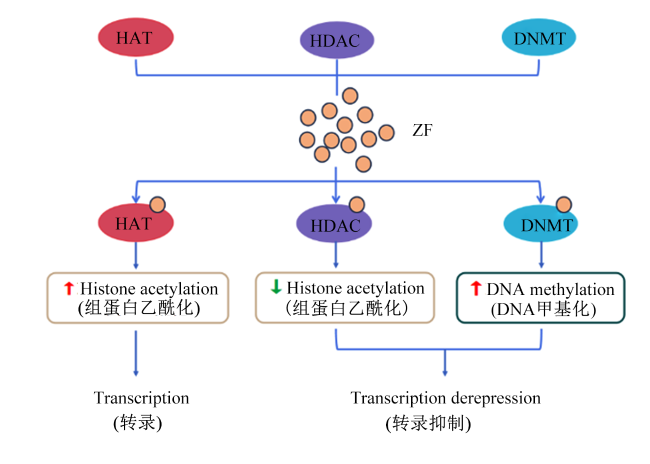
锌影响动物健康的表观遗传调控机制多数表现在锌作为各种表观遗传修饰酶发挥活性所必需的物质,如DNMT、HAT、HDAC等,它们都具有多个锌结合位点(图3)[75]。此外,也有研究发现,锌指(zinc finger,ZF)蛋白家族结合许多蛋白质,包括转录因子、染色质重塑因子和其他核酶,且ZF蛋白家族介导的基因表达调控主要通过在转录起始位点附近的作用以及通过与增强子结合影响全局基因表达的作用而实现[76],说明锌对动物全局基因的表观遗传调控会造成影响。未来对锌的表观遗传调控机制研究也许主要还是从表观遗传修饰酶入手,探究其影响动物健康的各种功能机制。
图3 锌的表观遗传调控机制

HAT:组蛋白乙酰转移酶 histone acetyltransferase;HDAC:组蛋白脱乙酰酶 histone deacetylase;DNMT:DNA甲基转移酶 DNA methyl transferase;ZF:锌指 zinc finger。

Fig.3 Epigenetic regulatory mechanisms of zinc[75]

关于铜影响动物健康的表观遗传调控机制研究较少,近些年表观遗传热度渐高,才陆续有研究发掘铜在动物机体内的功能与表观遗传调控之间的关系,且对铜通过表观遗传调控影响动物机体健康的研究多以铜过载为出发点,探究其与动物疾病发生的关系。因此,可以以铜提高动物生产力、降低动物疾病发生率为出发点,探究其表观遗传调控机制。

3 小结与展望

硒、铁、锌和铜4种常见微量元素在动物机体的生命活动中都起着重要的作用,已有许多相关研究对其进行了报道,但微量元素影响动物健康的表观遗传调控机制的研究还处在探索阶段。从已有的研究来看,微量元素可以通过表观遗传调控对动物疾病进行调节或影响动物生理功能。未来,需要进一步探究微量元素在调控动物疾病发生,尤其是疾病发生关键期的调控作用及其机制。通过对微量元素影响动物健康的表观遗传调控机制的研究,不仅使我们对微量元素的生理功能有更深的理解,更为动物疾病防治、动物饲养等提供了新的思路。将微量元素用于动物疾病防控,可以在一定程度上减少药物滥用,且通过表观遗传将某些表型传递给下一代,使饲养动物的成本减少、动物产品的质量提高。因此,对微量元素影响动物健康的表观遗传调控机制探究意义重大,其可能成为提高动物生产力的有效措施之一。
[1]
毛娅. 动物饲料中微量元素分析研究[D]. 硕士学位论文. 绵阳: 西南科技大学, 2019.

MAO Y. Analysis of trace elements in animal feed[D]. Master’s Thesis. Mianyang: Southwest University of Science and Technology, 2019. (in Chinese)

[2]
WOLFFE A P, MATZKE M A. Epigenetics:regulation through repression[J]. Science, 1999, 286(5439):481-486.

[3]
WU Y L, LIN Z J, LI C C, et al. Epigenetic regulation in metabolic diseases:mechanisms and advances in clinical study[J]. Signal Transduction and Targeted Therapy, 2023, 8(1):98.

[4]
NACEV B A, JONES K B, INTLEKOFER A M, et al. The epigenomics of sarcoma[J]. Nature Reviews Cancer, 2020, 20(10):608-623.

DOI PMID

[5]
LEI L, MU J, ZHENG Y C, et al. Selenium deficiency-induced oxidative stress causes myocardial injury in calves by activating inflammation,apoptosis,and necroptosis[J]. Antioxidants, 2023, 12(2):229.

[6]
HE Y J, PENG L, ZHAO X C, et al. Selenium deficiency induces inflammatory response and decreased antimicrobial peptide expression in chicken jejunum through oxidative stress[J]. Biological Trace Element Research, 2023, 201(7):3461-3473.

[7]
XING L, ZHANG R X, GONG R X, et al. Ameliorative effects of dietary selenium against cadmium toxicity on production performance and egg quality in laying hens[J]. Ecotoxicology and Environmental Safety, 2022,248:114317.

[8]
BAO B W, KANG Z B, ZHANG Y, et al. Selenium deficiency leads to reduced skeletal muscle cell differentiation by oxidative stress in mice[J]. Biological Trace Element Research, 2023, 201(4):1878-1887.

[9]
LI L L, LIU Z, QUAN J Q, et al. Dietary nano-selenium alleviates heat stress-induced intestinal damage through affecting intestinal antioxidant capacity and microbiota in rainbow trout (Oncorhynchus mykiss)[J]. Fish & Shellfish Immunology, 2023,133:108537.

[10]
PEREIRA M A N, DA SILVA JUNIOR E C, DAYSE DA SILVA I L, et al. Antitumor effect of selenium-rich Brazil nuts and selenomethionine dietary supplementation on pre-existing 4T1 mammary tumor growth in mice[J]. PLoS One, 2023, 18(1):e0278088.

[11]
ZHANG X T, HONG R Q, BEI L X, et al. Selenium binding protein 1 inhibits tumor angiogenesis in colorectal cancers by blocking the Delta-like ligand 4/Notch1 signaling pathway[J]. Translational Oncology, 2022,18:101365.

[12]
DONG Z L, WAN D, YANG H S, et al. Effects of iron deficiency on serum metabolome,hepatic histology,and function in neonatal piglets[J]. Animals, 2020, 10(8):1353.

[13]
DONG Z L, ZHANG D M, WU X, et al. Ferrous bisglycinate supplementation modulates intestinal antioxidant capacity via the AMPK/FOXO pathway and reconstitutes gut microbiota and bile acid profiles in pigs[J]. Journal of Agricultural and Food Chemistry, 2022, 70(16):4942-4951.

DOI PMID

[14]
NIRMALKAR R, SURESH E, FELIX N, et al. Synthesis of iron nanoparticles using Sargassum wightii extract and its impact on serum biochemical profile and growth response of etroplus suratensis juveniles[J]. Biological Trace Element Research, 2023, 201(3):1451-1458.

[15]
LI H H, KAZMI J S, LEE S, et al. Dietary iron restriction protects against vaso-occlusion and organ damage in murine sickle cell disease[J]. Blood, 2023, 141(2):194-199.

[16]
VISITCHANAKUN P, PANPETCH W, SAISORN W, et al. Increased susceptibility to dextran sulfate-induced mucositis of iron-overload β-thalassemia mice,another endogenous cause of septicemia in thalassemia[J]. Clinical Science, 2021, 135(12):1467-1486.

[17]
CHEN Y Y, CHEN S, OK K, et al. Zinc dynamics regulate early ovarian follicle development[J]. The Journal of Biological Chemistry, 2023, 299(1):102731.

[18]
LAI X L, XIONG W J, LI L S, et al. Zinc deficiency compromises the maturational competence of porcine oocyte by inducing mitophagy and apoptosis[J]. Ecotoxicology and Environmental Safety, 2023,252:114593.

[19]
VAN BÖMMEL-WEGMANN S, ZENTEK J, GEHLEN H, et al. Effects of dietary zinc chloride hydroxide and zinc methionine on the immune system and blood profile of healthy adult horses and ponies[J]. Archives of Animal Nutrition-Archiv Fur Tierernahrung, 2023, 77(1):17-41.

[20]
WANG L L, WANG Z Y, LUO P N, et al. Dietary zinc glycine supplementation improves tibia quality of meat ducks by modulating the intestinal barrier and bone resorption[J]. Biological Trace Element Research, 2023, 201(2):888-903.

[21]
DAVIS E W 2ND, WONG C P, ARNOLD H K, et al. Age and micronutrient effects on the microbiome in a mouse model of zinc depletion and supplementation[J]. PLoS One, 2022, 17(12):e0275352.

[22]
DONG L P, LI Y M, ZHANG Y H, et al. Effects of organic zinc on production performance,meat quality,apparent nutrient digestibility and gut microbiota of broilers fed low-protein diets[J]. Scientific Reports, 2023, 13(1):10803.

[23]
NIKNIA A D, VAKILI R, TAHMASBI A M. Zinc supplementation improves antioxidant status,and organic zinc is more efficient than inorganic zinc in improving the bone strength of aged laying hens[J]. Veterinary Medicine and Science, 2022, 8(5):2040-2049.

[24]
HUO Y H, MA F Y, LI T Y, et al. Exposure to copper activates mitophagy and endoplasmic reticulum stress-mediated apoptosis in chicken (Gallus gallus) cerebrum[J]. Environmental Toxicology, 2023, 38(2):392-402.

[25]
LI X R, BAI Y M, HUO H H, et al. Long-term copper exposure induces mitochondrial dynamics disorder and mitophagy in the cerebrum of pigs[J]. Biological Trace Element Research, 2023, 201(3):1197-1204.

[26]
KAHLSON M A, DIXON S J. Copper-induced cell death[J]. Science, 2022, 375(6586):1231-1232.

DOI PMID

[27]
ZHANG Y, ZHOU Q, LU L, et al. Copper induces cognitive impairment in mice via modulation of cuproptosis and CREB signaling[J]. Nutrients, 2023, 15(4):972.

[28]
LI C S, WU Y, LI H T, et al. Lipid-related metabolism during zebrafish embryogenesis under unbalanced copper homeostasis[J]. Fish Physiology and Biochemistry, 2022, 48(6):1571-1586.

DOI PMID

[29]
CENDROWSKA-PINKOSZ M, OSTROWSKA-LESKO M, OGNIK K, et al. Dietary copper deficiency leads to changes in gene expression indicating an increased demand for NADH in the prefrontal cortex of the rat’s brain[J]. International Journal of Molecular Sciences, 2022, 23(12):6706.

[30]
CHOI H, OH D, KIM M, et al. Copper deficiency affects the developmental competence of porcine oocytes matured in vitro[J]. Frontiers in Cell and Developmental Biology, 2022,10:993030.

[31]
OLIVARES R W I, POSTMA G C, SCHAPIRA A, et al. Biochemical and morphological alterations in hearts of copper-deficient bovines[J]. Biological Trace Element Research, 2019, 189(2):447-455.

DOI PMID

[32]
YU D, ZHANG Z W, YAO H D, et al. The role of selenoprotein W in inflammatory injury in chicken immune tissues and cultured splenic lymphocyte[J]. BioMetals, 2015, 28(1):75-87.

DOI PMID

[33]
WU Q, YAO H D, TAN S R, et al. Possible correlation of selenoprotein W with inflammation factors in chicken skeletal muscles[J]. Biological Trace Element Research, 2014, 161(2):167-172.

DOI PMID

[34]
BŁAŻEJAK-GRABOWSKA J, MILEWSKI S, ZABEK K, et al. Effect of long-acting selenium preparation on health and productivity of sheep[J]. Animals, 2022, 12(2):140.

[35]
MOORE L D, LE T, FAN G P. DNA methylation and its basic function[J]. Neuropsychopharmacology, 2013, 38(1):23-38.

DOI PMID

[36]
FELTUS F A, LEE E K, COSTELLO J F, et al. DNA motifs associated with aberrant CpG island methylation[J]. Genomics, 2006, 87(5):572-579.

PMID

[37]
LYKO F. The DNA methyltransferase family:a versatile toolkit for epigenetic regulation[J]. Nature Reviews Genetics, 2018, 19(2):81-92.

[38]
WISCHHUSEN P, SAITO T, HERAUD C, et al. Parental selenium nutrition affects the one-carbon metabolism and the hepatic DNA methylation pattern of rainbow trout (Oncorhynchus mykiss) in the progeny[J]. Life, 2020, 10(8):121.

[39]
SPECKMANN B, GRUNE T. Epigenetic effects of selenium and their implications for health[J]. Epigenetics, 2015, 10(3):179-190.

DOI PMID

[40]
MÜLLER S, SINDIKUBWABO F, CAÑEQUE T, et al. CD44 regulates epigenetic plasticity by mediating iron endocytosis[J]. Nature Chemistry, 2020, 12(10):929-938.

[41]
YE Q, TRIVEDI M, ZHANG Y T, et al. Brain iron loading impairs DNA methylation and alters GABAergic function in mice[J]. FASEB Journal, 2019, 33(2):2460-2471.

DOI PMID

[42]
YAMAMOTO M, TANAKA H, TOKI Y, et al. Iron-induced epigenetic abnormalities of mouse bone marrow through aberrant activation of aconitase and isocitrate dehydrogenase[J]. International Journal of Hematology, 2016, 104(4):491-501.

DOI PMID

[43]
HE C C, WANG Z Y, TIAN K, et al. DNA methylation mechanism of intracellular zinc deficiency-induced injury in primary hippocampal neurons in the rat brain[J]. Nutritional Neuroscience, 2018, 21(7):478-486.

[44]
KHADIVI F, RAZAVI S, HASHEMI F. Protective effects of zinc on rat sperm chromatin integrity involvement:DNA methylation,DNA fragmentation,ubiquitination and protamination after bleomycin etoposide and cis-platin treatment[J]. Theriogenology, 2020,142:177-183.

[45]
XU Y H, XU Y C, HOGSTRAND C, et al. Waterborne copper exposure up-regulated lipid deposition through the methylation of GRP78 and PGC1α of grass carp Ctenopharyngodon idella[J]. Ecotoxicology and Environmental Safety, 2020,205:111089.

[46]
TAI Z P, GUAN P P, ZHANG T, et al. Effects of parental environmental copper stress on offspring development:DNA methylation modification and responses of differentially methylated region-related genes in transcriptional expression[J]. Journal of Hazardous Materials, 2022, 424(Pt C):127600.

[47]
GENCHI G, LAURIA G, CATALANO A, et al. Biological activity of selenium and its impact on human health[J]. International Journal of Molecular Sciences, 2023, 24(3):2633.

[48]
ZHANG Y J, SUN Z X, JIA J Q, et al. Overview of histone modification[J]. Advances in Experimental Medicine and Biology, 2021,1283:1-16.

[49]
STRAHL B D, ALLIS C D. The language of covalent histone modifications[J]. Nature, 2000, 403(6765):41-45.

[50]
STOLL S, WANG C, QIU H Y. DNA methylation and histone modification in hypertension[J]. International Journal of Molecular Sciences, 2018, 19(4):1174.

[51]
CHOU K Y, LEE J Y, KIM K B, et al. Histone modification in Saccharomyces cerevisiae:a review of the current status[J]. Computational and Structural Biotechnology Journal, 2023,21:1843-1850.

[52]
LIN Y Y, QIU T, WEI G F, et al. Role of histone post-translational modifications in inflammatory diseases[J]. Frontiers in Immunology, 2022,13:852272.

[53]
CHEN Y Y, LIU S Y, WU L L, et al. Epigenetic regulation of chemokine (CC-motif) ligand 2 in inflammatory diseases[J]. Cell Proliferation, 2023, 56(7):e13428.

[54]
NARAYAN V, RAVINDRA K C, LIAO C, et al. Epigenetic regulation of inflammatory gene expression in macrophages by selenium[J]. The Journal of Nutritional Biochemistry, 2015, 26(2):138-145.

[55]
WANG M Q, REN J Y, LIU Z P, et al. Beneficial effect of selenium doped carbon quantum dots supplementation on the in vitro development competence of ovine oocytes[J]. International Journal of Nanomedicine, 2022,17:2907-2924.

[56]
SUN X M, LU L, LIAO X D, et al. Effect of in ovo zinc injection on the embryonic development and epigenetics-related indices of zinc-deprived broiler breeder eggs[J]. Biological Trace Element Research, 2018, 185(2):456-464.

[57]
DA SILVA P F, GARCIA V A, DORNELLES A D S, et al. Memory impairment induced by brain iron overload is accompanied by reduced H3K9 acetylation and ameliorated by sodium butyrate[J]. Neuroscience, 2012,200:42-49.

[58]
JIN X D, LIU W Y, MIAO J, et al. Copper ions impair zebrafish skeletal myofibrillogenesis via epigenetic regulation[J]. FASEB Journal, 2021, 35(7):e21686.

[59]
曾文惠, 曾庆节, 殷超, 等. 家禽营养表观遗传学研究进展[J]. 动物营养学报, 2022, 34(12):7546-7554.

DOI

ZENG W H, ZENG Q J, YIN C, et al. Advances in poultry nutrition epigenetics[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7546-7554. (in Chinese)

DOI

[60]
WU Y Y, KUO H C. Functional roles and networks of non-coding RNAs in the pathogenesis of neurodegenerative diseases[J]. Journal of Biomedical Science, 2020, 27(1):49.

[61]
QIN L Q, ZHANG Y M, WAN C Y, et al. MiR-196-5p involvement in selenium deficiency-induced immune damage via targeting of NFκBIA in the chicken trachea[J]. Metallomics, 2020, 12(11):1679-1692.

[62]
CORREIA DE SOUSA M, GJORGJIEVA M, DOLICKA D, et al. Deciphering miRNAs’ action through miRNA editing[J]. International Journal of Molecular Sciences, 2019, 20(24):6249.

[63]
DE FREITAS LAIBER PASCOAL G, NOVAES G M, DE PAULA SOBRINHO M, et al. Selenium supplementation during puberty and young adulthood mitigates obesity-induced metabolic,cellular and epigenetic alterations in male rat physiology[J]. Antioxidants, 2022, 11(5):895.

[64]
ZHAO Z R, ZHANG Q J, XU C J, et al. Methionine selenium antagonizes LPS-induced necroptosis in the chicken liver via the miR-155/TRAF3/MAPK axis[J]. Journal of Cellular Physiology, 2021, 236(5):4024-4035.

DOI PMID

[65]
YIN K, CUI Y, SUN T, et al. Antagonistic effect of selenium on lead-induced neutrophil apoptosis in chickens via miR-16-5p targeting of PiK3R1 and IGF1R[J]. Chemosphere, 2020,246:125794.

[66]
YOSHIOKA Y, KOSAKA N, OCHIYA T, et al. Micromanaging iron homeostasis:hypoxia-inducible micro-RNA-210 suppresses iron homeostasis-related proteins[J]. The Journal of Biological Chemistry, 2012, 287(41):34110-34119.

[67]
FENG Y, HE P Y, KONG W D, et al. Apoptosis-promoting properties of miR-3074-5p in MC3T3-E1 cells under iron overload conditions[J]. Cellular & Molecular Biology Letters, 2021, 26(1):37.

[68]
ZHAO X G, SUN J F, YUAN Y J, et al. Zinc promotes microglial autophagy through NLRP3 inflammasome inactivation via XIST/miR-374a-5p axis in spinal cord injury[J]. Neurochemical Research, 2022, 47(2):372-381.

[69]
FONG L Y, TACCIOLI C, PALAMARCHUK A, et al. Abrogation of esophageal carcinoma development in miR-31 knockout rats[J]. Proceedings of the National Academy of Sciences of the United States of America, 2020, 117(11):6075-6085.

DOI PMID

[70]
LIAO J Z, LI Q W, HU Z Y, et al. Mitochondrial miR-1285 regulates copper-induced mitochondrial dysfunction and mitophagy by impairing IDH2 in pig jejunal epithelial cells[J]. Journal of Hazardous Materials, 2022,422:126899.

[71]
LEI C Q, HUO Y H, MA F Y, et al. Long-term copper exposure caused hepatocytes autophagy in broiler via miR-455-3p-OXSR1 axis[J]. Chemico-Biological Interactions, 2023,369:110256.

[72]
CUI H Y, CHEN Q L, TAN X Y, et al. MiR-205 mediated Cu-induced lipid accumulation in yellow catfish Pelteobagrus fulvidraco[J]. International Journal of Molecular Sciences, 2018, 19(10):2980.

[73]
LU Y J, CHAN Y T, TAN H Y, et al. Epigenetic regulation of ferroptosis via ETS1/miR-23a-3p/ACSL4 axis mediates sorafenib resistance in human hepatocellular carcinoma[J]. Journal of Experimental & Clinical Cancer Research, 2022, 41(1):3.

[74]
YE J, WANG Z G, CHEN X Z, et al. YTHDF1-enhanced iron metabolism depends on TFRC m6A methylation[J]. Theranostics, 2020, 10(26):12072-12089.

[75]
BRITO S, LEE M G, BIN B H, et al. Zinc and its transporters in epigenetics[J]. Molecules and Cells, 2020, 43(4):323-330.

DOI PMID

[76]
HATAYAMA M, ARUGA J. Role of Zic family proteins in transcriptional regulation and chromatin remodeling[J]. Advances in Experimental Medicine and Biology, 2018,1046:353-380.

文章导航

/