研究论文

亮氨酸对哺乳期湖羊羔羊小肠发育的影响

  • 魏智远 , 1, 2 ,
  • 蔡奕涛 1, 2, * ,
  • 孙梦珍 1, 2 ,
  • 纪雯雯 1, 2 ,
  • 王翀 1, 2 ,
  • 茅慧玲 , 1, 2, **
展开
  • 1 浙江农林大学动物科技学院、动物医学院,杭州 311300
  • 2 浙江省畜禽绿色生态健康养殖应用技术研究重点实验室,浙江 311300
**茅慧玲,副教授,硕士生导师,E-mail:

*同等贡献作者

魏智远(2004—),男,江苏淮安人,本科生,从事动物营养研究。E-mail:

Copy editor: 武海龙

收稿日期: 2023-12-15

  网络出版日期: 2024-06-07

基金资助

国家自然科学基金(31902179)

浙江省“三农九方”科技协作计划(2022SNJF054)

Effects of Leucine on Small intestine Development of Hu Lambs in Suckling Period

  • WEI Zhiyuan , 1, 2 ,
  • CAI Yitao 1, 2 ,
  • SUN Mengzhen 1, 2 ,
  • JI Wenwen 1, 2 ,
  • WANG Chong 1, 2 ,
  • MAO Huiling , 1, 2, **
Expand
  • 1 College of Animal Science and Technology, College of Veterinary Medince, Zhejiang A&F University, Hangzhou 311300, China
  • 2 Key Laboratory of Applied Technology on Green-Eco-Health Animal Husbandry of Zhejiang Province, Zhejiang 311300, China
**associate professor, E-mail:

*Contributed equally

Received date: 2023-12-15

  Online published: 2024-06-07

摘要

本试验旨在研究亮氨酸对哺乳期湖羊羔羊小肠组织形态、屏障功能及菌群组成的影响。选取30只体重[(3.60±0.37) kg]相近的5日龄湖羊羔羊,随机分成对照组(Con组,未添加亮氨酸)和亮氨酸组(Leu组,添加0.66 g/d亮氨酸),每组5个重复,每个重复3只羔羊。试验期25 d。结果显示:1)与Con组相比,Leu组的空肠绒毛高度有增加的趋势(P=0.073),空肠隐窝深度显著降低(P<0.05),空肠绒毛高度/隐窝深度显著增加(P<0.05);回肠绒毛高度显著增加(P<0.05)。2)与Con组相比,Leu组的空肠上皮超氧化物歧化酶(SOD)、过氧化氢酶(CAT)和谷胱甘肽过氧化物(GSH-Px)的基因相对表达量均显著升高(P<0.05)。3)与Con组相比,Leu组的空肠上皮咬合蛋白(Occludin)和闭锁小带蛋白-1(ZO-1)的基因和蛋白相对表达量均显著或极显著升高(P<0.05或P<0.01)。4)与Con组相比,Leu组的空肠布雷德菌属(Bulleidia)的相对丰度有增加的趋势(P=0.076),而空肠颤螺旋菌属(Oscillospira)和链球菌属(Streptococcus)的相对丰度显著降低(P<0.05)。5)相关性分析结果显示,空肠Bulleidia的相对丰度与空肠ZO-1的基因相对表达量呈极显著正相关(P<0.01),空肠Streptococcus的相对丰度与空肠隐窝深度呈极显著正相关(P<0.01)。由此可见,添加亮氨酸可增强湖羊羔羊空肠抗氧化能力,调控肠道上皮紧密连接蛋白的表达,改变空肠菌群结构,从而促进哺乳期羔羊小肠发育。

本文引用格式

魏智远 , 蔡奕涛 , 孙梦珍 , 纪雯雯 , 王翀 , 茅慧玲 . 亮氨酸对哺乳期湖羊羔羊小肠发育的影响[J]. 动物营养学报, 2024 , 36(6) : 3833 -3844 . DOI: 10.12418/CJAN2024.329

Abstract

This experiment was conducted to investigate the effects of leucine on the morphology, barrier function and microflora composition in small intestine of Hu lambs in suckling period. Thirty 5-day-old Hu lambs with similar body weight [(3.60±0.37) kg] were randomly assigned to the control group (Con group, without leucine supplementation) and leucine group (Leu group, supplemented with 0.66 g/d leucine), each group contained 5 replicates and 3 lambs in each replicate. The experiment lasted for 25 days. The results showed as follows: 1) compared with the Con group, the jejunal villus length of the Leu group tended to increase (P=0.073), the jejunal crypt depth was significantly decreased (P<0.05), and the jejunal villus length/crypt depth was significantly increased (P<0.05); the ileal villus length was significantly increased (P<0.05). 2) Compared with the Con group, the gene relative expression levels of superoxide dismutase (SOD), catalase (CAT) and glutathione peroxidase (GSH-Px) in jejunum of the Leu group were significantly increased (P<0.05). 3) Compared with the Con group, The gene and protein relative expression levels of Occludin and zonula occluden-1 (ZO-1) in jejunum of the Leu group were significantly increased (P<0.05). 4) Compared with the Con group, the relative abundance of Bulleidia in jejunum of the Leu group tended to increase (P=0.076), while the relative abundances of Oscillospira and Streptococcus in jejunum were significantly decreased (P<0.05). 5) The correlation analysis results showed that the relative abundance of Bulleidia in jejunum was positively correlated with the gene relative expression level of ZO-1 in jejunum (P<0.01), and relative abundance of Streptococcus in jejunum was positively correlated with the jejunal crypt depth (P<0.01). In conclusion, the leucine supplementation can enhance the jejunal antioxidant capacity of Hu lambs, regulate the expression of intestinal epithelial tight junction protein, and change the jejunal microflora structure, so as to promote the small intestine development of lambs in suckling period.

瘤胃是反刍动物消化纤维饲料的主要场所,小肠则主要负责消化吸收营养物质[1],瘤胃和小肠的及时发育对反刍动物非常重要。在断奶前阶段,瘤胃尚未发育完全[2],因此小肠是反刍前期犊牛和羔羊消化液体饲料和吸收营养物质的主要部位[3]。研究表明,促进小肠早期发育对幼龄反刍动物的健康生长有着重要意义[4-5]
亮氨酸作为动物的必需氨基酸,除了能参与哺乳动物蛋白质合成和脂质分解外[6-7],还可促进哺乳仔猪小肠发育,提高消化吸收能力[8]。黄强等[9]研究发现,饲粮补充L-亮氨酸可以有效缓解宫内发育迟缓仔猪肠道黏膜损伤,改善仔猪肠道的免疫功能。本课题组前期研究表明,补充亮氨酸可以提高早期断奶羔羊的机体抗氧化能力和免疫功能,有助于维持羔羊的健康状态[10]。然而,亮氨酸对羔羊小肠组织形态、屏障功能以及菌群等影响尚未见报道。因此,本试验旨在探讨亮氨酸对哺乳期湖羊羔羊小肠组织形态、屏障功能及菌群组成的影响,以期为亮氨酸应用于反刍生产提供理论依据。

1 材料与方法

1.1 试验设计

选取30只体重[(3.60±0.37) kg]相近的5日龄湖羊羔羊,随机分成对照组(Con组,未添加亮氨酸)和亮氨酸组(Leu组,添加0.66 g/d亮氨酸)2组,每组5个重复,每个重复3只羔羊。
羔羊饲喂代乳粉,每天饲喂3次;经5 d适应环境和代乳粉后,于10日龄开始正式试验,饲喂代乳粉的同时补喂开食料及羊草,自由采食。亮氨酸(白色粉末状,易溶于水,有效含量 99.8%)溶解在代乳粉中进行饲喂。亮氨酸的添加量根据母羊乳中亮氨酸的比例[11-12]以及前期预试验结果(饲喂高剂量1.32 g/d的亮氨酸对10~30日龄羔羊生长性能有副作用)确定。代乳粉的饲喂量为每天780 mL/只(根据适应期代乳粉的采食量确定),为促进开食料和羊草的采食,代乳粉每天减少30 mL/只至210 mL/只时,维持此饲喂量不变。试验期间开食料及羊草的采食量每10 d测定1次,同时于晨饲前记录体重。

1.2 样品采集

于30日龄时,每组每个重复选取1只接近组内平均体重羔羊,晨饲后2 h进行屠宰,取十二指肠、空肠和回肠中段组织样品固定于4%的多聚甲醛中,待测定小肠组织形态;刮取空肠上皮样品于2 mL冻存管并保存于-80 ℃,待测定抗氧化酶基因、紧密连接蛋白基因和蛋白的相对表达量;收集空肠内容物样品于2 mL冻存管并保存于-80 ℃,用于提取DNA,待测定空肠菌群组成。

1.3 测定方法

1.3.1 小肠组织形态

小肠组织样品经梯度酒精脱水(50%、70%、80%、95%和100%酒精脱水30 min,100%酒精脱水15 min),脱水后组织转移至二甲苯透明2 h后石蜡包埋,切成5 μm厚的切片,进行苏木精-伊红染色。光学显微镜下的每张切片随机选10个典型视野,使用Motic Image Plus 2.0软件测量绒毛高度和隐窝深度,并计算绒毛高度/隐窝深度。

1.3.2 空肠上皮抗氧化酶和紧密连接蛋白的基因表达

使用RNApure Total RNA Kit(北京艾德莱生物科技有限公司)提取总RNA;NanoDrop-2000核酸蛋白检测仪(Thermo Fishier公司,美国)测定RNA浓度;ReverTra Ace qPCR RT Kit试剂盒(Toyobo公司,日本)反转录为cDNA。荧光定量PCR仪(MX3000P,Agilent Stratagene公司,美国)测定相关基因相对表达水平。PCR程序为:95 ℃ 1 min预变性;95 ℃ 30 s,58 ℃ 1 min,重复40个循环。β-肌动蛋白(β-actin)为内参,引物序列见表1
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequence (5'—3')
产物大小
Product size/bp
超氧化物歧化酶
SOD
F:TTCAATAAGGAGCAGGGACG
R:CAGTGTAAGGCTGACGGTTT
86
过氧化氢酶
CAT
F:AGATACTCCAAGGCGAAGGTG
R:AAAGCCACGAGGGTCACGAAC
120
谷胱甘肽过氧化物酶
GSH-Px
F:GCGGGAGCAGGACTTCTACGA
R:CCCGATAGTGCTGGTCTGTGAA
148
闭锁小带蛋白-1
ZO-1
F:CGACCAGATCCTCAGGGTAA
R:AATCACCCACATCGGATTCT
161
咬合蛋白
Occludin
F:GTTCGACCAATGCTCTCTCAG
R:CAGCTCCCATTAAGGTTCCA
196
β-肌动蛋白
β-actin
F:TCCGTGACATCAAGGAGAAGC
R:CCGTGTTGGCGTAGAGGT
266

1.3.3 空肠上皮紧密连接蛋白的蛋白表达

采用Western blot法测定,操作方法参考Cui等[13],使用十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离目的蛋白,转移至硝酸纤维素膜(PVDF)上,室温封闭 1 h,一抗(1∶1 000,Abcam公司,美国)4 ℃孵育过夜,漂洗PVDF膜,二抗(1∶5 000,武汉爱博泰克生物科技有限公司)室温孵育 1 h,加入化学发光底物后,将PVDF膜置于凝胶成像系统中,曝光采集图像,并采用Image J软件计算2组灰度值,用于数据分析。

1.3.4 空肠内容物16S rRNA测序分析

采用E.Z.N.A.® Soil DNA Kit试剂盒(Omega Bio-Tek公司,美国)从空肠内容物中提取DNA。利用引物338F(5'-ACTCCTACGGGAGGCAGCA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')扩增16S rRNA基因的V3~V4可变区。扩增子经纯化定量后在Illumina MiSeq平台进行双端(paired-end)测序(上海派森诺生物科技有限公司)。
采用DADA2软件对原始数据进行质量过滤、去噪、去重、拼接、去嵌合体。利用Greengenes数据库(gg_13)对扩增子序列变异(ASV)进行聚类。通过QIIME2软件计算Alpha多样性指数(Chao1、Faith_PD、Shannon、Simpson和Pielou_e指数);主坐标分析(PCoA)采用Unweighted UniFrac方法计算距离,R软件绘图;利用PICRUSt基于16S rRNA基因数据预测空肠内容物微生物区系的功能,并用R软件识别组间差异显著的代谢途径;运用Spearman等级相关非参数检验对空肠微生物与空肠组织相关基因进行相关性分析。原始数据提交到美国生物技术信息中心(NCBI),序列号为PRJNA1064609。

1.4 数据统计分析

试验数据采用Excel 2010进行整理,结果采用SAS 8.0统计软件进行统计分析。正态分布数据包括小肠组织形态、空肠抗氧化酶基因相对表达量、空肠紧密连接蛋白基因和蛋白相对表达量,采用t检验进行分析;不符合正态分布的微生物数据则采用Kruskal-Wallis非参数检验;采用Adonis方法对组间差异进行统计分析。结果以平均值和均值标准误(SEM)表示,P<0.01表示差异极显著,P<0.05表示差异显著,0.05<P<0.10表示差异有趋势。

2 结果

2.1 亮氨酸对哺乳期羔羊小肠组织形态的影响

表2可见,2组之间十二指肠绒毛高度、隐窝深度和绒毛高度/隐窝深度无显著差异(P>0.05)。与Con组相比,Leu组的空肠绒毛高度有增加的趋势(P=0.073),空肠隐窝深度显著降低(P<0.05),空肠绒毛高度/隐窝深度显著增加(P<0.05)。与Con组相比,Leu组的回肠绒毛高度显著增加(P<0.05),回肠隐窝深度和绒毛高度/隐窝深度无显著差异(P>0.05)。
表2 亮氨酸对哺乳期羔羊小肠组织形态的影响

Table 2 Effects of leucine on intestinal morphology of lambs in suckling period

项目
Items
组别 Groups SEM P
P-value
Con Leu


十二指肠
Duodenum
绒毛高度 Villus height/μm 609 706 39.10 0.239
隐窝深度 Crypt depth/μm 151 129 12.60 0.402
绒毛高度/隐窝深度 VH/CD 4.61 5.46 0.56 0.512


空肠
Jejunum
绒毛高度 Villus height/μm 541 597 21.60 0.073
隐窝深度 Crypt depth/μm 139a 107b 9.15 0.049
绒毛高度/隐窝深度 VH/CD 3.89b 5.58a 0.57 0.021


回肠
Ileum
绒毛高度 Villus height/μm 512b 591a 20.20 0.048
隐窝深度 Crypt depth/μm 127 107 11.60 0.362
绒毛高度/隐窝深度 VH/CD 4.06 5.18 0.46 0.275

同行数据肩标相同或无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with the same or no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 亮氨酸对哺乳期羔羊空肠上皮抗氧化酶基因表达的影响

表3可见,与Con组相比,Leu组的空肠上皮超氧化物歧化酶(SOD)、过氧化氢酶(CAT)和谷胱甘肽过氧化物(GSH-Px)的基因相对表达量均显著升高(P<0.05)。
表3 亮氨酸对哺乳期羔羊空肠上皮抗氧化酶基因表达的影响

Table 2 Effects of leucine on gene expression of antioxidant enzyme in jejunal epithelium of lambs in suckling period

项目
Items
组别 Groups SEM P
P-value
Con Leu
超氧化物歧化酶 SOD 0.60b 1.43a 0.239 0.049
过氧化氢酶 CAT 1.09b 1.59a 0.138 0.042
谷胱甘肽过氧化物酶 GSH-Px 0.005b 0.024a 0.005 0.035

2.3 亮氨酸对哺乳期羔羊空肠上皮紧密连接蛋白基因和蛋白表达的影响

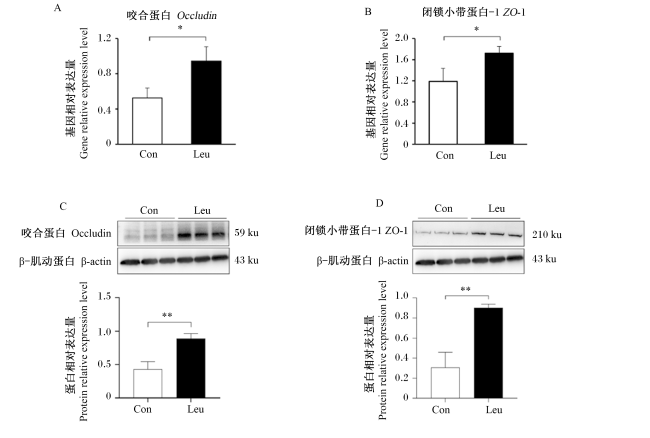
图1可见,与Con组相比,Leu组的空肠上皮咬合蛋白(Occludin)和闭锁小带蛋白-1(ZO-1)的基因和蛋白相对表达量均显著或极显著升高(P<0.05或P<0.01)。
图1 亮氨酸对哺乳期羔羊空肠上皮紧密连接蛋白基因和蛋白表达的影响

A:咬合蛋白的基因表达 Occludin gene expression;B:闭锁小带蛋白-1的基因表达 ZO-1 gene expression;C:咬合蛋白的蛋白表达 Occludin protein expression;D:闭锁小带蛋白-1的蛋白表达 ZO-1 protein expression。

Con:对照组 control group;Leu:亮氨酸组 leucine group;*:差异显著(P<0.05) significant difference (P<0.05);**:差异极显著(P<0.01) extremely significant difference (P<0.01)。下图同 the same as below。

Fig.1 Effects of leucine on gene and protein expression of tight junction protein in jejunal epithelium of lambs in suckling period

2.4 亮氨酸对哺乳期羔羊空肠菌群组成的影响

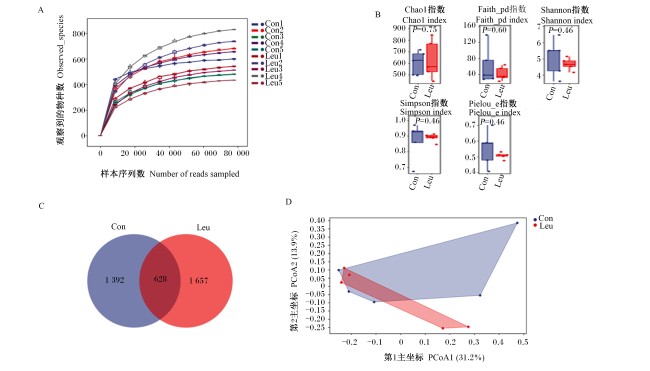
对10个空肠样品进行16S rRNA基因测序,下机序列经拼接、优化、质控后共得到931 867条优质序列,平均每个样品(93 187±9 243)条,共获得3 677个ASV。由图2-A可见,稀释曲线表明,测序深度能够准确反映湖羊空肠微生物组成。由图2-B可见,Alpha多样性分析表明,2组羔羊空肠内容物中菌群的Chao1、Faith_pd、Shannon、Simpson和Pielou_e指数均无显著差异(P>0.05)。由图2-C可见,韦恩图分析表明,2组ASV数共有628个,Con和Leu组特有的ASV数分别为1 392和1 657个。由图2-D可见,第1主坐标(PCoA1)对样品差异的贡献率为31.2%;第2主坐标(PCoA2)对样品差异的贡献率为13.9%。Adonis检验结果显示Con组和Leu组样本不存在显著差异(P=0.705)。
图2 羔羊空肠微生物菌群组成和结构分析

A:稀释曲线 rarefaction curves;B:Alpha多样性指数 alpha diversity;C:韦恩图 Venn diagram;D:主坐标分析 PCoA。

Fig.2 Analysis of jejunal microbiota composition and structure of lambs

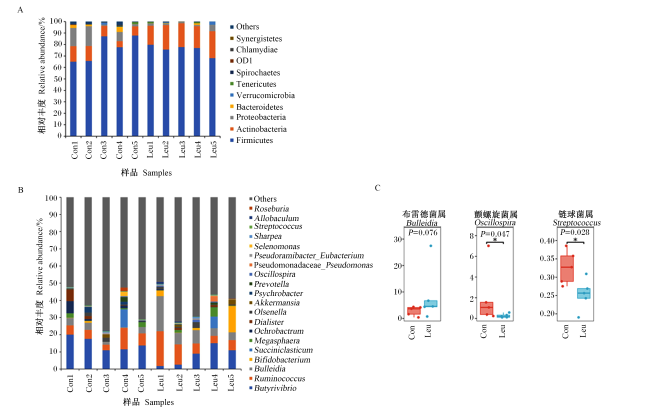
对2组样本门分类水平菌群组成分析,由图3-A可见,厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidetes)、放线菌门(Actinobacteria)和变形菌门(Proteobacteria)均为2组羔羊空肠内优势菌群。对2组样本属分类水平菌群组成分析,由图3-B可见,丁酸弧菌属(Butyrivibrio)、瘤胃球菌属(Ruminococcus)、布雷德菌属(Bulleidia)、双歧杆菌属(Bifidobacterium)、琥珀酸菌属(Succiniclasticum)等为2组羔羊空肠内主要菌属。通过Kruskal-Wallis检验,对2组属水平菌群相对丰度进行差异分析发现,由图3-C可见,与Con组相比,Leu组的空肠中布雷德菌属的相对丰度有增加的趋势(P=0.076),而空肠中颤螺旋菌属(Oscillospira)和链球菌属(Streptococcus)的相对丰度显著降低(P<0.05)。
图3 空肠细菌群落直方图

Firmicutes:厚壁菌门;Actinobacteria:放线菌门;Proteobacteria:变形菌门;Bacteroidetes:拟杆菌门;Verrucomicrobia:疣微菌门;Tenericutes:软壁菌门;Spirochaetes:螺旋体门;Chlamydiae:衣原体门;Synergistetes:互养菌门;Others:其他;Butyrivibrio:丁酸弧菌属;Ruminococcus:瘤胃球菌属;Bulleidia:布雷德菌属;Bifidobacterium:双歧杆菌属;Succiniclasticum:琥珀酸菌属;Megasphaera:巨型球菌属;Ochrobactrum:苍白杆菌属;Dialister:小杆菌属;Olsenella:欧陆森氏菌属;Akkermansia:阿克曼菌属;Psychrobacter:嗜冷杆菌属;Prevotella:普雷沃菌属;Oscillospira:颤螺旋菌属;Pseudomonadaceae_Pseudomonas:假单胞菌科_假单胞菌属;Pseudoramibacter_Eubacterium:假支杆菌属_真杆菌属;Selenomonas:月形单胞菌属;Streptococcus:链球菌属;Allobaculum:异杆菌属;Roseburia:罗斯氏菌属。

A:门水平 phylum level;B:属水平 genus leve; C:属水平差异菌 differential bacteria at genus level。

Fig.3 Jejunal bacterial community histogram

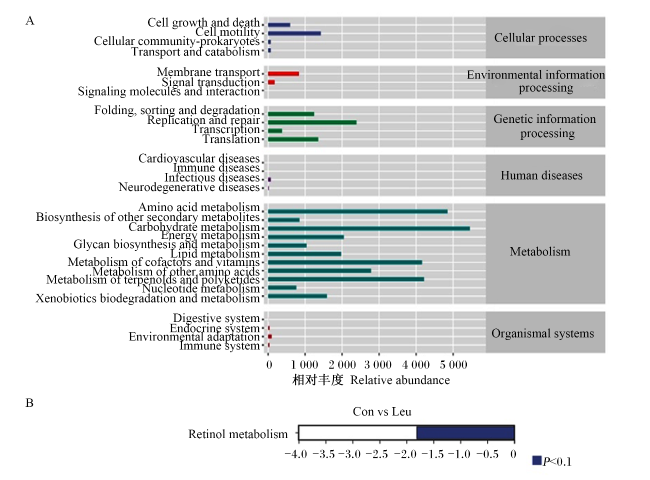
PICRUSt分析用于预测空肠样本的基因组功能特征。由图4-A可见,空肠菌群所预测的功能基因可注释到KEGG数据库中5条一级代谢途径,微生物功能基因主要参与代谢相关途径,包括氨基酸代谢、其他次生代谢物的生物合成、碳水化合物代谢、能量代谢、聚糖生物合成与代谢、脂质代谢、辅因子与维生素代谢、其他氨基酸代谢、萜类和聚酮化合物代谢、核苷酸代谢以及外源物质生物降解与代谢。利用R软件识别组间差异显著的代谢途径,由图4-B可见,发现Con组和Leu组在视黄醇代谢中存在一定趋势的差异(P<0.1)。
图4 代谢通路富集及差异代谢通路

A:空肠细菌16SrRNA基因的PICRUSt2功能预测 functional predictions of jejunal bacterial using PICRUSt2;B:差异代谢途径 differential metabolic pathway。

Cellular processes:细胞加工;Environmental information processing:环境信息处理;Genetic information processing:遗传信息处理;Human diseases:人类疾病;Metabolism:代谢作用;Organismal systems:生物体系统;Cell growth and death:细胞生长与死亡;Cell motility:细胞活性;Cellular community-prokaryotes:细胞群落-原核生物;Transport and catabolism:运输和分解代谢;Membrane transport:膜运输;Signal transduction:信号转导;Signaling molecules and interaction:信号分子与相互作用;Folding, sorting and degradation:折叠、分类和降解;Replication and repair:复制和修复;Transcription:转录;Translation:翻译;Cardiovascular diseases:心血管疾病;Immune diseases:免疫疾病;Infectious diseases:传染疾病;Neurodegenerative diseases:神经退行性疾病;Amino acid metabolism:氨基酸代谢;Biosynthesis of other secondary metabolites:其他次生代谢物的生物合成;Carbohydrate metabolism:碳水化合物代谢;Energy metabolism:能量代谢;Glycan biosynthesis and metabolism:聚糖生物合成与代谢;Lipid metabolism:脂质代谢;Metabolism of cofactors and vitamins:辅因子与维生素代谢;Metabolism of other amino acids:其他氨基酸代谢;Metabolism of terpenolds and polyketides:萜类和聚酮化合物代谢;Nucleotide metabolism:核苷酸代谢;Xenobiotics biodegradation and metabolism:异生物的生物降解与代谢;Digestive system:消化系统;Endocrine system:内分泌系统;Environmental adaptation:环境适应;Immune system:免疫系统;Retinol metabolism:视黄醇代谢。

Fig.4 Enrichment and differential of metabolic pathways

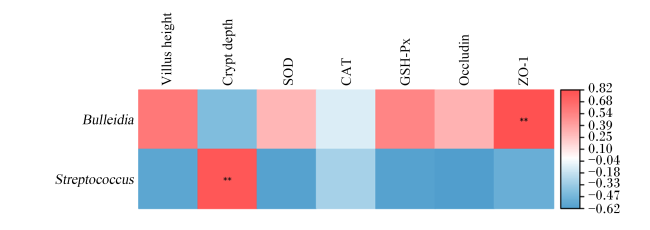
为确定添加亮氨酸所产生的一些差异参数是否与空肠微生物的变化存在相关性,利用Spearman进行相关分析。由图5可见,空肠布雷德菌属的相对丰度与ZO-1的基因相对表达量呈极显著正相关(P<0.01),空肠链球菌属的相对丰度与空肠隐窝深度呈极显著正相关(P<0.01)。
图5 空肠微生物与相关参数相关性分析

Bulleidia:布雷德菌属;Streptococcus:链球菌属;Villus height:绒毛高度;Crypt depth:隐窝深度;SOD:超氧化物歧化酶 superoxide dismutase;CAT:过氧化氢酶 catalase;GSH-Px:谷胱甘肽过氧化物酶 glutathione peroxidase;Occludin:咬合蛋白;ZO-1:闭锁小带蛋白-1 zonula occluden-1。

红色代表正相关,蓝色代表负相关。**表示极显著相关(P<0.01)。Red represent a positive correlation, and blue represent a negative correlation. ** mean extremely significant correlation (P<0.01).

Fig.5 Correlation analysis between jejunal microbiota and related parameters

3 讨论

3.1 亮氨酸对哺乳期羔羊生长性能和小肠组织形态的影响

本课题组前期试验表明,与Con组相比,Leu组羔羊的开食料采食量(126.8 g/d vs 127.5 g/d)、羊草采食量(2.17 g/d vs 2.42 g/d)及平均日增重(68.4 g/d vs 59.7 g/d)均不存在显著差异[10]
饲粮在反刍动物瘤胃内充分发酵消化后进入小肠被吸收,发育良好的胃肠道对于提高饲料转化率以及充分发挥反刍动物生产潜力具有重要意义。绒毛-隐窝轴被认为是小肠黏膜的基本功能单位,小肠绒毛高度、隐窝深度和绒毛高度/隐窝深度等指标是衡量羔羊肠道消化吸收功能的主要指标[14]。小肠绒毛高度越高意味着有更强的消化和吸收能力[15];小肠隐窝变浅,说明小肠细胞成熟率较高[16],分泌能力较强,隐窝变深则不利于养分的消化吸收;而绒毛高度/隐窝深度可用于直观反映营养物质在肠道中的吸收及肠道黏膜受损程度,绒毛高度/隐窝深度越低表明小肠屏障功能降低,营养吸收能力减弱,肠黏膜受损严重[17-18]。本试验结果显示,与Con组相比,Leu组羔羊空肠隐窝深度变浅,绒毛高度/隐窝深度比值显著增加,表明添加亮氨酸有利于羔羊小肠细胞成熟,提高营养吸收能力,保护肠道黏膜。Liu等[19]研究发现,小肠上皮加速发育成熟,有利于羔羊对饲料成分的吸收和消化,为羔羊提供生理营养。在肉鸡饲粮中添加亮氨酸可以通过提高肉鸡空肠和回肠的绒毛高度和绒毛高度/隐窝深度促进小肠发育[20]

3.2 亮氨酸对哺乳期羔羊空肠抗氧化能力的影响

越来越多的证据表明,饮食中补充特定营养素,如维生素C、维生素E和类胡萝卜素,有助于减轻哺乳动物的氧化损伤[21]。肠道抗氧化指标是衡量机体健康的重要指标。幼龄羔羊肠道发育尚不健全,免疫与防御功能较弱,易发生不同程度的氧化应激。动物机体自身具有广泛的抗氧化防御体系,包括酶类抗氧化系统和非酶类抗氧化系统,其中酶类抗氧化系统中主要包括SOD、CAT、GSH-Px,其能不断地清除体内产生的自由基,保护机体免受氧化损伤[22]。SOD作为机体清除自由基的第1道防线,能够将超氧阴离子歧化为过氧化氢和水[23-24];CAT主要催化过氧化氢将其分解为氧气和水,保护细胞免受损害;GSH-Px是机体广泛存在的过氧化物分解酶,其通过将谷胱甘肽转变为氧化性谷胱甘肽,同时可使有毒的过氧化氢还原成无毒的化合物,从而保护细胞膜结构和功能的完整[25]。本研究结果显示,添加亮氨酸能显著提高空肠上皮SODGSH-PxCAT基因的相对表达量,说明添加亮氨酸有利于提高空肠上皮的抗氧化能力,减少氧化应激对机体的损伤。该结果与前期血浆中抗氧化酶活性的结果[10]一致,添加亮氨酸虽未对生长性能产生显著影响,但显著提高羔羊血浆中总抗氧化能力以及GSH-Px活性。Jiang等[26]认为亮氨酸对机体抗氧化防御系统有着积极作用,且可能与抑制细胞凋亡和降低氧化损伤的信号分子有关。Hu等[27]研究报道,适宜浓度的亮氨酸可以减轻断奶仔猪的氧化应激,其可能机制是,补充亮氨酸通过激活哺乳动物雷帕霉素靶蛋白(mTOR)-缺氧诱导因子-1α(HIF-1α)途径,从氧化磷酸化向糖酵解的能量代谢转换,从而降低细胞活性氧水平。本课题组前期以奶牛小肠上皮为研究对象的结果显示,亮氨酸通过上调核内核因子E2相关因子2(Nrf2)的表达,激活Nrf2信号通路,促进抗氧化酶类和II相解毒酶类基因的表达,从而增强细胞的抗氧化能力[28]

3.3 亮氨酸对哺乳期羔羊空肠紧密连接相关基因和蛋白的表达的影响

肠上皮的关键功能是形成屏障,防止促炎分子(如病原体、毒素和抗原)从肠腔环境渗透到黏膜组织和循环系统[29]。肠道上皮细胞之间的紧密连接对保护肠道屏障结构和发育具有重要作用[30]。上皮紧密连接是一种多蛋白质复合物,可以调节大分子细胞旁运输。当肠道上皮屏障遭到破坏时,肠道的通透性会增加,而紧密连接可以限制和调节肠道通透性,对先天免疫至关重要[31-32]。ZO-1是肠上皮细胞紧密连接的支架蛋白,其表达的大小影响细胞间紧密连接的形成,从而影响肠黏膜的防御屏障作用。Occludin主要位于紧密连接结构内,在细胞间发挥黏附分子的作用,对于紧密连接功能具有维持和调节作用[33]。吴慧荣[34]研究发现,亮氨酸可通过Sestrin2(SESN2)-哺乳动物雷帕霉素靶蛋白复合物1(mTORC1)-核因子-κB(NF-κB)信号通路调控上皮细胞紧密连接相关基因表达,从而改变细胞间通透性,改善肠道黏膜屏障功能。本研究结果显示,添加亮氨酸后羔羊空肠上皮ZO-1和Occludin的mRNA和蛋白相对表达量显著或极显著提高,说明亮氨酸可以通过提高紧密连接蛋白相关基因和蛋白的表达,增加细胞之间的紧密连接,增强羔羊肠道物理屏障,对保护羔羊肠道有一定促进作用。

3.4 亮氨酸对哺乳期羔羊空肠菌群组成的影响

肠道菌群主要由厚壁菌门(35%~80%)构成[35]。本试验中,厚壁菌门是2组羔羊空肠相对丰度最高的菌群,均超过70%,与前人的研究结果[36]一致。2组羔羊空肠菌群在门水平不存在显著差异,进一步分析属水平变化发现,Leu组羔羊空肠中布雷德菌属的相对丰度有升高的趋势,而颤螺菌属的相对丰度显著降低。布雷德菌属与脂质代谢有关,在生物氢化中有潜在作用[37]。Angelakis等[38]研究发现,高相对丰度的布雷德菌属与肥胖呈正相关。颤螺菌属在反刍动物肠道中的研究很少,其也存在于人肠道菌群中,但未被培养过,可以代谢多糖产生丁酸盐,与促进形成瘦肉的小克里斯滕森氏菌属高度相关,且在非肥胖人群肠道中相对丰度较高[39]。微生物功能分析表明,亮氨酸在视黄醇代谢中发挥重要作用,视黄醇代谢与维生素A存在紧密联系,亮氨酸作为功能性氨基酸如何参与维生素A的代谢还有待进一步研究。此外,Ma等[40]认为PICRUSt在预测潜在功能方面仍存在不足。因此,以后的研究中将采用宏基因组和/或代谢组学进一步研究分析亮氨酸对肠道微生物组功能的影响。
布雷德菌属相对丰度与动物的生长性能存在正相关作用。而杨斌[41]研究发现,链球菌属与湖羊生长性能、瘤胃重、瘤胃乳头长度均存在负相关关系。本研究相关性分析结果显示,空肠布雷德菌属的相对丰度与空肠上皮紧密连接蛋白ZO-1的基因相对表达量呈极显著正相关,空肠链球菌属的相对丰度与空肠隐窝深度呈极显著正相关。ZO-1基因相对表达量的大小影响细胞间紧密连接的形成,隐窝变深不利于养分的消化吸收。添加亮氨酸显著增加了空肠布雷德菌属的相对丰度,降低了空肠链球菌属的相对丰度,因此亮氨酸对小肠发育的积极作用可能与肠道微生物的变化有关。

4 结论

亮氨酸可增强羔羊空肠抗氧化能力,调控空肠上皮紧密连接蛋白的表达,改变空肠菌群结构,从而促进哺乳期羔羊小肠发育。
[1]
BLUM J W. Nutritional physiology of neonatal calves[J]. Journal of Animal Physiology and Animal Nutrition, 2006, 90(1/2):1-11.

[2]
GÓRKA P, KOWALSKI Z M, ZABIELSKI R, et al. Invited review:use of butyrate to promote gastrointestinal tract development in calves[J]. Journal of Dairy Science, 2018, 101(6):4785-4800.

[3]
PIAO M Y, MA J N, DIAO Q Y, et al. Effects of diets with different solid-to-liquid feed ratios with the same dry matter intake on the growth performance and gastrointestinal development of male Holstein calves[J]. Animal Feed Science and Technology, 2021,274:114846.

[4]
AMIN A B, TRABI E B, ZHU C, et al. Role of butyrate as part of milk replacer and starter diet on intestinal development in pre-weaned calves.A systematic review[J]. Animal Feed Science and Technology, 2022,292:115423.

[5]
LIU S, WU J D, WU Z H, et al. Tributyrin administration improves intestinal development and health in pre-weaned dairy calves fed milk replacer[J]. Animal Nutrition, 2022,10:399-411.

[6]
KARAGOUNIS L G, HUGUES M, ROWLANDS D S. Leucine-protein functional adaptation in the clinical setting[M]//RAJENDRAM R,PREEDY V R,PATEL V B.Branched chain amino acids in clinical nutrition. New York: Humana Press,2015:217-227.

[7]
XU W, BAI K W, HE J T, et al. Leucine improves growth performance of intrauterine growth retardation piglets by modifying gene and protein expression related to protein synthesis[J]. Nutrition, 2016, 32(1):114-121.

DOI PMID

[8]
SUN Y L, WU Z L, LI W, et al. Dietary L-leucine supplementation enhances intestinal development in suckling piglets[J]. Amino Acids, 2015, 47(8):1517-1525.

[9]
黄强, 徐稳, 何进田, 等. 日粮补充L-亮氨酸对超早期断奶宫内发育迟缓仔猪肠道免疫功能的影响[J]. 食品科学, 2017, 38(17):184-189.

DOI

HUANG Q, XU W, HE J T, et al. Effect of dietary L-leucine supplementation on intestinal immune function in ultra-early weaned piglets with intrauterine growth retardation[J]. Food Science, 2017, 38(17):184-189. (in Chinese)

DOI

[10]
MAO H, WANG C, YU Z. Dietary leucine supplementation enhances the health of early weaned Hu lambs[J]. Animal Feed Science and Technology, 2019,247:248-254.

[11]
JANDAL J M. Comparative aspects of goat and sheep milk[J]. Small Ruminant Research, 1996, 22(2):177-185.

[12]
RAFIQ S, HUMA N, PASHA I, et al. Chemical composition,nitrogen fractions and amino acids profile of milk from different animal species[J]. Asian-Australasian Journal of Animal Sciences, 2016, 29(7):1022-1028.

[13]
CUI Y J, ZHOU X, CHEN L Y, et al. Crosstalk between endoplasmic reticulum stress and oxidative stress in heat exposure-induced apoptosis is dependent on the ATF4-CHOP-CHAC1 signal pathway in IPEC-J2 cells[J]. Journal of Agricultural and Food Chemistry, 2021, 69(51):15495-15511.

DOI PMID

[14]
杨伟光. 岩藻多糖调控断奶羔羊瘤胃代谢及肠道屏障功能的研究[D]. 硕士学位论文. 湛江: 广东海洋大学, 2022.

YANG W G. The study on dietary fucoidan supplementation on regulating rumen metabolism and intestinal barrier function in weaned goat kids[D]. Master’s Thesis. Zhanjiang: Guangdong Ocean University, 2022. (in Chinese)

[15]
HOU J W, LIAN L N, LU L Z, et al. Effects of dietary Bacillus coagulans and tributyrin on growth performance,serum antioxidants,intestinal morphology,and cecal microbiota of growing yellow-feathered broilers[J]. Animals, 2023, 13(22):3534.

[16]
CLEVERS H. The intestinal crypt,a prototype stem cell compartment[J]. Cell, 2013, 154(2):274-284.

[17]
黄其春, 黄翠琴, 陈彤, 等. 银杏叶提取物对断奶仔猪生长性能、肠黏膜形态及屏障通透性的影响[J]. 中国畜牧杂志, 2014, 50(19):74-77.

HUANG Q C, HUANG C Q, CHEN T, et al. Effects of Ginkgo biloba extract on growth performance,intestinal mucosal morphology and barrier permeability in weaned piglets[J]. Chinese Journal of Animal Science, 2014, 50(19):74-77. (in Chinese)

[18]
阿旺措吉, 张婷, 德吉, 等. 早期断奶对藏西北白绒山羊小肠微生物组成及屏障基因表达的影响[J]. 中国畜牧杂志, 2023, 59(7):313-321.

AWANGCUOJI, ZHANG T, DE J, et al. Effects of early weaning on intestinal microbial composition and gene expression of intestinal barrier of northwest Tibetan white cashmere goats[J]. Chinese Journal of Animal Science, 2023, 59(7):313-321. (in Chinese)

[19]
LIU L X, SUN D M, MAO S Y, et al. Infusion of sodium butyrate promotes rumen papillae growth and enhances expression of genes related to rumen epithelial VFA uptake and metabolism in neonatal twin lambs[J]. Journal of Animal Science, 2019, 97(2):909-921.

DOI PMID

[20]
CHANG Y L, CAI H Y, LIU G H, et al. Effects of dietary leucine supplementation on the gene expression of mammalian target of rapamycin signaling pathway and intestinal development of broilers[J]. Animal Nutrition, 2015, 1(4):313-319.

DOI PMID

[21]
SAMOYLENKO A, HOSSAIN J A, MENNERICH D, et al. Nutritional countermeasures targeting reactive oxygen species in cancer:from mechanisms to biomarkers and clinical evidence[J]. Antioxidants & Redox Signaling, 2013, 19(17):2157-2196.

[22]
陈浩瀚, 王锦湘, 王敏奇. 大豆异黄酮对生长猪生长性能、血清生化、免疫和抗氧化能力的影响[J]. 中国畜牧杂志, 2022, 58(5):229-233,238.

CHEN H H, WANG J X, WANG M Q. Effects of dietary supplementation of soybean isoflavones on growth performance,serum biochemistry,immunity and antioxidant capacity in growing pigs[J]. Chinese Journal of Animal Science, 2022, 58(5):229-233,238.

[23]
MANSUROĞLU B, DERMAN S, YABA A, et al. Protective effect of chemically modified SOD on lipid peroxidation and antioxidant status in diabetic rats[J]. International Journal of Biological Macromolecules, 2015, 72:79-87.

DOI PMID

[24]
POLYKRETIS P, LUCHINAT E, BOSCARO F, et al. Methylglyoxal interaction with superoxide dismutase 1[J]. Redox Biology, 2020,30:101421.

[25]
SURAI P F, KOCHISH I I, FISININ V I. Glutathione peroxidases in poultry biology:Part 1.Classification and mechanisms of action[J]. World’s Poultry Science Journal, 2018, 74(2):185-198.

[26]
JIANG W D, DENG Y P, ZHOU X Q, et al. Towards the modulation of oxidative damage,apoptosis and tight junction protein in response to dietary leucine deficiency:a likely cause of ROS-induced gill structural integrity impairment[J]. Fish & Shellfish Immunology, 2017,70:609-620.

[27]
HU J, NIE Y F, CHEN S F, et al. Leucine reduces reactive oxygen species levels via an energy metabolism switch by activation of the mTOR-HIF-1α pathway in porcine intestinal epithelial cells[J]. International Journal of Biochemistry and Cell Biology, 2017,89:42-56.

[28]
MAO H L, ZHANG Y F, JI W W, et al. Leucine protects bovine intestinal epithelial cells from hydrogen peroxide-induced apoptosis by alleviating oxidative damage[J]. Journal of the Science of Food and Agriculture, 2022, 102(13):5903-5912.

[29]
DUNLOP S P, HEBDEN J, CAMPBELL E, et al. Abnormal intestinal permeability in subgroups of diarrhea-predominant irritable bowel syndromes[J]. American Journal of Gastroenterology, 2006, 101(6):1288-1294.

DOI PMID

[30]
周蓉, 徐雅虹, 陈闽东, 等. HO-1对醋酸铅诱导肾小管上皮细胞氧化应激的保护机制[J]. 中国中西医结合肾病杂志, 2020, 21(1):12-16.

ZHOU R, XU Y H, CHEN M D, et al. The mechanism of HO-1 protects renal tubular epithelial cells from lead acetate induced oxidative stress[J]. Chinese Journal of Integrated Traditional and Western Nephrology, 2020, 21(1):12-16. (in Chinese)

[31]
LEE S H. Intestinal permeability regulation by tight junction:implication on inflammatory bowel diseases[J]. Intestinal Research, 2015, 13(1):11-18.

[32]
ZIHNI C, MILLS C, MATTER K, et al. Tight junctions:from simple barriers to multifunctional molecular gates[J]. Nature Reviews Molecular Cell Biology, 2016, 17(9):564-580.

[33]
王育川, 林桐, 陈艾玲, 等. 饲粮添加茶多酚对马岗鹅空肠组织形态、抗氧化能力及紧密连接蛋白相关基因表达的影响[J]. 动物营养学报, 2022, 34(12):7833-7843.

DOI

WANG Y C, LIN T, CHEN A L, et al. Effects of dietary tea polyphenols on jejunum morphology,antioxidant capacity and expression of tight junction protein-related genes in Magang geese[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7833-7843. (in Chinese)

[34]
吴慧荣. 亮氨酸调控猪肠道紧密连接的分子机制[D]. 硕士学位论文. 长沙: 湖南师范大学, 2020.

WU H R. Molecular mechanism of tight junction regulated by leucine in porcine intestinal[D]. Master’s Thesis. Changsha: Hunan Normal University, 2020. (in Chinese)

[35]
SHOAIE S, KARLSSON F, MARDINOGLU A, et al. Understanding the interactions between bacteria in the human gut through metabolic modeling[J]. Scientific Reports, 2013, 3(1):2532.

[36]
李冲. 断奶应激对羔羊消化道结构与功能发育的影响及其机理研究[D]. 博士学位论文. 兰州: 兰州大学, 2019.

LI C. Effects of weaning stress on the structural and functional development of digestive tract of lamb and its mechanism[D]. Ph.D.Thesis. Lanzhou: Lanzhou University, 2019. (in Chinese)

[37]
PITTA D W, INDUGU N, VECCHIARELLI B, et al. Alterations in ruminal bacterial populations at induction and recovery from diet-induced milk fat depression in dairy cows[J]. Journal of Dairy Science, 2018, 101(1):295-309.

DOI PMID

[38]
ANGELAKIS E, ARMOUGOM F, CARRIÈRE F, et al. A metagenomic investigation of the duodenal microbiota reveals links with obesity[J]. PLoS One, 2015, 10(9):e0137784.

[39]
KONIKOFF T, GOPHNA U. Oscillospira:a central,enigmatic component of the human gut microbiota[J]. Trends in Microbiology, 2016, 24(7):523-524.

[40]
MA Y H, DENG X T, YANG X, et al. Characteristics of bacterial microbiota in different intestinal segments of Aohan fine-wool sheep[J]. Frontiers in Microbiology, 2022,13:874536.

[41]
杨斌. 早期补饲苜蓿调节幼龄湖羊生长和瘤胃发育的机制研究[D]. 博士学位论文. 杭州: 浙江大学, 2017.

YANG B. Mechanism in growth and rumen development alteration by early alfalfa supplementation in Hu lambs[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2017. (in Chinese)

文章导航

/