研究论文

茶树油对脂多糖诱导奶牛小肠上皮细胞损伤的影响

  • 陈明 , 1 ,
  • 蔡淑先 2 ,
  • 杨红 1 ,
  • 张佳豪 3 ,
  • 赵国琦 , 3, *
展开
  • 1 江苏农牧科技职业学院,泰州 225300
  • 2 农安县动物疫病预防控制中心,长春 130200
  • 3 扬州大学动物科学与技术学院,扬州 225009
*赵国琦,教授,博士生导师,E-mail:

陈 明(1978—),女,江苏泰兴人,副教授,硕士,主要从事动物营养与饲料研究。E-mail:

Copy editor: 田艳明

收稿日期: 2023-12-07

  网络出版日期: 2024-06-07

基金资助

国家自然科学基金项目(31972589)

现代农业产业技术体系专项资金资助(CARS-36)

江苏省高等学校基础科学(自然科学)研究面上项目(23KJD230002)

Effects of Tea Tree Oil on Lipopolysaccharide-Induced Injury in Bovine Intestinal Epithelial Cells

  • CHEN Ming , 1 ,
  • CAI Shuxian 2 ,
  • YANG Hong 1 ,
  • ZHANG Jiahao 3 ,
  • ZHAO Guoqi , 3, *
Expand
  • 1 Jiangsu Vocational College of Agriculture and Animal Husbandry, Taizhou 225300, China
  • 2 Nongan County Center for Animal Disease Control and Prevention, Changchun 130200, China
  • 3 College of Animal Science and Technology, Yangzhou University, Yangzhou 225009, China
*professor, E-mail:

Received date: 2023-12-07

  Online published: 2024-06-07

摘要

本试验旨在研究茶树油(TTO)对脂多糖(LPS)诱导奶牛小肠上皮细胞(BIECs)损伤的影响。试验选取3头健康新生中国荷斯坦犊牛的空肠组织,分离并获得BIECs进行培养。通过使用不同浓度的LPS(0、1、2和4 μg/mL)和不同浓度的TTO(0、0.006 25%、0.012 50%、0.025 00%、0.050 00%和0.100 00%),建立细胞炎症模型。然后,对照组以不含TTO和LPS的培养基处理细胞;LPS组以1 μg/mL的LPS处理细胞12 h;LPS+TTO组采用0.012 50%和0.025 00%的TTO预处理细胞12 h,经水洗后,再暴露于LPS处理12 h。结果表明:1)与对照组(未添加TTO)相比,添加0.006 25%、0.012 50%、0.025 00%和0.050 00%TTO对BIECs细胞活力无显著影响(P>0.05),添加TTO显著提高跨膜电阻(TEER)(P<0.05)。与对照组相比,添加0.012 50%TTO显著提高BIECs中闭锁小带蛋白-1(ZO-1)、封闭蛋白(occludin)、闭合蛋白-1(claudin-1)和闭合蛋白-4(claudin-4)的mRNA相对表达量(P<0.05),显著降低肿瘤坏死因子-α(TNF-α)的mRNA相对表达量(P<0.05)。2)与LPS组相比,LPS+TTO组TEER以及ZO-1、occludin和claudin-1的mRNA相对表达量显著提高(P<0.05),TNF-α的mRNA相对表达量显著降低(P<0.05);LPS+TTO组ZO-1蛋白相对表达量显著提高(P<0.05)。综上可知,TTO可以通过上调紧密连接蛋白表达和下调炎性因子表达,缓解LPS诱导的犊牛小肠上皮细胞屏障功能障碍和炎症损伤。

本文引用格式

陈明 , 蔡淑先 , 杨红 , 张佳豪 , 赵国琦 . 茶树油对脂多糖诱导奶牛小肠上皮细胞损伤的影响[J]. 动物营养学报, 2024 , 36(6) : 3942 -3951 . DOI: 10.12418/CJAN2024.337

Abstract

This study was conducted to investigate the effects of tea tree oil (TTO) on lipopolysaccharide (LPS)-induced injury in bovine intestinal epithelial cells (BIECs). Jejunum tissues of 3 healthy newborn Chinese Holstein calves were isolated to obtain BIECs for culture. Cell inflammation model was established by using different concentrations of LPS (0, 1, 2 and 4 μg/mL) and TTO (0, 0.006 25%, 0.012 50%, 0.025 00%, 0.050 00% and 0.100 00%). Then, the cells in the control group were treated with medium without TTO and LPS, those in LPS group were treated with 1 μg/mL LPS for 12 h, and those in LPS+TTO group were treated with 0.012 50% and 0.025 00% TTO for 12 h, and then exposed to LPS for 12 h after water washing. The results showed as follows: 1) compared with the control group (without TTO), the supplementation of 0.006 25%, 0.012 50%, 0.025 00% and 0.050 00%TTO had no significant effects on the cell viability of BIECs (P>0.05), and the supplementation of TTO significantly increased the transepithelial electrical resistance (TEER) (P<0.05). Compared with the control group, the supplementation of 0.012 50% TTO significantly increased the mRNA relative expression levels of zonula occludens-1 (ZO-1), occludin, claudin-1 and claudin-4 in BIECs (P<0.05), and significantly decreased the tumor necrosis factor-α (TNF-α) mRNA relative expression level (P<0.05). 2) Compared with LPS group, the TEER and mRNA relative expression levels of ZO-1, occludin and claudin-1 in LPS+TTO group were significantly increased (P<0.05), and the TNF-α mRNA relative expression level was significantly decreased (P<0.05); the ZO-1 protein relative expression level in LPS+TTO group was significantly increased (P<0.05). In conclusion, TTO can alleviate LPS-induced barrier dysfunction and inflammatory injury in intestinal epithelial cells of calves by up-regulating the expression of tight junction protein and down-regulating the expression of inflammatory factor.

腹泻是一种常见疾病,也是犊牛健康面临的主要挑战[1-2]。腹泻造成犊牛死亡主要发生在出生后的第1个月,总死亡率在50%以上,这给畜牧业带来了巨大的经济损失[3]。革兰氏阴性菌外周细胞壁裂解产生的脂多糖(LPS)是导致腹泻的主要因素。此外,腹泻犊牛血浆中的LPS含量高于健康犊牛,且在腹泻组内,死亡犊牛血浆中的LPS含量显著高于存活犊牛。血浆LPS含量的升高可能与腹泻对肠道黏膜的物理破坏有关[4]。此外,研究表明,LPS在刺激肠道和全身炎症反应中起着至关重要的作用[5-6]。然而,LPS对犊牛小肠上皮细胞的损伤作用尚未有报道。研究发现,LPS会增加紧密连接的通透性,而肠道紧密连接的破坏会导致“渗漏”,从而提高肠道的通透性[7]。紧密连接在内皮细胞和上皮细胞之间形成一个可调节的细胞旁屏障,以阻止水、溶质和免疫细胞的运动。渗漏的肠道紧密连接会使腔内抗原能够渗透邻近的上皮细胞膜,从而加剧肠道炎症[8-11]
炎症反应的加剧会导致组织水肿、炎症细胞的迁移以及一般细胞功能的障碍,这些过程之间存在紧密的关联[12-16]。多项研究证实,肠黏膜通透性的改变与断奶腹泻的发生之间存在关系,这表明肠上皮的紧密连接在调节肠黏膜通透性和防止病原微生物侵入方面起着至关重要的作用[17-19]。因此,肠上皮紧密连接的调控与犊牛的生长和健康密切相关,较高的肠通透性可能会增加严重腹泻和体重下降的风险。犊牛腹泻率与犊牛的存活率密切相关。因此,寻找可行的抗生素替代品,特别是那些用于治疗犊牛腹泻的植物性“抗生素”,对于改善对犊牛的健康至关重要。
大量研究表明,植物精油具有抗菌、抗炎、抗氧化和抗寄生虫等特性,可以提高饲料效率,促进肠道健康。同时,植物精油还可以通过改善饲粮的口感来增加采食量[20]。在养猪业中,一些植物精油已被证实可以替代饲粮中的抗生素,成为抗生素的替代品。由澳大利亚灌木千层互花通过蒸汽蒸馏法制造的精油被称为茶树油(tea tree oil,TTO)[21],其含有100多种不同的化合物,主要成分是单萜烯及其衍生物。TTO的主要活性成分包括4-松油烯、γ-松油烯、α-松油烯、1,8-桉叶油脑和α-松油醇[22]。Zhan等[23]研究表明,补充TTO可以显著促进金黄色葡萄球菌刺激奶牛乳腺上皮细胞(BMECs)的生长,增强其活力并改善炎症反应。除了应用于BMECs外,TTO还能减弱LPS诱导的奶牛瘤胃上皮细胞刺激,抑制核因子-κB(NF-κB)信号通路的激活,从而减轻LPS诱导的瘤胃上皮炎症[24]
尽管前期研究表明,TTO可以通过刺激Notch2信号通路来提高断奶仔猪肠黏膜免疫力[25],但目前关于TTO对LPS诱导的奶牛小肠上皮细胞(BIECs)炎症和紧密连接的影响的信息还很有限。因此,本研究旨在探究TTO对LPS诱导的BIECs炎症和紧密连接的影响。

1 材料与方法

1.1 TTO的制备

TTO的制备参考文献[23]。将10 μL的TTO溶于含有0.1%二甲亚砜(DMSO)的10 mL Dulbecco’s Modified Eagle培养基(DMEM)/F12中,定义为0.1% TTO。后续试验采用倍数稀释法。

1.2 原代BMECs的分离培养

本研究遵循扬州大学机构动物护理与利用委员会的指导方针。选取扬州大学实验农场的3头健康新生中国荷斯坦犊牛的空肠组织。将空肠组织样本转移到30 mL含有10%胎牛血清(FBS)的DMEM(Invitrogen)中,并添加500 U/mL青霉素、500 μg/mL链霉素、12.5 μg/mL两性霉素B[5×极性表面积(PSA);非营养剂]。随后将样本立即送到实验室,从组织标本中取出肠系膜,并在含有5×PSA的DMEM(Invitrogen)中反复洗涤,直到上清无碎片。将肠组织样品置于含有300 U/mL胶原酶Ⅰ(Invitrogen)和0.1 mg/mL分散酶Ⅱ(Sigma-Aldrich)的磷酸盐缓冲液(PBS)消化液中,在37 ℃的气浴中振荡孵育30 min,然后处理上清。在相同的消化液中,以相同的条件再孵育剩余的肠组织45 min。之后,将消化培养基小心地转移到新的50 mL离心管中,将细胞在200×g、4 ℃下离心5 min后,丢弃上清液。将细胞再次浸入含有10% FBS、100 μg/mL链霉素、100 U/mL青霉素、1%非必需氨基酸(Invitrogen)、4 mmol/L谷氨酰胺(Invitrogen)、1×胰岛素-转铁蛋白-硒(Invitrogen)和15 ng/mL表皮生长因子(Peprotech)的DMEM中重悬,并镀于6孔板。随后,纵向切开肠段,用消毒的手术刀刀片刮去消化后的黏膜,刮痕在含有1 mg/mL分散酶Ⅱ的PBS中,在37 ℃的气浴中孵育3次,每次孵育10 min。然后,通过74 μm尼龙网筛过滤消化培养基,去除肠道组织。将细胞在200×g下离心3 min后,在含有2%山梨醇(Sigma-Aldrich)的DMEM中重悬,并在50×g离心5 min。小心地丢弃上清液,将细胞洗涤5次以去除分离的淋巴细胞。最后,将细胞重悬在相同的完整培养基中,将细胞接种于6孔板中,并在37 ℃、5%二氧化碳(CO2)下孵育。完全附着需要长达48 h,在此期间不要晃动6孔板。

1.3 试验设计与处理

本研究使用大肠杆菌O55∶B5(L6529,Sigma-Aldrich,美国)的冻干粉作为LPS的来源。通过使用不同浓度的LPS(0、1、2和4 μg/mL)和不同浓度的TTO(0、0.006 25%、0.012 50%、0.025 00%、0.050 00%和0.100 00%),结合炎症反应时间、跨膜电阻(TEER)和紧密连接的指标,建立和调整细胞炎症模型。对照组以不含TTO和LPS的培养基处理细胞;LPS组以1 μg/mL的LPS处理细胞12 h;LPS+TTO组采用0.012 50%和0.025 00%的TTO预处理细胞12 h,经水洗后,再暴露于LPS处理12 h。

1.4 测定指标及方法

1.4.1 细胞活力测定

参考Ang等[26]的方法,利用Cell Counting Kit-8(CCK-8,Dojindo)对预处理后的BIECs活力进行测定。孵育后,细胞用200 μL去离子水冲洗5次,在100 μL DMEM/F12中加入10 μL CCK-8和5% CO2,在37 ℃下培养3 h。设置自动酶标仪吸光度为450 nm,对每孔进行测定。细胞活力的计算基于Zhan等[23]的研究。

1.4.2 TEER测定

在6孔板上安装4.5 μm孔的Transwell腔室(Costar,Coring Inc,美国),用于BIECs的接种(1×10⁵个/cm2);另一个Transwell腔室没有接种细胞,用作空白对照。孵育后,用TEER评价细胞单层完整性。使用带有电极的上皮伏姆计(Millicell® ERS-2,EMD Millipore,美国)进行测量。电极以90°角插入,一端在基底侧腔内,另一端在顶腔内;每个单层测量3次,并特别注意防止电极与单层接触;使用空白插入,并从所有样本中扣除其平均电阻;然后用电阻值除以有效膜面积(4.5 cm2)计算单位面积电阻。

1.4.3 荧光定量PCR(qRT-PCR)

将细胞以2×10⁵个/孔的密度接种于6孔板中进行mRNA表达分析。孵育后,根据供应商的说明,使用FastPure细胞/组织总RNA分离试剂盒(RC101,Vazyme Biotech Co.,Ltd.)从孵育细胞中提取总RNA。采用微分光光度计(OD-1000+,One Drop®)测定RNA纯度和浓度,并用2%琼脂糖凝胶电泳验证RNA质量。本研究中,总RNA的吸光度(OD)260/OD280值为1.9~2.0,总RNA样品中28S核糖体RNA带的强度是18S核糖体RNA带的近2倍,说明总RNA质量很高。逆转录通过逆转录试剂盒(TaKaRa)完成,反应体系体积为20 μL,逆转录反应混合物成分为1 μg总RNA和1×PrimeScript RT Master Mix,反应在37 ℃下进行15 min,逆转录酶在85 ℃下热中和5 s。采用SYBR® Premix Ex TaqTM Ⅱ试剂盒(TaKaRa)进行qRT-PCR检测。最终反应体系体积为20 μL,qRT-PCR反应混合物由1×SYBR® Premix Ex TaqTM Ⅱ、0.4 μmol/L的正向和反向引物以及100 ng cDNA模板组成。反应过程如下:95 ℃初始变性30 s,95 ℃初始变性5 s,60 ℃初始变性30 s,循环40次。在使用qRT-PCR运行样品之前,只要有可能,就制作引物以跨越外显子-外显子连接,并在扩增后通过创建熔融曲线来评估二聚体的起始,以验证单独终产物的存在。阴性对照反应不含cDNA样本。使用RefFinder(http://blooge.cn/RefFinder/),其中包括Normfinder、geNorm和比较ΔCt方法,确定候选基因的排序和选择第1级内参基因[肌动蛋白(ACTB)、核糖体蛋白S9(RPS9)和磷酸甘油醛脱氢酶(GAPDH)]。通过对每个基因分配适当的权重值,并通过权重值的几何平均值确定排名,从而确定最终的总排名;排序值越低,表达稳定性越高,最后筛选GAPDH用于后续研究,qRT-PCR引物信息见表1。qRT-PCR结果采用2-ΔΔCt方法进行分析,该方法量化了靶基因mRNA相对表达量的折叠变化[27]。所有试验均设置3个重复。
表1 qRT-PCR引物信息

Table 1 Primer information for qRT-PCR

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
大小
Size/bp
磷酸甘油醛脱氢酶 GAPDH F:TTGTCTCCTGCGACTTCAACA
R:TCGTACCAGAAATGAGCTTGAC
NM_001034034.2 103
闭锁小带蛋白-1 ZO-1 F:TCTGCAGCAATAAAGCAGCATTTC
R:TTAGGGCACAGCATCGTATCACA
XM_010817146.1 187
封闭蛋白 Occludin F:GAACGAGAAGCGACTGTATC
R:CACTGCTGCTGTAATGAGG
NM_001082433.2 122
闭合蛋白-1 Claudin-1 F:CGTGCCTTGATGGTGAT
R:CTGTGCCTCGTCGTCTT
NM_001001854.2 102
闭合蛋白-4 Claudin-4 F:CTTCATCGGCAGCAACATC
R:ACAACAGCACGCCAAACA
NM_001014391.2 191
肿瘤坏死因子-α TNF-α F:GCCCTCTGGTTCAGACACTC
R:AGATGAGGTAAAGCCCGTCA
NM_173966.3 192

1.4.4 蛋白质印迹(Western blotting)

将细胞置于10 cm培养皿中(2×10⁶个/孔),于37 ℃、5% CO2培养,进行蛋白表达分析。孵育后,细胞在RIPA裂解液(Thermo Scientific)中裂解获得总蛋白,该裂解液由1×蛋白酶抑制剂(Thermo Scientific)和1×磷酸酶抑制剂片(Roche)组成。根据生产商(Beyotime)的指导,使用二喹啉甲酸(BCA)试剂盒测定蛋白浓度。使用十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离等量(40 μg)的蛋白裂解物,然后将其转移到硝化纤维素膜(PALL)上。使用5%马血封闭膜,然后用一抗加5%马血清在含吐温(TBST:10 mmol Tris-HCl,pH 7.5,150 mmol NaCl,0.05% 吐温20)的Tris缓冲液中,4 ℃下培养1.5 h。一抗包括:GAPDH(1∶1 000,CST),磷酸化p65(p-p65)、p65(1∶750,CST),闭锁小带蛋白-1(ZO-1)(1∶2 000,Proteintech Cat# 21773-1-AP,RRID:AB_10733242)。二抗是辣根过氧化物酶(HRP)偶联的,内含山羊抗兔免疫球蛋白G(IgG,1∶5 000,CST)。

1.5 数据统计分析

试验数据采用SPSS 9.1.3软件中的ANOVA过程进行单因素方差分析,并进行Duncan氏法多重比较,结果数据用“平均值±标准差”表示,P<0.05为差异显著。

2 结果与分析

2.1 LPS诱导BIECs损伤

本试验中,通过添加0、1、2、4 μg/mL LPS处理BIECs 12 h,观察是否对BIECs形成损伤。TEER被用来衡量细胞单层的完整性,如图1-A 所示,从6 h开始,与对照组(未添加LPS)相比,添加4 μg/mL LPS显著降低BIECs的TEER(P<0.05),并持续至24 h(P<0.05);此外,添加1和2 μg/mL LPS在12 h显著降低TEER(P<0.05),并持续至24 h(P<0.05)。通过qRT-PCR分析紧密连接蛋白和促炎因子基因的mRNA相对表达量(图1-B图1-C )发现,与对照组相比,添加1、2和4 μg/mL LPS显著降低BIECs中ZO-1、封闭蛋白(occludin)、闭合蛋白-1(claudin-1)和闭合蛋白-4(claudin-4)的mRNA相对表达量(P<0.05),并显著提高促炎因子肿瘤坏死因子-α(TNF-α)的mRNA相对表达量(P<0.05)。
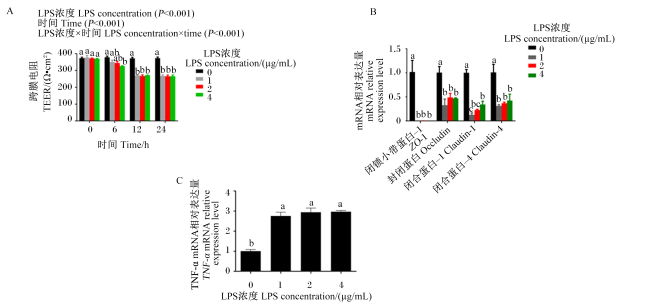
图1 LPS对BIECs损伤的影响

数据柱标记不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of LPS on BIECs injury

Date columns with different letters indicated significant difference (P<0.05). The same ae below.

2.2 TTO对BIECs细胞活力、通透性和炎症反应的影响

图2-A 所示,与对照组(未添加TTO)相比,添加0.006 25%、0.012 50%、0.025 00%和0.050 00%TTO对BIECs细胞活力无显著影响(P>0.05);然而,添加0.100 00%TTO引起BIECs细胞活力显著降低(P<0.05)。如图2-B 所示,与对照组相比,添加TTO显著提高BIECs的TEER(P<0.05),表明TTO降低了BIECs的通透性。为了证实TTO的作用,采用qRT-PCR检测了紧密连接和促炎因子相关基因的mRNA相对表达量(图2-C图2-D),与对照组相比,添加0.012 50%TTO显著提高BIECs中ZO-1、occludin、claudin-1和claudin-4的mRNA相对表达量(P<0.05),添加0.025 00%TTO显著提高occludin和claudin-1的mRNA相对表达量(P<0.05),添加0.012 50%和0.025 00% TTO显著降低TNF-α的mRNA相对表达量(P<0.05)。
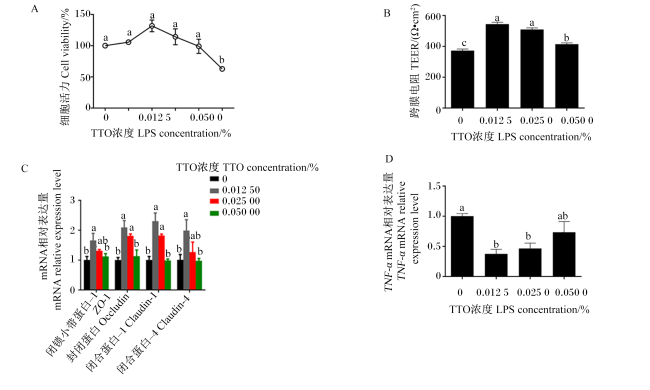
图2 TTO对BIECs细胞活力、通透性和炎症反应的影响

折线点标记不同字母表示差异显著(P<0.05)。

Fig.2 Effects of TTO on cell viability, permeability and inflammatory response of BIECs

Broken line points with different letters indicated significant difference (P<0.05).

2.3 TTO对LPS诱导BIECs炎症损伤的影响

图3-A 所示,与对照组相比,LPS组TEER显著降低(P<0.05);LPS+TTO组TEER显著提高(P<0.05),并且显著高于LPS组(P<0.05)。如图3-B所示,与对照组相比,LPS组ZO-1、occludin、claudin-1和claudin-4的mRNA相对表达量显著降低(P<0.05);与LPS组相比,LPS+TTO组ZO-1、occludin和claudin-1的mRNA相对表达量显著提高(P<0.05),LPS+0.012 50%TTO组claudin-4的mRNA相对表达量显著提高(P<0.05)。如图3-C图3-D图3-E 所示,与对照组相比,LPS组ZO-1蛋白相对表达量显著降低(P<0.05),p-p65蛋白相对表达量/p65蛋白相对表达量值(p-p65/p65)显著提高(P<0.05);与LPS组相比,LPS+TTO组ZO-1蛋白相对表达量显著提高(P<0.05),LPS+0.012 50%TTO组p-p65/p65显著降低(P<0.05)。如图3-F 所示,与对照组相比,LPS组TNF-α的mRNA相对表达量显著提高(P<0.05);与LPS组相比,LPS+TTO组TNF-α的mRNA相对表达量显著降低(P<0.05)。
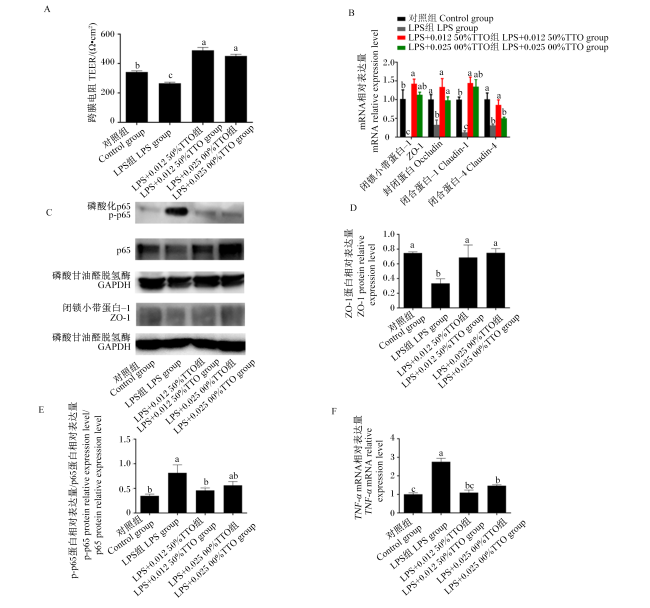
图3 TTO对LPS诱导BIECs炎症损伤的影响

Fig.3 Effects of TTO on inflammatory injury in BIECs induced by LPS

3 讨论

本研究结果表明,LPS通过增加炎症反应和破坏屏障功能来损伤BIECs。此外,已有研究证实,TTO可以改善肠道黏膜免疫[25]。本研究发现,TTO通过抑制NF-κB信号传导和减少促炎细胞因子的产生,缓解了LPS诱导的BIECs炎症损伤。此外,TTO还提高了BIECs的紧密连接蛋白表达和TEER,从而保护了肠道屏障功能。这些试验结果均表明TTO可以用于保护肠道屏障功能和减轻炎症反应。
分娩后,大量的大肠杆菌和链球菌在胎儿肠腔内大量繁殖[28]。革兰氏阴性菌裂解产生的LPS可能会进一步促进与免疫和炎症性新生儿疾病相关的疾病的发展,如坏死性小肠结肠炎和肠道源性败血症[29]。然而,关于LPS对犊牛肠道免疫影响的机制却知之甚少。紧密连接是肠道健康的关键指标,肠道应激损伤通常与紧密连接结构和功能的变化有关[30-31]。关键紧密连接蛋白如occludin、闭合蛋白(claudin)和闭锁小带蛋白(ZO)的下调会增加肠道通透性,减少营养物质的运输[32]。低紧密连接也会导致肠道炎症、肠道应激综合征和传染性腹泻[33]。有报道称,TEER是肠上皮细胞通透性的另一个指标[34-35]。TEER的降低反映了屏障功能的损害和细胞旁通透性的增加,本研究中,LPS可以通过降低紧密连接蛋白的表达和TEER来损害犊牛小肠上皮屏障功能。当上皮屏障功能受损时,上皮通透性增加,LPS可进入血液循环途径,引起全身炎症反应[36]。先前研究表明,促炎基因TNF-α在LPS诱导的肠道炎症中上调,这会诱导中性粒细胞的激活,进而导致大量其他促炎因子的表达和炎症信号分子的激活[37]。在本研究中,LPS降低了促炎细胞因子TNF-α的表达。因此,LPS可通过破坏犊牛小肠上皮屏障功能和诱导炎症等方式损害犊牛小肠上皮细胞。
从互花蓟叶中提取的TTO衍生物具有抗炎、抗感染以及抗菌等特性[38]。Wang等[39]研究证实,添加TTO可以提高断奶仔猪的生长性能,减少腹泻。然而,TTO对LPS诱导的BIECs的影响目前尚不清楚。本研究表明,在LPS诱导的BIECs中,TTO提高了紧密连接蛋白相关基因的表达和TEER。这一发现与之前的研究结果一致,其他植物提取物的研究也显示了类似的结果。研究表明,花椒精油在结肠炎过程中参与维持紧密连接和调节ZO-1的表达,其主要活性成分也是萜烯-4-醇[40]。Zou等[41]也研究发现,牛至精油可以提高猪空肠occludin和ZO-1的表达。TTO的抗炎作用已被广泛报道。Shao等[42]研究证实,添加TTO后,Vero细胞的炎症反应明显受到抑制。Yang等[43]报道,TTO可抑制棕榈酸诱导的肝细胞炎性因子的产生。Zhan等[23]报道,TTO可以缓解金黄色葡萄球菌引起的BMECs损伤。Hu等[44]报道,TTO可以通过降低促炎因子mRNA表达来减轻LPS诱导的山羊瘤胃上皮细胞损伤。马晓宇等[45]报道,添加TTO可以缓解LPS诱导的奶牛瘤胃上皮细胞炎症因子的表达。在本研究中,与LPS组相比,LPS+TTO组BIECs中TNF-α的mRNA相对表达量显著降低。此外,这些细胞因子水平的变化可能与TTO中的萜烯-4-醇有关[46]。因此,TTO可以提高BIECs中紧密连接蛋白表达和降低促炎因子TNF-α表达。NF-κB是先天免疫系统中必不可少的核转录因子。NF-κB活化参与乳腺炎发展相关的炎症过程[47]。细胞受到各种化学和机械信号的刺激时,会导致核因子-κB抑制因子α(IκBα)磷酸化和分解,NF-κB被磷酸化并转运到细胞核,引发炎症细胞因子的转录[48]。因此,抑制NF-κB活化作为免疫和炎症发生的治疗干预是有意义的[49]。TTO的抗炎能力源于其倾向于阻止NF-κB磷酸化和变性,同时抑制其在BMECs和肝细胞中的DNA结合活性[50-51]。目前的研究发现,TTO阻碍磷酸化的NF-κB p65向细胞核的转移。Hu等[44]研究表明,添加TTO可以降低LPS诱导的山羊瘤胃上皮细胞NF-κB mRNA的表达。马晓宇等[45]研究表明,TTO会减少LPS诱导的奶牛瘤胃上皮细胞p65蛋白的表达。王婷婷[52]研究表明,NF-κB的磷酸化和入核过程反映信号通路的传导抑制,可以增加转录因子NF-κB p65的入核与转录活性,并进一步增加炎症细胞因子的表达和与释放,从而引起瘤胃上皮细胞的炎症损伤。因此,TTO预处理降低了LPS引起的炎症反应,这也与抑制NF-κB激活有关。

4 结论

TTO可以通过上调紧密连接蛋白表达和下调炎性因子表达,缓解LPS诱导的犊牛小肠上皮细胞屏障功能障碍和炎症损伤。
[1]
GROVE-WHITE D H, WHITE D G. Diagnosis and treatment of metabolic acidosis in calves:a field study[J]. The Veterinary Record, 1993, 133(20):499-501.

[2]
SCHUMANN F J, TOWNSEND H G, NAYLOR J M. Risk factors for mortality from diarrhea in beef calves in Alberta[J]. Canadian Journal of Veterinary Research, 1990, 54(3):366-372.

[3]
CHO Y I, YOON K J. An overview of calf diarrhea-infectious etiology,diagnosis,and intervention[J]. Journal of Veterinary Science, 2014, 15(1):1-17.

[4]
GOMEZ D E, RODRIGUEZ-LECOMPTE J C, LOFSTEDT J, et al. Detection of endotoxin in plasma of hospitalized diarrheic calves[J]. Journal of Veterinary Emergency and Critical Care (San Antonio,Tex.: 2001),2019, 29(2):166-172.

[5]
D’HENNEZEL E, ABUBUCKER S, MURPHY L O, et al. Total lipopolysaccharide from the human gut microbiome silences Toll-like receptor signaling[J]. mSystems, 2017, 2(6):e00046-17.

[6]
TAN Y H, ZANONI I, CULLEN T W, et al. Mechanisms of Toll-like receptor 4 endocytosis reveal a common immune-evasion strategy used by pathogenic and commensal bacteria[J]. Immunity, 2015, 43(5):909-922.

DOI PMID

[7]
MA T Y, IWAMOTO G K, HOA N T, et al. TNF-alpha-induced increase in intestinal epithelial tight junction permeability requires NF-kappaB activation[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2004, 286(3):G367-G376.

[8]
ANDERSON J M, VAN ITALLIE C M. Tight junctions and the molecular basis for regulation of paracellular permeability[J]. The American Journal of Physiology, 1995, 269(4Pt 1):G467-G475.

[9]
HOLLANDER D. Crohn’s disease-a permeability disorder of the tight junction?[J]. Gut, 1988, 29(12):1621-1624.

[10]
HOLLANDER D, VADHEIM C M, BRETTHOLZ E, et al. Increased intestinal permeability in patients with Crohn’s disease and their relatives.A possible etiologic factor[J]. Annals of Internal Medicine, 1986, 105(6):883-885.

[11]
MA T Y. Intestinal epithelial barrier dysfunction in Crohn’s disease[J]. Proceedings of the Society for Experimental Biology and Medicine Society for Experimental Biology and Medicine (New York,N.Y.), 1997, 214(4):318-327.

[12]
BAMFORTH S D, LIGHTMAN S L, GREENWOOD J. Ultrastructural analysis of interleukin-1 beta-induced leukocyte recruitment to the rat retina[J]. Investigative Ophthalmology & Visual Science, 1997, 38(1):25-35.

[13]
MCQUAID K E, KEENAN A A K. Physiological society symposium:impaired endothelial and smooth muscle cell function in oxidative stress:endothelial barrier dysfunction and oxidative stress:roles for nitric oxide?[J]. Experimental Physiology, 1997,82:369-376.

[14]
ORMROD D J, MILLER T E. A low molecular weight component derived from the milk of hyperimmunised cows suppresses inflammation by inhibiting neutrophil emigration[J]. Agents and Actions, 1992, 37(1/2):70-79.

[15]
STELWAGEN K, FARR V C, DAVIS S R, et al. EGTA-induced disruption of epithelial cell tight junctions in the lactating caprine mammary gland[J]. The American Journal of Physiology, 1995, 269(4 Pt 2):R848-R855.

[16]
STELWAGEN K, LACY-HULBERT S J. Effect of milking frequency on milk somatic cell count characteristics and mammary secretory cell damage in cows[J]. American Journal of Veterinary Research, 1996, 57(6):902-905.

PMID

[17]
BARRETT K E. New ways of thinking about (and teaching about) intestinal epithelial function[J]. Advances in Physiology Education, 2008, 32(1):25-34.

DOI PMID

[18]
TSUKITA S, FURUSE M, ITOH M. Multifunctional strands in tight junctions[J]. Nature Reviews Molecular Cell Biology, 2001, 2(4):285-293.

DOI PMID

[19]
TURNER J R. Molecular basis of epithelial barrier regulation:from basic mechanisms to clinical application[J]. The American Journal of Pathology, 2006, 169(6):1901-1909.

[20]
OMONIJO F A, NI L J, GONG J, et al. Essential oils as alternatives to antibiotics in swine production[J]. Animal Nutrition, 2018, 4(2):126-136.

DOI PMID

[21]
HAMMER K A. Treatment of acne with tea tree oil (melaleuca) products:a review of efficacy,tolerability and potential modes of action[J]. International Journal of Antimicrobial Agents, 2015, 45(2):106-110.

[22]
SAILER R, BERGER T, REICHLING J, et al. Pharmaceutical and medicinal aspects of Australian tea tree oil[J]. Phytomedicine:International Journal of Phytotherapy and Phytopharmacology, 1998, 5(6):489-495.

[23]
ZHAN K, YANG T Y, FENG B B, et al. The protective roles of tea tree oil extracts in bovine mammary epithelial cells and polymorphonuclear leukocytes[J]. Journal of Animal Science and Biotechnology, 2020,11:62.

[24]
HU Z X, LIN M, MA X Y, et al. Effect of tea tree oil on the expression of genes involved in the innate immune system in goat rumen epithelial cells[J]. Animals, 2021, 11(8):2460.

[25]
DONG L, LIU J, ZHONG Z, et al. Dietary tea tree oil supplementation improves the intestinal mucosal immunity of weanling piglets[J]. Animal Feed Science and Technology, 2019,255:114209.

[26]
ANG Z, DING J L. GPR41 and GPR43 in obesity and inflammation-protective or causative?[J]. Front Immunol, 2016,7:28.

[27]
LIVAK K J, SCHMITTGEN T D. Analysis of relative gene expression data using real-time quantitative PCR and the 2-ΔΔCt method[J]. Methods:a Companion to Methods in Enzymology, 2001, 25(4):402-408.

[28]
MACKIE R I, SGHIR A, GASKINS H R. Developmental microbial ecology of the neonatal gastrointestinal tract[J]. American Journal of Clinical Nutrition, 1999, 69(5):1035S-1045S.

[29]
PETER C S, FEUERHAHN M, BOHNHORST B, et al. Necrotising enterocolitis: is there a relationship to specific pathogens?[J]. European Journal of Pediatrics, 1999, 158(1):67-70.

PMID

[30]
GASSLER N, ROHR C, SCHNEIDER A, et al. Inflammatory bowel disease is associated with changes of enterocytic junctions[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2001, 281(1):G216-G228.

[31]
HERING N A, SCHULZKE J D. Therapeutic options to modulate barrier defects in inflammatory bowel disease[J]. Digestive Diseases (Basel,Switzerland), 2009, 27(4):450-454.

[32]
LANDY J, RONDE E, ENGLISH N, et al. Tight junctions in inflammatory bowel diseases and inflammatory bowel disease associated colorectal cancer[J]. World Journal of Gastroenterology, 2016, 22(11):3117-3126.

DOI PMID

[33]
KUCHARZIK T, WALSH S V, CHEN J, et al. Neutrophil transmigration in inflammatory bowel disease is associated with differential expression of epithelial intercellular junction proteins[J]. American Journal of Pathology, 2001, 159(6):2001-2009.

PMID

[34]
PUTT K K, PEI R S, WHITE H M, et al. Yogurt inhibits intestinal barrier dysfunction in Caco-2 cells by increasing tight junctions[J]. Food & Function, 2017, 8(1):406-414.

[35]
SRINIVASAN B, KOLLI A R, ESCH M B, et al. TEER measurement techniques for in vitro barrier model systems[J]. Journal of Laboratory Automation, 2015, 20(2):107-126.

[36]
BAUMANN H, GAULDIE A J. The acute phase response[J]. Immunology Today, 1994, 15(2):74-80.

DOI PMID

[37]
KANG S J, TANAKA T, KISHIMOTO T. Therapeutic uses of anti-interleukin-6 receptor antibody[J]. International Immunology, 2015, 27(1):21-29.

DOI PMID

[38]
MORI N, USUKI T. Extraction of essential oils from tea tree (Melaleuca alternifolia) and lemon grass (Cymbopogon citratus) using betaine-based deep eutectic solvent (DES)[J]. Phytochemical Analysis, 2022, 33(6):831-837.

[39]
WANG L X, ZHANG Y, LIU L, et al. Effects of three-layer encapsulated tea tree oil on growth performance,antioxidant capacity,and intestinal microbiota of weaned pigs[J]. Frontiers in Veterinary Science, 2021,8:789225.

[40]
ZHANG Z, SHEN P, LIU J, et al. In vivo study of the efficacy of the essential oil of Zanthoxylum bungeanum pericarp in dextran sulfate sodium-induced murine experimental colitis[J]. Journal of Agricultural and Food Chemistry, 2017, 65(16):3311-3319.

[41]
ZOU Y, XIANG Q H, WANG J, et al. Oregano essential oil improves intestinal morphology and expression of tight junction proteins associated with modulation of selected intestinal bacteria and immune status in a pig model[J]. BioMed Research International, 2016,2016:5436738.

[42]
SHAO Q, HUANG J, LI J. Intracellular replication inhibitory effects of tea tree oil on vesicular stomatitis virus and anti-inflammatory activities in Vero cells[J]. Frontiers in Veterinary Science, 2021,8:759812.

[43]
YANG T Y, MA X Y, JIANG M C, et al. The role of tea tree oil in alleviating palmitic acid-induced lipid accumulation in bovine hepatocytes[J]. Frontiers in Veterinary Science, 2021,8:814840.

[44]
HU Z, LIN M, MA X, et al. Effect of tea tree oil on the expression of genes involved in the innate immune system in goat rumen epithelial cells[J]. Animals, 2021, 11(8):2460.

[45]
马晓宇, 彭程, 詹康, 等. 茶树油对脂多糖诱导的奶牛瘤胃上皮细胞炎症因子表达的影响[J]. 动物营养学报, 2020, 32(12):5903-5909.

DOI

MA X Y, PENG C, ZHAN K, et al. Effects of tea tree oil on expression of inflammatory factors in bovine rumen epithelial cells induced by lipopolysaccharide[J]. Chinese Journal of Animal Nutrition, 2020, 32(12):5903-5909. (in Chinese)

[46]
HART P H, BRAND C, CARSON C F, et al. Terpinen-4-ol,the main component of the essential oil of Melaleuca alternifolia (tea tree oil),suppresses inflammatory mediator production by activated human monocytes[J]. Inflammation Research, 2000, 49(11):619-626.

[47]
GONG X X, SU X S, ZHAN K, et al. The protective effect of chlorogenic acid on bovine mammary epithelial cells and neutrophil function[J]. Journal of Dairy Science, 2018, 101(11):10089-10097.

DOI PMID

[48]
NIEDERBERGER E, GEISSLINGER G. The IKK-NF-kappaB pathway:a source for novel molecular drug targets in pain therapy?[J]. FASEB Journal, 2008, 22(10):3432-3442.

[49]
CALZADO M A, BACHER S, SCHMITZ M L. NF-kappaB inhibitors for the treatment of inflammatory diseases and cancer[J]. Current Medicinal Chemistry, 2007, 14(3):367-376.

DOI PMID

[50]
SUN X D, LUO S B, JIANG C H, et al. Sodium butyrate reduces bovine mammary epithelial cell inflammatory responses induced by exogenous lipopolysaccharide, by inactivating NF-kappaB signaling[J]. Journal of Dairy Science, 2020, 103(9):8388-8397

[51]
XU T, MA N, WANG Y, et al. Sodium butyrate supplementation alleviates the adaptive response to inflammation and modulates fatty acid metabolism in lipopolysaccharide-stimulated bovine hepatocytes[J]. Journal of Agricultural and Food Chemistry. 2018, 66(25):6281-6290

DOI PMID

[52]
王婷婷. 亚急性瘤胃酸中毒病牛瘤胃组胺对瘤胃上皮细胞炎性通路的影响[D]. 硕士学位论文. 长春: 吉林大学, 2015.

WANG T T. Effects of histamine on the inflammatory pathways in rumen epithelial cell of cattle with subacute rumen acidosis[D]. Master’s Thesis. Changchun: Jilin University, 2015. (in Chinese)

文章导航

/