研究论文

卫矛醇通过调节Toll样受体4/髓样分化因子88/核因子-κB信号通路缓解脂多糖诱导的猪肠道上皮细胞损伤

  • 王晗 , 1, 2 ,
  • 刘正群 2, * ,
  • 朱龙博 1, 2 ,
  • 李宁 2 ,
  • 郑梓 2 ,
  • 闫峻 , 2, ** ,
  • 穆淑琴 2 ,
  • 孙超 , 1, **
展开
  • 1 西北农林科技大学动物科技学院,杨凌 712100
  • 2 天津市农业科学院畜牧兽医研究所,天津市畜禽分子育种与生物技术重点实验室,天津市畜禽健康养殖工程技术中心,天津 300381
**闫 峻,副研究员,硕士生导师,E-mail: ;
孙 超,教授,博士生导师,E-mail:

*同等贡献作者

王 晗(1999—),女,河南南阳人,硕士研究生,研究方向为单胃动物营养与饲料科学。E-mail:

Copy editor: 武海龙

收稿日期: 2023-12-28

  网络出版日期: 2024-06-07

基金资助

天津市中央引导地方科技发展专项(22ZYCGSN00130)

天津市生猪产业技术体系创新团队(ITTPRS2021007)

天津市农业科学院财政种业创新研究项目(2023ZYCX011)

Dulcitol Alleviates Lipopolysaccharide Induced Porcine Small Intestinal Epithelial Cells Injury by Modulating Toll-Like Receptor 4/Myeloid Differentiation Factor 88/Nuclear Factor-κB Signaling Pathway

  • WANG Han , 1, 2 ,
  • LIU Zhengqun 2 ,
  • ZHU Longbo 1, 2 ,
  • LI Ning 2 ,
  • ZHENG Zi 2 ,
  • YAN Jun , 2, ** ,
  • MU Shuqin 2 ,
  • SUN Chao , 1, **
Expand
  • 1 College of Animal Science and Technology, Northwest A&F University, Yangling 712100, China
  • 2 Tianjin Engineering Research Center of Animal Healthy Farming, Tianjin Key Laboratory of Animal Molecular Breeding and Biotechnology, Institute of Animal Science and Veterinary, Tianjin Academy of Agricultural Sciences, Tianjin 300381, China
**associate professor, E-mail: ;
professor, E-mail:

*Contributed equally

Received date: 2023-12-28

  Online published: 2024-06-07

摘要

本试验旨在通过构建猪肠道上皮细胞(IPEC-J2细胞)经脂多糖(LPS)刺激后细胞损伤模型,揭示卫矛醇(DUL)对LPS处理后的IPEC-J2细胞屏障受损和炎症损伤的缓解作用及其可能的分子机制。采用细胞计数试剂盒-8(CCK-8)检测IPEC-J2细胞活力,以确定LPS造模浓度(150 μg/mL)和最佳DUL处理浓度(200 μmol/L)。试验设3个组:对照(CON)组、LPS组和DUL组。IPEC-J2细胞贴壁后,CON组先用完全培养基处理24 h,然后用DMEM培养基处理24 h;LPS组先用完全培养基处理24 h,然后用含有150 μg/mL LPS的DMEM培养基处理24 h;DUL组先用含有200 μmol/L DUL的完全培养基处理24 h,然后用含有150 μg/mL LPS的DMEM培养基处理24 h。观察各组IPEC-J2细胞生长状态,划痕试验评价细胞的迁移和增殖能力,实时荧光定量PCR(RT-qPCR)法和蛋白质免疫印迹法(Western blot)检测屏障和炎症相关基因的mRNA和蛋白相对表达水平。结果表明:1)在IPEC-J2细胞上,确定200 μmol/L的DUL为最佳处理浓度,150 μg/mL的LPS为有效致炎浓度。2)相较于LPS组,DUL预处理缓解了细胞密度降低、细胞空泡增多、细胞边界不清晰的情况。3)相较于LPS组,DUL预处理显著增加了细胞迁移距离和细胞迁移面积(P<0.05)。4)相较于LPS组,DUL预处理显著升高了屏障相关基因闭锁小带蛋白-1(ZO-1)、闭锁蛋白(OCLN)、封闭蛋白1(CLDN1)的mRNA和蛋白相对表达水平及黏蛋白2(MUC2)、大肿瘤抑制激酶1(LATS1)、YES相关蛋白1(YAP1)的mRNA相对表达水平(P<0.05)。5)相较于LPS组,DUL预处理显著降低了通路相关基因髓样分化因子88(Myd88)、核因子-κB抑制蛋白-α(IκB-α)、核因子-κB(NF-κB)、白细胞介素-1β(IL-1β)的mRNA和蛋白相对表达水平和Toll样受体4(TLR4)的蛋白相对表达水平以及核苷酸结合寡聚化结构域样受体蛋白3(NLRP3)、白细胞介素-18(IL-18)的mRNA表达相对表达水平(P<0.05)。由此可见,DUL通过下调TLR4/Myd88/NF-κB信号通路相关蛋白表达,调节炎症因子分泌,提高紧密连接相关基因表达,缓解LPS引起的IPEC-J2细胞屏障损伤和炎症反应。

本文引用格式

王晗 , 刘正群 , 朱龙博 , 李宁 , 郑梓 , 闫峻 , 穆淑琴 , 孙超 . 卫矛醇通过调节Toll样受体4/髓样分化因子88/核因子-κB信号通路缓解脂多糖诱导的猪肠道上皮细胞损伤[J]. 动物营养学报, 2024 , 36(6) : 3952 -3962 . DOI: 10.12418/CJAN2024.338

Abstract

This experiment was conducted to reveal the mitigating effect of dulcitol (DUL) on lipopolysaccharide (LPS) induced cellular barrier and inflammatory injury of porcine small intestinal epithelial cells (IPEC-J2 cells) and its possible molecular mechanism by establishing a IPEC-J2 cells damage model after stimulated with LPS. The IPEC-J2 cell viability was detected by the cell count kit-8 (CCK-8), to determine the c LPS modeling concentration (150 μg/mL) and the appropriate DUL treatment concentration (200 μmol/L). Three groups were setup in the experimental group: control (CON) group, LPS group and DUL group. After IPEC-J2 cells adhesion, the CON group was firstly treated with complete culture medium for 24 hours, then treated with DMEM medium for 24 hours; the LPS group firstly treated with complete culture medium for 24 hours, then treated with DMEM medium which contained 150 μg/mL LPS for 24 hours; the DUL group firstly treated with complete culture medium which contained 200 μmol/L DUL for 24 hours, then treated with DMEM medium which contained 150 μg/mL LPS for 24 hours. The IPEC-J2 cells growth state in each group was observed, the migration and proliferation ability of the cells was detected by wound healing assay, and the mRNA and protein relative expression levels of the barrier and inflammatory related genes was detected by quantitative real-time PCR (RT-qPCR) and Western blot. The results showed as follows: 1) in IPEC-J2 cells, the appropriate treatment concentration of DUL was 200 μmol/L, and the effective inflammatory concentration of LPS was 150 μg/mL. 2) Compared with the LPS group, the DUL pretreatment alleviated the decreased cell density, increased cell vacuoles and poorly defined cell edges. 3) Compared with the LPS group, the DUL pretreatment significantly increased the cell migration distance and cell migration area (P<0.05). 4) Compared with the LPS group, the DUL pretreatment significantly increased the mRNA and protein relative expression levels of the barrier-associated genes zonula occludens-1 (ZO-1), occludin (OCLN) and claudin-1 (CLDN1) and the mRNA relative expression levels of mucin 2 (MUC2), large tumor suppressor kinase 1 (LATS1) and YES-associated protein 1 (YAP1) (P<0.05). 5) Compared with the LPS group, the DUL pretreatment significantly decreased the mRNA and protein relative expression levels of myeloid differentiation factor 88 (Myd88), inhibitor protein-α of nuclear factor-κB (IκB-α), nuclear factor-κB (NF-κB) and interleukin-1β (IL-1β) and protein relative expression level of Toll-like receptor 4 (TLR4) and mRNA relative expression levels of nucleotide-binding oligomerization domain-like receptor protein 3 (NLRP3) and interleukin-18 (IL-18) (P<0.05). It is concluded that DUL regulates the secretion of inflammatory factors and enhances the expression of tight junction-related genes by down-regulating the expression of proteins related to the TLR4/Myd88/NF-κB signaling pathway, and to alleviate the LPS induced IPEC-J2 cell barrier damage and inflammatory response.

养猪业是我国农业发展的支柱产业,其健康、稳定发展是保证我国民生的重要支撑。肠道是猪营养物质消化吸收的主要部位,同时还是机体内最大的免疫器官,因此,确保猪的肠道健康对稳定养猪生产至关重要[1]。肠道屏障主要由肠上皮细胞、肠黏液层、免疫细胞和微生物及其代谢产物组成,可简单划分为物理屏障、化学屏障、免疫屏障和微生物屏障,共同协作促进营养摄取,抵抗病原入侵[2-3]。当猪的肠道受到刺激时,肠道中促炎因子释放量增加,黏蛋白(MUC)分泌量减少,肠上皮紧密连接受损,会引起肠道有害细菌的定植增加[4-5],轻则引起腹泻、采食量下降、体重减轻等慢性病理反应,重则诱发急性死亡,严重影响经济效益和行业发展。因此,寻找天然植物源成分缓解肠道炎症和屏障损伤对养猪业来说十分具有实用价值。
卫矛醇(dulcitol,DUL)是一种仅包含醇羟基1种官能团的简单多元醇,具有广泛的药理作用,已应用于细菌鉴别、培养基配方、类风湿临床治疗等方面。Kobayashi等[6]研究表明,DUL具有抗炎和免疫调节的功效,能显著减轻胶原刺激引起的小鼠关节炎,并减少脾脏中CD4+、CD8+细胞数量。何沛等[7]研究显示,DUL具有调节肠道菌群的益生作用。此外,同属糖醇类化合物的赤藓糖醇可经肠道菌群的发酵转化为短链脂肪酸,对肥胖和炎症性肠道疾病具有保护作用[8]。植物提取物白藜芦醇对大豆7S球蛋白诱导猪肠道上皮细胞(IPEC-J2细胞)炎性损伤的保护作用也被证明与核因子-κB(NF-κB)/丝裂原活化蛋白激酶(MAPK)信号通路的激活有关[9],对仔猪空肠绒毛高度和隐窝深度有一定的促进作用,能缓解断奶引起的肠道屏障功能受损[10]。本课题组预试验发现,饲粮中添加DUL能够提高猪的生产性能,并有效缓解脂多糖(LPS)诱导的肠道损伤,但其作用机制尚不清晰。因此,本研究通过建立LPS诱导IPEC-J2细胞的损伤模型,研究DUL对IPEC-J2细胞损伤的修复作用及其潜在作用机制,以期为DUL在畜禽肠道健康中的应用提供理论依据,为醇羟基植物化合物的开发利用提供基础。

1 材料与方法

1.1 试验试剂

DUL由中唯国际生命科技有限公司馈赠;IPEC-J2细胞系购自北纳生物科技有限公司;LPS(肠沙门氏菌肠道血清型,L6143)购自美国Sigma-Aldrich公司;DMEM培养基购自美国Gibco公司;低内毒素胎牛血清(fetal bovine serum,FBS)购自杭州四季青生物工程材料有限公司;胰酶、BCA蛋白定量试剂盒和苯甲基磺酰氟(PMSF)蛋白酶抑制剂购自北京索莱宝科技有限公司;放射免疫沉淀试验(RIPA)裂解液、十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)配胶试剂盒和细胞计数试剂盒-8(CCK-8)毒性检测试剂盒购自北京普利莱基因技术有限责任公司;化学发光底物(ECL)发光液购自美国Advansta公司;磷酸盐缓冲液(PBS)和脱脂奶粉购自北京兰杰柯科技有限公司;聚偏二氟乙烯(PVDF)膜购自德国Merck公司;实时荧光定量试剂盒和cDNA反转录试剂盒均购自大连宝生物工程有限公司;0.2 mL八联管购自无锡国盛生物工程股份有限公司;细胞培养皿和培养板购自美国Corning公司;闭锁小带蛋白-1(ZO-1,bs-1329R)、封闭蛋白1(CLDN1,bs-1428R)、闭锁蛋白(OCLN,bs-10011R)、Toll样受体4(TLR4,bs-1021R)、髓样分化因子88(Myd88,bs-1047R)、核因子-κB抑制蛋白-α(IκB-α,bs-1287R)、NF-κB(bs-0465R)、白细胞介素-1β(IL-1β,bs-0812R)、甘油醛-3-磷酸脱氢酶(GAPDH,bs-41373R)、山羊抗兔免疫球蛋白G/辣根过氧化物酶(goat anti-rabbit IgG/HRP,bs-0295G-HRP)等抗体购自北京博奥森生物技术有限公司。

1.2 细胞培养

在37 ℃、5% CO2条件下,用含有8% FBS的完全培养基对IPEC-J2细胞进行培养,当细胞融合达到80%左右水平时,用PBS对细胞表面进行1次润洗,而后适量胰酶消化传代。

1.3 细胞活力检测

通过细胞计数板确定细胞悬液中IPEC-J2细胞密度,5×103个/孔接种96孔板,贴壁后各孔加入100 μL不同浓度LPS(0、50、100、150、200、250 μg/mL)的DMEM培养基。24 h后加入10 μL CCK-8检测液,37 ℃避光培养20 min,酶标仪检测吸光度(OD)值。每个LPS处理的浓度设置6个重复。
通过细胞计数板确定细胞悬液中IPEC-J2细胞密度,2×103个/孔接种96孔板,贴壁后各孔加入100 μL不同浓度DUL(0、100、200、300、400、500 μmol/L)的完全培养基。24 h后加入10 μL CCK-8检测液,37 ℃避光培养20 min,酶标仪检测OD值。每个DUL处理的浓度设置6个重复。
确定LPS造模浓度后,2×103个/孔细胞接种96孔板,贴壁后各孔加入100 μL不同浓度DUL(0、100、150、200、250 μmol/L)的完全培养基。24 h后弃去原培养基,用PBS清洗2遍后,加入100 μL含有最佳LPS造模浓度的DMEM培养基。24 h后加入10 μL CCK-8检测液,37 ℃避光培养20 min,酶标仪检测OD值。每个处理的浓度设置6个重复。

1.4 试验分组

根据1.3所得试验结果确定LPS和DUL处理的浓度。试验设3个组:对照(CON)组、LPS组和DUL组。在CON组中,IPEC-J2细胞贴壁后,先用完全培养基处理24 h,然后用DMEM培养基处理24 h。在LPS组中,IPEC-J2细胞贴壁后,先用完全培养基处理24 h,然后用含有150 μg/mL LPS的DMEM培养基处理24 h。在DUL组中,IPEC-J2细胞贴壁后,先用含有200 μmol/L DUL的完全培养基处理24 h,然后用含有150 μg/mL LPS的DMEM培养基处理24 h。

1.5 细胞迁移能力检测

通过细胞计数板确定细胞悬液中IPEC-J2细胞密度,2×105个/孔接种六孔板,细胞长满后用20μL枪头垂直于孔板制造细胞划痕。按照1.4中方法对各组细胞进行不同处理,0、24、48 h时取出观察细胞迁移情况并于荧光倒置显微镜下拍照,Image J软件进行定量分析。

1.6 实时荧光定量PCR(RT-qPCR)

通过细胞计数板确定细胞悬液中IPEC-J2细胞密度,2×105个/孔接种六孔板。按照1.4中方法对各组细胞进行不同处理,磁珠法提取RNA并反转录合成cDNA。NCBI数据库查询得到猪ZO-1、OCLNCLDN1、MUC2、哺乳动物不育系20样激酶1(MST1)、大肿瘤抑制激酶1(LATS1)、YES相关蛋白1(YAP1)、TLR4、Myd88、IκB-αNF-κBIL-1β、核苷酸结合寡聚化结构域样受体蛋白3(NLRP3)、半胱氨酸天冬氨酸蛋白酶-1(Caspase-1)、白细胞介素-18(IL-18)和GAPDH基因序列,应用NCBI Primer-BLAST设计引物(表1),引物由生工生物工程(上海)股份有限公司合成。以GAPDH为内参,20 μL反应体系:TB Green 10 μL,ddH2O 6 μL,上、下游引物各1 μL,cDNA 2 μL。八联管混匀轻微离心后上机检测,首先95 ℃预变性30 s;其次95 ℃变性5 s,60 ℃延伸30 s,40个循环;最后95 ℃ 15 s,60 ℃ 1 min,95 ℃ 1 s。2-ΔΔCt法计算目的基因的mRNA相对表达水平。
表1 RT-qPCR引物序列

Table 1 Primer sequences for RT-qPCR

基因
Genes
GenBank登录号
GenBank accession No.
引物序列
Primer sequences (5'—3')
甘油醛-3-磷酸脱氢酶
GAPDH
XM_021091114 F:TCAAATGGGGTGATGCTGGT
R:GCAGAAGGGGCAGAGATGAT
闭锁小带蛋白-1
ZO-1
XM003353439.2 F:GATCCTGACCCGGTGTCTGA
R:TTGGTGGGTTTGGTGGGTT
封闭蛋白1
CLDN1
NM_001244539.1 F:CTGTGGATGTCCTGCGTGT
R:GGTTGCTTGCAAAGTGGTGTT
闭锁蛋白
OCLN
NM_001163647.2 F:GAGAGAGTGGACAGCCCCAT
R:TGCTGCTGTAATGAGGCTGC
黏蛋白2
MUC2
XM_021082584.1 F:CTGCTCCGGGTCCTGTGGGA
R:CCCGCTGGCTGGTGCGATAC
哺乳动物不育系20样激酶1
MST1
XM_003132215.4 F:TGCTTTACCCACGACTGCTG
R:AACAGACGGCTTTGTCCTCC
大肿瘤抑制激酶1
LATS1
XM_005659149.3 F:CCACGCACCCTTCTTGGATA
R:TACGGAGGGACAGATGGGTT
YES相关蛋白1
YAP1
XM_021062706.1 F:AAGCACCCTACCTTCACAGC
R:AGCTTCTTGCAGACTTGGCA
Toll样受体4
TLR4
NM_001293316.1 F:TCGTCCTGGCTGGAGTAG
R:ACCTGCCTGTGCTGAGTT
髓样分化因子88
Myd88
NM_001130410 F:TGGTAGTGGTTGTCTCTGATGA
R:TGGAGAGAGGCTGAGTGCAA
核因子-κB抑制蛋白-α
IκB-α
NM_010907.2 F:TGCTGAGGTGGGTGTCATTG
R:CCATCAAGTCTCCCTGACGC
核因子-κB
NF-κB
NM_001114281.1 F:AACAGCAGATGGCCCATACC
R:TTTCACTAGATGCGCCAGGG
白细胞介素-1β
IL-1β
XM_021085847.1 F:GGATTCTTCATCGGCTTC
R:ACCTGGACCTTGGTTCTC
核苷酸结合寡聚化结构域样受体蛋白3
NLRP3
NM_001256770.2 F:GACCTCAGCCAAGATGCAAG
R:TGCCCAGTCCAACATGATCT
半胱氨酸天冬氨酸蛋白酶-1
Caspase-1
NM_214162.1 F:CAGCCCCTCAGACAGTACAA
R:GCAGATTATGAGGGCAAGGC
白细胞介素-18
IL-18
XM_005667327.2 F:ATAGCCAGCCTAGAGGTA
R:ATCAGGAGGATTCATTTC

1.7 蛋白质免疫印迹(Western blot)检测

通过细胞计数板确定细胞悬液中IPEC-J2细胞密度,2×105个/孔接种六孔板,按照1.4中方法对各组细胞进行不同处理,每孔加入200 μL裂解液冰上裂解,移至离心管,12 000 r/min、4 ℃离心10 min取上清。BCA试剂盒检测蛋白浓度后加入二硫苏糖醇(DTT)煮沸10 min。以30 μg/孔的蛋白上样量进行电泳,溴酚蓝染料至分离胶底部约1 cm处后停止。甲醇激活PVDF膜,“三明治”法转膜,根据蛋白大小确定电流大小和转膜时间。转膜结束后,5%脱脂奶粉封闭膜2 h。配制好的TBST溶液稀释适宜浓度的ZO-1(1∶2 000)、CLDN1(1∶1 000)、OCLN(1∶1 000)、TLR4(1∶1 000)、Myd88(1∶1 000)、IκB-α(1∶1 000)、NF-κB(1∶1 000)、IL-1β(1∶1 000)、GAPDH(1∶5 000)抗体,4 ℃冰箱过夜。经TBST洗涤6次后goat anti-rabbit IgG/HRP二抗(1∶5 000)室温孵育1 h,TBST洗涤6次。现配超敏发光液用ePhoto凝胶成像系统发光拍摄。ImageJ软件分析图像条带。

1.8 数据统计与分析

应用SPSS 23.0软件分析数据,采用单因素方差分析(one-way ANOVA),差异显著时采用Duncan氏法进行多重比较,P<0.05表示差异显著。

2 结果与分析

2.1 DUL对LPS刺激后IPEC-J2细胞活力的影响

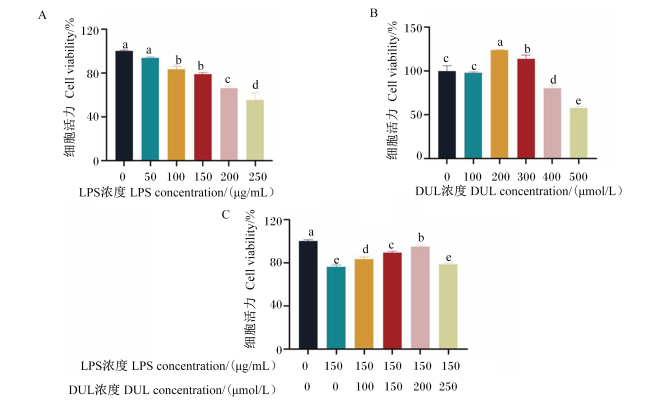
图1-A可知,经不同浓度的LPS与IPEC-J2细胞共培养24 h后,采用CCK-8法检测各组IPEC-J2细胞活力,IPEC-J2细胞活力随LPS浓度增加呈现下降的趋势。与0 μg/mL LPS组相比,150 μg/mL LPS组IPEC-J2细胞活力下降至75%左右,且有显著差异(P<0.05)。因此,选择150 μg/mL的LPS处理作为后续试验的应激条件。
图1 DUL对LPS刺激后IPEC-J2细胞活力的影响

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of DUL on IPEC-J2 cell viability after stimulated with LPS

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

图1-B可知,经不同浓度的DUL处理后,IPEC-J2细胞活力随DUL浓度增加整体呈先上升后下降的趋势。与0 μg/mL DUL组相比,200和300 μmol/L DUL组IPEC-J2细胞活力升高,且有差异显著(P<0.05)。
为进一步确定DUL作用的最佳浓度,在DUL处理后增加了LPS刺激,DUL对LPS诱导的IPEC-J2细胞活力结果如图1-C。结果显示,150 μg/mL LPS+0 μg/mL DUL组IPEC-J2细胞活力相较于0 μg/mL LPS+0 μg/mL DUL组显著下降(P<0.05),而150 μg/mL LPS+200 μmol/L DUL组IPEC-J2细胞活力相较于150 μg/mL LPS+0 μg/mL DUL组显著上升(P<0.05)。以上结果初步表明,DUL治疗后拮抗LPS对IPEC-J2细胞活力的抑制作用,对改善LPS诱导的IPEC-J2细胞损伤具有潜在应用价值,并选用200 μmol/L的DUL进行后续研究。

2.2 DUL对LPS刺激后IPEC-J2细胞形态的影响

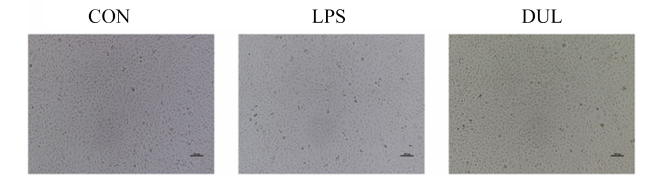
图2可知,与CON组相比,LPS组细胞出现不同程度的细胞密度降低、细胞空泡增多、细胞边界不清晰的情况。与LPS组相比,DUL组细胞密度升高,细胞边界清晰,细胞形态完好。结果表明,DUL可提高LPS诱导的细胞密度,减少LPS诱导的细胞空泡,细胞形态得到恢复。
图2 DUL对LPS刺激后IPEC-J2细胞形态的影响

CON:对照组 control group;LPS:LPS组 LPS group;DUL:DUL组 DUL group。下图同 the same as below。

Fig.2 Effects of DUL on IPEC-J2 cell morphology after stimulated with LPS

2.3 DUL对LPS刺激后IPEC-J2细胞迁移的影响

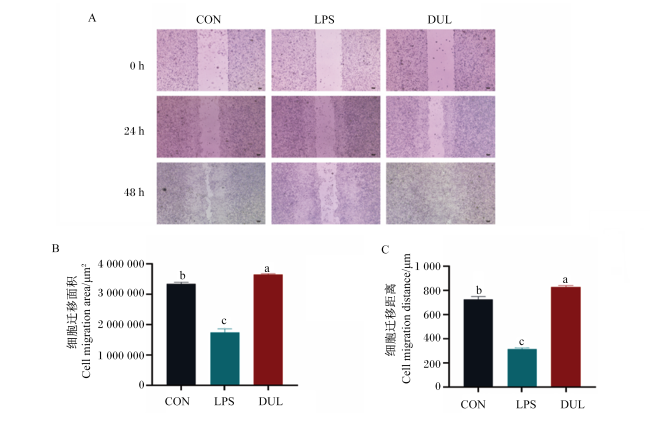
图3可知,与CON组相比,LPS组细胞迁移距离和细胞迁移面积显著降低(P<0.05)。与LPS组相比,DUL组细胞迁移距离和细胞迁移面积显著升高(P<0.05)。结果表明,LPS能抑制细胞的增殖与迁移,而DUL可促进细胞增殖,并增强细胞迁移活力。
图3 DUL对LPS刺激后IPEC-J2细胞迁移的影响

Fig.3 Effects of DUL on IPEC-J2 cell migration after stimulated with LPS

2.4 DUL对LPS刺激后IPEC-J2细胞屏障的影响

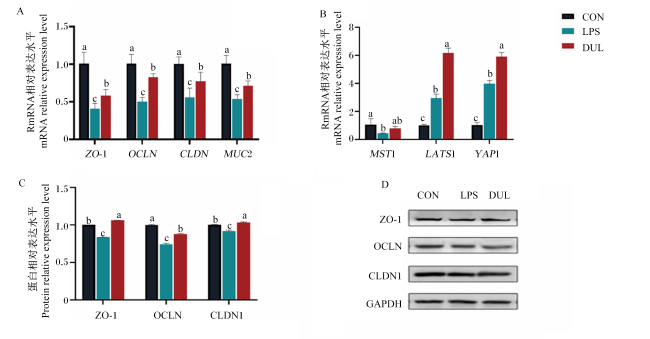
图4可知,与CON组相比,LPS组屏障相关蛋白ZO-1、OCLNCLDNMUC2的mRNA相对表达水平显著降低(P<0.05);与LPS组相比,DUL组屏障相关蛋白ZO-1、OCLNCLDNMUC2的mRNA相对表达水平显著升高(P<0.05)。与LPS组相比,DUL组屏障相关蛋白ZO-1、OCLN、CLDN的蛋白相对表达水平显著升高(P<0.05)。此外,还检测了Hippo通路相关因子的表达,与LPS组相比,DUL组的LATS1和YAP1的mRNA相对表达水平显著升高(P<0.05),MST1的mRNA相对表达水平有所上升但无显著差异(P>0.05)。
图4 DUL对LPS刺激后IPEC-J2细胞屏障的影响

ZO-1:闭锁小带蛋白-1 zonula occludens-1;OCLN:闭锁蛋白:occludin;CLDN1:封闭蛋白1 claudin 1;MUC2:黏蛋白2 mucin 2;MST1:哺乳动物不育系20样激酶1 mammalian sterile 20-like kinase 1;LATS1:大肿瘤抑制激酶1 large tumor suppressor kinase 1;YAP1:YES相关蛋白1 YES-associated protein 1;GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase。

Fig.4 Effects of DUL on IPEC-J2 cells barrier after stimulated with LPS

上述结果共同说明,DUL有助于LPS刺激后IPEC-J2细胞屏障能力的提升。

2.5 DUL对LPS刺激后IPEC-J2细胞炎症通路的影响

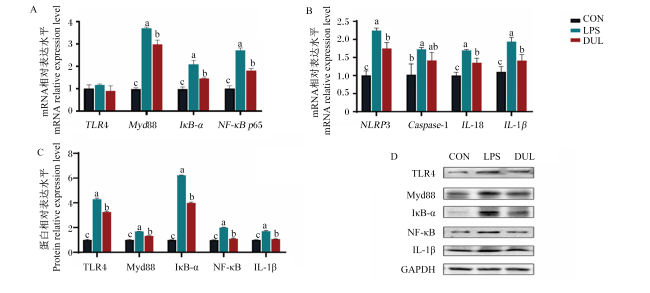
图5-A图5-B可知,与CON组相比,LPS组TLR4的mRNA相对表达水平有所上升但无显著差异(P>0.05),通路相关蛋白Myd88、IκB-αNF-κB和炎症因子NLRP3、Caspase-1、IL-18、IL-1β的mRNA相对表达水平显著升高(P<0.05);与LPS组相比,DUL组TLR4和Caspase-1的mRNA相对表达水平有所下降但无显著差异(P>0.05),通路相关蛋白Myd88、IκB-αNF-κB和炎症因子NLRP3、IL-18、IL-1β的mRNA相对表达水平显著降低(P<0.05)。由图5-C图5-D可知,与LPS组相比,DUL TLR4、Myd88、IκB-α、NF-κB、IL-1β的蛋白相对表达水平显著降低(P<0.05)。上述结果共同说明,DUL有助于LPS刺激后IPEC-J2细胞抗炎能力的提升。
图5 DUL对LPS刺激后IPEC-J2细胞炎症的影响

TLR4:Toll样受体4 Toll-like receptor 4;Myd88:髓样分化因子88 myeloid differentiation factor 88;IκB-α:核因子-κB抑制蛋白-α inhibitor protein-α of nuclear factor-κB;NF-κB:核因子-κB nuclear factor-κB;NLRP3:核苷酸结合寡聚化结构域样受体蛋白3 nucleotide-binding oligomerization domain-like receptor protein 3;Caspase-1:半胱氨酸天冬氨酸蛋白酶-1 cysteinyl aspartate specific proteinase-1;IL-18:白细胞介素-18 interleukin-18;IL-1β:白细胞介素-1β interleukin-1β;GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase。

Fig.5 Effects of DUL on IPEC-J2 cells inflammation after stimulated with LPS

3 讨论

DUL是中草药扶芳藤的主要有效成分,具有抗炎、抗癌、调节免疫的作用[11]。郑璐[12]研究表明,DUL能够通过负向调控TLR4/Myd88/NF-κB通路抑制RAW264.7巨噬细胞的炎症反应,减少一氧化氮(NO)以及各种致炎因子的释放。但当前DUL在畜禽肠道健康方面的研究较少,仅有少数文章说明DUL能够调节肠道菌群,改善动物便秘[7]。本团队前期预实验发现,饲粮中添加DUL能够提高猪的生产性能,有效缓解LPS诱导的肠道损伤。本试验通过构建肠道上皮细胞损伤模型,研究DUL预处理对猪肠道上皮的保护作用,证明DUL缓解LPS诱导IPEC-J2细胞屏障损伤和炎症的作用与TLR4/Myd88/NF-κB通路有关。
肠道屏障由物理、化学、免疫和微生物四大屏障组成,共同抵御外来病原体的攻击。紧密连接是肠道物理屏障的主要连接方式,有起连接和传递信号作用的ZO-1以及构成选择性屏障的结构蛋白OCLN和CLDN1等[13]。化学屏障是由杯状细胞分泌的MUC和上皮细胞分泌的抗菌蛋白组成的黏液层,MUC2是最主要的MUC。众所周知,LPS是革兰氏阴性菌外膜的主要活性成分,能够激活肠道炎症,促进肠道上皮细胞萎缩、坏死、脱落,攻击肠黏膜屏障。屏障受损又会加剧LPS的吸收,形成恶性循环,刺激机体的免疫细胞分泌更多细胞因子和炎性物质[14]。因此,本试验检测了在IPEC-J2细胞上肠道屏障相关蛋白的表达,结果显示,LPS处理显著下调了OCLNCLDN1、ZO-1的mRNA和蛋白相对表达水平以及MUC2的mRNA相对表达水平。这与张冰[15]对LPS攻击肠道屏障的结果一致。而DUL预处理后LPS刺激则显著上调了OCLNCLDN1、ZO-1、MUC2的mRNA相对表达水平,证明了DUL对LPS诱导的肠道屏障损伤具有一定的保护和修复效果。这可能是由于DUL本身的醇类结构,使其可以像同为六元醇的甘露醇一般自由穿越肠道屏障。菅天孜等[16]已证明D-甘露糖可通过调节抗炎和促炎细胞因子之间的平衡而对葡聚糖硫酸钠(DSS)诱导小鼠肠道屏障完整性起改善作用。
细胞划痕试验常用来评估药物或饲料添加剂对正常细胞机械性损伤后修复的影响,体现其对细胞的增殖和迁移能力。本研究结果表明,与单纯LPS处理相比,DUL预处理显著提高了划痕愈合速度和面积,说明200 μmol/L的DUL有效促进了LPS损伤后的增殖和迁移作用。Hippo-YES相关蛋白(YAP)信号通路主要包括上游核心激酶哺乳动物不育系20样激酶(MST)和大肿瘤抑制激酶(LATS)以及下游效应因子YAP,最早发现于果蝇,而后发现也存在哺乳动物体内,见于各类器官组织。研究表明,该通路有助于维持肠道上皮细胞更新和修复损伤组织[17],通过调控杯状细胞的分化过程促进MUC分泌从而对小肠上皮产生保护作用[18]。YAP是Hippo途径的重要效应因子,其活性对于器官生长、细胞增殖、组织更新与再生至关重要[19]。本研究结果显示,DUL预处理后Hippo通路中YAP1的mRNA相对表达水平显著升高,提示DUL可能通过暂时性抑制Hippo/YAP信号通路,激活YAP蛋白的转录活性,从而促进隐窝基部干细胞的增殖分化来修复损伤的肠道上皮层,抑制IPEC-J2细胞的凋亡。
免疫细胞表面TLR4能识别LPS,激活固有免疫反应,释放促炎细胞因子,因此常被用于构建肠炎模型,在小鼠、鸡、猪等动物及细胞上都有广泛研究[20-22]。TLR4/Myd88/NF-κB通路是机体内一条非常经典的炎症信号通路。研究表明,TLR4可表达在巨噬细胞、树突状细胞、淋巴细胞、肠道上皮细胞中[23-26],不过由于肠道中菌群的存在,TLR4信号通路必须受到严格控制,因此生理状态下TLR4在肠道各种细胞类型中都以较低水平表达。在CD14的协助下,TLR4与髓样分化蛋白-2(MD-2)受体识别并结合后发生寡聚化[27],而后与MyD88的羧基端结合,启动下游信号传导。NF-κB位于TLR4/Myd88下游信号通路的关键位置,细胞受到刺激时(如LPS),NF-κB通常与核因子-κB抑制蛋白(IκBs,主要是IκB-α)结合,IκBs磷酸化并被降解,NF-κB从IκBs复合物中分离出来,进入细胞核启动炎症相关基因[IL-1β、肿瘤坏死因子-α(TNF-α)等]的转录和表达[28-29]。本试验结果显示,与CON组相比,LPS处理促进了TLR4、Myd88、IκB-αNF-κBIL-1β的mRNA相对表达水平的升高,而DUL预处理显著逆转了这种趋势。以上结果证实了TLR4/Myd88/NF-κB信号通路与DUL缓解LPS引起的肠上皮细胞炎性损伤有关。这与前人对DUL具有抗炎作用相关报道[6,12]一致。
DUL预处理一定程度抑制了TLR4的mRNA表达,但DUL预处理后TLR4、MyD88等基因的mRNA相对表达水平依旧显著高于对照,这可能是由于DUL在一定程度上阻止配体LPS与TLR4的结合,但DUL作为一种外源添加物本身有可能刺激肠道上皮细胞引发一定免疫反应。而NF-κBIL-1β的mRNA相对表达水平与CON组没有差异,说明可能存在其他通路调控NF-κB的转录和表达。有研究发现,NF-κB还可以刺激NLRP3炎症小体的生成,激活Caspase-1后切割Gasdermin D(GSDMD)产生细胞膜孔隙,释放促炎细胞因子IL-1β和IL-18,引起细胞焦亡[30]。本试验结果显示,DUL预处理显著降低了LPS刺激后的NLRP3、Caspase-1、IL-18等下游炎性因子mRNA相对表达水平,提示DUL可能通过TLR4/Myd88/NF-κB通路抑制下游NLRP3/Caspase-1介导的细胞焦亡。
此外,夏翩翩等[31]研究表明,小鼠肠道组织中YAP蛋白的高表达减少NF-κB通路下游因子NLRP3炎症小体的生成,促进肠黏膜修复;同时,YAP蛋白和转录因子转录增强相关结构域(TEAD)相互作用可以抑制环加氧酶-2(COX-2)的转录,调控炎症反应[32]。但是,DUL通过Hippo/YAP和NF-κB通路互作缓解肠道屏障的机制仍待进一步研究。

4 结论

DUL预处理有效抑制了LPS诱导的IPEC-J2细胞TLR4/Myd88/NF-κB通路的活化,降低下游炎症标志因子IL-1β的基因表达和分泌,升高屏障蛋白ZO-1、CLDN1、OCLNMUC2的基因表达,从而减轻IPEC-J2细胞的屏障损伤和炎症反应。
[1]
王蕾, 易丹, 吴涛, 等. 几种仔猪肠道损伤模型的建立及肠道损伤生物标志物的研究进展[J]. 中国畜牧杂志, 2019, 55(8):6-12.

WANG L, YI D, WU T, et al. Establishment of several porcine models of intestinal injury and identified biomarkers of intestinal injury with these models[J]. Chinese Journal of Animal Science, 2019, 55(8):6-12. (in Chinese)

[2]
MU Q H, KIRBY J, REILLY C M, et al. Leaky gut as a danger signal for autoimmune diseases[J]. Frontiers in Immunology, 2017,8:598.

[3]
TANG X P, XIONG K N, FANG R J, et al. Weaning stress and intestinal health of piglets:a review[J]. Frontiers in Immunology, 2022,13:1042778.

[4]
QIU Y Q, NIE X Z, YANG J, et al. Effect of resveratrol supplementation on intestinal oxidative stress,immunity and gut microbiota in weaned piglets challenged with deoxynivalenol[J]. Antioxidants, 2022, 11(9):1775.

[5]
YIN L M, LI J, WANG M W, et al. Dietary high protein-induced diarrhea and intestinal inflammation by activation of NF-κB signaling in piglets[J]. Animal Nutrition, 2021, 7(4):1070-1077.

DOI PMID

[6]
KOBAYASHI Y, SHEN J, LI S H, et al. Suppressive effects of a plant-origin polyol,dulcitol on collagen-induced arthritis in mice[J]. Folia Pharmacologica Japonica, 1997, 110(Suppl):132-137.

[7]
何沛, 马永华, 刘仁民, 等. 卫矛醇调节人体肠道菌群功能研究[J]. 黑龙江科学, 2021, 12(4):28-31.

HE P, MA Y H, LIU R M, et al. Study on the regulation effect of dulcitol on human intestinal flora[J]. Heilongjiang Science, 2021, 12(4):28-31. (in Chinese)

[8]
KAWANO R, OKAMURA T, HASHIMOTO Y, et al. Erythritol ameliorates small intestinal inflammation induced by high-fat diets and improves glucose tolerance[J]. International Journal of Molecular Sciences, 2021, 22(11):5558.

[9]
付丽佳. 白藜芦醇、槲皮素、秦皮甲素抗大豆7S球蛋白致IPEC-J2细胞炎性损伤和凋亡的研究[D]. 硕士学位论文. 成都: 四川农业大学, 2023.

FU L J. Effects of resveratrol,quercetin and chincetin on inflammatory injury and apoptosis of IPEC-J2 cells induced by soybean 7S globulin[D]. Master’s Thesis. Chengdu: Sichuan Agricultural University, 2023. (in Chinese)

[10]
曾子悠. 饲粮添加白藜芦醇对断奶仔猪肌纤维类型、抗氧化能力及肠道屏障功能的影响[D]. 硕士学位论文. 成都: 四川农业大学, 2019.

ZENG Z Y. Effect of dietary resveratrol supplementation on skeletal muscle fiber type,antioxidant capacity and intestinal barrier function in weaned piglets[D]. Master’s Thesis. Chengdu: Sichuan Agricultural University, 2019. (in Chinese)

[11]
陈玉梅. 广西扶芳藤的质量控制研究[D]. 硕士学位论文. 南宁: 广西中医药大学,2017:86-90.

CHEN Y M. Study on quality control of Euonymus fortunei in Guangxi[D]. Master’s Thesis. Nanning: Guangxi University of Chinese Medicine,2017:86-90. (in Chinese)

[12]
郑璐. 扶芳藤提取物及主要活性成分甜醇对LPS诱导小鼠急性肺损伤的作用及机制研究[D]. 硕士学位论文. 太原: 山西医科大学, 2021.

ZHENG L. Study on the effect and mechanism of Euonymus fortunei (Turcz.) Hand.-Mazz extract and main active ingredient dulcite on LPS-induced acute lung injury in mice[D]. Master’s Thesis. Taiyuan: Shanxi Medical University, 2021. (in Chinese)

[13]
LI C, CAI Y Y, YAN Z X. Brain-derived neurotrophic factor preserves intestinal mucosal barrier function and alters gut microbiota in mice[J]. The Kaohsiung Journal of Medical Sciences, 2018, 34(3):134-141.

DOI PMID

[14]
李强. 抗内毒素IgY生物学效应的实验研究[D]. 硕士学位论文. 重庆: 第三军医大学, 2003.

LI Q. Experimental research of biological effect on anti-lipopolysaccharide IgY antibody[D]. Master’s Thesis. Chongqing: Third Military Medical University of Chinese P. L.A., 2003. (in Chinese)

[15]
张冰. 鼠李糖脂对大鼠和肉鸡免疫功能和肠道健康的影响研究[D]. 硕士学位论文. 杭州: 浙江农林大学, 2021.

ZHANG B. Effects of rhamnolipids on growth performance,immune function and intestinal health in rats and broilers[D]. Master’s Thesis. Hangzhou: Zhejiang Agricultural and Forestry University, 2021. (in Chinese)

[16]
菅天孜, 陈诺, 李理想, 等. D-甘露糖和葡萄糖在溃疡性结肠炎小鼠中的作用[J]. 山东大学学报(医学版), 2022, 60(3):24-28,44.

JIAN T Z, CHEN N, LI L X, et al. Effects of D-mannose and glucose on ulcerative colitis in mice[J]. Journal of Shandong University(Health Sciences), 2022, 60(3):24-28,44. (in Chinese)

[17]
YU F X, MENG Z P, PLOUFFE S W, et al. Hippo pathway regulation of gastrointestinal tissues[J]. Annual Review of Physiology, 2015,77:201-227.

[18]
HICKS-BERTHET J, NING B T, FEDERICO A, et al. Yap/Taz inhibit goblet cell fate to maintain lung epithelial homeostasis[J]. Cell Reports, 2021, 36(2):109347.

[19]
姜秀春, 王德军, 于贺. 木犀草素对博来霉素诱导的肺上皮细胞增殖、凋亡及Hippo/Yes相关蛋白通路的影响[J]. 实用临床医药杂志, 2021, 25(21):83-87.

JIANG X C, WANG D J, YU H. Effect of luteolin on the proliferation,apoptosis and Hippo/Yes-related protein pathway of lung epithelial cells induced by bleomycin[J]. Journal of Clinical Medicine in Practice, 2021, 25(21):83-87. (in Chinese)

[20]
徐佳萌, 孔祥峰, 崔亚东, 等. 中药复方制剂对LPS诱导的肠炎小鼠模型的保护作用[J]. 畜牧与兽医, 2022, 54(5):128-133.

XU J M, KONG X F, CUI Y D, et al. Protective effect of traditional Chinese medicine compound on LPS-induced enteritis model in mice[J]. Animal Husbandry & Veterinary Medicine, 2022, 54(5):128-133. (in Chinese)

[21]
刘颖, 田旭, 冯晓梦, 等. 黄芪多糖对肠炎雏鸡小肠黏膜损伤的保护作用[J]. 中国畜牧兽医, 2023, 50(1):76-85.

DOI

LIU Y, TIAN X, FENG X M, et al. Protective effect of Astragalus polysaccharide on intestinal mucosal injury in chicks with enteritis[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(1):76-85. (in Chinese)

[22]
万凡. 杜仲叶提取物和绿原酸调控仔猪肠道炎症的机制研究[D]. 博士学位论文. 兰州: 兰州大学, 2023.

WAN F. The mechanism study of extract Eucommia ulmoides Oliver leaf and chlorogenic acid in regulating intestinal inflammation of piglets[D]. Ph.D.Thesis. Lanzhou: Lanzhou University, 2023. (in Chinese)

[23]
BRAUN M, VAIBHAV K, SAAD N, et al. Activation of myeloid TLR4 mediates T lymphocyte polarization after traumatic brain injury[J]. Journal of Immunology, 2017, 198(9):3615-3626.

DOI PMID

[24]
RIVELLESE F, SUURMOND J, DE PAULIS A, et al. IgE and IL-33-mediated triggering of human basophils inhibits TLR4-induced monocyte activation[J]. European Journal of Immunology, 2014, 44(10):3045-3055.

DOI PMID

[25]
OLONA A, HATELEY C, MURALIDHARAN S, et al. Sphingolipid metabolism during Toll-like receptor 4 (TLR4)-mediated macrophage activation[J]. British Journal of Pharmacology, 2021, 178(23):4575-4587.

[26]
BACHAR O, ADNER M, UDDMAN R, et al. Toll-like receptor stimulation induces airway hyper-responsiveness to bradykinin,an effect mediated by JNK and NF-κB signaling pathways[J]. European Journal of Immunology, 2004, 34(4):1196-1207.

[27]
LU Y C, YEH W C, OHASHI P S. LPS/TLR4 signal transduction pathway[J]. Cytokine, 2008, 42(2):145-151.

[28]
HAYDEN M S, GHOSH S. Shared principles in NF-κB signaling[J]. Cell, 2008, 132(3):344-362.

[29]
DIDONATO J A, HAYAKAWA M, ROTHWARF D M, et al. A cytokine-responsive IκB kinase that activates the transcription factor NF-κB[J]. Nature, 1997, 388(6642):548-554.

[30]
PRESCOTT J A, MITCHELL J P, COOK S J. Inhibitory feedback control of NF-κB signalling in health and disease[J]. Biochemical Journal, 2021, 478(13):2619-2664.

DOI PMID

[31]
夏翩翩, 邓飞鸿. YAP蛋白通过激活STAT3调控肠上皮细胞增殖在DSS诱导肠炎及相关肠癌中的作用[J]. 中南大学学报(医学版), 2022, 47(12):1637-1645.

XIA P P, DENG F H. YAP regulates intestinal epithelial cell proliferation through activation of STAT3 in DSS-induced colitis and associated cancer[J]. Journal of Central South University (Medical Science), 2022, 47(12):1637-1645. (in Chinese)

[32]
ZHANG Q, HAN X, CHEN J F, et al. Yes-associated protein (YAP) and transcriptional coactivator with PDZ-binding motif (TAZ) mediate cell density-dependent proinflammatory responses[J]. The Journal of Biological Chemistry, 2018, 293(47):18071-18085.

文章导航

/