综述

肠道菌群代谢产物氧化三甲胺调控奶牛肝脏脂质沉积的可能机制

  • 毛永霞 ,
  • 王菲菲 ,
  • 李晨雷 ,
  • 郭延生 , *
展开
  • 宁夏大学动物科技学院,银川 750021
*郭延生,教授,博士生导师,E-mail:

毛永霞(1998—),女,河南周口人,硕士研究生,从事反刍动物营养研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-02-06

  网络出版日期: 2024-07-09

基金资助

国家自然科学基金项目(32160848)

宁夏自然科学基金项目(2023AAC03103)

Possible Mechanism of Gut Microbiota Metabolite Trimethylamine Oxide Regulating Liver Lipid Deposition in Dairy Cows

  • MAO Yongxia ,
  • WANG Feifei ,
  • LI Chenlei ,
  • GUO Yansheng , *
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China

Received date: 2024-02-06

  Online published: 2024-07-09

摘要

氧化三甲胺(TMAO)是一种具有生物活性的肠道菌群代谢产物。饲粮中胆碱、肉碱和甜菜碱经肠道菌群代谢生成三甲胺(TMA),大部分TMA在肝脏进一步被肝黄素依赖性单加氧酶(FMO)氧化为TMAO。近年来,众多研究发现血浆TMAO浓度与心血管疾病、慢性肾病、糖尿病、结直肠癌和非酒精性脂肪肝等疾病呈正相关关系,TMAO在畜禽脂肪沉积中的作用也被证实。本文综述了TMAO的代谢过程、生理功能及其在奶牛脂肪肝发生发展中的潜在作用,以期为高产奶牛脂肪肝发病机制、营养调控和防治研究提供新的方向与思路。

本文引用格式

毛永霞 , 王菲菲 , 李晨雷 , 郭延生 . 肠道菌群代谢产物氧化三甲胺调控奶牛肝脏脂质沉积的可能机制[J]. 动物营养学报, 2024 , 36(7) : 4156 -4162 . DOI: 10.12418/CJAN2024.357

Abstract

Trimethylamine oxide (TMAO) is a biologically active metabolite of the gut microbiota. Choline, betaine and carnitine in the diet are metabolized by the gut microbiota to produce trimethylamine (TMA), most of which is further oxidized to TMAO by flavin-containing monooxygenase (FMO) in the liver. In recent years, numerous studies have found that plasma TMAO concentration is positively correlated with cardiovascular disease, chronic kidney disease, diabetes, colorectal cancer and non-alcoholic fatty liver disease. The role of TMAO in fat deposition in livestock and poultry has also been confirmed. In this paper, the metabolic process, physiological function and potential role of TMAO in the occurrence and development of fatty liver in dairy cows were reviewed, in order to provide new directions and ideas for the pathogenesis, nutritional regulation and prevention of fatty liver in high-yield dairy cows.

肠道中存在着动态多样的微生物群落,它们在人类和动物健康与疾病中起着关键性的作用。肠道微生物产生的各种代谢产物不仅会对肠道自身功能发挥作用,也会对其他器官功能产生一定影响。近年来,肠道微生物代谢产物氧化三甲胺(trimethylamine oxide,TMAO)因具有促进动脉粥样硬化的作用而受到广泛关注[1]。TMAO来源于三甲胺(trimethylamine,TMA),是由肠道微生物代谢胆碱、甜菜碱和左旋肉碱等化合物所产生的。研究发现,血浆TMAO浓度与心血管疾病、慢性肾病、糖尿病和结直肠癌等许多疾病呈正相关关系[2],也与非酒精性脂肪肝病(nonalcoholic fatty liver disease,NAFLD)的发生有关。如Chen等[3]和Theofilis等[4]研究发现,NAFLD患者的循环TMAO浓度较健康对照组显著升高;Flores-Guerrero等[5]研究表明,NAFLD患者的全因死亡率增加与血浆TMAO浓度较高有关。奶牛脂肪肝是一种典型的NAFLD,大约50%的奶牛都会在围产期经历此病,患病后通常会出现肝功能下降、生产瘫痪和子宫内膜炎等,症状较轻者通常会出现产奶量下降、产弱犊等情况,造成奶牛养殖业经济损失严重。目前普遍认为奶牛脂肪肝的发生与围产期能量负平衡而触发的脂肪动员有关[6],但对于肠道菌群代谢产物TMAO能否引起奶牛脂肪肝尚无相关报道。但李万全等[7]研究发现,TMAO具有调控畜禽脂肪沉积的作用。而且本课题组前期研究也发现,奶牛产后0~7 d血清TMAO浓度显著升高[8],此阶段也是奶牛脂肪肝高发阶段。Xu等[9]进一步地证明,相对于健康对照组,产后患脂肪肝的奶牛循环TMAO浓度极显著升高。因此,推测胃肠道菌群介导的TMAO浓度的变化也极有可能参与了奶牛脂肪肝的发生与发展。总之,探究TMAO可能引起奶牛脂肪肝的潜在作用,对于完善奶牛脂肪肝发病机制具有十分重要的意义。

1 TMAO的代谢

1.1 TMAO的来源

TMAO是TMA的含氧产物,肠道菌群代谢饲粮或食物中胆碱、甜菜碱和左旋肉碱等产生TMA。胆碱是动物生长发育中的一种必需营养素,也是生物体内最重要的甲基供体,参与磷脂酰胆碱、乙酰胆碱和甜菜碱的合成,在神经传递、膜合成和脂质转运中发挥重要作用。反刍动物可自身合成或从饲粮的营养成分中获取胆碱。饲粮中的胆碱主要来源于鸡蛋、豆类、鱼和谷物等。细菌代谢胆碱是通过胆碱TMA裂解酶裂解胆碱碳氮键而产生TMA和乙醛[10]。甜菜碱可作为渗透调节剂和甲基供体,但并不是必需营养物质,因为它可由肝脏和肾脏中的游离胆碱在胆碱脱氢酶和甜菜碱醛脱氢酶作用下不可逆地转化而成[11]。甜菜碱在小麦、菠菜及含胆碱食物中的含量很高。甜菜碱可在甜菜碱还原酶的催化作用下被还原分解为TMA和乙酸盐。肉碱是一种季铵化合物,是脂肪酸的新陈代谢过程中长链脂肪酸进入线粒体内参与其氧化的主要跨膜传递媒介,对脂肪酸的氧化过程起着关键作用。肉碱既可由肾脏和肝脏中的赖氨酸和蛋氨酸合成,也可从食物中直接获得。肉碱在肉类、鱼类和家禽等动物性食物中含量最高,在植物中的含量很少。黏质沙雷氏菌(Serratia marcescens)和醋酸钙不动杆菌(Acinetobacter calcoaceticus)等肠道细菌通过切割左旋肉碱中的3-氢过氧丁酰基产生TMA[12]
TMA除了肠道菌群代谢产生外,还可直接从含TMA的食物或饲粮中获得。TMA和TMAO在鱼类和其他海鲜中的浓度很高(高达3 mg/g),其中鳕鱼、黑线鳕等海水鱼类TMAO的浓度普遍高于淡水鱼类。摄入鱼类蛋白质的小鼠血清中TMAO浓度明显高于摄入大豆蛋白质的小鼠。Cho等[13]研究发现,健康男性食用鱼类(含TMAO)比食用鸡蛋(含胆碱)产生的循环TMAO浓度高出50倍左右。因此,在这些膳食来源中,食用鱼类形成的TMAO对循环TMAO浓度的影响最大。

1.2 参与TMAO代谢的肠道菌群

肠道菌群在TMA的生成过程中发挥着十分重要的作用,在广谱抗生素(如环丙沙星、万古霉素或甲硝唑)干预的无菌大鼠尿液中几乎没有发现TMA和TMAO的产生,而停药1个月后,TMAO浓度恢复正常[14]。TMAO前体物质是TMA,TMA主要来自于肠道菌群代谢胆碱、甜菜碱和左旋肉碱等化合物产生。现有研究表明,参与TMA生成的主要菌门包括放线菌门(Actinobacteria)、厚壁菌门(Firmicutes)以及变形菌门(Proteobacteria);主要菌属包括梭菌属(Clostridium)、志贺杆菌属(Shigella)、变形杆菌属(Proteus)和气杆菌属(Aerobacter)[15]。大部分TMA首先通过被动扩散进入肝门静脉,然后转运至肝脏并被肝黄素依赖性单加氧酶(flavin-containing monooxygenase,FMO)1和3氧化为TMAO。研究发现,FMO3产生TMAO浓度比FMO1高出15倍,小鼠肝脏FMO3的过表达会促进TMA的氧化进而使TMAO浓度增加,而FMO3沉默会减少TMA氧化进而使TMAO浓度减低[16],据此推测FMO3极可能是TMA合成TMAO的关键酶。因此,血液和尿液TMAO浓度的高低与肠道菌群的种类和丰度、膳食前体的类型和数量以及FMO3的浓度和活性密切相关。
肠道菌群也可以对TMAO反转化,在哺乳动物中,TMAO在肠道微生物的作用下可被还原成TMA,继而在宿主肝脏转氨酶作用下重新生成TMAO。通过对宏基因组数据挖掘发现,变形菌门可能是TMAO还原为TMA过程中作用最大的菌门,尤其是该菌门中的大肠杆菌属(Escherichia)和克雷伯氏菌属(Klebsiella)[17]。另有研究发现,TMAO的产生主要与肠道菌群CutC/CutDCntA/CntBYeaW/YeaX基因密切相关[18]
另外,虽然肠道是产生TMA的主要部位,但并不是唯一能够产生TMA的部位。TMA是一种挥发性气体,有鱼腥味,TMAO则是挥发性较低的固体。口腔中的微生物会产生挥发性硫化合物和二胺等物质引起口臭,其中一些口腔微生物(如血链球菌)通过胆碱碳氮键的酶促作用将胆碱转化为TMA,引发口腔异味。另有研究发现,阴道中某些甲基营养菌也可形成TMA,故细菌性阴道病中较高的TMA浓度会导致阴道分泌物有鱼腥味[19]。除共生细菌外,一些非共生细菌也能够产生TMA,比如气单胞菌(Aeromonas)、伯克霍尔德菌(Burkholderia)、弯曲杆菌(Campylobacter)、沙门氏菌(Salmonella)、志贺杆菌和弧菌(Vibrio)等[20]
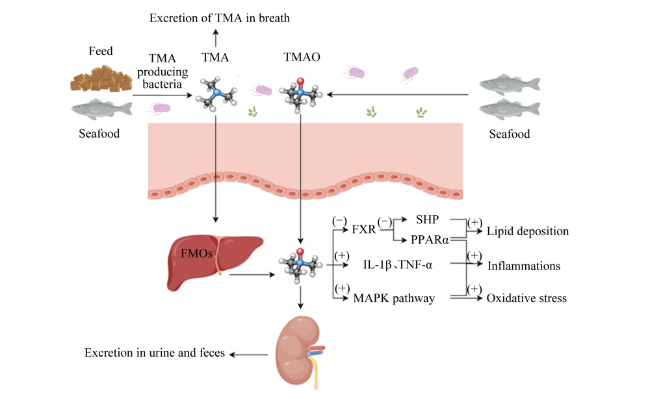
图1 TMAO在体内的代谢和可能机制图(用Figdraw绘制)

TMA:三甲胺 trimethylamine;Excretion of TMA in breath:呼吸中的三甲胺排泄;Feed:饲料;TMA producing bacteria:三甲胺产生细菌;Seafood:海鲜;TMAO:氧化三甲胺 trimethylamine oxide;FMOs:肝黄素依赖性单加氧酶 flavin-containing monooxygenases;FXR:法尼醇X受体 farnesoid X receptor;SHP:小异质二聚体 small heterodimer partner;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferator activated receptor α;IL-1β:白细胞介素-1β interleukin-1β;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;MAPK pathway:激活丝裂原活化蛋白激酶信号通路 mitogen-activated protein kinases pathway;Lipid deposition:脂质沉积;Inflammations:炎症;Oxidative stress:氧化应激;Excretion in urine and feces 尿液和粪便排泄。

Fig.1 Diagram of metabolism and possible mechanisms of TMAO in body (drew by Figdraw)

1.3 TMAO的排泄

TMAO相对分子质量较小,易于滤过。饲粮及机体内源性合成的TMAO可以由肝脏释放并被肝外组织吸收或随尿液排出,大部分通过肾近端小管被排泄出去。TMAO还能够被产甲烷细菌通过脱甲基酶代谢为二甲胺(dimethylamine,DMA)、甲醛、氨和甲烷。研究发现,肾功能与机体循环TMAO浓度呈负相关,肾移植后循环TMAO浓度则异常升高,说明肾脏是TMAO排泄的主要部位[21]。另有研究发现,将放射性同位素标记的TMA或TMAO应用于机体后,24 h内,有高达94.5%的标记物通过尿液排泄,4%的标记物通过粪便排泄,只有不到1%的标记物通过呼吸排泄[22]

2 TMAO生理功能

TMAO在众多生物体中发挥重要的生物学作用。在脊椎生物和海洋生物中,TMAO是一种天然渗透剂,能够调节盐度和静水压力的变化。海洋软体动物、甲壳类动物和鱼类能够在海水的高渗透压环境中利用TMAO来调节细胞体积。Yancey等[23]研究发现,增加TMAO浓度可以减少静水压力对乳酸脱氢酶活性的影响,对机体提供明显的保护作用。TMAO也能调节哺乳动物肾脏中的渗透压,当肾脏因脱水、高尿酸等导致渗透压增大时,肾髓质TMAO浓度增加,进而减缓乳酸脱氢酶等酶的解离速率[24]
TMAO还可通过降低水的氢键能力来实现稳定蛋白质的作用,进而抵消不稳定剂(温度和尿素等)的影响,还能使一些变性蛋白质恢复其天然结构[25]。适宜的TMAO浓度对蛋白质骨架的干扰很小,反而有利于分子的紧凑以及天然结构的形成。但过量的TMAO会诱发β-淀粉样蛋白等非功能性蛋白质聚集体的形成,从而抑制蛋白质功能[26]。因此,机体TMAO稳态对维持蛋白质生理功能发挥至关重要的作用。
TMAO还起到“化学伴侣”的作用,TMAO在内质网聚集有助于蛋白质折叠,进而减弱内质网应激和非折叠蛋白质反应。作为“化学伴侣”的TMAO已被证实在啮齿动物模型中可以减少试验性糖尿病周围神经病变、白内障和哮喘的发生[27]

3 TMAO在脂肪肝发生发展中的可能机制

3.1 TMAO影响胆汁酸(bile acids,BA)代谢

围产期奶牛由于泌乳和营养需求而动用体内储存的脂肪供给能量,在脂肪动员中会产生大量的非酯化脂肪酸(nonesterified fatty acid,NEFA),NEFA在肝脏被脂酰辅酶A(CoA)合成酶转化为脂酰CoA,一部分进入肝内进行氧化提供能量;一部分氧化生成酮体,供肝外组织所利用;另一部分被重新酯化生成甘油三酯(triglyceride,TG)、磷脂和胆固醇酯等,通过极低密度脂蛋白(very low density lipoprotein,VLDL)在肝内排出。然而,反刍动物肝脏对脂肪酸的输出和氧化能力有限,若释放的NEFA超过了肝脏能接受的限度,将会导致肝脏内脂肪酸以TG形式蓄积,进而导致脂肪肝的发生[28]
VLDL是反刍动物肝脏输出TG的主要形式,胆固醇和TG是合成VLDL的主要成分。胆固醇在胆固醇7α羟化酶(cholesterol 7 alpha hydroxylase,CYP7α1)催化下分解为BA。BA作为肝脏和肝外组织的信号因子,可抑制肝内脂肪的合成、促进肝内脂肪的分解和转运。BA在肠肝循环过程中可通过核受体法尼醇X受体(farnesoid X receptor,FXR)的活化,影响肝脏的脂质代谢和胆固醇代谢等过程。Nian等[29]在用TMAO处理的动物模型中发现TMAO干预会导致肝细胞脂滴蓄积和TG含量增加。另有研究进一步发现,TMAO可以通过改变BA代谢或阻断肝脏胰岛素信号通路来影响小鼠肝脏糖、脂代谢和炎症反应[30]
FXR是BA合成的受体,可通过多种机制来调节肝脏BA和脂质代谢。FXR的活化可以诱导非典型核受体小异质二聚体(small heterodimer partner,SHP)并抑制CYP7α1的活性,从而阻碍胆固醇转化为BA,导致肝内胆固醇积累,促进VLDL的合成,有利于TG的清除[31]。FXR激活后还可通过SHP途径下调固醇调节元件结合蛋白-1c(sterol regulatory element-binding protein-1c,SPERBP-1c)表达,降低肝脏TG含量[32]。SPERBP-1c是调节许多脂肪酸和TG合成相关基因的重要转录因子。FXR还可通过诱导过氧化物酶体增殖物激活受体α(peroxisome proliferator activated receptor α,PPARα)表达来增加脂肪酸β氧化过程,减少肝脏脂质积累。但Tan等[33]研究发现,TMAO会抑制FXR的激活,且与肝脏CYP7α1表达呈正相关;TMAO持续性给药会导致高脂饮食小鼠肝脏中TG和脂肪生成增加,而使用FXR激动剂GW4064可阻断TMAO诱导的脂肪生成。因此,TMAO可能通过抑制BA介导的FXR,促进脂质生成,从而加重肝细胞脂质沉积。

3.2 TMAO诱发炎症反应

围产期奶牛持续发生炎性反应可导致患脂肪肝和酮病等代谢性疾病的风险增加8倍[34]。研究发现,脂肪肝奶牛血液中促炎细胞因子肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)含量明显升高,且产前血清TNF-α含量与肝脏脂肪含量有明显的正相关关系[35]。Bradford等[36]对泌乳晚期的奶牛皮下注射TNF-α 7 d后,奶牛肝内TG含量增加1倍。TMAO可能通过多种机制促进炎症反应的发生,研究发现TMAO能够刺激IL-1βTNF-α等促炎因子表达,诱导炎症反应的发生[37]。TMAO可通过抑制FXR激活,进而减少PPARα表达,推动炎症反应的发生[38]。TMAO还可通过激活丝裂原活化蛋白激酶(mitogen-activated protein kinases, MAPK)信号通路来促进炎症反应[39]

3.3 TMAO加重氧化应激

围产期能量负平衡会引起奶牛动员脂肪供能,脂肪动员后产生的大量NEFA会在线粒体进一步氧化生成大量自由基,从而打破了细胞内自由基的平衡,导致奶牛持续处于氧化应激状况,造成肝脏氧化性损伤,易诱发脂肪肝等肝脏疾病的发生[40]。Li等[41]研究发现,患有脂肪肝的奶牛血清超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)活性显著降低,丙二醛(malondialdehyde,MDA)含量显著升高。在人类和小鼠的研究中已证实,脂肪肝动物血清中TMAO和瓜氨酸含量升高,而两者含量增加常伴随着氧化应激和肝脏损伤[42]。TMAO可能通过激活MAPK通路来抑制过氧化物酶体增殖物激活受体γ(peroxisome proliferator activated receptor γ,PPARγ)和核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)的表达,加剧氧化应激和脂肪蓄积。PPARγ抑制后可通过下调铜锌超氧化物歧化酶(copper-zinc superoxide dismutase,Cu/Zn-SOD)mRNA表达,减少SOD产量,从而加重机体氧化应激程度[43]。此外,PPARγ还可通过调节脂肪酸合成酶和硬脂酰CoA脱饱和酶的表达参与脂肪合成;同时,还可以通过调节脂肪运输相关基因的表达来影响脂肪酸代谢和β氧化进而调控脂质代谢。Nrf2是抗氧化机制中具有关键作用的因子,可以上调血红素氧合酶-1(heme oxygenase-1,HO-1)和依赖还原型辅酶Ⅰ(Ⅱ)醌氧化还原酶1[NAD(P)H:quinine oxidoreductase 1,NQO1]等抗氧化因子表达。Zhang等[44]研究发现,抑制Nrf2会导致胆碱缺乏饮食诱导的小鼠抗氧化系统受到抑制,加重氧化应激,促进胆碱缺乏饮食导致的脂肪肝发生。

4 小结与展望

脂肪肝是高产奶牛在泌乳初期容易发生的一种重要营养代谢疾病,不仅对奶牛的健康造成严重威胁,还会导致奶牛产奶性能下降。当前,通过采取科学的集约化饲养提高了围产期奶牛的营养状态,使疾病症状得到明显改善,但其发病机理尚不明确,导致该病的发病率仍未得到有效控制,治疗效果也不太理想。饲粮中胆碱、肉碱和甜菜碱的添加量及肠道菌群和血浆TMAO浓度均与脂肪肝发生发展有密切关系,这为奶牛脂肪肝发病机制的研究提供了一个新的方向与思路。可以预见的是,随着宏基因组学和代谢组学等高通量技术的快速发展与应用,肠道微生物及代谢产物TMAO在奶牛脂肪肝发生发展中的作用将被进一步揭示。
[1]
LI X S, OBEID S, KLINGENBERG R, et al. Gut microbiota-dependent trimethylamine N-oxide in acute coronary syndromes:a prognostic marker for incident cardiovascular events beyond traditional risk factors[J]. European Heart Journal, 2017, 38(11):814-824.

[2]
ROMANO K A, VIVAS E I, AMADOR-NOGUEZ D, et al. Intestinal microbiota composition modulates choline bioavailability from diet and accumulation of the proatherogenic metabolite trimethylamine-N-oxide[J]. mBio, 2015, 6(2):e02481.

[3]
CHEN Y M, LIU Y, ZHOU R F, et al. Associations of gut-flora-dependent metabolite trimethylamine-N-oxide,betaine and choline with non-alcoholic fatty liver disease in adults[J]. Scientific Reports, 2016, 6:19076.

[4]
THEOFILIS P, VORDONI A, KALAITZIDIS R G. Trimethylamine N-oxide levels in non-alcoholic fatty liver disease:a systematic review and meta-analysis[J]. Metabolites, 2022, 12(12):1243.

[5]
FLORES-GUERRERO J L, POST A, VAN DIJK P R, et al. Circulating trimethylamine-N-oxide is associated with all-cause mortality in subjects with nonalcoholic fatty liver disease[J]. Liver International, 2021, 41(10):2371-2382.

[6]
赵慧颖, 余诗强, 赵玉超, 等. 肝脏-脂肪组织代谢串扰在围产期奶牛脂肪肝发展中的作用机制[J]. 畜牧兽医学报, 2023, 54(10):4105-4116.

DOI

ZHAO H Y, YU S Q, ZHAO Y C, et al. Mechanism of liver-adipose tissue crosstalk in the development of fatty liver in periparturient cows[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(10):4105-4116. (in Chinese)

DOI

[7]
李万全, 查安东, 谭碧娥. 菌群代谢物氧化三甲胺调控畜禽脂肪沉积的研究进展[J]. 中国畜牧杂志, 2023, 59(5):40-47.

LI W Q, ZHA A D, TAN B E. Research progress of trimethylamine oxide,a microbiota metabolite,on lipid metabolism in livestock and poultry[J]. Chinese Journal of Animal Science, 2023, 59(5):40-47. (in Chinese)

[8]
王菲菲, 孔维怡, 段静丹, 等. 奶牛围产后期血液代谢物动态变化规律研究[J]. 动物营养学报, 2023, 35(2):953-967.

DOI

WANG F F, KONG W Y, DUAN J D, et al. Study on dynamic change rules of blood metabolites in dairy cows during late perinatal period[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):953-967. (in Chinese)

DOI

[9]
XU C, SUN L W, XIA C, et al. 1H-nuclear magnetic resonance-based plasma metabolic profiling of dairy cows with fatty liver[J]. Asian-Australasian Journal of Animal Sciences, 2016, 29(2):219-229.

[10]
HAYWARD H R, STADTMAN T C. Anaerobic degradation of choline.Fermentation of choline by an anaerobic,cytochrome-producing bacterium,Vibrio cholinicus n. sp.[J]. Journal of Bacteriology, 1959, 78(4):557-561.

[11]
MUÑOZ-CLARES R A, et al.DÍAZ-SÁNCHEZ Á G,GONZÁLEZ-SEGURA L, Kinetic and structural features of betaine aldehyde dehydrogenases:mechanistic and regulatory implications[J]. Archives of Biochemistry and Biophysics, 2010, 493(1):71-81.

[12]
MEADOWS J A, WARGO M J. Carnitine in bacterial physiology and metabolism[J]. Microbiology, 2015, 161(6):1161-1174.

[13]
CHO C E, TAESUWAN S, MALYSHEVA O V, et al. Trimethylamine-N-oxide (TMAO) response to animal source foods varies among healthy young men and is influenced by their gut microbiota composition:a randomized controlled trial[J]. Molecular Nutrition & Food Research, 2017, 61(1):1600324.

[14]
WANG Z N, KLIPFELL E, BENNETT B J, et al. Gut flora metabolism of phosphatidylcholine promotes cardiovascular disease[J]. Nature, 2011, 472(7341):57-63.

[15]
CRACIUN S, BALSKUS E P. Microbial conversion of choline to trimethylamine requires a glycyl radical enzyme[J]. Proceedings of the National Academy of Sciences of the United States of America, 2012, 109(52):21307-21312.

DOI PMID

[16]
BENNETT B J, DE AGUIAR VALLIM T Q, WANG Z N, et al. Trimethylamine-N-oxide,a metabolite associated with atherosclerosis,exhibits complex genetic and dietary regulation[J]. Cell Metabolism, 2013, 17(1):49-60.

[17]
JAMESON E, DOXEY A C, AIRS R, et al. Metagenomic data-mining reveals contrasting microbial populations responsible for trimethylamine formation in human gut and marine ecosystems[J]. Microbial Genomics, 2016, 2(9):e000080.

[18]
ZHU Y J, JAMESON E, CROSATTI M, et al. Carnitine metabolism to trimethylamine by an unusual Rieske-type oxygenase from human microbiota[J]. Proceedings of the National Academy of Sciences of the United States of America, 2014, 111(11):4268-4273.

DOI PMID

[19]
BARRETT E L, KWAN H S. Bacterial reduction of trimethylamine oxide[J]. Annual Review of Microbiology, 1985, 39:131-149.

PMID

[20]
MURAMATSU H, MATSUO H, OKADA N, et al. Characterization of ergothionase from Burkholderia sp. HME13 and its application to enzymatic quantification of ergothioneine[J]. Applied Microbiology and Biotechnology, 2013, 97(12):5389-5400.

[21]
STUBBS J R, HOUSE J A, OCQUE A J, et al. Serum trimethylamine-N-oxide is elevated in CKD and correlates with coronary atherosclerosis burden[J]. Journal of the American Society of Nephrology, 2016, 27(1):305-313.

DOI PMID

[22]
AL-WAIZ M, MITCHELL S C, IDLE J R, et al. The metabolism of 14C-labelled trimethylamine and its N-oxide in man[J]. Xenobiotica, 1987, 17(5):551-558.

[23]
YANCEY P H, SIEBENALLER J F. Trimethylamine oxide stabilizes teleost and mammalian lactate dehydrogenases against inactivation by hydrostatic pressure and trypsinolysis[J]. Journal of Experimental Biology, 1999, 202(Pt 24):3597-3603.

DOI PMID

[24]
AVISON M J, ROTHMAN D L, NIXON T W, et al. 1H NMR study of renal trimethylamine responses to dehydration and acute volume loading in man[J]. Proceedings of the National Academy of Sciences of the United States of America, 1991, 88(14):6053-6057.

PMID

[25]
YANCEY P H, GERRINGER M E, DRAZEN J C, et al. Marine fish may be biochemically constrained from inhabiting the deepest ocean depths[J]. Proceedings of the National Academy of Sciences of the United States of America, 2014, 111(12):4461-4465.

DOI PMID

[26]
LOO R L, CHAN Q, NICHOLSON J K, et al. Balancing the equation:a natural history of trimethylamine and trimethylamine-N-oxide[J]. Journal of Proteome Research, 2022, 21(3):560-589.

[27]
CHO C E, CAUDILL M A. Trimethylamine-N-oxide:friend,foe,or simply caught in the cross-fire?[J]. Trends in Endocrinology and Metabolism, 2017, 28(2):121-130.

[28]
GRUMMER R R. Etiology of lipid-related metabolic disorders in periparturient dairy cows[J]. Journal of Dairy Science, 1993, 76(12):3882-3896.

PMID

[29]
NIAN F L, ZHU C, JIN N Y, et al. Gut microbiota metabolite TMAO promoted lipid deposition and fibrosis process via KRT17 in fatty liver cells in vitro[J]. Biochemical and Biophysical Research Communications, 2023, 669:134-142.

[30]
GAO X, LIU X F, XU J, et al. Dietary trimethylamine N-oxide exacerbates impaired glucose tolerance in mice fed a high fat diet[J]. Journal of Bioscience and Bioengineering, 2014, 118(4):476-481.

DOI PMID

[31]
CHIANG J Y. Bile acid metabolism and signaling[J]. Comprehensive Physiology, 2013, 3(3):1191-1212.

DOI PMID

[32]
KUMARI A, PAL PATHAK D, ASTHANA S. Bile acids mediated potential functional interaction between FXR and FATP5 in the regulation of lipid metabolism[J]. International Journal of Biological Sciences, 2020, 16(13):2308-2322.

DOI PMID

[33]
TAN X Y, LIU Y, LONG J G, et al. Trimethylamine N-oxide aggravates liver steatosis through modulation of bile acid metabolism and inhibition of farnesoid X receptor signaling in nonalcoholic fatty liver disease[J]. Molecular Nutrition & Food Research, 2019, 63(17):e1900257.

[34]
BERTONI G, TREVISI E, HAN X, et al. Effects of inflammatory conditions on liver activity in puerperium period and consequences for performance in dairy cows[J]. Journal of Dairy Science, 2008, 91(9):3300-3310.

DOI PMID

[35]
AMETAJ B N, BRADFORD B J, BOBE G, et al. Strong relationships between mediators of the acute phase response and fatty liver in dairy cows[J]. Canadian Journal of Animal Science, 2005, 85(2):165-175.

[36]
BRADFORD B J, MAMEDOVA L K, MINTON J E, et al. Daily injection of tumor necrosis factor-α increases hepatic triglycerides and alters transcript abundance of metabolic genes in lactating dairy cattle[J]. The Journal of Nutrition, 2009, 139(8):1451-1456.

[37]
CHEN K, ZHENG X Q, FENG M C, et al. Gut microbiota-dependent metabolite trimethylamine N-oxide contributes to cardiac dysfunction in western diet-induced obese mice[J]. Frontiers in Physiology, 2017, 8:139.

DOI PMID

[38]
KORBECKI J, BOBIŃSKI R, DUTKA M. Self-regulation of the inflammatory response by peroxisome proliferator-activated receptors[J]. Inflammation Research, 2019, 68(6):443-458.

DOI PMID

[39]
MA G H, PAN B, CHEN Y, et al. Trimethylamine N-oxide in atherogenesis:impairing endothelial self-repair capacity and enhancing monocyte adhesion[J]. Bioscience Reports, 2017, 37(2):BSR20160244.

[40]
张瑞, 李荣荣, 王腊梅, 等. 氧化应激在非酒精性脂肪肝发病机制中的作用和潜在治疗靶点[J]. 动物营养学报, 2022, 34(12):7602-7615.

DOI

ZHANG R, LI R R, WANG L M, et al. Role of oxidative stress in pathogenesis of non-alcoholic fatty liver disease and potential therapeutic targets[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7602-7615. (in Chinese)

DOI

[41]
LI Y, ZOU S P, DING H Y, et al. Low expression of sirtuin 1 in the dairy cows with mild fatty liver alters hepatic lipid metabolism[J]. Animals, 2020, 10(4):560.

[42]
CECILIANI F, LECCHI C, URH C, et al. Proteomics and metabolomics characterizing the pathophysiology of adaptive reactions to the metabolic challenges during the transition from late pregnancy to early lactation in dairy cows[J]. Journal of Proteomics, 2018, 178:92-106.

DOI PMID

[43]
HWANG J, KLEINHENZ D J, LASSÈGUE B, et al. Peroxisome proliferator-activated receptor-gamma ligands regulate endothelial membrane superoxide production[J]. American Journal of Physiology:Cell Physiology, 2005, 288(4):C899-C905.

[44]
ZHANG Y K J, YEAGER R L, TANAKA Y, et al. Enhanced expression of Nrf2 in mice attenuates the fatty liver produced by a methionine- and choline-deficient diet[J]. Toxicology and Applied Pharmacology, 2010, 245(3):326-334.

DOI PMID

文章导航

/