研究论文

原儿茶酸对肠毒素大肠杆菌K88诱导的猪小肠上皮细胞程序性坏死和Toll样受体4信号通路的影响

  • 龚晗秋 ,
  • 徐晓叶 ,
  • 张敏芳 ,
  • 贺鹏伟 ,
  • 陈少魁 ,
  • 刘玉兰 ,
  • 肖勘 , *
展开
  • 武汉轻工大学动物科学与营养工程学院,动物营养与饲料科学湖北省重点实验室,武汉 430023
*肖勘,副教授,硕士生导师,E-mail:

龚晗秋(2000—),女,湖北松滋人,硕士研究生,从事猪的营养与免疫研究。E-mail:

Copy editor: 武海龙

收稿日期: 2024-01-31

  网络出版日期: 2024-07-09

基金资助

武汉市科技局知识创新专项曙光计划项目(2022020801020394)

Effects of Protocatechuic Acid on Necroptosis and Toll Like Receptor 4 Signaling Pathway in Porcine Small Intestinal Epithelial Cells Induced by Enterotoxigenic Escherichia coli K88

  • GONG Hanqiu ,
  • XU Xiaoye ,
  • ZHANG Minfang ,
  • HE Pengwei ,
  • CHEN Shaokui ,
  • LIU Yulan ,
  • XIAO Kan , *
Expand
  • Hubei Key Laboratory of Animal Nutrition and Feed Science, College of Animal Science and Nutritional Engineering, Wuhan Polytechnic University, Wuhan 430023, China
*E-mail:

Received date: 2024-01-31

  Online published: 2024-07-09

摘要

本试验旨在研究原儿茶酸(PCA)对肠毒素大肠杆菌K88(ETEC K88)诱导的猪小肠上皮细胞(IPEC-1细胞)程序性坏死和Toll样受体4(TLR4)信号通路的影响。试验采用2×2因子设计,分为4个组:对照组、PCA组(40 μmol/L PCA作用24 h)、ETEC K88组(50倍细胞数ETEC K88作用2 h)和PCA+ETEC K88(40 μmol/L PCA作用24 h+50倍细胞数ETEC K88作用2 h)组,每组3个重复。结果显示:1)与对照组相比,ETEC K88组细胞活力显著降低(P<0.05),细胞上清液乳酸脱氢酶(LDH)活性显著升高(P<0.05);与ETEC K88组相比,PCA+ETEC K88组细胞活力显著升高(P<0.05),细胞上清液LDH活性显著降低(P<0.05)。2)与对照组相比,ETEC K88刺激导致细胞形态损伤,超微结构破坏,表现为细胞膜破裂,细胞核皱缩,染色质外溢,线粒体出现肿胀并且空泡化;ETEC K88组细胞坏死率显著升高(P<0.05)。与ETEC K88组相比,添加PCA能够保护细胞形态,PCA+ETEC K88组细胞坏死率显著降低(P<0.05)。3)与对照组相比,ETEC K88组肿瘤坏死因子-α(TNF-α)、TLR4、脂多糖结合蛋白(LBP)、髓样分化蛋白2(MD2)、白细胞介素受体相关激酶1(IRAK1)、肿瘤坏死因子受体相关因子6(TRAF6)和髓样分化因子88(MyD88)的mRNA相对表达显著升高(P<0.05);与ETEC K88组相比,PCA+ETEC K88组TNF-αTLR4、LBPMD2、IRAK1、TRAF6和MyD88的mRNA相对表达量显著降低(P<0.05)。4)与对照组相比,ETEC K88组肿瘤坏死因子受体1(TNFR1)、Fas相关死亡结构域(FADD)、混合系列蛋白激酶样结构域(MLKL)、高迁移率蛋白1(HMGB1)、动力相关蛋白1(Drp1)和磷酸甘油酸变位酶5(PGAM5)的mRNA相对表达量显著升高(P<0.05);与ETEC K88组相比,PCA+ETEC K88组TNFR1、FADDHMGB1、Drp1和PGAM5的mRNA相对表达量显著降低(P<0.05)。由此可见,PCA可能通过抑制细胞程序性坏死和TLR4信号通路的激活,缓解ETEC K88诱导的IPEC-1细胞的炎症反应和损伤。

本文引用格式

龚晗秋 , 徐晓叶 , 张敏芳 , 贺鹏伟 , 陈少魁 , 刘玉兰 , 肖勘 . 原儿茶酸对肠毒素大肠杆菌K88诱导的猪小肠上皮细胞程序性坏死和Toll样受体4信号通路的影响[J]. 动物营养学报, 2024 , 36(7) : 4665 -4676 . DOI: 10.12418/CJAN2024.400

Abstract

This experiment was conducted to study the effects of protocatechuic acid (PCA) on necroptosis and Toll like receptor 4 (TLR4) signaling pathway in porcine small intestinal epithelial cells (IPEC-1 cells) induced by enterotoxigenic Escherichia coli K88 (ETEC K88). The experiment used a 2×2 factor design, divided into four groups: control group, PCA group (40 μmol/L PCA treated 24 h), ETEC K88 group (50 times the number of cells ETEC K88 treated 2 h) and PCA+ETEC K88 group (40 μmol/L PCA treated 24 h+50 times the number of cells ETEC K88 treated 2 h), each group contained 3 replicates. The results showed as follows: 1) compared with the control group, the cell viability of ETEC K88 group was significantly decreased (P<0.05), and the cell supernatant lactate dehydrogenase (LDH) activity was significantly increased (P<0.05); compared with the ETEC K88 group, the cell viability of PCA+ETEC K88 group was significantly increased (P<0.05), and the cell supernatant LDH activity was significantly decreased (P<0.05). 2) Compared with the control group, ETEC K88 treatment resulted in morphological damage and ultrastructural destruction of cells, such as cell membrane rupture, nuclear shrinkage, chromatin overflow, swelling and vacuolation of mitochondria, leading to an increase in cell necrosis rate; the cell necrosis rate of ETEC K88 group was significantly increased (P<0.05). Compared with the ETEC K88 group, adding PCA can protect cell morphology; the cell necrosis rate of PCA+ETEC K88 group was significantly decreased (P<0.05). 3) Compared with the control group, the mRNA relative expression levels of tumor necrosis factor-α (TNF-α), TLR4, lipopolysaccharide binding protein (LBP), myeloid differentiation protein 2 (MD2), interleukin receptor-related kinase 1 (IRAK1), tumor necrosis factor receptor-related factor 6 (TRAF6) and myeloid differentiation factor 88 (MyD88) of ETEC K88 group were significantly increased (P<0.05); compared with the ETEC K88 group, the mRNA relative expression levels of TNF-α, TLR4, LBP, MD2, IRAK1, TRAF6 and MyD88 of PCA+ETEC K88 group were significantly decreased (P<0.05). 4) Compared with the control group, the mRNA relative expression levels of tumor necrosis factor receptor 1 (TNFR1), Fas associated death domain (FADD), mixed lineage kinase like domain protein (MLKL), high mobility protein 1 (HMGB1), dynamin related protein 1 (Drp1) and phosphoglycerate mutase 5 (PGAM5) of ETEC K88 group were significantly increased (P<0.05); compared with the ETEC K88 group, the mRNA relative expression levels of TNFR1, FADD, HMGB1, Drp1 and PGAM5 of PCA+ETEC K88 group were significantly decreased (P<0.05). In conclusion, PCA may alleviate the inflammatory reaction and injury of IPEC-1 cells induced by ETEC K88 by inhibiting activation of necroptosis and TLR4 signaling pathway.

Key words: ETEC K88; PCA; IPEC-1; necroptosis; TLR4

肠道不仅是机体营养物质消化吸收的主要场所,还能够作为屏障抵御有害物质的入侵[1]。当高度复杂的肠道屏障受到有害刺激时,肠道会发生损伤,导致其正常生理功能受到影响[2-3]。肠道损伤与细胞死亡有关,肠上皮细胞死亡会导致肠道功能受损,影响机体健康[4]。肠毒素大肠杆菌K88(enterotoxigenic Escherichia coli K88,ETEC K88)能导致仔猪肠道损伤,引发仔猪断奶后腹泻[5]。ETEC K88能够利用表面菌毛附着到宿主的小肠上皮细胞,并分泌肠毒素,破坏断奶仔猪的肠道屏障功能,引发肠道炎症[6]。Toll样受体4(TLR4)是机体的一种识别受体,可以识别外源病原微生物的病原体,引发机体的炎症反应,TLR4通路被激活后,会导致其下游相关基因的表达增加[7]。病原微生物通过激活机体的免疫反应,使肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)等促炎因子的mRNA相对表达量增加,造成仔猪肠道炎症[8],TNF-α能够进一步诱导程序性坏死信号传导通路[9]。程序性坏死是近年来发现的多种细胞死亡方式之一,此外还有细胞凋亡、自噬等[10-12]。程序性坏死的发生依赖多种信号分子,主要的信号分子有受体相互作用蛋白激酶1(RIP1)、受体相互作用蛋白激酶3(RIP3)、混合系列蛋白激酶样结构域(MLKL)等[13]。研究发现,程序性坏死和TLR4信号通路与肠道损伤密切相关,营养调控程序性坏死和TLR4信号通路可能对维持肠道健康有重要作用。
原儿茶酸(protocatechuic acid,PCA)即3,4-二羟基苯甲酸,属于酚酸类物质、天然酚类化合物,是复合多酚的主要代谢产物之一,例如花青素[14]。PCA存在于中药杜仲中,是多酚类物质抗氧化应激和抗炎的主要活性代谢产物[15]。有研究表明,PCA能改善葡聚糖硫酸钠诱导的小鼠结肠炎[16],此外,PCA还能够通过重塑黏液层、降低肠道通透性等来增强高脂膳食小鼠肠黏膜屏障功能[17]。目前有关PCA对程序性坏死和TLR4信号通路影响的研究较少。本课题组前期研究表明,PCA对炎症反应和程序性坏死有一定的抑制作用[18]。但是,是否是通过TLR4信号通路来影响细胞损伤和炎症反应还未见报道。因此,本试验采用ETEC K88构建猪小肠上皮细胞(IPEC-1细胞)损伤模型,研究PCA能否通过调控程序性坏死和TLR4信号通路缓解ETEC K88诱导的IPEC-1细胞损伤,为改善动物肠道健康提供理论依据。

1 材料与方法

1.1 试验材料

ETEC K88购自中国兽医药品监察所。IPEC-1细胞来自德克萨斯农工大学。PCA(纯度为98%)购自美国Sigma-Aldrich公司。

1.2 试验方法

1.2.1 培养基配制

LB液体培养基:氯化钠(NaCl)5 g,胰蛋白胨5 g,酵母浸粉2.5 g,加500 mL UP水溶解,调节pH为中性,高压灭菌后,保存备用。
LB固体培养基:琼脂10 g,NaCl 5 g,胰蛋白胨5 g,酵母浸粉2.5 g,加500 mL UP水溶解,调节pH为中性,高压灭菌后,倒平板备用。
细胞完全培养基:10%胎牛血清(FBS),1% PSF(100 U/mL青霉素、100 μg/mL链霉素),0.1%胰岛素-转铁蛋白-硒-乙醇胺(ITS-X),0.05%表皮生长因子(EGF),DMEM/F-12基础培养液。
细胞无抗培养基:10% FBS,0.1% ITS-X,0.05% EGF,DMEM/F-12基础培养液。

1.2.2 细菌培养

细菌复苏:从-80 ℃冰箱中取出冻存细菌,37 ℃水浴复苏,吸取10 μL ETEC K88菌液,加入含有10 mL LB液体培养基的细菌瓶中,放入37 ℃恒温摇床,2.25×g,培养12 h。
铺平板:将复壮菌液用接种环于培养皿上划线,正置于37 ℃恒温培养箱培养30 min,而后倒置过夜。
挑选单菌落:取长有单菌落的培养皿,挑选单菌落加入含有10 mL LB液体培养基的细菌瓶中,混匀,放入37 ℃恒温摇床,2.25×g,培养12 h。

1.2.3 细菌处理

取培养好的菌液1 mL,加入1.5 mL无菌EP管中,6 124×g离心5 min,弃去上清,加入1 mL磷酸盐缓冲液(PBS),涡旋离心,重复3次后加入1 mL PBS,吹打均匀,取300 μL悬浊液加入无菌96孔板,于酶标仪测量600 nm处吸光度(OD)值。

1.2.4 细胞培养

细胞复苏与传代:将冻存的IPEC-1细胞置于37 ℃恒温水浴锅解冻,吸取细胞液于无菌EP管,加入新鲜培养基离心,接着将细胞液加入含有2 mL细胞完全培养基的25 cm2培养瓶中,摇晃均匀,置于5%二氧化碳(CO2)、37 ℃的二氧化碳培养箱中,每天更换1次培养基。当细胞贴壁覆盖率达到70%~80%后,对细胞进行传代培养,至2~3代细胞状态稳定后用于后续试验。
细胞计数:吸取10 μL 0.5%台盼蓝染液,按1∶1比例加入细胞悬液中吹打混匀。接着取10 μL混合液,点样于血球计数板,置于低倍镜下(10×10倍)观察计数。

1.3 试验设计

试验分为4个组:对照组、PCA组、ETEC K88组和PCA+ETEC K88组,每组3个重复。根据本课题组前期研究[18],PCA作用浓度为40 μmol/L,作用时间为24 h;ETEC K88作用浓度为50倍细胞数,作用时间为2 h。

1.4 检测指标

1.4.1 细胞形态

将IPEC-1细胞接种于12孔细胞板中,待铺板细胞贴壁长至70%~80%后,用40 μmol/L PCA作用24 h,弃培养液,用PBS清洗2遍,加入含PBS或ETEC K88的无抗培养液,处理2 h后,弃培养液,加入新鲜培养液迅速置于倒置显微镜下观察并拍照。

1.4.2 细胞活力

将IPEC-1细胞接种于96孔细胞板中,待铺板细胞贴壁长至70%~80%后,用40 μmol/L的PCA作用IPEC-1细胞24 h后,用PBS清洗2遍,接着加入100 μL完全培养基(含10% CCK8),避光孵育1.5 h后取出,迅速用酶标仪测定其OD值,测定波长设置为450 nm。

1.4.3 细胞上清液乳酸脱氢酶(LDH)活性

同1.4.1处理后,吸取细胞上清液待测。细胞上清液LDH活性按照试剂盒(购自南京建成生物工程研究所)说明书方法进行测定。

1.4.4 细胞超微结构

同1.4.1处理后,去培养液,然后沿壁缓慢加入1 mL预冷的2.5%戊二醛,4 ℃固定3 h后用细胞刮顺着一个方向轻轻刮下,420×g离心,弃上清,加入1 mL 2.5%戊二醛4 ℃保存。详细测定过程及方法参照华洪葳[19]

1.4.5 细胞TLR4及程序性坏死信号通路相关因子mRNA表达

将胰酶消化的IPEC-1细胞接种于6孔板。同1.4.1处理后,弃培养液,用PBS清洗2次,每孔加入500 μL RNAiso Plus裂解液,静置、吹打,收样待测。以β-肌动蛋白为内参基因,用实时荧光定量PCR分析细胞TLR4及细胞程序性坏死信号通路相关因子mRNA表达。引物序列见表1,PCR样品制备及方法参照陈逢[20]的报道。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
扩增长度
Amplification
length/bp
GenBank登录号
GenBank accession
numbers
肿瘤坏死因子受体1
TNFR1
F:GCCACAAAGGCACCTACCTA
R:GACATTTCACTCCGGCACTT
145 NM_213969
受体相互作用蛋白激酶1
RIP1
F:ACATCCTGTACGGCAACTCT
R:CGGGTCCAGGTGTTTATCC
175 XM_005665538.2
受体相互作用蛋白激酶3
RIP3
F:CTTGTTGTCTGTCCGTGAGC
R:GAGGAGGTTGGGCTGTTGA
238 XM_001927424.3
混合系列蛋白激酶样结构域
MLKL
F:TCTCGCTGCTGCTTCA
R:CTCGCTTGTCTTCCTCTG
105 XM_013998184.1
Fas相关死亡结构域
FADD
F:AAGTGTCTGACGCCAAG
R:CCTCCTGCTGTTCTTCC
101 XM_013987237.1
磷酸甘油酸变位酶5
PGAM5
F:TCTTCATCTGCCACGCCAAT
R:GGTGATGCTGCCGTTGTTG
104 XM_013992365.1
动力相关蛋白1
Drp1
F:TGTGGGCTGCAGGTCATTA
R:TTGCGCTGGGACATTTTAGC
159 NM_001038626.2
高迁移率蛋白1
HMGB1
F:GCCTATCCATTGGTGATGTTG
R:TCCTCCTCCTCCTCCTCAT
260 NM_001004034.1
肿瘤坏死因子-α
TNF-α
F:TCCAATGGCAGAGTGGGTATG
R:AGCTGGTTGTCTTTCAGCTTCAC
67 NM_214022.1
Toll样受体4
TLR4
F:TCAGTTCTCACCTTCCTCCTG
R:GTTCATTCCTCACCCAGTCTTC
166 GQ503242.1
脂多糖结合蛋白
LBP
F:GAACACAGCCGAATGGTCTAC
R:GGAAGGAGTTGGTGGTCAGT
151 NM 001128435.1
髓样分化蛋白2
MD2
F:TGCAATTCCTCTGATGCAAG
R:CCACCATATTCTCGGCAAAT
227 NM_001104956.1
白细胞介素受体相关激酶1
IRAK1
F:CAAGGCAGGTCAGGTTTCGT
R:TTCGTGGGGCGTGTAGTGT
115 XM_003135490.1
肿瘤坏死因子受体相关因子6
TRAF6
F:CAAGAGAATACCCAGTCGCACA
R:ATCCGAGACAAAGGGGAAGAA
122 NM_001105286.1
髓样分化因子88
MyD88
F:GATGGTAGCGGTTGTCTCTGAT
R:GATGCTGGGGAACTCTTTCTTC
148 AB292176.1
β-肌动蛋白
β-actin
F:TGCGGGACATCAAGGAGAAG
R:AGTTGAAGGTGGTCTCGTGG
216 XM_021086047.1

1.5 统计分析

数据采用SPSS 22.0统计软件进行2×2双因素方差分析。模型主效应包括PCA、ETEC K88以及两者互作效应。当PCA和ETEC K88有互作效应时,采用Duncan氏法进行多重比较。P<0.05表示具有显著差异。

2 结果

2.1 PCA对ETEC K88诱导的IPEC-1细胞形态的影响

PCA对ETEC K88诱导的IPEC-1细胞形态的影响见图1。与对照组相比,ETEC K88组细胞形态发生明显变化,出现大量空隙,细胞体积变大,皱缩变圆,大理石纹消失不见;PCA组细胞形态无明显变化。与ETEC K88组相比,PCA+ETEC K88组细胞状态得到明显缓解,空隙变小,体积变小,大理石纹清晰可见,细胞数量明显增多,但均未恢复到正常细胞状态。
图1 PCA对ETEC K88诱导的IPEC-1细胞形态的影响

CON:对照组 control group;ETEC K88:ETEC K88组 ETEC K88 group;PCA:PCA组 PCA group;PCA+ETEC K88:PCA+ETEC K88组 PCA+ETEC K88 group。下图同 the same as below。

Fig.1 Effects of PCA on morphology of IPEC-1 cells induced by ETEC K88 (200×)

2.2 PCA对ETEC K88诱导的IPEC-1细胞活力的影响

PCA对ETEC K88诱导的IPEC-1细胞活力的影响见图2。与对照组相比,PCA组细胞活力显著升高(P<0.05),ETEC K88组细胞活力显著下降(P<0.05),PCA与ETEC K88对细胞活力的影响存在互作效应(P<0.05)。与ETEC K88组相比,PCA+ETEC K88组细胞活力显著升高(P<0.05);但PCA+ETEC K88组细胞活力仍显著低于对照组(P<0.05)。
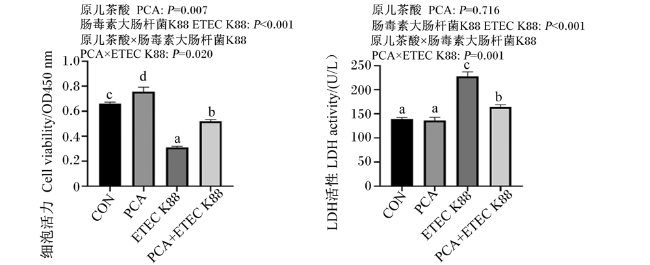
图2 PCA对ETEC K88诱导的IPEC-1细胞损伤的影响

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of PCA on damage of IPEC-1 cells induced by ETEC K88

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.3 PCA对ETEC K88诱导的IPEC-1细胞上清液LDH活性的影响

PCA对ETEC K88诱导的IPEC-1细胞上清液LDH活性的影响见图2。与对照组相比,PCA组细胞上清液LDH活性无显著差异(P>0.05),ETEC K88组细胞上清液LDH活性显著升高(P<0.05)。PCA与ETEC K88对细胞上清液LDH活性的影响存在互作效应(P<0.05)。与ETEC K88组相比,PCA+ETEC K88组细胞上清液LDH活性显著降低(P<0.05);但PCA+ETEC K88组细胞上清液LDH活性仍显著高于对照组(P<0.05)。

2.4 PCA对ETEC K88诱导的IPEC-1细胞坏死率的影响

PCA对ETEC K88诱导的IPEC-1细胞坏死的影响如图3。与对照组相比,PCA组细胞坏死率无显著差异(P>0.05),ETEC K88组细胞坏死率显著升高(P<0.05)。PCA与ETEC K88对细胞坏死率的影响存在互作效应(P<0.05)。与ETEC K88组相比,PCA+ETEC K88组细胞坏死率显著降低(P<0.05);但PCA+ETEC K88组细胞坏死率仍显著高于对照组(P<0.05)。
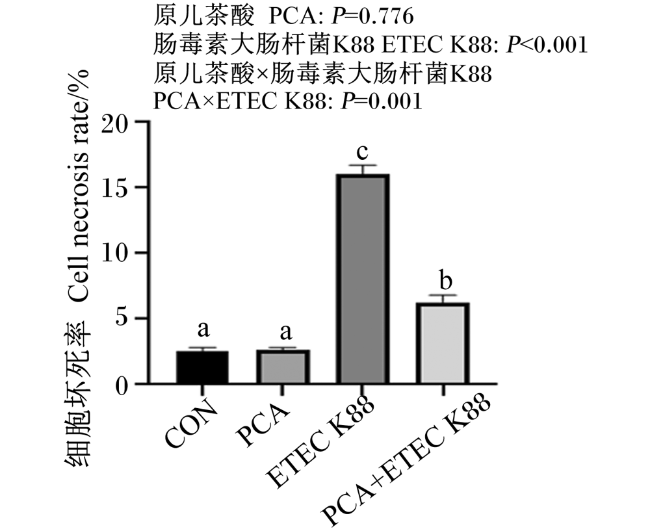
图3 PCA对ETEC K88诱导的IPEC-1细胞坏死率的影响

Fig.3 Effects of PCA on necrosis rate of IPEC-1 cells induced by ETEC K88

2.5 ETEC K88诱导对IPEC-1细胞超微结构的影响

ETEC K88诱导对IPEC-1细胞超微结构的影响见图4。与对照组相比,ETEC K88组细胞超微结构发生明显损伤,细胞膜破裂,胞质溢出,细胞核皱缩,染色质分布散乱,线粒体出现肿胀并且空泡化,细胞内形成大量空泡。
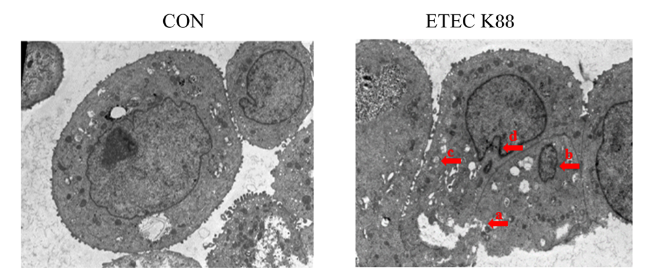
图4 ETEC K88诱导对IPEC-1细胞超微结构的影响

a:细胞膜破裂;b:细胞核皱缩;c:线粒体肿胀;d:染色质外溢。

Fig.4 Effects of ETEC K88 induction on ultrastructure of IPEC-1 cells (2 500×)

a: cell membrane rupture; b: nuclear shrinkage; c: mitochondrial swelling; d: chromatin overflow.

2.6 PCA对ETEC K88诱导的IPEC-1细胞TLR4信号通路相关因子mRNA表达的影响

PCA对ETEC K88诱导的IPEC-1细胞TLR4信号通路相关因子mRNA表达的影响见图5。与对照组相比,ETEC K88组细胞TLR4信号通路TNF-αTLR4、脂多糖结合蛋白(LBP)、髓样分化蛋白2(MD2)、白细胞介素受体相关激酶1(IRAK1)、肿瘤坏死因子受体相关因子6(TRAF6)和髓样分化因子88(MyD88)的mRNA相对表达量显著升高(P<0.05)。PCA与ETEC K88对细胞TLR4信号通路TNF-αTLR4、LBPMD2、IRAK1、TRAF6和MyD88的mRNA相对表达量存在互作效应(P<0.05)。与ETEC K88组相比,PCA+ETEC K88组细胞TLR4信号通路TNF-αTLR4、LBPMD2、IRAK1、TRAF6和MyD88的mRNA相对表达量显著降低(P<0.05);但PCA+ETEC K88组细胞TLR4信号通路TNF-αTLR4、LBPMD2、IRAK1、TRAF6和MyD88的mRNA相对表达量仍显著高于对照组(P<0.05)。
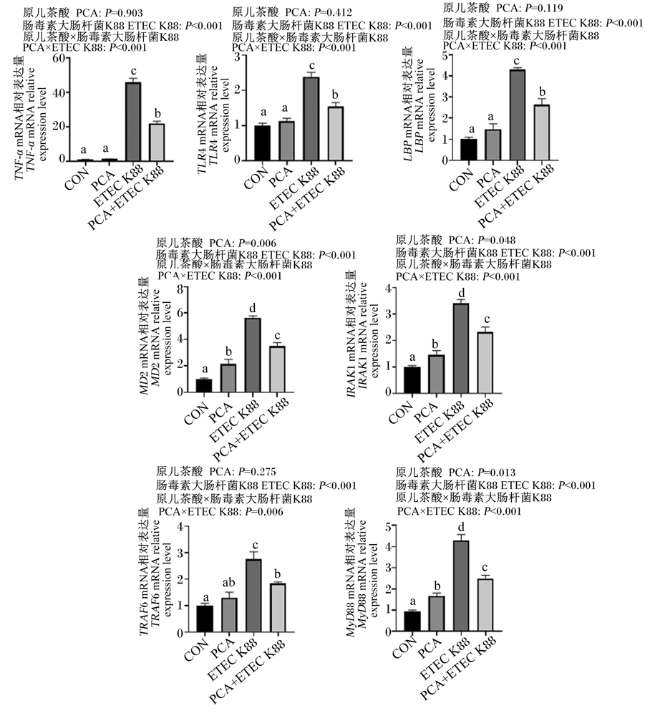
图5 PCA对ETEC K88诱导的IPEC-1细胞TLR4信号通路相关因子mRNA表达的影响

Fig.5 Effects of PCA on expression of factors related to TLR4 signaling pathway of IPEC-1 cells induced by ETEC K88

2.7 PCA对ETEC K88诱导的IPEC-1细胞程序性坏死信号通路相关因子mRNA表达的影响

PCA对ETEC K88诱导的IPEC-1细胞程序性坏死信号通路相关因子mRNA表达的影响见图6。与对照组相比,ETEC K88组细胞程序性坏死信号通路肿瘤坏死因子受体1(TNFR1)、Fas相关死亡结构域(FADD)、MLKL、高迁移率蛋白1(HMGB1)、动力相关蛋白1(Drp1)和磷酸甘油酸变位酶(PGAM5)的mRNA相对表达量显著升高(P<0.05)。PCA与ETEC K88对细胞程序性坏死信号通路TNFR1、FADDMLKLHMGB1、Drp1和PGAM5的mRNA相对表达量存在互作效应(P<0.05)。与ETEC K88组相比,PCA+ETEC K88组细胞程序性坏死信号通路TNFR1、FADDHMGB1、Drp1和PGAM5的mRNA相对表达量显著降低(P<0.05);但PCA+ETEC K88组细胞程序性坏死信号通路TNFR1、FADD的mRNA相对表达量仍显著高于对照组(P<0.05),HMGB1、Drp1和PGAM5的mRNA相对表达量与对照组无显著差异(P>0.05)。
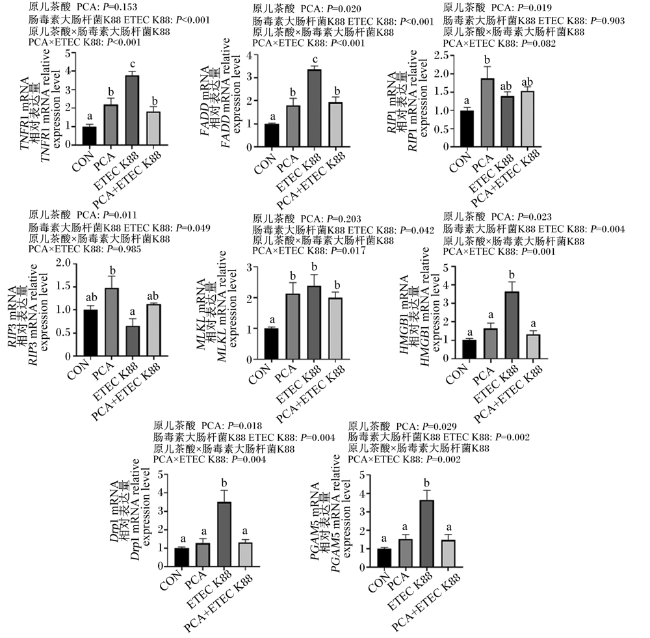
图6 PCA对ETEC K88诱导的IPEC-1细胞程序性坏死信号通路相关因子mRNA表达的影响

Fig.6 Effects of PCA on expression of factors related to necroptosis signaling pathway of IPEC-1 cells induced by ETEC K88

3 讨论

3.1 PCA对ETEC K88诱导的IPEC-1细胞形态的影响

正常的细胞形态完整,边缘清晰,能够完成一系列生理活动[21]。本试验中,用倒置显微镜观察可见,ETEC K88刺激导致IPEC-1细胞形态发生明显改变,如体积变大等,PCA能够明显缓解ETET K88刺激导致的细胞形态改变。Kaewmool等[22]研究发现,PCA预处理小鼠BV2小胶质细胞可以减轻脂多糖(LPS)诱导的BV2细胞形态学改变,与本研究结果相似。

3.2 PCA对ETEC K88诱导的IPEC-1细胞损伤的影响

细胞活力能够反映细胞的状态,良好的细胞状态是维持肠道正常生理功能的基础[23]。本试验中,ETEC K88刺激导致细胞活力显著下降,40 μmol/L PCA处理IPEC-1细胞24 h能够显著提高细胞活力,表明PCA能够增加ETEC K88刺激后的细胞活力。Guan等[24]研究发现,PCA联合胎牛血清(FBS)在体外可以促进神经元的分化,诱导神经元成熟,提高神经元活力,并有效地促进轴突生长。Ju等[25]研究发现,PCA能够通过激活胰岛素样生长因子受体(IGFR)-磷脂酰肌醇3-激酶(PI3K)-蛋白激酶B(Akt)信号通路诱导雪旺细胞增殖,PCA可能通过上调胰岛素样生长因子-Ⅰ(IGF-Ⅰ)和激活PI3K/Akt信号通路促进雪旺细胞的增殖和存活,提高细胞活力。这与本研究结果一致。
LDH可作为细胞损伤和死亡的潜在标志物,当细胞受损时,胞内LDH会大量释放[26]。本试验对LDH活性进行了检测,ETEC K88刺激导致IPEC-1细胞上清液LDH活性显著增加,PCA缓解了ETEC K88导致的细胞上清液LDH活性的增加。Wan等[24]研究发现,细胞氧糖剥夺/复氧(OGD/R)模型显著诱导H9c2细胞乳酸脱氢酶释放,PCA(1.25、2.50和5.00 μmol/L)可有效抑制LDH的释放[27],与本研究结果相似。

3.3 PCA对ETEC K88诱导的IPEC-1细胞坏死率的影响

当细胞受到有害刺激时,细胞器会发生功能障碍,细胞内活性氧生成增加,从而导致细胞坏死[28]。本试验中,透射电镜观察细胞超微结构发现ETEC K88刺激导致细胞线粒体明显肿胀且出现空泡化,细胞超微结构被破坏,出现典型的程序性坏死特征,对每组的坏死细胞进行统计发现,ETEC K88刺激导致IPEC-1细胞坏死率显著上升,PCA能显著缓解ETEC K88刺激导致的IPEC-1细胞坏死率的上升。研究发现,PCA降低了乙酰氨基酚(APAP)诱导的肝癌细胞(HepG2细胞)死亡,缓解了细胞坏死率的上升[29]

3.4 PCA对ETEC K88诱导的IPEC-1细胞TLR4信号通路相关因子mRNA表达的影响

当机体受到有害刺激时,会产生炎症反应[30],TLR4信号通路是介导炎症因子释放的重要通路,TLR4存在于多种细胞的质膜上,通过调控下游LBP等分子,协同参与介导机体的感染过程,TLR4能够诱导多种细胞因子基因的表达,例如TNF-α,从而引发一系列反应[31-32]。本试验结果表明,ETEC K88激活了细胞TLR4信号通路,PCA显著降低了ETEC K88刺激后细胞中TNF-αTLR4、LBPMD2、IRAK1、TRAF6和MyD88的mRNA相对表达量,表明PCA能够抑制ETEC K88导致的TLR4信号通路的激活。Wang等[33]研究发现,PCA抑制了甲型H1N1流感病毒诱导的TLR4/核因子-κB(NF-κB)活化,缓解了甲型H1N1流感病毒感染后小鼠的肺脏功能损伤,抑制了肺部炎症反应,与本试验结果相似。

3.5 PCA对ETEC K88诱导的IPEC-1细胞程序性坏死信号通路相关因子mRNA表达的影响

细胞程序性坏死是一种受分子调控和半胱天冬蛋白酶(Caspase)非依赖性的细胞死亡方式,由RIP1/RIP3引起[34],其中最经典的通路即通过TNF-α诱导的程序性坏死信号传导通路。TNF-α与其受体TNFR1相互作用后,可募集下游一系列信号分子,当Caspase-8的活性受到抑制,磷酸化的RIP1、RIP3和MLKL形成坏死复合体,激活PGAM5和Drp1,导致线粒体破碎和释放HMGB1等细胞内容物[35-36]。本试验结果表明,ETEC K88刺激激活了细胞程序性坏死信号通路,PCA降低了ETEC K88处理后细胞中TNFR1、FADDMLKLHMGB1、Drp1和PGAM5的mRNA相对表达量,表明PCA能够抑制ETEC K88导致的程序性坏死的激活。此外,与对照组相比,PCA单独处理显著提高了FADDRIP1、RIP3的mRNA相对表达量,可能是PCA促进了这些基因对细胞的保护作用,有研究表明,Caspase-8和FADD能够抑制自发性细胞程序性坏死[37];还有研究表明,RIP1的过表达减少了细胞凋亡,RIP1的缺失促进了细胞凋亡,证明RIP1抗细胞凋亡[38];又有研究表明,Pellino1通过RIP1激酶形成RIP1和RIP3复合物,能够作为凋亡抑制剂,降低TNF-α刺激的小鼠胚胎成纤维细胞(MEFs)中细胞FADD样白细胞介素-1β转化酶抑制蛋白(cFLIP)的表达水平[39]。Xiao等[40]研究发现,脑动脉瘤(CA)诱导大鼠细胞因子TNF-α、白细胞介素-6(IL-6)、干扰素-γ(IFN-γ)等水平升高,PCA缓解了TNF-α刺激的巨噬细胞NF-κB通路,抑制了CA的形成,与本研究结果相似。综上所述,PCA对ETEC K88诱导的IPEC-1细胞程序性坏死具有调控作用。

4 结论

PCA可能通过抑制细胞程序性坏死和TLR4信号通路的激活,缓解ETEC K88诱导的IPEC-1细胞的炎症反应和损伤。
[1]
BURGE K, GUNASEKARAN A, ECKERT J, et al. Curcumin and intestinal inflammatory diseases:molecular mechanisms of protection[J]. International Journal of Molecular Sciences, 2019, 20(8):1912.

[2]
BRANDTZAEG P. The gut as communicator between environment and host:immunological consequences[J]. European Journal of Pharmacology, 2011,668(Suppl.1):S16-S32.

[3]
HERING N A, FROMM M, SCHULZKE J D. Determinants of colonic barrier function in inflammatory bowel disease and potential therapeutics[J]. The Journal of Physiology, 2012, 590(5):1035-1044.

DOI PMID

[4]
KARIMI S, JONSSON H, LUNDH T, et al. Lactobacillus reuteri strains protect epithelial barrier integrity of IPEC-J2 monolayers from the detrimental effect of enterotoxigenic Escherichia coli[J]. Physiological Reports, 2018, 6(2):e13514.

[5]
LAIRD T J, ABRAHAM S, JORDAN D, et al. Porcine enterotoxigenic Escherichia coli:antimicrobial resistance and development of microbial-based alternative control strategies[J]. Veterinary Microbiology, 2021, 258:109117.

[6]
DUBREUIL J D, ISAACSON R E, SCHIFFERLI D M. Animal enterotoxigenic Escherichia coli[J]. EcoSal Plus, 2016, 7(1):10.

[7]
刘小刚. 牛磺酸对ETEC所致仔猪肠道炎症的预防作用及机制研究[D]. 硕士学位论文. 沈阳: 沈阳农业大学, 2023.

LIU X G. Preventive effect and mechanism of taurine on intestinal inflammation of piglets induced by ETEC[D]. Master's Thesis. Shenyang: Shenyang Agricultural University, 2023. (in Chinese)

[8]
LÓPEZ-COLOM P, YU K, BARBA-VIDAL E, et al. I-FABP,pig-MAP and TNF-α as biomarkers for monitoring gut-wall integrity in front of Salmonella typhimurium and ETEC K88 infection in a weaned piglet model[J]. Research in Veterinary Science, 2019, 124:426-432.

[9]
张嘉发, 杨灿洪, 张淑芬, 等. 莱菔硫烷通过下调MAPK/NF-κB信号通路逆转Aβ纤维介导的M1型小胶质细胞极化和神经炎症介导的神经干细胞程序性坏死[J]. 南方医科大学学报, 2023, 43(12):2132-2138.

DOI

ZHANG J F, YANG C H, ZHANG S F, et al. Sulforaphane reverses Aβ fiber-mediated M1 type microglia polarization and neuroinflammation-mediated necroptosis of neural stem cells by downregulating the MAPK/NF-κB signaling pathways[J]. Journal of Southern Medical University, 2023, 43(12):2132-2138. (in Chinese)

DOI

[10]
张娜, 郭慧君, 邱建华. 谷氨酰胺对肠产毒素性大肠杆菌感染小鼠肠道损伤的保护作用[J]. 中国畜牧兽医, 2023, 50(10):3939-3949.

DOI

ZHANG N, GUO H J, QIU J H. Protective effect of glutamine on intestinal damage in mice infected with enterotoxigenic Escherichia coli[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(10):3939-3949. (in Chinese)

[11]
AHN D, PRINCE A. Participation of necroptosis in the host response to acute bacterial pneumonia[J]. Journal of Innate Immunity, 2017, 9(3):262-270.

DOI PMID

[12]
DEGTEREV A, HUANG Z H, BOYCE M, et al. Chemical inhibitor of nonapoptotic cell death with therapeutic potential for ischemic brain injury[J]. Nature Chemical Biology, 2005, 1(2):112-119.

DOI PMID

[13]
杨锐, 赵翠娟, 陈吉. 程序性坏死在非酒精性脂肪性肝病发病中的研究进展[J]. 医学研究杂志, 2023, 52(10):191-194.

YANG R, ZHAO C J, CHEN J. Necroptosis in the pathogenesis of nonalcoholic fatty liver disease[J]. Journal of Medical Research, 2023, 52(10):191-194. (in Chinese)

[14]
SUN R M, KANG X H, ZHAO Y, et al. Sirtuin 3-mediated deacetylation of acyl-CoA synthetase family member 3 by protocatechuic acid attenuates non-alcoholic fatty liver disease[J]. British Journal of Pharmacology, 2020, 177(18):4166-4180.

DOI PMID

[15]
HU R Z, HE Z Y, LIU M, et al. Dietary protocatechuic acid ameliorates inflammation and up-regulates intestinal tight junction proteins by modulating gut microbiota in LPS-challenged piglets[J]. Journal of Animal Science and Biotechnology, 2020, 11:92.

DOI PMID

[16]
杜雨师, 王冬亮. 原儿茶酸对葡聚糖硫酸钠诱导小鼠溃疡性结肠炎的改善作用[C]//中国营养学会第十五届全国营养科学大会论文汇编. 北京:中国营养学会,2022:646. DU Y S,WANG D L.Effect of protocatechuic acid on ulcerative colitis induced by dextran sodium sulfate in mice[C]// Proceedings of the 15th National Nutrition Science Conference of China Nutrition Society. Beijing: Chinese Nutrition Society, 2022:646. (in Chinese)

[17]
韩佩恒. 原儿茶酸增强高脂膳食小鼠肠黏膜屏障功能及护肠固体饮料研发[D]. 硕士学位论文. 南昌: 南昌大学, 2023.

HAN P H. Protocatechuic acid enhances intestinal mucosal barrier function in HFD-fed mice and development of intestinal protective solid beverage[D]. Master's Thesis. Nanchang: Nanchang University, 2023. (in Chinese)

[18]
XIAO K, ZHOU M H, LV Q Q, et al. Protocatechuic acid and quercetin attenuate ETEC-caused IPEC-1 cell inflammation and injury associated with inhibition of necroptosis and pyroptosis signaling pathways[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):5.

DOI PMID

[19]
华洪葳. 冬青多酚对氧化应激诱导的仔猪肝脏和肠道损伤的调控作用[D]. 硕士学位论文. 武汉: 武汉轻工大学, 2020.

HUA H W. Regulatory effect of Ilex pubescens polyphenols on liver and intestinal injury induced by oxidative stress in piglets[D]. Master's Thesis. Wuhan: Wuhan Polytechnic University, 2020. (in Chinese)

[20]
陈逢. 鱼油通过TLR4和NOD信号通路对脂多糖诱导的仔猪肠道、肝脏损伤和肌肉蛋白质降解的调控作用[D]. 硕士学位论文. 武汉: 武汉轻工大学, 2013.

CHEN F. Regulative role of fish oil on intestinal and liver injury, and muscle protein degradation of piglets after lipopolysaccharide challenge through TLR4 and NOD signaling pathway[D]. Master's Thesis. Wuhan: Wuhan Polytechnic University, 2013. (in Chinese)

[21]
BLASI B, D'ALESSANDRO A, RAMUNDO N, et al. Red blood cell storage and cell morphology[J]. Transfusion Medicine, 2012, 22(2):90-96.

DOI PMID

[22]
KAEWMOOL C, KONGTAWELERT P, PHITAK T, et al. Protocatechuic acid inhibits inflammatory responses in LPS-activated BV2 microglia via regulating SIRT1/NF-κB pathway contributed to the suppression of microglial activation-induced PC12 cell apoptosis[J]. Journal of Neuroimmunology, 2020, 341:577164.

[23]
BENARD G, KARBOWSKI M. Mitochondrial fusion and division:regulation and role in cell viability[J]. Seminars in Cell & Developmental Biology, 2009, 20(3):365-374.

[24]
GUAN S, ZHANG X L, GE D, et al. Protocatechuic acid promotes the neuronal differentiation and facilitates survival of phenotypes differentiated from cultured neural stem and progenitor cells[J]. European Journal of Pharmacology, 2011, 670(2/3):471-478.

[25]
JU D T, LIAO H E, SHIBU M A, et al. Nerve regeneration potential of protocatechuic acid in RSC96 schwann cells by induction of cellular proliferation and migration through IGF-IR-PI3K-Akt signaling[J]. The Chinese Journal of Physiology, 2015, 58(6):412-419.

[26]
LEGRAND C, BOUR J M, JACOB C, et al. Lactate dehydrogenase (LDH) activity of the number of dead cells in the medium of cultured eukaryotic cells as marker[J]. Journal of Biotechnology, 1992, 25(3):231-243.

[27]
WAN Y J, WANG Y H, GUO Q, et al. Protocatechualdehyde protects oxygen-glucose deprivation/reoxygenation-induced myocardial injury via inhibiting PERK/ATF6α/IRE1α pathway[J]. European Journal of Pharmacology, 2021, 891:173723.

[28]
GOLSTEIN P, KROEMER G. Cell death by necrosis:towards a molecular definition[J]. Trends in Biochemical Sciences, 2007, 32(1):37-43.

[29]
HORNG C T, LIU Z H, HUANG Y T, et al. Extract from Mulberry (Morus australis) leaf decelerate acetaminophen induced hepatic inflammation involving downregulation of myeloid differentiation factor 88 (MyD88) signals[J]. Journal of Food and Drug Analysis, 2017, 25(4):862-871.

[30]
潘海敏, 许洪玲, 陈晗, 等. 黄连乌梅提取物联合使用抑制脂多糖诱导的细胞炎症反应及机制研究[J]. 中药药理与临床, 2024, 40(3):42-48.

PAN H M, XU H L, CHEN H, et al. Study on the inhibition of lipopolysaccharide-induced cellular inflammatory response by combined use of Coptidis rhizoma and Mume fructus extracts and its mechanism[J]. Pharmacology and Clinics of Chinese Materia Medica, 2024, 40(3):42-48. (in Chinese)

[31]
伦英俊, 陈晨, 高宏程, 等. TLR4/NF-κB通道在糖尿病视网膜病变中的作用[J]. 山东大学耳鼻喉眼学报, 2024, 38(2):163-168.

LUN Y J, CHEN C, GAO H C, et al. Role of Toll-like receptor 4/nuclear transcription factor-κB channels in diabetic retinopathy[J]. Journal of Otolaryngology and Ophthalmology of Shandong University, 2024, 38(2):163-168. (in Chinese)

[32]
刘真真, 张潇, 王丽娟, 等. TLR4/NF-κB信号通路表达与脑梗死患者并发肺部感染的关联及其危险因素[J/OL]. 中华医院感染学杂志, 2024(7):978-982[2024-03-20]. http://kns.cnki.net/kcms/detail/11.3436.R.20240202.1012.008.html.

LIU Z Z, ZHANG X, WANG L J, et al. Relationship between TLR4/NF-κB signaling pathway expression and pulmonary infection in patients with cerebral infarction and its risk factors[J/OL]. Chinese Journal of Nosocomiology, 2024(7):978-982[2024-03-20]. http://kns.cnki.net/kcms/detail/11.3436.R.20240202.1012.008.html.

[33]
WANG Q, REN X J, WU J H, et al. Protocatechuic acid protects mice from influenza A virus infection[J]. European Journal of Clinical Microbiology & Infectious Diseases, 2022, 41(4):589-596.

[34]
WU X N, YANG Z H, WANG X K, et al.Distinct roles of RIP1-RIP3 hetero- and RIP3-RIP3 homo-interaction in mediating necroptosis[J]. Cell Death and Differentiation, 2014, 21(11):1709-1720.

[35]
NAGATA S, TANAKA M. Programmed cell death and the immune system[J]. Nature Reviews Immunology, 2017, 17(5):333-340.

DOI PMID

[36]
ZHANG Y Y, CHEN X, GUEYDAN C, et al. Plasma membrane changes during programmed cell deaths[J]. Cell Research, 2018, 28(1):9-21.

DOI PMID

[37]
RODRIGUEZ D A, QUARATO G, LIEDMANN S, et al. Caspase-8 and FADD prevent spontaneous ZBP1 expression and necroptosis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2022, 119(41):e2207240119.

[38]
LIAO Y, WANG H X, MAO X, et al. RIP 1 is a central signaling protein in regulation of TNF-α/TRAIL mediated apoptosis and necroptosis during Newcastle disease virus infection[J]. Oncotarget, 2017, 8(26):43201-43217.

DOI PMID

[39]
ZHANG E, LI X. The emerging roles of pellino family in pattern recognition receptor signaling[J]. Frontiers in Immunology, 2022, 13:728794.

[40]
XIAO G, ZHANG M, PENG X, et al. Protocatechuic acid attenuates cerebral aneurysm formation and progression by inhibiting TNF-alpha/Nrf-2/NF-kB-mediated inflammatory mechanisms in experimental rats[J]. Open Life Sciences, 2021, 16(1):128-141.

DOI PMID

文章导航

/