研究论文

育成期能量限饲对6~24周龄蛋鸡生长发育、激素水平和卵巢类固醇激素生成关键基因表达的影响

  • 卢建 ,
  • 王强 ,
  • 王星果 ,
  • 郭军 ,
  • 马猛 ,
  • 李永峰 ,
  • 窦套存 ,
  • 胡玉萍 ,
  • 邵丹 ,
  • 童海兵 ,
  • 曲亮 , *
展开
  • 江苏省家禽科学研究所,扬州 225125
*曲 亮,研究员,E-mail:

卢 建(1985—),男,山东济宁人,副研究员,博士,主要从事蛋鸡营养代谢与繁殖性能调控研究。E-mail:

收稿日期: 2024-03-02

  网络出版日期: 2024-08-12

基金资助

江苏现代农业产业技术体系建设专项资金项目(JATS[2023]361)

江苏省种业振兴揭榜挂帅项目(JBGS[2021]104)

现代农业产业技术体系建设专项资金(CARS-40-K01)

江苏现代农业产业技术体系建设项目(JATS[2023]069)

Effects of Energy-Restricted Feeding during Growing Period on Growth and Development, Hormone Level and Key Genes Involved in Ovarian Steroid Hormone Synthesis of Laying Hens Aged from 6 to 24 Weeks

  • LU Jian ,
  • WANG Qiang ,
  • WANG Xingguo ,
  • GUO Jun ,
  • MA Meng ,
  • LI Yongfeng ,
  • DOU Taocun ,
  • HU Yuping ,
  • SHAO Dan ,
  • TONG Haibing ,
  • QU Liang , *
Expand
  • Jiangsu Institute of Poultry Sciences, Yangzhou 225125, China
*professor, E-mail:

Received date: 2024-03-02

  Online published: 2024-08-12

摘要

本试验旨在研究育成期(6~17周龄)能量限饲对6~24周龄蛋鸡生长发育、激素水平和卵巢类固醇激素生成关键基因表达的影响。试验选用6周龄海兰褐蛋鸡720只,随机分成3组,每组6个重复,每个重复40只。6~17周龄,3组试验鸡分别饲喂代谢能(ME)水平为12.34(对照组)、11.11(90%能量限饲组)和9.87 MJ/kg(80%能量限饲组)且其他营养水平相同的试验饲粮。18~24周龄,各组试验鸡均饲喂相同的试验饲粮。试验期18周。结果表明:1)随着6~17周龄能量限饲强度增加,17周龄体重、腹脂率、心脏指数和胫骨重以及20周龄体重、腹脂率、股骨重、胫骨重和跖骨重均呈显著线性降低(P<0.05),17周龄胰脏指数、20周龄肝脏指数以及17和20周龄股骨、胫骨和跖骨长度体重比均呈显著线性增加(P<0.05)。6~17周龄能量限饲对24周龄屠体、内脏器官和骨骼发育指标均无显著影响(P>0.05)。2)随着6~17周龄能量限饲强度增加,24周龄血清尿素氮(UN)含量呈显著线性降低(P<0.05),血清高密度脂蛋白(HDL)含量呈显著线性增加(P<0.05)。6~17周龄能量限饲对24周龄其他血清生化指标和肝脏生化指标均无显著影响(P>0.05)。3)80%能量限饲组24周龄血浆孕酮水平显著高于对照组和90%能量限饲组(P<0.05)。4)在卵巢基质部,17、20和24周龄80%和90%能量限饲组36个基因中,26个基因的mRNA相对表达量显著下调(P<0.05),7个基因的mRNA相对表达量显著上调(P<0.05),上调基因分别为17周龄80%和90%能量限饲组的环磷酸腺苷反应元件结合蛋白1(CREB1)和细胞色素P450羟化酶1B1(CYP1B1),24周龄90%能量限饲组的CREB1,以及20和24周龄80%能量限饲组的3β-羟基类固醇脱氢酶(3β-HSD)。在大白卵泡膜层,20周龄80%和90%能量限饲组12个基因的mRNA相对表达量均显著上调(P<0.05);24周龄80%和90%能量限饲组12个基因中,9个基因的mRNA相对表达量显著下调(P<0.05),1个基因的mRNA相对表达量显著上调(P<0.05),上调基因为24周龄80%能量限饲组的CREB1。在小黄卵泡膜层,24周龄80%和90%能量限饲组12个基因中,5个基因的mRNA相对表达量显著下调(P<0.05),3个基因的mRNA相对表达量显著上调(P<0.05),上调基因为80%能量限饲组的细胞色素P450羟化酶17A1(CYP17A1)、3β-HSDCYP1B1。由此可见,6~17周龄能量限饲显著影响了17和20周龄蛋鸡体重、腹脂和骨骼发育,但对24周龄屠体、内脏器官和骨骼发育均无显著影响,且在一定程度上改善了24周龄蛋白质代谢和脂肪代谢相关的生化指标;6~17周龄80%能量限饲增加了血浆孕酮水平,上调了卵巢基质部3β-HSD、大白卵泡膜层CREB1和小黄卵泡膜层CYP17A1、3β-HSDCYP1B1的mRNA相对表达量。

本文引用格式

卢建 , 王强 , 王星果 , 郭军 , 马猛 , 李永峰 , 窦套存 , 胡玉萍 , 邵丹 , 童海兵 , 曲亮 . 育成期能量限饲对6~24周龄蛋鸡生长发育、激素水平和卵巢类固醇激素生成关键基因表达的影响[J]. 动物营养学报, 2024 , 36(8) : 4925 -4943 . DOI: 10.12418/CJAN2024.421

Abstract

This experiment was conducted to evaluate the effects of energy-restricted feeding during growing period (6 to 17 weeks of age) on growth and the development, hormone level and key genes involved in ovarian steroid hormone synthesis of laying hens aged from 6 to 24 weeks. A total of 720 6-week-old Hy-Line brown laying hens were allocated into 3 groups with 3 replicates per group and 40 laying hens per replicate. During 6 to 17 weeks of age, the laying hens in 3 groups were fed experimental diets with metabolizable energy (ME) levels were 12.34 (control group), 11.11 (90% energy-restricted feeding group) and 9.87 MJ/kg (80% energy-restricted feeding group) and the equal other nutrient levels. During 17 to 24 weeks of age, the laying hens in all groups were fed the same experimental diet. The experiment lasted for 18 weeks. The results showed as follows: 1) with the increasing degree of energy restriction during 6 to 17 weeks of age, the body weight, abdominal fat percentage, heart index and tibia weight at 17 weeks of age, and the body weight, abdominal fat percentage, femur weight, tibia weight and metatarsal weight at 20 weeks of age were significantly linearly decreased (P<0.05), the pancreas index at 17 weeks of age, the liver index at 20 weeks of age and the length-to-weight ratio of femur, tibia and metatarsus at 17 and 20 weeks of age were significantly linearly increased (P<0.05). The development indices of carcass, visceral organ and bones at 24 weeks of age were not affected by energy restriction from 6 to 17 weeks of age (P>0.05). 2) With the increasing degree of energy restriction during 6 to 17 weeks of age, the serum urea nitrogen (UN) content at 24 weeks of age was significantly linearly decreased (P<0.05), and the serum high-density lipoprotein (HDL) content was significantly linearly increased (P<0.05). The other serum and liver biochemical indexes at 24 weeks of age were not affected by energy restriction from 6 to 17 weeks of age (P>0.05). 3) The plasma progesterone level at 24 weeks of age of 80% energy-restricted feeding group was significantly higher than that of control group and 90% energy-restricted feeding group (P<0.05). 4) In the ovary stroma, there were 36 genes in 80% and 90% energy-restricted feeding groups at 17, 20 and 24 weeks of age, in which the mRNA relative expression levels of 26 genes were down-regulated (P<0.05), and the mRNA relative expression levels of 7 genes were up-regulated (P<0.05), the up-regulated genes were cAMP responsive element binding protein 1 (CREB1) and cytochrome P450 hydroxylase 1B1 (CYP1B1) in 80% and 90% energy-restricted feeding groups at 17 weeks of age, the CREB1 in 90% energy-restricted feeding group at 24 weeks of age and 3β-HSD in 80% energy-restricted feeding group at 20 and 24 weeks of age. In the theca layer of big white follicles, the mRNA relative expression levels of 12 genes in 80% and 90% energy-restricted feeding groups were significantly up-regulated at 20 weeks of age (P<0.05); there were also 12 genes in the 80% and 90% energy-restricted feeding groups at 24 weeks of age, in which the mRNA relative expression levels of 9 genes were significantly down-regulated (P<0.05), and the mRNA relative expression level of 1 gene was significantly up-regulated (P<0.05), which was CREB1 in 80% energy-restricted feeding group at 24 weeks of age. In the theca layer of small yellow follicles, there were 12 genes in 80% and 90% energy-restricted feeding groups at 24 weeks of age, in which the mRNA relative expression levels of 5 genes were down-regulated (P<0.05), and the mRNA relative expression levels of 3 genes were up-regulated (P<0.05), which were cytochrome P450 hydroxylase 17A1 (CYP17A1), 3β-HSD and CYP1B1 in 80% energy-restricted feeding group. In conclusion, the energy-restricted feeding from 6 to 17 weeks of age significantly affect the body weight and development of abdominal fat and bone of laying hens at 17 and 20 weeks of age, but the development of carcass, visceral organ and bones at 24 weeks of age are not affected, and improve the biochemical indexes related to the metabolism of protein and fat to a certain extent at 24 weeks of age; 80% energy-restricted feeding from 6 to 17 weeks of age improve the plasma progesterone level, and up-regulate the mRNA relative expression levels of 3β-HSD in ovary stroma, CREB1 in theca layer of big white follicle and CYP17A1, 3β-HSD and CYP1B1 in theca layer of small yellow follicle.[Chinese Journal of Animal Nutrition, 2024, 36(8):4925-4943]

育成期和开产阶段是蛋鸡屠体、骨骼、内脏器官、生殖器官和脂肪细胞等发育的重要阶段[1],该阶段的生长发育情况直接影响整个饲养期的产蛋性能[2]。能量是糖类、脂肪和蛋白质等营养物质的代谢产物,维持家禽体内细胞的生长增殖。育成期适宜的代谢能(ME)摄入量是维持家禽生长发育达到体成熟进而启动性成熟的必要条件,ME摄入量直接影响体内脂肪沉积,而脂质是卵泡中卵黄合成和卵泡发育的重要前体物质,ME摄入量也可以通过影响生殖激素相关的信号通路受体基因、激素因子和相关蛋白表达调控家禽生殖激素分泌、卵泡发育和性成熟启动[3-5]。因此,研究育成期ME摄入量对蛋鸡育成期和开产阶段的生长发育、激素水平和卵巢类固醇激素生成关键基因表达的影响,可以为蛋鸡达到最佳生长发育状态和最优产蛋性能提供ME需要的数据支撑,可以为集成蛋鸡育成期精准饲喂技术提供理论依据,具有重要的实践意义。
育成期限饲研究主要集中在肉鸡上,通过育成期限饲等多种饲养管理措施可以优化肉种鸡性成熟体重,延迟性成熟、推迟开产,这些措施虽然缩短了产蛋周期,但增加了总产蛋数和平均蛋重,提高了产蛋率、受精率、孵化率和蛋品质等[6-9],提高了肉种鸡的繁殖性能。有关能量限饲对育成期和开产阶段蛋鸡体重和屠体发育影响的研究报道相对较少。早期研究报道,将6周龄至开产的ME摄入量降至自由采食的2/3,可使春季饲养的白来航蛋鸡性成熟延迟3周,对开产时蛋鸡体重、腹脂率和屠宰性能无显著影响,但增加了合格蛋数和平均蛋重[10]。本团队前期研究也发现,将8~18周龄的ME摄入量降至自由采食的86%,显著影响了如皋黄鸡21周龄前各周龄体重,但改善了14~21周龄的群体均匀度以及18和21周龄的肠道发育[11];同时,育成期能量限饲延迟了如皋黄鸡18、20、22和24周龄的生殖器官发育以及性成熟(限饲组试验鸡开产日龄、5%产蛋率日龄和50%产蛋率日龄分别被延迟了4.2、8.9和5.5 d),但增加了18~52周龄的平均蛋重和蛋重超过40 g的蛋数,且对26和28周龄的生殖器官发育、18~52周龄的产蛋率、52周龄的受精率和孵化率无不良影响[12];进一步研究育成期能量限饲对海兰褐蛋鸡生殖器官发育和产蛋性能的影响发现,能量限饲显著影响了海兰褐蛋鸡24周龄前各周龄体重,但改善了19、20和21周龄的群体均匀度,同时,能量限饲延迟了海兰褐蛋鸡20周龄输卵管、卵巢基质部和小黄卵泡发育以及24周龄的输卵管发育,延迟了性成熟(6~17周龄90%能量限饲组蛋鸡开产日龄和5%产蛋率日龄分别被延迟了3.2和4.0 d,80%能量限饲组蛋鸡开产日龄、5%产蛋率日龄和50%产蛋率日龄分别被延迟了7.9、13.5和5.5 d),但增加了18~72周龄产蛋率、日只蛋重和蛋重超过60 g的蛋数[13]
以上研究结果表明,育成期能量限饲会延迟蛋鸡生殖器官发育和性成熟、推迟开产、缩短产蛋周期,但增加了产蛋期的平均蛋重,提高了产蛋性能。然而,产生这一结果的原因并不清楚,是否因为能量限饲延长了蛋鸡达到性成熟的时间,使组织器官生长发育时间更长、更加充分,生殖激素分泌更多,限饲期结束至性成熟前卵巢类固醇激素生成关键基因表达规律如何等,还有待进一步研究。因此,本试验以海兰褐蛋鸡为研究对象,通过等量饲喂不同ME水平饲粮控制育成期(6~17周龄)蛋鸡的ME摄入量,育成期后(17周龄后)转换成相同营养水平试验饲粮,研究其对6~24周龄蛋鸡屠体、内脏器官和骨骼发育,血清和肝脏生化指标,血浆激素水平以及卵巢类固醇激素生成关键基因表达的影响。

1 材料与方法

1.1 试验设计

选择720只体况良好、体重接近的6周龄海兰褐母鸡,随机分成3组,每组6个重复,每个重复40只。各组蛋鸡6周龄体重和体重变异系数均无显著差异(P>0.05)。6~17周龄,3组试验鸡分别饲喂ME水平为12.34(对照组)、11.11(90%能量限饲组)和9.87 MJ/kg(80%能量限饲组)且其他营养水平相同的试验饲粮。对照组试验鸡自由采食,其他试验组试验鸡按照对照组试验鸡采食量定量饲喂。18~24周龄,各组试验鸡均饲喂相同的试验饲粮,自由采食。试验期18周。

1.2 试验饲粮与饲养管理

参照《海兰褐饲养管理手册》推荐的不同生长阶段蛋鸡营养需要配制试验饲粮,其组成及营养水平见表1。饲粮中粗蛋白质、氨基酸、钙和总磷含量分别按照GB/T 6432—2018[14]、GB/T 18246—2019[15]、GB/T 6436—2018[16]和GB/T 6437—2018[17]方法测定。试验鸡采用《海兰褐饲养管理手册》推荐的密闭式鸡舍光照程序等饲养管理措施,3层个体阶梯笼饲养,自由饮水,各重复间在料槽上插入挡板,防止试验鸡采食其他重复蛋鸡试验饲粮。
表1 试验饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis) %

项目
Items
6~12周龄
6 to 12 weeks of age
13~17周龄
13 to 17 weeks of age
18~20
周龄
18 to 20
weeks of
age
21~24
周龄
21 to 24
weeks of
age
代谢能水平
ME level/(MJ/kg)
代谢能水平
ME level/(MJ/kg)
12.34 11.11 9.87 12.34 11.11 9.87
原料Ingredients
玉米Corn 71.110 61.000 50.200 75.200 64.800 54.300 68.000 65.500
豆粕Soybean meal 25.670 27.600 29.400 20.800 22.700 24.500 24.000 23.500
石粉Limestone 1.400 1.400 1.400 2.000 2.000 2.000 6.000 9.000
沸石粉Zeolite powder 0.000 8.230 17.260 0.200 8.750 17.490 0.230 0.230
磷酸氢钙CaHPO4 0.105 0.105 0.105 0.105 0.105 0.105 0.105 0.105
磷酸二氢钙Ca(H2PO4)2 0.595 0.595 0.595 0.595 0.595 0.595 0.595 0.595
食盐NaCl 0.250 0.250 0.250 0.250 0.250 0.250 0.250 0.250
胆碱Choline (50%) 0.120 0.120 0.120 0.100 0.100 0.100 0.120 0.120
DL-蛋氨酸DL-methionine 0.150 0.160 0.170 0.150 0.150 0.160 0.200 0.200
赖氨酸Lysine 0.100 0.040 0.000 0.100 0.050 0.000 0.000 0.000
预混料Premix 0.500 0.500 0.500 0.500 0.500 0.500 0.500 0.500
合计Total 100.000 100.000 100.000 100.000 100.000 100.000 100.000 100.000
营养水平(计算值) Nutrient levels (calculated values)
代谢能ME/(MJ/kg) 12.34 11.11 9.87 12.34 11.11 9.87 11.72 11.34
粗蛋白质CP 17.50 17.50 17.50 15.50 15.50 15.50 16.50 16.00
可消化氨基酸Digestible amino acids
赖氨酸Lys 0.94 0.94 0.94 0.82 0.82 0.82 0.84 0.82
蛋氨酸Met 0.45 0.45 0.45 0.41 0.41 0.41 0.47 0.47
蛋氨酸+胱氨酸Met+Cys 0.73 0.73 0.73 0.67 0.67 0.67 0.74 0.73
色氨酸Try 0.20 0.21 0.22 0.18 0.18 0.18 0.19 0.19
苏氨酸Thr 0.66 0.66 0.66 0.59 0.59 0.59 0.62 0.61
钙Ca 0.80 0.80 0.80 0.80 0.80 0.80 2.60 3.80
总磷TP 0.50 0.50 0.50 0.50 0.50 0.50 0.50 0.50
有效磷AP 0.42 0.42 0.42 0.42 0.41 0.42 0.40 0.40
营养水平(实测值) Nutrient levels ( measured values)
粗蛋白质CP 17.75 17.59 17.63 15.61 15.58 15.58 16.59 16.04
赖氨酸Lys 0.89 0.87 0.87 0.78 0.76 0.79 0.81 0.79
蛋氨酸Met 0.43 0.42 0.44 0.38 0.36 0.37 0.48 0.45
钙Ca 0.84 0.86 0.79 0.87 0.88 0.83 2.68 3.78
总磷TP 0.53 0.49 0.51 0.53 0.51 0.51 0.51 0.54

预混料为每千克饲粮提供 The premix provided the following per kg of diets: VA 8 800 IU,VD3 3 300 IU,VE 20 IU,VB12 23 μg,核黄素 riboflavin 5.5 mg,烟酸 niacin 30 mg,泛酸 pantothenic acid 8 mg,VK3 1.2 mg,叶酸 folic acid 1.75 mg,吡哆醇 pyridoxine 1.2 mg,硫胺素 thiamine 1.7 mg,生物素 biotin 55 μg,Cu [Cu2(OH)3Cl] 8.12 mg,Fe (FeSO4·H2O) 80.1 mg,Zn (ZnSO4·H2O) 80.04 mg,I [Ca(IO3)2] 1.2 mg,Se (Na2SeO3) 0.3 mg。

1.3 测定指标及方法

1.3.1 体重测定

17、20和24周龄末,全群禁食12 h后逐只称重。

1.3.2 屠宰测定

17、20和24周龄末,每个重复选取接近平均体重的试验鸡2只,每组12只,进行屠宰测定。称量宰前体重后,将鸡颈部放血致死。分割后,称量全净膛、头、翅膀、脚、腿、腿肌和腹脂的重量,参照《家禽生产性能名词术语和度量统计方法》(NY/T 823—2020)计算全净膛率、翅膀率、腿比率、腿肌率和腹脂率,并计算头和脚与宰前空腹体重的比值,即头比率和脚比率。分离并称量心脏、肝脏、脾脏、肺脏和胰脏的重量,并计算其与宰前体重的比值,即器官指数。

1.3.3 股骨、胫骨和跖骨测定

17、20和24周龄末,试验鸡屠宰后,分离左腿腿肌,用剪刀去除股骨、胫骨和跖骨上附着的皮肤、肌肉和筋腱等组织,并用棉布擦净骨骼外附着物,分别测定股骨、胫骨和跖骨的长度和重量,并分别计算其与体重的比值。

1.3.4 血液生化指标和激素水平测定

24周龄末,屠宰前先将待屠宰鸡翅静脉采血,血样分别置于促凝管和乙二胺四乙酸(EDTA)抗凝管,离心后分别收集上清(血清、血浆)保存待测。采用全自动生化分析仪(Uni-Cel DxC 800 Sychron,Beckman Coulter公司,美国)测定血清葡萄糖(GLU)、尿素氮(UN)、钙、磷、甘油三酯(TG)、总胆固醇(TC)、游离脂肪酸(NEFA)、高密度脂蛋白(HDL)和低密度脂蛋白(LDL)含量;采用酶联免疫吸附测定(ELISA)试剂盒检测血浆雌二醇和孕酮水平,试剂盒购于南京奥青生物技术有限公司。

1.3.5 肝脏生化指标测定

24周龄末,试验鸡屠宰后,分离肝脏,灭菌生理盐水冲洗,统一位置取样后,置于液氮中,后转移至-70 ℃超低温冰箱保存。测定时,样品融化后保持4 ℃,加入一定量的磷酸盐缓冲液(pH为7.4),将样品充分匀浆,离心后收集上清。采用试剂盒测定肝脏TC、TG、NEFA、HDL和LDL含量,试剂盒购于南京奥青生物技术有限公司。

1.3.6 卵巢类固醇激素生成关键基因表达测定

屠宰后,由于17周龄大白卵泡(直径2~4 mm)以及17和20周龄小黄卵泡(直径4~8 mm)仅在部分屠宰鸡中开始发育,因此本试验仅采集了17、20和24周龄的卵巢基质部,20和24周龄的大白卵泡膜层,以及24周龄的小黄卵泡膜层。各组每个重复每个组织分别采取1个样品,置于液氮中,后转移至-70 ℃超低温冰箱保存待测。采用Trizol法提取各组织样品总RNA,用Nanodrop-2000微量分光光度计检测RNA浓度和纯度,检测合格后,用于实时荧光定量PCR(qRT-PCR)测定。
根据GenBank的基因序列,利用Primer Premier 5软件设计引物,各引物序列见表2。以各组织样品总RNA为模板,使用反转录试剂盒将提取出的RNA反转录为cDNA。qRT-PCR采用SYBR Green Ⅰ法,参照ChamQ SYBR Color qPCR Master Mix(Q411-02)试剂盒说明书进行。以甘油醛-3-磷酸脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH)作为内参基因进行数据的标准化处理。每次反应均设空白样品为阴性对照,每个样品设置3个重复。结果采用2-ΔΔCt法进行处理,分析试验组组织样品的mRNA相对表达量。
表2 qRT-PCR引物序列

Table 2 Primer sequence for qRT-PCR

基因
Genes
登录号
Accession number
引物序列
Primer sequence (5'—3')
产物长度
Product length/bp
甘油醛-3-磷酸脱氢酶
GAPDH
NM_204305 F:GAGGGTAGTGAAGGCTGCTG
R:CACAACACGGTTGCTGTATC
199
环腺苷酸反应元件结合蛋白1
CREB1
NM_204450.3 F:GCACAGACCACAGATGGACA
R:TTCAAGCACAGCCACTCGAT
285
类固醇激素合成急性调节蛋白
StAR
NM_204686 F:GTCCCTCGCAGACCAAGT
R:TCCCTACTGTTAGCCCTGA
196
细胞色素P450羟化酶11A1
CYP11A1
NM_001001756 F:GTGGACACGACTTCCATGACT
R:GAGAGTCTCCTTGATGGCGG
174
细胞色素P450羟化酶17A1
CYP17A1
NM_001001901.3 F:CTACCCCGAGGTCCAGAAGA
R:GGAGTACTCACCGATGCTGG
169
3β-羟基类固醇脱氢酶
3β-HSD
NM_205118.2 F:ATGTGGAATTCCTGCACCGT
R:ACGTTGACTTCCCAGAGCAG
112
细胞色素P450羟化酶1B1
CYP1B1
XM_040668785.1 F:GTGCCTGTTACCATCCCACA
R:CACGGTGTCCTTGGGAATGA
75

1.4 统计分析

数据采用SPSS 15.0软件中的单因素方差分析(one-way ANOVA)检测组间差异显著性,以重复为试验数据单元。差异显著时,用Duncan氏法进行多重比较。ME摄入量的剂量效应用正交多项式中的线性和二次多项式进行比较。结果用平均值和均值标准误(SEM)表示,P<0.05表示差异显著。

2 结果

2.1 6~17周龄能量限饲对17、20和24周龄蛋鸡体重和屠体发育指标的影响

表3可知,随着6~17周龄能量限饲强度增加,试验鸡17和20周龄体重和腹脂率均呈显著线性降低(P<0.05),17、20和24周龄头比率均呈显著线性增加(P<0.05)。6~17周龄能量限饲对17、20和24周龄其他屠体发育指标无显著影响(P>0.05)。
表3 6~17周龄能量限饲对17、20和24周龄蛋鸡体重和屠体发育指标的影响

Table 3 Effects of energy-restricted feeding from 6 to 17 weeks of age on body weight and carcass development indices of laying hens at 17, 20 and 24 weeks of age

项目
Items
代谢能水平ME level/(MJ/kg) SEM PP-value
12.34 11.11 9.87 代谢能
ME
线性
Linear
二次
Quadratic
17周龄17 weeks of age
体重Body weight/g 1 474.3a 1 404.9b 1 249.8c 8.460 <0.001 <0.001 0.001
全净膛率Eviscerated carcass percentage/% 74.46 73.09 73.26 0.537 0.324 0.229 0.369
头比率Head percentage/% 3.14b 3.09b 3.50a 0.055 0.003 0.004 0.025
膀率Wing percentage/% 9.27 8.91 8.98 0.132 0.407 0.316 0.375
脚比率Foot percentage/% 3.63 3.73 3.69 0.051 0.655 0.571 0.476
腿比率Quarter percentage/% 23.63 21.86 22.09 0.540 0.108 0.089 0.192
腿肌率Leg muscle percentage/% 15.89 14.64 15.18 0.418 0.191 0.296 0.133
腹脂率Abdominal fat percentage/% 1.46a 1.35a 0.36b 0.238 0.039 0.049 0.333
20周龄20 weeks of age
体重Body weight/g 1 692.7a 1 636.9b 1 549.1c 6.694 <0.001 <0.001 0.216
全净膛率Eviscerated carcass percentage/% 73.77 73.61 74.45 0.537 0.813 0.629 0.681
头比率Head percentage/% 2.76c 2.96b 3.05a 0.055 0.028 0.031 0.624
翅膀率Wing percentage/% 8.27 8.39 8.41 0.132 0.906 0.688 0.864
脚比率Foot percentage/% 3.23 3.30 3.43 0.051 0.289 0.127 0.783
腿比率Quarter percentage/% 21.48 20.71 22.73 0.540 0.323 0.354 0.236
腿肌率Leg muscle percentage/% 14.43 14.25 16.17 0.418 0.114 0.085 0.219
腹脂率Abdominal fat percentage/% 3.27a 1.98b 1.58c 0.238 0.003 0.001 0.236
24周龄24 weeks of age
体重Body weight/g 1 907.6 1 919.4 1 884.3 6.331 0.071 0.136 0.078
全净膛率Eviscerated carcass percentage/% 67.86 68.89 67.56 0.439 0.457 0.783 0.229
头比率Head percentage/% 2.53b 2.74ab 2.92a 0.070 0.047 0.025 0.887
翅膀率Wing percentage/% 7.49 7.19 7.44 0.113 0.538 0.853 0.280
脚比率Foot percentage/% 2.69 2.76 2.84 0.037 0.305 0.129 0.974
腿比率Quarter percentage/% 20.14 20.50 20.90 0.398 0.761 0.468 0.985
腿肌率Leg muscle percentage/% 14.16 14.43 14.96 0.288 0.548 0.289 0.836
腹脂率Abdominal fat percentage/% 2.76 2.98 2.92 0.163 0.864 0.709 0.703

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 6~17周龄能量限饲对17、20和24周龄蛋鸡内脏器官发育的影响

表4可知,随着6~17周龄能量限饲强度增加,试验鸡17周龄心脏指数呈显著线性降低(P<0.05),胰脏指数呈显著线性增加(P<0.05);20周龄肝脏指数呈显著线性增加(P<0.05)。6~17周龄能量限饲对24周龄内脏器官指数无显著影响(P>0.05)。
表4 6~17周龄能量限饲对17、20和24周龄蛋鸡内脏器官发育的影响

Table 4 Effects of energy-restricted feeding from 6 to 17 weeks of age on visceral organ development of laying hens at 17, 20 and 24 weeks of age %

项目
Items
代谢能水平ME level/(MJ/kg) SEM PP-value
12.34 11.11 9.87 代谢能
ME
线性
Linear
二次
Quadratic
17周龄17 weeks of age
心脏指数Heart index 0.45a 0.46a 0.38b 0.012 0.008 0.010 0.043
肝脏指数Liver index 1.68 1.89 1.65 0.063 0.232 0.844 0.095
脾脏指数Spleen index 0.26 0.28 0.22 0.017 0.384 0.359 0.302
肺脏指数Lung index 0.84 0.91 0.81 0.030 0.346 0.699 0.166
胰脏指数Pancreas index 0.19b 0.20ab 0.23a 0.007 0.038 0.029 0.442
20周龄20 weeks of age
心脏指数Heart index 0.37 0.39 0.41 0.010 0.300 0.128 0.879
肝脏指数Liver index 1.38b 1.48ab 1.60a 0.038 0.045 0.018 0.953
脾脏指数Spleen index 0.22 0.22 0.23 0.009 0.907 0.684 0.875
肺脏指数Lung index 0.68 0.63 0.75 0.025 0.107 0.196 0.086
胰脏指数Pancreas index 0.21 0.21 0.22 0.005 0.453 0.311 0.461
24周龄24 weeks of age
心脏指数Heart index 0.40 0.36 0.36 0.011 0.425 0.262 0.511
肝脏指数Liver index 1.59 1.55 1.70 0.047 0.437 0.359 0.369
脾脏指数Spleen index 0.12 0.14 0.17 0.010 0.106 0.043 0.561
肺脏指数Lung index 0.55 0.55 0.62 0.019 0.247 0.150 0.395
胰脏指数Pancreas index 0.17 0.17 0.20 0.007 0.352 0.215 0.466

2.3 6~17周龄能量限饲对17、20和24周龄蛋鸡股骨、胫骨和跖骨发育指标的影响

表5可知,随着6~17周龄能量限饲强度增加,试验鸡17周龄股骨重呈显著线性降低(P<0.05),股骨、胫骨和跖骨长度体重比以及跖骨指数呈显著线性增加(P<0.05);20周龄股骨重、胫骨重、跖骨重均呈显著线性降低(P<0.05),股骨、胫骨和跖骨长度体重比均呈显著线性增加(P<0.05)。6~17周龄能量限饲对24周龄股骨、胫骨和跖骨发育指标无显著影响(P>0.05)。
表5 6~17周龄能量限饲对17、20和24周龄蛋鸡股骨、胫骨和跖骨发育指标的影响

Table 5 Effects of energy-restricted feeding from 6 to 17 weeks of age on femur, tibia and metatarsal development indices of laying hens at 17, 20 and 24 weeks of age

项目
Items
代谢能水平ME level/(MJ/kg) SEM PP-value
12.34 11.11 9.87 代谢能
ME
线性
Linear
二次
Quadratic
17周龄17 weeks of age
股骨长Femur length/cm 8.65 8.69 8.49 0.056 0.327 0.255 0.330
胫骨长Tibia length/cm 12.11 12.22 12.09 0.066 0.730 0.915 0.439
跖骨长Metatarsal length/cm 7.91 8.09 7.96 0.055 0.397 0.736 0.194
股骨重Femur weight/g 9.24 9.21 8.43 0.181 0.113 0.065 0.309
胫骨重Tibia weight/g 11.17a 11.00ab 10.21b 0.190 0.044 0.038 0.412
跖骨重Metatarsal weight/g 5.13 5.26 4.94 0.092 0.379 0.402 0.268
股骨长度体重比
Ratio of femur length to weight/(cm/kg)
6.13b 6.55b 7.02a 0.120 0.003 0.001 0.884
胫骨长度体重比
Ratio of tibia length to weight/(cm/kg)
8.59b 9.21b 10.00a 0.182 0.001 0.000 0.746
跖骨长度体重比
Ratio of metatarsal length to weight/(cm/kg)
5.61b 6.11ab 6.58a 0.134 0.004 0.001 0.963
股骨指数Femur index/(g/kg) 6.55 6.93 6.97 0.135 0.397 0.226 0.550
胫骨指数Tibia index/(g/kg) 7.91 8.32 8.44 0.178 0.481 0.256 0.714
跖骨指数Metatarsal index/(g/kg) 3.64b 3.97ab 4.08a 0.088 0.048 0.040 0.546
20周龄20 weeks of age
股骨长Femur length/cm 8.79 8.57 8.63 0.050 0.184 0.199 0.179
胫骨长Tibia length/cm 12.35 12.16 12.33 0.064 0.452 0.876 0.218
跖骨长Metatarsal length/cm 8.19 8.11 8.08 0.050 0.629 0.360 0.803
股骨重Femur weight/g 9.82a 8.87b 8.65b 0.163 0.002 0.001 0.149
胫骨重Tibia weight/g 11.62a 10.38b 10.05b 0.256 0.020 0.008 0.329
跖骨重Metatarsal weight/g 5.73a 5.35ab 5.12b 0.106 0.044 0.015 0.704
股骨长度体重比
Ratio of femur length to weight/(cm/kg)
5.43b 5.49b 5.80a 0.059 0.011 0.005 0.218
胫骨长度体重比
Ratio of tibia length to weight/(cm/kg)
7.63b 7.78b 8.29a 0.086 0.001 0.000 0.153
跖骨长度体重比
Ratio of metatarsal length to weight/(cm/kg)
5.06b 5.19ab 5.43a 0.058 0.020 0.006 0.606
股骨指数Femur index/(g/kg) 6.06a 5.67b 5.81ab 0.064 0.029 0.078 0.033
胫骨指数Tibia index/(g/kg) 7.18 6.64 6.75 0.134 0.240 0.202 0.261
跖骨指数Metatarsal index/(g/kg) 3.54 3.43 3.44 0.054 0.672 0.473 0.609
24周龄24 weeks of age
股骨长Femur length/cm 8.66 8.56 8.02 0.185 0.331 0.173 0.570
胫骨长Tibia length/cm 12.13 12.13 12.06 0.085 0.945 0.778 0.864
跖骨长Metatarsal length/cm 8.01 8.03 8.05 0.052 0.948 0.752 0.955
股骨重Femur weight/g 9.98 9.88 9.45 0.148 0.311 0.156 0.598
胫骨重Tibia weight/g 11.47 11.12 10.88 0.196 0.501 0.251 0.892
跖骨重Metatarsal weight/g 5.37 5.30 4.97 0.108 0.283 0.143 0.560
股骨长度体重比
Ratio of femur length to weight/(cm/kg)
4.47 4.50 4.46 0.099 0.985 0.964 0.868
胫骨长度体重比
Ratio of tibia length to weight/(cm/kg)
6.26 6.38 6.74 0.101 0.136 0.058 0.556
跖骨长度体重比
Ratio of metatarsal length to weight/(cm/kg)
4.13 4.23 4.50 0.068 0.066 0.027 0.493
股骨指数Femur index/(g/kg) 5.15 5.21 5.27 0.094 0.898 0.649 0.988
胫骨指数Tibia index/(g/kg) 5.92 5.85 6.07 0.117 0.771 0.644 0.587
跖骨指数Metatarsal index/(g/kg) 2.77 2.79 2.77 0.058 0.992 0.983 0.901

2.4 6~17周龄能量限饲对24周龄蛋鸡血清和肝脏生化指标的影响

表6可知,随着6~17周龄能量限饲强度增加,试验鸡24周龄血清UN含量呈显著线性降低(P<0.05),血清HDL含量呈显著线性增加(P<0.05),血清钙含量呈先增加后降低的二次曲线变化(P<0.05)。6~17周龄能量限饲对24周龄蛋鸡血清GLU、磷、TG、TC、NEFA和LDL含量均无显著影响(P>0.05)。
表6 6~17周龄能量限饲对24周龄蛋鸡血清生化指标的影响

Table 6 Effects of energy-restricted feeding from 6 to 17 weeks of age on serum biochemical indices of laying hens at 24 weeks of age mmol/L

项目
Items
代谢能水平ME level/(MJ/kg) SEM PP-value
12.34 11.11 9.87 代谢能
ME
线性
Linear
二次
Quadratic
葡萄糖GLU 11.44 11.96 12.19 0.159 0.145 0.059 0.652
尿素氮UN 15.04a 12.89b 12.12b 0.418 0.007 0.002 0.309
钙Ca 0.264b 0.401a 0.252b 0.026 0.019 0.830 0.006
磷P 1.63 1.77 1.69 0.091 0.839 0.797 0.600
甘油三酯TG 11.95 10.28 6.80 1.157 0.183 0.075 0.703
总胆固醇TC 3.27 3.03 2.88 0.158 0.630 0.350 0.889
游离脂肪酸NEFA 0.282 0.471 0.262 0.046 0.118 0.849 0.042
高密度脂蛋白HDL 0.416b 0.478ab 0.552a 0.022 0.036 0.011 0.883
低密度脂蛋白LDL 1.50 1.36 1.16 0.102 0.428 0.203 0.880
表7可知,6~17周龄能量限饲对24周龄蛋鸡肝脏TG、TC、NEFA、HDL和LDL含量均无显著影响(P>0.05)。
表7 6~17周龄能量限饲对24周龄蛋鸡肝脏生化指标的影响

Table 7 Effects of energy-restricted feeding from 6 to 17 weeks of age on liver biochemical indices of laying hens at 24 weeks of age mmol/g prot

项目
Items
代谢能水平ME level/(MJ/kg) SEM PP-value
12.34 11.11 9.87 代谢能
ME
线性
Linear
二次
Quadratic
甘油三酯TG 0.305 0.349 0.312 0.026 0.782 0.922 0.495
总胆固醇TC 1.72 1.42 1.31 0.087 0.143 0.060 0.590
游离脂肪酸NEFA 0.330 0.307 0.260 0.027 0.579 0.311 0.847
高密度脂蛋白HDL 1.40 1.48 1.52 0.101 0.907 0.673 0.916
低密度脂蛋白LDL 0.335 0.297 0.269 0.028 0.668 0.380 0.932

2.5 6~17周龄能量限饲对24周龄蛋鸡血浆雌二醇和孕酮水平的影响

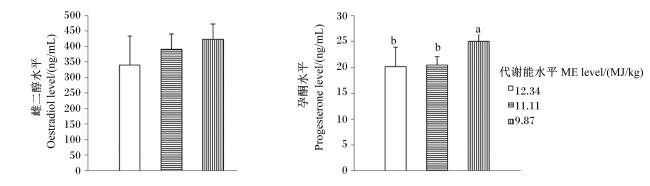
图1可知,80%能量限饲组的24周龄血浆孕酮水平显著高于对照组和90%能量限饲组(P<0.05)。各组之间24周龄血浆雌二醇水平无显著差异(P>0.05)。
图1 6~17周龄能量限饲对24周龄蛋鸡血浆雌二醇和孕酮水平的影响

数据柱标相同小写字母或无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of energy-restricted feeding from 6 to 17 weeks of age on plasma oestradiol and progesterone levels of laying hens at 24 weeks of age

Value columns with the same small or no letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.6 6~17周龄能量限饲对17、20和24周龄蛋鸡卵巢类固醇激素生成关键基因表达的影响
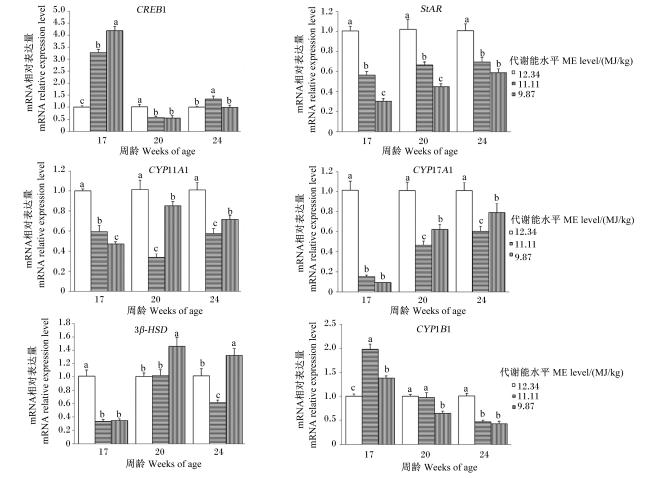
图2可知,17周龄时,80%和90%能量限饲组卵巢基质部环磷酸腺苷反应元件结合蛋白1(CREB1)和细胞色素P450羟化酶1B1(CYP1B1)的mRNA相对表达量均显著高于对照组(P<0.05),而类固醇激素合成急性调节蛋白(StAR)、细胞色素P450羟化酶11A1(CYP11A1)、细胞色素P450羟化酶17A1(CYP17A1)和3β-羟基类固醇脱氢酶(3β-HSD)的mRNA相对表达量均显著低于对照组(P<0.05)。20周龄时,80%和90%能量限饲组卵巢基质部CREB1、StARCYP11A1和CYP17A1以及80%能量限饲组CYP1B1的mRNA相对表达量均显著低于对照组(P<0.05),而80%能量限饲组3β-HSD的mRNA相对表达量显著高于对照组(P<0.05)。24周龄时,80%和90%能量限饲组卵巢基质部StARCYP11A1、CYP17A1和CYP1B1以及90%能量限饲组3β-HSD的mRNA相对表达量均显著低于对照组(P<0.05),而90%能量限饲组CREB1以及80%能量限饲组3β-HSD的mRNA相对表达量显著高于对照组(P<0.05)。
图2 6~17周龄能量限饲对17、20和24周龄蛋鸡卵巢基质部类固醇激素生成相关基因表达的影响

StAR:类固醇激素合成急性调节蛋白 steroidogenic acute regulatory protein;CYP11A1:细胞色素P450羟化酶11A1 cytochrome P450 hydroxylase 11A1;CREB1:环磷酸腺苷反应元件结合蛋白1 cAMP responsive element binding protein 1;CYP17A1:细胞色素P450羟化酶17A1 cytochrome P450 hydroxylase 17A1;3β-HSD:3β-羟基类固醇脱氢酶 3β-hydroxysteriod dehydrogenase;CYP1B1:细胞色素P450羟化酶1B1 cytochrome P450 hydroxylase 1B1。下图同 the same as below.

Fig.2 Effects of energy-restricted feeding from 6 to 17 weeks of age on expression of genes related to steroid

hormone production in ovary stroma of laying hens at 17, 20 and 24 weeks of age

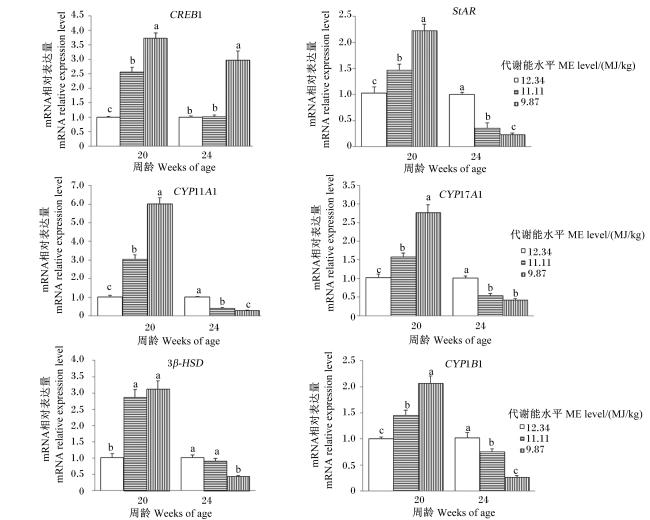
图3可知,20周龄时,80%和90%能量限饲组大白卵泡膜层CREB1、StARCYP11A1、CYP17A1、3β-HSDCYP1B1的mRNA相对表达量均显著高于对照组(P<0.05)。24周龄时,80%和90%能量限饲组大白卵泡膜层StARCYP11A1、CYP17A1和CYP1B1以及80%能量限饲组3β-HSD的mRNA相对表达量均显著低于对照组(P<0.05),而80%能量限饲组CREB1的mRNA相对表达量均显著高于对照组(P<0.05)。
图3 6~17周龄能量限饲对20和24周龄蛋鸡大白卵泡类固醇激素生成相关基因表达的影响

Fig.3 Effects of energy-restricted feeding from 6 to 17 weeks of age on expression of genes related to steroid hormone production in big white follicle of laying hens at 20 and 24 weeks of age

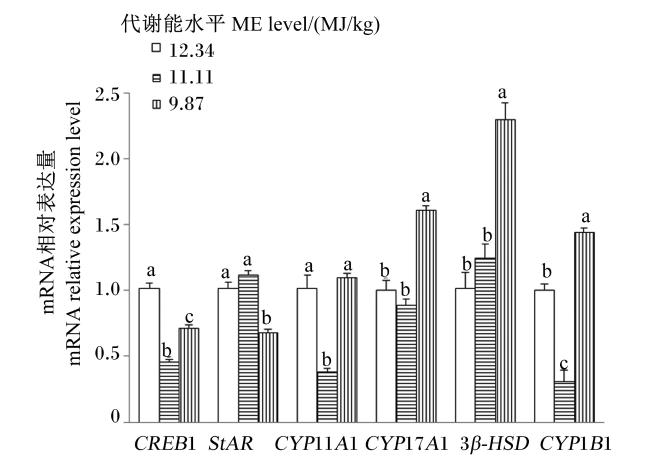
图4可知,24周龄时,90%能量限饲组试验鸡小黄卵泡膜层CREB1、CYP11A1和CYP1B1的mRNA相对表达量均显著低于对照组(P<0.05);80%能量限饲组试验鸡小黄卵泡膜层CREB1和StAR的mRNA相对表达量均显著低于对照组(P<0.05),而CYP17A1、3β-HSDCYP1B1的mRNA相对表达量均显著高于对照组(P<0.05)。
图4 6~17周龄能量限饲对24周龄蛋鸡小黄卵泡类固醇激素生成相关基因表达的影响

Fig.4 Effects of energy-restricted feeding from 6 to 17 weeks of age on expression of genes related to steroid hormone production in small yellow follicle of laying hens at 24 weeks of age

3 讨论

3.1 6~17周龄能量限饲对17、20和24周龄蛋鸡体重和屠体发育指标的影响

本试验发现,随着6~17周龄能量限饲强度增加,试验鸡17和20周龄的体重和腹脂率均呈显著线性减少,但6~17周龄能量限饲对24周龄试验鸡体重和腹脂率以及其他屠体发育指标无显著影响。有关蛋鸡育成期能量限饲对育成期末和开产阶段体重和屠体发育影响的研究报道相对较少,蛋鸡上研究主要为自由采食情况下饲粮ME水平对育成期生长发育的影响,有研究表明,高ME水平饲粮组蛋鸡育成期末或开产前体重显著高于低ME水平饲粮组[18-20],但饲粮ME水平对育成期末或开产前蛋鸡屠宰性能均无显著影响[19];也有研究表明,1~17周饲粮ME水平对5、10、17周龄蛋鸡体重和屠宰性能影响均不显著[21-22],这可能与蛋鸡品种和饲粮ME水平设置梯度等有关,当试验鸡可以通过调节采食量增加ME摄入量满足维持和生长需要时,对体重和屠宰性能等影响会相对较少。育成期限饲相关研究主要集中在肉鸡上,有研究表明,与对照组相比,8~16日龄限饲20%组肉鸡16日龄体重显著下降,但35日龄体重无显著差异[23];14~17日龄、20、23、26或29日龄限饲10%组肉鸡35日龄体重显著下降,但42和49日龄体重和屠宰性能相比较无显著差异[24];14~21日龄限饲50%组肉鸡公、母鸡21、35和42日龄体重均显著下降,但14~21日龄限饲25%对35日龄体重无显著影响[25]。本团队前期在地方特色蛋鸡上研究发现,8~18周龄能量限饲显著影响18周龄蛋鸡体重和腹脂率,但转换成预产料自由采食3周后(21周龄),试验鸡体重和屠宰性能与未限饲组相比较差异均不显著[11]。本研究结果表明,育成期能量限饲不能满足蛋鸡生长需要,影响了限饲期结束时(17周龄)的蛋鸡体重和腹脂沉积,这种影响在限饲组试验鸡转换成自由采食3周后(20周龄)仍然存在,直至转换成自由采食7周后(24周龄),80%能量限饲组试验鸡平均体重仍然比对照组低23.3 g,说明相对于自由采食下饲粮不同ME水平,育成期能量限饲对家禽生长发育的影响更大,这种影响可能持续到转换为自由采食数周后,育成期限饲对蛋鸡生长发育影响的持续时间与品种和限饲强度(限饲量和限饲周期)密切相关。本试验选用的试验动物为海兰褐蛋鸡,试验组蛋鸡ME摄入量分别为对照组的90%和80%,蛋鸡品种和限饲强度可能是影响试验结果的重要因素。

3.2 6~17周龄能量限饲对17、20和24周龄蛋鸡内脏器官发育的影响

本研究发现,随着6~17周龄能量限饲强度增加,试验鸡17周龄心脏指数呈显著线性减小,胰脏指数呈显著线性增加,20周龄肝脏指数呈显著线性增加,6~17周龄能量限饲对24周龄内脏器官指数无显著影响。80%能量限饲组蛋鸡心脏指数在育成期限饲结束时显著小于其他2组,但6~17周龄能量限饲对蛋鸡心脏指数无显著影响,说明本试验中能量限饲影响了蛋鸡的心脏发育,但其影响机制有待进一步探究。
胰脏和肝脏是家禽营养物质代谢的重要器官,胰脏指数和肝脏指数在一定情况下反映了蛋鸡对饲粮中营养物质的消化吸收状态。研究表明,自由采食情况下饲粮ME水平对蛋鸡内脏器官指数无显著影响[18]。Urdaneta-Rincon等[24]研究发现,14~29日龄10%限饲对肉鸡42日龄内脏器官发育无显著影响。也有研究发现,自由采食情况下蛋鸡18周龄肝脏指数随8~18周龄饲粮ME水平增加呈显著线性减小,这可能由于高能组试验饲粮中添加了油脂,含油脂饲粮可能更容易消化吸收和代谢,对肝脏发育的刺激更小[19]。本研究结果与Lu等[11]研究结果一致,即8~18周龄能量限饲显著影响了18周龄蛋鸡肝脏指数,但转换成预产料自由采食3周后,其内脏器官指数等与对照组相比较差异不显著。本研究中,试验组蛋鸡育成期ME摄入量为对照组的90%和80%,17周龄胰脏指数和20周龄肝脏指数随着6~17周龄能量限饲强度增加显著线性增加,说明限饲组蛋鸡在限饲期和转换成自由采食3周后可能增强了对饲粮中营养物质消化、吸收和代谢强度,以满足机体生长发育的营养需要。

3.3 6~17周龄能量限饲对17、20和24周龄蛋鸡股骨、胫骨和跖骨发育的影响

本研究发现,6~17周龄能量限饲显著影响了试验鸡17周龄的股骨重和20周龄的股骨重、胫骨重和跖骨重,但对试验鸡17和20周龄股骨、胫骨和跖骨的骨骼长度无显著影响,同时对24周龄股骨、胫骨和跖骨发育均无显著影响。有研究表明,育雏期和育成前期是蛋鸡骨骼发育的主要阶段,8周龄前骨骼发育已超过体成熟时的75%,饲粮营养水平对蛋鸡骨骼发育的影响主要集中在这一阶段[26]。也有研究表明,9~13周龄饲粮ME水平对19周龄蛋鸡跖骨长度无显著影响[27],1~17周饲粮ME水平对5、10、17周龄罗曼蛋鸡体斜长和跖骨发育影响均不显著[22]。本团队前期研究发现,自由采食情况下8~18周龄饲粮ME水平对18周龄胫骨和股骨长度无显著影响,但显著影响了胫骨重量和胫骨指数[19];能量限饲情况下,8~18周龄约14%能量限饲显著影响了18周龄胫围,但对胫骨长度无显著影响[11]。本研究发现,育成期能量限饲对试验鸡17和20周龄骨骼长度无显著影响,但骨骼重量结果表明,能量限饲显著影响了限饲期末和转换成自由采食3周后的骨骼重量,这与试验设计时对骨骼发育影响的预测不一致,各试验组蛋鸡育成期钙的摄入量相同,试验设计时预测能量限饲不会影响骨骼发育。分析发现,骨骼长度受饲粮ME水平和能量限饲影响较少,而骨骼重量与体重密切相关,当体重受到影响时,骨骼重量受影响更为明显,饲粮能量限饲可能影响了骨骼的密度,相关原因和机制有待进一步研究。

3.4 6~17周龄能量限饲对24周龄蛋鸡血清和肝脏生化指标的影响

本试验发现,6~17周龄能量限饲显著影响了试验鸡24周龄血清UN、钙和HDL含量,但对其他血清生化指标和肝脏脂质代谢相关生化指标无显著影响。血清生化指标反映了机体相关组织器官对营养物质的代谢状况。血清UN含量是反映机体蛋白质利用效率的指标,血清HDL含量是反映机体脂质代谢效率的指标[28]。有关限饲对蛋鸡血清和肝脏生化指标的研究未见报道,但自由采食情况下,有研究表明饲粮ME水平显著影响蛋鸡血清TG、UN、HDL等含量,但研究结果[18,28-29]并不一致。这可能与以上试验在试验鸡品种、日龄、饲粮组成和ME水平设置梯度等不同有关。本试验中,随着6~17周龄能量限饲强度增加,试验鸡24周龄血清UN含量呈显著线性减小,血清HDL含量呈显著线性增加,说明育成期能量限饲对转换成自由采食7周后(24周龄)蛋鸡对营养物质的代谢状态仍存在影响,限饲组试验鸡对饲粮蛋白质和脂质代谢效率仍然显著高于对照组。这可能由于限饲组蛋鸡限饲阶段ME摄入量过低,转换成自由采食7周后(24周龄),80%能量限饲组试验鸡平均体重仍然比对照组低23.3 g,说明此时限饲组试验鸡的蛋白质和能量储备仍然不足,不能满足机体生长需要,需要提升对饲粮中蛋白质和脂质的代谢效率。

3.5 6~17周龄能量限饲对24周龄蛋鸡血浆雌二醇和孕酮水平的影响

本试验发现,6~17周龄能量限饲显著影响了试验鸡24周龄血浆孕酮水平。有关育成期能量限饲对限饲期末和转换成自由采食后蛋鸡血液雌激素水平影响的相关研究未见报道,但育成期ME摄入量可以调控蛋鸡生殖器官的发育速度和性成熟[12-13]。有研究表明,将6周龄至开产ME摄入量降至自由采食的2/3,可使春季饲养的白来航蛋鸡性成熟延迟3周[10],7~15周龄限饲能延迟肉种鸡开产日龄[30]。本团队前期研究也发现,将8~18周龄ME摄入量降至自由采食的86%能够显著延迟如皋黄鸡18、20、22和24周龄的生殖器官发育,但对26和28周龄生殖器官发育无显著影响[12]。6~17周龄能量限饲显著影响了海兰褐蛋鸡20周龄输卵管、卵巢基质和小黄卵泡发育以及24周龄的输卵管发育,但对24周龄卵泡发育无显著影响[13]。本研究结果表明,随着6~17周龄能量限饲强度增加,ME摄入量减少,但24周龄蛋鸡血浆孕酮水平呈显著线性增加,说明限饲组蛋鸡转换为自由采食后可能通过生理调节分泌了更多的孕酮,以促进生殖器官发育。为了初步探明能量限饲调控转换为自由采食后蛋鸡卵巢雌激素生成机制,本试验进一步研究了育成期能量限饲对限饲期末和转换成自由采食过程中蛋鸡卵巢类固醇激素生成相关基因mRNA相对表达量的影响,以期初步探究其调控机制。

3.6 6~17周龄能量限饲对17、20和24周龄蛋鸡卵巢类固醇激素生成关键基因表达的影响

本试验发现,6~17周龄能量限饲显著影响了限饲期末至转换成自由采食7周蛋鸡卵巢基质部、大白卵泡膜层和小黄卵泡膜层类固醇激素生成关键基因mRNA相对表达量。17周龄蛋鸡大白卵泡以及17和20周龄小黄卵泡仅在部分试验鸡中开始发育,因此,调控卵巢类固醇激素生成的关键基因可能主要在17周龄的卵巢基质部类,20周龄的卵巢基质部和大白卵泡,以及24周龄的卵巢基质部、大白卵泡和小黄卵泡。在卵泡发育过程中,卵母细胞的发育和减数分裂等过程都需要大量的能量[31]。同时,蛋鸡在性成熟过程中对雌激素的敏感度比较高,雌激素可促进肝脏脂质合成,为卵泡中卵黄合成提供前体物质,最终促进卵泡生长[32]。卵巢类固醇激素主要由膜细胞和颗粒细胞分泌而来,是一类四环脂肪烃化合物,包括雄激素、雌激素、孕激素等,对生殖器官发育和性成熟具有重要的调控作用[33]。在哺乳动物中,环腺苷酸反应元件结合蛋白(CREB)是细胞能量平衡的关键感受器[34],研究表明,CREB和环腺苷酸反应元件结合蛋白转录激活因子(CRTC2)能够在转录水平上整合由能量和激素调节的细胞信号通路[35]。StAR是一类可以通过激素进行诱导的线粒体蛋白,主要在类固醇激素合成中发挥作用[36]。类固醇激素合成细胞中的促性腺激素可以通过激活G蛋白和腺苷酸环化酶,提高细胞内环磷酸腺苷水平,活化蛋白激酶A(PKA),活化的PKA进入细胞核磷酸化CREB等转录蛋白[37],磷酸化的CREB结合到StAR上的CREB结合区,作为转录因子激活StAR,刺激StAR基因表达,StAR蛋白能够将线粒体外膜的胆固醇递送到内膜,胆固醇是卵巢类固醇激素生成的主要前体物质,被胆固醇侧链裂解酶裂解生成孕烯醇酮(P5),P5经细胞色素P450羟化酶17A(CYP17A)催化形成脱氢表雄甾酮(DHEA),DHEA经3β-HSD催化形成雄烯二酮,或者P5经3β-HSD催化形成孕酮,再经CYP17A催化形成雄烯二酮,雄烯二酮经过17β-羟基类固醇脱氢酶催化形成睾酮,最后被催化形成雌激素[38-39]。CYP1B1参与动物繁殖,是雌激素生成的基本酶[40],其mRNA表达显示出明显的季节性变化,在产卵期的丰度最高,在体内和体外的最终卵母细胞成熟以及人绒毛膜促性腺激素和儿茶激素诱导的排卵期间发挥重要作用[41]。有研究表明,培养液中雌二醇和孕酮水平与小鼠卵泡颗粒细胞中CYP11A1的mRNA相对表达量呈正相关,高GLU含量下卵泡颗粒细胞中StAR和3β-HSD的mRNA相对表达量显著下调[42]。同时,当小鼠卵泡颗粒细胞CREB3的mRNA相对表达量被敲低后,StARCYP1B1的mRNA相对表达显著下调[43]。以上研究结果表明,哺乳动物CREB1、StARCYP11A1、CYP17A1、3β-HSDCYP1B1等是卵巢类固醇激素生成的关键基因,但家禽卵巢类固醇激素生成关键基因研究相对较少,其调控机制还不明确。
本团队前期在细胞水平上研究发现,随培养液GLU含量增加,蛋鸡卵泡膜细胞中CREB1、StARCYP1B1和3β-HSD的mRNA相对表达量均呈先增加后降低的二次曲线,CYP11A1和CYP17A1的mRNA相对表达量均呈显著线性降低,而蛋鸡卵泡膜细胞中CREB1、StAR、CYP11A1和3β-HSD蛋白含量均呈先增加后降低的二次曲线,说明适宜的GLU含量能够上调小黄卵泡内膜细胞与类固醇激素合成相关基因和蛋白的表达,但过高的GLU含量影响这些基因和蛋白的表达[5]。本试验研究了6~17周龄能量限饲对17、20和24周龄蛋鸡卵巢类固醇激素生成关键基因表达的影响,发现在卵巢基质部,17、20和24周龄2个能量限饲组36个基因中,26个基因的mRNA相对表达量显著下调,7个基因的mRNA相对表达量显著上调,上调基因分别为17周龄2个能量限饲组的CREB1和CYP1B1,24周龄90%能量限饲组的CREB1,以及20和24周龄80%能量限饲组的3β-HSD。在大白卵泡膜层,20周龄2个能量限饲组12个基因的mRNA相对表达量均显著上调,24周龄2个能量限饲组12个基因中,9个基因的mRNA相对表达量显著下调,1个基因的mRNA相对表达量显著上调,上调基因为24周龄80%能量限饲组的CREB1。在小黄卵泡膜层,24周龄2个能量限饲组12个基因中,5个基因的mRNA相对表达量显著下调,3个基因的mRNA相对表达量显著上调,上调基因为80%能量限饲组的CYP17A1、3β-HSDCYP1B1。本研究结果中,80%能量限饲组试验鸡24周龄血浆孕酮水平显著高于对照组,与24周龄80%能量限饲组卵巢基质部3β-HSD和大白卵泡膜层CREB1以及小黄卵泡膜层CYP17A1、3β-HSDCYP1B1的mRNA相对表达量结果一致。由此可见,育成期能量限饲显著影响限饲期末至转换成自由采食7周蛋鸡卵巢基质部、大白卵泡膜层和小黄卵泡膜层类固醇激素生成关键基因相对表达量。本研究结果中不同能量限饲强度对限饲期末和转换成自由采食后卵巢类固醇激素生成关键基因表达的调控结果也不相同,这可能与限饲强度、转换为自由采食后的营养素摄入量及试验鸡自身代谢状态等有关。本研究结果表明,卵巢类固醇激素生成关键基因的表达并不是通过某个组织中某一个简单通路调控的,可能是一种复杂的多组织多通路协同调控过程。

4 结论

① 6~17周龄能量限饲显著影响了17和20周龄试验鸡体重、腹脂和骨骼发育等,但对24周龄试验鸡屠体、内脏器官和骨骼发育均无显著影响。
② 6~17周龄80%能量限饲改善了24周龄试验鸡蛋白质和脂肪代谢相关的生化指标,增加了血浆孕酮水平,上调了卵巢基质部3β-HSD和大白卵泡膜层CREB1以及小黄卵泡膜层CYP17A1、3β-HSDCYP1B1的mRNA相对表达量。
[1]
杨宁. 家禽生产学[M]. 2版. 北京: 中国农业出版社, 2010.

YANG N. Poultry production[M]. 2nd ed. Beijing: China Agriculture Press, 2010. (in Chinese)

[2]
BESTMAN M, RUIS M A W, HEIJMANS J, et al. Poultry signals:a practical guide for bird focused poultry farming[M]. Netherlands: Roodbont Publishers B,2012:42-55.

[3]
VAN DER KLEIN S A S, ZUIDHOF M J, BÉDÉCARRATS G Y. Diurnal and seasonal dynamics affecting egg production in meat chickens:a review of mechanisms associated with reproductive dysregulation[J]. Animal Reproduction Science, 2020,213:106257.

[4]
PAN Y, ZHU J Z, LV Q, et al. Follicle-stimulating hormone regulates glycolysis of water buffalo follicular granulosa cells through AMPK/SIRT1 signalling pathway[J]. Reproduction in Domestic Animals, 2022, 57(2):185-195.

[5]
LU J, ZHANG X, WANG Q, et al. Effects of exogenous energy on synthesis of steroid hormones and expression characteristics of the CREB/StAR signaling pathway in theca cells of laying hen[J]. Poultry Science, 2024, 103(3):103414.

[6]
ZUIDHOF M J. Lifetime productivity of conventionally and precision-fed broiler breeders[J]. Poultry Science, 2018, 97(11):3921-3937.

DOI PMID

[7]
ZUKIWSKY N M, AFROUZIYEH M, ROBINSON F E, et al. Feeding,feed-seeking behavior,and reproductive performance of broiler breeders under conditions of relaxed feed restriction[J]. Poultry Science, 2021, 100(1):119-128.

[8]
SWEENEY K M, ARANIBAR C D, KIM W K, et al. Impact of every-day versus skip-a-day feeding of broiler breeder pullets during rearing on body weight uniformity and reproductive performance[J]. Poultry Science, 2022, 101(8):101959.

[9]
AVILA L P, SWEENEY K M, EVANS C R, et al. Body composition,gastrointestinal,and reproductive differences between broiler breeders fed using everyday or skip-a-day rearing programs[J]. Poultry Science, 2023, 102(9):102853.

[10]
FULLER H L, CHANEY L W. Effect of delayed maturity of White Leghorn chickens on subsequent productivity[J]. Poultry Science, 1974, 53(4):1348-1355.

PMID

[11]
LU J, QU L, LI Y F, et al. Effects of energy-restricted feeding during rearing on the performance,uniformity,and development of rugao layer breeders at the initiation of the laying period[J]. Animals, 2021, 11(8):2222.

[12]
LU J, LI Y F, QU L, et al. Effects of energy-restricted feeding during rearing on sexual maturation and reproductive performance of Rugao layer breeders[J]. Poultry Science, 2021, 100(8):101225.

[13]
LU J, WANG Q, WANG K H, et al. Effects of energy restriction during growing phase on the productive performance of Hyline Brown laying hens aged 6 to 72 wk[J]. Poultry Science, 2023, 102(10):102942.

[14]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[15]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中氨基酸的测定:GB/T 18246—2019[S]. 北京: 中国标准出版社, 2019.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of amino acids in feeds:GB/T 18246—2019[S]. Beijing: Standards Press of China, 2019. (in Chinese)

[16]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中钙的测定:GB/T 6436—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of calcium in feeds:GB/T 6436—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[17]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中总磷的测定分光光度法:GB/T 6437—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of phosphorus in feeds-spectrophotometry:GB/T 6437—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[18]
张蒙, 李强, 刘平, 等. 0-4周龄大午粉1号商品代蛋雏鸡饲粮中适宜的代谢能和粗蛋白质水平[J]. 动物营养学报, 2019, 31(2):652-661.

ZHANG M, LI Q, LIU P, et al. Optimal dietary metabolizable energy and crude protein levels for dawufen No.1 commercial layer chicks from 0 to 4 weeks of age[J]. Chinese Journal of Animal Nutrition, 2019, 31(2):652-661. (in Chinese)

[19]
卢建, 王克华, 杨晓东, 等. 育成期饲粮代谢能水平对开产时如皋黄鸡生长发育的影响[J]. 畜牧兽医学报, 2022, 53(7):2215-2227.

DOI

LU J, WANG K H, YANG X D, et al. Effects of dietary metabolizable energy levels during rearing on growth and development of Rugao yellow chicken at the initiation of the laying period[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(7):2215-2227. (in Chinese)

[20]
FRIKHA M, SAFAA H M, JIMÉNEZ-MORENO E, et al. Influence of energy concentration and feed form of the diet on growth performance and digestive traits of brown egg-laying pullets from 1 to 120 days of age[J]. Animal Feed Science and Technology, 2009, 153(3/4):292-302.

[21]
GUZMÁN P, SALDAÑA B, MANDALAWI H A, et al. Productive performance of brown-egg laying pullets from hatching to 5 weeks of age as affected by fiber inclusion,feed form,and energy concentration of the diet[J]. Poultry Science, 2015, 94(2):249-261.

[22]
SALDAÑA B, GUZMÁN P, CÁMARA L, et al. Feed form and energy concentration of the diet affect growth performance and digestive tract traits of brown-egg laying pullets from hatching to 17 weeks of age[J]. Poultry Science, 2015, 94(8):1879-1893.

DOI PMID

[23]
BUTZEN F M, RIBEIRO A M L, VIEIRA M M, et al. Early feed restriction in broilers.Performance,body fraction weights, and meat quality[J]. Journal of Applied Poultry Research, 2013, 22(2):251-259.

[24]
URDANETA-RINCON M, LEESON S. Quantitative and qualitative feed restriction on growth characteristics of male broiler chickens[J]. Poultry Science, 2002, 81(5):679-688.

[25]
NOVEL D J, NGAMBI J W, NORRIS D, et al. Effect of different feed restriction regimes during the starter stage on productivity and carcass characteristics of male and female Ross 308 broiler chickens[J]. International Journal of Poultry Science, 2009, 8(1):35-39.

[26]
童海兵, 王克华, 陆俊贤, 等. 鸡种、日粮能量和日粮蛋白质对体尺性状的影响[J]. 中国家禽, 2004, 8(增刊1):96-99.

TONG H B, WANG K H, LU J X, et al. Effects of breed and feed levels on the stature of chicken[J]. China Poultry, 2004, 8(S1):96-99. (in Chinese)

[27]
霍学婷, 郝文博, 赵丽红, 等. 日粮代谢能水平对“京红1号”蛋种鸡育成期生长性能及后续生产性能的影响[J]. 中国畜牧杂志, 2018, 54(3):57-61.

HUO X T, HAO W B, ZHAO L H, et al. Effects of dietary metabolizable energy levels on growth performance and subsequent production performance of Jinghong layers in finishing period (9-13 week)[J]. Chinese Journal of Animal Science, 2018, 54(3):57-61. (in Chinese)

[28]
卢建, 王克华, 杨晓东, 等. 饲粮代谢能水平对3-8周龄如皋黄鸡生长发育和血清生化指标的影响[J]. 动物营养学报, 2022, 34(4):2301-2313.

DOI

LU J, WANG K H, YANG X D, et al. Effects of dietary metabolic energy level on growth and development and serum biochemical indexes of Rugao yellow chickens aged from 3 to 8 weeks[J]. Chinese Journal of Animal Nutrition, 2022, 34(4):2301-2313. (in Chinese)

[29]
冯焯, 赵国先, 李树鹏, 等. 日粮代谢能和粗蛋白质水平对育雏期太行鸡生长性能及血液生化指标的影响[J]. 中国饲料, 2016(21):18-22,29.

FENG Z, ZHAO G X, LI S P, et al. Effect of different dietary metabolizable energy and crude protein levels on growth performance and blood biochemical indices of brooding Taihang chicken[J]. China Feed, 2016(21):18-22,29. (in Chinese)

[30]
BRUGGEMAN V, ONAGBESAN O, D’HONDT E, et al. Effects of timing and duration of feed restriction during rearing on reproductive characteristics in broiler breeder females[J]. Poultry Science, 1999, 78(10):1424-1434.

PMID

[31]
BASTOS N M, GOULART R S, BAMBIL D B, et al. High body energy reserve influences extracellular vesicles miRNA contents within the ovarian follicle[J]. PLoS One, 2023, 18(1):e0280195.

[32]
ROBINSON F E, ZUIDHOF M J, RENEMA R A. Reproductive efficiency and metabolism of female broiler breeders as affected by genotype,feed allocation,and age at photostimulation.2.Sexual maturation[J]. Poultry Science, 2007, 86(10):2267-2277.

[33]
YUAN X H, YANG C R, WANG X N, et al. Progesterone maintains the status of granulosa cells and slows follicle development partly through PGRMC1[J]. Journal of Cellular Physiology, 2019, 234(1):709-720.

[34]
KOO S H, FLECHNER L, QI L, et al. The CREB coactivator TORC2 is a key regulator of fasting glucose metabolism[J]. Nature, 2005, 437(7062):1109-1111.

[35]
ALTAREJOS J Y, MONTMINY M. CREB and the CRTC co-activators:sensors for hormonal and metabolic signals[J]. Nature Reviews Molecular Cell Biology, 2011, 12(3):141-151.

[36]
HIORT O, HOLTERHUS P M, WERNER R, et al. Homozygous disruption of P450 side-chain cleavage (CYP11A1) is associated with prematurity,complete 46,XY sex reversal,and severe adrenal failure[J]. The Journal of Clinical Endocrinology & Metabolism, 2005, 90(1):538-541.

[37]
HAN J B, LI E W, CHEN L Q, et al. The CREB coactivator CRTC2 controls hepatic lipid metabolism by regulating SREBP1[J]. Nature, 2015, 524(7564):243-246.

[38]
LEE K A, VOLENTINE K K, BAHR J M. Two steroidogenic pathways present in the chicken ovary: theca layer prefers delta 5 pathway and granulosa layer prefers delta 4 pathway[J]. Domestic Animal Endocrinology, 1998, 15(1):1-8.

PMID

[39]
KATO M, SHIMADA K, SAITO N, et al. Expression of P45017α-hydroxylase and P450aromatase genes in isolated granulosa,theca interna,and theca externa layers of chicken ovarian follicles during follicular growth[J]. Biology of Reproduction, 1995, 52(2):405-410.

[40]
SOWERS M R, WILSON A L, KARDIA S R, et al. CYP1A1 and CYP1B1 polymorphisms and their association with estradiol and estrogen metabolites in women who are premenopausal and perimenopausal[J]. The American Journal of Medicine, 2006, 119(Suppl.1):S44-S51.

[41]
CHAUBE R, RAWAT A, INBARAJ R M, et al. Cloning and characterization of estrogen hydroxylase (CYP1A1 and CYP1B1) genes in the stinging catfish Heteropneustes fossilis and induction of mRNA expression during final oocyte maturation[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2021,253:110863.

[42]
SAMIE K A, TABANDEH M R, AFROUGH M. Betaine ameliorates impaired steroidogenesis and apoptosis in mice granulosa cells induced by high glucose concentration[J]. Systems Biology in Reproductive Medicine, 2020, 66(6):400-409.

[43]
ZHAO F, WANG N, YI Y L, et al. Knockdown of CREB3/luman by shRNA in mouse granulosa cells results in decreased estradiol and progesterone synthesis and promotes cell proliferation[J]. PLoS One, 2016, 11(12):e0168246.

文章导航

/