研究论文

发酵杂粕型饲粮中添加小肽对肉牛瘤胃发酵参数及微生物区系的影响

  • 曾钰 , 1, 2 ,
  • 游茵洁 1, 2, * ,
  • 高彦华 2 ,
  • 姜菲 2 ,
  • 吴华卓 3 ,
  • 彭忠利 , 2, ** ,
  • 董贤文 , 1, **
展开
  • 1 重庆市畜牧科学院,重庆 402460
  • 2 西南民族大学畜牧兽医学院,成都 610041
  • 3 湖北省黄冈市团风县农业农村局,黄冈 438000
** 彭忠利,教授,硕士生导师,E-mail: ;
董贤文,副研究员,E-mail:
*同等贡献作者

曾 钰(1995—),男,重庆人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

收稿日期: 2024-02-28

  网络出版日期: 2024-08-12

基金资助

重庆市财政专项资金项目(24516C)

重庆市财政专项资金项目(24519C)

四川肉牛创新团队建设项目(sccxtd-2023-13)

Effects of Small Peptide Supplementation in Diets with Fermented Mixed Meals on Rumen Fermentation Parameters and Microflora of Beef Cattle

  • ZENG Yu , 1, 2 ,
  • YOU Yinjie 1, 2 ,
  • GAO Yanhua 2 ,
  • JIANG Fei 2 ,
  • WU Huazhuo 3 ,
  • PENG Zhongli , 2, ** ,
  • DONG Xianwen , 1, **
Expand
  • 1 Chongqing Academy Animal Sciences, Chongqing 402460, China
  • 2 College of Animal & Veterinary Sciences, Southwest Minzu University, Chengdu 610041, China
  • 3 Tuanfeng Rural Bureau of Huanggang City of Hubei Province, Huanggang 438000, China
** PENG Zhongli, professor, E-mail: ;
DONG Xianwen, associate professor, E-mail:
*Contributed equally

Received date: 2024-02-28

  Online published: 2024-08-12

摘要

本试验旨在研究发酵杂粕型饲粮中添加小肽对肉牛瘤胃发酵参数及微生物区系的影响。选取初重为(481.43±36.36) kg、健康状况良好的肉牛28头,随机分为4组,每组7个重复,每个重复1头牛。4组肉牛分别饲喂小肽添加水平为0(Ⅰ组,作为对照组)、0.5%(Ⅱ组)、1.0%(Ⅲ组)和1.5%(Ⅳ组)的发酵杂粕型全混合日粮。预试期15 d,正试期60 d。结果显示:1)随着小肽添加水平的增加,丁酸的比例呈二次曲线变化(P=0.037),异戊酸的比例有线性降低的趋势(P=0.080),丙酸的比例有二次曲线变化的趋势(P=0.082)。2)随着小肽添加水平的增加,Ace指数和Chao指数呈二次曲线变化(P=0.030、0.036)。3)门水平上,各组的优势菌门均为拟杆菌门、厚壁菌门和变形菌门,随着小肽添加水平的增加,厚壁菌门、柔膜菌门和Saccharibacteria的相对丰度有二次曲线变化的趋势(P=0.097、0.074、0.077)。属水平上,普雷沃氏菌属1为优势菌属,随着小肽添加水平的增加,普雷沃氏菌属1的相对丰度有二次曲线变化的趋势(P=0.089);理研菌科RC9肠道群的相对丰度随着小肽添加水平的增加呈二次曲线变化(P=0.042),与丙酸(r=-0.489,P=0.029)和戊酸比例(r=-0.529,P=0.016)显著负相关;Ⅱ组克里斯腾森菌科R7群的相对丰度显著高于其余组(P<0.05),与乙酸(r=0.678,P=0.001)、丁酸比例(r=0.481,P=0.032)和乙酸/丙酸(r=0.729,P<0.001)显著正相关,与丙酸比例(r=-0.723,P<0.001)显著负相关。综上所述,发酵杂粕型饲粮中添加小肽影响了肉牛瘤胃菌群的丰富度和多样性,影响了门和属水平菌群组成,改善了挥发性脂肪酸的组成和比例。

本文引用格式

曾钰 , 游茵洁 , 高彦华 , 姜菲 , 吴华卓 , 彭忠利 , 董贤文 . 发酵杂粕型饲粮中添加小肽对肉牛瘤胃发酵参数及微生物区系的影响[J]. 动物营养学报, 2024 , 36(8) : 5094 -5106 . DOI: 10.12418/CJAN2024.434

Abstract

This experiment aimed to investigate the effects of small peptide supplementation in diets with fermented mixed meals on rumen fermentation parameters and microflora of beef cattle. Twenty-eight healthy Simmental crossbred cattle with (481.43±36.36) kg of initial weight were randomly divided into 4 groups with 7 replicates per group and 1 cattle in each replicate. Cattle in the 4 groups were fed fermented mixed meal total mixed rations with small peptide supplemental levels of 0 (group Ⅰ, as control group), 0.5% (group Ⅱ), 1.0% (group Ⅲ) and 1.5% (group Ⅳ), respectively. The pre-test period lasted for 25 days and the trial lasted for 60 days. The results showed as follows: 1) with the increase of small peptide supplemental level, the proportion of butyrate showed a quadratic curve change (P=0.037), the proportion of isovalerate tended to decrease linearly (P=0.080), and the proportion of propionate had a tendency of quadratic curve change (P=0.082). 2) Ace index and Chao index had a quadratic curve change with the increase of small peptide supplemental level (P=0.030, 0.036, respectively). 3) At phylum level, the dominant phyla were Bacteroidetes, Firmicutes, and Proteobacteria, and with the increase of small peptide supplemental level, the relative abundances of Firmicutes, Tenericutes and Saccharibacteria presented a tendency of quadratic curve change (P=0.097, 0.074, 0.077, respectively). At genus level, the relative abundance of Prevotella_1 was the dominant genus, and with the increase of small peptide supplemental level, the relative abundance of Prevotella_1 had a tendency of quadratic curve change (P=0.089); the relative abundance of Rikenellaceae_RC9_gut_group showed a quadratic curve change with the increase of small peptide supplemental level (P=0.042), and its was negatively correlated with the proportions of propionate (r=-0.489, P=0.029) and valerate (r=-0.529, P=0.016); the relative abundance of Christensenellaceae_R7_group of group Ⅱ was significantly higher than that of other groups (P<0.05), it was positively correlated with the proportions of acetate (r=0.678, P=0.001), butyrate (r=0.481, P=0.032) and acetate/propionate (r=0.729, P<0.001), and was negatively correlated with the proportion of propionate (r=-0.729, P<0.001). In conclusion, on the conditions of the present study, supplementing small peptides to diets with fermented mixed meals can affect the rumen microbial richness and diversity, alter the microbial composition at phylum and genus levels, and optimize the composition and proportions of volatile fatty acids in the rumen of beef cattle.

瘤胃是反刍动物独特的消化器官,也是营养物质消化、吸收的主要场所,含有丰富的细菌、真菌、原虫、古细菌和病毒等,主要参与饲粮的消化,对瘤胃内环境的稳定和维持机体健康发挥着重要的作用[1-2]。不同饲粮营养成分和结构会诱导瘤胃微生物种类和数量产生一定的变化,进而对瘤胃微生物结构和功能的产生影响[3-4]。小肽一般是指由2~3个氨基酸组成的平均分子质量约为300 Da的小分子物质,是动物胃肠道中蛋白质消化的主要产物,具有转运快、耗能低、不易饱和等特点[5]。肽作为影响瘤胃微生物生长达到最大效率的关键因子,其在瘤胃内适宜的浓度有利于微生物蛋白的合成和微生物对纤维物质的降解[6]。苗建军等[7]研究表明,饲粮中添加小肽能够提高育肥牦牛的生产性能和养分表观消化率,改善肝脏功能,促进小肽在消化道中的转运吸收。张智安等[8]研究表明,在湖羊饲粮中添加蜜蜂肽能增加瘤胃微生物区系的丰富度和多样性,提高瘤胃中厚壁菌门、瘤胃球菌属2的丰度,降低普雷沃氏菌属1的丰度,提高乙酸比例及乙酸/丙酸,降低丙酸比例。有研究表明,饲粮中添加小肽能促进瘤胃微生物的生长,改善瘤胃发酵环境,提高纤维物质的利用,增加机体氮沉积,改善肠道氨基酸平衡,更好的发挥动物的生产潜力[9-11]。目前,小肽在改善动物生产中的应用已趋于成熟,主要集中在玉米-豆粕型饲粮中。但是,小肽的作用效果可能受到不同饲粮结构的影响,探究发酵杂粕型饲粮中添加小肽在瘤胃中的作用机制,对小肽在不同结构饲粮中的利用具有指导意义。因此,本试验在发酵杂粕型饲粮中添加不同水平的小肽,对肉牛瘤胃发酵参数及微生物区系进行研究,以期为小肽在发酵杂粕型肉牛饲粮中的应用提供基础数据。

1 材料与方法

1.1 试验材料

发酵杂粕:以菜籽粕和棉籽粕按1∶1混合作为固态发酵基质,在温度为(35±2) ℃,料水比1∶1的条件下,接种黑曲霉、米曲霉和枯草芽孢杆菌,经过4 d发酵制得。其主要成分及含量[实测值,干物质(DM)基础]如下:粗蛋白质(CP)49.60%、中性洗涤纤维(NDF)38.86%、酸性洗涤纤维(ADF)22.61%、粗灰分(Ash)8.42%、总能(GE)9.51 MJ/kg、钙(Ca)0.39%、总磷(TP)1.31%。
小肽:以棉籽蛋白为原料经液态酶解制得,其酸溶蛋白(<3 000 Da)含量≥28.0%,水分含量≤8.0%,CP含量≥45.0%,Ash含量≤15.0%,粗纤维(CF)含量≥7.0%,粗脂肪(EE)含量为2.5%,游离棉酚含量≤400 mg/kg,黄曲霉毒素B1含量≤15 μg/kg。

1.2 试验设计

本试验采用单因素随机试验设计,选取28头体重[(481.43±36.36) kg]相近、健康状况良好的西门塔尔杂交公牛,随机分为4组,每组7个重复,每个重复1头牛。Ⅰ组(对照组)饲喂发酵杂粕型饲粮,Ⅱ、Ⅲ、Ⅳ组分别饲喂小肽添加水平为0.5%、1.0%、1.5%的发酵杂粕型饲粮。试验共持续75 d,其中预试期15 d,正试期60 d。

1.3 试验饲粮

试验饲粮参考《肉牛饲养标准》(NY/T 815—2004)[12]中体重500 kg、平均日增重(ADG)1 000 g/d的肉牛营养需要量设计,由精料和粗料按50∶50混合配制成全混合日粮(TMR),粗料为发酵酒糟和皇竹草。皇竹草现割现用,饲喂前切断为1~3 cm的长度。发酵酒糟为市购,一次性备齐试验所需量,统一存放备用。试验饲粮组成及营养水平见表1
表1 试验饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis) %

项目
Items
组别Groups
原料Ingredients
玉米Corn 40.00 40.00 40.00 40.00
发酵杂粕Fermented mixed meals 7.50 7.00 6.50 6.00
小肽Small peptides 0.50 1.00 1.50
碳酸钙CaCO3 0.70 0.70 0.70 0.70
氯化钠NaCl 0.30 0.30 0.30 0.30
碳酸氢钠NaHCO3 0.51 0.50 0.50 0.50
硫酸钠Na2SO4 0.19 0.17 0.17 0.17
尿素Urea 0.11 0.14 0.14 0.14
预混料Premix1) 0.69 0.69 0.69 0.69
皇竹草Pennisetum sinese Roxb 25.00 25.00 25.00 25.00
发酵酒糟Fermented distillers’grains 25.00 25.00 25.00 25.00
合计Total 100.00 100.00 100.00 100.00
营养水平Nutrient levels2)
综合净能NEmf/(MJ/kg) 6.12 6.12 6.12 6.12
粗蛋白质CP 13.93 13.84 13.89 13.91
中性洗涤纤维NDF 45.95 46.91 45.39 47.43
酸性洗涤纤维ADF 27.20 25.61 28.08 25.54
粗灰分Ash 8.43 8.69 8.38 8.43
钙Ca 0.95 0.94 0.94 0.97
总磷TP 0.51 0.50 0.52 0.51

1)预混料为每千克饲粮提供The premix provides the following per kg of diets:VA 2 500 IU,VD 550 IU,VE 10 IU,Cu 10 mg,Fe (as ferrous sulfate) 50 mg,Mn (as manganese sulfate) 40 mg,Zn (as zinc sulfate) 40 mg,I (as potassium iodide) 0.5 mg,Se (as sodium selenite) 0.2 mg,Co(as cobalt chloride) 0.2 mg.

2)综合净能参照《肉牛饲养标准》(NY/T 815—2004)计算,其他营养水平为实测值。NEmf is calculated according to Chinese Feeding Standard of Beef Cattle (NY/T 815—2004), while the other nutrient levels are measured values.

1.4 饲养管理

试验牛进场前做好圈舍清洁和消毒等准备工作,进场后每头牛采用分栏栓系饲养,统一驱虫,每7 d消毒1次,由专人管理,保证牛舍清洁卫生。每天按预估采食量提供TMR,分2次(08:30和15:30)饲喂,自由采食和饮水。

1.5 样品采集与指标测定

1.5.1 瘤胃液采集

试验结束当天,每组随机选取5头肉牛采用口腔导管采集瘤胃液,弃去最初的50 mL(避免唾液的影响),然后分装于15 mL离心管和5 mL冻存管中,15 mL离心管-20 ℃保存,用于pH、氨态氮(NH3-N)和挥发性脂肪酸(volatile fatty acid,VFA)浓度的测定;5 mL冻存管立即投入液氮中保存,用于微生物区系的分析。

1.5.2 饲粮营养成分测定

饲粮中DM、CP、Ash、Ca和TP含量分别参照《饲料中水分的测定》(GB/T 6435—2014)、《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)、《饲料中粗灰分的测定》(GB/T 6438—2007)、《饲料中钙的测定》(GB/T 6436—2018)、《饲料中总磷的测定 分光光度法》(GB/T 6437—2018)进行测定,中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量参照Van Soest等[13]的方法进行测定。

1.5.3 瘤胃发酵参数测定

pH:采用PHS-10型便携式pH计测定。
NH3-N浓度:参照冯宗慈等[14]的比色法测定。
VFA浓度:用Agilent 6890N气相色谱仪测定。以2-乙基丁酸(2EB)作为内标物,采用内标校正定量方法进行计算。色谱条件为:载气为氮气(N2),分流比40∶1,流量2.0 mL/min,平均线速度38 cm/s,柱压11.3 psi,采用程序升温,初始 为120 ℃(3 min),以10 ℃/min升温至180 ℃(1 min),氢焰检测器温度为250 ℃,氢气(H2)流量40 mL/min,空气流量450 mL/min,柱流量+尾吹气流量45 mL/min,进样口温度为210 ℃,进样量为0.6 μL。
根据测定的各VFA浓度计算总挥发性脂肪酸(TVFA)的浓度,并计算各VFA占TVFA的比例以及乙酸/丙酸。

1.5.4 瘤胃微生物区系分析

根据OMEGA-soil DNA试剂盒(Omega Bio-Tek,美国)说明书进行总DNA抽提,DNA浓度和纯度利用NanoDrop 2000进行检测,利用1%琼脂糖凝胶电泳提取得到的DNA进行质量检测;然后用338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')引物对V3~V4可变区进行PCR扩增(PCR仪:ABI GeneAmp® 9700型),扩增程序为:95 ℃预变性3 min;95 ℃变性30 s,55 ℃退火30 s,72 ℃延伸30 s,27个循环;最后72 ℃延伸10 min。扩增体系为20 μL:4 μL 5×FastPfu 缓冲液,2 μL 2.5 mmol/L dNTPs,0.8 μL引物(5 μmol/L),0.4 μL FastPfu聚合酶,4.8 μL DNA稀释液(包含10 ng DNA模板),并用无酶水补足至20 μL。
使用2%琼脂糖凝胶回收PCR产物,利用AxyPrep DNA Gel Extraction Kit (Axygen Biosciences,美国)进行纯化,Tris-HCl洗脱,2%琼脂糖凝胶电泳检测。利用QuantiFluorTM-ST (Promega,美国)进行定量检测。然后用纯化后的扩增片段构建Miseq PE 2×300的文库,采用Illumina MiSeq平台(Illumina,美国)进行测序(上海美吉生物医药科技有限公司)。
原始测序序列使用Trimmomatic软件质控,使用FLASH软件进行拼接,使用的UPARSE软件(version 7.1, http://drive5.com/uparse/)根据97%的相似度对序列进行操作分类单元(OTU)聚类,并在聚类的过程中去除单序列和嵌合体。利用RDP classifier(http://rdp.cme.msu.edu/) 对每条序列进行物种分类注释,比对Silva数据库(SSU128),设置比对阈值为70%。

1.6 数据分析

数据通过Excel 2016整理后,使用SPSS 24.0软件进行单因素方差分析,采用Duncan氏法进行多重比较,随后对小肽添加水平进行线性(linear)和二次(quadratic)的回归分析。结果用平均值表示,各处理的变异程度用均值标准误(SEM)表示。P<0.05表示差异显著,0.05<P<0.10表示有趋势。韦恩(Venn)图、主坐标分析(PCoA)图、瘤胃属水平细菌相对丰度与发酵参数相关关系图的绘制均在美吉生物云平台(https://cloud.majorbio.com/)进行。

2 结果与分析

2.1 发酵杂粕型饲粮中添加小肽对肉牛瘤胃发酵参数的影响

表2可知,随着小肽添加水平的增加,丁酸的比例先升高后降低,呈二次曲线变化(P=0.037),异戊酸的比例有线性降低的趋势(P=0.080),而丙酸的比例有二次曲线变化的趋势(P=0.082);Ⅱ组乙酸比例显著高于Ⅰ组和Ⅲ组(P<0.05),与Ⅳ组无显著差异(P>0.05);其余各指标均无显著变化(P>0.05)。
表2 发酵杂粕型饲粮中添加小肽对肉牛瘤胃发酵参数的影响

Table 2 Effects of small peptide supplementation in diets with fermented mixed meals on ruminal fermentation parameters of beef cattle

项目
Items
组别Groups SEM PP-value
处理
Treatment
线性
Linear
二次
Quadratic
pH 6.50 6.55 6.48 6.55 0.02 0.135 0.367 0.638
氨态氮NH3-N/(mg/dL) 10.50 9.34 10.92 9.98 0.57 0.269 0.999 0.985
总挥发性脂肪酸TVFA/(mmol/L) 30.06 31.03 27.79 26.46 2.07 0.412 0.133 0.286
乙酸Acetate/% 62.46b 65.66a 63.12b 64.28ab 0.68 0.022 0.452 0.370
丙酸Propionate/% 22.90 19.33 20.38 21.05 0.97 0.104 0.357 0.082
异丁酸Isobutyrate/% 1.53 1.39 1.44 1.28 0.14 0.652 0.260 0.539
丁酸Butyrate/% 9.73 10.92 12.11 10.59 0.56 0.057 0.199 0.037
异戊酸Isovalerate/% 2.28 1.71 1.92 1.74 0.16 0.085 0.080 0.119
戊酸Valerate/% 1.11 1.00 1.03 1.07 0.09 0.837 0.873 0.686
乙酸/丙酸Acetate/propionate 2.75 3.40 3.17 3.08 0.18 0.106 0.387 0.104

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 发酵杂粕型饲粮中添加小肽对肉牛瘤胃微生物区系的影响

2.2.1 Alpha多样性分析

采用Illumina MiSeq平台测序,20个样本共得到1 040 915条优质细菌16S rRNA基因序列,每个样本平均产生52 046条,序列平均长度为420 bp。由表3可知,随着小肽添加水平的增加, Ace指数和Chao指数呈二次曲线变化(P=0.030、0.036);各组间的Simpson指数有差异显著的趋势(P=0.063),Shannon指数和覆盖度无显著差异(P>0.05);同时,各组覆盖度均达到了饱和状态(≥0.99),表明各组样品的测序量和测序深度合理,能准确反映瘤胃菌群的组成。
表3 发酵杂粕型饲粮中添加小肽对瘤胃菌群Alpha多样性的影响

Table 3 Effects of small peptide supplementation in diets with fermented mixed meals on Alpha diversity of rumen microflora

项目
Items
组别Groups SEM PP-value
处理
Treatment
线性
Linear
二次
Quadratic
Ace指数Ace index 1 072.32 1 196.74 1 174.77 1 038.11 46.76 0.338 0.611 0.030
Chao指数Chao index 1 053.11 1 191.92 1 181.83 1 040.41 50.89 0.323 0.855 0.036
Shannon指数Shannon index 4.67 4.97 4.91 4.54 0.20 0.159 0.645 0.231
Simpson指数Simpson index 0.031 0.032 0.024 0.044 0.013 0.063 0.615 0.695
覆盖度Coverage 0.991 0.990 0.990 0.991 <0.001 0.251 0.861 0.096

2.2.2 Venn图分析

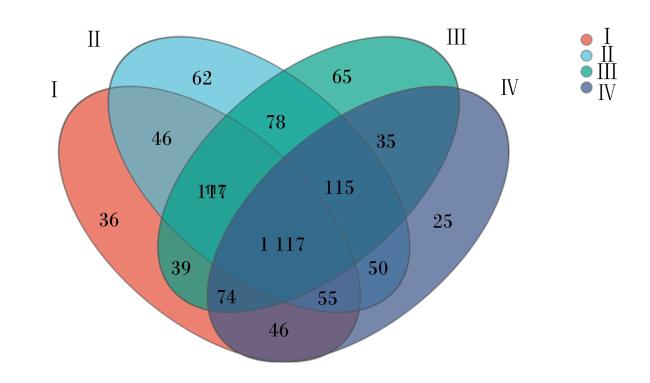
图1所示,在相似度为97%的水平下,4个组共聚类得到1 960个OTU,Ⅰ组、Ⅱ组、Ⅲ组和Ⅳ组OTU数分别为1 530、1 640、1 640和1 517个,共用1 117个OTU,占OTU总数的56.99%,独有的OTU数分别为36、62、65和25个,占OTU总数的比例分别为1.84%、3.16%、3.32%和1.28%,表明各组OTU组成差异较小。
图1 肉牛瘤胃菌群韦恩图

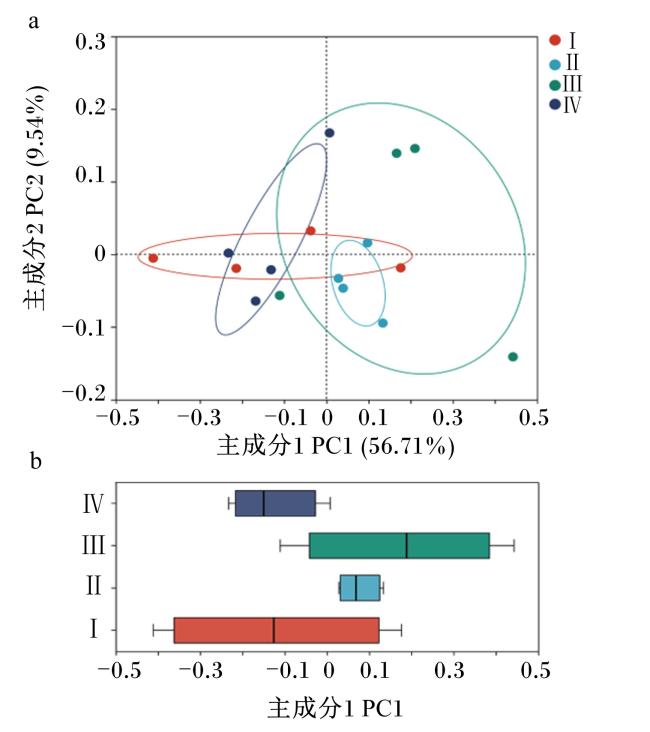
Ⅰ、Ⅱ、Ⅲ、Ⅳ分别代表Ⅰ、Ⅱ、Ⅲ、Ⅳ组。图2同。

Fig.1 Venn graph of rumen microflora of beef cattle

Ⅰ, Ⅱ, Ⅲ and Ⅳ mean groups Ⅰ, Ⅱ, Ⅲ and Ⅳ, respectively. The same as Fig.2.

2.2.3 PCoA

瘤胃菌群OTU水平上基于Weighted-Unifrac距离得到的PCoA如图2所示,主成分1(PC1)和主成分2(PC2)这2个主成分的贡献值分别为56.71%、9.54%;各组样本点聚类较为分散,表明在发酵杂粕型饲粮中添加小肽对瘤胃菌群结构影响较小。
图2 肉牛瘤胃菌群主坐标分析图

Fig.2 PCoA graph of rumen microflora of beef cattle

2.2.4 瘤胃菌群组成分析

本次测序经过序列比对和注释,20个样本共得到21个门、38个纲、78个目、134个科、323个属。如表4所示,各组相对丰度均大于3%的门为拟杆菌门、厚壁菌门和变形菌门,是瘤胃菌群中的优势菌门。随着小肽添加水平的增加,厚壁菌门、柔膜菌门和Saccharibacteria的相对丰度均有二次曲线变化的趋势(P=0.097、0.074、0.077);Ⅱ组Saccharibacteria的相对丰度显著高于其余组(P<0.05)。
表4 发酵杂粕型饲粮中添加小肽对肉牛瘤胃菌群组成的影响(门水平)

Table 4 Effects of small peptide supplementation in diets with fermented mixed meals on rumen microflora composition of beef cattle (phylum level) %

项目
Items
组别Groups SEM PP-value
处理
Treatment
线性
Linear
二次
Quadratic
拟杆菌门Bacteroidetes 63.33 52.07 58.26 60.62 6.68 0.676 0.948 0.594
厚壁菌门Firmicutes 22.27 39.45 32.39 24.59 5.40 0.140 0.997 0.097
变形菌门Proteobacteria 7.92 3.75 4.05 11.07 3.70 0.470 0.566 0.274
放线菌门Actinobacteria 4.04 1.33 2.02 1.06 1.32 0.398 0.168 0.318
螺旋菌门Spirochaetae 1.18 1.04 1.17 1.00 0.29 0.962 0.747 0.950
柔膜菌门Tenericutes 0.31 0.63 0.69 0.49 0.12 0.168 0.322 0.074
纤维杆菌门Fibrobacteres 0.30 0.34 0.34 0.53 0.13 0.628 0.238 0.436
疣微菌门Verrucomicrobia 0.16 0.25 0.31 0.15 0.06 0.227 0.921 0.143
Saccharibacteria 0.07b 0.47a 0.16b 0.12b 0.09 0.028 0.876 0.077
蓝藻菌门Cyanobacteria 0.20 0.27 0.15 0.09 0.08 0.430 0.201 0.322
表5所示,普雷沃氏菌属1的相对丰度超过25%,为瘤胃菌群中的优势菌属;随着小肽添加水平的增加,理研菌科RC9肠道群的相对丰度先升高后降低,呈二次曲线变化(P=0.042),普雷沃氏菌属1的相对丰度有二次曲线变化的趋势(P=0.089);Ⅱ组克里斯滕森菌科R7群的相对丰度显著高于其余3组(P<0.05)。
表5 发酵杂粕型饲粮中添加小肽对肉牛瘤胃菌群组成的影响(属水平)

Table 5 Effects of small peptide supplementation in diets with fermented mixed meals on rumen microflora composition of beef cattle (genus level) %

项目
Items
组别Groups SEM PP-value
处理
Treatment
线性
Linear
二次
Quadratic
普雷沃氏菌属1 Prevotella_1 31.17 26.96 26.73 38.88 4.18 0.180 0.261 0.089
瘤胃球菌属2 Ruminococcus_2 3.48 7.10 3.72 2.53 1.76 0.311 0.452 0.318
丹毒丝菌科UCG-004
Erysipelotrichaceae_UCG-004
1.83 2.68 9.57 5.34 2.25 0.106 0.119 0.176
普雷沃氏菌科UCG-001
Prevotellaceae_UCG-001
4.12 3.87 3.30 5.10 1.30 0.800 0.679 0.666
拟杆菌目S24-7群
Bacteroidales_S24-7_group
3.18 4.78 4.40 2.24 1.16 0.415 0.549 0.230
琥珀酸弧菌属Succinivibrio 2.45 1.20 0.79 3.25 1.21 0.475 0.723 0.296
普雷沃氏菌科UCG-003
Prevotellaceae_UCG-003
2.31 3.56 2.67 3.06 0.65 0.577 0.644 0.730
拟杆菌目BS11肠道群
Bacteroidales_BS11_gut_group
2.14 1.80 4.14 2.38 1.28 0.581 0.594 0.750
理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
1.94 3.17 3.07 1.79 0.47 0.104 0.821 0.042
普雷沃氏菌科UCG-004
Prevotellaceae_UCG-004
1.48 3.50 1.99 2.80 0.88 0.408 0.547 0.676
普雷沃氏菌属9
Prevotella_9
6.61 0.04 0.48 0.93 2.04 0.117 0.097 0.654
拟杆菌目RF16群
Bacteroidales_RF16_group
1.21 3.28 2.21 1.16 0.75 0.192 0.736 0.138
琥珀酸菌属Succiniclasticum 1.94 1.93 2.41 1.46 0.41 0.479 0.611 0.479
Phocaeicola 1.35 1.13 2.82 1.00 0.75 0.323 0.859 0.597
未分类的普雷沃氏菌科
Unclassified_f_Prevotellaceae
1.51 1.12 2.36 1.14 0.56 0.397 0.959 0.787
琥珀酸弧菌科UCG-002
Succinivibrionaceae_UCG-002
1.71 0.73 1.27 2.32 0.54 0.232 0.361 0.121
双歧杆菌属Bifidobacterium 3.09 0.81 0.92 0.71 1.20 0.461 0.195 0.303
克里斯滕森菌科R7群
Christensenellaceae_R7_group
0.67b 2.36a 1.36ab 0.85b 0.28 0.002 0.797 0.011
瘤胃球菌科UCG-002
Ruminococcaceae_UCG-002
1.32 1.25 1.54 0.85 0.24 0.259 0.327 0.280
未明确的普雷沃氏菌科
Norank_f_Prevotellaceae
2.03 0.75 1.25 0.65 0.48 0.192 0.105 0.221

2.2.5 属水平细菌相对丰度与瘤胃发酵参数的相关性分析

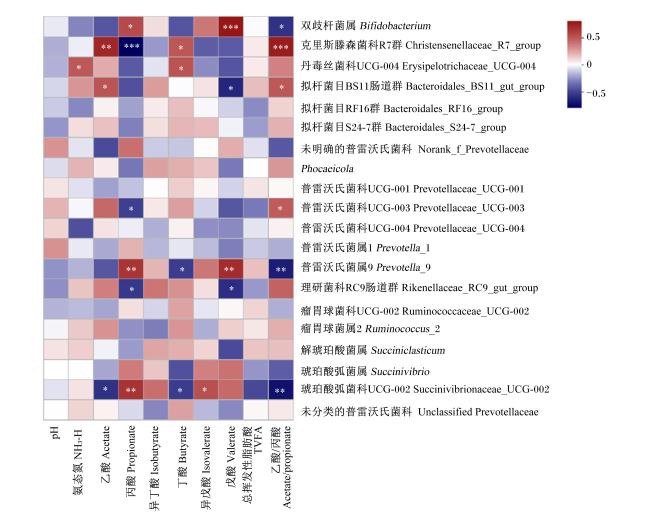
肉牛瘤胃中细菌属水平相对丰度(排在前20的菌属)与发酵参数的相关关系如图3所示。其中,NH3-N浓度与丹毒丝菌科UCG-004相对丰度(r=0.474,P=0.035)显著正相关;乙酸比例与拟杆菌目BS11肠道群(r=0.484,P=0.031)和克里斯滕森菌科R7群相对丰度(r=0.678,P=0.001)显著正相关,与琥珀酸弧菌科UCG-002相对丰度(r=-0.518,P=0.019)显著负相关;丙酸比例与琥珀酸弧菌科UCG-002(r=0.625,P=0.003)、普雷沃氏菌属9(r=0.618,P=0.004)和双歧杆菌属相对丰度(r=0.525,P=0.018)显著正相关,与理研菌科RC9肠道群(r=-0.489,P=0.029)、普雷沃氏菌科UCG-003(r=-0.463,P=0.040)和克里斯滕森菌科R7群相对丰度(r=-0.723,P<0.001)显著负相关;丁酸比例与克里斯滕森菌科R7群(r=0.481,P=0.032)和丹毒丝菌科UCG-004相对丰度(r=0.490,P=0.028)显著正相关,与普雷沃氏菌属9(r=-0.475,P=0.034)和琥珀酸弧菌科UCG-002相对丰度(r=-0.470,P=0.036)显著负相关;异戊酸比例与琥珀酸弧菌科UCG-002相对丰度(r=0.505,P=0.023)显著正相关;戊酸比例与普雷沃氏菌属9(r=0.650,P=0.002)和双歧杆菌属(r=0.758,P<0.001)相对丰度显著正相关,与拟杆菌目BS11肠道群(r=-0.559,P=0.010)和理研菌科RC9肠道群相对丰度(r=-0.529,P=0.016)显著负相关;乙酸/丙酸与普雷沃氏菌属UCG-003(r=460,P=0.041)、克里斯滕森菌科R7群(r=0.729,P<0.001)和拟杆菌目BS11肠道群相对丰度(r=-0.474,P=0.035)显著正相关,与普雷沃氏菌属9(r=-0.595,P=0.006)、琥珀酸弧菌科UCG-002(r=-0.647,P=0.002)和双歧杆菌属相对丰度(r=-0.514,P=0.020)显著负相关;瘤胃其余菌属相对丰度与各发酵参数的相关性较低。
图3 瘤胃属水平细菌相对丰度与发酵参数的相关关系

每一对变量之间的相关强度用颜色和*表示,*表示P<0.05,**表示P<0.01,***表示P<0.001。用深蓝色表示正相关系数接近+1,砖红色表示负相关系数接近-1。

Fig.3 Correlation between rumen bacteria relative abundances and fermentation parameters

The correlation strength between each pair of variables is represented by color and *. The * indicates P<0.05, ** indicates P<0.01, and ** indicates P<0.001. Dark blue indicates a positive correlation coefficient close to +1, and brick red indicates a negative correlation coefficient close to -1.

3 讨论

3.1 发酵杂粕型饲粮中添加小肽对肉牛瘤胃发酵参数的影响

瘤胃pH可综合反映瘤胃微生物代谢和有机酸产生、吸收、排出及中和等状况。当反刍动物瘤胃pH在6.2~6.8时发酵纤维物质的微生物活性最高,当瘤胃pH在5.5~6.0时发酵淀粉的微生物活性最强,当瘤胃pH降低到5.5以下时,容易出现酸中毒[15]。本试验中,各组肉牛瘤胃pH均在正常生理范围(6.41~6.62)内变动,且无显著差异,与Wang等[10]通过瘤胃灌注大豆小肽对鲁西黄牛瘤胃pH无显著影响的结果一致。殷云浩等[9]在羊体外试验中和本课题组前期[7,16]在牦牛饲粮中添加小肽也得到了类似的结果。瘤胃NH3-N浓度可直接反映瘤胃中微生物的生长状况。研究发现,瘤胃内NH3-N浓度低于5 mg/dL时会发生“解偶联”作用,降低瘤胃微生物的生长速度,而NH3-N浓度过高会抑制微生物合成微生物蛋白,导致血液中尿素氮(UN)含量升高,加重机体氮代谢的负担[17-18]。在此基础上,Bowman等[19]提出瘤胃中适宜微生物生长的NH3-N浓度为6~30 mg/dL。本试验中,各组肉牛瘤胃NH3-N浓度均在7.73~12.60 mg/dL,且无显著差异,与宋增廷[20]在肉羊饲粮中添加谷胱甘肽对瘤胃NH3-N浓度无显著影响的结果类似。Wang等[10]研究发现,NH3-N浓度随小肽灌注量的增加而增加,而殷云浩等[9]通过体外试验发现,随着不同氨基酸组成三肽添加水平的升高,NH3-N浓度逐渐降低。不同的结果可能与动物品种、饲粮组成、小肽类型和添加形式等不同有关。VFA是瘤胃内碳水化合物发酵的主要产物,是反刍动物主要的能量来源,乙酸、丙酸和丁酸约占到95%,其余以短链脂肪酸和支链脂肪酸为主。丙酸在糖异生作用下合成葡萄糖,乙酸是乳脂合成的主要前体,在动物生产中丙酸比例越高或乙酸/丙酸越低,可为机体提供的能量越高[21]。小肽能提高瘤胃碳水化合物的降解程度,增加瘤胃VFA浓度,同时小肽在瘤胃中水解后可为VFA的合成提供碳架[22]。本试验中,随着小肽添加水平的增加,乙酸和丁酸比例先升高后降低,丙酸比例逐渐升高,TVFA浓度和乙酸/丙酸值逐渐降低,但无显著差异,与前人研究结果[9-10]不完全一致。Jones等[6]通过体外试验发现,不同水平肽替代尿素作为氮源对瘤胃VFA组成无显著影响,且随着替代水平的升高,乙酸、丙酸和丁酸浓度出现不同程度的降低。本课题组前期在体外研究中也得到相似的结论,还发现添加高水平的小肽会出现负面影响[16],可能与发酵杂粕中含有一定量的小肽有关,再添加1.5%的小肽导致饲粮中肽含量过高,而高浓度的肽会降低部分蛋白质分解菌的数量,限制瘤胃微生物蛋白的合成和氨的利用[23]

3.2 发酵杂粕型饲粮中添加小肽对肉牛瘤胃微生物区系的影响

高通量测序技术是研究微生物结构和功能的重要技术手段,已被广泛应用于微生物组学及多样性研究中,也是研究瘤胃微生物的主要方法。本试验通过Illumina MiSeq平台测序,20个样本品共得到1 040 915条优质序列,平均每个样本52 046条,平均长度为420 bp,同时各组的覆盖度≥0.99,表明本次试验测序量和测序深度合理,覆盖了瘤胃内大多数细菌,能反映瘤胃中细菌的组成。Ace指数和Chao指数主要衡量物种丰富度,Shannon指数和Simpson指数主要衡量物种多样性。本试验中,Ace指数和Chao指数随着小肽添加水平的增加先升高后降低,Simpson指数有增加的趋势,说明在发酵杂粕型饲粮中添加小肽具有提高瘤胃菌群多样性的趋势,但会增加瘤胃菌群丰富度。这与张智安等[8]在育肥湖羊饲粮中添加蜜蜂肽可增加瘤胃菌群丰富度和多样性的结果一致。
Myer等[24]通过对安格斯、西门塔尔、婆罗门、夏洛莱、利穆赞等10多种肉牛瘤胃微生物区系组成进行研究发现,拟杆菌门、厚壁菌门和变形菌门为肉牛瘤胃中的优势菌门。本试验结果也显示肉牛瘤胃中的优势菌门为拟杆菌门、厚壁菌门和变形菌门。拟杆菌门所属微生物是瘤胃中非纤维植物多糖和蛋白质的主要分解者,其相对丰度与丙酸的生成正相关[25],厚壁菌门所属微生物主要降解纤维类物质,与乙酸和乳脂产量及脂肪沉积密切相关[24,26]。本试验中,随着小肽添加水平的增加,拟杆菌门的相对丰度先降低后升高,厚壁菌门的相对丰度呈现先升高后降低的二次曲线变化趋势,乙酸和丙酸比例也呈现相同的变化趋势;此外,发酵杂粕型饲粮中添加1.5%的小肽,肉牛的平均日增重降低,料重比升高[27]。上述结果说明在发酵杂粕型饲粮中添加适量的小肽可促进肉牛瘤胃微生物的生长、增殖,降解饲粮中的营养物质产生更多的丙酸,提高动物的生长性能,而小肽添加水平过高会降低动物的生产性能。Shen等[28]研究发现,大部分的软壁菌门属于衣原体家族。本试验发现,软壁菌门的相对丰度随着小肽添加水平的增加先升高后降低,与本课题组在牦牛饲粮中添加小肽时软壁菌门相对丰度逐渐增加的结果[29]不完全一致,推测可能与高浓度的肽抑制微生物的生长以及试验动物、饲粮结构等不同有关。Saccharibacteria是一类分布广泛、遗传多样性高、基因组高度还原的超小型细菌,属于候选门级辐射类群(candidate phyla radiation,CPR)[30],广泛分布于土壤、水环境、人类口腔及动物胃肠道中,在厌氧条件下分泌多种酶,参与有机物的降解[31]。本试验中,对照组相比,Ⅱ组Saccharibacteria的相对丰度显著升高,乙酸比例显著升高,推测Saccharibacteria可能参与乙酸的生成。
本试验中,普雷沃氏菌属1为肉牛瘤胃细菌的优势菌属,与前人研究结论[24,32]一致。普雷沃氏菌科含有多种菌属,参与多种微生物代谢,与蛋白质、淀粉、纤维素、果胶和木聚糖等降解过程密切相关[33-35]。本试验中,普雷沃氏菌属1的相对丰度随着小肽添加水平的增加先降低后升高,有二次曲线变化的趋势,普雷沃氏菌科UCG-001、普雷沃氏菌科UCG-003、普雷沃氏菌科UCG-004和普雷沃氏菌属9的相对丰度无显著变化,与Wang等[10]得出的在肉牛瘤胃中灌注小肽对普雷沃氏菌属相对丰度无显著影响的结果基本一致;同时,普雷沃氏菌属9相对丰度与丙酸和戊酸比例显著正相关,与丁酸比例和乙酸/丙酸显著负相关;普雷沃氏菌科UCG-003相对丰度与乙酸/丙酸显著正相关,与丙酸比例显著负相关。这表明普雷沃氏菌科所属细菌与瘤胃VFA的代谢密切相关。本试验中,理研菌科RC9肠道群相对丰度随着小肽添加水平的增加呈先升高后降低的二次曲线变化,与丙酸和戊酸比例显著负相关。理研菌科RC9肠道群能有效降解可溶性多糖和不溶性纤维,在维护肠道健康方面发挥着重要作用[36]。这或许是添加小肽后肉牛的有机物和NDF消化率呈现相同的先升高后降低变化趋势的原因之一。克里斯滕森菌科属厚壁菌门,广泛分布于人类和动物肠道中,在维持胃肠道结构和功能以及调节宿主免疫方面发挥重要作用,对宿主的健康至关重要[32,37]。He等[38]发现,克里斯滕森菌科与饲料效率、丙酸浓度及脂质代谢等相关,其在盲肠中相对丰度较高时短链脂肪酸浓度较低。本试验中,克里斯滕森菌科R7群的相对丰度随着小肽添加水平的增加先升高后降低,与乙酸、丁酸比例和乙酸/丙酸显著正相关,与丙酸比例显著负相关,表明克里斯滕森菌属与瘤胃VFA的代谢密切相关。

4 结论

发酵杂粕型饲粮中添加小肽可增加肉牛瘤胃菌群的丰富度和多样性,对厚壁菌门、柔膜菌门和拟杆菌科部分菌属、理研菌科RC9肠道群、克里斯滕森菌科R7群的相对丰度产生影响,最终影响瘤胃中乙酸、丙酸、丁酸、异戊酸的比例。
[1]
李岩, 杨英魁, 柴沙驼, 等. 瘤胃液移植在反刍动物中的研究进展[J]. 动物营养学报, 2023, 35(4):2105-2110.

DOI

LI Y, YANG Y K, CHAI S T, et al. Research progress of rumen fluid transplantation in ruminants[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2105-2110. (in Chinese)

DOI

[2]
LI C H, WEI J S, JING Y P, et al. A β-glucosidase-producing M-2 strain:isolation from cow dung and fermentation parameter optimization for flaxseed cake[J]. Animal Nutrition, 2019, 5(1):101-108.

[3]
CARBERRY C A, KENNY D A, HAN S, et al. Effect of phenotypic residual feed intake and dietary forage content on the rumen microbial community of beef cattle[J]. Applied and Environmental Microbiology, 2012, 78(14):4949-4958.

DOI PMID

[4]
WANG L J, ZHANG G N, LI Y, et al. Effects of high forage/concentrate diet on volatile fatty acid production and the microorganisms involved in VFA production in cow rumen[J]. Animals, 2020, 10(2):223.

[5]
ZHAO X Y, ZHANG Y, HE W T, et al. Effects of small peptide supplementation on growth performance,intestinal barrier of laying hens during the brooding and growing periods[J]. Frontiers in Immunology, 2022,13:925256.

[6]
JONES D F, HOOVER W H, MILLER WEBSTER T K. Effects of concentrations of peptides on microbial metabolism in continuous culture[J]. Journal of Animal Science, 1998, 76(2):611-616.

PMID

[7]
苗建军, 彭忠利, 高彦华, 等. 日粮中添加小肽对育肥牦牛生产性能和消化道PepT1 mRNA表达的影响[J]. 中国农业科学, 2020, 53(23):4950-4960.

DOI

MIAO J J, PENG Z L, GAO Y H, et al. Effects of dietary small peptides on production performance and expression of PepT1 mRNA in digestive tract of fattening yaks[J]. Scientia Agricultura Sinica, 2020, 53(23):4950-4960. (in Chinese)

[8]
张智安, 李世易, 武刚, 等. 蜜蜂肽对育肥湖羊生长性能和瘤胃微生物区系的影响[J]. 动物营养学报, 2020, 32(2):756-764.

DOI

ZHANG Z A, LI S Y, WU G, et al. Effects of honeybee peptide on growth performance and rumen microflora of fattening Hu sheep[J]. Chinese Journal of Animal Nutrition, 2020, 32(2):756-764. (in Chinese)

[9]
殷云浩, 薛白, 阎天海, 等. 不同氨基酸组成的二肽对羊体外瘤胃发酵特性的影响[J]. 动物营养学报, 2012, 24(6):1173-1180.

DOI

YIN Y H, XUE B, YAN T H, et al. Di-peptids consisting of different amino acids affect rumen fermentation characteristics of goats in vitro[J]. Chinese Journal of Animal Nutrition, 2012, 24(6):1173-1180. (in Chinese)

[10]
WANG W J, YANG W R, WANG Y, et al. Effects of soybean small peptides on rumen fermentation and on intestinal and total tract digestion of Luxi yellow cattle[J]. Asian-Australasian Journal of Animal Sciences, 2013, 26(1):72-81.

[11]
YUAN W, JIN H T, REN Z H, et al. Effects of antibacterial peptide on humoral immunity in weaned piglets[J]. Food and Agricultural Immunology, 2015, 26(5):682-689.

[12]
中华人民共和国农业部. 肉牛饲养标准:NY/T 815—2004[S]. 北京: 中国农业出版社, 2004.

Ministry of Agriculture of the PRC. Feeding standard of beef cattle:NY/T 815—2004[S]. Beijing: China Agriculture Press, 2004. (in Chinese)

[13]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[14]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of the method of measuring ammonia N concentration of rumen liquid by colorimetric determination[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[15]
VAN HOUTERT M F J. The production and metabolism of volatile fatty acids by ruminants fed roughages:a review[J]. Animal Feed Science and Technology, 1993, 43(3/4):189-225.

[16]
涂瑞, 苗建军, 彭忠利, 等. 不同精粗比日粮中添加小肽对牦牛瘤胃体外发酵特性的影响[J]. 草业学报, 2020, 29(3):78-88.

DOI

TU R, MIAO J J, PENG Z L, et al. An in vitro study of dietary concentrate:forage ratio and small peptide supplementation effects on ruminal fermentation parameters of yaks[J]. Acta Prataculturae Sinica, 2020, 29(3):78-88. (in Chinese)

[17]
SATTER L D, SLYTER L L. Effect of ammonia concentration on rumen microbial protein production in vitro[J]. British Journal of Nutrition, 1974, 32(2):199-208.

[18]
YANG W Z, BEAUCHEMIN K A, RODE L M. Effects of grain processing,forage to concentrate ratio,and forage particle size on rumen pH and digestion by dairy cows[J]. Journal of Dairy Science, 2001, 84(10):2203-2216.

[19]
BOWMAN J G P, ASPLUND J M. Nitrogen utilization,ruminal fermentation and abomasal nitrogen flow in sheep fed Caucasian bluestem hay supplemented with lucerne or urea[J]. Animal Feed Science and Technology, 1988, 20(1):33-44.

[20]
宋增廷. 谷胱甘肽对肉羊瘤胃发酵、生长及肉质调控作用的研究[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2008.

SONG Z T. Studies on manipulation of rumen fermentation, growth and meat quality in fattening lambs by adding glutathione[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2008. (in Chinese)

[21]
李旺. 瘤胃挥发性脂肪酸的作用及影响因素[J]. 中国畜牧杂志, 2012, 48(7):63-66.

LI W. The effect and influence factors of rumen volatile fatty acid[J]. Chinese Journal of Animal Science, 2012, 48(7):63-66. (in Chinese)

[22]
WANG H, ZHONG J C, WANG J K, et al. Whole-Transcriptome analysis of yak and cattle heart tissues reveals regulatory pathways associated with high-altitude adaptation[J]. Frontiers in Genetics, 2021,12:579800.

[23]
REYNAL S M, IPHARRAGUERRE I R, LIÑEIRO M, et al. Omasal flow of soluble proteins,peptides,and free amino acids in dairy cows fed diets supplemented with proteins of varying ruminal degradabilities[J]. Journal of Dairy Science, 2007, 90(4):1887-1903.

[24]
MYER P R, SMITH T P L, WELLS J E, et al. Rumen microbiome from steers differing in feed efficiency[J]. PLoS One, 2015, 10(6):e0129174.

[25]
PITTA D W, PINCHAK W E, DOWD S, et al. Longitudinal shifts in bacterial diversity and fermentation pattern in the rumen of steers grazing wheat pasture[J]. Anaerobe, 2014,30:11-17.

[26]
JAMI E, WHITE B A, MIZRAHI I. Potential role of the bovine rumen microbiome in modulating milk composition and feed efficiency[J]. PLoS One, 2014, 9(1):e85423.

[27]
曾钰, 刘垚, 张康林, 等. 发酵杂粕型饲粮添加小肽对肉牛生长性能、养分表观消化率及血清生化指标的影响[J]. 动物营养学报, 2022, 34(2):1058-1066.

DOI

ZENG Y, LIU Y, ZHANG K L, et al. Effects of small peptide supplementation in diets with fermented mixed meals on growth performance,nutrient apparent digestibility and serum biochemical indices of beef cattle[J]. Chinese Journal of Animal Nutrition, 2022, 34(2):1058-1066. (in Chinese)

[28]
SHEN H S, ZANG Y N, SONG K, et al. A Meta-transcriptomics survey reveals changes in the microbiota of the Chinese mitten crab Eriocheir sinensis infected with hepatopancreatic necrosis disease[J]. Frontiers in Microbiology, 2017,8:732.

[29]
黎凌铄, 彭忠利, 陈仕勇, 等. 小肽与酵母培养物对舍饲牦牛瘤胃微生物多样性和发酵参数的影响[J]. 中国饲料, 2021(5):16-23.

LI L S, PENG Z L, CHEN S Y, et al. Effects of small peptide and yeast culture on rumen microbial diversity and fermentation parameters of yaks[J]. China Feed, 2021(5):16-23. (in Chinese)

[30]
TIAN J, UTTER D R, CEN L J, et al. Acquisition of the arginine deiminase system benefits epiparasitic Saccharibacteria and their host bacteria in a mammalian niche environment[J]. Proceedings of the National Academy of Sciences of the United States of America, 2022, 119(2):e2114909119.

[31]
KINDAICHI T, YAMAOKA S, UEHARA R, et al. Phylogenetic diversity and ecophysiology of candidate phylum Saccharibacteria in activated sludge[J]. FEMS Microbiology Ecology, 2016, 92(6):fiw078.

[32]
LIU J H, XUE C X, SUN D M, et al. Impact of high-grain diet feeding on mucosa-associated bacterial community and gene expression of tight junction proteins in the small intestine of goats[J]. MicrobiologyOpen, 2019, 8(6):e00745.

[33]
JAMI E, ISRAEL A, KOTSER A, et al. Exploring the bovine rumen bacterial community from birth to adulthood[J]. The ISME Journal, 2013, 7(6):1069-1079.

[34]
THOETKIATTIKUL H, MHUANTONG W, LAOTHANACHAREON T, et al. Comparative analysis of microbial profiles in cow rumen fed with different dietary fiber by tagged 16S rRNA gene pyrosequencing[J]. Current Microbiology, 2013, 67(2):130-137.

DOI PMID

[35]
LI Z P, WRIGHT A D, LIU H L, et al. Response of the rumen microbiota of sika deer (Cervus nippon) fed different concentrations of tannin rich plants[J]. PLoS One, 2015, 10(5):e0123481.

[36]
ZHU Y X, WANG Z S, HU R, et al. Comparative study of the bacterial communities throughout the gastrointestinal tract in two beef cattle breeds[J]. Applied Microbiology and Biotechnology, 2021, 105(1):313-325.

DOI PMID

[37]
WATERS J L, LEY R E. The human gut bacteria Christensenellaceae are widespread,heritable,and associated with health[J]. BMC Biology, 2019, 17(1):83.

[38]
HE Z X, LIU R R, WANG M J, et al. Combined effect of microbially derived cecal SCFA and host genetics on feed efficiency in broiler chickens[J]. Microbiome, 2023, 11(1):198.

DOI PMID

文章导航

/