研究论文

脱脂辣木籽提取物成分分析及其对体外瘤胃发酵和细菌群落结构的影响

  • 宗玉洁 , 1 ,
  • 程志强 1 ,
  • 孙善涛 1 ,
  • 武中秀 1 ,
  • 周晓洁 1 ,
  • 刘丽 1 ,
  • 吉慧敏 1 ,
  • 苏衍菁 2 ,
  • 林淼 , 1, *
展开
  • 1 扬州大学动物科学与技术学院,扬州 225009
  • 2 光明牧业有限公司,农业农村部南方奶牛遗传改良重点实验室,上海 200436
*林 淼,副教授,硕士生导师,E-mail:

宗玉洁(2001—),女,江苏兴化人,硕士研究生,研究方向为反刍动物营养。E-mail:

收稿日期: 2024-01-22

  网络出版日期: 2024-08-12

基金资助

江苏省研究生实践创新计划项目(SJCX23_1994)

国家奶牛产业技术体系(CARS36)

江苏省碳达峰碳中和科技创新专项资金(BE2022309)

Composition Analysis of Defatted Moringa oleifera Seed Extracts and Their Effects on Rumen Fermentation and Bacterial Community Structure in Vitro

  • ZONG Yujie , 1 ,
  • CHENG Zhiqiang 1 ,
  • SUN Shantao 1 ,
  • WU Zhongxiu 1 ,
  • ZHOU Xiaojie 1 ,
  • LIU Li 1 ,
  • JI Huimin 1 ,
  • SU Yanjing 2 ,
  • LIN Miao , 1, *
Expand
  • 1 College of Animal Science and Technology, Yangzhou University, Yangzhou 225009, China
  • 2 Key Laboratory of Dairy Cattle Genetic Improvement in Southern China, Ministry of Agriculture and Rural Affairs, Bright Farming Co., Ltd., Shanghai 200436, China
*associate professor, E-mail:

Received date: 2024-01-22

  Online published: 2024-08-12

摘要

本试验旨在研究脱脂辣木籽提取物成分组成及其对体外瘤胃发酵和细菌群落结构的影响。试验采用脱脂辣木籽粉为试验材料,通过液相色谱-质谱(LC-MS)法测定乙醇相和水相2种提取物的成分差异,并采用体外模拟瘤胃发酵技术,分别设置乙醇和水提取物的添加剂量为0(对照)、1.875、3.750和7.500 mg/kg(n=5),厌氧发酵72 h,测定其对体外瘤胃发酵发酵参数和菌群结构的影响。结果表明:1)脱脂辣木籽乙醇和水提取物的产率分别为12.66%和38.90%;与水提取物相比,乙醇提取物含有较高的类黄酮和异黄酮类化合物,但含有较低的苯类和酚类物质。2)与对照组相比,乙醇提取物添加组干物质降解率显著降低(P<0.05)。3)添加1.875和3.750 mg/kg乙醇提取物培养6 h后,各时间点产气量均显著低于对照组(P<0.05);水提取物添加组各时间点产气量均显著高于对照组(P<0.05)。4)与对照组相比,添加脱脂辣木籽乙醇提取物显著提高了发酵液乳酸含量(P<0.05);添加1.875和3.750 mg/kg乙醇提取物显著提高了发酵液丙酸比例(P<0.05),显著降低了发酵液异丁酸、丁酸、异戊酸、戊酸和己酸比例(P<0.05)。与对照组相比,添加脱脂辣木籽水提取物显著降低了发酵液pH和乙酸比例(P<0.05),显著提高了发酵液乳酸和总短链脂肪酸含量以及丙酸比例(P<0.05);添加1.875和3.750 mg/kg水提取物显著降低了发酵液氨态氮含量和戊酸比例(P<0.05),显著提高了发酵液异戊酸比例(P<0.05)。5)与对照组相比,添加1.875 mg/kg乙醇提取物显著降低了理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)和毛螺菌科NK3A20群(Lachnospiraceae_NK3A20_group)相对丰度(P<0.05),显著提高了拟杆菌属(Bacteroides)、埃希氏-志贺氏菌属(Escherichia-Shigella)和不动杆菌属(Acinetobacter)相对丰度(P<0.05);而添加1.875 mg/kg水提取物添加显著提高了克里斯滕森菌科R-7群和毛螺菌科NK3A20群相对丰度(P<0.05)。综上所述,脱脂辣木籽乙醇和水提取物营养成分和活性物质含量存在差异,其中,乙醇提取物中的黄酮类物质可能会抑制瘤胃发酵、减少有益菌数量,而水提取物可以促进瘤胃发酵。

本文引用格式

宗玉洁 , 程志强 , 孙善涛 , 武中秀 , 周晓洁 , 刘丽 , 吉慧敏 , 苏衍菁 , 林淼 . 脱脂辣木籽提取物成分分析及其对体外瘤胃发酵和细菌群落结构的影响[J]. 动物营养学报, 2024 , 36(8) : 5152 -5169 . DOI: 10.12418/CJAN2024.439

Abstract

This experiment was conducted to study the composition of defatted Moringa oleifera seed extracts and their effects on rumen fermentation and bacterial community structure in vitro. The defatted Moringa oleifera seed powder was used as the material, and the composition difference of two extracts in ethanol phase and water phase was determined by liquid chromatography-mass spectrometry (LC-MS). Using a simulated rumen fermentation technique in vitro, the dosages of ethanol and water extracts were set as 0 (control), 1.875, 3.750 and 7.500 mg/kg (n=5), respectively, and after anaerobic fermentation for 72 h, the effects of defatted Moringa oleifera seed extracts on the fermentation parameters and microflora structure of rumen fermentation in vitro were measured. The results showed as follows: 1) the yield of ethanol and water extracts of defatted Moringa oleifera seeds was 12.66% and 38.90%, respectively; compared with the water extract, the ethanol extract contained higher contents of flavonoids and isoflavones, but had lower contents of benzenes and phenols. 2) Compared with the control group, the dry matter degradability in ethanol extract supplemental group was significantly decreased (P<0.05). 3) After adding 1.875 and 3.750 mg/kg ethanol extract for 6 h, the gas production at all time points was significantly lower than that in the control group (P<0.05); while the gas production in water extract supplemental group was significantly higher than that in the control group at all time points (P<0.05). 4) Compared with the control group, the supplementation of defatted Moringa oleifera seed ethanol extract significantly increased the lactic acid content in fermentation broth (P<0.05); the supplementation of 1.875 and 3.750 mg/kg ethanol extract significantly increased the propionate proportion in fermentation broth (P<0.05), and significantly decreased the proportions of isobutyrate, butyrate, isovalerate, valerate and caproate in fermentation broth (P<0.05). Compared with the control group, the supplementation of defatted Moringa oleifera seed water extract significantly decreased the pH and acetate proportion in fermentation broth (P<0.05), and significantly increased the contents of lactic acid and total short-chain fatty acids as well as the propionate proportion in fermentation broth (P<0.05); the supplementation of 1.875 and 3.750 mg/kg water extract significantly decreased the ammonia nitrogen content and valerate proportion in fermentation broth (P<0.05), and significantly increased the isovalerate proportion in fermentation broth (P<0.05). 5) Compared with the control group, the supplementation of 1.875 mg/kg ethanol extract significantly decreased the relative abundances of Rikenellaceae_RC9_gut_group, Christensenellaceae_R-7_group and Lachnospiraceae_NK3A20_group (P<0.05), and significantly increased the relative abundances of Bacteroides, Escherichia-Shigella and Acinetobacter (P<0.05); while the supplementation of 1.875 mg/kg water extract significantly increased the relative abundances of Christensenellaceae_R-7_group and Lachnospiraceae_NK3A20_group (P<0.05). In conclusion, there are differences in the contents of nutritional components and active substances between ethanol extract and water extract of defatted Moringa oleifera seeds. Among them, the flavonoids in ethanol extract may inhibit rumen fermentation and reduce the number of beneficial bacteria, while the water extract can promote rumen fermentation.

瘤胃是反刍动物储存和发酵饲草饲料的器官,里面容纳着丰富而多样的微生物,它们对单糖和多糖的降解功能强大,这弥补了动物无法分泌木质纤维素降解酶的不足,也促成了将植物茎秆等作为反刍动物饲料的必然性[1-2]。因此,提高反刍动物瘤胃发酵功能,是提高畜牧经济效益研究的重点和难点。近年来研究发现,开发植物次生代谢物作为饲料添加剂来提高饲料转化效率及保证动物健康,生产安全的畜产品是可行的[3]。可产生植物次生代谢产物的植物种类和部位也是多种多样,包括了水果和谷物的茎、叶以及种子、饲草等,但它们对瘤胃发酵的影响效果不一致[4]。而次生代谢产物中受到关注的精油、单宁和皂苷对瘤胃发酵的影响效果也不同[5]。目前,植物提取物可以作为天然绿色添加剂来调控瘤胃发酵,但是不同极性的植物活性成分差异大,应用效果各异。因此,探究特定植物提取物的促发酵作用显得尤为重要。
植物提取物中的主要活性成分包括多酚、植物多糖、植物精油、有机酸和生物碱。多酚又可分为类黄酮和非类黄酮化合物,具有抗氧化、抗炎、提高免疫力以及调控脂质代谢等作用。植物多糖具有抗氧化、降血糖和调节肠道等多种生物功能。植物精油对动物具有多种生物调控作用。目前对各种活性成分的检测方法有色谱法、光谱法、质谱法及其联合应用技术[6]。辣木籽(Moringa oleifera seed)被作为人类的功能性食品,营养价值高还具有药用价值[7]。辣木籽富含蛋白质、油脂、多糖、维生素以及丰富的矿物质元素,随着对辣木籽研究的深入,其所含有的具有抗氧化、抗菌和抗癌等功效的生物活性物质也备受关注。辣木籽含多种活性成分,包括油酸、硫代葡萄糖苷、生育酚、1-H-吡唑-4-基甲醇、1,4-萘醌以及橙皮苷等[8-9]。辣木花和叶的乙醇提取物可减少药物引起的大鼠肝肾损伤,具有保肝活性[10]。此外,辣木籽水提取物和乙醇提取物可有效抑制金黄色葡萄球菌、霍乱弧菌和大肠杆菌的生长,具有抗菌作用[11]。辣木叶和种子的甲醇提取物可更有效地将四氧嘧啶诱导的糖尿病小鼠的空腹血糖降低到正常水平[12]。辣木籽甲醇相提取物可通过加快伤口闭合速度显示出显著的伤口愈合潜力[13]
随着辣木籽营养价值和经济价值的提高,辣木籽化学成分的提取也成为研究热点。目前对辣木的提取方法有水提法、乙醇提取法和粗提法(石油醚提取、氯仿提取、乙酸乙酯提取和四氯化碳提取)[14]。然而,辣木籽提取物对瘤胃微生物发酵的影响尚未有报道。因此,在本试验中,用乙醇和水依次提取脱脂辣木籽,以分析其化学成分的差异,并使用体外模拟发酵技术评估其对饲料发酵的影响,旨在为辣木籽在畜牧业中的应用提供数据支持。

1 材料与方法

1.1 辣木籽的提取

本试验所用辣木籽粉购自某生物有限公司。根据辣木籽的特性,参考马钱波[15]的方法并优化后提取方法如下:1)脱脂辣木籽粉制备。将辣木籽粉用沸程60~90 ℃的石油醚按料液比1∶5(质量体积比)浸泡12 h后提取2次(第3次料液比为1∶1),过滤后收集残渣,45 ℃烘干制得脱脂辣木籽粉。2)乙醇提取物的制备。将脱脂辣木籽粉和乙酸乙酯按料液比1∶5(质量体积比)浸泡12 h,在40 ℃的条件下超声辅助提取1 h,将连续3次(第3次料液比为1∶1)提取,取滤渣45 ℃干燥至去净乙酸乙酯,将去净乙酸乙酯的残渣在70%乙醇中按料液比1∶5(质量体积比)浸泡12 h,在40~50 ℃的条件下超声辅助提取1 h,将连续3次(第3次料液比为1∶1)提取的滤液合并后,通过旋转蒸发仪在40 ℃、真空度-95 kPa条件下浓缩滤液,去除乙醇并冻干制备乙醇提取物。3)水提取物的制备。取烘干的乙醇滤过残渣,按照与乙醇相同的三步提取工艺换用超纯水浸泡提取,将3次的过滤物合并后旋转蒸发仪在60 ℃、真空度-95 kPa条件下浓缩滤液,冷冻干燥以获得水提取物。

1.2 乙醇和水提取物的成分分析

提取物的粗蛋白质含量采用凯氏定氮法(GB/T 6432—2018)[16]测定,粗脂肪含量采用乙醚浸提法(GB /T 6433—2006)[17]测定,可溶性糖含量采用蒽酮比色法[18]测定。取100 mg提取物样本,置于EP管中,加入500 μL的80%(体积分数)甲醇水溶液;涡旋振荡,冰浴静置5 min,15 000×g、4 ℃离心20 min;取100 μL的上清加质谱级水稀释至甲醇含量为53%;15 000×g、4 ℃离心20 min,收集上清,用0.22 μm的滤膜过滤,使用液相色谱-质谱(LC-MS,色谱仪型号:Vanquish UHPLC,Thermo Fisher;质谱仪型号:Q ExactiveTM HF-X,Thermo Fisher)法检测代谢物。色谱条件:Hyperil Gold column(C18)色谱柱,柱温40 ℃,流速0.2 mL/min;正模式,流动相A为0.1%甲酸,流动相B为甲醇;负模式,流动相A为5 mmol/L醋酸铵,pH 9.0,流动相B为甲醇。梯度/洗脱程序:0.0~1.5 min,98%流动相A,2%流动相B;1.6~3.0 min,15%流动相A,85%流动相B;3.1~10.0 min,流动相A为0,100%流动相B;10.1~12.0 min,98%流动相A,2%流动相B。质谱条件:扫描范围质荷比(m/z)为100~1 500;电喷雾离子(ESI)源设置喷雾电压3.5 kV,鞘气流速35 psi,辅助气流速10 L/min,离子传导管温度320 ℃,离子导入射频电平60,辅助气加热器温度350 ℃,极性正、负;质谱二级扫描为数据依赖性扫描。

1.3 体外培养方法及指标测定

1.3.1 体外瘤胃发酵

以泌乳奶牛饲粮(精粗比4∶6)为厌氧发酵底物,具体成分如下(以干物质为基础):玉米17.48%、大麦5.17%、棉籽粕4.06%、酒糟5.31%、豆粕5.26%、石粉0.32%、食盐0.31%、碳酸氢钙0.56%、小苏打0.36%、预混料1.20%、燕麦草6.16%、苜蓿干草25.30%和玉米青贮28.51%。人工缓冲液配制方法如下:微量元素溶液(A液,1 L),包含13.2 g CaCl2·2H2O、10.0 g MnCl2·4H2O、1.0 g CoCl2·6H2O和8.0 g FeCl3·6H2O;缓冲溶液(B液,1 L),包含4.0 g NH4HCO3和35.0 g NaHCO3;常量元素溶液(C液,1 L),包含5.7 g Na2HPO4、6.2 g KH2PO4和0.6 g MgSO4·7H2O;0.1%(质量体积分数)刃天青溶液;还原剂(100 mL),包含4 mL 1 mol/L NaOH溶液和0.625 g Na2S·9H2O。再以蒸馏水400 mL+A液0.1 mL+B液200 mL+C液200 mL+还原剂40 mL+0.1%刃天青溶液1 mL的比例配制得到人工缓冲液。现用现配。
在晨饲前通过瘤胃瘘管采集3头奶牛的瘤胃内容物,经无菌4层纱布过滤并混合,此瘤胃液装入保温瓶立即带回实验室。在持续通入二氧化碳(CO2)的情况下,将瘤胃液和人工缓冲液以1∶2(体积比)混合后,初始pH为6.86,并接种于含有0.22 g发酵底物(同上文奶牛饲粮组成)的培养瓶中,然后加入相应的提取物1 mL[将乙醇提取物或水提取物复溶于无菌超纯水溶液,乙醇和水提取物相对于发酵底物(0.2 g DM)的添加剂量分别为0(对照)、1.875、3.750、7.500 mg/kg],密封厌氧在39 ℃下80 r/min的气浴摇床中发酵72 h;对照组添加1 mL无菌超纯水来补足体积,每个处理5个重复。分别在发酵2、4、6、8、10、12、24、36、48、60和72 h测定发酵瓶气压,计算产气量,绘制产气曲线。产气量的计算公式如下:
Vx=Vj×Ppsi×0.068 004 084。
式中:Vx为39 ℃时产气体积(mL);Vj为培养瓶液面至顶部空间体积(128 mL);Ppsi为测定的气压(psi)。

1.3.2 高通量测序

在72 h发酵结束测定pH之前,选取对照组以及乙醇和水提取物剂量为1.875 mg/kg组,吸取5 mL发酵液于冻存管中,保存在-80 ℃,用于16S rDNA测序分析。将瘤胃液样品送至上海凌恩生物科技有限公司,使用HiPure Sotool DNA试剂盒提取样品微生物DNA。采用引物341F(5'-CCTACGGGNGGCWGCAG-3')和806R(5'-GGACTACHVGGGTATCTAAT-3')对16S rDNA V3~V4区进行PCR扩增。PCR扩增体系为20 μL,其中含4 μL 5×FastPfu Buffer、2 μL dNTPs(2.5 mmol/L)、上游和下游引物各0.8 μL (5 μmol/L)、0.4 μL FastPfu聚合酶和10 ng模板DNA,用ddH2O补足体积。PCR扩增程序:95 ℃,5 min;95 ℃,30 s,58 ℃,30 s,72 ℃,45 s,30个循环;72 ℃,10 min。使用AxyPrepDNA凝胶回收试剂盒(Axygen)切胶回收PCR产物,Tris-HCl洗脱,2%琼脂糖凝胶电泳检测。最后,将扩增产物通过NovaSeq 6000的PE250模式pooling上机建库测序分析。

1.3.3 发酵参数测定

发酵结束时,将发酵瓶转移到冰水混合物中终止发酵。将混合发酵液转移至50 mL离心管,使用pH计(雷磁PHS-25)立即测定发酵液pH后,8 000×g离心20 min,吸取2 mL上清液于-20 ℃保存,备测短链脂肪酸和氨态氮含量。再用无菌蒸馏水少量多次洗涤瓶内残渣入对应的50 mL离心管,8 000×g离心20 min后弃去上清液,残渣备测干物质降解率。测定方法为将终止发酵后收集的残渣,65 ℃烘48 h后称重。干物质降解率计算公式如下:
干物质降解率=100×(发酵前质量-发酵后剩余质量)/发酵前质量。
在上清液中加入25%的偏磷酸(上清液∶偏磷酸体积比为5∶1,偏磷酸溶液含60 mmol/L巴豆酸),-20 ℃冷冻过夜,之后再次离心(8 000×g,20 min),经0.22 μm水相滤膜过滤后,利用气相色谱仪测定乙酸、丙酸、丁酸、异丁酸、戊酸、异戊酸和己酸含量。气相色谱法检测参数如下:色谱柱为毛细管柱(30 m×0.32 mm×0.25 μm),柱温80 ℃,汽化温度200 ℃,氢离子火焰检测器,检测温度200 ℃,压力为60 kPa,氢气压力为50 kPa,氧气压力50 kPa,以氮气为载气,进样量1.0 μL。计算总短链脂肪酸含量,并计算单一脂肪酸占总短链脂肪酸的比例。参考Broderick等[19]的苯酚-次氯酸钠比色法测定发酵液氨态氮含量。采用比色法(530 nm)测定发酵液乳酸含量,试剂盒购自南京建成生物工程研究所。

1.4 数据统计分析

试验数据采用SPSS 23.0软件的单因素方差程序分析不同剂量的乙醇提取物组与对照组的产气量和发酵参数指标的线性效应和处理差异,或分析不同剂量的水提取物组与对照组的产气量和发酵参数指标的线性效应和处理差异;当差异显著时采用Duncan氏法对各组间平均值进行多重比较,以P<0.05作为差异显著判断标准。
绘制韦恩图分析瘤胃液细菌共有和特有的操作分类单元(OTU);采用主成分分析(PCA)描述3组细菌群落结构的相似度并绘制点图;采用独立样本t检验分别分析乙醇提取物组与对照组或水提取物组与对照组的瘤胃细菌在门水平和属水平上相对丰度的差异,以P<0.05作为差异显著判断标准;采用Spearman相关性分析对瘤胃发酵参数与主要菌属相对丰度进行相关性分析。

2 结果与分析

2.1 脱脂辣木籽提取物产率及差异代谢物分析

在本研究中,脱脂辣木籽乙醇提取物产率为12.66%,粗蛋白质含量为21.48%,粗脂肪含量为1.54%,可溶性糖含量为53.08 mg/g;水提取物产率为38.90%,粗蛋白质含量为45.94%,粗脂肪含量为1.93%,可溶性糖含量为40.83 mg/g。采用非靶向代谢组学技术,在正离子和负离子模式下共检测出19种苯丙类和聚酮类,25种有机杂环化合物,21种有机含氧化合物,6种有机氮化合物,43种有机酸及衍生物,14种核苷、核苷酸及类似物,34种脂质和类脂分子,15种苯类化合物,以及114种其他化合物。筛选出相对倍数大于4的差异代谢物,如表1所示。与水提取物相比,乙醇提取物含有更多的类黄酮化合物,如花葵苷、山奈酚、橘皮素、山柰苷及槲皮素;还包括更多的异黄酮类化合物,如黄豆黄素和大豆黄素。此外,乙醇提取物中还含有更多甲氧沙林、鸟嘌呤、生物蝶呤、D-葡萄糖胺、D-(-)-奎尼酸、D-木糖酸、肌酐、脯氨酰、氧化谷胱甘肽、肌肽、鹅肌肽、牛磺酸、2'-脱氧腺苷、2'-脱氧肌苷、肌苷、胞嘧啶核苷及癸二酸二丁酯等成分。相反,与乙醇提取物相比,水提取物含有更多的白皮杉醇、6-二甲氨基嘌呤、2,6-二羟基嘌呤、色氨醇、泛醇、L-(-)-阿拉伯糖醇、柠檬酸、DL-泛醇、丁香酸及高香草酸。
表1 脱脂辣木籽乙醇提取物和水提取物差异代谢物(相对倍数>4)

Table 1 Differential metabolites of ethanol extract and water extract of defatted Moringa oleifera seed (relative fold>4)

类(人类代谢组数据库)
Class (HMDB)
子类(人类代谢组
数据库)
Subclass (HMDB)
名称
Names
保留时间
Retention time/
min
分子量
Molecular weight
水提取物/
乙醇提取物倍数
Fold of water
extract to
ethanol extract
乙醇提取物/
水提取物倍数
Fold of ethanol
extract to
water extract
苯丙类和聚酮类
Phenylpropanoids and polyketides
香豆素及衍生物
Coumarins and derivative
甲氧沙林Methoxsalen 6.039 216.041 92 58.86
类黄酮
Flavonoids
花葵苷Pelargonidin 6.035 270.053 42 8.99
山柰酚Kaempferol 5.586 286.048 37 4.33
橘皮素Tangeritin 6.857 372.120 38 12.90
山奈苷Kaempferitrin 5.574 578.162 37 21.30
槲皮素Quercetin 5.044 302.045 50 5.34

异黄酮
Isoflavonoids
黄豆黄素Glycitein 5.893 284.069 02 6.69
大豆黄素Daidzein 5.876 254.058 37 7.37
直线型1,3-二芳基丙烷
Linear 1,3-diarylpropanoids
根皮素Phloretin 5.381 274.078 42 14.81
对二苯代乙烯Stilbenes 白皮杉醇Piceatannol 5.497 244.076 11 4.77
有机杂环化合物
Organoheterocyclic compounds
嘌呤及其衍生物
Purines and purine
derivatives
鸟嘌呤Guanine 4.220 151.049 84 6.56
6-二甲氨基嘌呤
6-dimethylamino purine
5.473 163.086 32 5.69
2,6-二羟基嘌呤
2,6-dihydroxy purine
4.775 152.033 45 6.58
吲哚及衍生物
Indoles and derivatives
色氨醇Tryptophanol 5.397 190.111 18 10.40
吡啶及衍生物
Pteridines and derivatives
生物蝶呤
Biopterin
1.466 237.085 47 6.76
有机含氧化合物
Organic oxygen-containing
compounds
有机氧化合物
Organooxygen compounds
泛醇Panthenol 5.155 205.132 10 6.18
D-葡萄糖胺D-glucosamine 2.370 179.079 79 16.09
D-(-)-奎宁酸D-(-)-quinin acid 1.438 192.062 32 6.60
L-(-)-阿拉伯糖醇L-(-)-arabitol 1.359 152.067 12 7.56
D-木糖酸D-xylonic acid 2.204 166.047 67 6.15

有机酸及衍生物
Organic acids and derivatives
羧酸及衍生物
Carboxylic acids and
derivatives
肌酐Creatine 1.427 131.069 90 10.14
脯氨酰Prolylleucine 2.085 228.147 66 15.31
氧化谷胱甘肽
Glutathione disulfide
2.224 612.153 23 8.79
柠檬酸Citric acid 2.124 192.025 83 4.74

拟肽
Peptidomimetics
肌肽Carnosine 1.279 226.107 55 17.51
鹅肌肽Anserine 1.286 240.122 95 8.61
有机磺酸及衍生物
Organic sulfonic acids and derivatives
牛磺酸Taurine 1.330 125.015 14 4.93
核苷、核苷酸及类似物
Nucleosides, nucleotides and
analogues


嘌呤核苷
Purine nucleosides
2'-脱氧腺苷2'-deoxyadenosine 3.715 251.102 37
267.096 08
6.48
10.22
2'-脱氧肌苷2'-deoxyinosine 4.233 252.085 08 5.13
肌苷Inosine 3.617 268.080 14 5.33
嘧啶核苷Pyrimidine nucleosides 胞嘧啶核苷Cytidine 1.342 197.080 73 7.19
脂质和类脂分子
Lipids and lipid-like molecules

脂肪酰基
Fatty acyls
癸二酸二丁酯Dibutyl sebacate 7.466 314.246 42 6.23
DL-泛醇DL-panthenol 1.713 205.131 94 10.38

苯类化合物
Benzenoids
苯和取代衍生物
Benzene and substituted derivatives
丁香酸Syringic acid 5.569 198.051 65 265.18
酚类Phenols 高香草酸Homovanillic acid 6.188 136.051 17 31.85

2.2 脱脂辣木籽提取物对体外瘤胃发酵的影响

2.2.1 脱脂辣木籽提取物对体外瘤胃发酵干物质降解率和产气量的影响
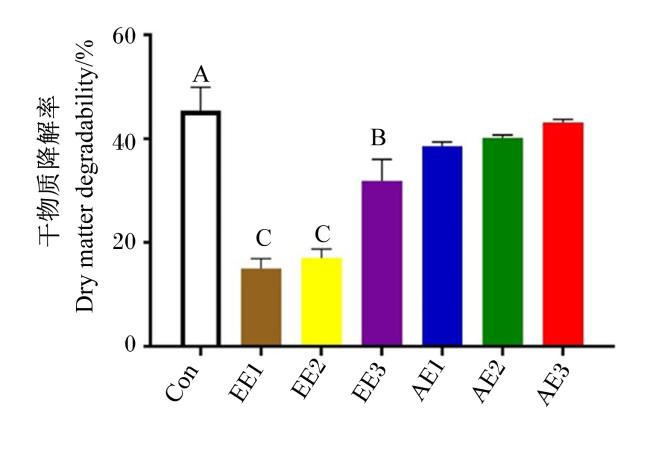
图1所示,3个乙醇提取物添加组干物质降解率均显著低于对照组(P<0.05),而3个水提取物添加组干物质降解率与对照组相比均无显著差异(P>0.05)。由表2可知,添加1.875和3.750 mg/kg乙醇提取物培养6 h后,各时间点的产气量均显著低于对照组(P<0.05)。不同的是,水提取物添加组产气量自发酵开始就显著高于对照组(P<0.05)。
图1 脱脂辣木籽提取物对体外瘤胃发酵干物质降解率的影响

柱形标注不同大写字母表示乙醇提取物添加组与对照组相比差异显著(P<0.05),标注不同小写字母表示添加水提取物添加组与对照组相比差异显著(P<0.05)。图2同。
Con:对照组,无添加的基础饲粮;EE1:基础饲粮中添加1.825 mg/kg乙醇提取物;EE2:基础饲粮中添加3.750 mg/kg乙醇提取物;EE3:基础饲粮中添加7.500 mg/kg乙醇提取物;AE1:基础饲粮中添加1.825 mg/kg水提取物;AE2:基础饲粮中添加3.750 mg/kg水提取物;AE3:基础饲粮中添加7.500 mg/kg水提取物。下图和下表同。

Fig.1 Effects of defatted Moringa oleifera seed extracts on dry matter degradability of rumen fermentation in vitro

Bars with different capital letters mean significant difference between ethanol extract supplemental group and control group (P<0.05), and with different small letters mean significant difference between water extract supplemental group and control group (P<0.05). The same as Fig.2.
Con: control group, basal diet without supplementation; EE1: basal diet supplemented with 1.825 mg/kg ethanol extract; EE2: basal diet supplemented with 3.750 mg/kg ethanol extract; EE3: basal diet supplemented with 7.500 mg/kg ethanol extract; AE1: basal diet supplemented with 1.825 mg/kg water extract; AE2: basal diet supplemented with 3.750 mg/kg water extract; AE3: basal diet supplemented with 7.500 mg/kg water extract. The same as figures and tables below.

表2 脱脂辣木籽提取物对体外瘤胃发酵产气量的影响

Table 2 Effects of defatted Moringa oleifera seed extracts on gas production of rumen fermentation in vitro mL

时间
Time/h
Con EE1 EE2 EE3 均值
标准误
SEM
PP-value AE1 AE2 AE3 均值
标准误
SEM
PP-value
处理
Treatment
线性
Linear
处理
Treatment
线性
Linear
2 4.52Bc 8.27A 7.43A 8.27A 1.07 0.04 0.02 10.31a 10.53a 8.24b 0.66 <0.01 <0.01
4 7.11c 8.11 7.39 9.45 1.07 0.12 0.08 13.66a 13.56a 11.98b 0.65 <0.01 <0.01
6 8.57ABc 7.62B 6.59B 11.26A 1.17 <0.01 0.12 20.30a 19.69ab 17.32b 1.07 <0.01 <0.01
8 11.38Ac 7.91B 6.86B 13.26A 1.23 <0.01 0.32 24.42a 22.37ab 21.83b 0.92 <0.01 <0.01
10 15.04Ac 9.07B 8.01B 16.20A 1.56 <0.01 0.67 28.83a 27.86ab 25.57b 1.11 <0.01 <0.01
12 15.90Ab 7.90B 6.44B 15.73A 1.86 <0.01 0.77 29.46a 28.45a 27.34a 0.96 <0.01 <0.01
24 20.87Ab 10.97B 9.59B 20.16A 2.62 <0.01 0.72 41.73a 41.00a 39.50a 1.34 <0.01 <0.01
36 24.66Ab 12.41B 11.58B 21.71A 2.53 0.01 0.31 46.47a 45.34a 44.53a 1.41 <0.01 <0.01
48 27.13Ab 15.13B 15.88B 24.30A 2.54 0.02 0.41 48.88a 47.69a 46.66a 1.4 <0.01 <0.01
60 28.47Ab 18.76B 17.91B 26.05A 2.3 <0.01 0.35 49.34a 47.39a 47.29a 1.41 <0.01 <0.01
72 30.11Ab 19.59B 17.61B 28.58A 2.08 <0.01 0.40 49.34a 48.67a 47.31a 1.51 <0.01 <0.01

同行数据肩标不同大写字母表示乙醇提取物添加与对照组相比差异显著(P<0.05),肩标不同小写字母表示水提取物添加组与对照组相比差异显著(P<0.05)。下表同。

In the same row, values with different capital letters mean significant difference between ethanol extract supplemental group and control group (P<0.05), and with different small letters mean significant difference between water extract supplemental group and control group (P<0.05). The same as below.

2.2.2 脱脂辣木籽提取物对体外瘤胃发酵参数的影响

表3可知,与对照组相比,添加脱脂辣木籽乙醇提取物显著提高了发酵液乳酸含量(P<0.05),对发酵液pH、氨态氮和总短链脂肪酸含量以及乙酸比例均无显著影响(P>0.05);添加1.875和3.750 mg/kg乙醇提取物显著提高了发酵液丙酸比例(P<0.05),显著降低了发酵液异丁酸、丁酸、异戊酸、戊酸和己酸比例(P<0.05)。与对照组相比,添加脱脂辣木籽水提取物显著降低了发酵液pH和乙酸比例(P<0.05),显著提高了发酵液乳酸和总短链脂肪酸含量以及丙酸比例(P<0.05);添加1.875和3.750 mg/kg水提取物显著降低了发酵液氨态氮含量和戊酸比例(P<0.05),显著提高了发酵液异戊酸比例(P<0.05)。
表3 脱脂辣木籽提取物对体外瘤胃发酵参数的影响

Table 3 Effects of defatted Moringa oleifera seed extracts on rumen fermentation parameters in vitro

项目
Items
Con EE1 EE2 EE3 均值
标准误
SEM
PP-value AE1 AE2 AE3 均值
标准误
SEM
PP-value
处理
Treatment
线性
Linear
处理
Treatment
线性
Linear
pH 6.62a 6.73 6.71 6.59 0.06 0.09 0.62 6.42b 6.47b 6.45b 0.02 <0.01 <0.01
氨态氮NH3-N/(mg/dL) 27.35a 30.31 30.44 26.39 3.35 0.56 0.67 13.99b 15.56b 20.18ab 3.18 0.02 0.03
乳酸Lactic acid/(mmol/L) 0.19Bb 0.28A 0.26A 0.25A 0.02 0.01 0.03 0.32a 0.34a 0.30a 0.04 <0.01 <0.01
总短链脂肪酸Total SCFA/(mmol/L) 73.90b 71.44 68.06 78.89 5.50 0.25 0.52 92.32a 100.18a 93.21a 5.93 <0.01 <0.01
乙酸Acetate/% 67.84a 69.16 69.57 68.35 0.97 0.32 0.53 66.35b 65.95b 66.54b 0.56 0.03 0.01
丙酸Propionate/% 16.53Bb 21.94A 21.76A 18.00B 0.99 <0.01 0.20 17.40a 17.65a 17.40a 0.28 0.01 <0.01
异丁酸Isobutyrate/% 1.29A 0.78C 0.75C 1.08B 0.06 <0.01 <0.01 1.31 1.31 1.29 0.04 0.90 0.96
丁酸Butyrate/% 10.23A 6.11B 5.98B 9.01A 0.59 <0.01 0.07 10.47 10.60 10.38 0.21 0.40 0.24
异戊酸Isovalerate/% 2.40Ab 1.17C 1.07C 1.89B 0.17 <0.01 0.01 2.83a 2.82a 2.65b 0.11 0.01 <0.01
戊酸Valerate/% 1.43Ab 0.76B 0.77B 1.27A 0.09 <0.01 0.15 1.39b 1.43b 1.52a 0.04 0.04 0.20
己酸Caproate/% 0.27B 0.09C 0.10C 0.39A 0.04 <0.01 0.01 0.24 0.25 0.32 0.02 0.39 0.13

2.3 脱脂辣木籽提取物对体外瘤胃发酵细菌群落结构的影响

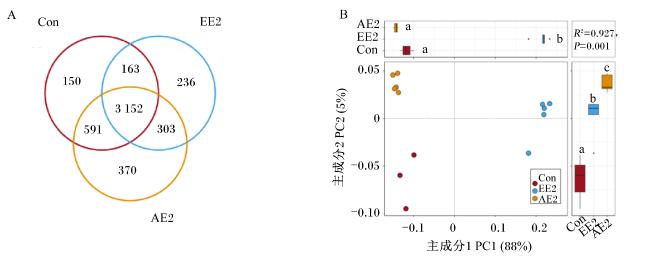
表4可知,与对照组相比,添加乙醇提取物显著降低了体外瘤胃发酵细菌群落可观测物种(observed_species)数以及Chao1和Shannon指数(P<0.05),但添加水提取物对上述指标无显著影响(P>0.05)。如图2-A所示,3组共有3 152个共享OTU以及分别150、236、370个独有OTU。如图2-B所示,PCA结果表明,3组在各自的区域中呈现离散分布,表明添加脱脂辣木籽提取物改变了瘤胃细菌群落,特别是乙醇提取物添加组在主成分1(PC1)和主成分2(PC2)维度上与对照组差异很大。由表5可知,与对照组相比,乙醇提取物添加组拟杆菌门(Bacteroidota)、疣微菌门(Verrucomicrobiota)、螺旋体门(Spirochaetota)、浮霉菌门(Planctomycetota)、脱硫杆菌门(Desulfobacterota)和髌骨菌门(Patescibacteria)相对丰度显著降低(P<0.05),而变形菌门(Proteobacteria)相对丰度显著提高(P<0.05);而水提取物添加组疣微菌门、螺旋体门、浮霉菌门和髌骨菌门相对丰度显著提高(P<0.05),变形菌门相对丰度显著降低(P<0.05)。
表4 脱脂辣木籽提取物对体外瘤胃发酵细菌α多样性的影响

Table 4 Effects of defatted Moringa oleifera seed extracts on α diversity of bacteria in rumen fermentation in vitro

项目
Items
Con EE2 AE2 均值标准误SEM PP-value
EE2 AE2 EE2 AE2
可观测物种Observed_species 3 066.3A 2 295.4B 3 177.6 46.17 46.77 <0.01 0.18
Chao1指数Chao1 index 3 552.9A 2 959.0B 3 676.6 59.45 35.43 <0.01 0.10
Shannon指数Shannon index 6.47A 4.69B 6.55 0.04 0.03 <0.01 0.19
图2 脱脂辣木籽提取物对体外瘤胃发酵细菌β多样性的影响

A:维恩图 Venn diagram;B:主成分分析 principal component analysis。

Fig.2 Effects of defatted Moringa oleifera seed extracts on bacterial β diversity in rumen fermentation in vitro

表5 脱脂辣木籽提取物对体外瘤胃发酵细菌在门水平上相对丰度的影响(前10)

Table 5 Effects of defatted Moringa oleifera seed extracts on relative abundance of bacteria at phylum level in rumen fermentation in vitro (top 10) %

项目
Items
Con EE2 AE2 均值标准误SEM PP-value
EE2 AE2 EE2 AE2
拟杆菌门Bacteroidota 50.97A 34.71B 46.16 3.18 0.61 <0.01 0.10
厚壁菌门Firmicutes 32.91 29.25 36.85 0.99 1.00 0.07 0.07
疣微菌门Verrucomicrobiota 7.28Ab 0.84B 11.13a 0.21 0.26 <0.01 <0.01
变形菌门Proteobacteria 5.28Ba 32.16A 1.46b 1.36 0.28 <0.01 0.03
螺旋体门Spirochaetota 0.62Ab 0.17B 0.97a 0.38 0.04 <0.01 0.02
浮霉菌门Planctomycetota 0.57Ab 0.19B 1.29a 0.04 0.13 0.04 0.02
脱硫杆菌门Desulfobacterota 0.66A 0.18B 0.56 0.04 0.04 <0.01 0.67
放线菌门Actinobacteriota 0.52 0.68 0.41 0.05 0.05 0.15 0.33
髌骨菌门Patescibacteria 0.25Ab 0.20B 0.42a 0.02 0.03 0.02 0.01
梭杆菌门Fusobacteriota 0.07 1.46 0.04 0.03 0.01 0.11 0.27
表6可见,与对照组相比,乙醇提取物添加组拟杆菌门中的理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、普雷沃氏菌属(Prevotella)、普雷沃氏菌科UCG-003(Prevotellaceae_UCG-003)相对丰度显著降低(P<0.05),厚壁菌门中的克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)、毛螺菌科(Lachnospiraceae)各菌属、解琥珀酸弧菌属(Succiniclasticum)和Saccharofermentans相对丰度显著降低(P<0.05);在低相对丰度菌门中,与对照组相比,乙醇提取物添加组疣微菌门中的horsej-a03、螺旋体门中的密螺旋体属(Treponema)以及脱硫杆菌门中的脱硫弧菌属(Desulfovibrio)相对丰度显著降低(P<0.05)。相反地,与对照组相比,乙醇提取物添加组拟杆菌门中的拟杆菌属(Bacteroides)、马其顿菌属(Macellibacteroides)和Petrimonas相对丰度显著提高(P<0.05),厚壁菌门中的韦荣球菌属(Veillonella)、链球菌属(Sterptococcus)和肠球菌属(Enterococcus)相对丰度显著提高(P<0.05),变形菌门中的埃希氏-志贺氏菌属(Escherichia-Shigella)、不动杆菌属(Acinetobacter)和丛毛单胞菌属(Comamonas)相对丰度显著提高(P<0.05)。
表6 脱脂辣木籽提取物对体外瘤胃发酵厌氧细菌相对丰度的影响(相对丰度>0.1%)

Table 6 Effects of defatted Moringa oleifera seed extracts on relative abundance of anaerobic bacteria in rumen fermentation in vitro (relative abundance>0.1%) %


Phylum

Family

Genus
Con EE2 AE2 均值标准误SEM PP-value
EE2 AE2 EE2 AE2
拟杆菌门Bacteroidota 理研菌科Rikenellaceae 理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
21.39Aa 2.32B 18.13b 0.17 0.28 <0.01 0.03
拟杆菌科Bacteroidaceae 拟杆菌属Bacteroides 1.22B 18.18A 0.83 0.27 0.16 <0.01 0.23
普雷沃氏菌科Prevotellaceae 普雷沃氏菌属Prevotella 6.45A 1.23B 4.82 0.38 0.48 <0.01 0.29
普雷沃氏菌科UCG-001
Prevotellaceae_UCG-001
0.81 1.82 0.55 0.22 0.04 0.68 0.18
普雷沃氏菌科UCG-003
Prevotellaceae_UCG-003
1.33A 0.20B 0.88 0.03 0.08 0.03 0.39
伯克氏菌科Tannerellaceae 马其顿菌属
Macellibacteroides
0.23B 4.67A 0.17 0.06 0.04 <0.01 0.46
营发酵单胞菌科
Dysgonomonadaceae
Petrimonas 0.06B 1.06A 0.03 0.02 0.01 <0.01 0.27
厚壁菌门Firmicutes 克里斯滕森菌科
Christensenellaceae
克里斯滕森菌科R-7群
Christensenellaceae_R-7_group
2.27Ab 0.98B 4.90a 0.08 0.24 <0.01 <0.01
韦荣球菌科Veillonellaceae 韦荣球菌属Veillonella 0.27B 5.41A 0.17 0.09 0.05 0.03 0.29
链球菌科Streptococcaceae 链球菌属Streptococcus 0.36B 4.91A 0.19 0.01 0.05 <0.01 0.09
毛螺菌科Lachnospiraceae 毛螺菌科NK3A20群
Lachnospiraceae_NK3A20_group
0.41Ab 0.08B 0.69a 0.01 0.02 <0.01 <0.01
毛螺菌科XPB1014群
Lachnospiraceae_XPB1014_group
0.89Ab 0.27B 1.54a 0.02 0.22 <0.01 0.01
毛螺菌科AC2044群
Lachnospiraceae_AC2044_group
0.72A 0.10B 0.55 0.02 0.04 <0.01 0.24
丁酸弧菌属Butyrivibrio 1.90Aa 0.20B 1.16b 0.03 0.08 <0.01 0.02
假丁酸弧菌属Pseudobutyrivibrio 1.16A 0.17B 0.47 0.10 0.06 <0.01 0.05
颤螺旋菌科Oscillospiraceae 颤螺旋菌科UCG-002
Oscillospiraceae_UCG-002
0.99b 1.33 2.56a 0.12 0.06 0.19 <0.01
颤螺旋菌科UCG-005
Oscillospiraceae_UCG-005
0.54b 0.31 0.98a 0.04 0.04 0.07 <0.01
氨基酸球菌科
Acidaminococcaceae
解琥珀酸弧菌属Succiniclasticum 1.51A 0.60B 1.37 0.13 0.18 0.03 0.69
亨盖特梭菌科
Hungateiclostridiaceae
Saccharofermentans 0.68Ab 0.09B 0.96a 0.01 0.06 <0.01 0.03
肠球菌科
Enterococcaceae
肠球菌属Enterococcus 0.08B 1.34A 0.05 0.01 0.01 <0.01 0.10
变形菌门
Proteobacteria
肠杆菌科
Enterobacteriaceae
埃希氏-志贺氏菌属Escherichia-Shigella 1.24B 15.27A 0.57 0.33 0.16 <0.01 0.09
莫拉氏菌科
Moraxellaceae
不动杆菌属Acinetobacter 0.76B 10.32A 0.33 0.21 0.08 <0.01 0.07
丛毛单胞菌科
Comamonadaceae
丛毛单胞菌属Comamonas 0.37Ba 3.70A 0.12b 0.06 0.03 <0.01 <0.01
梭杆菌门
Fusobacteriota
梭杆菌科Fusobacteriaceae 梭杆菌属Fusobacterium 0.07 1.46 0.04 0.42 0.01 0.11 0.23
疣微菌门
Verrucomicrobiota
Oligosphaeraceae horsej-a03 1.04Aa 0.05B 0.62b 0.01 0.04 0.02 0.02
螺旋体门Spirochaetota 螺旋体科
Spirochaetaceae
密螺旋体属Treponema 0.42A 0.12B 0.66 0.03 0.03 <0.01 0.10
脱硫杆菌门
Desulfobacterota
脱硫杆菌科
Desulfovibrionaceae
脱硫弧菌属Desulfovibrio 0.61A 0.12B 0.52 0.03 0.04 0.02 0.47
与对照组相比,水提取物添加组理研菌科RC9肠道群、丁酸弧菌属(Butyrivibrio)、丛毛单胞菌属和horsej-a03相对丰度显著降低(P<0.05),克里斯滕森菌科R-7群、毛螺菌科NK3A20群(Lachnospiraceae_NK3A20_group)、毛螺菌科XPB1014群(Lachnospiraceae_XPB1014_group)、颤螺旋菌科(Oscillospiraceae)各菌属和Saccharofermentans相对丰度显著提高(P<0.05)。

2.4 瘤胃发酵参数与主要菌属相对丰度之间Spearman相关性分析

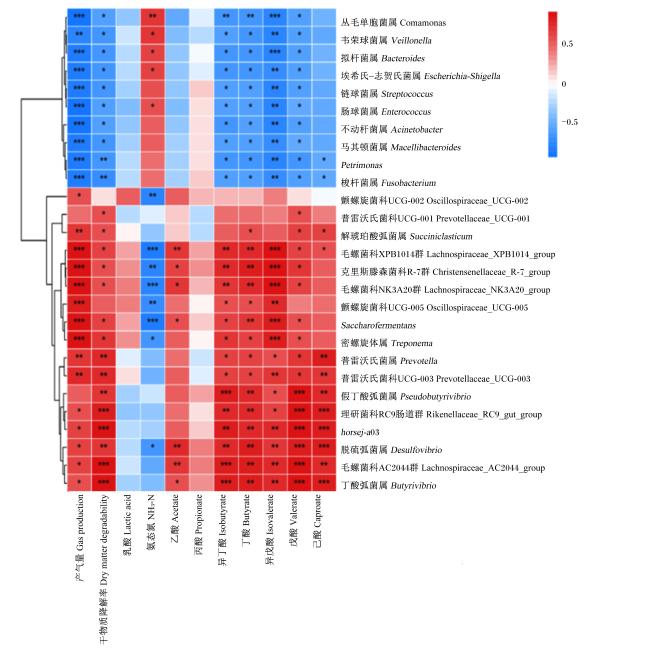
为了剖析菌属与瘤胃发酵的相关性,本试验分析了在属水平上相对丰度大于0.1%且受提取物添加影响到的细菌相对丰度与瘤胃发酵指标的相关性,结果如图4所示。丁酸弧菌属和克里斯滕森菌科R-7群相对丰度与乙酸比例呈显著正相关(P<0.05),未发现相对丰度与乙酸比例呈显著负相关的菌属;丁酸弧菌属、理研菌科RC9肠道群、克里斯滕森菌科R-7群和普雷沃氏菌属相对丰度与丁酸比例、干物质降解率和产气量呈显著正相关(P<0.05),马其顿菌属、不动杆菌属、链球菌属、埃希氏-志贺氏菌属和拟杆菌属相对丰度与上述指标呈显著负相关(P<0.05)。结果未发现相对丰度与乳酸含量和丙酸比例存在显著相关的菌属。
图4 瘤胃发酵参数与主要菌属相对丰度之间Spearman相关性分析

*表示显著相关(P<0.05),**和***表示极显著相关(P<0.01和P<0.001)。

Fig.4 Spearman correlation analysis between rumen fermentation parameters and relative abundance of major bacterial genus

* indicated significant correlation (P<0.05), and ** and *** indicated extremely significant correlation (P<0.01 and P<0.001).

3 讨论

目前,辣木叶、茎和籽在单胃动物和反刍动物饲粮中均有应用。使用不同提取溶剂所得的提取物活性物质不同,甲醇和乙醇提取物中黄酮和类黄酮类物质含量高,而水提取物中多糖和氨基酸含量高。根据化学结构的不同,类黄酮类主要包括黄酮醇类、异黄酮类、黄烷酮类、花色苷类和黄烷三醇类;非黄酮类主要包括了酚酸类和芪类。Rocchetti等[20]用乙酸乙酯提取辣木叶获得的酚含量最低,用甲醇提取得到的酚酸、酪氨酸和黄酮醇最高,且主要成分为山奈酚、槲皮素、绿原酸、没食子酸、木酚素、香兰素和芦丁。辣木籽的活性物质与叶片相似,种子的活性物质含有黄酮类、皂苷、碳水化合物、氨基酸和多酚类化合物,本试验提取物均检测到。
辣木籽的活性物质与叶片相似,种子的活性物质含有黄酮类、皂苷、碳水化合物、氨基酸和多酚类化合物[21],本试验提取物均检测到。辣木籽水和醇提取物对动物有抗炎、抗氧化以及加速伤口愈合的作用[22]。黄酮类物质主要由醇类溶剂提取。Manner等[23]研究天然和合成黄酮对金黄色葡萄球菌生物膜的作用发现,黄酮类化合物的抑制效果不同,其中类化合物异黄酮、黄烷酮和黄烷较为高效。Onsare等[24]研究发现,辣木籽中黄酮类物质可阻碍金黄色葡萄球菌、绿脓杆菌和白色念珠菌等微生物的生长和繁殖。Jamil等[25]研究发现,辣木籽粗提物中所包含的蛋白质或肽能够通过真菌膜的透性作用发挥抗真菌活性。黄酮类的抑菌作用很强,可能不适合应用于促进瘤胃微生物的发酵,这在本试验中乙醇提取物中黄酮类物质含量高,且抑制了产气量和各短链脂肪酸产量中得到了证实。
丁香酸是植物中的酚酸,本试验中脱脂辣木籽水提取物丁香酸含量高于乙醇提取物(265倍)。肠道微生物可以发酵没食子酸,产生紫丁香酸[26]。丁香酸可以显著刺激白色瘤胃球菌(Ruminococcus albus)、黄色瘤胃球菌(Ruminococcus flavefaciens)、溶纤维丁酸弧菌(Butyrivibrio fibrisolvens)和多对毛螺菌(Lachnospira multiparus)这4种瘤胃纤维降解菌的生长,这说明丁香酸可能能够作为养分或调控物质促进细菌的生长[27]。香草酸也是木质植物和果实中一种常见的天然有机化合物[28]。种子中香草酸的含量各不相同,黄花菜的含量高于青豆、牛豆和肾豆等[29]。香兰素和肉桂酸会抑制纤维和木糖降解,原因是研究人员发现液相中纤维分解菌数量增加了,并推测是因为减少了纤维分解菌对纤维的附着[30]。香兰素对上述4种瘤胃纤维降解菌的生长均无影响[27]。Wang等[31]研究表明,青贮玉米细胞壁中的酚酸含量对发酵的影响程度高于其纤维含量的高低。因此,植物提取物有的抑制微生物的生长,有的为微生物提供营养底物或促进养分的利用,不同的提取工艺也造成了使用效果的不同。
Hansen等[32]利用体外发酵技术评价辣木籽饼替代豆粕的效果,发现随着替代比例的提高,可发酵碳水化合物含量降低,体外总产气量显著下降。Lins等[33]将辣木籽与饲粮进行一定比例混合,分析辣木籽对肉牛瘤胃体外发酵参数的影响,发现随辣木籽比例的升高,总挥发性脂肪酸含量下降,原因是干物质和中性洗涤纤维降解率降低。尽管辣木籽中粗脂肪(约40%)和粗蛋白质(约33%)含量较高,碳水化合物含量约为18%,粗纤维含量(约7%)很少,可以为动物补充蛋白质和脂肪[34],但是大量的脂类可能是抑制发酵的关键因素。针对瘤胃微生物发酵的调控剂比较多,且主要是通过靶向调节不同发酵功能发挥调控作用。然而,辣木籽对饲料的瘤胃发酵作用未见详细报道。本试验选用的是脱脂辣木籽粉,对其进行不同极性的提取,更能够发现影响发酵的非油脂类的化学物质。
本试验中,辣木籽水提取物显著提高了产气量,促进瘤胃发酵的效率高。反刍动物饲粮干物质的70%~85%在瘤胃中被微生物降解,其中碳水化合物被发酵产生气体和挥发性脂肪酸。产气量是评价瘤胃微生物发酵的重要指标,产气量升高代表微生物生长速度快、发酵水平高,对营养素尤其是能量和氮利用率高。本试验中,不同水提取物添加剂量之间未发现在产气量上有显著差异,并且最低剂量就能显著提高体外产气量,推测提高产气量的原因不在于额外所提供的养分,而在于水提取物中的活性物质刺激了瘤胃厌氧细菌的发酵产气。本试验中,乙醇提取物添加组的理研菌科RC9肠道群、克里斯滕森菌科R-7群、毛螺菌科NK3A20群、普雷沃氏菌属和丁酸弧菌属相对丰度显著降低,结合干物质降解率和产气量的数据,这些细菌在促进碳水化合物降解方面具有重要作用。研究发现,在饲料转化效率高的低剩余采食量(low residual feed intake,LRFI)安格斯牛瘤胃中发现了更高丰度的理研菌科RC9肠道群、克里斯滕森菌科R-7群和毛螺菌科NK3A20群[35],这与本试验的结果一致,也验证了这些细菌在促进瘤胃发酵及提高饲料转化效率中有重要作用。此外,这些菌属还与某些长链脂肪酸的代谢有关[36]。Dong等[37]研究表明,毛螺菌科NK3A20群相对丰度与产奶量呈显著正相关,而理研菌科RC9肠道群和克里斯滕森菌科R-7群相对丰度与产奶量呈显著负相关。尽管本试验中没有发现高相对丰度的厌氧细菌在水提取物添加组中被显著提高,大部分细菌的相对丰度与对照组相当,这有可能是由于水提取物中的活性物质能够更好地维持利于瘤胃发酵的菌群区系,帮助其发挥更强的发酵功能。
同时,比对照组相比,理研菌科RC9肠道群相对丰度在乙醇提取物添加组中急剧下降(2.32% vs. 21.39%),说明这个菌属对乙醇提取物的活性成分非常敏感。理研菌科RC9肠道群可以发酵产生琥珀酸、乙酸、丙酸和丁酸,当粗饲料水平高时,这个菌属的相对丰度提高[38-39]。而本研究中,拟杆菌属、埃希氏-志贺氏菌属、不动杆菌属、马其顿菌属、链球菌属、韦荣球菌属和丛毛单胞菌属等的相对丰度与产气量呈显著负相关,表明这些细菌对碳水化合物降解有抑制作用。与对照组相比,乙醇提取物组拟杆菌属、埃希氏-志贺氏菌属和不动杆菌属相对丰度显著提高。拟杆菌属大多数是致病菌,在厌氧感染中常见。在肠道微生物的研究中表明,脆弱拟杆菌(Bacteroides fragilis)、单形拟杆菌(Bacteroides uniformis)、粪便拟杆菌(Bacteroides caccae)和卵形拟杆菌(Bacteroides ovatus)这些厌氧菌在肠道的定植会对小鼠的抑郁样行为造成负面影响[40]。脆弱拟杆菌还被认为是临床上的病原菌,且主要在腹泻动物的肠道样本中检测到[41]。埃希氏-志贺氏菌属是在乳腺炎奶牛肠道中发现的一种条件致病菌,该细菌能够成功感染健康的小鼠受者[42]。不动杆菌属也是病原菌,巴氏不动杆菌(Acinetobacter baumannii)在人、猪和牛的病料中分离得到[43]。饲喂三甲胺-N-氧化物导致的高脂大鼠血液甘油三酯代谢异常,并伴随肠道马其顿菌属相对丰度的提高[44]。因此,脱脂辣木籽乙醇提取物添加到瘤胃中发酵,会提高有害菌的相对丰度,对发酵甚至对动物的健康非常不利。
促进瘤胃发酵产生更多挥发性脂肪酸是提高饲粮发酵程度的有效方式。饲粮发酵过程中产生的乙酸不仅可以为动物提供能量,同时也是维持正常生理活动和生产水平以及合成乳脂和体脂的主要前体物。本试验添加1.875 g/kg乙醇提取物显著降低了丁酸弧菌属和克里斯滕森菌科R-7群相对丰度,且这些菌属的相对丰度与乙酸比例呈显著正相关,这说明这2个菌属在产乙酸上有重要作用,且对乙醇提取物的活性成分敏感;与之相反,添加1.875 g/kg水提取物却显著提高了克里斯滕森菌科R-7群相对丰度。丁酸弧菌属属于毛螺菌科的革兰氏阴性菌[45],也是瘤胃中一种常见的严格厌氧细菌。此外,溶纤维丁酸弧菌也是一种纤维降解细菌。Clostridium proteoclasticum也隶属于丁酸弧菌属,可以降解多种糖类[46]。柑橘类黄酮提取物显著降低了短普雷沃氏菌(Prevotella brevis)相对丰度[47]。丙酸是合成葡萄糖和乳糖的主要前体物,本试验没有发现相对丰度与丙酸比例呈显著相关性的菌属,说明瘤胃产丙酸菌对水和乙醇提取物不敏感。丁酸可作为细胞能源促进细胞的正常分化和组织的发育,本试验添加1.875 g/kg乙醇提取物显著降低了丁酸比例,表明可能抑制了产丁酸菌生长。在本试验的前30个菌属中,添加乙醇和水提取物显著降低了理研菌科RC9肠道群和丁酸弧菌属相对丰度,而这些菌相对丰度与丁酸比例呈显著正相关,有可能在产丁酸中起到重要作用且对提取物中的组分敏感。如上所述,丁酸弧菌的主要产物是丁酸盐。瘤胃对纤维素和半纤维素具有高度降解的环境,有用大量不同种类的厌氧微生物进行降解。Pidcock等[48]研究发现,丁酸弧菌属和假丁酸弧菌属(Pseudobutyrivibrio)有大量的碳水化合物分解酶系,这类菌属发酵碳水化合物的主要发酵产物是丁酸盐。这2个属也被用作益生菌,用于动物生产应用,以及从木质纤维素生物质中生产沼气[49]。假丁酸弧菌属是一种革兰氏阴性菌,也是瘤胃中最常见的严格厌氧菌。不同的菌株能够分别利用葡萄糖、果糖、蔗糖、木聚糖和半纤维素来生产丁酸盐。

4 结论

综上所述,用70%乙醇和水提取脱脂辣木籽粉后得到的营养成分和活性物质含量不同,其中,乙醇提取物中的黄酮类物质可能是抑制瘤胃发酵、减少有益菌群数量的原因;相反,水提取物可以有效促进瘤胃碳水化合物发酵,提高产气量和挥发性脂肪酸产量。
[1]
MIZRAHI I, WALLACE R J, MORAÏS S. The rumen microbiome:balancing food security and environmental impacts[J]. Nature Reviews:Microbiology, 2021, 19(9):553-566.

[2]
FLINT H J, BAYER E A, RINCON M T, et al. Polysaccharide utilization by gut bacteria:potential for new insights from genomic analysis[J]. Nature Reviews.Microbiology, 2008, 6(2):121-131.

[3]
SADIQ M B, SYED-HUSSAIN S S, RAMANOON S Z, et al. Knowledge,attitude and perception regarding antimicrobial resistance and usage among ruminant farmers in Selangor,Malaysia[J]. Preventive Veterinary Medicine, 2018,156:76-83.

[4]
WANAPAT M, KONGMUN P, POUNGCHOMPU O, et al. Effects of plants containing secondary compounds and plant oils on rumen fermentation and ecology[J]. Tropical Animal Health and Production, 2012, 44(3):399-405.

[5]
HASSAN F U, ARSHAD M A, EBEID H M, et al. Phytogenic additives can modulate rumen microbiome to mediate fermentation kinetics and methanogenesis through exploiting diet-microbe interaction[J]. Frontiers in Veterinary Science, 2020,7:575801.

[6]
方洛云, 蒋林树. 植物提取物活性成分鉴定方法研究进展[J]. 动物营养学报, 2022, 34(10):6451-6458.

FANG L Y, JIANG L S. Research progress on identification methods of active ingredients in plant extracts[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6451-6458. (in Chinese)

[7]
SAA R W, FOMBANG E N, NDJANTOU E B, et al. Treatments and uses of Moringa oleifera seeds in human nutrition:a review[J]. Food Science & Nutrition, 2019, 7(6):1911-1919.

[8]
AMAGLO N K, BENNETT R N, LO CURTO R B, et al. Profiling selected phytochemicals and nutrients in different tissues of the multipurpose tree Moringa oleifera L., grown in Ghana[J]. Food Chemistry, 2010, 122(4):1047-1054.

[9]
PREMI M, SHARMA H K. Effect of extraction conditions on the bioactive compounds from Moringa oleifera (PKM 1) seeds and their identification using LC-MS[J]. Journal of Food Measurement and Characterization, 2017, 11(1):213-225.

[10]
SHARIFUDIN S A, FAKURAZI S, HIDAYAT M T, et al. Therapeutic potential of Moringa oleifera extracts against acetaminophen-induced hepatotoxicity in rats[J]. Pharmaceutical Biology, 2013, 51(3):279-288.

[11]
VIERA G H F, MOURÃO J A, ANGELO A M, et al. Antibacterial effect (in vitro) of Moringa oleifera and Annona muricata against gram positive and gram negative bacteria[J]. Revista Do Instituto de Medicina Tropical de Sao Paulo, 2010, 52(3):129-132.

[12]
ALJAZZAF B, REGEAI S, ELGHMASI S, et al. Evaluation of antidiabetic effect of combined leaf and Seed extracts of Moringa oleifera (moringaceae) on alloxan-induced diabetes in mice:a biochemical and histological study[J]. Oxidative Medicine and Cellular Longevity, 2023,2023:9136217.

[13]
SHADY N H, MOSTAFA N M, FAYEZ S, et al. Mechanistic wound healing and antioxidant potential of Moringa oleifera seeds extract supported by metabolic profiling[J]. Antioxidants (Basel), 2022, 11(9):1743.

[14]
MANGUNDAYAO K, YASURIN P. Bioactivity of Moringa oleifera and its applications:a review[J]. Journal of Pure and Applied Microbiology, 2017, 11(1):43-50.

[15]
马钱波. 艾叶水相提取物及其抗氧化和抑菌效果的研究[D]. 博士学位论文. 扬州: 扬州大学,2022:26-28.

MA Q B. Study on antioxidant and bacteriostasis effects of water extracts from Artemisia argyi leaves[D]. Ph.D. Thesis. Yangzhou: Yangzhou University,2022:26-28. (in Chinese)

[16]
国家市场监督管理总局, 国家标准化管理委员会. 饲料中粗蛋白的测定:凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[17]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料中粗脂肪的测定:GB/T 6433—2006[S]. 北京: 中国标准出版社, 2006.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China, Standardization Administration of the People’s Republic of China. Determinaiion of crude fat in feeds:GB/T 6433—2006[S]. Beijing: Standards Press of China, 2006. (in Chinese)

[18]
丁雪梅, 张晓君, 赵云, 等. 蒽酮比色法测定可溶性糖含量的试验方法改进[J]. 黑龙江畜牧兽医, 2014(23):230-233.

DING X M, ZHANG X J, ZHAO Y, et al. Improved test method for determination of soluble sugar content by anthrone colorimetric method[J]. Heilongjiang Animal Science and Veterinary Medicine, 2014(23):230-233. (in Chinese)

[19]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

[20]
ROCCHETTI G, PAGENOSSA J P, BLASI F, et al. Phenolic profiling and in vitro bioactivity of Moringa oleifera leaves as affected by different extraction solvents[J]. Food Research International, 2019,127:108712.

[21]
MAKKAR H P S, BECKER K. Nutrients and antiquality factors in different morphological parts of the Moringa oleifera tree[J]. Journal of the Science of Food and Agriculture, 1997, 128(3):311-322.

[22]
ALI A, GARG P, GOYAL R, et al. An efficient wound healing hydrogel based on a hydroalcoholic extract of Moringa oleifera seeds[J]. South African Journal of Botany, 2022,145:192-198.

[23]
MANNER S, SKOGMAN M, GOERES D, et al. Systematic exploration of natural and synthetic flavonoids for the inhibition of Staphylococcus aureus biofilms[J]. International Journal of Molecular Sciences, 2013, 14(10):19434-19451.

[24]
ONSARE J G, ARORA D S. Antibiofilm potential of flavonoids extracted from Moringa oleifera seed coat against Staphylococcus aureus,Pseudomonas aeruginosa and Candida albicans[J]. Journal of Applied Microbiology, 2015, 118(2):313-325.

[25]
JAMIL A, SHAHID M, KHAN M U H, et al. Screening of some medicinal plants for isolation of antifungal proteins and peptides[J]. Pakistan Journal of Botany, 2007, 39(1):211-221.

[26]
CHEN Y, LI Q, ZHAO T, et al. Biotransformation and metabolism of three mulberry anthocyanin monomers by rat gut microflora[J]. Food Chemistry, 2017,237:887-894.

[27]
BORNEMAN W S, AKIN D E, VANESELTINE W P. Effect of phenolic monomers on ruminal bacteria[J]. Applied and Environmental Microbiology, 1986, 52(6):1331-1339.

[28]
GOWD V, KARIM N, SHISHIR M R I, et al. Dietary polyphenols to combat the metabolic diseases via altering gut microbiota[J]. Trends in Food Science & Technology, 2019,93:81-93.

[29]
GAO Y, MA S, WANG M, et al. Characterization of free,conjugated, and bound phenolic acids in seven commonly consumed vegetables[J]. Molecules, 2017, 22(11):1878.

[30]
VAREL V H, JUNG H J. Influence of forage phenolics on ruminal fibrolytic bacteria and in vitro fiber degradation[J]. Applied and Environmental Microbiology, 1986, 52(2):275-280.

[31]
WANG Y L, WANG W K, WU Q C, et al. In situ rumen degradation characteristics and bacterial colonization of corn silages differing in ferulic and p-coumaric acid contents[J]. Microorganisms, 2022, 10(11):2269.

[32]
HANSEN H, MAHROUS H, EL-BORDENY, et al. In vitro evaluation of Moringa whole seed cake as a feed ingredient to abate methane emission from ruminants[J]. International Journal of Agriculture and Biology, 2020,23:994-1002.

[33]
LINS T O J D, TERRY S A, SILVA R R, et al. Effects of the inclusion of Moringa oleifera seed on rumen fermentation and methane production in a beef cattle diet using the rumen simulation technique (Rusitec)[J]. Animal, 2019, 13(2):283-291.

[34]
LEONE A, SPADA A, BATTEZZATI A, et al. Moringa oleifera Seeds and Oil:characteristics and uses for human health[J]. International Journal of Molecular Sciences, 2016, 17(12):2141.

[35]
LIU Y, WU H, CHEN W B, et al. Rumen microbiome and metabolome of high and low residual feed intake Angus heifers[J]. Frontiers in Veterinary Science, 2022,9:812861.

[36]
CONTE G, DIMAURO C, DAGHIO M, et al. Exploring the relationship between bacterial genera and lipid metabolism in bovine rumen[J]. Animal, 2022, 16(5):100520.

[37]
DONG J A, LIU Y J, LI S Z, et al. The physiological dissimilarities of Holstein dairy cows with different milk yields[J]. Veterinary Medicine and Science, 2023, 9(1):429-442.

[38]
HOLMAN D B, GZYL K E. A Meta-analysis of the bovine gastrointestinal tract microbiota[J]. FEMS Microbiology Ecology, 2019, 95(6):fiz072.

[39]
ZENED A, COMBES S, CAUQUIL L, et al. Microbial ecology of the rumen evaluated by 454 GS FLX pyrosequencing is affected by starch and oil supplementation of diets[J]. FEMS Microbiology Ecology, 2013, 83(2):504-514.

[40]
ZHANG Y Y, FAN Q L, HOU Y L, et al. Bacteroides species differentially modulate depression-like behavior via gut-brain metabolic signaling[J]. Brain,Behavior,and Immunity, 2022,102:11-22.

[41]
WEXLER H M. Bacteroides:the good,the bad,and the nitty-gritty[J]. Clinical Microbiology Reviews, 2007, 20(4):593-621.

[42]
ZHAO C J, BAO L J, QIU M, et al. Commensal cow Roseburia reduces gut-dysbiosis-induced mastitis through inhibiting bacterial translocation by producing butyrate in mice[J]. Cell Reports, 2022, 41(8):111681.

[43]
MATEO-ESTRADA V, VALI L, HAMOUDA A, et al. Acinetobacter baumannii sampled from cattle and pigs represent novel clones[J]. Microbiology Spectrum, 2022, 10(4):e0128922.

[44]
LIM T, LEE K, KIM R H, et al. Black raspberry extract can lower serum LDL cholesterol via modulation of gut microbial composition and serum bile acid profile in rats fed trimethylamine-N-oxide with a high-fat diet[J]. Food Science and Biotechnology, 2022, 31(8):1041-1051.

[45]
BRYANT M P, SMALL N. The anaerobic monotrichous butyric acid-producing curved rod-shaped bacteria of the rumen[J]. Journal of Bacteriology, 1956, 72(1):16-21.

[46]
MOON C D, PACHECO D M, KELLY W J, et al. Reclassification of Clostridium proteoclasticum as Butyrivibrio proteoclasticus comb.nov.,a butyrate-producing ruminal bacterium[J]. International Journal of Systematic and Evolutionary Microbiology, 2008, 58(Pt 9):2041-2045.

[47]
YU S Q, LI L X, ZHAO H Y, et al. Dietary citrus flavonoid extract improves lactational performance through modulating rumen microbiome and metabolites in dairy cows[J]. Food & Function, 2023, 14(1):94-111.

[48]
PIDCOCK S E, SKVORTSOV T, SANTOS F G, et al. Phylogenetic systematics of Butyrivibrio and Pseudobutyrivibrio genomes illustrate vast taxonomic diversity,open genomes and an abundance of carbohydrate-active enzyme family isoforms[J]. Microbial Genomics, 2021, 7(10):000638.

[49]
ZOREC M, VODOVNIK M, MARINŠEK-LOGAR R. Potential of selected rumen bacteria for cellulose and hemicellulose degradation[J]. Food Technology & Biotechnology, 2014, 52(2):210-221.

文章导航

/