研究论文

岩藻多糖对宠物猫免疫功能和肠道健康的影响

  • 李青 ,
  • 宋志刚 ,
  • 宋柏辰 , *
展开
  • 山东农业大学动物科技学院,泰安 271018
*宋柏辰,讲师,E-mail:

李 青(1997—),女,山东泰安人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

收稿日期: 2024-01-10

  网络出版日期: 2024-08-12

基金资助

山东农业大学科研启动基金(76616)

Effects of Fucoidan on Immune Function and Intestine Health of Pet Cats

  • LI Qing ,
  • SONG Zhigang ,
  • SONG Bochen , *
Expand
  • College of Animal Science and Technology, Shandong Agricultural University, Tai’an 271018, China
*lecturer, E-mail:

Received date: 2024-01-10

  Online published: 2024-08-12

摘要

本试验旨在研究饲粮添加岩藻多糖对宠物猫免疫功能和肠道健康的影响。选取体况一致的12月龄英国短毛猫24只,随机分为4个组,每组6只(公母各占1/2)。对照组(CN组)饲喂基础饲粮,试验组在基础饲粮中分别添加1 000(FL组)、3 000(FM组)和5 000 mg/kg岩藻多糖(FH组)。试验期28 d。结果表明:1)与对照组相比,饲粮添加1 000 mg/kg岩藻多糖显著提高第28天猫血清免疫球蛋白G(IgG)和免疫球蛋白A(IgA)含量(P<0.05),显著提高第28天猫外周血嗜酸性粒细胞数目(P<0.05)。2)与对照组相比,饲粮添加1 000 mg/kg岩藻多糖显著提高第28天猫粪便微生物Shannon和Simpson指数(P<0.05),显著提高粪便有益菌黏液乳杆菌属(Limosilactobacillus)和Cellulosilyticum相对丰度(P<0.05),显著降低粪便有害菌李斯特菌属(Listeria)和[Ruminococcus]_gauvreauii_group相对丰度(P<0.05)。3)与对照组相比,饲粮添加1 000 mg/kg岩藻多糖对猫尿液蛋白质含量和蛋白质/肌酐值无显著影响(P>0.05)。综上所述,饲粮添加1 000 mg/kg岩藻多糖可增强宠物猫体液免疫功能,改善肠道微生物组成,对肾脏无负面影响。

本文引用格式

李青 , 宋志刚 , 宋柏辰 . 岩藻多糖对宠物猫免疫功能和肠道健康的影响[J]. 动物营养学报, 2024 , 36(8) : 5328 -5339 . DOI: 10.12418/CJAN2024.453

Abstract

This study was conducted to investigate the effects of dietary fucoidan on immune function and intestine health of pet cats. Twenty-four 12-month-old British shorthair cats with the same body condition were randomly divided into 4 groups with 6 cats (half male and half female) per group. The cats in the control group (CN group) were fed a basal diet, and the others in the experimental groups were fed the basal diets supplemented with 1 000 (FL group), 3 000 (FM group) and 5 000 mg/kg fucoidan (FH group), respectively. The experiment lasted for 28 days. The results showed as follows: 1) compared with the control group, dietary 1 000 mg/kg fucoidan significantly increased the contents of immunoglobulin G (IgG) and immunoglobulin A (IgA) in serum of cats on day 28 (P<0.05), and significantly increased the eosinophils number in peripheral blood of cats on day 28 (P<0.05). 2) Compared with the control group, dietary 1 000 mg/kg fucoidan significantly increased the Shannon and Simpson indices of fecal microbiota of cats on day 28 (P<0.05), significantly increased the relative abundances of beneficial bacteria as Limosilactobacillus and Cellulosilyticum in feces (P<0.05), and significantly decreased the relative abundances of harmful bacteria as Listeria and [Ruminococcus]_gauvreauii_group in feces (P<0.05). 3) Compared with the control group, dietary 1 000 mg/kg fucoidan had no significant effects on the protein content and protein to creatinine ratio in urine of cats (P>0.05). In conclusion, dietary 1 000 mg/kg fucoidan can enhance the humoral immune function, improve intestinal microbial composition, and have no negative effects on kidney of pet cats.

随着社会的进步和人们生活质量的提高,越来越多的家庭开始饲养宠物,在中国,猫已经成为国内饲养数量最多的宠物[1]。饲养宠物猫对主人的生理健康[2]和心理健康[3-5]均有益处,猫主人越来越将宠物猫视为家庭中的一员,宠物猫的健康也越来越受到猫主人的关注[6]。猫是专性肉食动物,在进化过程中以高蛋白质、中低脂肪的猎物为食。家庭饲喂的食物常不能被宠物猫充分消化吸收,易引起胃肠道疾病,影响猫的身体健康[7]。疾病不仅对宠物猫的预期寿命产生有害影响,而且也给猫主人带来了巨大的经济负担。与其他哺乳动物类似,免疫系统是保护猫类动物免受病原体侵害的重要防线,免疫系统的健全和平衡也是维持宠物猫健康的重要保障[8]。肠道是消化和吸收的重要器官,同时也是最大的免疫器官[9],其健康与猫的健康状况息息相关。因此,有必要采取饲粮调控措施来增强宠物猫的免疫功能,改善肠道健康,进而提高抗病力,保障身体健康。
海藻主要分为褐藻、红藻和绿藻,营养成分丰富,主要的活性物质有多糖、多酚、蛋白质和维生素等[10]。岩藻是褐藻的一个类型,岩藻多糖是从岩藻中提取出的一种具有生物活性的膳食纤维[11]。目前已有研究发现,岩藻多糖具有免疫调节、抗氧化、抗病毒和抗癌等多种活性,并且对肠道菌群也具有积极影响,具有改善肠道健康的潜力[12-15]
目前,关于岩藻多糖对宠物猫健康的相关研究较少。本试验将不同剂量的岩藻多糖添加于饲粮中,以研究其对宠物猫外周血免疫指标及全血细胞计数、粪便评分及微生物组成以及尿液酸碱度、蛋白质及肌酐含量的影响,得到岩藻多糖的适宜添加剂量,以便为宠物猫饲粮中应用岩藻多糖提供理论依据和实践参考。

1 材料与方法

1.1 试验材料

本试验采用的岩藻多糖为市售产品,主要成分包括岩藻硫酸多糖(23.35%)、岩藻杂多糖(6.14%)、海藻淀粉(7.84%)和甘露醇(13.60%)等。

1.2 试验设计和饲养管理

试验采用完全随机试验设计,选取体况一致的12月龄英国短毛猫24只,随机分为4个组,每组6只(公母各占1/2)。对照组(CN组)饲喂基础饲粮,试验组在基础饲粮中分别添加1 000(低剂量组,FL组)、3 000(中剂量组,FM组)和5 000 mg/kg岩藻多糖(高剂量组,FH组)。试验期28 d。
基础饲粮参考《全价宠物食品 猫粮》(GB/T 31217—2014)进行配制,其组成及营养水平见表1。饲粮中粗蛋白质含量参考《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)进行测定,饲粮中粗脂肪含量参考《饲料中粗脂肪的测定》(GB/T 6433—2006)进行测定,饲粮中钙含量参考《饲料中钙的测定》(GB/T 6436—2018)进行测定,饲粮中总磷含量参考《饲料中总磷的测定 分光光度法》(GB/T 6437—2018)进行测定,饲粮中牛磺酸含量参考《饲料中氨基酸的测定》(GB/T 18246—2019)进行测定。试验猫单笼饲养,自由采食和饮水,每天记录猫舍温度和湿度,定期对猫舍进行消毒、清理和通风等工作。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
鸡肉Chicken 40.00
鸡肉粉Chicken meal 15.00
牛肉Beef 10.00
鱼粉Fish meal 10.00
玉米蛋白粉Corn protein powder 7.00
豌豆Pea 5.00
啤酒酵母粉Brewers’yeast powder 3.00
牛油Beef oil 3.00
鱼油Fish oil 3.00
胡萝卜Carrot 2.00
预混料Premix1) 2.00
合计Total 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 14.65
粗蛋白质CP 45.12
粗脂肪EE 18.31
钙Ca 1.16
总磷TP 0.81
牛磺酸Taurine 0.22

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 16 000 IU,VD3 4 120 IU,VE 30 mg,VB1 200 mg,VB2 220 mg,VB12 50 mg,烟酸 niacin 100 mg,Cu 21 mg,Mn 10 mg。

2)代谢能为计算值(参照《中华人民共和国农业农村部公告第20号》附录8中猫用宠物饲料产品能量值计算方法进行计算),其余营养水平为实测值。ME was a calculated value by referring to the calculation method of energy value of pet feed products for cats in appendix 8 of Announcement No. 20 of the Ministry of Agriculture and Rural Affairs of the People’s Republic of China, while the other nutrient levels were measured values.

1.3 检测指标及方法

1.3.1 血清免疫指标

在试验第1和28天晨饲前,对每只猫通过前肢静脉采集2 mL血液于采血管中,常温倾斜静置,待血清析出后,采用离心机1 000×g离心10 min,取血清于1.5 mL离心管中,于-20 ℃冰箱保存。采用酶联免疫吸附试验(ELISA)法测定血清免疫球蛋白G(IgG)、免疫球蛋白A(IgA)、内毒素(ET)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)和肿瘤坏死因子-α(TNF-α)含量。试剂盒购自上海酶联生物科技有限公司,具体操作步骤按试剂盒说明书进行。

1.3.2 血常规指标

在试验第1和28天晨饲前,对每只猫通过前肢静脉采集1 mL抗凝全血当天送检用于测定血常规指标,检测仪器为全自动五分类血细胞分析仪(基灵LinCytoTM,上海基灵生物科技有限公司),主要检测指标包括红细胞、白细胞、血小板、中性粒细胞、嗜酸性粒细胞、嗜碱性粒细胞、单核细胞和淋巴细胞数目。

1.3.3 粪便评分

在试验第1、14和28天记录粪便状态,参考前人的评价方法[16],进行1~5分评分,分数越高,表明粪便含水量越低;其中,3分为最理想的状态。粪便评分标准见表2
表2 粪便评分标准

Table 2 Fecal scoring criteria

评分Scores 外观Appearance 形态Form
1 完全液态 不成形
2 柔软 不成形
3 柔软、湿润的条状 部分成形
4 成形、干结,但软硬适中 成形
5 坚硬,干片状或小石头样 成形

1.3.4 粪便微生物16S rRNA基因测序

在试验第28天,在每只猫排便后15 min内,收集一份3 g左右的新鲜粪便样本于5 mL冻存管中,于-80 ℃冰箱中保存。收集完成后,在无菌条件下取1 g粪便样本于1.5 mL冻存管中,采用16S rRNA基因高通量测序技术测定猫粪便微生物组成。
采用十六烷基三甲基溴化铵(CTAB)法提取粪便微生物基因组DNA,并用琼脂糖凝胶电泳检测DNA样本纯度和浓度;随后,取适量样本进行PCR扩增,用无菌水将样本稀释至1 ng/μL,以稀释后的DNA为模板,采用16S rRNA基因V4区通用引物515F(5'-GTGCCAGCMGCCGCGGTAA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')扩增细菌DNA;最后,对PCR扩增产物用2%琼脂糖凝胶进行纯化,并进行文库构建,使用NovaSeq-6000进行上机测序。
使用FLASH软件对样本进行拼接得到原始Tags数据,随后通过QIIME V1.9.1操作系统对所得的Tags进行质控,筛选出的Tags利用UPARSE算法在97%的一致性下聚类为操作分类单元(OTU)。对OTU序列进行物种注释,采用Mothur方法与SILVA-138的SSU rRNA数据库进行物种注释分析(设定阈值为0.8~1.0),获得分类学信息和各个分类水平的群落组成。采用MUSCLE 3.8.31软件进行快速多序列比对,得到所有OTU代表序列的系统发生关系。最后对各样品的数据进行均一化处理,以样品中数据量最少的为标准进行均一化处理,后续的多样性分析都是基于均一化处理后的数据。采用R软件(Version 2.15.3)绘制主坐标分析(PCoA)图和非度量多维尺度分析(NMDS)图,并采用R软件对相对丰度大于0.001的属进行组间t检验。

1.3.5 尿常规指标

收集试验第1、14和28天猫的尿液,用pH计测定尿液pH并记录;送检测定尿液蛋白质和肌酐含量,并计算尿液蛋白质与肌酐比值。

1.4 数据统计分析

试验数据采用Excel进行初步处理,然后采用SPSS 26.0软件进行单因素分差分析(one-way ANOVA),并采用Duncan氏法进行组间多重比较,结果采用“平均值±标准误”表示,P<0.05为差异显著,0.05<P<0.10为差异有显著趋势。

2 结果与分析

2.1 岩藻多糖对猫血清免疫指标的影响

表3可知,与对照组相比,饲粮添加1 000 mg/kg岩藻多糖显著提高第28天猫血清IgG和IgA含量(P<0.05),饲粮添加3 000 mg/kg岩藻多糖有提高第28天猫血清IgG和IgA含量的趋势(0.05<P<0.10),饲粮添加5 000 mg/kg岩藻多糖有提高第28天猫血清IgA含量的趋势(0.05<P<0.10)。
表3 岩藻多糖对猫血清免疫指标的影响

Table 3 Effects of fucoidan on serum immune indices of cats

项目
Items
组别Groups P
P-value
CN FL FM FH
第1天Day 1
免疫球蛋白G IgG/(μg/mL) 5 151.00±79.95 5 256.89±55.30 5 235.50±120.12 5 126.00±26.63 0.602
免疫球蛋白A IgA/(μg/mL) 334.09±20.33 367.45±12.62 360.57±2.52 349.00±14.57 0.412
内毒素ET/(EU/L) 1 288.68±46.51 1 177.60±59.22 1 386.03±115.58 1 204.56±110.59 0.317
肿瘤坏死因子-α TNF-α/(pg/mL) 614.54±17.80 640.38±17.18 641.26±42.24 633.38±18.37 0.883
白细胞介素-6 IL-6/(pg/mL) 87.66±3.77 89.83±1.44 95.17±1.23 89.92±7.62 0.675
白细胞介素-10 IL-10/(pg/mL) 314.21±2.89 319.33±9.28 309.33±1.76 316.67±21.18 0.944
第28天Day 28
免疫球蛋白G IgG/(μg/mL) 5 526.00±142.16b 6 420.28±298.00a 5 903.83±214.31ab 5 226.06±111.04b 0.021
免疫球蛋白A IgA/(μg/mL) 350.08±10.94c 401.83±12.15a 366.24±1.89bc 383.94±2.42ab 0.012
内毒素ET/(EU/L) 1 375.39±69.37 1 211.32±70.34 1 309.56±148.03 1 366.32±70.63 0.607
肿瘤坏死因子-α TNF-α/(pg/mL) 532.05±5.30 576.72±14.44 555.36±16.73 579.54±46.80 0.573
白细胞介素-6 IL-6/(pg/mL) 83.26±5.07 80.03±3.91 79.96±1.50 76.58±2.91 0.658
白细胞介素-10 IL-10/(pg/mL) 334.55±14.18 387.33±10.07 328.56±2.76 353.00±26.39 0.083

同行数据肩标不同字母表示组间差异显著(P<0.05)。下表同。

In the same row, values with different letter superscripts mean significant difference among groups (P<0.05). The same as below.

2.2 岩藻多糖对猫血常规指标的影响

表4可知,与对照组相比,饲粮添加1 000 mg/kg岩藻多糖显著提高第28天猫外周血嗜酸性粒细胞数目(P<0.05);饲粮添加不同剂量岩藻多糖对猫其他血常规指标无显著影响(P>0.05)。
表4 岩藻多糖对猫血常规指标的影响

Table 4 Effects of fucoidan on blood routine indices of cats

项目
Items
组别Groups P
P-value
CN FL FM FH
第1天Day 1
红细胞RBC/(×1012个/L) 8.18±0.63 8.66±0.34 7.65±0.41 7.61±0.69 0.652
白细胞WBC/(×109个/L) 14.21±2.29 15.68±1.46 13.57±2.67 13.45±0.47 0.847
血小板PLT/(×109个/L) 222.33±12.41 214.00±32.13 198.00±13.23 219.75±10.86 0.561
中性粒细胞NE/(×109个/L) 8.04±0.86 7.82±0.78 8.31±0.89 7.57±0.74 0.933
嗜酸性粒细胞EOS/(×109个/L) 1.10±0.11 1.17±0.07 1.14±0.11 1.17±0.07 0.948
嗜碱性粒细胞BASO/(×109个/L) 0.06±0.02 0.19±0.12 0.10±0.03 0.04±0.01 0.313
单核细胞MO/(×109个/L) 0.23±0.03 0.34±0.02 0.32±0.04 0.24±0.08 0.252
淋巴细胞LY/(×109个/L) 3.80±0.31 4.11±0.50 3.90±0.39 2.68±0.46 0.147
第28天Day 28
红细胞RBC/(×1012个/L) 8.51±0.66 7.70±0.57 7.45±0.33 7.23±0.60 0.401
白细胞WBC/(×109个/L) 16.07±1.60 17.01±1.31 16.39±1.53 15.87±115 0.944
血小板PLT/(×109个/L) 229.00±7.09 207.00±34.56 219.00±45.24 245.00±23.59 0.854
中性粒细胞NE/(×109个/L) 9.59±1.18 12.20±0.14 8.57±0.90 8.91±0.98 0.082
嗜酸性粒细胞EOS/(×109个/L) 1.28±0.07b 1.72±0.09a 1.41±0.13b 1.30±0.08b 0.041
嗜碱性粒细胞BASO/(×109个/L) 0.08±0.02 0.12±0.06 0.13±0.03 0.10±0.02 0.655
单核细胞MO/(×109个/L) 0.44±0.05 0.41±0.01 0.53±0.03 0.42±0.06 0.263
淋巴细胞LY/(×109个/L) 3.92±0.45 3.52±0.19 3.09±0.53 3.58±1.20 0.874

2.3 岩藻多糖对猫粪便评分的影响

表5可知,与对照组相比,饲粮添加不同剂量岩藻多糖对猫粪便评分无显著影响(P>0.05)。其中,1 000 mg/kg岩藻多糖添加组(FL组)猫的粪便评分最接近3分,粪便状态最理想。
表5 岩藻多糖对猫粪便评分的影响

Table 5 Effects of fucoidan on fecal score of cats

项目
Items
组别Groups P
P-value
CN FL FM FH
第1天Day 1 2.92±0.08 2.93±0.15 3.08±0.20 3.08±0.08 0.701
第14天Day 14 3.00±0.00 3.00±0.00 3.17±0.17 3.00±0.00 0.415
第28天Day 28 3.00±0.00 3.00±0.00 3.17±0.41 3.00±0.00 0.413

2.4 岩藻多糖对猫粪便微生物区系的影响

2.4.1 岩藻多糖对猫粪便微生物α多样性的影响

表6可知,与对照组相比,饲粮添加1 000 mg/kg岩藻多糖显著提高第28天猫粪便微生物Shannon和Simpson指数(P<0.05);饲粮添加3 000 mg/kg岩藻多糖显著提高Shannon指数(P<0.05),有提高Simpson指数的趋势(0.05<P<0.10);饲粮添加5 000 mg/kg岩藻多糖显著提高Shannon指数(P<0.05),有提高Simpson指数的趋势(0.05<P<0.10)。
表6 岩藻多糖对猫粪便微生物α多样性的影响

Table 6 Effects of fucoidan on α diversity of fecal microbiota of cats

项目
Items
组别Groups P
P-value
CN FL FM FH
Chao1指数Chao1 index 746.81±58.03 966.88±95.25 940.63±127.18 1 067.57±245.99 0.169
Shannon指数Shannon index 4.57±0.37b 5.46±0.84a 5.53±0.39a 5.30±0.22a 0.015
Simpson指数Simpson index 0.90±0.02c 0.94±0.01a 0.94±0.03ab 0.91±0.03bc 0.029

2.4.2 岩藻多糖对猫粪便微生物β多样性的影响

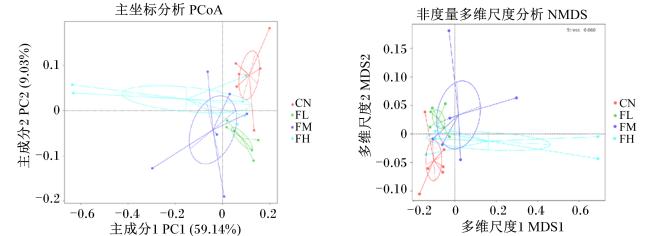
β多样性是用于比较组间菌群多样性的指标。在PCoA和NMDS中,样本距离越接近,则表示物种组成结构越相似。如图1所示,CN组与FL组、FM组和FH组间样本分界清晰,即试验组与对照组在β多样性方面有明显的区分,表明饲粮添加不同剂量岩藻多糖改变了猫粪便微生物群落组成。
图1 岩藻多糖对猫粪便微生物β多样性的影响

CN:对照组 control group;FL:1 000 mg/kg岩藻多糖添加组 1 000 mg/kg fucoidan supplemental group;FM:3 000 mg/kg岩藻多糖添加组 3 000 mg/kg fucoidan supplemental group;FH:5 000 mg/kg岩藻多糖添加组 5 000 mg/kg fucoidan supplemental group。下图同 the same as below。

Fig.1 Effects of fucoidan on β diversity of fecal microbiota of cats

2.4.3 岩藻多糖对猫粪便微生物组成的影响

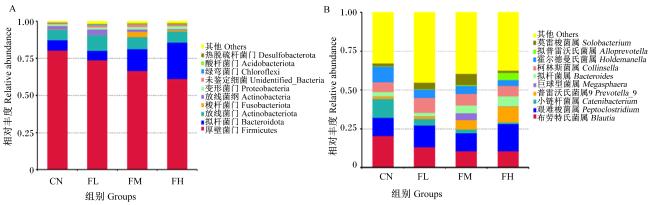
图2-A所示,4个组猫粪便微生物均以厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)和放线菌门(Actinobacteriota)为主;其中,厚壁菌门为优势菌门,其相对丰度在60%以上。
图2 岩藻多糖对猫粪便微生物组成的影响

Fig.2 Effects of fucoidan on fecal microbiota composition of cats

图2-B所示,各组猫粪便微生物属水平优势菌群包含布劳特氏菌属(Blautia)、艰难梭菌属(Peptoclostridium)、小链杆菌属(Catenibacterium)、普雷沃氏菌属9(Prevotella_9)、柯林斯菌属(Collinsella)、霍尔德曼氏菌属(Holdemanella)和莫雷梭菌属(Solobacterium)等。

2.4.4 T检验组间猫粪便差异微生物

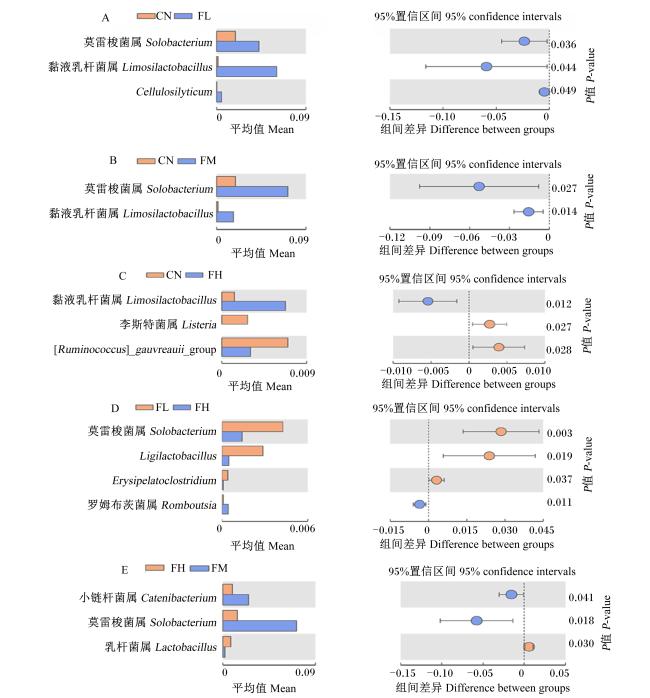
图3-A所示,与对照组相比,饲粮添加1 000 mg/kg岩藻多糖显著提高猫粪便中莫雷梭菌属、黏液乳杆菌属(Limosilactobacillus)和Cellulosilyticum相对丰度(P<0.05)。如图3-B所示,与对照组相比,饲粮添加3 000 mg/kg岩藻多糖显著提高猫粪便中莫雷梭菌属和黏液乳杆菌属相对丰度(P<0.05)。如图3-C所示,与对照组相比,饲粮添加5 000 mg/kg岩藻多糖显著提高猫粪便中黏液乳杆菌属相对丰度(P<0.05),显著降低李斯特菌属(Listeria)和[Ruminococcus]_gauvreauii_group相对丰度(P<0.05)。如图3-D所示,与1 000 mg/kg岩藻多糖添加组相比,饲粮添加5 000 mg/kg岩藻多糖显著提高猫粪便中罗姆布茨菌属(Romboutsia)相对丰度(P<0.05),显著降低莫雷梭菌属、LigilactobacillusErysipelatoclostridium相对丰度(P<0.05)。如图3-E所示,与5 000 mg/kg岩藻多糖添加组相比,饲粮添加3 000 mg/kg岩藻多糖显著提高猫粪便中小链杆菌属和莫雷梭菌属相对丰度(P<0.05),显著降低乳杆菌属(Lactobacillus)相对丰度(P<0.05)。
图3 t检验组间猫粪便差异微生物

Fig.3 Differential microbes in cat feces between groups by t test

2.5 岩藻多糖对猫尿常规指标的影响

表7可知,与对照组相比,饲粮添加不同剂量的岩藻多糖对猫尿液pH无显著影响(P>0.05),且各组尿液pH均在正常范围内。试验第1和14天,各组猫尿常规指标均无显著差异(P>0.05)。试验第28天,与对照组相比,饲粮添加5 000 mg/kg岩藻多糖显著提高猫尿液蛋白质/肌酐值(P<0.05),饲粮添加3 000 mg/kg岩藻多糖有提高尿液蛋白质/肌酐值的趋势(0.05<P<0.10)。
表7 岩藻多糖对猫尿常规指标的影响

Table 7 Effects of fucoidan on urine routine indices of cats

项目
Items
组别Grous P
P-value
CN FL FM FH
第1天Day 1
pH 6.42±0.05 6.50±0.07 6.53±0.04 6.52±0.09 0.604
蛋白质Protein/(g/L) 0.08±0.01 0.09±0.02 0.08±0.01 0.08±0.01 0.702
肌酐Creatinine /(g/L) 1.30±0.05 1.24±0.02 1.20±0.04 1.34±0.09 0.405
蛋白质/肌酐Protein/creatinine 0.06±0.01 0.08±0.01 0.07±0.02 0.06±0.01 0.728
第14天Day 14
pH 6.32±0.05 6.28±0.03 6.22±0.02 6.35±0.10 0.433
蛋白质Protein/(g/L) 0.10±0.01 0.14±0.01 0.23±0.10 0.13±0.01 0.344
肌酐Creatinine /(g/L) 2.84±0.05 2.72±0.29 2.72±0.07 2.65±0.08 0.850
蛋白质/肌酐Protein/creatinine 0.03±0.00 0.05±0.01 0.08±0.03 0.06±0.01 0.320
第28天Day 28
pH 6.58±0.05 6.47±0.03 6.52±0.05 6.50±0.08 0.502
蛋白质Protein/(g/L) 0.11±0.02 0.12±0.01 0.22±0.11 0.43±0.11 0.066
肌酐Creatinine /(g/L) 2.70±0.06 2.70±0.25 2.70±0.06 2.67±0.19 0.998
蛋白质/肌酐Protein/creatinine 0.04±0.01b 0.04±0.01b 0.08±0.04ab 0.16±0.04a 0.044

3 讨论

3.1 岩藻多糖对猫血液指标的影响

血清免疫球蛋白是一种具有抗体活性的蛋白质,IgG和IgA是动物外周血中含量最高的2种免疫球蛋白,能抵御外界各种致病菌和病毒的侵害,是体现体液免疫功能的重要指标[17]。本研究发现,饲粮添加1 000 mg/kg岩藻多糖显著提高第28天猫血清IgG和IgA含量,饲粮添加3 000 mg/kg岩藻多糖有提高血清IgG和IgA含量的趋势,饲粮添加5 000 mg/kg岩藻多糖有提高血清IgA含量的趋势。结果表明,饲粮添加1 000 mg/kg岩藻多糖显著提高猫的体液免疫功能,其免疫增强作用优于饲粮添加3 000和5 000 mg/kg岩藻多糖。饲粮添加3 000和5 000 mg/kg岩藻多糖对血清免疫球蛋白含量的提升效果较差的原因可能是由于过量岩藻多糖具有肾毒性,造成肾脏损伤,消耗部分巨噬细胞,下调其分泌的IL-10水平,进而导致免疫球蛋白含量较低。另外,过量岩藻多糖可能会干扰浆细胞对其他营养素的吸收,进而影响其分泌免疫球蛋白的能力。前人研究发现,灌服600和1 000 mg/kg褐藻多糖能够显著提高小鼠血清IgG和IgA含量,有助于调节适应性免疫细胞功能,可显著通过增强脾脏细胞增殖、自然杀伤细胞和巨噬细胞的活性来激活先天性免疫系统,同时还上调了脾脏白细胞介素-2(IL-2)、白细胞介素-4(IL-4)和干扰素-γ(IFN-γ)的水平[18]。还有研究发现,对妊娠母猪饲喂10 g/d褐藻多糖显著提高母猪初乳中IgG含量和外周血白细胞吞噬活性[19]。前人研究结果与本研究结果相似,饲粮添加1 000 mg/kg岩藻多糖显著提高猫外周血中抗体水平,增强体液免疫功能,本试验结果可能是由于岩藻多糖会刺激机体的免疫系统,从而使外周血中免疫球蛋白含量得到提高。
全血细胞计数不仅可以作为诊断疾病的依据,也可以一定程度上反映宠物猫的健康状态[20]。先天性白细胞包括中性粒细胞、单核细胞、巨噬细胞、树突状细胞和自然杀伤细胞,是抵御病原体和组织损伤的第一道防线。嗜酸性粒细胞参与大多数脊椎动物的多种细胞过程,主要作用是抗寄生虫,同时也有助于维持免疫稳态、抗病毒和细菌[21]。本研究发现,饲粮添加1 000 mg/kg岩藻多糖显著提高猫外周血中嗜酸性粒细胞数目,说明饲粮添加1 000 mg/kg岩藻多糖可提高猫外周免疫系统的抗寄生虫、病毒和细菌功能。前人研究发现,岩藻多糖对过敏性气管炎、高强度运动以及丙二醇甲醚醋酸酯引起的炎症导致的嗜酸性粒细胞数目显著提升有抑制作用,表明岩藻多糖具有抗炎作用[22-24]。本研究发现与前人研究结果不同,其主要原因可能与试验动物生理状态的不同有关,前人研究中选取的是炎症状态下的动物,而本研究选取的是正常生理状态下的猫。正常生理状态下的猫外周血嗜酸性粒细胞数目的提升也可能代表着机体抗寄生虫、病毒和细菌能力的增强。

3.2 岩藻多糖对猫粪便微生物区系的影响

动物肠道中存在着数以万亿计的微生物,这些微生物统称为肠道菌群。肠道微生物由于参与代谢过程而对整个动物机体的代谢产生重大影响。机体健康可通过调整肠道菌群的平衡来维持,而维持宿主的健康以及预防许多疾病的发生与肠道微生物的平衡之间存在密不可分的关系。有研究表明,粪便微生物的组成可以在一定程度上反映肠道微生物的组成[25]
通常认为,肠道微生物α多样性越高,肠道微生物组成的稳定性越高,越有利于抵抗外源病原菌对宿主的侵袭,有利于宿主的健康[26]。本试验的结果显示,与对照组相比,饲粮添加岩藻多糖提高了猫粪便微生物的α多样性,有利于提高猫肠道微生物的稳定性。前人研究发现与本研究发现一致,褐藻多糖显著提高动物肠道微生物的α多样性,稳定肠道微生物区系,保障肠道健康[27]
莫雷梭菌属是一种专性厌氧革兰氏阳性杆菌,经常从人类粪便样本中分离出此菌,是动物粪便中常见细菌[28]。黏液乳杆菌属是一种从人乳中分离出来的一种益生菌,在多种疾病模型的动物试验中,表现出了对免疫功能和肠道屏障有益的影响[29]。据报道,罗伊氏黏液乳杆菌(Limosilactobacillus reuteri)是一种具有抗菌、抗炎和抗衰老的益生菌,通过胰岛素/胰岛素样生长因子-1(IGF-1)信号通路来显著提高黑腹果蝇的平均寿命,而同时并不会降低果蝇的生殖产出、食物摄入或运动活动,具有模拟饮食限制的抗衰老效应[30]。这意味着,在日常饮食中增加罗伊氏黏液乳杆菌的摄入量,有望对动物的寿命产生积极的影响。2022年,欧盟动物饲料添加剂和产品(FEEDAP)研究小组从安全性和有效性的角度发表科学意见,罗伊氏黏液乳杆菌分别成为狗和猫的饲料添加剂。瘤胃细菌Cellulosilyticum可有效水解纤维素[31]。益生菌长双歧杆菌BB68S可改善没有认知障碍的健康老年人的认知功能,并显著提高粪便中有益菌Cellulosilyticum的相对丰度[32]。李斯特菌属是一种高度致命的机会性病原菌,孕妇、新生儿、老年人以及体弱或免疫功能低下的患者经常主要受到其影响,侵袭性李斯特菌属的临床表现通常很严重,包括流产、败血症和脑膜脑炎[33]。体外试验表明,海藻提取物可显著抑制李斯特菌属对人克隆结肠腺癌细胞Caco-2和小鼠单核巨噬细胞白血病细胞RAW264.7的侵袭、感染和炎症状态[34]。[Ruminococcus]_gauvreauii_group可在人类胆囊中生存,主要代谢糖醇和肌醇,还通过Wood-Ljungdahl途径利用甲酸盐生成乙酸盐[35]。研究发现,甘肃小檗提取物通过调节肠道菌群组成缓解大鼠的2型糖尿病,显著降低结肠中[Ruminococcus]_gauvreauii_group的相对丰度,且[Ruminococcus]_gauvreauii_group相对丰度与促炎因子水平呈正相关[36]。还有研究发现,加味葛根芩连汤缓解大鼠的溃疡性结肠炎,并显著降低结肠中[Ruminococcus]_gauvreauii_group的相对丰度,且乙酸、丁酸、丙酸和总短链脂肪酸含量与[Ruminococcus]_gauvreauii_group相对丰度呈负相关[37]。这些研究结果表明[Ruminococcus]_gauvreauii_group可能是一种具有促炎性质以及可降低短链脂肪酸产生的有害菌。据报道,绿藻多糖可改善大鼠的血浆和肝脏脂质代谢,加速盲肠总胆汁酸和短链脂肪酸的代谢,显著降低盲肠中[Ruminococcus]_gauvreauii_group的相对丰度[38]。本研究结果与前人研究发现类似,岩藻多糖通过提高宠物猫粪便微生物α多样性,提高长寿菌黏液乳杆菌属和有益菌Cellulosilyticum相对丰度,以及降低有害菌李斯特菌属和[Ruminococcus]_gauvreauii_group相对丰度来改善宠物猫肠道微生物的组成。

3.3 岩藻多糖对猫尿液指标的影响

宠物猫的尿液pH是6.0~7.5[39]。尿液pH表明肾脏对氢离子(H+)和碳酸氢根离子(HC O 3 -)的重吸收能力,从调节酸碱平衡的角度体现了肾脏的健康状态[40]。本研究发现,饲粮添加1 000、3 000和5 000 mg/kg岩藻多糖对猫尿液pH无显著影响,证明岩藻多糖对猫肾脏调节酸碱平衡的能力无负面效果。
尿液蛋白质和肌酐含量反映了肾脏滤过功能的状态。由于肾小球滤过膜的滤过作用和肾小管的重吸收作用,健康猫尿中蛋白质的含量较低,一般小于0.30 g/L[41]。肌酐是猫进食的肉类在体内分解产生的最终产物,几乎不被肾小管重吸收,经肾小球滤出到尿液中,正常猫每日的尿液肌酐排出量较为恒定[42]。尿液蛋白质与肌酐比值是判断猫的肾脏疾病和肾功能衰竭的重要指标,一般小于0.4。肾小球过滤受损,会使肾小球呈高滤过状态,导致尿液蛋白质与肌酐比值持续居高不下[43]。前人研究发现,饲粮添加100和200 mg/kg岩藻多糖显著降低肾炎大鼠尿液中蛋白质含量,缓解蛋白尿的症状[44]。也有研究发现,注射25 mg/kg岩藻多糖并不能保护大鼠肾脏免受缺血性损伤,甚至具有肾毒性[45]。本研究结果与前人发现类似,饲粮添加3 000和5 000 mg/kg岩藻多糖提高了尿液蛋白质与肌酐比值,可能具有肾毒性,对猫肾脏的滤过功能有负面影响;而饲粮添加1 000 mg/kg岩藻多糖对猫尿液蛋白质含量和蛋白质与肌酐比值等代表肾脏健康的指标无负面影响。

4 结论

① 饲粮添加岩藻多糖可提高猫外周血免疫球蛋白和嗜酸性粒细胞含量,增强体液免疫功能,有助于维持免疫稳态,且添加1 000 mg/kg岩藻多糖的效果优于添加3 000和5 000 mg/kg。
② 饲粮添加岩藻多糖可提高猫粪便微生物α多样性,提高有益菌黏液乳杆菌属和Cellulosilyticum相对丰度,降低有害菌李斯特菌属和[Ruminococcus]_gauvreauii_group相对丰度,改善肠道微生物组成。
③ 饲粮添加1 000 mg/kg岩藻多糖对猫肾脏无负面影响,而饲粮添加3 000和5 000 mg/kg岩藻多糖可能引起猫肾脏损伤。
④ 本研究所用的岩藻多糖在宠物猫饲粮中的适宜添加剂量为1 000 mg/kg。
[1]
YANG Q, WU Z L. Gut probiotics and health of dogs and cats:benefits,applications,and underlying mechanisms[J]. Microorganisms, 2023, 11(10):2452.

[2]
YANG Y W, HU X W, CAI S, et al. Pet cats May shape the antibiotic resistome of their owner’s gut and living environment[J]. Microbiome, 2023, 11(1):235.

[3]
OGATA N, WENG H Y, MCV MESSAM L L. Temporal patterns of owner-pet relationship,stress,and loneliness during the COVID-19 pandemic,and the effect of pet ownership on mental health:a longitudinal survey[J]. PLoS One, 2023, 18(4):e0284101.

[4]
GRAJFONER D, KE G N, WONG R M M. The effect of pets on human mental health and wellbeing during COVID-19 lockdown in Malaysia[J]. Animals, 2021, 11(9):2689.

[5]
JANSSENS M, JANSSENS E, ESHUIS J, et al. Companion animals as buffer against the impact of stress on affect:an experience sampling study[J]. Animals, 2021, 11(8):2171.

[6]
ALESSANDRI G, ARGENTINI C, MILANI C, et al. Catching a glimpse of the bacterial gut community of companion animals:a canine and feline perspective[J]. Microbial Biotechnology, 2020, 13(6):1708-1732.

[7]
ZORAN D L. Nutritional management of feline gastrointestinal diseases[J]. Topics in Companion Animal Medicine, 2008, 23(4):200-206.

DOI PMID

[8]
JI Y, YANG Y, WU Z L. Programming of metabolic and autoimmune diseases in canine and feline:linkage to the gut microbiome[J]. Microbial Pathogenesis, 2023,185:106436.

[9]
HOU Q H, HUANG J X, AYANSOLA H, et al. Intestinal stem cells and immune cell relationships:potential therapeutic targets for inflammatory bowel diseases[J]. Frontiers in Immunology, 2020,11:623691.

[10]
LEE Z J, XIE C D, NG K, et al. Unraveling the bioactive interplay: seaweed polysaccharide, polyphenol and their gut modulation effect[J/OL]. Critical Reviews in Food Science and Nutrition:1-24.(2023-11-22)[2023-12-20]. https://pubmed.ncbi.nlm.nih.gov/37991467/.

[11]
LOMARTIRE S, MARQUES J C, GONÇALVES A M M. An overview to the health benefits of seaweeds consumption[J]. Marine Drugs, 2021, 19(6):341.

[12]
PRADHAN B, BHUYAN P P, KI J S. Immunomodulatory,antioxidant,anticancer,and pharmacokinetic activity of ulvan,a seaweed-derived sulfated polysaccharide:an updated comprehensive review[J]. Marine Drugs, 2023, 21(5):300.

[13]
JABEEN M, DUTOT M, FAGON R, et al. Seaweed sulfated polysaccharides against respiratory viral infections[J]. Pharmaceutics, 2021, 13(5):733.

[14]
BARBOSA J R, DE CARVALHO JUNIOR R N. Polysaccharides obtained from natural edible sources and their role in modulating the immune system:biologically active potential that can be exploited against COVID-19[J]. Trends in Food Science & Technology, 2021,108:223-235.

[15]
SHANNON E, CONLON M, HAYES M. Seaweed components as potential modulators of the gut microbiota[J]. Marine Drugs, 2021, 19(7):358.

[16]
OPETZ D L, OBA P M, KOSTIUK D, et al. Effects of weight loss and feeding specially formulated diets on the body composition,blood metabolite profiles,voluntary physical activity,and fecal metabolites and microbiota of overweight cats[J]. Journal of Animal Science, 2023,101:skad332.

[17]
CARSETTI R, ROSADO M M, WARDMANN H. Peripheral development of B cells in mouse and man[J]. Immunological Reviews, 2004,197:179-191.

[18]
HWANG P A, LIN H T V, LIN H Y, et al. Dietary supplementation with low-molecular-weight fucoidan enhances innate and adaptive immune responses and protects against mycoplasma pneumoniae antigen stimulation[J]. Marine Drugs, 2019, 17(3):175.

[19]
LEONARD S G, SWEENEY T, BAHAR B, et al. Effect of maternal fish oil and seaweed extract supplementation on colostrum and milk composition,humoral immune response,and performance of suckled piglets[J]. Journal of Animal Science, 2010, 88(9):2988-2997.

[20]
KRASZTEL M M, CZOPOWICZ M, SZALUŚ-JORDANOW O, et al. Application of a complete blood count to screening lethargic and anorectic cats for pancreatitis[J]. BMC Veterinary Research, 2021, 17(1):383.

DOI PMID

[21]
WECHSLER M E, MUNITZ A, ACKERMAN S J, et al. Eosinophils in health and disease:a state-of-the-art review[J]. Mayo Clinic Proceedings, 2021, 96(10):2694-2707.

[22]
MCFADDEN B A, VINCENTY C S, CHANDLER A J, et al. Effects of fucoidan supplementation on inflammatory and immune response after high-intensity exercise[J]. Journal of the International Society of Sports Nutrition, 2023, 20(1):2224751.

[23]
HERATH K H I N M, KIM H J, KIM A, et al. The role of fucoidans isolated from the sporophylls of Undaria pinnatifida against particulate-matter-induced allergic airway inflammation:evidence of the attenuation of oxidative stress and inflammatory responses[J]. Molecules, 2020, 25(12):2869.

[24]
TEIXEIRA M M, HELLEWELL P G. The effect of the selectin binding polysaccharide fucoidin on eosinophil recruitment in vivo[J]. British Journal of Pharmacology, 1997, 120(6):1059-1066.

[25]
ZHOU Q Q, LAN F R, LI X C, et al. The spatial and temporal characterization of gut microbiota in broilers[J]. Frontiers in Veterinary Science, 2021,8:712226.

[26]
FROST F, KACPROWSKI T, RÜHLEMANN M, et al. Long-term instability of the intestinal microbiome is associated with metabolic liver disease,low microbiota diversity,diabetes mellitus and impaired exocrine pancreatic function[J]. Gut, 2021, 70(3):522-530.

[27]
YANG J Y, LIM S Y. Fucoidans and bowel health[J]. Marine Drugs, 2021, 19(8):436.

[28]
OSHIBUCHI K, YANG J Y, OBANA N, et al. Complete genome sequence of Solobacterium moorei JCM 10645T isolated from a human stool sample[J]. Microbiology Resource Announcements, 2024, 13(1):e0096523.

[29]
OZEN M T A, PILOQUET H, SCHAUBECK M. Limosilactobacillus fermentum CECT5716:clinical potential of a probiotic strain isolated from human milk[J]. Nutrients, 2023, 15(9):2207.

[30]
LEE H Y, LEE J H, KIM S H, et al. Probiotic Limosilactobacillus reuteri (Lactobacillus reuteri) extends the lifespan of Drosophila melanogaster through insulin/IGF-1 signaling[J]. Aging and Disease, 2023, 14(4):1407-1424.

[31]
LI S Z, SHAO N N, LUO Y M, et al. Transcriptome and zymogram analyses reveal a cellobiose-dose related reciprocal regulatory effect on cellulase synthesis in Cellulosilyticum ruminicola H1[J]. Frontiers in Microbiology, 2017,8:2497.

[32]
SHI S Q, ZHANG Q, SANG Y, et al. Probiotic Bifidobacterium longum BB68S improves cognitive functions in healthy older adults:a randomized,double-blind,placebo-controlled trial[J]. Nutrients, 2022, 15(1):51.

[33]
VÁZQUEZ-BOLAND J A, KUHN M, BERCHE P, et al. Listeria pathogenesis and molecular virulence determinants[J]. Clinical Microbiology Reviews, 2001, 14(3):584-640.

[34]
KUDA T K H, NAKAMURA S, AN C, et al. Effects of holdfast of Laminaria japonica on Listeria invasion on enterocyte-like Caco-2 cells and NO production of macrophage RAW 264.7 cells[J]. Applied Biochemistry and Biotechnology, 2012, 168(4):928-935.

[35]
MOLINERO N T I, CONTI E, WALKER A W, et al. Survival strategies and metabolic interactions between Ruminococcus gauvreauii and Ruminococcoides bili,isolated from human bile[J]. Microbiology Spectrum, 2022, 10(4):e0277621.

[36]
XU T, GE Y M, DU H, et al. Berberis kansuensis extract alleviates type 2 diabetes in rats by regulating gut microbiota composition[J]. Journal of Ethnopharmacology, 2021,273:113995.

[37]
LI Q M, CUI Y, XU B C, et al. Main active components of Jiawei Gegen Qinlian decoction protects against ulcerative colitis under different dietary environments in a gut microbiota-dependent manner[J]. Pharmacological Research, 2021,170:105694.

[38]
WAN X Z, AI C, CHEN Y H, et al. Physicochemical characterization of a polysaccharide from green microalga Chlorella pyrenoidosa and its hypolipidemic activity via gut microbiota regulation in rats[J]. Journal of Agricultural and Food Chemistry, 2020, 68(5):1186-1197.

[39]
KENNEDY S M, LULICH J P, RITT M G, et al. Comparison of body condition score and urinalysis variables between dogs with and without calcium oxalate uroliths[J]. Journal of the American Veterinary Medical Association, 2016, 249(11):1274-1280.

PMID

[40]
REPPAS G, FOSTER S F. Practical urinalysis in the cat:1:urine macroscopic examination ‘tips and traps’[J]. Journal of Feline Medicine and Surgery, 2016, 18(3):190-202.

[41]
YADAV S N, AHMED N, NATH A J, et al. Urinalysis in dog and cat:a review[J]. Veterinary World, 2020, 13(10):2133-2141.

[42]
KONGTASAI T, PAEPE D, MEYER E, et al. Renal biomarkers in cats:a review of the current status in chronic kidney disease[J]. Journal of Veterinary Internal Medicine, 2022, 36(2):379-396.

[43]
GIRALDI M, PALTRINIERI S, ROSSI G, et al. Influence of preanalytical factors on feline proteinuria[J]. Veterinary Clinical Pathology, 2021, 50(3):369-375.

[44]
ZHANG Q B, LI N, ZHAO T T, et al. Fucoidan inhibits the development of proteinuria in active Heymann nephritis[J]. Phytotherapy Research, 2005, 19(1):50-53.

DOI PMID

[45]
GOOR Y, GOOR O, WOLLMAN Y, et al. Fucoidin, an inhibitor of leukocyte adhesion,exacerbates acute ischemic renal failure and stimulates nitric oxide synthesis[J]. Scandinavian Journal of Urology and Nephrology, 2006, 40(1):57-62.

文章导航

/