研究论文

猫乳源乳酸片球菌的分离及对巨噬细胞极化的影响

  • 刘仕伟 ,
  • 李亚辉 ,
  • 赵鹤一 ,
  • 杨诗航 ,
  • 林子翔 ,
  • 乔富强 , ** ,
  • 姚华 , **
展开
  • 北京农学院动物科学技术学院,北京 102206
** 乔富强,高级畜牧师,E-mail: ;
姚 华,教授,硕士生导师,E-mail:
*同等贡献作者

刘仕伟(1998—),男,北京人,硕士研究生,从事小动物临床疾病诊疗及机制研究。E-mail:

收稿日期: 2024-01-21

  网络出版日期: 2024-08-12

基金资助

动物营养保健技术及产品研发(2034115021)

Isolation of Pediococcus acidilactici from Feline Milk and Its Effects on Polarization of Macrophages

  • LIU Shiwei ,
  • LI Yahui ,
  • ZHAO Heyi ,
  • YANG Shihang ,
  • LIN Zixiang ,
  • QIAO Fuqiang , ** ,
  • YAO Hua , **
Expand
  • College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
** QIAO Fuqiang, senior engineer, E-mail: ;
YAO Hua, professor, E-mail:
*Contributed equally

Received date: 2024-01-21

  Online published: 2024-08-12

摘要

本试验旨在研究筛选出的猫乳源乳酸片球菌(YH-15)抑制脂多糖(LPS)诱导的巨噬细胞极化,以确定YH-15对机体免疫功能的调节作用。从猫乳中分离乳酸菌得到猫乳源益生菌YH-15,利用LPS建立小鼠巨噬细胞炎症模型。采用CCK-8法检测YH-15对RAW264.7细胞增殖的影响,采用酶联免疫吸附法(ELISA)检测细胞中的促炎因子肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)及抑炎因子白细胞介素-10(IL-10)的含量;采用Western blot法检测巨噬细胞极化相关指标诱导型一氧化氮合酶(iNOS)和精氨酸酶-1(Arg-1)的蛋白表达量,并检测乙酰化细胞核因子-κB p65(NF-κB p65)的蛋白表达以确定YH-15是否通过抑制NF-κB的核转位,从而达到对炎症的抵抗作用。结果表明:从猫乳中成功分离出乳酸片球菌菌株并命名为YH-15;高浓度(109 CFU/mL)YH-15对小鼠巨噬细胞增殖无显著影响(P>0.05),但能够显著降低细胞促炎因子TNF-α、IL-1β、IL-6的含量,显著提高抑炎因子IL-10的含量(P<0.05);高浓度YH-15可抑制巨噬细胞向M1型极化,同时诱导巨噬细胞向M2型极化;YH-15显著降低NF-κB p65的蛋白表达(P<0.05)。综上可知,YH-15可诱导巨噬细胞向M2型极化,抵抗LPS诱导的M1型巨噬细胞的生成及NF-κB p65的蛋白表达,具有预防和抑制炎症的作用。

本文引用格式

刘仕伟 , 李亚辉 , 赵鹤一 , 杨诗航 , 林子翔 , 乔富强 , 姚华 . 猫乳源乳酸片球菌的分离及对巨噬细胞极化的影响[J]. 动物营养学报, 2024 , 36(8) : 5422 -5431 . DOI: 10.12418/CJAN2024.461

Abstract

To study the inhibitory effects of Pediococcus acidilactici named YH-15 on lipopolysaccharide(LPS)-induced polarization of macrophages and to determine the regulatory effects of YH-15 on immune function, lactic acid bacteria were isolated from feline milk to obtain feline milk probiotic YH-15, and a mouse macrophage inflammation model was established by LPS. The effects of YH-15 on the proliferation of RAW264.7 cells was detected by the CCK-8 method, and the contents of pro-inflammatory factors tumor necrosis factor-α (TNF-α), interleukin-1β (IL-1β), interleukin-6 (IL-6) and anti-inflammatory factor interleukin-10 (IL-10) were detected by enzyme-linked immunosorbent assay (ELISA). The expression levels of inducible nitric oxide synthase (iNOS) and arginase-1 (Arg-1) in macrophages related to polarization were detected by Western blot assay, and the expression of acetylated nuclear factor-κB p65 (NF-κB p65) was detected to determine whether YH-15 could inhibit the inflammation by inhibiting the nuclear translocations of NF-κB. Results showed as follow: the strains of Pediococcus acidilactici were successfully isolated from feline milk and named YH-15. High concentrations of YH-15 (109 CFU/mL) had no significant effect on macrophage proliferation (P>0.05), but significantly decreased the contents of pro-inflammatory cytokines TNF-α, IL-1β, and IL-6 and significantly promoted the content of anti-inflammatory factor IL-10 (P<0.05). High concentrations of YH-15 could inhibit the M1-typepolarization of macrophages and induce the M2-type polarization of macrophages. YH-15 significantly decreased the protein expression of NF-κB p65 (P<0.05). In conclusion, YH-15 can induce M2-type polarization of macrophages, resist the formation of LPS-induced M1-type macrophages and the expression of NF-κB p65, and have the effects of preventing and inhibiting inflammation.

目前在饲料禁抗、养殖减抗的形势下,益生菌以高效的保健功能、无毒副作用、无残留、不污染环境等优点被广泛认可,并成为禁抗、减抗后的优选饲料添加剂[1-2]。目前随着益生菌研究的深入,适合畜禽使用的主要益生菌的类型为乳酸菌和酵母菌,其中乳酸菌的应用更为广泛。
乳酸菌是一类能够发酵葡萄糖和乳糖,并能够产生乳酸的细菌,此类细菌的主要特征是革兰氏染色阳性,呈球状或短杆状,不产生芽孢,在无氧和有氧条件下均可生长[1]。乳酸菌作为动物机体内有益的微生物群落,具有调节肠道菌群稳定、促进营养物质吸收以及预防和治疗胃肠道疾病的作用;同时,可激活体内免疫细胞,提高机体免疫力,其在体内定植发酵后,能够产生大量有机酸和抗菌肽等物质,从而抑制有害菌生长[3]。研究表明,乳酸菌可以缓解肠道炎症[4-5],其不仅可以维持肠道上皮的完整性,还可调节宿主免疫力,从而改善肠道炎症。有研究证实,乳酸菌Pediococcus pentosaceus CECT8330菌株可以诱导白细胞介素-10(IL-10)的产生[6],而IL-10主要由M2型巨噬细胞产生,因此推测乳酸菌可能会诱导巨噬细胞向M2型极化。Hua等[7]研究发现,乳酸菌CECT8330在抑制巨噬细胞向M1型转化的同时促进了细胞向M2表型转化,并抑制乙酰化细胞核因子-κB(NF-κB)信号通路的激活,此外其还可以减少上皮细胞的凋亡,修复小鼠的肠道屏障。
乳酸片球菌(Pediococcus acidilactici)是乳酸菌家族中的一员,归属于厚壁菌门、芽孢杆菌纲、乳杆菌目、乳杆菌科、片球菌属,革兰氏染色阳性,球形。该菌分裂后通常成对或以聚集的形式进行排列,呈现或不呈现链状排列[8-9]。该菌不具有运动性,兼性厌氧生长。因此,本研究探讨猫乳源乳酸片球菌菌株对脂多糖(LPS)诱导的小鼠单核巨噬RAW264.7细胞炎症模型的免疫作用及其对NF-κB的蛋白表达的影响,以发掘乳酸片球菌在炎症抑制方面的作用。

1 材料与方法

1.1 试验材料

1.1.1 猫乳样品

用75%酒精棉球擦拭供体猫乳头及周围皮肤后进行采样:先弃去最初产生的2~3滴猫乳,然后使用5 mL高压灭菌后的EP管收集猫乳;收集完成后,2 h内放入-80 ℃冰箱进行冷冻保存。

1.1.2 试剂及仪器

胎牛血清(30044333,Gibco);DMEM完全培养基[赛默飞世尔科技(中国)有限公司,8120365];MRS培养基、细菌DNA提取试剂盒、高效RIPA裂解液(北京索莱宝科技有限公司,M8330、D1600、R0010);LPS、CCK-8试剂、肿瘤坏死因子-α(TNF-α)检测试剂盒、白细胞介素-1β(IL-1β)检测试剂盒、白细胞介素-6(IL-6)检测试剂盒、IL-10检测试剂盒(碧云天生物技术有限公司,022621210706、073020200930、PI326、PI528、PI301、PT512)。
酶标仪[A51119500C,赛默飞世尔科技(中国)有限公司];PCR扩增仪(S1000, Bio-Rad,美国),凝胶成像仪(Universal Hood II,Bio-Rad,美国);光学显微镜(MD500,LEICA,德国);电泳仪(DYY-7C,北京六一仪器厂)。

1.1.3 试验菌株及细胞

小鼠单核巨噬细胞(RAW264.7细胞)购于Cellverse公司,货号:iCell-m047。

1.2 试验方法

1.2.1 乳酸菌的分离、纯化及保存

取出冷冻的猫乳样本,温水解冻后取0.5 mL加入到9.5 mL的MRS肉汤中,随后放入37 ℃温箱中培养48 h。取100 μL培养后的猫乳滴加在MRS琼脂上并将其均匀地涂布在培养基表面,于37 ℃温箱中厌氧培养24 h。培养后,从培养基中挑选菌落光滑、外观呈白色或乳白色的菌落,进行革兰氏染色并镜检观察。滴加2%过氧化氢于载玻片上并混合从培养基中挑取的单菌落,观察有无气泡产生。选择过氧化氢酶阴性、革兰氏染色阳性的菌株于MRS琼脂上进行3次划线以进行菌株的纯化。纯化处理后,挑取单菌落接种至MRS肉汤中,于37 ℃温箱中厌氧培养24 h后,将菌液振荡混匀,并按照6∶4的比例将细菌悬液于50%灭菌甘油中混合,将其置于冻存盒中在-80 ℃冰箱中进行储存,以供后续试验使用。

1.2.2 乳酸菌的鉴定

使用索莱宝细菌基因组DNA提取试剂盒提取试验细菌的DNA;16S rDNA PCR扩增及鉴定使用细菌通用引物,上游引物27F:5'-GAGAGTTTGATCCTGGCTCAG-3',下游引物1492R:5'-TACGGCTACCTTGTTACGAC-3'。PCR反应体系为50 μL:Taq Reaction Buffer(10×) 5 μL,PCR Dye 5 μL,dNPTs 1 μL,TaqDymerase 0.5 μL,DNA模板2 μL,27F 2 μL,1492R 2 μL,加ddH2O补充至50 μL。
PCR扩增首先进行95 ℃的预变性处理,持续5 min。然后进行30个循环,每个循环包括3个步骤:在95 ℃下变性30 s;在55 ℃下退火30 s;在72 ℃下延伸90 s。然后在72 ℃下延伸7 min,并进行20 ℃、3 min的末端延伸。使用1%琼脂糖凝胶电泳来检测PCR产物,并将其送到上海生工生物工程技术服务有限公司北京分公司进行测序。

1.2.3 乳酸菌胃肠通过性评估

1.2.3.1 耐酸试验

将试验菌株加入到MRS肉汤中,于37 ℃温箱中厌氧培养3代,将活化第3次的菌液用稀释平板涂布法进行计数,将菌液浓度调整至1×10⁸ CFU/mL。取调整浓度后的菌液100 μL加入到9.9 mL盐酸处理后的MRS肉汤(pH 3.0)中,同时以未经盐酸处理的MRS肉汤作为阴性对照,于37 ℃温箱中厌氧培养,0、2 h取试验菌液各100 μL进行梯度稀释(10-6~10-1 CFU/mL),每个梯度取100 μL滴加在MRS琼脂表面,随后将菌液均匀涂布,每个浓度重复3次,置于37 ℃温箱中培养24 h,利用平板计数法进行计数,计算细菌存活率的公式如下:
存活率(%)=(A1/A0)×100。
式中:A1为试验细菌经过酸化处理的MRS培养基(pH 3.0)培养2 h的活菌数;A0为试验细菌经过酸化处理的MRS培养基(pH 3.0)培养0 h的活菌数。

1.2.3.2 耐胆盐试验

根据1.2.3.1的试验方法,将试验菌株接种于含0.3%胆盐的MRS肉汤中37 ℃培养4 h,计算细菌存活率的计算公式如下:
存活率(%)=(B1/B0)×100。
式中:B1为试验细菌经过含0.3%牛胆盐MRS培养基培养4 h的活菌数;B0为试验细菌经过含0.3%牛胆盐MRS培养基培养0 h的活菌数。

1.2.4 溶血试验

取活化3代后的菌液在血平板上进行划线,阳性对照组设置为大肠杆菌组,37 ℃温箱培养24 h后,根据是否出现典型溶血环来判断乳酸菌的安全性。

1.2.5 基于16S rRNA的系统发育树

将基因在NCBI数据库进行比对,设置参数identify>95。然后选取相似度较高的20条16S rRNA序列,并利用MEGA11软件进行序列比对后,构建系统发育树[10]

1.2.6 细胞培养

RAW264.7细胞传代培养于含10%胎牛血清的DMEM培养基中,于5% CO2 的培养箱中37 ℃进行培养[11]。待细胞传代3次以上时进行细胞计数,并接种于12孔板中进行培养,细胞密度达到105个/孔时进行分组处理。

1.2.7 CCK-8法检测LPS与乳酸菌对细胞增殖的影响

取对数生长期的细胞进行计数,以104个/孔均匀地接种于96孔板中,待细胞贴壁后,弃去板内原有培养基,对照组加入100 μL无血清无双抗DMEM培养基,试验组分别加入1、10 μg/mL的LPS与107、108、109 CFU/mL的经DMEM重悬后筛选出的菌株菌液100 μL至96孔板中,每个样品重复6个孔。放入培养箱共孵育12 h后,每孔加入10 μL CCK-8试剂,避光操作。放入温箱后继续孵育2 h。孵育完成后,酶标仪于450 nm处测量吸光度(OD)值,并根据下列公式计算细胞存活率:
细胞存活率(%)=[(试验孔OD值-空白孔OD值)/(对照孔OD值-空白孔OD值)]×100。

1.2.8 酶联免疫吸附法(ELISA)检测

试验共分为5组即阴性对照组(Control组)、阳性对照组(LPS组)、YH-15益生菌低剂量治疗组[YH-15(107 CFU/mL)组]、YH-15益生菌中剂量治疗组[YH-15(108 CFU/mL)组]、YH-15益生菌高剂量治疗组[YH-15(109 CFU/mL)组]。各组细胞在试验前均进行饥饿处理24 h以排除血清对试验结果的干扰。取细胞培养上清液12 000×g离心10 min,取其上清为样本。设置标准品孔和样本孔,标准品孔及样本孔各加不同浓度的标准品及样本50 μL,空白孔不加。除空白孔外,标准品孔和样本孔中加入辣根过氧化物酶(HRP)标记的检测抗体100 μL,用封板模封住反应孔,37 ℃温箱孵育60 min。弃去液体,吸水纸拍干,每孔加入洗涤液350 μL,静置1 min,甩去洗涤液,吸水纸上拍干,如此重复5次。每孔加入底物A、B各50 μL,37 ℃避光孵育15 min。每孔加入终止液50 μL,于15 min内,在450 nm波长处测定各孔OD值。计算公式如下:
样本含量(pg/mL)=k(pg/mL)×OD值。
式中:k为标准品含量与标准品OD值的比值。

1.2.9 Western blot检测

收集药物处理后的细胞,放置苯甲基磺酰氟(PMSF)对其进行裂解。待细胞裂解后,使用冷冻离心机4 ℃、14 000×g离心20 min。离心后,将蛋白样品与5×上样缓冲液按4∶1体积混合,100 ℃煮沸10 min。随后进行十二烷基硫酸钠-聚丙烯酰胺电泳(SDS-PAGE),电泳后将其转移至聚偏二氟乙烯(PVDF)膜,用5%脱脂奶粉封闭2 h后,加入一抗(1∶1 000) 4 ℃过夜孵育,Tris-HCl缓冲溶液(TBST)洗涤3次。二抗孵育1 h,TBST洗膜3次后,用免疫印迹化学发光试剂(ECL)显影[12]

1.3 统计与分析

试验结果采用Graph Pad Prism 9软件进行数据处理,2组间比较采用独立样本t检验,多组间比较采用单因素方差分析,P<0.05为差异显著。

2 结果与分析

2.1 乳酸菌的分离鉴定

2.1.1 猫乳源益生菌的分离及鉴定
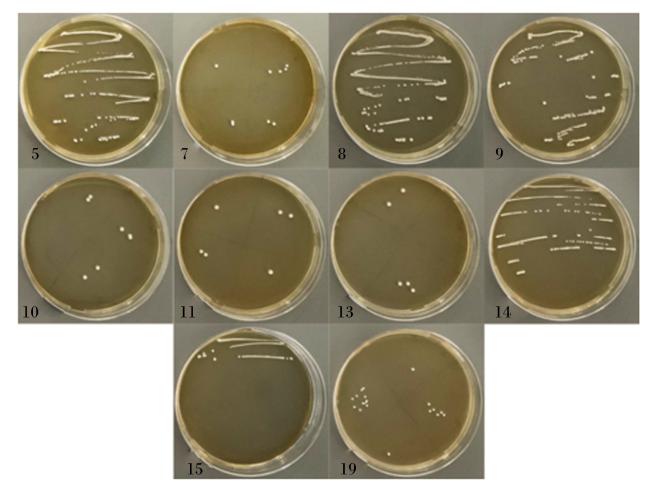
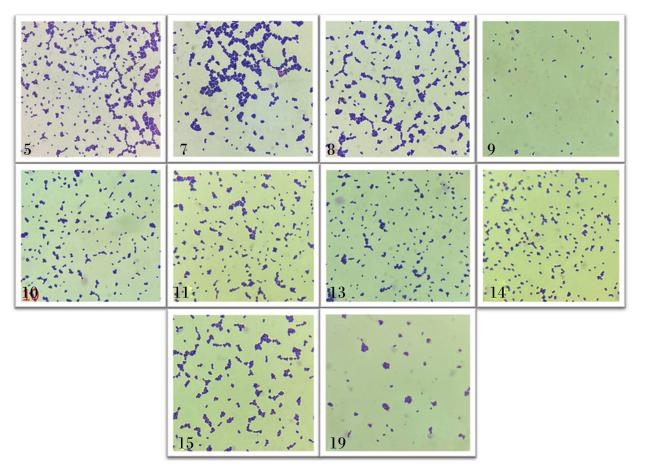
从4只供体猫中收集到共78份样本,对样本中的细菌进行分离培养,挑选出菌落表面光滑、外观呈现白色或乳白色的菌落和过氧化氢酶触试验阴性的菌株进行筛选,共筛选出100株疑似乳酸菌菌株,其中10株试验菌株革兰氏染色呈现阳性,菌株编号分别为5、7、8、9、10、11、13、14、15、19,菌落形态如图1所示。菌体呈现球状,成对或成团排列,符合乳酸菌基本形态特征,见图2。上述菌株过氧化氢酶触试验的结果均为阴性。
图1 主要菌落的形态学表现

标注数字为菌株编号。图2~图6同。

Fig.1 Morphological manifestations of major colonies

The number marked is the strain number. The same as Fig.2 to Fig.6.

图2 10株试验菌株的显微形态观察

Fig.2 Microscopic morphology observations of 10 test strains(100×)

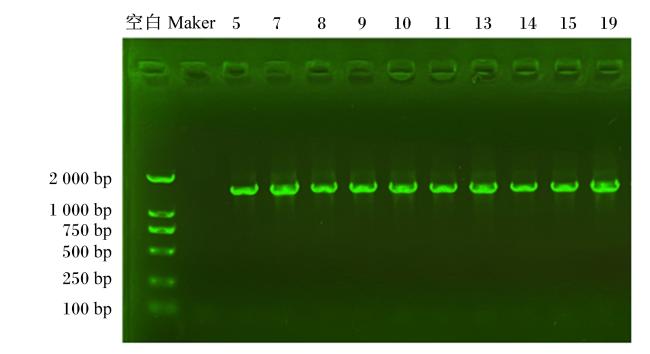
使用DNA提取试剂盒提取上述菌株的基因组,经PCR扩增均得到约1 500 bp的目的条带(图3)。试验结果表明,PCR产物符合要求,将上述PCR产物送检测序。根据返回的测序结果,与NCBI数据库进行同源性比对,确定菌种类型。
图3 部分菌株的PCR电泳产物

Fig.3 Electrophoresis of PCR products of some strains

对前期筛选出的100株待测乳酸菌进行DNA提取并测序,测序结果与NCBI数据库比对显示:部分菌株为金黄色葡萄球菌(Staphylococcus aureus)、表皮葡萄球菌(Staphylococcus epidermidis)、巴黎链球菌(Streptococcus lutetiensis)和马肠链球菌(Streptococcus equinus),这些菌株占所分离菌株的90%。其中有10株乳酸片球菌(NCBI同源比对结果如表1所示)。乳酸片球菌符合饲料添加剂目录规定,将10株细菌的序列提交到GenBank,获得的登录号为:OQ730535~OQ730544。对其编号依次命名为YH-5、7、8、9、10、11、13、14、15和19用于后续的研究。
表1 乳酸菌16S rDNA序列同源比对结果

Table 1 Homology comparison results of 16S rDNA sequences of lactic acid bacteria

菌株编号Strain number 鉴定结果Appraisal results 同源性Homology/%
YH-5 乳酸片球菌 99.79
YH-7 乳酸片球菌 99.86
YH-8 乳酸片球菌 100.00
YH-9 乳酸片球菌 99.80
YH-10 乳酸片球菌 99.86
YH-11 乳酸片球菌 99.86
YH-13 乳酸片球菌 99.86
YH-14 乳酸片球菌 99.93
YH-15 乳酸片球菌 99.86
YH-19 乳酸片球菌 99.86

2.1.2 乳酸菌的胃肠通过性评估

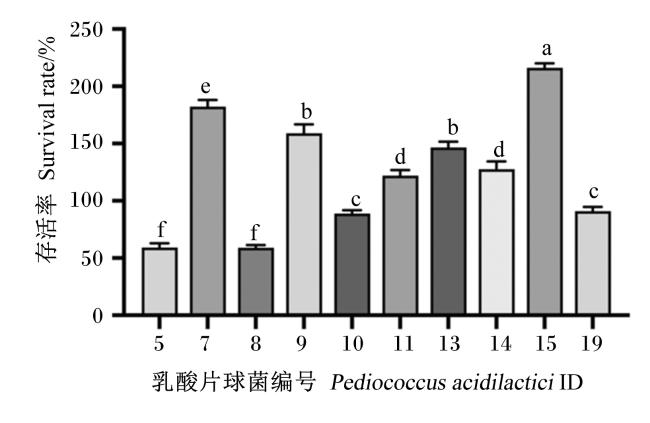
在pH 3.0条件下,从猫乳样本中分离出的10株乳酸片球菌孵育2 h后,菌株YH-7、9、11、13、14、15的存活率超过了100%,其中耐酸性表现最好的菌株为YH-15,其存活率显著高于其他菌株(P<0.05),如图4所示。
图4 10株乳酸片球菌菌株的耐酸性评估

数据柱标有相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。图5同。

Fig.4 Assessment of acid resistance in 10 Pediococcus acidilactici strains

The same lowercase letters in data columns indicate no significant difference (P>0.05), while differnet lowercase letters indicate significant difference (P<0.05). The same as Fig.5.

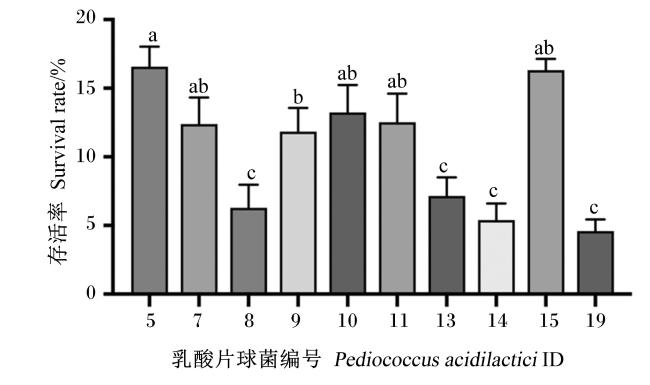
多次重复耐胆盐试验,结果表明:所有分离菌株均对0.3%胆盐敏感,4 h检测活菌数少。10种试验菌株在含浓度为0.3%的胆盐MRS培养基中培养4 h后存活率明显下降,存活率最高的3个菌株分别为YH-5、15、10,如图5所示。
图5 10株乳酸片球菌菌株的耐胆盐性能评估

Fig.5 Assessment of bile salt tolerant performance of 10 Pediococcus acidilactici strains

因此,YH-15的耐酸耐胆盐性能显著优于其他乳酸片球菌,胃肠通过性能优异,可作为后续试验的第1候选菌株。

2.1.3 溶血试验

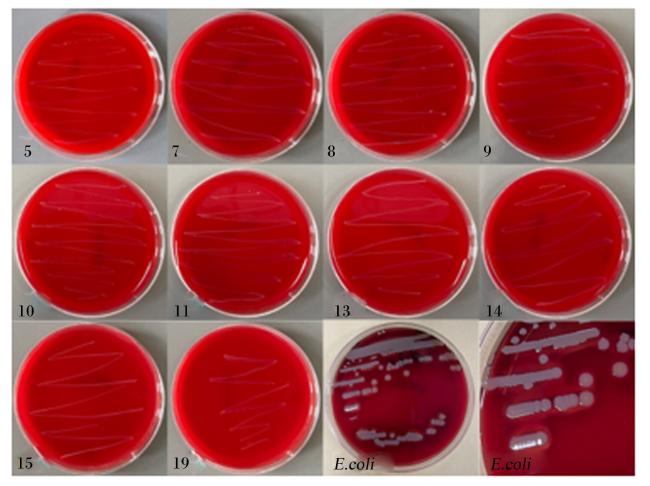
溶血性试验结果显示,本试验选取的10株乳酸片球菌菌株均未出现溶血现象,表明这10株乳酸片球菌是安全的,能够为之后的功能试验提供安全性保障(图6)。
图6 10株乳酸片球菌菌株的溶血性评估

E.coli:大肠杆菌 Escherichia coli

Fig.6 Hemolytic assessment in 10 Pediococcus acidilactici strains

2.1.4 基于16S rRNA的系统发育树

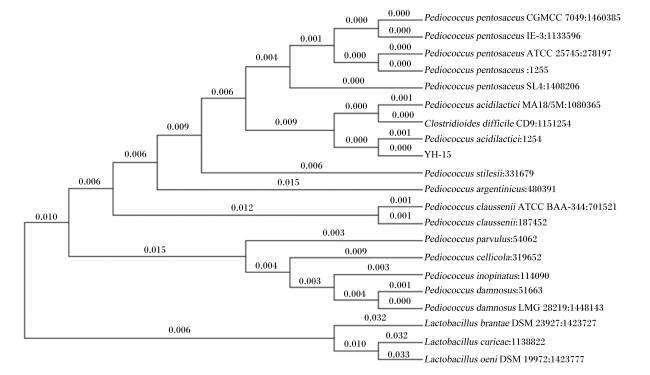
在NCBI数据库中对YH-15的16S rRNA进行比对,设置参数identify>95。选取相似度较高的20条16S rRNA序列,并利用MEGA11软件进行序列比对后,构建系统发育树。结果显示(图7),菌株YH-15与乳酸片球菌:1254亲缘关系最为相近,相似度为98.6%。
图7 基于16S rRNA的系统发育树

Pediococcus pentosaceus:戊糖片球菌;Pediococcus acidilactici:乳酸片球菌;Clostridioides difficile:艰难梭菌;Pediococcus stilesii:斯氏片球菌;Pediococcus argentinicus:阿根廷片球菌;Pediococcus claussenii:克劳森球菌;Pediococcus parvulus:微小片球菌;Pediococcus cellicola:酒窖片球菌;Pediococcus inopinatus:意外片球菌;Pediococcus damnosus:有害片球菌/啤酒片球菌;Lactobacillus brantae:德氏乳杆菌;Lactobacillus curieae:鼠乳杆菌。

Fig.7 Phylogenetic tree based on 16S rRNA

2.2 乳酸片球菌对炎症模型的作用

2.2.1 YH-15菌株及LPS对巨噬细胞增殖的影响

本试验采用CCK-8法观察不同浓度的LPS及YH-15菌株处理RAW264.7细胞后细胞增殖的变化,用细胞存活率来表示,结果见表2。与对照相比,107~109 CFU/mL的YH-15对RAW264.7细胞存活率无显著影响(P>0.05)。不同浓度的LPS作用于RAW264.7细胞,10 μg/mL的LPS显著降低细胞存活率(P<0.05),1 μg/mL的LPS对细胞存活率无显著影响(P>0.05)。因此,后续将采用1 μg/mL LPS进行相关试验。
表2 YH-15及LPS对RAW264.7细胞增殖的影响

Table 2 Effects of YH-15 and LPS on proliferation of RAW264.7 cells %

项目
Item
处理Treatments
对照
Control
LPS
(1 μg/mL)
LPS
(10 μg/mL)
YH-15
(107 CFU/mL)
YH-15
(108 CFU/mL)
YH-15
(109 CFU/mL)
细胞存活率
Cell survival rate
100.00±2.52a 98.62±3.75a 80.88±4.12b 93.41±6.01a 95.65±6.35a 100.70±0.73a

同行数据肩标不同小写字母表示差异显著(P<0.05)。

In the same row, values with different small letter superscripts mean significant difference (P<0.05).

2.2.2 YH-15菌株及LPS对细胞炎性因子含量的影响

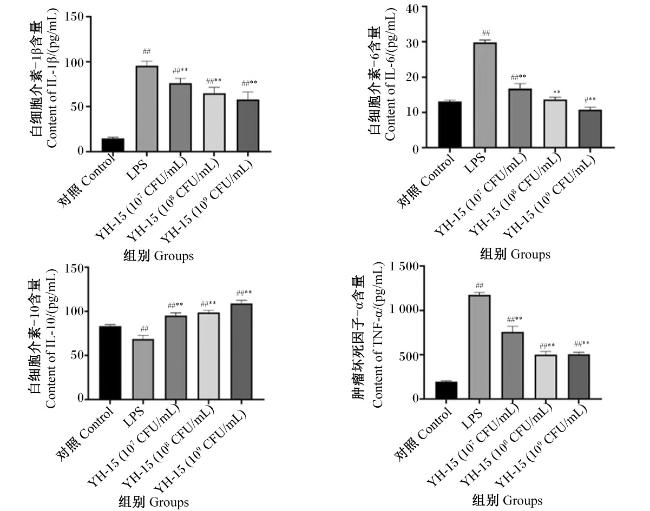
图8所示,与LPS组相比,不同浓度YH-15组细胞的TNF-α、IL-1β、IL-6的含量极显著降低(P<0.01),其中浓度为109 CFU/mL YH-15组IL-1β的含量与LPS处理前接近,可见YH-15有显著抑制炎症的作用。与LPS组相比,经YH-15处理后的巨噬细胞IL-10含量极显著升高(P<0.01),与对照组相比差异极显著(P<0.01)。
图8 YH-15及LPS对RAW264.7细胞炎性因子含量的影响

数据柱中标有#表示与对照组相比差异显著(P<0.05),##表示与对照组相比差异极显著(P<0.01);数据柱中标有*表示与LPS组相比差异显著(P<0.05),**表示与LPS组相比差异极显著(P<0.01)。下图同。

Fig.8 Effects of YH-15 and LPS on contents of inflammatory factors in RAW264.7 cells

The data column marked with # indicates significant differences compared with the control group (P<0.05), while ## indicates extremely significant differences compared with the control group (P<0.01); the data column marked with * indicates significant differences compared with the LPS group (P<0.05), and ** indicates extremely significant differences compared with the LPS group (P<0.01). The same as below.

2.2.3 Western blot法检测YH-15对巨噬细胞极化相关标志物的影响
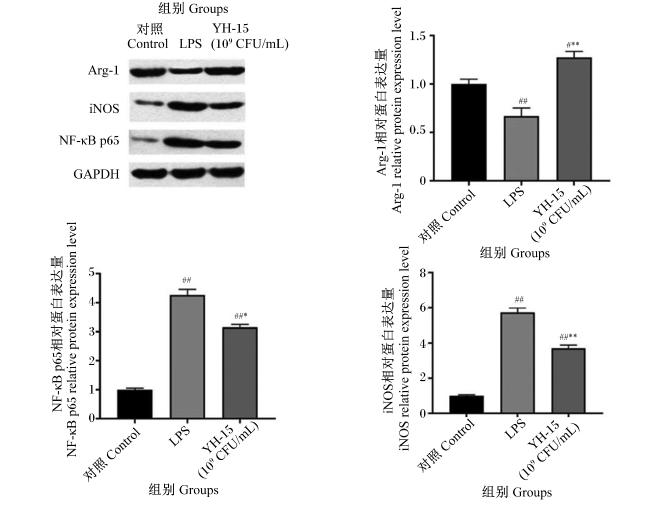
图9可知,经LPS单独处理后,M1极化相关标志物iNOS的蛋白表达量极显著升高(P<0.01),经过LPS和YH-15联合处理相较于LPS组极显著降低(P<0.01)。与对照组相比,LPS组的M2极化标志物Arg1蛋白表达量显著下降(P<0.05),经LPS和YH-15联合处理后,Arg-1蛋白表达量相较于LPS组极显著升高(P<0.01)。炎症因子相关蛋白NF-κB p65经过LPS单独处理后,蛋白表达量相较于对照组极显著升高(P<0.01);经LPS和YH-15共同处理,与LPS组相比,YH-15(109 CFU/mL)组NF-κB p65 蛋白表达量显著降低(P<0.05)。综上所述,YH-15能拮抗LPS诱导的巨噬细胞M1极化。
图9 YH-15及LPS对RAW264.7细胞极化相关蛋白表达的影响

iNOS:诱导型一氧化氮合酶 inducible nitric oxide synthase; Arg-1: 精氨酸酶-1 arginase-1; NF-κB p65:细胞核因子-κB p65 nuclear factor-κB p65;GAPDH:磷酸甘油醛脱氢酶reduced glyceraldehyde-phosphate dehydrogenase。

Fig.9 Effects of YH-15 and LPS on polarization related protein expression in RAW264.7 cells

3 讨论

母乳是哺乳动物最全面的食物,在动物的生长发育中非常重要,母乳来源的益生菌有着更高的安全性和可靠性。本研究从猫乳中分离出YH-15乳酸菌株,基于16S rRNA的系统发育树结果显示,YH-15菌株为乳酸片球菌。溶血试验用于证明细菌在体内外的安全性[13],本试验获得的YH-15未出现溶血现象,证明该菌株的安全性;耐酸耐胆盐试验证明YH-15菌株具有良好的胃肠通过性。
乳酸菌可以定植在宿主的肠道上皮以调控肠道菌群的平衡[14],并能够增加肠道黏膜固有层免疫细胞的数量、改变免疫细胞状态,从而发挥对宿主的免疫调节作用[15]。巨噬细胞是免疫反应中起承上启下作用的桥梁细胞,巨噬细胞M1-M2极化是一个严格控制的过程, 可以在其特定的微环境中相互转化经典活化性巨噬细胞型和替代活化性巨噬细胞型, 整个过程需要信号通路来调节网络。M1型巨噬细胞相比于未极化的巨噬细胞拥有更强的抗原呈递和分泌炎性因子的能力,M2型巨噬细胞则表现出更强大的内吞、抗炎以及促进组织修复的能力[9]。因此, 鉴定乳酸菌与巨噬细胞极化的动态变化并了解其相互作用对于阐明疾病治疗进展至关重要[7]
NF-кB信号通路是巨噬细胞中标志性的转录因子, 激活的NF-кB二聚体主要由Rel家族蛋白p50和p65亚基组成。p65活化可以启动机体的炎症反应, 使巨噬细胞向M1表型极化。乳酸菌可以调节巨噬细胞的NF-κB信号通路, 并对黏膜免疫产生相应的影响, 其分泌的可溶性因子能抑制巨噬细胞NF-κB的表达,从而抑制促炎细胞因子的大量释放, 抑制巨噬细胞向M1表型极化[16]。此外有研究表明, 用乳酸菌的代谢物乳酸(LA)对LPS刺激下的大鼠肠道黏膜微血管内皮细胞进行试验处理后, 发现磷酸化NF-κB抑制因子α/NF-κB抑制因子α(pIκBα/IκBα)和p65的蛋白水平降低,这表明乳酸菌能通过降低IκBα磷酸化来抑制NF-κB的活性,从而降低TNF-αIL-6的mRNA表达水平[17]。故LA能减少NF-κB信号中炎性细胞因子的产生,抑制巨噬细胞向M1型极化。除此之外,Hua等[7]证实,乳酸菌CECT8330抑制巨噬细胞向M1型进行转化的同时促进了细胞向M2表型转化,抑制了巨噬细胞中NF-κB的激活,并减少了小鼠上皮细胞的凋亡。基于此,本研究采用CCK-8法观察各浓度的YH-15对RAW264.7细胞6 h内增殖的影响,检测到1 μg/mL LPS来诱导构建M1型巨噬细胞模型[18]的依据。基于以上细胞炎症模型,使用不同浓度的YH-15处理细胞,利用ELISA测定细胞培养液中炎症因子含量,发现YH-15对RAW264.7细胞具有炎症抑制作用,初步确定了YH-15对RAW264.7细胞极化的影响,为后续试验筛选YH-15的最佳浓度打下基础。
本研究基于M1、M2巨噬细胞活化相关的蛋白iNOS、Arg-1、NF-κB等作为活化指标[19],Wstern blot结果显示:当RAW264.7细胞受到LPS刺激,会极化为特异性M1亚型巨噬细胞,其iNOS及NF-κB蛋白表达量升高,而Arg-1则展现出相比未处理组更低的蛋白表达量。但LPS与YH-15共同处理后的RAW264.7细胞则更倾向于替代活化性巨噬细胞型,其Arg-1的蛋白表达量显著高于对照组及LPS组,而低表达量的iNOS及NF-κB反向证实了这一结果。因此,YH-15可以通过活化巨噬细胞,分泌具有生物活性的细胞因子参与细胞的免疫功能,从而达到调节机体免疫功能的效应[20]
总之,YH-15在不影响巨噬细胞增殖的前提下,同时保护巨噬细胞免于LPS的损伤。其基本原理是通过抑制NF-κB的核转位及iNOS的表达来降低细胞炎症因子TNF-α、IL-1β、IL-6的分泌,从而逆转LPS诱导的RAW264.7细胞向M1型极化,而Arg-1及IL-10的高表达则证实YH-15可促使巨噬细胞由M1型向M2型转化。本课题组一直关注猫乳中营养成分的组成和功能,发现猫乳源乳酸片球菌YH-15在抗炎方面的巨大潜力,下一步将进一步探讨YH-15抗炎作用的具体分子机制,寻找其他更有效的下游分子靶点及信号调控通路,为相关药物开发及宠物营养保健提供理论依据。

4 结论

① 本研究从猫乳中分离出1株乳酸片球菌YH-15,该菌在体外表现出良好的益生菌特性和抗菌能力,且无毒副作用。
② 在细胞试验中乳酸片球菌YH-15可以有效地抑制多种炎性因子的表达,并且还能刺激巨噬细胞分泌抗炎因子。
③ 猫乳源乳酸片球菌YH-15可作为动物益生菌制剂的候选菌株。
[1]
CASTELLONE V, BANCALARI E, RUBERT J, et al. Eating fermented:health benefits of LAB-fermented foods[J]. Foods, 2021, 10(11):2639.

[2]
ALAGAWANY M, ABD EL-HACK M E, FARAG M R, et al. The use of probiotics as eco-friendly alternatives for antibiotics in poultry nutrition[J]. Environmental Science and Pollution Research International, 2018, 25(11):10611-10618.

DOI PMID

[3]
BAI L, KUMAR S, VERMA S, et al. Bacteriocin PJ4 from probiotic Lactobacillus reduced adipokine and inflammasome in high fat diet induced obesity[J]. 3 Biotech, 2020, 10(8):355.

[4]
BIAN X Y, YANG L Y, WU W R, et al. Pediococcus pentosaceus LI05 alleviates DSS-induced colitis by modulating immunological profiles,the gut microbiota and short-chain fatty acid levels in a mouse model[J]. Microbial Biotechnology, 2020, 13(4):1228-1244.

[5]
YU D Y, OH S H, KIM I S, et al. Effects of lactic acid bacteria fermented feed and three types of lactic acid bacteria (L.plantarum,L.acidophilus,B.animalis) on intestinal microbiota and T cell polarization (Th1,Th2,Th17,Treg) in the intestinal lymph nodes and spleens of rats[J]. Animal bioscience, 2023, 36(1):156-166.

[6]
DONG F, XIAO F F, LI X L, et al. Pediococcus pentosaceus CECT 8330 protects DSS-induced colitis and regulates the intestinal microbiota and immune responses in mice[J]. Journal of Translational Medicine, 2022, 20(1):33.

[7]
HUA H Y, PAN C, CHEN X X, et al. Probiotic lactic acid bacteria alleviate pediatric IBD and remodel gut microbiota by modulating macrophage polarization and suppressing epithelial apoptosis[J]. Frontiers in Microbiology, 2023,14:1168924.

[8]
TIAN P J, CHEN Y, QIAN X, et al. Pediococcus acidilactici CCFM6432 mitigates chronic stress-induced anxiety and gut microbial abnormalities[J]. Food & Function, 2021, 12(22):11241-11249.

[9]
JANG H M, KIM J K, JOO M K, et al. Enterococcus faecium and Pediococcus acidilactici deteriorate Enterobacteriaceae-induced depression and colitis in mice[J]. Scientific Reports, 2022, 12(1):9389.

[10]
LEE D Y, SHIN J W, SHIN Y J, et al. Lactobacillus plantarum and Bifidobacterium longum alleviate liver injury and fibrosis in mice by regulating NF-κB and AMPK signaling[J]. Journal of Microbiology and Biotechnology, 2024, 34(1):149-156.

[11]
YANG K M, GE Y F, PALANISAMY S, et al. Cnidium officinale polysaccharide enhanced RAW 264.7 cells activation and NK-92 cells cytotoxicity against colon cancer via NF-κB and MAPKs signaling pathways[J]. International Journal of Biological Macromolecules, 2023, 253(Part 8):127605.

[12]
鲍友利, 曹寅, 吴鸿飞. “瓜蒌-薤白”药对诱导自噬抑制NLRP3炎症小体激活减轻RAW264.7巨噬细胞炎症反应[J]. 中国中药杂志, 2023, 48(10):2820-2828.

BAO Y L, CAO Y, WU H F. “Trichosanthis Fructus-allii-Macrostemonis bulbus” combination inhibits NLRP3 inflammasome activation and reduces inflammatory response in RAW264.7 macrophage by inducing autophagy[J]. China Journal of Chinese Materia Medica, 2023, 48(10):2820-2828. (in Chinese)

[13]
CARDUCCI M, WHITCOMBE A, ROVETINI L, et al. Development and characterization of a hemolysis inhibition assay to determine functionality of anti-streptolysin O antibodies in human sera[J]. Journal of Immunological Methods, 2024,526:113618.

[14]
FU W H, CHEN C, XIE Q, et al. Pediococcus acidilactici strain alleviates gluten-induced food allergy and regulates gut microbiota in mice[J]. Frontiers in Cellular and Infection Microbiology, 2022,12:845142.

[15]
LUO S Y, WANG Y X, KANG X Y, et al. Research progress on the association between mastitis and gastrointestinal microbes in dairy cows and the effect of probiotics[J]. Microbial Pathogenesis, 2022, 173(Pt A):105809.

[16]
KIM K J, KYUNG S, JIN H, et al. Lactic acid bacteria isolated from human breast milk improve colitis induced by 2,4,6-trinitrobenzene sulfonic acid by inhibiting NF-κB signaling in mice[J]. Journal of Microbiology and Biotechnology, 2023, 33(8):1057-1065.

[17]
STANKOVIC M, VELJOVIC K, POPOVIC N, et al. Lactobacillus brevis BGZLS10-17 and Lb. plantarum BGPKM22 exhibit anti-inflammatory effect by attenuation of NF-κB and MAPK signaling in human bronchial epithelial cells[J]. International Journal of Molecular Sciences, 2022, 23(10):5547.

[18]
LIU L L, GUO H M, SONG A M, et al. Progranulin inhibits LPS-induced macrophage M1 polarization via NF-кB and MAPK pathways[J]. BMC Immunology, 2020, 21(1):32.

DOI PMID

[19]
ATRI C, GUERFALI F Z, LAOUINI D. Role of human macrophage polarization in inflammation during infectious diseases[J]. International Journal of Molecular Sciences, 2018, 19(6):1801.

[20]
ZHOU H C, YAN X Y, YU W W, et al. Lactic acid in macrophage polarization:the significant role in inflammation and cancer[J]. International Reviews of Immunology, 2021, 41(1):11-15.

文章导航

/