综述

肠道菌群和黏蛋白2糖基化修饰的互作机制及其营养调控

  • 王晶晶 ,
  • 杨凯 ,
  • 李志青 ,
  • 马晓康 , *
展开
  • 湖南农业大学动物科学技术学院,长沙 410128
* 马晓康,讲师,硕士生导师,E-mail:

王晶晶(2001—),女,山西临汾人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Office editor: 陈鑫

收稿日期: 2024-03-30

  网络出版日期: 2024-09-08

基金资助

国家自然科学基金青年基金项目(32202692)

湖南省自然科学基金青年基金项目(2022JJ40176)

Interaction Mechanism between Intestinal Flora and Mucin 2 Glycosylation Modification and Its Nutritional Regulation

  • WANG Jingjing ,
  • YANG Kai ,
  • LI Zhiqing ,
  • MA Xiaokang , *
Expand
  • College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
* lecturer, E-mail:

Received date: 2024-03-30

  Online published: 2024-09-08

摘要

黏蛋白(Muc)2是组成肠道黏液屏障的主要成分,糖基化修饰是Muc2发挥作用的决定性因素,同时肠道共生菌是影响糖基化程度的重要影响因素。糖基化修饰决定Muc2的构象和理化特性、保护Muc2的完整性并且影响肠道共生菌的定植,反过来肠道共生菌可以调节Muc2等Muc的糖基化修饰。本文将重点介绍肠道共生菌和Muc2糖基化修饰的互作机制及其营养调控,旨在为仔猪肠道Muc2糖基化修饰的营养干预及相关研究提供参考。

本文引用格式

王晶晶 , 杨凯 , 李志青 , 马晓康 . 肠道菌群和黏蛋白2糖基化修饰的互作机制及其营养调控[J]. 动物营养学报, 2024 , 36(9) : 5523 -5534 . DOI: 10.12418/CJAN2024.471

Abstract

Mucin (Muc) 2 is the main component of intestinal mucus barrier. Glycosylation modification is the decisive factor of Muc2, and intestinal symbiosis is an important factor affecting the degree of glycosylation. Glycosylation modification determines the conformational and physicochemical properties of Muc2, protects the integrity of Muc2, and affects the colonization of intestinal symbiotic bacteria, which in turn can regulate the glycosylation modification of Muc such as Muc2. This paper focuses on the interaction mechanism and nutritional regulation of intestinal symbiotic bacteria and Muc2 glycosylation modification, aiming to provide theoretical basis for nutritional intervention and related studies of intestinal Muc2 glycosylation modification in piglets.

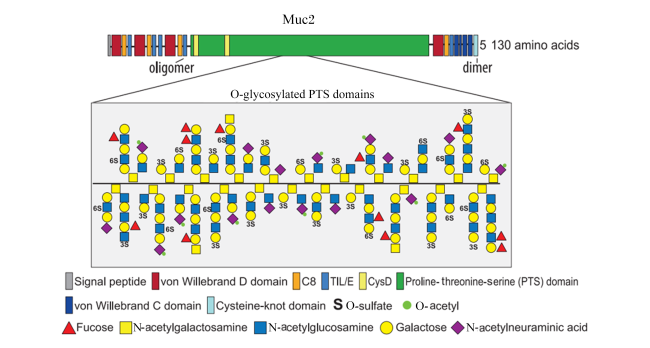
黏液是黏膜屏障的主要成分,主要由高度糖基化的黏蛋白(Muc)组成[1],以Muc2为主的Muc由杯状细胞分泌,是组成肠道黏液屏障的物质基础,是抵御肠道致病菌和外源性有害物质入侵的第1道天然屏障[2-3]。Muc2相对分子质量的80%由O-糖链组成,在Muc合成过程中,富含丝氨酸、苏氨酸和脯氨酸的蛋白质通过内质网和高尔基体加工,在各种糖基转移酶的协同作用下形成O-糖基化[4]。Muc在分泌之前储存在杯状细胞中,并在其C端和N端分别以二聚体和三聚体的形式形成共价键(图1)[5-7]。层层网状结构覆盖肠道,聚集成1层凝胶状液体,对肠道具有保护和润滑作用[8-9]
图1 肠道黏液的主要组成成分和O-聚糖的细菌来源:Muc2

Muc2:黏蛋白2 mucin 2;oligomer:三聚体;dimer:二聚体;5 130 amino acids:5 130个氨基酸;O-glycosylated PTS domains:被O-糖基化的PTS结构域;Signal peptide:信号肽;Von Willebrand D domain:VWD结构域;CysD:CysD结构域(ATP硫酸化酶基因片段) CysD domain (ATP sulfase gene fragment);Proline-threonine-serine(PTS)domain:脯氨酸-苏氨酸-丝氨酸(PTS)结构域;Von Willebrand C domain:VWC结构域;Cysteine-knot domain:CK结构域(半胱氨酸结构域) CK domain (cysteine domain);O-sulfate:O-聚糖硫酸化;O-acetyl:O-聚糖乙酰化;Fucose:岩藻糖;N-acetylgalactosamine:N-乙酰半乳糖胺;N-acetylglucosamine:N-乙酰葡萄糖胺;Galactose:半乳糖;N-acetylneuraminic acid:N-乙酰神经氨酸。

Fig.1 Main component of intestinal mucus and bacterial source of O-glycans: Muc2[15]

糖基化是决定Muc功能作用的关键因素。Bergstrom等[10]研究发现,核心的1-和3-衍生的O-聚糖的缺失影响整个结肠的黏液层结构和结肠炎的易感性,O-聚糖可以保护Muc2免受细菌蛋白酶介导的降解。糖基化也是维持Muc延伸构象的关键,它可以通过影响pH和离子强度直接或间接地改变Muc的构象,从而改变Muc的理化性质[11]。聚糖结构的差异也可能通过影响Muc2的免疫原性来干扰肠道微生物的定植,从而调节肠道微生物的组成[10,12-13]。同时,高度糖基化的Muc存在多个O-聚糖表位,可以作为共生菌的附着点。在缺乏膳食纤维的情况下,共生菌以聚糖为能量来源,产生短链脂肪酸(SCFAs)[13-14],而SCFAs反过来调节Muc的分泌并维持上皮屏障的完整性[13]。结肠黏液层和肠道微生物群保持相互作用,这对黏液层的发育和肠道微生物定植至关重要。
这些研究表明,了解Muc更新以及共生菌利用聚糖之间的动态平衡对理解肠道屏障功能至关重要。但关于肠道菌群与Muc2糖基化修饰之间关系的研究很少,因此本文将重点介绍肠道共生菌和Muc2糖基化修饰的互作机制及其营养调控。

1 Muc2概述

1.1 Muc2结构特征及其主要组成成分

肠道Muc是一类高度糖基化的分泌型Muc,其单体是含有N端氧化糖基化域和C端半胱氨酸富含域的同源寡聚体。Luis等[15]对Muc2结构的描述见图1,中心脯氨酸-苏氨酸-丝氨酸(PTS)序列编码在1个大外显子中,由98~105个不完美重复片段组成,这些片段由23个氨基酸组成。羟基氨基酸(苏氨酸和丝氨酸)通常被O-糖基化,从而形成瓶刷型的棒状糖肽结构域,称为Muc结构域。Muc结构域的蛋白核心以丰富的脯氨酸、苏氨酸、丝氨酸为特征,这些氨基酸的单字母编码被称为PTS结构域。Muc包含3个特征:左边是由3个Von Willebrand D(VWD)结构域组成的长N端;中间是被1个或者多个CysD结构域(ATP硫酸化酶基因片段)中断的PTS序列;右边是由1个VWD、3.5个Von Willebrand C(VWC)结构域和1个半胱氨酸结构域(cysteine-knot domain,CK结构域)组成的C端。肠道分泌型Muc以Muc2为主,还包括Muc5AC、Muc5B、Muc6等。 Buisine等[16]研究发现,正常人体回肠中Muc2占24.8%、Muc5AC占3.6%、Muc5B占6.1%、Muc6占5.1%。张海玲等[17]研究发现,正常结肠黏膜中,Muc1、Muc5ACMuc6均未表达(阳性表达率0),而检测到Muc2阳性表达(阳性表达率100%)。Muc2是1种由约5 200个氨基酸和约80%的聚糖组成的糖蛋白,其中大部分聚糖是O-聚糖(图1)[15]。Muc2单体包含多达1 600个O-聚糖和30个N-聚糖,提供超过3 300个末端糖残基,这是一个供共生菌相互作用和利用的巨大聚糖阵列。

1.2 Muc2在肠道屏障上的功能

Muc2是组成肠道黏液屏障的主要物质基础,是抵御肠道致病菌和外源性有害物质入侵的第1道天然屏障。Muc2等Muc参与传递免疫调节信号来削弱肠道抗原的免疫原性,降低肠腔内细菌和食物抗原对肠上皮细胞的侵害[10,18-19]。Muc2形成的肠道黏液层与肠上皮细胞、微生物群和宿主免疫防御之间呈动态相互作用,维持肠黏膜稳态[12]。然而,Muc表达的损害导致黏液分泌减少、黏液层变薄、黏液降解和渗透性的增加,以及Muc糖基化谱的改变,使共生细菌和致病菌能够到达表面上皮,从而引起感染和炎症[20]
一些Muc可以调节宿主抗菌肽的特性,以维持体内平衡,避免病原体的侵袭和感染。同时,Muc分泌减少也会导致机体防御功能下降。例如,Muc2已被证明可以诱导广谱抗菌肽BD-2的表达,此抗菌肽来源于人类结直肠癌细胞中HT-29细胞系。溃疡性结肠炎(UC)患者肠道中Muc分泌减少,肠道黏液层变薄且不连续[21];在杯状细胞内质网内可发现堆积有部分合成或折叠错误的Muc,可引起内质网应激,使成熟Muc分泌减少[21]Muc2表达缺失是结直肠癌不良结局的预测因子之一,在人类结直肠癌患者的肠道组织中,Muc2的表达水平呈明显下降趋势[22]。活动性UC患者杯状细胞耗竭,黏液层变薄,进一步分析发现,聚合Muc的比例显著下降,Muc结构也发生了变化,表现为糖基化减少,寡糖侧链缩短,硫酸化减少[23]。而在克罗恩病患者肠道中则发现Muc2分泌增加,但其寡糖链同样缩短[21]
此外,Muc2具有抗炎特性,有助于胃肠道环境的耐受性[19]。Muc2的另一种防御机制是通过清除黏液来减少定植从而抑制肠道中的致病性感染[24]。已知病原体相关的分子模式[如脂多糖(LPS)或肽聚糖]可通过激活Ras信号通路诱导Muc2、Muc5AC和Muc5B的产生[25]。在感染的情况下,机体受到刺激会促使Muc2的产生,黏液清除增强,从而冲洗病原体。同样,Muc16和Muc17的存在也能够通过位阻阻止上皮细胞的黏附和随后的感染,分别阻止金黄色葡萄球菌和肠侵入性大肠杆菌在胃肠道的定植[26-27]。在机体发生炎症期间,Muc可作为胃肠道屏障功能障碍的介质,Breugelmans等[2]研究发现,炎症性肠病和结直肠癌患者中结肠分泌的黏液层主要由Muc2表达组成,少部分由Muc5b表达组成,这反映了Muc防御作用在抑制炎症反应中是必不可少的。这一过程在Muc2缺陷小鼠身上得到了清楚的证明,这些小鼠发生结肠炎(以结肠淋巴细胞浸润增加和促炎细胞因子浓度升高为特征),并自发地患胰腺癌或存在肠道沙门氏菌感染[20,28]

2 糖基化修饰及其对Muc2功能的影响

2.1 Muc2的糖基化修饰和主要聚糖结构

糖基化是Muc2转录翻译后的加工修饰,也是Muc2发挥功能作用的决定性因素。Muc2、Muc5AC等转录、翻译成蛋白后需经过一系列的修饰如二硫键的形成、糖基化等才能成为成熟具有功能的Muc。Muc的糖基化包括O型、N型糖链的合成,此过程是在多种糖基转移酶催化下完成的。例如,Muc2蛋白相对分子质量的80%由O-糖链组成,Muc2的功能由其糖基化程度和类型决定。杯状细胞质核糖体翻译的Muc2单体转移至内质网上通过分子间二硫键结合成二聚体,接着被转移到高尔基体在一系列糖基转移酶催化下进行O-糖基化。哺乳动物中的Muc O-糖基化始于N-乙酰半乳糖胺(GalNAc)残基与蛋白质骨架上丝氨酸和苏氨酸残基的羟基连接(人类O-糖基化的主要启动物质是GalNAc-T1、GalNAc-T2和GalNAc-T3),这被拉长成4个不同的核心结构(Core)。这些核心结构通过加入GalNAc、半乳糖(Gal)和N-乙酰葡萄糖胺(GlcNAc)进一步拉长,通常由硫酸盐、岩藻糖(Fuc)和N-乙酰神经氨酸(Neu5Ac)残基终止[15](图1)。小鼠小肠和人体乙状结肠的Muc中大多数是唾液酸化和硫酸化聚糖[29]
核心结构的丰度在物种间存在差异,在小鼠中以Core 1和Core 2结构为主,而在人类中以Core 3和Core 4结构为主[30]。Muc2以核心1β1-3半乳糖氨基转移酶(C1GalT1或T-合酶)和核心3β1-3N-乙酰氨基葡萄糖转移酶(C3GnT)进行O-糖基化可以分别形成Core 1和Core 3结构,在此基础上,Core 1和Core 3分别在GCNT3基因编码的Core 2/4 β1-6N-乙酰氨基葡萄糖转移酶(C2/4GnT)催化下衍生出Core 2和Core 4结构[31]。Core 1、Core 2、Core 3、Core 4结构聚糖在肠道Muc2中最常见,但其分布可能受物种、肠段、饲粮和微生物等因素的影响而产生差异。例如,Core 3结构是在人体肠道Muc2中最主要的聚糖结构,而在小鼠十二指肠、空肠、回肠中Core 2结构占主导地位,结肠中则以Core 1和Core 3为主[9]。Vignesh等[31]报道了猪肠道中最常见的聚糖结构为Core 2和Core 4,在面临沙门氏菌和螺旋体感染时Core 2的比例会显著上升。

2.2 糖基化修饰决定Muc2的构象和理化特性

Muc作为一种聚合物,呈现2种构象,等向折叠的无规则螺旋状和非等向延伸的无规则螺旋状。糖基化是维持延伸构象的关键,可直接或间接通过影响pH和离子强度而改变Muc的构象,进而使Muc的理化特性发生改变[11,32]。同时,Muc2的稳定性,如热稳定性、酶稳定性和构象稳定性,可能受到聚糖结构的影响[33]。此外,聚糖结构的不同还可通过影响Muc2的免疫原性而干预肠道微生物的定植,进而调节肠道微生物的组成[10,13,30]

2.3 糖基化修饰保护Muc2的完整性

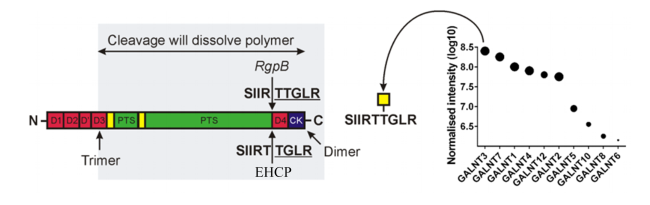
O-聚糖保护Muc2免受细菌蛋白酶介导的降解,黏液蛋白型O-糖聚糖的缺失使Muc2更容易受到细菌来源的蛋白水解酶降解,从而丧失了保护黏膜免受细菌诱导的炎症防御屏障。Arike等[18]研究发现,与小鼠Muc2相比,人类Muc2在三聚体和二聚体之间有1个对特定蛋白酶更敏感的位点(Muc2蛋白核心)。在此区间之外的任何地方切割都不会导致Muc2聚合物网络的裂解。对溶组织芽孢杆菌半胱氨酸蛋白酶(EHCP)的研究表明,如果第2个苏氨酸未被O-糖基化,EHCP能够在IRT↓T序列上切割Muc2蛋白核心[18,34]。然而,该糖基化位点仅被肽基GalNAc转移酶3(GALNT3)糖基化[35],同时它是最丰富的半乳糖氨基转移酶(GALNT)[36],这表明这种特异性转移酶可能对人类特别重要。据统计,只有约20%的溶组织芽孢杆菌感染者会患上侵袭性疾病,这可能与GALNT3的糖基化水平有关。完全缺乏GALNT3的个体患有家族性肿瘤钙化症[37],这是一种罕见的疾病,患者同时伴有高磷血症和异位钙化,缺乏特异性的O-糖基化导致蛋白酶加工异常[38]。这些人缺乏GALNT3可能使他们更容易感染溶组织芽孢杆菌。牙龈卟啉单胞菌可以产生一种精氨酸牙龈卟啉菌蛋白酶B(RgpB),可以将Muc结构域从溶肠杆菌位点IR↓TT切割1个氨基酸[18,35],但是这种切割也被GALNT3的糖基化所阻断[18](图2)。
图2 蛋白酶切割Muc2示意图及GALNT的归一化强度

Cleavage will dissolve polymer:在灰色区域中切割将会导致Muc2的裂解 cutting in the gray area will result in cleavage of Muc2;Trimer:三聚体;EHCP:溶组织芽孢杆菌半胱氨酸蛋白酶 Entamoeba histolytica cysteine protease;RgpB:精氨酸牙龈卟啉菌蛋白酶B arginine porphyromonas gingivalis protease B;Dimer:二聚体;Normalised intensity(log10):归一化强度(log10);D1、D2、D3、D4:VWD结构域 Von Willebrand D domain;CK:CK结构域 cysteine-knot domain;PTS:脯氨酸-苏氨酸-丝氨酸结构域 proline-threonine-serine domain;GALNT:半乳糖氨基转移酶 galactosaminyltransferase;SIIRTTGLR:Muc2蛋白核心切割位点 Muc2 core cleavage site。

Fig.2 Schematic diagram of cutting Muc2 by protease and normalised intensity strength of GALNT[18]

当Muc2糖基化发生异常时,机体黏液层也会损伤甚至引起不同程度的肠道炎症(表1)。UC是一种主要的炎症性肠病,一般情况下UC患者黏液厚度减少,O-糖基化受损[39-40],而缺乏黏液层Muc2的小鼠会发生自发性结肠炎[41-42],这些都表明了Muc2在黏液功能和体内平衡中的重要作用。另外有研究表明,缺乏C3GnT的小鼠更容易发生化学诱导的结肠炎[10,43],肠上皮细胞C1GalT1或T-合酶的特异性缺失则会导致自发性结肠炎[10,40]。Bergstrom等[10]通过将缺乏肠核心1-衍生的O-聚糖(IEC C1galt1)小鼠与缺乏C3GnT小鼠杂交,生成了1个缺乏肠核心1-和3-衍生O-聚糖(DKO)的新小鼠系,比较缺乏C3GnT、缺乏IEC C1galt1和缺乏DKO小鼠与野生型(WT)仔鼠结肠炎的发展情况,研究结果发现,缺乏IEC C1galt1的小鼠主要在远端结肠发生自发性结肠炎,而缺乏DKO的小鼠在远端和近端结肠都发生自发性结肠炎。夏冰[44]研究发现,腹泻仔猪结肠Muc O-聚糖表现出糖链长度变短、酸性糖丰度降低以及中性糖丰度增加。另外,当人体被幽门螺杆菌感染时,上皮细胞唾液酸合成酶表达上调,导致Muc唾液酸化,不成熟截短聚糖表达增多,糖基化的总量下调[45]。在溃疡性结肠炎患者体内,Muc2糖基化异常特别是硫酸型修饰降低,肠道上皮Toll样受体(TLR)表达增加,黏液利用菌嗜黏蛋白艾克曼菌丰度显著降低,而当结肠炎症缓解时,以上症状也会减轻[44]
表1 肠道O聚糖损失表型与肠道炎症发病模型

Table 1 Intestinal O-glycan loss phenotype and intestinal inflammation pathogenesis model

序号
No.
模型
Model
表型
Phenotype
参考文献
Reference
1 溃疡性结肠炎患者 黏液厚度减少,O-糖基化缺失/
程度下降/糖链缩短
[39-40]
2 黏蛋白2基因缺陷/缺失小鼠 肠道杯状细胞几近枯竭,生长迟缓和明显的体重下降,
上皮细胞变平和溃烂,结构普遍丧失,炎症细胞
增殖,结肠细胞分化减少
[41-42]
3 缺乏C3GnT的小鼠 结肠黏蛋白2表达减少,肠道屏障通透性增加, [10,43]
4 C1GalT1特异性缺失小鼠 黏蛋白水平降低,结肠内黏液层受损 [10,40]
5 缺乏DKO小鼠 DKO减少,内黏液层厚度明显减少 [10]
6 腹泻仔猪 结肠黏蛋白O-聚糖表现出糖链长度变短,
酸性糖丰度降低以及中性糖丰度增加
[44]
7 幽门螺杆菌感染患者 黏蛋白唾液酸化,不成熟截短聚糖表达
增多,糖基化的总量下调
[45]
8 溃疡性结肠炎患者 硫酸型修饰降低,肠道上皮Toll样受体表达
增加,黏液利用菌嗜黏蛋白艾克曼菌丰度显著降低
[44]

C3GnT:核心3β1-3N-乙酰氨基葡萄糖转移酶 core 3 β1-3 N-acetyl glucosaminyltransferase;C1GalT1:核心1β1-3半乳糖氨基转移酶 core 1 β1-3 galactosyltransferase; DKO:核心1-和3-衍生O聚糖 core 1- and 3-derived O-glycans。

3 Muc2糖基化修饰和肠道菌群的互作机制

3.1 Muc2 糖基化修饰影响肠道共生菌定植

3.1.1 Muc2 O-聚糖为特定肠道共生菌提供碳源底物

Muc2等Muc的糖基化修饰可作为肠道共生菌的能量来源。Muc降解所需的特定酶有硫酸酯酶、糖苷水解酶和蛋白酶[2]。硫酸酯酶对Muc末端聚糖进行脱硫,这些聚糖随后被糖苷水解酶降解,并释放为单糖和低聚糖,被微生物用作能量来源[2,46]。当所有的聚糖都被消化后,Muc核心就可以被蛋白酶降解[20]。共生菌群的多糖降解酶使它们能够降解并利用Muc O-聚糖作为自身的能量来源,但共生菌群并不能降解Muc,很大程度上取决于Muc2和其他Muc的糖基化,糖基化使得蛋白酶无法到达蛋白质核心。同时Muc2的糖基化程度较低的N端和C端也没有被降解,因为这些部分被许多二硫键高度稳定,其中隐藏了胰腺内源性蛋白酶(胰蛋白酶、糜凝胰蛋白酶和弹性蛋白酶)的特定裂解位点。宿主在胃肠道中不分泌任何能够降解Muc O-聚糖类型的酶,而共生菌群携带大量这样的聚糖降解酶[47-48]。猪痢疾短螺旋体感染肠道上皮与Muc存在的唾液酸残基相关,通过唾液酸酶A移除Muc末端唾液酸后发现会显著减少猪痢疾短螺旋体对Muc的黏附,同时用含有不同类型碳水化合物(Gal、Neu5Ac、GlcNAc、GalNAc、Fuc)的培养基培养短螺旋体发现,唾液酸可以作为其能量来源[49]

3.1.2 Muc2 O-聚糖是肠道共生细菌的定植位点

Muc O-聚糖与肠道共生菌之间互利共生[50]。Xia等[51]采用苄基-α-GalNAc处理Muc 72 h后(抑制Muc的O-糖基化),荧光染色显示Muc产生细胞系T84细胞上附着的大肠杆菌k88数量显著减少,证实Muc O-聚糖作为细菌的定植点。对人类和小鼠的研究表明,多糖沿胃肠道呈梯度分布。例如,酸性更强的聚糖,如含有Neu5Ac的聚糖,在小鼠胃肠道近端更丰富,而Fuc则倾向于在远端更丰富[52-53]。例如,Karlsson等[54]研究发现,小鼠大肠富含硫酸寡糖,而小肠含有较多的唾液酸化寡糖。相比之下,人类胃肠道近端有更多的Fuc,而远端则有更丰富的酸性聚糖[18,30,55]。夏冰[44]以仔猪结肠Muc O-聚糖作为体外发酵的底物,发现来自腹泻仔猪的异常O-聚糖可以改变微生物群落的组成,降低了普拉梭菌属、普雷沃氏菌属和经黏液真杆菌属等产生短链脂肪酸细菌的相对丰度,增加了脱硫杆菌属、脱硫弧菌属、拟杆菌属和副拟杆菌属等富含糖苷酶的细菌以及与炎症相关的细菌的丰度,证明了猪肠道Muc O-聚糖与肠道共生菌的互利共生关系。

3.1.3 Muc2 O-聚糖会影响肠道共生菌的组成

Muc,尤其是Muc2的糖基化修饰可能会影响不同物种中微生物菌群的组成[56]。王茜[57]在从猪肠胃Muc单糖组分中筛选菌嗜黏蛋白艾克曼菌生长主效因子研究时发现,O-聚糖中的Gal可以显著促进该菌生长,而Neu5Ac在一定程度上可以抑制菌嗜黏蛋白艾克曼菌生长;同时,她在研究菌嗜黏蛋白艾克曼菌外切糖苷酶活性时发现其半乳糖苷酶活性明显髙于其他糖苷酶活性,结合Gal在Muc糖链中1.8 mg的最高含量及Gal显著促进该菌生长得到了Gal是促进菌嗜黏蛋白艾克曼菌生长的单糖主效因子的结论。Gamage等[30]发现,缺乏α1-2岩藻糖转移酶基因复制功能的小鼠具有较高的副拟杆菌属、真杆菌属、毛螺旋菌属、拟杆菌属和毛螺菌科等的丰度,而梭菌目的丰度较低,这表明终端岩藻糖残基的存在与肠道微生物群之间存在联系。在S24-7科、毛螺菌科和梭菌目中发现分类单位的相对丰度与具有2个末端Fuc残基(2F)和硫酸盐与Neu5Ac一起(SN)的聚糖结构丰度呈正相关,这些分类单位与具有单个Fuc残基(F)的聚糖丰度呈负相关,而紫单胞菌科、狄氏副拟杆菌丰度正好相反。总之,就是与具有2个Fuc残基(2F)的聚糖呈正相关的肠道细菌均与具有1个末端Fuc残基(F)的聚糖呈负相关。
鸡Muc单糖包括Fuc、甘露糖(Man)、Gal、GalNAc、GlcNAc和Neu5Ac。以这些单糖为唯一碳源,产气荚膜荚膜菌CP1在Neu5Ac、Man、Gal和GlcNAc上生长,而在Fuc和GalNAc上不生长[58]
Rawls等[59]将斑马鱼和小鼠肠道微生物群互移植到无菌斑马鱼和小鼠受体中,可以从供体细菌中选择出原始斑马鱼和小鼠的特征微生物群。这说明宿主可以通过塑造其组成选择自己的微生物群。比较小鼠和人类之间的共生细菌显示出差异,这进一步支持了宿主可以影响其细菌选择的观点[60-61]。宿主可能通过多种机制影响或选择其微生物群,如小肠的抗菌肽或蛋白库[62]。当然,食物或环境等其他因素也会影响细菌组成[63]

3.2 肠道共生菌对Muc2及其糖基化修饰的调节

3.2.1 肠道菌群对Muc2基因转录的调节

共生肠道菌群可以通过协助杯状细胞分化和调节Muc糖基化相关基因的表达来调节黏液的产生。周倩[64]研究发现,脆弱拟杆菌株ZY-312可以调控白细胞介素-22(IL-22)介导的转录的信号换能器和激活因子3(STAT3)磷酸化,从而促进结肠类器官增殖修复。IL-22通过激活小肠上皮的STAT3信号通路,促进肠上皮分泌黏液及抗菌肽,从而维持肠道屏障结构的完整性[65]
肠道菌群携带大型操纵子,包括感觉分子、水解酶和转运蛋白[66]。菌群将单糖代谢成更小的分子,最常见的是短链脂肪酸,如乙酸、丙酸和丁酸等[47]。这些小分子可以很容易地扩散通过内部黏液层,因此宿主可以获得一些能量用于构建和更新内部黏液层[67]。短链脂肪酸可以通过调节Muc2的表达从而诱导宿主形成更致密、更不易穿透的黏液层。Burger-Van Paassen等[68]研究了SCFA对LS174T细胞(人类杯状细胞细胞系)Muc2合成的影响,发现丁酸盐、丙酸盐和乙酸盐均能增加Muc2 mRNA的表达;研究还发现,丁酸盐可以通过核转录激活蛋白-1(AP-1)转录因子介导其作用,并且在Muc2启动子的-817/-808处发现了AP-1的推定一致结合位点(ATGAGTCAGA),因此发现丁酸盐能够激活AP-1报告基因结构,并在LS174T细胞系中诱导c-Fos和c-Jun蛋白表达,表明丁酸盐诱导的Muc2基因的转录可能是通过AP-1与Muc2启动子结合而发生的。除此之外,SCFA特别是丁酸可以通过对组蛋白去乙酰化酶的抑制作用来增加结肠中Muc2基因的表达[69];或者通过激活“代谢物感应”G蛋白偶联受体(GPCR),例如,丙酸可通过G蛋白偶联受体43(GPR43),其他SCFA可通过G蛋白偶联受体41(GPR41)引起一系列信号通路变化,上调杯状细胞合成Muc2并促进其分泌[21]
肠道细菌产物如LPS、鞭毛蛋白以及细菌诱导产生的炎性因子,如肿瘤坏死因子-α(TNF-α)、白细胞介素-13(IL-13)等均可调节Muc2基因转录[21]。LPS与肠上皮细胞表面的Toll样受体4(TLR4)结合后,通过髓样分化因子88(MyD88)依赖性信号通路活化核因子-κB(NF-κB),并使其结合至Muc2启动子的相应位点上(-1 441-1 452碱基对位置),从而上调Muc2基因转录;同时LPS亦可通过非MyD88依赖性信号通路,即通过介导干扰素(IFN)以及干扰素调节因子3(IRF3)上调Muc2基因的转录[21]
TNF-α同样可通过NF-κB途径上调Muc2转录,但同时亦能通过c-Jun氨基末端激酶(JNK)途径抑制Muc2基因转录。白细胞介素-4(IL-4)和IL-13可通过丝裂原活化蛋白激酶(MAPK)介导的NF-κB途径正向调节Muc2转录,此外亦可通过激活由MAPK和p38通路介导的环磷腺苷效应元件结合蛋白/转录激活因子1(CREB/ATF1)正向调节Muc2的转录[21]
Xia等[51]通过UEA免疫荧光检测和阿利新蓝-周期性酸-席夫(AB-PAS)染色显示,腹泻仔猪黏液层厚度和杯状细胞数量明显减少,同时,显示腹泻仔猪结肠黏膜中Muc2、Muc4、抵抗素样蛋白B(RETNLB)、内质网核信号转导蛋白1(ERN1)、内质网核信号转导蛋白2(ERN2)和溶质载体家族26成员3(SLC26A3)等黏液相关基因的表达减少。这些结果都表明肠道菌群会影响到Muc2基因的转录。

3.2.2 肠道菌群对Muc2等Muc糖基化修饰的调节

Muc2硫酸化可增强肠道抗炎能力,与Muc2硫酸化相关的磺基转移酶包括半乳糖-3-O-磺基转移酶2(GAL3ST2)、碳水化合物磺基转移酶5(CHST5)等。细菌产物及其引起的炎性因子分泌可大量诱导磺基转移酶形成,其中TNF-α、IL-13可增加CHST5表达,TNF-α、IL-13、鞭毛蛋白可增加GAL3ST2表达,使Muc2硫酸化,通过增加黏液黏度和减少细菌黏附提高肠道抗炎能力[70]
Vignesh等[31]研究发现,被猪痢疾短螺旋体感染的猪的聚糖链更短,具有更高的中性糖丰度[主要含有神经氨酸(NeuGc)而非唾液酸(NeuAc)]。并且与健康猪相比,岩藻糖基化、唾液酸化和硫酸化修饰结构的丰度降低。
在非生物小鼠中的单定植研究表明,共生肠道细菌拟杆菌和普拉梭菌可以通过协助杯状细胞分化和调节Muc糖基化相关基因的表达来调节黏液的产生[14]。肠道微生物代谢物如乙酸酯也被认为通过影响宿主糖基转移酶的表达来调节结肠Muc O-糖基化[14,71]。无菌小鼠缺乏包括乙酸在内的微生物代谢物,含有较短的Muc O-聚糖,这与特异性宿主糖基转移酶的表达水平较低有关[71-72]
无菌小鼠体内缺乏岩藻糖基化和α-1,2岩藻糖基转移酶mRNA,当其经过肠道菌群定植饲养后,体内岩藻糖基化程序恢复。多形拟杆菌和普拉梭菌可增加糖基转移酶的合成并促进Muc2糖基化,且此可能依赖于肠道细菌产生的短链脂肪酸的调节;活泼瘤胃球菌E1能通过分泌一种增加Muc2糖基化转移酶基因表达的肽样因子调节Muc2糖基化,此种因子因其肽样性质不同于短链脂肪酸,被认为是一种未曾报道过的因子[70]

4 Muc糖基化修饰的营养调控

Fan等[73]通过探讨可溶性葡甘露聚糖(GM)和不溶性纤维素(CL)处理对小鼠结肠Muc分泌和Muc糖基化相关基因表达的影响,研究发现,GM比CL更有利于结肠Muc的分泌和O-糖基化基因的表达,从而改善胃肠道健康。同样,Changchien等[74]发现,魔芋葡甘露聚糖、菊粉、魔芋葡甘露聚糖+菊粉均能显著增加C57BL/6J小鼠肠道黏膜层厚度、Muc密度和Muc2基因表达。这些研究表明,膳食纤维可以调节黏膜屏障的防御功能。Gamage等[30]通过研究膳食纤维摄入对高脂肪饮食喂养的C57BL/6J小鼠肠道微生物群、结肠Muc O-糖基化和宿主生理的影响,研究发现,添加膳食纤维会显著改变Muc O-糖基化谱,显著增加丙酸产量和已知纤维消化肠道细菌的丰度。Zhao等[75]研究发现,从枸杞中提取的结构明确的阿拉伯半乳聚糖-3(LBP-3)在减轻UC小鼠的症状方面主要有预防作用;LBP-3可降低炎症因子(IL-6、IL-1β和TNF-α)的含量,通过有利于有益细菌(乳杆菌科、瘤胃球菌科和毛螺菌科)来恢复肠道微生物组成,并通过增加结肠杯状细胞和紧密连接蛋白的数量来维持肠道屏障的完整性;此外,该项研究的糖组学结果表明,LBP-3主要通过刺激中性单岩藻糖基化O-聚糖(F1H1N2和F1H2N2)以及短链Core 2和Core 4硫酸化O-聚糖(S1H1N2、S1F1H1N2、S1H2N3和异构体S1F2H2N2)或Core 2唾液酸化O-聚糖(H2N3A1和F1H3N2A1)来触发中性O-聚糖的增加。总之,补充LBP-3可显著减轻病理症状,恢复细菌群落,促进O-聚糖表达,从而成功预防和缓解结肠炎。Zhao等[76]通过试验还发现,膳食多糖主要通过刺激中性聚糖来增加总O-聚糖。高度支化的阿拉伯半乳聚糖促进末端岩藻糖基化核心1 O-聚糖;而直链多糖,包括果胶、魔芋葡甘聚糖、菊粉和纤维混合物,有利于末端二岩藻糖基化O-聚糖;后3种多糖还降低了硫酸化O-聚糖和唾液酸化单岩藻糖基化O-聚糖的水平。混合多糖中不同的单糖组成具有协同增效作用,增加了岩藻糖基化中性聚糖,减少了酸性聚糖,并刺激微生物丰富度和多样性。

5 小结

以Muc2为主的Muc是抵御肠道致病菌和外源性有害物质入侵的第1道天然屏障,糖基化修饰是Muc2等Muc发挥生理功能的关键,而肠道共生菌是影响Muc糖基化修饰的重要因素。因此,在动物饲养方面,可以通过上调肠道Muc2等Muc的分泌及其糖基化修饰,进而改善动物肠道健康。如在动物饲粮中添加益生元(如膳食纤维、甘露寡糖、阿拉伯聚糖等),可提高Muc糖基化相关基因的表达,改善动物肠道屏障功能。此外,进一步研究Muc2等Muc糖基化修饰与共生菌群之间的互作机制,有助于揭示肠道屏障与微生物群之间的关系,为仔猪肠道Muc2糖基化修饰的营养干预及相关研究提供理论依据。
[1]
BANSIL R, TURNER B S. The biology of mucus:composition,synthesis and organization[J]. Advanced Drug Delivery Reviews, 2018, 124:3-15.

[2]
BREUGELMANS T, OOSTERLINCK B, ARRAS W, et al. The role of mucins in gastrointestinal barrier function during health and disease[J]. The Lancet Gastroenterology Hepatology, 2022, 7(5):455-471.

[3]
SCHROEDER B O. Fight them or feed them:how the intestinal mucus layer manages the gut microbiota[J]. Gastroenterology Report, 2019, 7(1):3-12.

[4]
QU D W, WANG G, YU L L, et al. The effects of diet and gut microbiota on the regulation of intestinal mucin glycosylation[J]. Carbohydrate Polymers, 2021, 258:117651.

[5]
BIRCHENOUGH G M H, JOHANSSON M E V, GUSTAFSSON J K, et al. New developments in goblet cell mucus secretion and function[J]. Mucosal Immunology, 2015, 8(4):712-719.

DOI PMID

[6]
GODL K, JOHANSSON M E V, LIDELL M E, et al. The N terminus of the MUC2 mucin forms trimers that are held together within a trypsin-resistant core fragment[J]. The Journal of Biological Chemistry, 2002, 277(49):47248-47256.

[7]
LIDELL M E, JOHANSSON M E V, M RGELIN M, et al. The recombinant C-terminus of the human MUC2 mucin forms dimers in Chinese-hamster ovary cells and heterodimers with full-length MUC2 in LS 174T cells[J]. Biochemical Journal, 2003, 372(Pt 2):335-345.

PMID

[8]
ROUND A N, RIGBY N M, GARCIA DE LA TORRE A, et al. Lamellar structures of MUC2-rich mucin:a potential role in governing the barrier and lubricating functions of intestinal mucus[J]. Biomacromolecules, 2012, 13(10):3253-3261.

[9]
VAN PUTTEN J P M, STRIJBIS K. Transmembrane mucins:signaling receptors at the intersection of inflammation and cancer[J]. Journal of Innate Immunity, 2017, 9(3):281-299.

[10]
BERGSTROM K, FU J, JOHANSSON M E V, et al. Core 1-and 3-derived O-glycans collectively maintain the colonic mucus barrier and protect against spontaneous colitis in mice[J]. Mucosal Immunology, 2017, 10(1):91-103.

[11]
WITTEN J, RIBBECK K. The particle in the spider’s web:transport through biological hydrogels[J]. Nanoscale, 2017, 9(24):8080-8095.

[12]
BERGSTROM K, SHAN X D, CASERO D, et al. Proximal colon-derived O-glycosylated mucus encapsulates and modulates the microbiota[J]. Science(New York,N.Y.), 2020, 370(6515):467-472.

[13]
HANSSON G C. Mucins and the microbiome[J]. Annual Review of Biochemistry, 2020, 89:769-793.

DOI PMID

[14]
WRZOSEK L, MIQUEL S, NOORDINE M L, et al. Bacteroides thetaiotaomicron and Faecalibacterium prausnitzii influence the production of mucus glycans and the development of goblet cells in the colonic epithelium of a gnotobiotic model rodent[J]. BMC Biology, 2013, 11:61.

[15]
LUIS A S, HANSSON G C. Intestinal mucus and their glycans:a habitat for thriving microbiota[J]. Cell Host & Microbe, 2023, 31(7):1087-1100.

[16]
BUISINE M P, DESREUMAUX P, DEBAILLEUL V, et al. Abnormalities in mucin gene expression in Crohn’s disease[J]. Inflammatory Bowel Diseases, 1999, 5(1):24-32.

[17]
张海玲, 马春涛, 刘欣. 黏蛋白在结肠息肉中的表达及临床意义[J]. 国际检验医学杂志, 2018, 39(10):1211-1214.

ZHANG H L, MA C T, LIU X. Mucin in colonic polyps and its clinical significance[J]. International Journal of Laboratory Medicine, 2018, 39(10):1211-1214. (in Chinese)

[18]
ARIKE L, HANSSON G C. The densely O-glycosylated MUC2 mucin protects the intestine and provides food for the commensal bacteria[J]. Journal of Molecular Biology, 2016, 428(16):3221-3229.

DOI PMID

[19]
MEIMEI S, MAURIZIO G, JOHN R Y, et al. Mucus enhances gut homeostasis and oral tolerance by delivering immunoregulatory signals[J]. Science, 2013, 342(6157):447-453.

DOI PMID

[20]
PAONE P L, CANI P D. Mucus barrier,mucins and gut microbiota:the expected slimy partners?[J]. Gut, 2020, 69(12):2232-2243.

[21]
黄则华, 曾悦, 黄春兰. 肠道菌群对黏蛋白2的影响及其作用机制[J]. 胃肠病学, 2019, 24(2):111-114.

HUANG Z H, ZENG Y, HUANG C L. Effect and mechanism of intestinal flora on mucin 2[J]. Chinese Journal of Gastroenterology, 2019, 24(2):111-114. (in Chinese)

[22]
BETGE J, SCHNEIDER N I, HARBAUM L, et al. MUC1,MUC2,MUC5AC,and MUC6 in colorectal cancer:expression profiles and clinical significance[J]. Virchows Archiv:An International Journal of Pathology, 2016, 469(3):255-265.

[23]
左晓彤, 黄琴, 吴巧凤. 针灸调节溃疡性结肠炎肠屏障的研究进展[J]. 医师在线, 2023, 13(9):82-86.

ZUO X T, HUANG Q, WU Q F. Research progress of acupuncture and moxibustion in regulating intestinal barrier of ulcerative colitis[J]. Journal of Doctors Online, 2023, 13(9):82-86. (in Chinese)

[24]
BERGSTROM K S B, KISSOON-SINGH V, GIBSON D L, et al. Muc2 protects against lethal infectious colitis by disassociating pathogenic and commensal bacteria from the colonic mucosa[J]. PLoS Pathogens, 2010, 6(5):e1000902.

[25]
MCNAMARA N, BASBAUM C. Signaling networks controlling mucin production in response to gram-positive and gram-negative bacteria[J]. Glycoconjugate Journal, 2001, 18(9):715-722.

PMID

[26]
RESTA-LENERT S, DAS S, BATRA S K, et al. Muc17 protects intestinal epithelial cells from enteroinvasive E. coli infection by promoting epithelial barrier integrity[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2011, 300(6):G1144-G1155.

[27]
GIPSON I K, SPURR-MICHAUD S, TISDALE A, et al. Comparison of the transmembrane mucins MUC1 and MUC16 in epithelial barrier function[J]. PLoS One, 2014, 9(6):e100393.

[28]
MARYAM Z, KIRANDEEP B, MARINIEVE M, et al. The mucin Muc2 limits pathogen burdens and epithelial barrier dysfunction during Salmonella enterica serovar Typhimurium colitis[J]. Infection and Immunity, 2013, 81(10):3672-3683.

[29]
聂烁, 闻正顺. 肠道黏蛋白2的分泌、结构、合成调控及其在肠道疾病发生发展中的作用[J]. 动物营养学报, 2020, 32(6):2521-2532.

DOI

NIE S, WEN Z S. Secretion,structure,synthesis regulation of intestinal mucin 2 and its role in development of intestinal diseases[J]. Chinese Journal of Animal Nutrition, 2020, 32(6):2521-2532. (in Chinese)

[30]
GAMAGE H K A H, CHONG R W W, BUCIO-NOBLE D, et al. Changes in dietary fiber intake in mice reveal associations between colonic mucin O-glycosylation and specific gut bacteria[J]. Gut Microbes, 2020, 12(1):1802209.

[31]
VIGNESH V, QUINTANA-HAYASHI M P, MAXIME M, et al. Brachyspira hyodysenteriae infection regulates mucin glycosylation synthesis inducing an increased expression of core-2 o-glycans in porcine colon[J]. Journal of Proteome Research, 2017, 16(4):1728-1742.

[32]
刘韦鋆, 崔云峰. 黏液黏蛋白的药动学研究进展[J]. 中国中西医结合外科杂志, 2020, 26(3):562-566.

LIU W Y, CUI Y F. Progress in pharmacokinetic research on mucin[J]. Chinese Journal of Surgery of Integrated Traditional and Western Medicine, 2020, 26(3):562-566. (in Chinese)

[33]
王晓龙, 王秀然, 卢天成. 蛋白质糖基化修饰的研究进展[J]. 基因组学与应用生物学, 2017, 36(10):4380-4384.

WANG X L, WANG X R, LU T C. The research progress of protein glycosylation modification[J]. Genomics and Applied Biology, 2017, 36(10):4380-4384. (in Chinese)

[34]
LIDELL M E, MONCADA D M, CHADEE K, et al. Entamoeba histolytica cysteine proteases cleave the MUC2 mucin in its C-terminal part and dissolves the protective colonic mucus gel[J]. Proceedings of the National Academy of Sciences, 2006, 103(24):9298-9393.

[35]
VAN DER POST S, SUBRAMANI D B, BÄCKSTRÖM M, et al. Site-specific O-glycosylation on the MUC2 mucin protein inhibits cleavage by the Porphyromonas gingivalis secreted cysteine protease (RgpB)[J]. The Journal of Biological Chemistry, 2013, 288(20):14636-14646.

[36]
VAN DER POST S, HANSSON G C. Membrane protein profiling of human colon reveals distinct regional differences[J]. Molecular & Cellular Proteomics:MCP, 2014, 13(9):2277-2287.

[37]
TOPAZ O, SHURMAN D L, BERGMAN R, et al. Mutations in GALNT3,encoding a protein involved in O-linked glycosylation,cause familial tumoral calcinosis[J]. Nature Genetics, 2004, 36(6):579-581.

[38]
KATO K, JEANNEAU C, TARP MA, et al. Polypeptide GalNAc-transferase T3 and familial tumoral calcinosis.Secretion of fibroblast growth factor 23 requires O-glycosylation[J]. The Journal of Biological Chemistry, 2006, 281(27):18370-18377.

[39]
FU J X, WEI B, WEN T, et al. Loss of intestinal core 1-derived O-glycans causes spontaneous colitis in mice[J]. Journal of Clinical Investigation, 2011, 121(4):1657-1666.

DOI PMID

[40]
LARSSON JM, KARLSSON H, CRESPO JG, et al. Altered O-glycosylation profile of MUC2 mucin occurs in active ulcerative colitis and is associated with increased inflammation[J]. Inflammatory Bowel Diseases, 2011, 17(11):2299-2307.

DOI PMID

[41]
JOHANSSON M E V, PHILLIPSON M, PETERSSON J, et al. The inner of the two Muc2 mucin-dependent mucus layers in colon is devoid of bacteria[J]. Proceedings of the National Academy of Sciences of the United States of America, 2008, 105(39):15064-15069.

DOI PMID

[42]
VAN DER SLUIS M,DE KONING B A E,DE BRUIJN A C J M, et al. Muc2-deficient mice spontaneously develop colitis, indicating that MUC2 is critical for colonic protection[J]. Gastroenterology, 2006, 131(1):117-129.

DOI PMID

[43]
AN G Y, WEI B, XIA B Y, et al. Increased susceptibility to colitis and colorectal tumors in mice lacking core 3-derived O-glycans[J]. Journal of Experimental Medicine, 2007, 204(6):1417-1429.

DOI PMID

[44]
夏冰. 黏蛋白O-型糖在仔猪肠道黏膜屏障中的作用研究[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2022.

XIA B. The role of mucin O-glycans in intestinal mucosal barrier of piglets[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2022. (in Chinese)

[45]
邹龙, 杨爱明. 胃黏膜病变中异常的黏蛋白表达及糖基化修饰[J]. 中国医学科学院学报, 2022, 44(2):294-298.

DOI

ZOU L, YANG A M. Aberrant expression and glycosylation of mucins in gastric mucosal disease[J]. Acta Academiae Medicinae Sinicae, 2022, 44(2):294-298. (in Chinese)

DOI

[46]
REY F E, GONZALEZ M D, CHENG J Y, et al. Metabolic niche of a prominent sulfate-reducing human gut bacterium[J]. Proceedings of the National Academy of Sciences of the United States of America, 2013, 110(33):13582-13587.

DOI PMID

[47]
KOROPATKIN N M, CAMERON E A, MARTENS E C. How glycan metabolism shapes the human gut microbiota[J]. Nature Reviews Microbiology, 2012, 10(5):323-335.

DOI PMID

[48]
MARTIN F P J, WANG Y L, SPRENGER N, et al. Top-down systems biology integration of conditional prebiotic modulated transgenomic interactions in a humanized microbiome mouse model[J]. Molecular Systems Biology, 2008, 4:205.

[49]
QUINTANA-HAYASHI M P, VENKATAKRISHNAN V, HAESEBROUCK F, et al. Role of sialic acid in Brachyspira hyodysenteriae adhesion to pig colonic mucins[J]. Infection and Immunity, 2019, 87(7):e00889-18.

[50]
MARTENS E C, NEUMANN M, DESAI M S. Interactions of commensal and pathogenic microorganisms with the intestinal mucosal barrier[J]. Nature Reviews Microbiology, 2018, 16(8):457-470.

DOI PMID

[51]
XIA B, ZHONG R Q, WU W D, et al. Mucin O-glycan-microbiota axis orchestrates gut homeostasis in a diarrheal pig model[J]. Microbiome, 2022, 10(1):139.

DOI PMID

[52]
TAILFORD L E, CROST E H, KAVANAUGH D, et al. Mucin glycan foraging in the human gut microbiome[J]. Frontiers in Genetics, 2015, 6:81.

DOI PMID

[53]
HOLMÉN LARSSON J M, THOMSSON K A, RODRÍGUEZ-PIÑEIRO A M, et al. Studies of mucus in mouse stomach,small intestine,and colon.Ⅲ.Gastrointestinal Muc5ac and Muc2 mucin O-glycan patterns reveal a regiospecific distribution[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2013, 305(5):G357-G363.

[54]
KARLSSON N G, HERRMANN A, KARLSSON H, et al. The glycosylation of rat intestinal Muc2 mucin varies between rat strains and the small and large intestine[J]. Journal of Biological Chemistry, 1997, 272(43):27025-27034.

[55]
ROBBE C, CAPON C, MAES E, et al. Evidence of regio-specific glycosylation in human intestinal mucins:presence of an acidic gradient along the intestinal tract[J]. The Journal of Biological Chemistry, 2003, 278(47):46337-46348.

[56]
BERGSTROM K S B, XIA L J. Mucin-type O-glycans and their roles in intestinal homeostasis[J]. Glycobiology, 2013, 23(9):1026-1037.

DOI PMID

[57]
王茜. 猪肠胃黏蛋白O-糖链结构分析及其对Akkermansia muciniphila生长的影响[D]. 硕士学位论文. 南京: 南京农业大学, 2020.

WANG Q. The structures of mucin O-glycan of porcine stomach and the effects of mucin O-glycan on the growth of Akkermansia muciniphila[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2020. (in Chinese)

[58]
MACMILLAN JL, VICARETTI SD, NOYOVITZ B, et al. Structural analysis of broiler chicken small intestinal mucin O-glycan modification by Clostridium perfringens[J]. Poultry Science, 2019, 98(10):5074-5088.

[59]
RAWLS J F, MAHOWALD M A, LEY R E, et al. Reciprocal gut microbiota transplants from zebrafish and mice to germ-free recipients reveal host habitat selection[J]. Cell, 2006, 127(2):423-433.

DOI PMID

[60]
BÄCKHED F, LEY R E, SONNENBURG J L, et al. Host-bacterial mutualism in the human intestine[J]. Science, 2005, 307(5717):1915-1920.

DOI PMID

[61]
SPOR A, KOREN O, LEY R. Unravelling the effects of the environment and host genotype on the gut microbiome[J]. Nature Reviews Microbiology, 2011, 9(4):279-290.

DOI PMID

[62]
BEVINS C L. Paneth cell defensins:key effector molecules of innate immunity[J]. Biochemical Society Transactions, 2006, 34(Pt 2):263-266.

[63]
LEY R E, HAMADY M, LOZUPONE C, et al. Evolution of mammals and their gut microbes[J]. Science, 2008, 320(5883):1647-1651.

DOI PMID

[64]
周倩. 脆弱拟杆菌株ZY-312通过上调ILC3/IL-22/pSTAT3轴促进小鼠实验性结肠炎结肠黏膜增殖修复的机制研究[D]. 博士学位论文. 广州: 南方医科大学, 2023.

ZHOU Q. Study on the mechanisms of Bacteroides fragilis strain ZY-312 facilitates colonic mucosa regeneration in colitis via up-regulating ILC3/IL-22/pSTAT3 Axis[D]. Ph.D.Thesis. Guangzhou: Southern Medical University, 2023. (in Chinese)

[65]
SUGIMOTO K, OGAWA A, MIZOGUCHI E, et al. IL-22 ameliorates intestinal inflammation in a mouse model of ulcerative colitis[J]. The Journal of Clinical Investigation, 2008, 118(2):534-544.

[66]
MARTENS E C, KOROPATKIN N M, SMITH T J, et al. Complex glycan catabolism by the human gut microbiota: the Bacteroidetes Sus-like paradigm[J]. The Journal of Biological Chemistry, 2009, 284(37):24673-24677.

[67]
JOHANSSON M, JACOBSSON H E, HOLMÉN-LARSSON J, et al. Normalization of the host intestinal mucus systems requires long-term colonization[J]. Cell Host & Microbe, 2015, 18:582-592.

[68]
BURGER-VAN PAASSEN N, VINCENT A, PUIMAN P J, et al. The regulation of intestinal mucin MUC2 expression by short-chain fatty acids:implications for epithelial protection[J]. The Biochemical Journal, 2009, 420(2):211-219.

[69]
WU Y, LI Y F, RUAN Z, et al. Puerarin rebuilding the mucus layer and regulating mucin-utilizing bacteria to relieve ulcerative colitis[J]. Journal of Agricultural and Food Chemistry, 2020, 68(41):11402-11411.

[70]
朱继开, 钟煜, 王璐璇, 等. 肠道杯状细胞与黏蛋白的研究进展[J]. 继续医学教育, 2017, 31(7):139-140.

ZHU J K, ZHONG Y, WANG L X, et al. Research progress of intestinal goblet cells and mucin[J]. Continuing Medical Education, 2017, 31(7):139-140. (in Chinese)

[71]
ALLAIRE J M, CROWLEY S M, LAW H T, et al. The intestinal epithelium:central coordinator of mucosal immunity[J]. Trends in Immunology, 2018, 39(9):677-696.

[72]
ARIKE L, HOLMÉN-LARSSON J, HANSSON G C. Intestinal Muc2 mucin O-glycosylation is affected by microbiota and regulated by differential expression of glycosyltranferases[J]. Glycobiology, 2017, 27(4):318-328.

DOI PMID

[73]
FAN Z, ZHAO Y R, XIANG L, et al. Effects of soluble glucomannan and insoluble cellulose treatment on mucin secretion and mucin glycosylation-related gene expression in the colons of mice[J]. Journal of the Science of Food and Agriculture, 2023, 103(15):7739-7746.

[74]
CHANGCHIEN C H, HAN Y C, CHEN H L. Konjac glucomannan polysaccharide and inulin oligosaccharide enhance the colonic mucosal barrier function and modulate gut-associated lymphoid tissue immunity in C57BL/6J mice[J]. British Journal of Nutrition, 2020, 123(3):319-327.

[75]
ZHAO T, LIU S N, MA X R, et al. Lycium barbarum arabinogalactan alleviates intestinal mucosal damage in mice by restoring intestinal microbes and mucin O-glycans[J]. Carbohydrate Polymers, 2024, 330:121882.

[76]
ZHAO T, ZHANG Y, NAN L H, et al. Impact of structurally diverse polysaccharides on colonic mucin O-glycosylation and gut microbiota[J]. NPJ Biofilms and Microbiomes, 2023, 9(1):97.

DOI PMID

文章导航

/