研究论文

支链脂肪酸在脂多糖诱导下猪小肠上皮细胞炎性反应中缓解作用的研究

  • 张思琦 , 1 ,
  • 王安琪 1 ,
  • 周思彤 1 ,
  • 孙丽华 2 ,
  • 王勇 2 ,
  • 吕静仪 1 ,
  • 张淑枝 3 ,
  • 刘洋 4 ,
  • 辛杭书 , 1, *
展开
  • 1 东北农业大学动物科学技术学院,哈尔滨 150030
  • 2 广州优百特科技有限公司,广州 511300
  • 3 沈阳禾丰反刍动物饲料有限公司,沈阳 110164
  • 4 北大荒完达山乳业股份有限公司,哈尔滨 150001
* 辛杭书,教授,博士生导师,E-mail:

张思琦(1999—),女,黑龙江双鸭山人,硕士研究生,从事反刍动物营养研究。E-mail:

Office editor: 陈鑫

收稿日期: 2024-03-12

  网络出版日期: 2024-09-08

基金资助

财政部和农业农村部-国家奶牛产业技术体系(CARS-36)

Study on Alleviating Effects of Branched-Chain Fatty Acids on Lipopolysaccharide-Induced Inflammatory Response in IPEC-J2 Cells

  • ZHANG Siqi , 1 ,
  • WANG Anqi 1 ,
  • ZHOU Sitong 1 ,
  • SUN Lihua 2 ,
  • WANG Yong 2 ,
  • LYU Jingyi 1 ,
  • ZHANG Shuzhi 3 ,
  • LIU Yang 4 ,
  • XIN Hangshu , 1, *
Expand
  • 1 College of Animal Science and Technology, Northeast Agricultural University, Harbin 150030, China
  • 2 Guangzhou Youbaite Technology Company Limited, Guangzhou 511300, China
  • 3 Wellhope Shenyang Ruminant Feed Company Limited, Shenyang 110164, China
  • 4 Beidahuang Wondersun Dairy Company Limited, Harbin 150001, China
* professor, E-mail:

Received date: 2024-03-12

  Online published: 2024-09-08

摘要

本试验旨在研究支链脂肪酸(BCFA)对脂多糖(LPS)诱导下的猪小肠上皮细胞(IPEC-J2细胞)抗氧化、抗炎、抗凋亡及缓解屏障功能能力的影响。采用单因素试验设计,分为8组:对照组、LPS诱导组、iso-C14∶0+LPS组、iso-C15∶0+LPS组、iso-C16∶0+LPS组、iso-C17∶0+LPS组、anteiso-C15∶0+LPS组、anteiso-C17∶0+LPS组,每组3个重复。在正式开始试验之前,分别获得6种BCFA单体(iso-C14∶0、iso-C15∶0、iso-C16∶0、iso-C17∶0、anteiso-C15∶0、anteiso-C17∶0)和LPS处理IPEC-J2细胞的最适条件。通过CCK-8法测定IPEC-J2细胞活性、活性氧(ROS)检测试剂盒检测IPEC-J2细胞ROS含量、实时荧光定量PCR检测各BCFA单体对IPEC-J2细胞的影响。结果表明:1)通过梯度试验,最终确定分别用1.5 μmol/L浓度的6种BCFA单体处理细胞24 h,用10 μg/mL浓度的LPS分别处理各组细胞24 h,建立细胞炎性模型。2)检测6种BCFA单体对LPS诱导下IPEC-J2细胞活性的影响发现,与LPS组相比,BCFA预处理可以显著缓解由LPS刺激引起的IPEC-J2细胞存活率的降低(P<0.05),与其他BCFA单体相比,iso-C17∶0预处理后细胞存活率最高,达到91.55%。3)试剂盒检测细胞中ROS含量发现,与LPS组相比,BCFA组IPEC-J2细胞内ROS含量显著减少(P<0.05)。4)BCFA预处理后细胞内白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)和干扰素-γ(IFN-γ)的基因相对表达量显著低于LPS组(P<0.05),对于白细胞介素-6(IL-6)基因相对表达量,iso-C14∶0、iso-C17∶0和anteiso-C15∶0处理后显著低于LPS组(P<0.05),对于白细胞介素-8(IL-8)基因相对表达量,只有iso-C17∶0处理后显著低于LPS组(P<0.05),除iso-C14∶0+LPS组外,其他BCFA+LPS组细胞内白细胞介素-10(IL-10)的基因相对表达量显著高于LPS组(P<0.05)。5)与LPS组相比,IPEC-J2细胞内Toll样受体4(TLR4)和髓样分化因子88(MyD88)的基因相对表达量因BCFA的添加而显著降低(P<0.05),除anteiso-C15∶0外,其他BCFA也显著降低了细胞内核因子-κB(NF-κB)的基因相对表达量(P<0.05)。6)与LPS组相比,BCFA单体均能显著提高LPS刺激后IPEC-J2细胞中闭锁小带蛋白-1(ZO-1)、闭锁蛋白(Occludin)、封闭蛋白-1(Claudin-1)和封闭蛋白-4(Claudin-4)的基因相对表达量(P<0.05)。7)添加BCFA可以降低LPS刺激后IPEC-J2细胞中半胱天冬酶-8(Caspase-8)的基因相对表达量(P<0.05),与LPS组相比,iso-C14∶0、iso-C16∶0、iso-C17∶0和anteiso-C17∶0处理后,细胞内半胱天冬酶-3(Caspase-3)基因相对表达量显著降低(P<0.05),iso-C14∶0和iso-C17∶0处理后,细胞内半胱天冬酶-9(Caspase-9)基因相对表达量显著降低(P<0.05)。8)与LPS组相比,除anteiso-C15∶0外,加入其他BCFA单体,细胞内BCL-2相关X蛋白(BAX)基因相对表达量均显著降低(P<0.05),添加BCFA后,B淋巴细胞瘤-2(BCL-2)基因相对表达量均显著高于LPS组(P<0.05)。综上所述,BCFA可以减少IPEC-J2细胞内ROS的集聚,调节炎症细胞因子分泌,抑制TLR4/NF-κB信号通路的过度激活,还可以提高紧密连接相关基因表达,调节凋亡基因的表达,进而明显缓解LPS诱导下IPEC-J2细胞的炎症反应。

本文引用格式

张思琦 , 王安琪 , 周思彤 , 孙丽华 , 王勇 , 吕静仪 , 张淑枝 , 刘洋 , 辛杭书 . 支链脂肪酸在脂多糖诱导下猪小肠上皮细胞炎性反应中缓解作用的研究[J]. 动物营养学报, 2024 , 36(9) : 5935 -5948 . DOI: 10.12418/CJAN2024.504

Abstract

This experiment aimed to study the effects of branched-chain fatty acids (BCFA) on the antioxidant, anti-inflammatory, anti-apoptotic, and barrier-protective capabilities of porcine intestinal epithelial cells (IPEC-J2 cells) induced by lipopolysaccharide (LPS). A single-factor experimental design was used, it was divided into 8 groups: control group, LPS induction group, iso-C14∶0+LPS group, iso-C15∶0+LPS group, iso-C16∶0+LPS group, iso-C17∶0+LPS group, anteiso-C15∶0+LPS group, anteiso-C17∶0+LPS group, with three repetitions for each group. Before officially commencing the experiment, the optimal conditions for treating IPEC-J2 cells with six BCFA monomers (iso-C14∶0, iso-C15∶0, iso-C16∶0, iso-C17∶0, anteiso-C15∶0, anteiso-C17∶0) and LPS were obtained. The activity of IPEC-J2 cells was determined using the CCK-8 method, the reactive oxygen species (ROS) content of IPEC-J2 cells was measured with a ROS detection kit, and the impact of each BCFA monomer on IPEC-J2 cells was examined through real-time quantitative PCR (RT-qPCR). The results were showed as follows: 1) through gradient testing, it was ultimately determined that cells were treated with six BCFA monomers at a concentration of 1.5 μmol/L for 24 h, and cells in each group were treated with LPS at a concentration of 10 μg/mL for 24 h to establish a cellular inflammatory model. 2) Examination of the effects of six BCFA monomers on the activity of IPEC-J2 cells induced by LPS revealed that, compared with the LPS-only stimulation group, BCFA pretreatment significantly alleviated the reduction in IPEC-J2 cell viability caused by LPS stimulation (P<0.05). Among the BCFA monomers, iso-C17∶0 pretreatment resulted in the highest cell viability, reaching 91.55%. 3) Testing of ROS content in cells using a kit found that, compared with the LPS group, ROS content in IPEC-J2 cells was significantly reduced in the BCFA group (P<0.05). 4) After BCFA pretreatment, the relative gene expression levels of interleukin-1β (IL-1β), tumor necrosis factor-α (TNF-α), and interferon-γ (IFN-γ) in cells were lower than those in the LPS group (P<0.05). For the relative gene expression level of interleukin-6 (IL-6), the treatment with iso-C14∶0, iso-C17∶0 and anteiso-C15∶0 was significantly lower than that in the LPS group (P<0.05). As for the relative gene expression level of interleukin-8 (IL-8), only the treatment with iso-C17∶0 was significantly lower than that in the LPS group (P<0.05). Except for the iso-C14∶0+LPS group, the relative gene expression level of interleukin-10 (IL-10) in cells of other BCFA+LPS groups was significantly higher than those in the LPS group (P<0.05). 5) Compared with the LPS group, the relative gene expression levels of Toll-like receptor 4 (TLR4) and myeloid differentiation factor 88 (MyD88) in IPEC-J2 cells were significantly reduced due to the addition of BCFA (P<0.05). Except for anteiso-C15∶0, other BCFA also significantly reduced the relative gene expression level of nuclear factor-κB (NF-κB) in cells (P<0.05). 6) Compared with the LPS group, BCFA monomers were able to increase the relative expression levels of zonula occludens-1 (ZO-1), Occludin, Claudin-1, and Claudin-4 genes in IPEC-J2 cells stimulated by LPS (P<0.05). 7) The addition of BCFA could reduce the relative expression level of Caspase-8 gene in IPEC-J2 cells after LPS stimulation (P<0.05). Compared with the LPS group, the relative expression level of Caspase-3 gene in cells was significantly reduced after treatment with iso-C14∶0, iso-C16∶0, iso-C17∶0 and anteiso-C17∶0 (P<0.05). After treatment with iso-C14∶0 and iso-C17∶0, the relative expression levels of Caspase-9 gene in cells were also significantly reduced (P<0.05). 8) Compared with the LPS group, the relative expression levels of BCL-2-associated X protein (BAX) gene in cells was significantly reduced after adding other BCFA monomers except anteiso-C15∶0 (P<0.05). After the addition of BCFA, the relative expression level of B-cell lymphoma-2 (BCL-2) gene was significantly higher than those in the LPS group (P<0.05). In conclusion, BCFA can reduce the accumulation of ROS in IPEC-J2 cells, regulate the secretion of inflammatory cytokines, suppress the overactivation of the TLR4/NF-κB signaling pathway, enhance the expression of genes related to tight junctions, regulate the expression of apoptosis genes, and alleviate the inflammatory response in IPEC-J2 cells caused by LPS.

断奶期是猪生命周期中的关键阶段之一。在断奶期间,由于仔猪的免疫系统和消化系统尚未完全发育,它们更容易受到各种病原体和环境因素的影响,从而极易造成仔猪腹泻甚至死亡[1-2]。小肠是营养吸收的主要场所,同时也是免疫系统的重要组成部分,是抵御外来抗原、病原体和毒素的第1道屏障,故小肠上皮细胞的完整性对维持机体内外环境稳态至关重要[3]。猪小肠上皮细胞(IPEC-J2细胞)是从未哺乳新生仔猪的空肠中分离出来的非转化细胞系,可以用于研究药物对肠道细胞免疫功能、细胞凋亡和屏障功能的影响[4]。脂多糖(lipopolysaccharide,LPS)是革兰氏阴性细菌细胞壁外壁的组成成分。LPS作为一种细菌内毒素,细菌增殖或者死亡时均会释放,释放后的LPS作用于细胞产生免疫应答反应,进一步释放炎症细胞因子,影响细胞的正常代谢,引发局部或全身性炎症反应,损害屏障功能完整性[5]
支链脂肪酸(branched chain fatty acids,BCFA)是碳链上具有单个或多个甲基分支的饱和脂肪酸,在碳链的末端携带单甲基分支为其主要构型。甲基支链位于烷基端第2个碳原子上,称为异构(iso)BCFA,位于烷基端第3个碳原子上,称为反异构(anteiso)BCFA。BCFA类似于多不饱和脂肪酸,可以增加细胞膜的流动性;此外,由于缺乏双键,它们有良好的热稳定性和氧化稳定性[6-8]。胃肠道健康对机体的免疫功能和炎症调节至关重。最近的研究表明,BCFA在缓解肠道炎症方面具有重要作用。Yan等[9]研究发现,当BCFA作用于LPS刺激的人结肠癌细胞系(Caco-2)时,可以显著提高细胞活力,降低白细胞介素-8(interleukin-8,IL-8)、核因子-κB(nuclear factor kappa-B,NF-κB)的表达,并抑制Toll样受体4(Toll-like receptor 4,TLR4)的表达。Ran-Ressler等[10]给新生SD大鼠喂食含有20%BCFA[12-甲基十三烷酸(12-methyltridecanoic acid,iso-C14∶0)、12-甲基十四烷酸(12-methyltetradecanoic acid,anteiso-C15∶0)、14-甲基十五烷酸(14-methylpentadecanoic acid,iso-C16∶0)、14-甲基十六烷酸(14-methylhexadecanoic acid,anteiso-C17∶0)、16-甲基十七烷酸(16-methyl-heptadecanoic acid,iso-C18∶0)和18-甲基十九烷酸(18-methylnonadecanoic acid,iso-C20∶0)]的饲粮,发现坏死性小肠结肠炎的发病率降低了56%,回肠中枯草杆菌的数量增加,白细胞介素-10(interleukin-10,IL-10)基因的表达增加了3倍。尽管BCFA被证明有缓解动物肠道炎症的潜能,但关于BCFA在猪肠道炎症中的作用鲜有报道。iso-C14∶0、13-甲基十四烷酸(13-methyltetradecanoic acid,iso-C15∶0)、iso-C16∶0、15-甲基十六烷酸(15-methylhexadecanoic acid,iso-C17∶0)、anteiso-C15∶0和anteiso-C17∶0是自然界中含量相对较高的6种具有代表性的BCFA。因此,本研究通过使用不同碳链长度和支链位置的BCFA干预LPS诱导的IPEC-J2细胞模型,探讨BCFA在抗氧化、抗炎、改善肠道屏障及细胞凋亡方面的作用,为BCFA在畜禽养殖中的应用提供理论依据。

1 材料与方法

1.1 试验材料

IPEC-J2细胞由东北农业大学动物行为与福利实验室馈赠。BCFA[iso-C14∶0(SCMR-401026)、iso-C15∶0(SCMR-401099)、iso-C16∶0(SCMR-401126)、iso-C17∶0(SCFC-30425)、anteiso-C15∶0(SCMR-401024)和anteiso-C17∶0(SCMR-401124),纯度>97%]、牛血清白蛋白(BSA,无脂肪酸,RBIO-200011)购自上海赛可锐生物科技有限公司。LPS(大肠杆菌O55∶B5,L2880-10MG)购自Sigma-Aldrich(上海)贸易有限公司。DMEM/F12细胞培养基(BC-M-002)、胎牛血清(FBS,BC-SE-FBS01)和磷酸盐缓冲液(PBS,BC-BPBS-11)购自南京森贝伽生物科技有限公司。二甲基亚砜(DMSO,0213)购自美国Amresco公司。0.25%胰蛋白酶溶液(C0201)和100×青霉素-链霉素溶液(C0222)购自上海碧云天生物技术股份有限公司。Invitrogen Trizol(15596-026)购自美国Ambion公司。反转录试剂盒(含gDNA酶,BL699A)购自北京兰杰柯科技有限公司。FastStart Universal SYBR Green Master(ROX)(04913914001)购自瑞士Roche公司。

1.2 溶液配制

BCFA存储液和工作液配制:分别将6种BCFA(iso-C14∶0、iso-C15∶0、iso-C16∶0、iso-C17∶0、anteiso-C15∶0和anteiso-C17∶0)单体与10% BSA/PBS(无脂肪酸)混合,使各自的终浓度均为1 mmol/L,制成各种脂肪酸单体的存储液。将BCFA存储液以不含FBS的基础培养基稀释为不同浓度(0、0.5、1.0、1.5、2.0、2.5 μmol/L)工作液供后续使用。存储液-20 ℃保存,工作液现配现用。
LPS存储液和工作液配制:将10 mg LPS溶于10 mL不含FBS的基础培养基中,配制成1 mg/mL的LPS存储液,于4 ℃密封保存。工作时,用不含FBS的基础培养基稀释LPS存储液至不同浓度(0、1、10、25、50和100 μg/mL),工作液现配现用。

1.3 细胞培养

IPEC-J2细胞复苏后,使用完全培养基(DMEM/F12培养基、10%FBS和1%青霉素-链霉素溶液)将细胞培养于37 ℃、5%二氧化碳(CO2)的恒温培养箱内。当细胞融合度达到80%左右时,使用胰蛋白酶进行消化和传代。待细胞传代3次脱毒后再进行分组使用。

1.4 BCFA和LPS的剂量选定

为了选择BCFA的最佳浓度,取对数生长期的IPEC-J2细胞,胰酶消化后接种于96孔板中,细胞密度为1×10⁴细胞/孔,每个处理3个重复。当细胞密度达到70%~80%时,用PBS清洗细胞,然后将IPEC-J2细胞置于含浓度为0、0.5、1.0、1.5、2.0、2.5 μmol/L BCFA的基础培养基中培养24 h,根据制造商的说明,使用细胞活力检测试剂盒(CCK-8,南京恩晶生物科技有限公司,E1CK-000208-5)检测细胞活力。简单地说,每孔加100 μL含BCFA的基础培养基和10 μL的CCK-8试剂,在37 ℃孵育1 h后,使用酶标仪在450 nm处测定吸光度。计算细胞存活率的公式如下:
细胞存活率(%)=[(As-Ab)/(Ac-Ab)]×100。
式中:As表示BCFA处理组的吸光度;Ac表示未处理组的吸光度;Ab表示空白组的吸光度。
空白组孔中为基础培养基和CCK-8。未处理组的细胞存活率为100%。预试验发现,经1.5 μmol/L BCFA处理细胞后存活率理想,因此,后续试验在这一浓度下进行。
为选择最佳LPS浓度,将IPEC-J2细胞以1×10⁴细胞/孔接种于96孔板,每个处理3个重复。孵育至细胞密度达到70%~80%时,更换无血清培养基,并加入不同浓度(0、1、10、25、50和100 μg/mL)的LPS,继续孵育24 h。然后,用上述CCK-8法检测细胞存活率。在前期的试验中发现,由于10 μg/mL LPS处理IPEC-J2细胞可导致细胞活力降低至70%~80%,因此在本研究中选择此浓度用于建立IPEC-J2细胞损伤模型。
根据细胞活性检测结果,选择最适BCFA浓度作为预处理,最佳LPS浓度造模,每组设置3个复孔。同样以CCK-8法检测BCFA预处理后的LPS诱导下的IPEC-J2细胞活性,同时设置对照组(不添加BCFA与LPS)和LPS单独刺激组。

1.5 试验分组

根据1.4所得的试验结果确定处理条件。使用完全培养基将IPEC-J2细胞培养于37 ℃,5%的CO2细胞培养箱中至贴壁,用PBS洗涤细胞2次,然后进行分组处理。试验共设8个组:对照组(Control组,只加入基础培养基培养细胞)、LPS诱导组(LPS组,先加入基础培养基培养细胞24 h,再加入1.4中筛选的LPS最适浓度处理细胞24 h)、BCFA+LPS组(iso-C14∶0+LPS组、iso-C15∶0+LPS组、iso-C16∶0+LPS组、iso-C17∶0+LPS组、anteiso-C15∶0+LPS组和anteiso-C17∶0+LPS组,先加入1.4中筛选的BCFA最适浓度处理细胞24 h,再加入筛选的LPS最适浓度处理细胞24 h)。

1.6 细胞内活性氧(reactive oxygen species,ROS)含量检测

2,7-二氯荧光素二乙酸酯(DCFH-DA)是一种可自由穿过细胞膜进入细胞内部的荧光探针,可以被细胞内的酯酶水解生成二氯二氢荧光素(DCFH),细胞内的ROS可以氧化无荧光的DCFH生成有荧光的2,7-二氯荧光素化氢探针(DCF)。检测DCF的荧光即可知道细胞内ROS的含量。按照ROS检测试剂盒(上海碧云天生物技术有限公司,S0033S)进行检测。
将IPEC-J2细胞接种于6孔板,使用DMEM/F12+10% FBS+1%双抗,在5% CO2、37 ℃的条件下培养。细胞状态良好且生长到80%时进行处理。简单地说,BCFA和/或LPS处理细胞完成后,用PBS清洗细胞3遍,添加按照1∶1 000用无血清培养基稀释的DCFH-DA(浓度为10 μmol/L),37 ℃培养箱内孵育20 min,充分装载探针后,用无血清培养基洗涤细胞3次,以去除未进入细胞内的DCFH-DA。在荧光显微镜下进行荧光检测。

1.7 目的基因相对表达量的测定

将IPEC-J2细胞接种于6孔板。按照1.5中方法分组处理细胞后,用冰的PBS洗涤细胞2次,按照制造商的方案,使用TRIzol试剂(Ambion公司,美国)提取总RNA。采用超微量分光光度计NanoDrop检测总RNA的含量和质量。用逆转录试剂盒(含dsDNase)(白鲨生物科技有限公司)将其逆转录为相应的cDNA。引物如表1所示,以β-肌动蛋白(β-actin)作为内参基因,由生工生物工程(上海)股份有限公司合成。使用QuantStudio3实时定量PCR仪进行实时荧光定量PCR(qRT-PCR)反应。反应体系:10 μL,其中上、下游引物各0.3 μL,cDNA 1 μL,FastStart Universal SYBR Green Master(ROX) 5 μL,ddH2O 3.4 μL。反应程序:50 ℃预变性2 min,95 ℃起始变性10 min;95 ℃模板变性15 s,60 ℃退火/延伸1 min,此过程执行40个循环;95 ℃高温变性15 s,60 ℃退火延伸1 min,95 ℃高温变性30 s。使用2-ΔΔCt法处理Ct值,得到各个试验组目的基因的相对表达量。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
登录号
Accession number
白细胞介素-1β
IL-1β
F: CAAGCCAGAGAAGCAAGGTGTCC
R: GCCGTCCTCAGCAGCAAGAAG
137 NM_001302388.2
白细胞介素-6
IL-6
F: AAATGTCGAGGCCGTGCAGATTAG
R: GGGTGGTGGCTTTGTCTGGATTC
86 NM_214399.1
白细胞介素-8
IL-8
F: GCTTGTCAATGGAAAAGAGGTCTG
R: TTACTGCTGTTGTTGTTGCTTCTC
106 NM_213867.1
白细胞介素-10
IL-10
F: AGCCAGCATTAAGTCTGAGAACAGC
R: GGTCAGCAACAAGTCGCCCATC
139 NM_214041.1
肿瘤坏死因子-α
TNF-α
F: GCACTGAGAGCATGATCCGAGAC
R: CGACCAGGAGGAAGGAGAAGAGG
120 NM_214022.1
干扰素-γ
IFN-γ
F: CGCAAAGCCATCAGTGAACTCATC
R: TTTGATGCTCTCTGGCCTTGGAAC
110 NM_213948.1
Toll样受体4
TLR4
F: GACGAAGACTGGGTGAGGAATGAAC
R: CCTGGATGATGTTAGCAGCGATGG
124 NM_001113039.2
髓样分化因子88
MyD88
F: CTGCGTCTGGTCCATTGCTAGTG
R: TTCTGATGGGCACCTGGAGAGAG
144 NM_001099923.1
核因子-κB
NF-κB
F: CTGAGGCTATAACTCGCTTGGTGAC
R: CATGTCCGCAATGGAGGAGAAGTC
131 NM_001114281.1
闭锁小带蛋白-1
ZO-1
F: CCAGGGAGAGAAGTGCCAGTAGG
R: TTTGGTGGGTTTGGTGGGTTGAC
92 XM_021098856.1
闭锁蛋白
Occludin
F: ACGCCACAGCCACAGCAATG
R: AAACGAACCCGACTAGCATCCATG
93 NM_001163647.2
封闭蛋白-1
Claudin-1
F: CCATCGTCAGCACCGCACTG
R: CGACACGCAGGACATCCACAG
107 NM_001244539.1
封闭蛋白-4
Claudin-4
F: TCATCGGCAGCAACATCGTCAC
R: CAGCAGCGAGTCGTACACCTTG
110 NM_001161637.1
半胱天冬酶-3
Caspase-3
F: CTGTAGAACTCTAACTGGCAAACCC
R: AGTCCCACTGTCCGTCTCAATC
94 NM_214131.1
半胱天冬酶-8
Caspase-8
F: GTGCCCTTCCCTTCTTGGTAAAC
R: GCTTCTGTCTGTTCTGAGTCTGTC
108 NM_001031779.2
半胱天冬酶-9
Caspase-9
F: GACCAGAGATTCGCAAACCAGAG
R: ATCACCAAATCCTCCAGAACCAATG
80 XM_013998997.2
凋亡蛋白
BAX
F: CTACCAAGAAGTTGAGCGAGTGTC
R: ACGGCTGCGATCATCCTCTG
85 XM_003127290.5
B淋巴细胞瘤-2
BCL-2
F: TCCACTATAAGCTGTCGCAGAGG
R: CGGGCTGGGAGGAGAAGATG
105 XM_021099593.1
β-肌动蛋白
β-actin
F: CTGGCACCACACCTTCTACAAC
R: TCATCTTCTCACGGTTGGCTTTG
104 XM_021086047.1

1.8 数据统计与分析

使用Excel 2019对试验数据进行初步整理和计算,采用SAS 9.4软件的单因素方差分析(one-way ANOVA)程序对细胞活力、ROS含量以及目的基因相对表达量进行显著性检验,采用Duncan氏法进行多重比较,P<0.05表示差异显著。ROS荧光显微镜检测结果由Image J软件分析并作图。其他数据制图均使用GraphPad Priam 9软件完成。

2 结果与分析

2.1 BCFA对LPS诱导下IPEC-J2细胞活性的影响

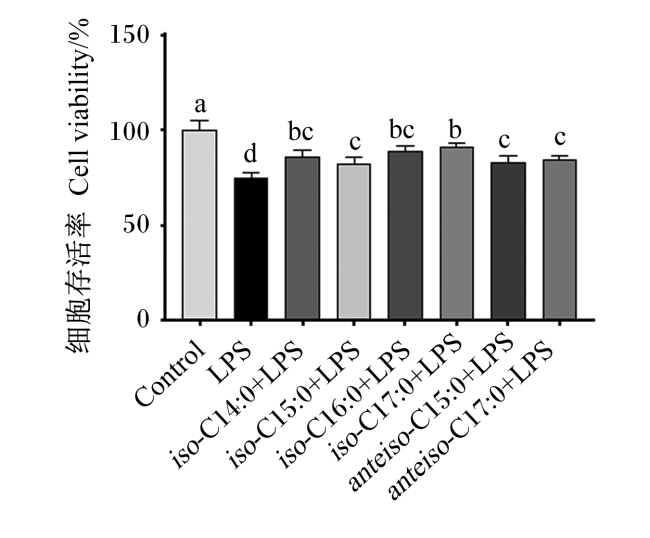
图1可见,与Control组相比,10 μg/mL LPS刺激IPEC-J2细胞后,可显著降低细胞存活率(P<0.05)。而当用1.5 μmol/L的BCFA对细胞进行预处理后,各BCFA组都对LPS诱导的IPEC-J2细胞存活率的降低产生了不同程度的缓解作用(P<0.05)。与其他BCFA相比,iso-C17∶0预处理后细胞存活率最高,达到91.55%。剩余BCFA对细胞存活率的影响从高到低依次为iso-C16∶0、iso-C14∶0、anteiso-C17∶0、anteiso-C15∶0和iso-C15∶0。
图1 6种BCFA单体对LPS诱导下IPEC-J2细胞活性的影响

Control:对照组;LPS:LPS诱导组;iso-C14∶0+LPS:iso-C14∶0+LPS组;iso-C15∶0+LPS:iso-C15∶0+LPS组;iso-C16∶0+LPS:iso-C16∶0+LPS组;iso-C17∶0+LPS:iso-C17∶0+LPS组;anteiso-C15∶0+LPS:anteiso-C15∶0+LPS组;anteiso-C17∶0+LPS:anteiso-C17∶0+LPS组。数据表示为平均值±标准差。数据标注不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of six BCFA monomers on viability of IPEC-J2 cells induced by LPS

Control: control group; LPS: LPS induction group; iso-C14∶0+LPS: iso-C14∶0+LPS group; iso-C15∶0+LPS: iso-C15∶0+LPS group; iso-C16∶0+LPS: iso-C16∶0+LPS group; iso-C17∶0+LPS: iso-C17∶0+LPS group; anteiso-C15∶0+LPS: anteiso-C15∶0+LPS group; anteiso-C17∶0+LPS: anteiso-C17∶0+LPS group. Data were presented as means±SD. Value columns with different letters mean significant difference (P<0.05). The same as below.

2.2 BCFA对LPS诱导下IPEC-J2细胞中ROS含量的影响

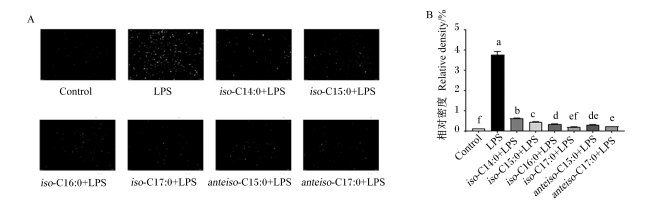
BCFA对LPS诱导下IPEC-J2细胞中ROS含量的影响如图2所示。与Control组相比,LPS处理会显著增加IPEC-J2细胞内ROS含量(上升至Control组的30.81倍)(P<0.05)。当对细胞进行BCFA处理后,荧光强度降低,意味着细胞内的ROS含量显著减少(P<0.05)。在6种BCFA单体中,iso-C17∶0的作用最为显著(降低至Control组的1.7倍)(P<0.05),其他BCFA对IPEC-J2细胞内ROS含量的影响由低到高依次为anteiso-C17∶0、anteiso-C15∶0、iso-C16∶0、iso-C15∶0和iso-C14∶0。
图2 BCFA对LPS诱导下IPEC-J2细胞中ROS含量的影响

A:活性氧染色的荧光显微镜观察(100 μm);B:荧光图片的荧光密度值分析。

Fig.2 Effects of BCFA on ROS content in IPEC-J2 cells induced by LPS

A: fluorescence microscopy observation of reactive oxygen species staining (100 μm); B: analysis of fluorescence density values in fluorescence images.

2.3 BCFA对LPS诱导下IPEC-J2细胞中细胞因子基因表达水平的影响
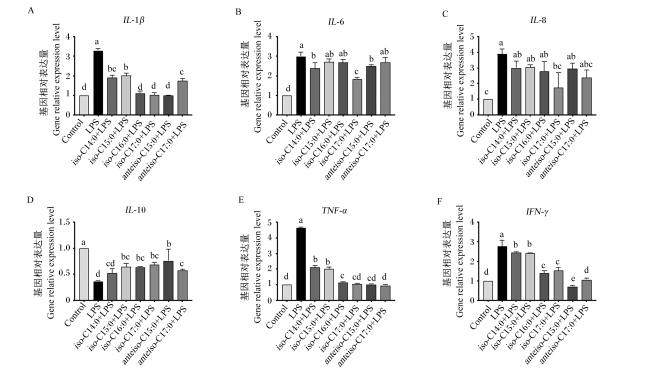
BCFA对LPS诱导下IPEC-J2细胞中细胞因子[白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、IL-8、IL-10、TNF-αIFN-γ]基因表达水平的影响如图3所示。与Control组相比,LPS刺激细胞后,显著增加了IPEC-J2细胞的IL-1βIL-6、IL-8、TNF-αIFN-γ的基因相对表达量(P<0.05),IL-10的基因相对表达量显著下降(P<0.05)。而经过BCFA预处理后,均显著降低了LPS诱导后IPEC-J2细胞中IL-1βTNF-αIFN-γ的基因相对表达量(P<0.05)。
图3 BCFA对LPS诱导下IPEC-J2细胞中细胞因子基因表达水平的影响

IL-1β: 白细胞介素- 1β interleukin-1β;IL-6: 白细胞介素-6 interleukin-6;IL-8:白细胞介素-8 interleukin-8;IL-10: 白细胞介素-10 interleukin-10;TNF-α: 肿瘤坏死因子-α tumor necrosis factor-alpha;IFN-γ:干扰素-γ interferon-gamma。

每组设置3个复孔,试验独立重复3次。下图同。

Fig.3 Effects of BCFA on cytokine gene expression levels in IPEC-J2 cells induced by LPS

Three replicate wells were set up in each group and the test was repeated independently three times. The same as below.

对于IL-1β基因相对表达量,iso-C16∶0、iso-C17∶0和anteiso-C15∶0的预处理效果最明显,anteiso-C17∶0次之,iso-C14∶0和iso-C15∶0较差,但仍显著低于LPS组(P<0.05);对于IL-6基因相对表达量,iso-C14∶0、iso-C17∶0和anteiso-C15∶0显著低于LPS组(P<0.05),其中,iso-C17∶0最低,而iso-C15∶0、iso-C16∶0和anteiso-C17∶0与LPS组差异不显著(P>0.05);对于IL-8基因相对表达量,只有iso-C17∶0表现出显著的保护效果(P<0.05),其他BCFA的保护作用不显著(P>0.05);对于IL-10基因相对表达量,除iso-C14∶0外,其他BCFA均具有显著的保护作用(P<0.05),其中,anteiso-C15∶0的保护效果最明显,然后依次是anteiso-C17∶0、iso-C16∶0、iso-C15∶0、iso-C17∶0和anteiso-C15∶0;对于TNF-α基因相对表达量,BCFA的预处理效果也比较显著(P<0.05),TNF-α基因相对表达量下调效果顺序由高到低依次为anteiso-C17∶0、anteiso-C15∶0、iso-C17∶0、iso-C16∶0、iso-C15∶0和iso-C14∶0;根据IFN-γ基因的相对表达量,anteiso-C15∶0预处理效果最优,其余BCFA处理效果依次为anteiso-C17∶0、iso-C16∶0、iso-C17∶0、iso-C15∶0和iso-C14∶0。

2.4 BCFA对LPS诱导下IPEC-J2细胞中TLR4/NF-κB通路相关基因表达水平的影响

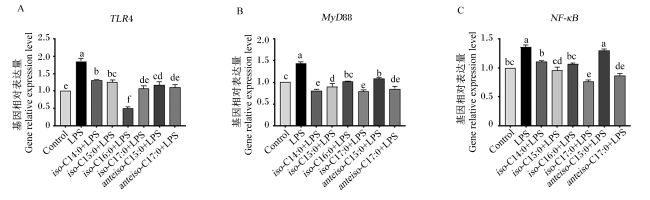
图4可见,与Control组相比,IPEC-J2细胞经过LPS刺激后,细胞中的TLR4、髓样分化因子88(MyD88)、NF-κB的基因相对表达量显著提高(P<0.05)。相似地,BCFA预处理后,细胞中TLR4/NF-κB信号通路相关基因的表达均得到了不同程度的改善,TLR4和MyD88的基因相对表达量均显著降低(P<0.05),除iso-C17∶0外,其他BCFA预处理后,细胞内NF-κB的基因相对表达量均显著降低(P<0.05)。其中,iso-C16∶0+LPS组TLR4的基因相对表达量最低,然后依次是iso-C17∶0、anteiso-C17∶0、anteiso-C15∶0、iso-C15∶0和iso-C14∶0。根据MyD88基因的相对表达量,iso-C17∶0预处理效果最优,其余BCFA处理效果依次为iso-C14∶0、anteiso-C17∶0、iso-C15∶0、iso-C16∶0和anteiso-C15∶0。iso-C17∶0+LPS组细胞内NF-κB的基因相对表达量最低,然后依次为anteiso-C17∶0、iso-C15∶0、iso-C16∶0、iso-C14∶0和anteiso-C15∶0。
图4 BCFA对LPS诱导下IPEC-J2细胞中TLR4/NF-κB通路相关基因表达水平的影响

TLR4:Toll样受体4 Toll-like receptor 4;MyD88:髓样分化因子88 myeloid differentiation factor 88;NF-κB:核因子-κB nuclear factor-κB。

Fig.4 Effects of BCFA on expression levels of TLR4/NF-κB pathway related genes in IPEC-J2 cells induced by LPS

2.5 BCFA对LPS诱导下IPEC-J2细胞中紧密连接蛋白相关基因表达水平的影响

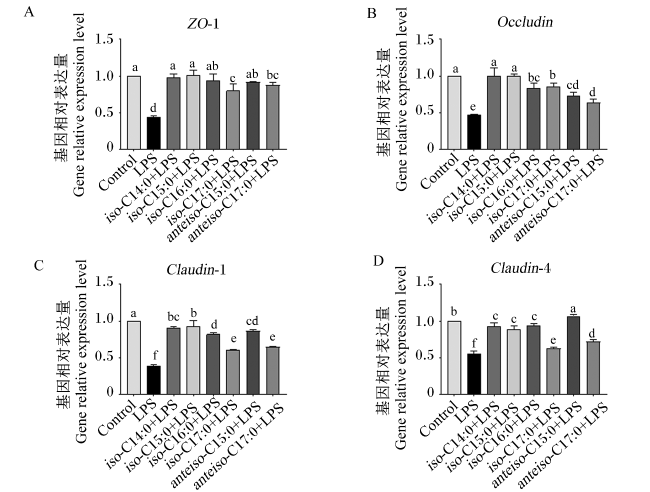
图5可见,与Control组相比,LPS诱导后,IPEC-J2细胞内的闭锁小带蛋白-1(ZO-1)、闭锁蛋白(Occludin)、封闭蛋白-1(Claudin-1)和封闭蛋白-4(Claudin-4)的基因相对表达量显著降低(P<0.05)。而经过BCFA预处理后再诱导细胞炎症,均不同程度地显著提高了细胞中ZO-1、OccludinClaudin-1和Claudin-4的基因相对表达量(P<0.05)。
图5 BCFA对LPS诱导下IPEC-J2细胞紧密连接蛋白相关基因表达水平的影响

ZO-1:闭锁小带蛋白-1 zonula occluden-1;Occludin:闭锁蛋白;Claudin-1:封闭蛋白-1;Claudin-4:封闭蛋白-4。

Fig.5 Effects of BCFA on expression levels of tight junction protein related genes in IPEC-J2 induced by LPS

iso-C14∶0和iso-C15∶0预处理后的细胞,其ZO-1的基因相对表达量最高,然后从高到低依次为iso-C16∶0、anteiso-C15∶0、anteiso-C17∶0和iso-C17∶0;对于Occludin的基因相对表达量,iso-C14∶0和iso-C15∶0的预处理效果最好,均与Control组无显著差异(P>0.05),其余BCFA预处理效果由高到低依次为iso-C17∶0、iso-C16∶0、anteiso-C15∶0和anteiso-C17∶0;iso-C15∶0+LPS组的Claudin-1的基因相对表达量最高,iso-C14∶0次之,anteiso-C15∶0和iso-C16∶0再次,anteiso-C17∶0和iso-C17∶0稍弱,但均显著高于LPS组(P<0.05);对于IPEC-J2细胞内Claudin-4的基因相对表达量,anteiso-C15∶0的预处理效果最好,甚至显著高于Control组(P<0.05),其他BCFA预处理效果由高到低依次为iso-C16∶0、iso-C14∶0、iso-C15∶0、anteiso-C17∶0和iso-C17∶0。由此可知,LPS会对IPEC-J2细胞间紧密连接造成损伤,而细胞经过BCFA的预处理后,细胞间紧密连接度增加,在不同程度上缓解了LPS对IPEC-J2细胞的刺激。

2.6 BCFA对LPS诱导下IPEC-J2细胞中Caspase相关基因基因表达水平的影响

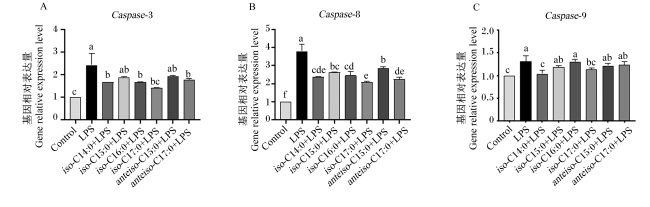
图6可见,用10 μg/mL LPS刺激细胞24 h后,与Control组相比,LPS组中半胱天冬酶-3(Caspase-3)、半胱天冬酶-8(Caspase-8)和半胱天冬酶-9(Caspase-9)基因相对表达量均显著升高(P<0.05)。与LPS组相比,经过iso-C14∶0、iso-C16∶0、iso-C17∶0和anteiso-C17∶0预处理后,均显著降低了IPEC-J2细胞中Caspase-3的基因相对表达量(P<0.05),其中,iso-C17∶0预处理效果最好。而对于Caspase-8基因相对表达量,BCFA预处理效果以iso-C17∶0最好,然后依次为anteiso-C17∶0、iso-C14∶0、iso-C16∶0、iso-C15∶0和anteiso-C15∶0;iso-C14∶0和iso-C17∶0均显著降低了IPEC-J2细胞中Caspase-9的基因相对表达量(P<0.05),iso-C14∶0效果最明显,其他BCFA无显著保护效果。结果表明,LPS会激活IPEC-J2细胞中Caspase家族相关基因的表达,从而导致细胞发生凋亡,而BCFA具有一定的保护效果,但每种BCFA单体的保护效果不一。
图6 BCFA对LPS诱导下IPEC-J2细胞中Caspase相关基因表达水平的影响

Caspase-3:半胱天冬酶-3;Caspase-8:半胱天冬酶-8;Caspase-9:半胱天冬酶-9。

Fig.6 Effects of BCFA on expression levels of Caspase related genes in IPEC-J2 cells induced by LPS

2.7 BCFA对LPS诱导下IPEC-J2细胞中BAXBCL-2基因表达水平的影响

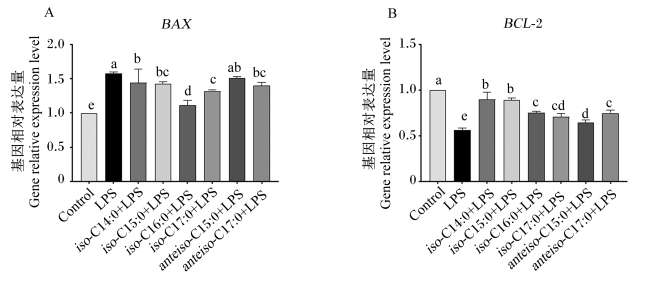
图7可知,与Control组比较,LPS组显著升高了IPEC-J2细胞中BAX基因相对表达量(P<0.05)。与LPS组相比,除anteiso-C15∶0外,加入其他BCFA单体,会显著降低BAX基因相对表达量(P<0.05)。iso-C16∶0+LPS组细胞内BAX的基因相对表达量最低,然后从低到高依次为iso-C17∶0、anteiso-C17∶0、iso-C15∶0、iso-C14∶0和anteiso-C15∶0。BCL-2基因相对表达量与BAX的基因相对表达量呈现相反趋势,BCFA的保护效果以iso-C14∶0和iso-C15∶0最佳,iso-C16∶0、anteiso-C17∶0及iso-C17∶0次之,anteiso-C15∶0相对较差,但仍显著高于LPS组(P<0.05)。
图7 BCFA对LPS诱导下IPEC-J2细胞中BAX和BCL-2基因表达水平的影响

BAX: 凋亡蛋白 BCL-2-associated X protein; BCL-2:B淋巴细胞瘤-2 B-cell lymphoma-2。

Fig.7 Effects of BCFA on expression levels of BAX and BCL-2 genes in IPEC-J2 cells induced by LPS

3 讨论

肠道不仅是动物营养物质消化吸收的主要场所,也是体内最大的免疫器官[11]。然而,在养猪生产中,由病原体感染[12-14]和应激(如断奶)[15]等多种因素引起的炎症会导致肠道黏膜损伤和功能障碍,从而导致猪的生长不良[16],严重危害畜牧业发展和动物福利。LPS是革兰氏阴性菌外膜上具有活性的成分,是建立急性炎症模型的常用诱导剂[17-18]。BCFA在抗炎、抗氧化、维持肠道屏障等方面发挥重要作用[6,19]。但当前,有关BCFA在猪肠道炎症中的作用的相关研究还比较少见,因此,本试验用BCFA对IPEC-J2细胞进行预处理,使用LPS作为诱导剂,以评估BCFA对LPS诱导的肠道炎症、细胞凋亡和细胞屏障功能障碍的缓解作用。
细胞活性是评估细胞生长、增殖和代谢状态的重要指标。在LPS处理IPEC-J2细胞检测细胞活性的预试验中,10 μg/mL的LPS处理IPEC-J2细胞24 h,可以显著降低细胞存活率,提升细胞内炎症因子的基因表达量,且细胞形态稍皱缩,因此,选择此条件作为造模条件。这与Zhao等[4]的研究结果一致,试验用10 μg/mL的LPS处理IPEC-J2细胞24 h后,细胞间的紧密连接发生改变,细胞完整性受损。本试验中,BCFA的添加能显著保持LPS诱导下IPEC-J2细胞活性,保护作用明显,这与Yan等[9]的研究结果类似,在这个试验中,研究学者用浓度均为25 μmol/L的7种BCFA单体(分别为iso-C14∶0、iso-C16∶0、iso-C18∶0、iso-C20∶0、anteiso-C13∶0、anteiso-C15∶0和anteiso-C17∶0)处理Caco-2细胞24 h,最终发现其对LPS诱导导致的细胞活性下降有明显的缓解作用,并且测定结果显示,BCFA的碳链长度越短(如iso-C14∶0、iso-1C6∶0和anteiso-C13∶0),维持细胞活性的能力越显著。
ROS是生物体有氧代谢过程中的副产物,具有高度的化学反应活性,可以参与多种生物化学反应,包括氧化蛋白质、脂质和DNA等生物大分子,从而导致细胞结构和功能的损伤[20]。在仔猪饲养过程中,动物自身的生理阶段,外界环境变化以及与母体的依赖程度变化等因素,都会不同程度地导致机体处于氧化应激状态,如断奶应激、冷热应激或母子分离等[21-23]。在本研究结果中,每种BCFA单体都能降低IPEC-J2细胞内因LPS刺激而导致的ROS生成,尤其是anteiso-C17∶0,这说明BCFA可以降低炎症细胞代谢过程中的过氧化程度,进而降低氧化应激水平,保护细胞免受自由基的侵害,缓解外界因素对细胞的损伤作用。目前,有关BCFA影响机体ROS含量的研究较少,但Mika等[24]在探索肥胖人群血清中奇链支链脂肪酸含量特征时发现,与正常体重相比,肥胖人群其血清中的C反应蛋白(C-reactive protein,CRP)及胰岛素含量与iso-BCFA水平(iso-C15∶0、iso-C16∶0、iso-C17∶0、anteiso-C15∶0和anteiso-C17∶0)呈现明显的负相关,而肥胖往往被证明与机体组织的炎症发生有关,因此,我们可以推测,iso-BCFA在机体抗炎方面具有一定程度的正向效果。
过量的炎性细胞因子会对机体产生有害影响,有多种炎性细胞因子参与炎症反应,如IL-1β、IL-8、IL-10和TNF-α,它们被认为是参与炎症发生发展过程中的必需炎症介质,介导炎症反应和疾病发展[25]。先前的研究表明,LPS刺激能促进仔猪结肠黏膜中促炎症因子IL-1βTNF-αIL-6的表达,造成炎症损伤[1]。大量研究表明,具有抗氧化特性的物质均能够有效缓解LPS对机体和细胞的氧化损伤作用。例如,黄芩苷可以减轻LPS诱导的IPEC-J2细胞氧化应激,降低IPEC-J2细胞中IL-1βIL-6、TLR4、TNF-α基因的表达[26];钩吻素子缓解LPS诱导的IPEC-J2细胞内IL-1β、IL-6含量的上升[27]。BCFA在不同研究中均表现出抗炎效果,例如,Yan等[9]研究发现,当7种BCFA单体作用于LPS诱导的Caco-2细胞时,降低了细胞内IL-8、NF-κBTLR4的基因表达。Ran-Ressler等[10]使用含BCFA混合物的乳汁饲喂新生SD大鼠时,回肠IL-10基因的表达量增加了3倍。根据之前的结果可知,BCFA具有一定的抗氧化特性,能够有效缓解LPS对细胞的氧化损伤作用,进而缓解其毒性作用。因此,使用BCFA对LPS刺激后IPEC-J2细胞的炎症相关细胞因子进行了检测,发现BCFA可以降低促炎因子基因的相对表达量,减少炎症损伤。
NF-κB信号通路在机体的免疫应答和炎症反应过程中起着重要作用。TLR4作为NF-κB上游调控基因,是调控炎症反应过程中不可或缺的角色,当TLR4被激活时,它会启动一系列信号转导过程,进而引发炎症反应和免疫应答[28]。在先前的一系列研究中发现,L-精氨酸在LPS引起IPEC-J2细胞的炎症中,可以通过减少TLR4、MyD88、NF-κB p65和IL-8的基因表达量来表现出抗炎作用[29];来自鸡血藤的活性成分通过调节小胶质细胞活化和极化来抑制LPS刺激的BV2细胞中TLR4/MyD88/NF-κB通路,进而抑制炎症反应[30]。本研究中,BCFA能够在显著降低NF-κB的基因表达的同时抑制TLR4和MyD88的表达,从而抑制炎症反应。在脂肪酸的研究中,具有相似抗炎活性的还有C12∶0和C16∶0,它们也被证实能够激活细胞表面的TLR4基因[31]。然而,从本试验的数据来看,6种BCFA单体脂肪酸对NF-κB通路相关基因的表达量的影响不尽相同,这说明缓解细胞内炎症反应的通路可能不止一条,需要设计更进一步的试验来进行验证。
肠道屏障功能的完整性是维持肠道健康的基础,紧密连接蛋白是维持黏膜上皮的机械屏障和通透性的关键[32]。有研究发现,当IPEC-J2细胞遭受刺激后,会使其紧密连接蛋白(ZO-1、OccludinClaudin-1或Claudin-4)基因表达量下降,破坏肠上皮屏障功能[33-34]。本研究结果发现,LPS刺激在一定程度上减弱了IPEC-J2细胞的紧密连接蛋白基因表达,补充BCFA改善了LPS对4种紧密连接蛋白的抑制作用,提示LPS刺激对肠道有明显的毒性作用,能够破坏肠道屏障,补充BCFA可减轻LPS对肠道的毒性。现有研究明,断奶是导致仔猪应激和肠道疾病的主要因素之一[35]。断奶本身就是一种氧化应激,能引发动物肠道内线粒体功能障碍、肠道细胞坏死和炎症,破坏肠道细胞的紧密连接,导致肠道屏障功能障碍,所以,BCFA在预防仔猪肠道疾病方面,可能会发挥一定的潜在保护作用。
细胞凋亡是一种程序性细胞死亡,是受基因调控的、有序的细胞死亡过程,它在正常生命过程中起着维护机体稳态的重要作用。Zhao等[4]发现,LPS作用于IPEC-J2细胞,会提高细胞中凋亡基因(Caspase-3、Caspase-8、Caspase-9和BAX)表达水平和细胞凋亡率。Luo等[36]的研究中,产气荚膜梭菌β2毒素刺激IPEC-J2细胞,上调了BAX基因的表达,下调了BCL-2和BCL-XL的表达。本试验也得到相似的数据结果,当用LPS刺激IPEC-J2细胞24 h后,Caspase-3、Caspase-8、Caspase-9和BAX的基因相对表达量显著升高,BCL-2基因相对表达量降低。但经BCFA预处理后,Caspase-3、Caspase-8、Caspase-9和BAX的基因相对表达量均显著降低,BCL-2基因相对表达量升高。这表明BCFA可以在一定程度上减少LPS诱导的细胞凋亡,这种凋亡很可能是通过抑制凋亡的相关基因活性来实现的。与本试验部分结果一致,在李姣[37]的研究中,iso-C15∶0、anteiso-C15∶0和anteiso-C17∶0缓解了棕榈酸诱导的人肝细胞内质网应激,BCFA与棕榈酸共处理后的细胞没有出现明显的调亡形态,棕榈酸处理细胞会上调剪切的Caspase-3的蛋白水平,而BCFA与棕榈酸共处理的细胞内剪切的Caspase-3蛋白表达没有被上调。

4 结论

综上所述,BCFA可以减少IPEC-J2细胞内ROS的集聚,可以调节炎症细胞因子分泌,能够抑制TLR4/NF-κB信号通路的过度激活,还可以提高紧密连接相关基因表达,调节凋亡基因的表达,来缓解LPS引起的IPEC-J2细胞的炎症反应。6种BCFA单体对LPS诱导下IPEC-J2细胞炎症损伤有不同程度的影响,均可对IPEC-J2细胞起到一定的保护作用。
[1]
GAO R, TIAN S Y, WANG J, et al. Galacto-oligosaccharides improve barrier function and relieve colonic inflammation via modulating mucosa-associated microbiota composition in lipopolysaccharides-challenged piglets[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):92.

DOI PMID

[2]
TANG X P, XIONG K N, FANG R J, et al. Weaning stress and intestinal health of piglets:a review[J]. Frontiers in Immunology, 2022, 13:1042778.

[3]
OKUMURA R, TAKEDA K. Roles of intestinal epithelial cells in the maintenance of gut homeostasis[J]. Experimental and Molecular Medicine, 2017, 49(5):e338.

[4]
ZHAO L, LI M Y, SUN K C, et al. Hippophae rhamnoides polysaccharides protect IPEC-J2 cells from LPS-induced inflammation,apoptosis and barrier dysfunction in vitro via inhibiting TLR4/NF-κB signaling pathway[J]. International Journal of Biological Macromolecules, 2020, 155:1202-1215.

[5]
李兰柱. 芦丁对LPS诱导瘤胃上皮细胞炎症损伤的干预作用及其机制的研究[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2023.

LI L Z. Study on the intervention effect and its mechanism of rutin on inflammatory injury of rumen epithelial cells induced-by LPS[D]. Master’s Thesis.Harbin:Northeast Agricultural University, 2023. (in Chinese)

[6]
HE Y, LEI J N, ZHU S, et al. Monomethyl branched-chain fatty acids-a pearl dropped in the ocean[J/OL]. Critical Reviews in Food Science and Nutrition, 2023:1-13.(2023-05-04)[2024-03-01].https://www.tandfonline.com/doi/full/10.1080/10408398.2023.2207655.

[7]
KAISER J C, SEN S, SINHA A, et al. The role of two branched-chain amino acid transporters in Staphylococcus aureus growth, membrane fatty acid composition and virulence[J]. Molecular Microbiology, 2016, 102(5):850-864.

[8]
EDGCOMB M R, SIRIMANNE S, WILKINSON B J, et al. Electron paramagnetic resonance studies of the membrane fluidity of the foodborne pathogenic psychrotroph Listeria monocytogenes[J]. Biochimica et Biophysica Acta:Biomembranes, 2000, 1463(1):31-42.

[9]
YAN Y, WANG Z, GREENWALD J, et al. BCFA suppresses LPS induced IL-8 mRNA expression in human intestinal epithelial cells[J]. Prostaglandins, Leukotrienes, and Essential Fatty Acids, 2017, 116:27-31.

[10]
RAN-RESSLER R R, KHAILOVA L, ARGANBRIGHT K M, et al. Branched chain fatty acids reduce the incidence of necrotizing enterocolitis and alter gastrointestinal microbial ecology in a neonatal rat model[J]. PLoS One, 2011, 6(12):e29032.

[11]
DING S J, CHENG Y T, AZAD M A K, et al. Development of small intestinal barrier function and underlying mechanism in Chinese indigenous and Duroc piglets during suckling and weaning periods[J]. Animal Nutrition, 2024, 16:429-442.

DOI PMID

[12]
ZHAO X, JIANG L, FANG X Y, et al. Host-microbiota interaction-mediated resistance to inflammatory bowel disease in pigs[J]. Microbiome, 2022, 10(1):115.

DOI PMID

[13]
LI Q H, ZHANG M, SUN J, et al. Porcine β-defensin-2 alleviates aflatoxin B1 induced intestinal mucosal damage via ROS-Erk1/2 signaling pathway[J]. Science of the Total Environment, 2023, 905:167201.

[14]
JIN X, LI Q H, SUN J, et al. Porcine β-defensin-2 alleviates AFB1-induced intestinal mucosal injury by inhibiting oxidative stress and apoptosis[J]. Ecotoxicology and Environmental Safety, 2023, 262:115161.

[15]
JI F J, YANG H S, WANG Q Y, et al. Porcine intestinal antimicrobial peptide as an in-feed antibiotic alternative improves intestinal digestion and immunity by shaping the gut microbiota in weaned piglets[J]. Animal Nutrition, 2023, 14:43-55.

DOI PMID

[16]
LIU Y L. Fatty acids,inflammation and intestinal health in pigs[J]. Journal of Animal Science and Biotechnology, 2016, 7(3):321-329.

[17]
CHEN X L, LUO D Y, JIA G, et al. L-theanine attenuates porcine intestinal tight junction damage induced by LPS via p38 MAPK/NLRP3 signaling in IPEC-J2 cells[J]. Food and Chemical Toxicology, 2023, 178:113870.

[18]
LU Q R, WANG N, WEN D F, et al. Baicalin attenuates lipopolysaccharide-induced intestinal inflammatory injury via suppressing PARP1-mediated NF-κB and NLRP3 signalling pathway[J]. Toxicon:Official Journal of the International Society on Toxinology, 2024, 239:107612.

[19]
GOZDZIK P, MAGKOS F, SLEDZINSKI T, et al. Monomethyl branched-chain fatty acids:health effects and biological mechanisms[J]. Progress in Lipid Research, 2023, 90:101226.

[20]
TAO L L, LEMOFF A, WANG G X, et al. Reactive oxygen species oxidize sing and suppress interferon production[J]. eLife, 2020, 9:e57837.

[21]
KANG R F, LI R N, DAI P Y, et al. Deoxynivalenol induced apoptosis and inflammation of IPEC-J2 cells by promoting ROS production[J]. Environmental Pollution, 2019, 251:689-698.

DOI PMID

[22]
HUANG Y H, MO S K, JIN Y, et al. Ammonia-induced excess ROS causes impairment and apoptosis in porcine IPEC-J2 intestinal epithelial cells[J]. Ecotoxicology and Environmental Safety, 2022, 243:114006.

[23]
ZHANG B L, SUN H L, SUN Z W, et al. Glutamine alleviated heat stress-induced damage of porcine intestinal epithelium associated with the mitochondrial apoptosis pathway mediated by heat shock protein 70[J]. Journal of Animal Science, 2023, 101:skad127.

[24]
MIKA A, STEPNOWSKI P, KASKA L, et al. A comprehensive study of serum odd- and branched-chain fatty acids in patients with excess weight[J]. Obesity, 2016, 24(8):1669-1676.

DOI PMID

[25]
CHAE B S. Pretreatment of low-dose and super-low-dose LPS on the production of in vitro LPS-induced inflammatory mediators[J]. Toxicological Research, 2018, 34(1):65-73.

[26]
BAO M L, LIANG M, SUN X Y, et al. Baicalin alleviates LPS-induced oxidative stress via NF-κB and Nrf2-HO1 signaling pathways in IPEC-J2 cells[J]. Frontiers in Veterinary Science, 2021, 8:808233.

[27]
WU J, YANG C L, SHA Y K, et al. Koumine alleviates lipopolysaccharide-induced intestinal barrier dysfunction in IPEC-J2 cells by regulating Nrf2/NF- κB pathway[J]. American Journal of Chinese Medicine, 2020, 48(1):127-142.

[28]
SHI L, FANG B, YONG Y H, et al. Chitosan oligosaccharide-mediated attenuation of LPS-induced inflammation in IPEC-J2 cells is related to the TLR4/NF-κB signaling pathway[J]. Carbohydrate Polymers, 2019, 219:269-279.

DOI PMID

[29]
QIU Y Q, YANG X F, WANG L, et al. L-arginine inhibited inflammatory response and oxidative stress induced by lipopolysaccharide via arginase-1 signaling in IPEC-J2 cells[J]. International Journal of Molecular Sciences, 2019, 20(7):1800.

[30]
BAN M L, SU H, ZENG X B, et al. An active fraction from Spatholobus suberectus dunn inhibits the inflammatory response by regulating microglia activation,switching microglia polarization from M1 to M2 and suppressing the TLR4/MyD88/NF-κB pathway in LPS-stimulated BV2 cells[J]. Heliyon, 2023, 9(4):e14979.

[31]
MANČEK-KEBER M, JERALA R. Postulates for validating TLR4 agonists[J]. European Journal of Immunology, 2015, 45(2):356-370.

[32]
BUCKLEY A, TURNER J R. Cell biology of tight junction barrier regulation and mucosal disease[J]. Cold Spring Harbor Perspectives in Biology, 2018, 10(1):a029314.

[33]
JIANG Q, YIN J, CHEN J S, et al. 4-phenylbutyric acid accelerates rehabilitation of barrier function in IPEC-J2 cell monolayer model[J]. Animal Nutrition, 2021, 7(4):1061-1069.

DOI PMID

[34]
HUI Q R, AMMETER E, LIU S X, et al. Eugenol attenuates inflammatory response and enhances barrier function during lipopolysaccharide-induced inflammation in the porcine intestinal epithelial cells[J]. Journal of Animal Science, 2020, 98(8):skaa245.

[35]
HU R Z, HE Z Y, LIU M, et al. Dietary protocatechuic acid ameliorates inflammation and up-regulates intestinal tight junction proteins by modulating gut microbiota in LPS-challenged piglets[J]. Journal of Animal Science and Biotechnology, 2020, 11:92.

DOI PMID

[36]
LUO R R, YANG Q L, HUANG X Y, et al. Clostridium perfringens beta2 toxin induced in vitro oxidative damage and its toxic assessment in porcine small intestinal epithelial cell lines[J]. Gene, 2020, 759:144999.

[37]
李姣. 支链脂肪酸iso-15∶0和iso-18∶0的体外降脂作用及机制研究[D]. 硕士学位论文. 长沙: 湖南农业大学, 2017.

LI J. Effects of Branched chain fatty acids iso-15∶0 and iso-18∶0 in vitro and its mechanism[D]. Master’s Thesis. Changsha: Hunan Agricultural University, 2017. (in Chinese)

文章导航

/