研究论文

不同发酵时间对燕麦-饲用豌豆发酵全混合日粮营养成分、发酵品质、康奈尔净碳水化合物-蛋白质体系组分及瘤胃降解特性的影响

  • 张珈敏 , 1 ,
  • 李海萍 2 ,
  • 贾志锋 3 ,
  • 马祥 3 ,
  • 陈有军 1 ,
  • 陈仕勇 1 ,
  • 黄艳玲 4 ,
  • 杨丽雪 1 ,
  • 周青平 1 ,
  • 关皓 , 1, *
展开
  • 1 西南民族大学,四川若尔盖高寒湿地生态系统国家野外科学观测研究站,成都 610041
  • 2 青海师范大学数学与统计学院,西宁 810016
  • 3 青海大学畜牧兽医科学院,青海省青藏高原优良牧草种质资源利用重点实验室,西宁 810016
  • 4 西南民族大学畜牧兽医学院,成都 610041
* 关 皓,助理研究员,硕士生导师,E-mail:

张珈敏(1998—),女,四川资阳人,硕士研究生,研究方向为饲草加工及利用。E-mail:

Office editor: 武海龙

收稿日期: 2024-03-25

  网络出版日期: 2024-09-08

基金资助

西南民族大学“双一流”项目(CX2023014)

青海省重点研发与转化计划(2022-NK-130)

四川省归国留学人员择优资助项目(【2023】703号)

四川省肉牛创新团队建设专项经费(CXTD2019-13)

Effects of Different Fermentation Time on Nutritional Composition, Fermentation Quality, Cornell Net Carbohydrate Protein System Components and Rumen Degradation Characteristics of Oat-Feed Pea Wrapped Fermentation Total Mixed Ration

  • ZHANG Jiamin , 1 ,
  • LI Haiping 2 ,
  • JIA Zhifeng 3 ,
  • MA Xiang 3 ,
  • CHEN Youjun 1 ,
  • CHEN Shiyong 1 ,
  • HUANG Yanling 4 ,
  • YANG Lixue 1 ,
  • ZHOU Qingping 1 ,
  • GUAN Hao , 1, *
Expand
  • 1 Sichuan Zoige Alpine Wetland Ecosystem National Observation and Research Station, Southwest Minzu University, Chengdu 610041, China
  • 2 School of Mathematics Statistics, Qinghai Normal University, Xining 810016, China
  • 3 Key Laboratory of Use of Forage Germplasm Resources on Tibetan Plateau Qinghai Province, Qinghai Academy of Animal Science and Veterinary Medicine, Qinghai University, Xining 810016, China
  • 4 College of Animal and Veterinary Sciences, Southwest Minzu University, Chengdu 610041, China
* assistant professor, E-mail:

Received date: 2024-03-25

  Online published: 2024-09-08

摘要

本试验旨在探究不同发酵时间对高寒地区燕麦-饲用豌豆发酵全混合日粮(TMR)营养成分、发酵品质、康奈尔净碳水化合物-蛋白质体系(CNCPS)组分及瘤胃降解特性的影响,解析发酵TMR的营养成分和瘤胃降解特性在不同发酵时间下的变化规律。将6∶4混播的燕麦和饲用豌豆刈割后,添加青稞秸秆、油菜秸秆、油菜粕和预混料,再均匀喷洒乳酸菌剂,将其制成裹包发酵TMR,室外温度(-10~15 ℃)下存放,分别在发酵30、120、200 d取样进行营养成分、发酵品质、CNCPS组分和瘤胃降解特性的测定。结果表明:1)发酵200 d的酸性洗涤纤维和酸性洗涤木质素含量显著高于发酵30和120 d(P<0.05)。2)发酵30 d的氨态氮和乙酸含量显著低于发酵120和200 d(P<0.05)。3)CNCPS分析发现,发酵120 d的慢速降解真蛋白质含量最低,显著低于发酵30 d(P<0.05);发酵120 d的碳水化合物含量显著高于发酵30和200 d(P<0.05),发酵200 d的不可利用碳水化合物含量显著高于发酵30和120 d(P<0.05)。4)NRC模型分析发现,发酵30 d的真可消化脂肪酸含量显著高于发酵120和200 d(P<0.05),发酵200 d的维持水平总可消化养分含量及生产水平消化能、生产水平代谢能、生产水平泌乳净能、维持净能、增重净能显著低于发酵30和120 d(P<0.05)。5)发酵200 d的72 h实际产气量、理论最大产气量和产气速率显著低于发酵30和120 d(P<0.05)。发酵200 d的粗蛋白质降解率显著低于发酵30和120 d(P<0.05)。发酵120 d的瘤胃pH显著低于发酵30和120 d(P<0.05)。发酵30 d的瘤胃氨态氮含量显著高于发酵120和200 d(P<0.05)。综上所述,在高寒地区极端气候条件下,燕麦-饲用豌豆发酵TMR品质会随着发酵时间的延长而降低,发酵30和120 d能有效保存营养物质,利用此配方调制发酵TMR,能延长饲料存储时间,提高非常规饲料的利用率,维持反刍动物的营养需要。

本文引用格式

张珈敏 , 李海萍 , 贾志锋 , 马祥 , 陈有军 , 陈仕勇 , 黄艳玲 , 杨丽雪 , 周青平 , 关皓 . 不同发酵时间对燕麦-饲用豌豆发酵全混合日粮营养成分、发酵品质、康奈尔净碳水化合物-蛋白质体系组分及瘤胃降解特性的影响[J]. 动物营养学报, 2024 , 36(9) : 6058 -6071 . DOI: 10.12418/CJAN2024.514

Abstract

The purpose of this experiment was to investigate the effects of different fermentation time on nutritional composition, fermentation quality, Cornell net carbohydrate protein system (CNCPS) components and rumen degradation characteristics of oat-feed pea wrapped fermentation total mixed ration (TMR) in alpine regions, and to analyze the changing rules of nutritional composition and rumen degradation characteristics of fermentation TMR under different fermentation time. The 6∶4 mixture of oat and feed pea was mowed, the barley straw, rape straw, rape meal and premix were added, and then evenly sprayed with lactic acid bacterial agents, which were made into a wrapped fermentation TMR, stored at outdoor temperature (-10 to 15 ℃), and sampled for determination of nutritional composition, fermentation quality, CNCPS components and rumen degradation characteristics on fermented 30, 120 and 200 days, respectively. The results showed as follows: 1) the acid detergent fiber and acid detergent lignin contents at fermented 200 days were significantly higher than those at fermented 30 and 120 days (P<0.05). 2) The ammonium nitrogen and acetic acid contents at fermented 30 days was significantly lower than those at fermented 120 and 200 days (P<0.05). 3) CNCPS analysis showed that the slow degradation true protein content at fermented 120 days was the lowest, and significantly lower than that at fermented 30 days (P<0.05); the carbohydrate content at fermented 120 days was significantly higher than that at fermented 30 and 200 days (P<0.05), and the unavailable carbohydrate content at fermented 200 days was significantly higher than that at fermented 30 and 120 days (P<0.05). 4) The NRC model analysis showed that the true digestible fatty acid content at fermented 30 days was significantly higher than that at fermented 120 and 200 days (P<0.05), the maintain level total digestible nutrient content and production level digestible energy, production level metabolizable energy, production level lactation net energy, maintenance net energy and net energy for gaining weight at fermented 200 days were significantly lower than those at fermented 30 and 120 days (P<0.05). 5) The 72 h actual gas production, theological maximum gas production and gas production rate at fermented 200 days were significantly lower than those at fermented 30 and 120 days (P<0.05). The crude protein degradation rate at fermented 200 days was significantly lower than that at fermented 30 and 120 days (P<0.05). The rumen pH at fermented 120 days was significantly lower than that at fermented 30 and 200 days (P<0.05). The rumen ammonium nitrogen content at fermented 30 days was significantly higher than that at fermented 120 and 200 days (P<0.05). In conclusion, under extreme climatic conditions in alpine regions, the quality of fermentation TMR was decrease with the fermentation time increase, and fermented 30 and 120 days can effectively preserve the nutrients, the fermentation TMR formulated using this formula can prolong the storage time of feeds, improve the utilization rate of non-conventional feeds, and maintain the nutritional needs of ruminants.

青藏高原主要支柱产业为草地畜牧业[1]。然而,近年来该地区草地退化问题日益严重,加之特殊气候环境的影响,使得饲草的季节性供应变得极不平衡。这种不平衡现象对畜牧业的可持续高效发展构成了严峻的挑战[2]。因此,提高饲草种植、加工利用技术水平是实现高原草地畜牧业养殖效率与效益最大化的必要措施。近年来,因优质的营养成分和饲草产量,基于禾豆混播的人工草地建植技术在青藏高原得到广泛的推广应用[3]
燕麦(Avena sativa)是禾本科燕麦属一年生草本植物,因其耐寒、抗旱、易于种植等优秀特性,燕麦作为主要饲草作物在气候恶劣、暖季短暂、冷期漫长的高寒、高纬度牧区被广泛种植[4]。饲用豌豆(Pisum arvense)作为一种豆科一年生攀援草本植物,富含蛋白质并且具有柔软的草质,易于消化,因此被广泛地用作优质饲料以满足家畜的食用需求[5]。就饲用属性而言,与燕麦单播相比,将燕麦与饲用豌豆进行混播具有明显优势,可有效提高饲草产量及其粗蛋白质(crude protein,CP)含量,从而改善生产效益[6]。将燕麦与饲用豌豆进行混合青贮,不仅可以有效减轻饲用豌豆青贮过程中水溶性碳水化合物(water soluble carbohydrate,WSC)不足及缓冲能力过高带来的问题,同时也能够解决燕麦青贮中CP含量低、粗纤维(crude fiber,CF)含量高等问题,从而在促进青贮营养成分的提升和发酵品质的改善方面起到积极作用[7]。青藏高原地区秸秆和饼粕等农副产品资源丰富,也是潜在的饲料来源,但传统饲喂模式为精粗料分开饲喂,适口性差,采食量低,不仅饲喂成本高,还造成了资源的严重浪费。
发酵全混合日粮(total mixed ration,TMR)是指将富含所需多种养分和成分的干草、青贮或其他农副产品等均匀混合,并在厌氧条件下进行青贮发酵,制得的一种养分相对均衡的饲粮。发酵TMR适口性佳、养分消化率高,具备耐储存性和便于运输等优点,同时可提升饲料利用效率和生产性能[8]。青贮是一个复杂的微生物动态过程,实际生产中,青藏高原地区特殊的气候环境易导致青贮发酵不稳定,饲料品质受影响[9]。在长时间的贮存过程中,经过反复冻融,青贮饲料易出现腐败变质现象。常规的评价方法很难全面反映饲料特性、营养成分及动物对饲料的利用情况,难以评估高寒气候对青贮饲料的负面影响。
因此,本研究以燕麦和饲用豌豆为主要原料制备发酵TMR,利用康奈尔净碳水化合物-蛋白质体系(Cornell net carbohydrate protein system,CNCPS)[10]和NRC(2016)[11]模型评价其营养价值,拟探究发酵时间对发酵TMR营养成分、CNCPS组分和发酵品质的影响,并利用体外产气法解析其瘤胃降解规律。以期通过合理的配方设计减少冻融环境对发酵TMR品质的不良影响,在降低饲喂成本的同时,为青藏高原发酵TMR生产提供科学依据,为非常规饲料资源的开发利用提供参考。

1 材料与方法

1.1 试验材料

试验材料为青海甜燕麦和青建一号饲用豌豆,于2022年5月在青海省海南藏族自治州贵南县(100°45'E,35°34'12″N)按照燕麦∶饲用豌豆=6∶4的比例混播种植,刈割时期为燕麦乳熟期和饲用豌豆结荚期,留茬高度10 cm。

1.2 试验设计

参照NRC(2016)[11]肉牛营养需要调制裹包发酵TMR,原料为燕麦和饲用豌豆混播饲草、青稞秸秆、油菜秸秆、油菜粕及预混料。将饲草切短至2~3 cm,按比例将几种原料混合均匀,然后均匀喷洒“青贮伴侣”系列自选乳酸菌剂,菌剂成分为植物乳杆菌160(Lactobacillus plantarum 160,专利号ZL202210218695.5)、戊糖乳杆菌260(Lactobacillus pentosus 260,专利号ZL202210204293.X)、布氏乳杆菌225(Lactobacillus buchneri 225,四川高福记生物科技有限公司),3种菌剂的比例为2∶1∶1,活菌数为106 CFU/mL左右,以1 kg原料喷洒30 mL菌液为标准添加,混合均匀后用圆草捆打捆包膜一体机(甘肃金科峰农业装备工程有限公司)打包制成裹包发酵TMR,每个裹包800 kg左右。试验采用单因素试验设计,室外温度(-10~15 ℃)下存放,设置30、120、200 d 3个不同的发酵时间,每个发酵时间设置8个重复。燕麦-饲用豌豆裹包发酵TMR原料组成见表1,燕麦-饲用豌豆裹包发酵TMR及原料营养水平见表2
表1 燕麦-饲用豌豆裹包发酵TMR原料组成(干物质基础)

Table 1 Composition of oats-feed pea wrapped fermentation TMR raw materials (DM basis) %

原料Raw materials 比例Ratio
燕麦-饲用豌豆混播饲草
Oat-feed pea mixed forage
53
青稞秸秆Highland barley straw 20
油菜秸秆Rape straw 20
油菜粕Rape meal 3
预混料Premix 4
合计Total 100

预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 20 000~400 000 IU,VD3 20 000~160 000 IU,VE 70~900 IU,Cu 100~700 mg,Fe 500~8 500 mg,Zn 300~3 000 mg,Mn 150~3 000 mg,I 4~200 mg,Se 2~10 mg,Co 2~40 mg,Ca 6~25 mg,P 0.5~4.0 mg。

表2 燕麦-饲用豌豆裹包发酵TMR及原料营养水平(干物质基础)

Table 2 Nutrient levels of oats-feed pea wrapped fermentation TMR and raw materials (DM basis) %

项目
Items
粗蛋白质
CP
中性洗
涤纤维
NDF
酸性洗
涤纤维
ADF
水溶性碳
水化合物
WSC
粗脂肪
EE
淀粉
Starch
粗灰分
Ash
燕麦-饲用豌豆裹包发酵TMR
Oat-feed pea wrapped fermentation TMR
7.14 47.35 27.69 9.08 6.40 14.57 7.19
燕麦-饲用豌豆混播饲草
Oat-feed pea mixed forage
8.00 47.09 23.11 5.56 5.28 16.52 5.46
青稞秸秆Highland barley straw 4.81 63.72 32.95 3.03 2.72 8.33 6.78
油菜秸秆Rape straw 5.56 65.13 45.71 2.68 3.13 6.88 5.95
油菜粕Rape meal 36.03 20.04 14.74 10.05 13.02 10.86 7.57

1.3 测定指标与方法

1.3.1 营养成分测定

分别参照《饲料中水分的测定》(GB/T 6435—2014)、《饲料中粗灰分的测定》(GB/T 6438—2006)、《饲料中粗脂肪的测定》(GB/T 6433—2006)测定干物质(dry matter,DM)、粗灰分(Ash)和粗脂肪(ether extract,EE)含量;采用KjeltecTM 8400型全自动凯氏定氮仪(丹麦FOSS公司)测定CP含量(GB/T 6432—2018);采用蒽酮-硫酸比色法,利用试剂盒(苏州科铭生物技术有限公司)测定WSC含量;采用试剂盒(苏州科铭生物技术有限公司)测定淀粉(Starch)含量;采用Van Soest等[12]的方法测定中性洗涤纤维(neutral detergent fiber,NDF)、酸性洗涤纤维(acid detergent fiber,ADF)和酸性洗涤木质素(acid detergent lignin,ADL)含量;中性洗涤不溶性蛋白质(neutral detergent fiber insoluble protein,NDFIP)和酸性洗涤不溶性蛋白质(acid detergent fiber insoluble protein,ADFIP)含量的测定方法为分别将测完NDF和ADF后的样品袋剪碎后,无损失地移入消化管的底部,进行凯氏定氮(操作步骤同CP含量的测定);采用Licitra等[13]的方法测定非蛋白氮(non-protein nitrogen,NPN)含量;采用Krishnamoorthy等[14]的方法测定可溶性粗蛋白质(soluble crude protein,SCP)含量。

1.3.2 发酵品质测定

取20 g发酵TMR样品,加入180 mL蒸馏水,封口放于4 ℃冰箱中24 h,用pH计(雷磁PHS-3C,上海仪电分析仪器有限公司)测定青贮浸提液的pH。处理后的浸提液用4层纱布过滤,置于-20 ℃冰箱中保存,用于氨态氮(ammonium nitrogen,NH3-N)和有机酸含量测定。NH3-N含量使用苯酚-次氯酸钠比色法进行测定[15];乳酸(lactic acid,LA)、乙酸(acetic acid,AA)、丙酸(propionic acid,PA)、丁酸(butyric acid,BA)含量使用高效液相色谱法进行测定,色谱条件为:RSpak KC-811色谱柱,流动相0.1% H3PO4,流速0.5 mL/min,柱温55 ℃[16]

1.3.3 CNCPS组分分析

CNCPS在传统饲料价值评价方法的基础上,将饲料的蛋白质和碳水化合物(CHO)划分为可降解和不可降解2部分,蛋白质和CHO的分类更加详尽,还将饲料的化学成分分析与反刍动物对饲料的消化利用结合,相较于以往的分析方法,饲料的营养价值评定结果更为精确。基于CNCPS对饲料中的营养成分进行精确的分类和计算,将非蛋白氮(PA)、真蛋白质(PB)以及不可利用氮(PC)等关键成分进行了明确的区分,并且进一步将真蛋白质(PB)根据其在瘤胃内的降解速率细化为快速降解真蛋白质(PB1)、中速降解真蛋白质(PB2)以及慢速降解真蛋白质(PB3)。此外,CNCPS还对碳水化合物(CHO)进行了细致的划分,包括快速降解碳水化合物(CA)、中速降解碳水化合物(CB1)、慢速降解碳水化合物(CB2)以及不可降解碳水化合物(CC)。各组分计算公式根据Sniffen等[10]的方法。
蛋白质组分:
PA(%CP)=NPN(%SCP)×SCP(%CP)×0.01;
PB1(%CP)=SCP(%CP)-PA(%CP);
PC(%CP)=ADFIP(%CP);
PB3(%CP)=NDFIP(%CP)-ADFIP(%CP);
PB2(%CP)=100-PA(%CP)-PB1(%CP)-PB3(%CP)-PC(%CP)。
CHO组分:
CHO(%DM)=100-CP(%DM)-EE(%DM)-Ash(%DM);
CC(%CHO)=100×[NDF(%DM)×0.01×ADL(%NDF)×2.4]/CHO(%DM);
CB2(%CHO)=100×[NDF(%DM)-NDIP
(%CP)×0.01×CP(%DM)-NDF(%DM)×0.01×ADL(%NDF)×2.4]/CHO(%DM);
CC(%CHO)=100×NDF(%DM)×0.01×ADL(%NDF)×2.4/CHO(%DM);
CB1(%CHO)=Starch(%NSC)×[100-CB2(%CHO)-CC(%CHO)]/100;
非结构性碳水化合物(NSC,%CHO)=100-CB2(%CHO)-CC(%CHO);
CA(%CHO)=[100-Starch(%NSC)]×[100-CB2(%CHO)-CC(%CHO)]/100。

1.3.4 NRC模型分析

NRC模型提供了对饲料中CHO和蛋白质消化特性的详细分类方法。通过这种分类,研究人员可以评估各种成分对瘤胃微生物活性以及瘤胃后消化道中营养供应状况的影响。这种全面的评估对于制定合理的饲喂计划至关重要,以确保动物获得足够的营养以促进最佳的生产性能。使用NRC(2021)模型精确地估测不同发酵时间的发酵TMR在奶牛瘤胃中的真可消化养分含量。这些养分包括真可消化非纤维碳水化合物(true digestible non-fiber carbohydrate,tdNFC)、真可消化蛋白质(true digestible protein,tdCP)、真可消化中性洗涤纤维(true digestible neutral detergent fiber,tdNDF)以及真可消化脂肪酸(true digestible fatty acid,tdFA)。基于这些估测结果,进一步推算出饲粮的维持水平总可消化养分(maintain level total digestible nutrients,TDNm)、生产水平消化能(production level digestible energy,DEP)、生产水平代谢能(production level metabolizable energy,MEP)以及生产水平泌乳净能(production level lactation net energy,NELP)。同时,采用肉牛估测模型公式预测各饲粮的维持净能(maintenance net energy,NEm)和增重净能(net energy for gaining weight,NEg),各预测公式[11,17]如下:
tdNFC=0.98×{100-[(NDF-NDFIP)+CP+EE+Ash]}×PAF;
tdCP=CP×exp[-1.2×(ADFIP/CP)];
tdFA=FA=(EE-1);
tdNDF=0.75×(NDF-NDFIP-ADL)×[1-ADL/(NDF-NDFIP)]0.667;
TDNm=tdNFC+tdCP+(tdFA×2.25)+tdNDF-7;
DE1X=(tdNFC/100)×4.2+(tdNDF/100)×4.2+(tdCP/100)×5.6+(FA/100)×9.4-0.3;
折扣系数=4.18×{[TDNm-(0.18×TDNm-10.3)]×2}/TDNm;
DEP=DE1X×折扣系数;
MEP=1.01×DEP-0.45;
NELP=(0.703×MEP)-0.19;
NEm=4.18×[1.37×(DE1X×0.82)-0.138×(DE1X×0.82)2+0.010 5×(DE1X×0.82)3-1.12];
NEg=4.18×[1.42×(DE1X×0.82)-0.174×(DE1X×0.82)2+0.012 2×(DE1X×0.82)3-1.65]。
式中:PAF为加工校正因子(processing and correction factor);FA为脂肪酸,如果EE<1,则FA=0;DE1X为1倍维持水平的消化能;如果TDNm<60%,消化率的折扣忽略不计。

1.3.5 瘤胃降解特性分析

使用体外产气法测定瘤胃降解特性[18],缓冲液的配制参照Menci等[19]的方法,混合均匀并进行39 ℃恒温水浴,期间不断地充入二氧化碳(CO2),直至缓冲液接近无色为止。瘤胃液来源于成都青白江屠宰场,选取6头体重相近的放牧牦牛,将采集的瘤胃液等量过滤到已经预热好的保温桶里,迅速带回实验室-20 ℃冷冻保存。将瘤胃液解冻后用4层纱布过滤,与预先调配的人工瘤胃缓冲液按照1∶2的比例进行均匀混合,期间不断地通入CO2,保证其处于厌氧环境。准确称量1 g样品放入100 mL注射器中,将取50 mL混合瘤胃液加入到注射器中,密封后置于39 ℃恒温培养箱中,培养过程中分别于2、4、8、12、24、36、48、72 h时,取出注射器快速记录产气量(gas production,GP),每个处理设置8个重复。根据Ørskov等[20]提出的模型中计算产气参数。计算公式如下:
GPt=B(1- e - C t  )。
式中:GPtt时间点样品累积产气量(mL);Bt时间点样品理论最大产气量(mL);Ctt时间点样品产气速率(mL/h)。
培养72 h后用0.06 mm的尼龙布过滤残渣,残渣烘干后用于测定干物质降解率(dry matter degradation rate,DMD)、中性洗涤纤维降解率(neutral detergent fiber degradation rate,NDFD)、酸性洗涤纤维降解率(acid detergent fiber degradation rate,ADFD)和粗蛋白质降解率(crude protein degradation rate,CPD),滤液用于测定瘤胃pH和NH3-N含量[21]。瘤胃降解率计算方法如下[22]:
Dr (%)=[(NA-NB)/NA]×100。
式中:Dr为待测样品某成分的瘤胃降解率(%);NA为待测样品某成分含量(g);NB为过瘤胃残留物中某成分含量(g)。

1.4 数据统计与分析

试验数据采用Excel软件进行整理,试验数据用平均值±标准差表示,采用SPSS 26.0中的ANOVA过程进行单因素方差分析(one-way ANOVA),结合Duncan氏法进行多重比较,P<0.05表示差异显著。

2 结果与分析

2.1 不同发酵时间的燕麦-饲用豌豆裹包发酵TMR营养成分和发酵品质

表3可知,不同发酵时间的燕麦-饲用豌豆裹包发酵TMR的DM含量在42.04%FW~44.60%FW;发酵200 d的CP(6.41%DM)、NDF(50.09%DM)和Starch含量(14.98%DM)最高,发酵120 d的CP(6.11%DM)、NDF(46.925%DM)和Starch含量(14.54%DM)最低;发酵30 d的NDFIP(1.98%DM)和SCP(3.96%DM)含量最高,ADFIP(1.19%DM)和NPN含量(2.06%DM)最低。在发酵过程中,发酵200 d的ADF和ADL含量显著高于发酵30和120 d(P<0.05),发酵30 d的EE含量显著高于发酵120和200 d(P<0.05),发酵120 d的Ash含量显著低于发酵30和200 d(P<0.05)。
表3 不同发酵时间对燕麦-饲用豌豆裹包发酵TMR营养成分的影响

Table 3 Effects of different fermentation time on nutritional composition of oat-feed pea wrapped fermentation TMR

项目
Items
发酵时间Fermentation time/d P
P-value
30 120 200
干物质DM/%FW 42.51±2.44 44.60±0.30 42.04±2.13 0.28
粗蛋白质CP/%DM 6.25±0.25 6.11±0.41 6.41±0.06 0.45
中性洗涤纤维NDF/%DM 47.17±3.33 46.92±2.59 50.09±0.74 0.29
酸性洗涤纤维ADF/%DM 23.52±2.14b 22.91±2.23b 28.71±0.38a 0.01
水溶性碳水化合物WSC/%DM 6.90±1.79 7.24±0.45 4.94±0.26 0.08
粗脂肪EE/%DM 3.00±0.43a 1.84±0.02b 2.35±0.27b 0.01
淀粉Starch/%DM 14.90±1.15 14.54±0.38 14.98±1.44 0.87
粗灰分Ash/%DM 9.36±0.02a 8.18±0.45b 9.36±0.18a <0.01
酸性洗涤木质素ADL/%DM 3.64±0.18b 3.59±0.07b 6.97±0.55a <0.01
中性洗涤不溶蛋白质NDFIP/%DM 1.98±0.25 1.60±0.19 1.87±0.05 0.10
酸性洗涤不溶蛋白质ADFIP/%DM 1.19±0.11 1.32±0.25 1.25±0.09 0.64
可溶性蛋白质SCP/%DM 3.96±0.12 3.87±0.29 3.92±0.12 0.87
非蛋白氮NPN/%DM 2.06±0.28 2.25±0.36 2.54±0.10 0.17

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

表4可知,不同发酵时间的燕麦-饲用豌豆裹包发酵TMR的pH在4.60~4.94,LA含量在2.62%~2.97%,不同发酵时间的pH和LA含量均无显著差异(P>0.05)。发酵30 d的NH3-N和AA含量显著低于发酵120和200 d(P<0.05),所有样品中均未检测出PA和BA。随发酵时间的延长,NH3-N和AA含量表现出逐渐增加的趋势,LA含量表现出逐渐减少的趋势。
表4 不同发酵时间对燕麦-饲用豌豆裹包发酵TMR发酵品质的影响

Table 4 Effects of different fermentation time on fermentation quality of oat-feed pea wrapped fermentation TMR

项目
Items
发酵时间Fermentation time/d P
P-value
30 120 200
pH 4.66±0.12 4.60±0.02 4.94±0.23 0.07
氨态氮NH3-N/% 2.36±0.55b 3.20±0.09a 3.79±0.46a 0.02
乳酸LA/% 2.97±0.14 2.88±0.06 2.62±0.32 0.18
乙酸AA/% 1.33±0.02b 1.66±0.15a 1.88±0.19a 0.01
丙酸PA/% ND ND ND
丁酸BA/% ND ND ND

2.2 不同发酵时间对燕麦-饲用豌豆裹包发酵TMR蛋白质和CHO组分的影响

表5可知,不同发酵时间的燕麦-饲用豌豆裹包发酵TMR的PB3含量在4.55%CP~12.41%CP,其中发酵120 d的PB3含量最低,显著低于发酵30 d(P<0.05)。发酵120 d的CHO含量显著高于发酵30和200 d(P<0.05),发酵200 d的CC含量显著高于发酵30和120 d(P<0.05)。不同发酵时间的燕麦-饲用豌豆裹包发酵TMR其他蛋白质和CHO组分均无显著差异(P>0.05),发酵200 d的PA和CB1含量最高,PB1、CA和CB2含量最低;发酵120 d的PB2、PC、CA和NSC含量最高。随着发酵时间的延长,PA含量表现出逐渐增加的趋势,PB1、CB2含量表现出逐渐降低的趋势。
表5 燕麦-饲用豌豆裹包发酵TMR的蛋白质和CHO组分

Table 5 Protein and CHO components of oat-feed pea wrapped fermentation TMR

项目
Items
发酵时间Fermentation time/d P
P-value
30 120 200
非蛋白氮PA/%CP 2.06±0.27 2.25±0.36 2.54±0.09 0.17
快速降解真蛋白质PB1/%CP 61.36±2.53 61.28±5.14 58.62±1.26 0.56
中速降解真蛋白质PB2/%CP 5.04±0.69 10.38±3.73 9.72±1.53 0.06
慢速降解真蛋白质PB3/%CP 12.41±4.43a 4.55±1.39b 9.71±0.66ab 0.03
不可降解蛋白质PC/%CP 19.13±2.48 21.54±2.60 19.41±1.24 0.40
碳水化合物CHO/%DM 81.40±0.59b 83.86±0.87a 81.87±0.19b 0.01
快速降解碳水化合物CA/%CHO 29.60±4.66 31.43±2.77 26.12±1.50 0.21
中速降解碳水化合物CB1/%CHO 14.90±1.15 14.54±0.38 14.98±1.44 0.87
缓慢降解碳水化合物CB2/%CHO 44.77±4.41 43.75±2.63 38.46±0.93 0.09
不可利用碳水化合物CC/%CHO 10.73±0.60b 10.27±0.14b 20.43±1.64a <0.01
非结构性碳水化合物NSC/%CHO 44.50±4.00 45.97±2.75 41.11±0.98 0.18

2.3 不同发酵时间对燕麦-饲用豌豆裹包发酵TMR可消化养分含量和能值的影响

表6可知,不同发酵时间的燕麦-饲用豌豆裹包发酵TMR的tdNFC、tdCP和tdNDF含量无显著差异(P>0.05)。不同发酵时间的燕麦-饲用豌豆裹包发酵TMR的tdFA含量在8.41~19.97 g/kg DM,其中发酵30 d的tdFA含量显著高于发酵120和200 d(P<0.05);TDNm含量在628.26~696.19 g/kg DM,DEP在17.05~19.00 MJ/kg DM,MEP在16.77~18.74 MJ/kg DM,NELP在11.6~12.98 MJ/kg DM,NEm在4.81~5.71 MJ/kg DM,NEg在2.47~3.29 MJ/kg DM,其中发酵200 d的TDNm含量及DEP、MEP、NELP、NEm、NEg显著低于发酵30和120 d(P<0.05),并且随着发酵时间的延长表现出逐渐降低的趋势。
表6 燕麦-饲用豌豆裹包发酵TMR的真可消化养分和能值

Table 6 True digestible nutrients and energy values of oat-feed pea wrapped fermentation TMR

项目
Items
发酵时间Fermentation time/d P
P-value
30 120 200
真可消化养分True digestible nutrients/(g/kg DM)
真可消化非纤维碳水化合物tdNFC 354.83±29.50 377.72±20.21 329.81±8.61 0.09
真可消化蛋白质tdCP 49.71±3.41 47.12±1.77 50.83±0.54 0.20
真可消化脂肪酸tdFA 19.97±4.23a 8.41±0.15b 13.49±2.68b 0.01
真可消化中性洗涤纤维tdNDF 253.72±26.56 255.33±17.47 224.26±4.28 0.15
估测总可消化养分Predicted TDN/(g/kg DM)
维持水平总可消化养分TDNm 696.19±13.71a 692.10±5.67a 628.26±8.67b <0.01
估测能值Predicted energy values/(MJ/kg DM)
生产水平消化能DEP 19.00±0.40a 18.86±0.17a 17.05±0.25b <0.01
生产水平代谢能MEP 18.74±0.41a 18.60±0.17a 16.77±0.26b <0.01
生产水平泌乳净能NELP 12.98±0.29a 12.88±0.12a 11.60±0.18b <0.01
维持净能NEm 5.71±0.18a 5.65±0.08a 4.81±0.12b <0.01
增重净能NEg 3.29±0.17a 3.24±0.07a 2.47±0.11b <0.01

2.4 不同发酵时间的燕麦-饲用豌豆裹包发酵TMR瘤胃降解特性

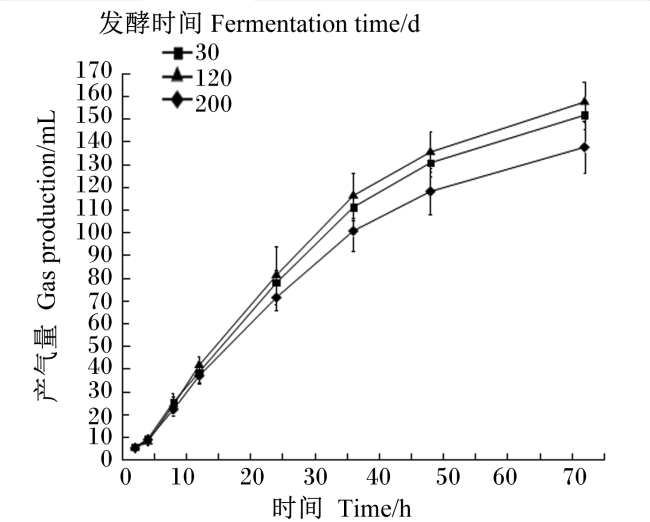
图1可知,随着发酵时间的延长,产气量逐渐增加。发酵120 d的总产气量最高。3个发酵时间在0~4 h产气量较低,4~36 h期间产气量迅速上升,在36 h后产气量上升趋势缓慢。
图1 不同发酵时间燕麦-饲用豌豆裹包发酵TMR的产气量

Fig.1 Gas production of oat-feed pea wrapped fermentation TMR at different fermentation time

表7可知,发酵200 d的燕麦-饲用豌豆裹包发酵TMR的72 h实际产气量、理论最大产气量和产气速率显著低于发酵30和120 d(P<0.05)。
表7 不同发酵时间燕麦-饲用豌豆裹包发酵TMR的产气参数

Table 7 Gas production parameters of oat-feed pea wrapped fermentation TMR at different fermentation time

项目
Items
发酵时间Fermentation time/d P
P-value
30 120 200
72 h实际产气量72 h actual gas production/mL 151.60±6.32a 157.33±8.92a 137.50±11.57b <0.01
理论最大产气量
Theological maximum gas production/mL
172.65±5.13a 177.31±7.24a 161.50±9.10b <0.01
产气速率Gas production rate/(mL/h) 2.11±0.09a 2.19±0.12a 1.91±0.16b <0.01
表8可知,除发酵200 d的燕麦-饲用豌豆裹包发酵TMR的瘤胃CPD显著低于发酵30和120 d(P<0.05)外,3个发酵时间的其他营养成分瘤胃降解率并无显著差异(P>0.05)。发酵120 d的瘤胃DMD最高,瘤胃ADFD最低;发酵30 d的瘤胃NDFD和ADFD最高,发酵200 d的瘤胃DMD和NDFD最低。
表8 不同发酵时间燕麦-饲用豌豆裹包发酵TMR的瘤胃降解率

Table 8 Rumen degradation rates of oat-feed pea wrapped fermentation TMR at different fermentation time %

项目
Items
发酵时间Fermentation time/d P
P-value
30 120 200
干物质降解率DMD 56.86±6.95 58.11±3.84 53.58±3.41 0.20
粗蛋白质降解率CPD 28.29±1.82a 34.40±3.63a 24.15±3.31b 0.02
中性洗涤纤维降解率NDFD 49.37±4.22 43.13±4.25 37.99±6.19 0.08
酸性洗涤纤维降解率ADFD 43.83±6.33 32.36±8.23 36.38±5.26 0.19
表9可知,不同发酵时间燕麦-饲用豌豆裹包发酵TMR的瘤胃pH在6.27~6.37,其中发酵120 d的瘤胃pH显著低于发酵30和120 d(P<0.05)。发酵30 d的瘤胃NH3-N含量显著高于发酵120和200 d(P<0.05)。
表9 不同发酵时间燕麦-饲用豌豆裹包发酵TMR的体外瘤胃发酵参数

Table 9 In vitro rumen fermentation parameters of oat-feed pea wrapped fermentation TMR at different fermentation time

项目
Items
发酵时间Fermentation time/d P
P-value
30 120 200
氨态氮NH3-N/(mL/dL) 9.83±0.05a 8.33±0.10b 8.44±0.23b <0.01
pH 6.37±0.02a 6.27±0.03b 6.36±0.05a 0.02

3 讨论

3.1 不同发酵时间对燕麦-饲用豌豆裹包发酵TMR营养成分及发酵品质的影响

过高的含水量易导致青贮饲料腐败,绝大多数青贮的DM含量在40%FW~65%FW[23],然而在试验和农场条件下很难将发酵TMR的水分含量控制到完全一致[24]。本试验通过添加较高比例的青稞秸秆、油菜秸秆和油菜粕以提高发酵TMR的DM含量,可避免因水分含量过高导致发酵TMR在贮藏过程中出现有害微生物繁殖的情况。并且高DM含量青贮可以避免高寒地区冬季饲料上冻情况,本试验的发酵TMR在发酵30、120和200 d后均保持较高的DM含量,可作为高品质饲料供反刍动物食用,减轻上冻情况,在冬季依然可以正常饲喂。随着发酵时间的逐步延长,不同发酵时间燕麦-饲用豌豆裹包发酵TMR的CP含量相对于原料逐渐呈现降低趋势。这种现象主要是因青贮中的有害微生物——梭菌,在分解青贮原料中的氨基酸、含氮盐类(如硝酸盐和亚硝酸盐)、嘌呤、嘧啶等成分时,产生大量的NH3-N,进而导致青贮中CP含量的下降[25]。发酵30和120 d的NDF与ADF含量与原料相比有一定降低,可能是由于发酵过程中的酸性环境及微生物作用下,使部分纤维降解。发酵200 d的NDF、ADF和ADL含量均较高,原因可能是发酵过程中DM损失较多,相应地增加了纤维含量。各组WSC含量均低于原料的原因可能是发酵过程中乳酸菌的繁殖消耗了WSC作为营养底物。综合来看,发酵200 d的营养成分相比发酵30和120 d有一定程度下降,但大部分营养成分含量差异不显著,原因可能是在发酵后期,乳酸菌不再占据主导地位,此时肠球菌属和泛菌属等厌氧菌会开始活跃,它们会利用环境中的养分来促进自身的生长和繁殖,从而导致了饲料中养分的减少或损耗。因此在实际生产中,发酵TMR可以放置较长时间,但不宜超过120 d。
研究表明,在青贮发酵早期,乳酸菌活性与青贮原料水分含量呈正相关[26]。本试验的DM含量较高,因此在发酵过程中,LA含量偏低,pH没能降低至一般较低水平(<4.2),但DM含量较高,pH在4.5以下也可认为是成功的发酵[27]。在发酵200 d时,pH已上升至4.9,可能是随发酵时间的延长,饲料经冬季上冻再到夏季解冻,需氧菌大量滋生,影响了发酵品质[28],这样的青贮饲料建议尽快取用,避免有害微生物的增殖导致腐坏。PA、BA和NH3-N含量能在一定程度上反映青贮过程中的营养损失,可作为青贮发酵品质优劣的判断指标[29]。各组均未检测出PA和BA,在30~200 d,NH3-N含量虽有小幅度增加,但均低于10%,说明经历了长时间的发酵,发酵TMR的营养成分也能被较好的保存。

3.2 不同发酵时间对燕麦-饲用豌豆裹包发酵TMR蛋白质和CHO组分的影响

CNCPS能够分析饲料内部的蛋白质和CHO成分,进而评估其综合的营养指标及瘤胃中的降解特性,从而对其营养价值进行评估,对饲料原料利用有一定参考价值[30]。PA和PB1在瘤胃中能被快速降解,为瘤胃微生物提供充足的氮源[31]。本试验中随发酵时间延长,PA含量有不断增加的趋势,PB1含量有不断减少的趋势。这与王志远等[32]的研究结果不一致,可能是本试验时间跨度长,气温差异较大,在青藏高原高寒气候下,发酵TMR经过冻融后蛋白质的降解速度变慢。PB2和PB3可以有部分进入小肠,形成过瘤胃蛋白质[33]。发酵120 d的PB3含量最低,在饲喂过程中应注意过瘤胃蛋白质的补充。PC主要是ADFIP,主要由木质素、单宁和热变性蛋白质构成,是一种不能被瘤胃微生物利用的蛋白质组分[34]。本试验中,不同发酵时间的PC含量无显著差异,但发酵30 d的PC含量最低,说明其利用价值最高。
CHO由蔗糖、葡萄糖等单糖及其聚合体所组成,碳、氢、氧3个元素是其主要组分,在自然界中存在广泛,是反刍动物所需的主要能源来源,此外,CHO还对细胞活性起到一定的调节作用[35]。CA组分以水溶性CHO为主,能在瘤胃内迅速分解CC,使将其转化为不可利用的纤维素,因此不能被反刍动物所利用。不同发酵时间的CA、CB1、CB2含量均无显著差异,说明发酵时间对发酵TMR的可利用CHO组分无不良影响,产生这种现象的原因可能是在发酵过程中所产生的酸对半纤维素的分解起到了一定的作用[36]。发酵120 d的CHO含量显著高于发酵30和200 d,CC含量也较低,说明其可利用养分含量较多。

3.3 不同发酵时间对燕麦-饲用豌豆裹包发酵TMR可消化养分含量和能值的影响

NRC模型在饲料营养学领域中扮演着重要角色,它深入研究了饲料中CHO的分类。根据这一模型,饲料中的CHO被明确地划分为非纤维性碳水化合物(NFC)和纤维性碳水化合物(FC)两大类别。然而NFC与CNCPS中的NSC并非完全对等。尽管两者在概念上有一定的相似性,但它们之间存在显著的差异。这些差异主要源于成分上的不同,特别是果胶和有机酸的存在。果胶作为NFC的一个重要组成部分,却并不包含在NSC之中[37]。发酵120 d的tdNFC含量相对较高,是由于其NFC含量较高,并且tdNFC含量与饲料的加工密切相关,这意味着在计算tdNFC时需要考虑PAF的影响[38]。饲料中CP对能量的贡献率主要与CP和ADFIP比例有关[38]。发酵30 d的tdFA含量最高,说明发酵30 d的EE对能量的贡献值最大。本试验中,不同发酵时间燕麦-饲用豌豆裹包发酵TMR的tdNDF含量无显著差异,这与NDF含量相吻合。总体来看,发酵时间对真可消化养分含量无显著影响。但是发酵30和120 d的TDNm显著高于发酵200 d,并且相应的能量值DEP、MEP、NELP、NEm和NEg也具有相同的趋势,这表明在供应能量方面,发酵30和120 d的发酵TMR具有更高的利用价值,过长的发酵时间可能导致饲料能值下降。但是,试验中使用的原料中的可消化营养成分和各种能量值都是基于之前研究者的预测模型得出的,而不是基于体内代谢试验的实际测量值。饲料中各组分及DM采食量对消化率和能值有一定影响,如发酵TMR原料配比无法使瘤胃处于最佳发酵状态,其能量的预测值可能过高。

3.4 不同发酵时间对燕麦-饲用豌豆裹包发酵TMR瘤胃降解特性的影响

产气量和产气速率作为2个关键指标,能够直接反映降解速度的快慢以及瘤胃微生物的活跃程度。通过监测和分析产气量以及产气速率的变化,可以有效地评估降解过程的效率以及瘤胃微生物的代谢活动状态。当产气量增加,产气速率也加快,这意味着微生物的活性更高,降解底物的速率也更快[39]。本试验中,不同发酵时间燕麦-饲用豌豆裹包发酵TMR的产气速率在4 h后迅速增加,36 h后产气速率降低,这与冯肖然等[40]的研究结果相似。另外,饲料的总产气量也可以反映其降解的程度,产气量越多,饲料中的有机物降解的程度就越高[41]。本试验中,发酵30和120 d的总产气量最高,与CPD的结果相吻合。
养分消化率对反刍动物饲粮的配制至关重要。DMD和CPD越高代表其饲料营养成分可利用率越高,NDFD与ADFD可以衡量纤维在反刍动物瘤胃内的分解程度。研究表明,青贮处理可促进饲草中蛋白质的降解,从而提高可利用蛋白质组分PA和PB含量,有助于提高动物的CPD[42]。本试验中,发酵30和120 d的CPD更高,说明发酵时间过长可能影响饲料营养成分的可利用程度。目前有关发酵时间对NDFD影响的结果存在分歧,张广宁等[43]的研究结果表明,随发酵时间的延长NDFD提高。而Hristov等[44]的研究结果则与之相反,随发酵时间的延长NDFD呈下降趋势,这与本试验研究结果一致。其原因可能与发酵时间的长短、青贮原料以及气候差异等有关,仍需进一步研究。
反刍动物瘤胃中NH3-N含量受到多种因素的影响,这些因素包括蛋白质降解的速率、瘤胃壁的吸收和利用情况、瘤胃对内容物的排空速度、微生物的利用速度以及饲料的能量水平等。NH3-N含量过高或过低都不利于瘤胃微生物的活动,但适当的NH3-N含量可以确保瘤胃微生物的正常生长和繁殖[45]。瘤胃液pH可以反映瘤胃内微生物状态和家畜机体代谢状态等,基于此,还可以判断反刍动物瘤胃功能是否正常[46]。Murphy等[47]报道瘤胃NH3-N含量在6.3~27.5 mg/dL时,微生物能更好地繁殖,与发酵30 d相比,随发酵时间的延长,瘤胃NH3-N含量有小幅度增加,但本试验各组瘤胃NH3-N含量均在正常范围内。Chen等[48]研究表明,pH在5.5~7.0时能保证瘤胃正常发酵,本试验各组瘤胃pH均在此范围内。综合2项瘤胃发酵指标来看,不同发酵时间的燕麦-饲用豌豆发酵TMR对瘤胃内环境无不良影响,本试验各组发酵TMR均达到了合格饲料标准。

4 结论

燕麦-饲用豌豆发酵TMR发酵30 d的营养成分和发酵品质优于发酵120和200 d;利用CNCPS和NRC模型分析燕麦-饲用豌豆发酵TMR各组分,发酵30和120 d的可利用养分含量较多,饲用价值高于发酵200 d;但结合瘤胃降解特性,从各方面综合考虑,发酵时间对发酵TMR的总体品质无明显的不良影响。燕麦-饲用豌豆发酵TMR能在高寒地区极端气候下保存较长时间,利用此配方调制发酵TMR,能提高非常规饲料的利用率,维持反刍动物的营养需要。
[1]
SHANG Z, GIBB M, LEIBER F, et al. The sustainable development of grassland-livestock systems on the Tibetan plateau:problems,strategies and prospects[J]. The Rangeland Journal, 2014, 36:267-296.

[2]
郝爱华, 薛娴, 彭飞, 等. 青藏高原典型草地植被退化与土壤退化研究[J]. 生态学报, 2020, 40(3):964-975.

HAO A H, XUE X, PENG F, et al. Different vegetation and soil degradation characteristics of a typical grassland in the Qinghai-Tibetan Plateau[J]. Acta Ecologica Sinica, 2020, 40(3):964-975. (in Chinese)

[3]
徐田伟, 赵新全, 张晓玲, 等. 青藏高原高寒地区生态草牧业可持续发展:原理、技术与实践[J]. 生态学报, 2020, 40(18):6324-6337.

XU T W, ZHAO X Q, ZHANG X L, et al. Sustainable development of ecological grass-based livestock husbandry in Qinghai-Tibet Plateau alpine area:principle,technology and practice[J]. Acta Ecologica Sinica, 2020, 40(18):6324-6337. (in Chinese)

[4]
杨海鹏. 中国燕麦[M]. 北京: 中国农业出版社,1989.

YANG H P. Chinese oats[M]. Beijing: China Agriculture Press,1989. (in Chinese)

[5]
郭常英, 王伟, 德科加, 等. 播种方式对燕麦和饲用豌豆饲草产量及品质的影响[J]. 草地学报, 2022, 30(7):1882-1890.

DOI

GUO C Y, WANG W, DE K J, et al. Effects of sowing methods on yield and quality of oats and forage peas[J]. Acta Agrestia Sinica, 2022, 30(7):1882-1890. (in Chinese)

[6]
柳茜, 乔雪峰, 陶雅, 等. 燕麦与饲用豌豆混播对饲草产量和品质的影响[J]. 中国奶牛, 2022(10):62-66.

LIU Q, QIAO X F, TAO Y, et al. The effect of mixed planting of oats and feed peas on forage yield and quality[J]. China Dairy Cattle, 2022(10):62-66. (in Chinese)

[7]
刘温, 陈雅坤, 赵连生, 等. 基于主成分和隶属度函数分析评价不同混播比例的燕麦和豌豆混合青贮的发酵品质[J]. 中国饲料, 2023(17):111-117.

LIU W, CHEN Y K, ZHAO L S, et al. Evaluation of the fermentation quality of oat and pea mixed silage with different mixing proportion based on principal component analysis and membership function analysis[J]. China Feed, 2023(17):111-117. (in Chinese)

[8]
CHEN L, GUO G, YU C Q, et al. The effects of replacement of whole-plant corn with oat and common vetch on the fermentation quality,chemical composition and aerobic stability of total mixed ration silage in Tibet[J]. Animal Science Journal, 2015, 86(1):69-76.

[9]
李海萍, 关皓, 贾志锋, 等. 抗冻融乳酸菌的筛选及其对燕麦青贮品质和有氧稳定性的影响[J]. 草业学报, 2022, 31(12):158-170.

DOI

LI H P, GUAN H, JIA Z F, et al. Screening of antifreeze-thawed Lactic acid bacteria and their effects on oat silage fermentation quality and aerobic stability[J]. Acta Prataculturae Sinica, 2022, 31(12):158-170. (in Chinese)

[10]
SNIFFEN C J, O’CONNOR J D, VAN SOEST P J, et al. A net carbohydrate and protein system for evaluating cattle diets:Ⅱ.Carbohydrate and protein availability[J]. Journal of Animal Science, 1992, 70(11):3562-3577.

[11]
NRC. Nutrient requirements of beef cattle[S]. 8rd ed,Washington,D.C.:The National Academies Press, 2016.

[12]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[13]
LICITRA G, HERNANDEZ T M,VAN SOEST P J. Standardization of procedures for nitrogen fractionation of ruminant feeds[J]. Animal Feed Science and Technology, 1996, 57(4):347-358.

[14]
KRISHNAMOORTHY U, SNIFFEN C J, STERN M D, et al. Evaluation of a mathematical model of rumen digestion and an in vitro simulation of rumen proteolysis to estimate the rumen-undegraded nitrogen content of feedstuffs[J]. British Journal of Nutrition, 1983, 50(3):555-568.

[15]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

[16]
GUAN H, YAN Y H, LI X L, et al. Microbial communities and natural fermentation of corn silages prepared with farm bunker-silo in Southwest China[J]. Bioresource Technology, 2018, 265:282-290.

DOI PMID

[17]
FOX D G, TEDESCHI L O, TYLUTKI T P, et al. The Cornell net carbohydrate and protein system model for evaluating herd nutrition and nutrient excretion[J]. Animal Feed Science and Technology, 2004, 112(1/2/3/4):29-78.

[18]
MENKE K H, RAAB L, SALEWSKI A, et al. The estimation of the digestibility and metabolizable energy content of ruminant feedingstuffs from the gas production when they are incubated with rumen liquor in vitro[J]. Journal of Agricultural Science, 1979, 93(1):217-222.

[19]
MENCI R, COPPA M, TORRENT A, et al. Effects of two tannin extracts at different doses in interaction with a green or dry forage substrate on in vitro rumen fermentation and biohydrogenation[J]. Animal Feed Science and Technology, 2021, 278:114977.

[20]
ØRSKOV E R, MCDONALD I. The estimation of protein degradability in the rumen from incubation measurements weighted according to rate of passage[J]. Journal of Agricultural Science, 1979, 92(2):499-503.

[21]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010,(6):37.

FENG Z C, GAO M. Improvement of colorimetric method for determination of ammonia nitrogen in rumen fluid[J]Animal Husbandry and Feed Science, 2010,(6):37. (in Chinese)

[22]
RIBEIRO S S, VASCONCELOS J T, MORAIS M G, et al. Effects of ruminal infusion of a slow-release polymer-coated urea or conventional urea on apparent nutrient digestibility,in situ degradability,and rumen parameters in cattle fed low-quality hay[J]. Animal Feed Science and Technology, 2011, 164(1/2):53-61.

[23]
BUENO A V I, LAZZARI G, JOBIM C C, et al. Ensiling total mixed ration for ruminants:a review[J]. Agronomy, 2020, 10(6):879.

[24]
LI X J, TIAN J P, ZHANG Q, et al. Effects of mixing red clover with alfalfa at different ratios on dynamics of proteolysis and protease activities during ensiling[J]. Journal of Dairy Science, 2018, 101(10):8954-8964.

DOI PMID

[25]
王旭哲, 岳亚飞, 张凡凡, 等. 全株玉米青贮营养品质的紧实度效应[J]. 草业科学, 2016, 33(9):1893-1900.

WANG X Z, YUE Y F, ZHANG F F, et al. The compaction effect of nutritional quality of whole plant corn silage[J]. Pratacultural Science, 2016, 33(9):1893-1900. (in Chinese)

[26]
MANYAWU G J, SIBANDA S, MUTISI C, et al. The effect of pre-wilting and incorporation of maize meal on the fermentation of bana grass silage[J]. Asian-Australasian Journal of Animal Sciences, 2003, 16:843-851.

[27]
邱小燕, 原现军, 郭刚, 等. 添加糖蜜和乙酸对西藏发酵全混合日粮青贮发酵品质及有氧稳定性影响[J]. 草业学报, 2014, 23(6):111-118.

DOI

QIU X Y, YUAN X J, GUO G, et al. Effects of molasses and acetic acid on fermentation and aerobic stability of total mixed ration silage in Tibet[J]. Acta Prataculturae Sinica, 2014, 23(6):111-118. (in Chinese)

[28]
DONG Z H, LI J F, CHEN L, et al. Effects of freeze-thaw event on microbial community dynamics during red clover ensiling[J]. Frontiers in Microbiology, 2019, 10:1559.

DOI PMID

[29]
KUNG L, SHAVER R D, GRANT R J, et al. Silage review:interpretation of chemical,microbial,and organoleptic components of silages[J]. Journal of Dairy Science, 2018, 101(5):4020-4033.

[30]
ZHAO J S, ZHOU Z M, REN L P, et al. Evaluation of dry matter intake and daily weight gain predictions of the Cornell net carbohydrate and protein system with local breeds of beef cattle in China[J]. Animal Feed Science and Technology, 2008, 142(3/4):231-246.

[31]
张牧州, 郝小燕, 项斌伟, 等. 4种反刍动物常用粮食加工副产物的营养价值和瘤胃降解特性的研究[J]. 中国畜牧杂志, 2020, 56(6):114-118.

ZHANG M Z, HAO X Y, XIANG B W, et al. A study on the nutritional value and rumen degradation characteristics of four commonly used food processing by-products in ruminant animals[J]. Chinese Journal of Animal Science, 2020, 56(6):114-118. (in Chinese)

[32]
王志远, 沈宜钊, 薄玉琨, 等. 不同青贮添加剂和青贮时间对全株谷草青贮营养价值的影响[J]. 动物营养学报, 2023, 35(9):6072-6086.

DOI

WANG Z Y, SHEN Y Z, BO Y K, et al. Effects of different silage additives and silage time on nutritional value of whole-plant millet silage[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):6072-6086. (in Chinese)

DOI

[33]
游茵洁, 周浩珍, 刘垚, 等. 燕麦干草、青贮燕麦与天然牧草饲喂牦牛的营养价值比较研究[J]. 草业学报, 2022, 31(8):99-110.

DOI

YOU Y J, ZHOU H Z, LIU Y, et al. Comparison of nutritional value of oat hay,oat silage and Sichuan pasture for yaks[J]. Acta Prataculturae Sinica, 2022, 31(8):99-110. (in Chinese)

[34]
马小俊, 杨宇为, 马青, 等. 康奈尔净碳水化合物-蛋白质体系在反刍动物生产中的应用研究[J]. 动物营养学报, 2023, 35(6):3478-3490.

DOI

MA X J, YANG Y W, MA Q, et al. Applied research of Cornell net carbohydrate and protein system in ruminant production[J]. Chinese Journal of Animal Nutrition, 2023, 35(6):3478-3490. (in Chinese)

DOI

[35]
张秀丽, 唐德富, 任春燕. 饲粮碳水化合物对幼龄反刍动物生长和胃肠道发育的影响研究进展[J]. 动物营养学报, 2023, 35(7):4182-4190.

DOI

ZHANG X L, TANG D F, REN C Y. Research progress on effects of dietary carbohydrate on growth and gastrointestinal tract development of young ruminants[J]. Chinese Journal of Animal Nutrition, 2023, 35(7):4182-4190. (in Chinese)

DOI

[36]
DEWAR W A, MCDONALD P, WHITTENBURY R. The hydrolysis of grass hemicelluloses during ensilage[J]. Journal of the Science of Food and Agriculture, 1963, 14(6):411-417.

[37]
李威, 高民, 卢德勋, 等. CNCPS与NRC在反刍动物方面的分析比较及其研究进展[J]. 饲料工业, 2008, 29(13):45-48.

LI W, GAO M, LU D X, et al. Analysis and comparison of CNCPS with NRC and research progress of CNCPS in ruminants[J]. Feed Industry, 2008, 29(13):45-48. (in Chinese)

[38]
NRC. Nutrient requirements of dairy cattle[S]. 8rd ed.Washington,D.C.:The National Academies Press, 2021.

[39]
孙国强, 吕永艳, 张杰杰. 利用体外瘤胃发酵法研究全株玉米青贮与花生蔓和羊草间的组合效应[J]. 草业学报, 2014, 23(3):224-231.

DOI

SUN G Q, LV Y Y, ZHANG J J. A study on the associative effect of whole corn silage-peanut vine and Leymus chinensis by rumen fermentation in vitro[J]. Acta Prataculturae Sinica, 2014, 23(3):224-231. (in Chinese)

[40]
冯肖然, 张春桃, 屠焰. 体外产气法评定玉米青贮、苜蓿、燕麦、花生秧的组合效应[J]. 饲料工业, 2023, 44(19):78-83.

FENG X R, ZHANG C T, TU Y. Evaluation of associative effects of corn silage,alfalfa hay,oat hay and peanut vine by in vitro gas production method[J]. Feed Industry, 2023, 44(19):78-83. (in Chinese)

[41]
王福军, 沈良英, 张玉雯, 等. 体外产气法评价辣木青贮、鸭茅、非洲狗尾草之间的组合效应[J]. 饲料研究, 2023, 46(12):6-12.

WANG F J, SHEN L Y, ZHANG Y W, et al. Evaluation of associative effect of Moringa oleifera silage,Orchardgrass and Setaria sphacelate by in vitro gas production technique[J]. Feed Research, 2023, 46(12):6-12. (in Chinese)

[42]
李玲, 赵秀芬, 赵钢. 青贮处理对饲料蛋白质组分的影响[J]. 中国草地学报, 2010, 32(6):110-112.

LI L, ZHAO X F, ZHAO G. Effects of ensilaging on the protein components in ensilaged forage[J]. Chinese Journal of Grassland, 2010, 32(6):110-112. (in Chinese)

[43]
张广宁, 赵雪娇, 郑健, 等. 不同发酵时间对全混合日粮的瘤胃降解特性以及小肠消化率的影响[J]. 中国畜牧杂志, 2019, 55(2):75-81.

ZHANG G N, ZHAO X J, ZHENG J, et al. Study on rumen degradability characteristics and intestinal digestibility of fermented total mixed ration[J]. Chinese Journal of Animal Science, 2019, 55(2):75-81. (in Chinese)

[44]
HRISTOV A N, HARPER M T, ROTH G, et al. Effects of ensiling time on corn silage neutral detergent fiber degradability and relationship between laboratory fiber analyses and in vivo digestibility[J]. Journal of Dairy Science, 2020, 103(3):2333-2346.

[45]
HRISTOV A N, AHVENJARVI S, MCALLISTER T A, et al. Composition and digestive tract retention time of ruminal particles with functional specific gravity greater or less than 1.02[J]. Journal of Animal Science, 2003, 81(10):2639-2648.

PMID

[46]
YANG W Z, BEAUCHEMIN K A, RODE L M. Effects of grain processing,forage to concentrate ratio,and forage particle size on rumen pH and digestion by dairy cows[J]. Journal of Dairy Science, 2001, 84(10):2203-2216.

[47]
MURPHY J J, KENNELLY J J. Effect of protein concentration and protein source on the degradability of dry matter and protein in situ[J]. Journal of Dairy Science, 1987, 70(9):1841-1849.

[48]
CHEN L, DONG Z H, LI J F, et al. Ensiling characteristics,in vitro rumen fermentation,microbial communities and aerobic stability of low-dry matter silages produced with sweet sorghum and alfalfa mixtures[J]. Journal of the Science of Food and Agriculture, 2019, 99(5):2140-2151.

文章导航

/