综述

色氨酸代谢调控机体免疫功能的机制及其在猪生产中应用的研究

  • 顾炯 , 1 ,
  • 刘明 1 ,
  • 刘幸 2 ,
  • 夏冰 , 1, *
展开
  • 1 北京农学院动物科学技术学院,北京 102206
  • 2 陕西石羊农业科技股份有限公司,西安 710021
*夏 冰,副教授,硕士生导师,E-mail:

顾 炯(2000—),男,贵州毕节人,硕士研究生,从事猪营养与饲料资源开发利用研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2024-03-22

  网络出版日期: 2024-10-14

基金资助

国家自然科学基金青年科学基金项目(32302777)

北京农学院科技创新“火花行动”支持计划(BUA-HHXD2023003)

北京市科协青年人才托举工程(BYESS2023194)

2023年度青年人才托举工程计划经费(QNTJ-2023004)

Study on Mechanism of Tryptophan Metabolism Regulating Immune Function and Its Application in Pig Production

  • GU Jiong , 1 ,
  • LIU Ming 1 ,
  • LIU Xing 2 ,
  • XIA Bing , 1, *
Expand
  • 1 College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
  • 2 Shaanxi Shiyang Agricultural Science and Technology Co., Ltd., Xi’an 710021, China
*associate professor, E-mail:

Received date: 2024-03-22

  Online published: 2024-10-14

摘要

色氨酸是动物体必需氨基酸之一,其在体内主要通过犬尿氨酸、5-羟色胺、微生物途径代谢并产生多种代谢产物。色氨酸代谢产物可通过多种方式对宿主免疫进行调控,如在肠道经微生物途径代谢的一些产物可以和芳香烃受体结合,刺激白细胞介素(IL)-22、IL-17相应靶基因表达,进而对宿主免疫反应进行调控以发挥抗炎作用。另外,在猪饲粮中添加适量色氨酸可增强肠上皮细胞的紧密连接、改善肠道屏障、提高生长性能等。本文通过对色氨酸代谢途径、产物以及其在猪生产中的应用等方面的综述,为深入研究动物体内与色氨酸代谢相关的生理作用以及色氨酸在猪生产中更广泛的应用提供参考。

本文引用格式

顾炯 , 刘明 , 刘幸 , 夏冰 . 色氨酸代谢调控机体免疫功能的机制及其在猪生产中应用的研究[J]. 动物营养学报, 2024 , 36(10) : 6147 -6157 . DOI: 10.12418/CJAN2024.522

Abstract

Tryptophan is an essential amino acid in the animal body, which undergoes metabolism and produces various metabolites primarily through kynurenine, serotonin, and microbial pathways. Tryptophan metabolites can regulate host immunity in multiple ways. For instance, certain tryptophan metabolites in microbial pathways can bind to aromatic hydrocarbon receptors, thereby stimulating the expression of interleukin (IL)-22 and IL-17 target genes to modulate host immune response. Additionally, they can enhance the tight junctions of intestinal epithelial cells, promote the secretion of anti-inflammatory factors, and consequently exert an anti-inflammatory effect. The inclusion of an appropriate amount of tryptophan in pig diets has been shown to improve pig intestinal barrier function, immune response, growth performance, among other aspects. This paper provides a comprehensive overview on the metabolic pathways, products as well as applications of tryptophan in pig production. It aims to serve as a theoretical foundation for further investigations into immune effects related to tryptophan metabolism and its broader application within pig production.

色氨酸是人和动物机体所必需的氨基酸,外观呈白色结晶粉末,味苦、无臭,其分子式为C11H12N2O2,相对分子质量为204.33。色氨酸在动物体内和消化道可以通过3条途径[犬尿氨酸(kynurenine,KYN)、5-羟色胺(5-hydroxy tryptamine,5-HT)、微生物]进行代谢并生成相关产物。色氨酸代谢在提高猪生长性能、调控免疫功能和维持肠道稳态等过程中发挥着重要作用[1]。色氨酸的肠道微生物分解代谢物可作为芳香烃受体(AhR)的配体和激动剂,与色氨酸代谢物如吲哚及其衍生物结合被激活。被激活的AhR会促进肠道中的先天免疫细胞产生白细胞介素(IL)-22,IL-22可以促进组织再生、增强屏障功能、缓解机体慢性炎症反应[2]。因此,色氨酸代谢物可通过激活AhR来调控肠道屏障功能和免疫稳态以及增强肠道对感染的抵抗力。不同途径的色氨酸代谢并非互相孤立,而是共同作用使肠道趋于较为稳定的状态。在猪饲粮中加入0.2%~0.4%的色氨酸,对猪肠道屏障、微生态平衡以及机体免疫功能等具有良好的改善作用[3]。本文主要综述了色氨酸代谢与宿主免疫及其在猪生产中的作用,以期为色氨酸代谢在猪生产上的研究提供新的思路。

1 色氨酸代谢

1.1 色氨酸代谢概述

色氨酸是一种芳香族氨基酸,分子质量比其他氨基酸大,但在蛋白质组成中其占比却又比较低。早在1个世纪前,便可以从酪蛋白中分离得到色氨酸,某些微生物如大肠杆菌可以合成色氨酸[4],且可以被应用到发酵工艺中生产色氨酸。然而动物细胞不能直接合成色氨酸,主要通过外源食物摄入。常见的天然富含色氨酸的食物包括乳制品、燕麦、豆类、奶酪、花生等,动物可通过摄取相关食物来补充色氨酸。
在动物肠道中栖息着丰富的微生物群落,它们可以代谢色氨酸,并产生影响机体代谢的生物活性因子,从而调节机体的正常生理活动。肠道微生物在色氨酸代谢中具有重要作用,经肠道微生物代谢产生的色氨酸代谢物可以作为微生物群落与宿主之间相互作用的重要信号分子,具有调控肠道稳态的作用[4]。色氨酸经过代谢可以生成吲哚及其相关的衍生物,如KYN、5-HT、褪黑激素(melatonin,MT)等物质,色氨酸及代谢物都对动物肠道屏障、免疫功能和生长性能有着重要影响[5]。色氨酸对宿主健康有非常积极的意义,其代谢物在宿主免疫调节中具有重要作用,如吲哚及其衍生物可激活AhR信号传导的能力,促进AhR固有免疫细胞分泌相关细胞因子,诱导肠上皮细胞分泌抗菌防御素等,从而抑制炎症反应、维护肠道屏障[6]。越来越多的研究表明,色氨酸代谢与消化系统、神经系统、泌尿系统等疾病的发生相关。因此,系统阐释色氨酸代谢在宿主免疫调控机制和猪生产中作用的研究,对色氨酸在动物生产上的应用具有重要意义[7-8]

1.2 色氨酸的主要代谢途径

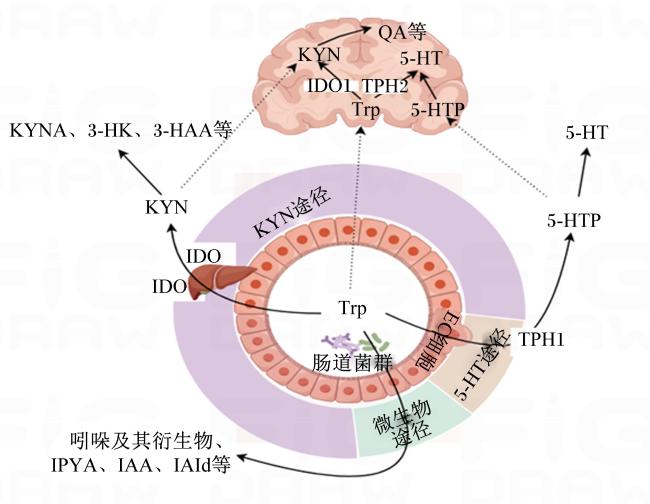
动物体内的色氨酸主要通过微生物、KYN和5-HT途径进行代谢并且产生多种产物,常见的色氨酸代谢物有吲哚及其衍生物、KYN、5-HT、MT等。在胃肠道、肝脏、大脑等部位都可以发生色氨酸代谢,色氨酸在肠道中的代谢与肠道微生物息息相关,不同肠道微生物能以色氨酸为底物代谢生成相应的代谢物,如肠道微生物通过代谢过量膳食色氨酸产生吲哚乙酸、吲哚硫酸等,而这些代谢物可作为AhR的配体在宿主免疫调控中发挥重要作用[8-9]。不同途径的色氨酸分解代谢见图1
图1 不同途径的色氨酸分解代谢

Trp:色氨酸 tryptophan;IDO:吲哚胺2,3双加氧酶 indoleamine-2,3-dioxygenase;IDO1:吲哚胺2,3双加氧酶1 indoleamine-2,3-dioxygenase 1;TDO:色氨酸-2,3-双加氧酶 tryptophan-2,3-dioxygenase;KYN:犬尿氨酸 kynurenine;KYNA:犬尿酸 kynurenic acid;3-HK:3-羟基犬尿氨酸 3-hydroxy-kynurenine;3-HAA:3-羟基邻氨基苯甲酸 3-hydroxyanthranilic acid;QA:喹啉酸 quinolinic acid;TPH1:色氨酸羟化酶1 recombinant tryptophan hydroxylase 1;TPH2:色氨酸羟化2 recombinant tryptophan hydroxylase 2;EC细胞:肠嗜铬细胞enterochromaffin cell;5-HTP:5-羟基色氨酸 5-hydroxytryptophan;5-HT:5-羟色胺 5-hydroxy tryptamine;IPYA:吲哚-3-丙酮酸 indole-3-pyrubate;IAA:吲哚-3-乙酸3-indoleacetic acid;IAId:吲哚-3-醛 indole-3-aldehyde。

Fig.1 Tryptophan catabolism through different pathways

1.2.1 微生物途径

吲哚及吲哚酸衍生物是色氨酸在微生物途径中的主要产物。吲哚类物质可经由肠道微生物对色氨酸进行分解而产生,比如梭菌属、拟杆菌属、大肠杆菌分解色氨酸可以生成吲哚乳酸和吲哚丙酸(indolepropionic acid,IPA)类物质,除此之外,消化链球菌能将色氨酸转化为吲哚丙烯酸(indole acrylic acid,IA)和IPA等[10-11]。罗伊氏乳杆菌、鼠乳杆菌也可分解色氨酸产生吲哚及其相关的产物,AhR信号传导可能会通过改变肠道微生物组成,影响上皮内淋巴细胞、先天性淋巴样细胞(innate lymphoid cells,ILC)、辅助性T细胞17(T helper cell 17,Th17)和调节性T细胞(regulatory T cells,Treg)等免疫细胞来调控肠道屏障功能[11-12]
吲哚-3-丙酮酸(indole-3-pyruvic acid,IPYA)是色氨酸的一种代谢产物,同时它也是由多种细菌共同作用产生的一种对结核分枝杆菌活性具有抑制作用的化合物,具有调控小鼠肠道黏膜免疫反应的功能。吲哚类物质具有调节机体免疫功能的作用,如吲哚-3-甲醛可以通过影响肠道微生物的结构组成以及丰度来缓解肠道炎症。研究表明,吲哚-3-乙酸(3-indoleacetic acid,IAA)、IPA可以通过激活AhR并且增强Treg细胞的功能来抑制肠道炎症[13]。作为一种生物活性物质,吲哚及其衍生物可以使肠上皮细胞紧密连接蛋白、抗炎细胞因子IL-10的表达上调,并显著减少IL-8的表达,起到调节肠道免疫屏障功能的作用[1]。色氨酸在微生物代谢途径下产生的大多数吲哚及其衍生物可作为AhR的配体,可通过AhR调控下游靶基因的表达,进而促进细胞因子(如IL-22、IL-17、IL-10)分泌,影响抗菌分子和黏液生成,促进营养物质与肠道微生物互相作用,维持肠道屏障功能稳定[6]

1.2.2 KYN途径

KYN途径是色氨酸代谢的重要途径之一,主要在肝脏、大脑、小脑等场所发生并产生多种代谢物来影响机体的生理活动。通过KYN途径,色氨酸在色氨酸-2,3-双加氧酶(tryptophan-2,3-dioxygenase,TDO)以及其他酶的作用下生成KYN[1,14]。生成的KYN会经过犬尿氨酸单加氧酶(kynurenine mono-oxygenase,KMO)、3-羟基邻氨基苯甲酸3,4双氧化酶(3-hydroxyaminobenzoic acid 3,4 dioxygenase,3HAO)等催化产生喹啉酸(quinolinic acid,QA)等代谢物,最终生成的烟酰胺腺嘌呤二核苷酸(nicotinamide adenine dinucleotide,NADH)可参与机体的能量代谢[5]。除此之外,色氨酸还可以由犬尿氨酸氨基转移酶(kynurenic aminotransferase,KAT)催化转氨生成犬尿酸(kynurenic acid,KYNA)[15-16]。KYN途径在色氨酸的代谢中承担着大部分的分解任务,吲哚胺2,3双加氧酶(indoleamine-2,3-dioxygenase,IDO)和TDO可作为色氨酸在KYN途径的限速酶,它们决定着色氨酸在此代谢途径中的分解速度。环境也会影响KYN途径的代谢,IDO的表达因受到环境影响导致KYN途径的色氨酸代谢受到阻碍[17]。肠道菌群可通过影响KYN途径中限速酶的活性来影响色氨酸的代谢。有研究表明,相比于正常动物,无菌动物肠道IDO的表达不足会影响KYN途径的色氨酸代谢,减少KYN和下游产物,如QA、NADH和KYNA的产生[11,18-19]。这说明IDO的表达不足会影响色氨酸的正常代谢。除此之外,色氨酸、维生素B及体内糖皮质激素也会通过影响TDO的表达来调控色氨酸在KYN途径下的代谢,当色氨酸在合成烟酸的过程中,维生素B缺乏也会使犬尿氨酸酶(kynureninase,KYNU)和KAT的活性降低,进而影响色氨酸在KYN途径下的分解代谢[1,20]
体内大部分的色氨酸通过KYN途径进行代谢,色氨酸在IDO1、IDO2、TDO等酶催化作用下生成可作为有效AhR配体的KYN、犬尿烯酸、黄尿酸(xanthurenic acid,XA)、朱砂酸等色氨酸代谢相关产物[21]。在小肠免疫细胞和上皮细胞中,色氨酸在IDO1的作用下参与KYN途径,生成KYN及KYNA、QA、NADH等,这些代谢产物被机体吸收后可以通过多种方式来影响机体健康,KYN途径异常可能与神经性疾病、癌症等疾病有关,IDO1和TDO的异常激活可能会导致肿瘤免疫受到抑制[1,22]。KYN在机体内发挥着抑制免疫反应和T细胞增殖、调节免疫细胞死亡等重要作用,对动物体的免疫功能有着重要影响[23]。研究发现,乳汁中KYN和关键酶的活性变化可以作为细菌性奶牛乳腺炎发生的标志,与健康的奶牛相比,色氨酸及其代谢物KYN在由无绿藻属生物引起的乳腺炎的奶牛乳汁中的含量明显降低,同时色氨酸分解代谢关键酶的活性也显著高于健康奶牛[24]

1.2.3 5-HT途径

5-HT途径是肠道中代谢色氨酸的核心途径之一,因5-HT又叫血清素,所以该途径又叫做血清素代谢途径。在代谢过程中色氨酸经过色氨酸羟化酶1(recombinant tryptophan hydroxylase 1,TPH1)、色氨酸羟化酶2(recombinant tryptophan hydroxylase 2,TPH2)、5-羟色氨酸脱羧酶(5-hydroxytryptophan decarboxylase,5-HTPDC)等的催化作用下转化为5-HT,5-HT在吲哚氧位甲基转移酶(hydroxy indole-O-methyltransferase,HIOMT)的作用下生成5-羟基吲哚乙酸(5-hydroxyindoleacetic acid,5-HIAA)以及MT等物质[25-26]。5-HT可由大脑和胃肠道嗜铬细胞产生,其中绝大部分(95%)5-HT在胃肠道嗜铬细胞中产生。在体内超过90%的5-HT是由TPH1在肠道中催化产生的,而作为神经递质的5-HT在脑组织内由TPH2催化生成。在这个过程中,首先是色氨酸在TPH的作用下生成为5-羟基色氨酸(5-hydroxytryptophan,5-HTP),然后通过5-HTPDC进一步转化为5-HT。色氨酸在5-HT途径的代谢会受到微生物的影响,动物肠道内存在一些共生细菌的代谢物可以影响结肠中5-HT的生物合成,健康小鼠肠道微生物群中的孢子形成(sporulation,Sp)微生物可以影响血清、结肠以及粪便的5-HT水平,进一步的研究发现,Sp会引起某些微生物的代谢产物增多,进而会向肠道嗜铬细胞发出信号以促进5-HT的合成[27-28]
作为色氨酸代谢途径的重要产物之一,5-HT具有多种生物学特性,它可作为一种神经递质调节动物生理活动,比如作为大脑神经激素调节动物的情绪[29];同时,由于5-HT的生理活性,它能够调控肠道的运动和分泌功能,比如肠血清素可以通过激活5-HT受体并将信号传导至神经元,再经过神经元进一步调控肠道的生理活动,进而影响肠道上皮细胞的分泌和肠道蠕动等活动[30-31];另外,色胺是由色氨酸脱羧产生的,可以影响动物肠道健康,而5-HT是色胺的一种衍生物,是其在生物体内活性形式之一,它可以通过影响色胺的生物学作用,并由此影响胃肠道运动和免疫功能[11,32]。MT是色氨酸经过5-HT代谢途径产生的一种代谢物,色氨酸经羟基化、脱羧生成5-HT,5-HT再经过乙酰化、甲基化后最终生成MT[33]。MT是一种较为高效的抗氧化剂,于1958年Lerner等[34]从牛松果体中发现,后在细菌、真菌、植物以及哺乳动物中都有发现,可见MT在生物体中较常见。MT也可在器官和组织细胞中产生,如胃肠道、皮肤、骨髓、淋巴细胞等,具有抗炎、调节生殖和增强免疫活性的作用。除此之外,MT还具有强大的抗氧化功能,可以通过清除活性氧增加机体的抗氧化防御能力,还可以刺激谷胱甘肽过氧化物酶、谷胱甘肽还原酶和过氧化氢酶等多种抗氧化酶的共同作用,从而提高机体抗氧化损伤的能力[35-36]

2 色氨酸代谢对宿主免疫的作用及机制

2.1 通过激活AhR调控宿主免疫

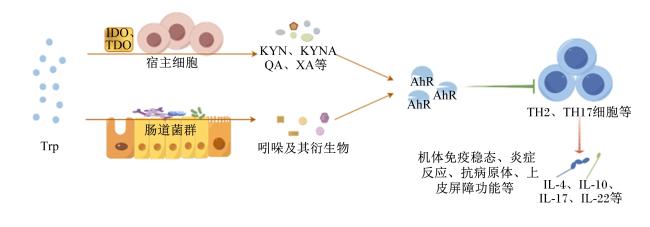
AhR是一种依赖配体的转录因子,可作为介导机体免疫调节的主要因子,AhR在免疫细胞、上皮细胞、内皮细胞中广泛表达,可被微生物代谢、机体新陈代谢过程中产生的小分子物质激活[11,37]。在色氨酸的代谢过程中产生的部分代谢产物可作为配体与AhR结合进而影响机体的免疫功能。AhR可作为一种抑制剂参与由IL-17介导的信号传导过程。研究表明,AhR缺失能够促进肠道Th17的分化影响细胞因子IL-17、IL-22的分泌进而调控机体的炎症反应,而AhR的正常表达会抑制致病性Th17细胞在T细胞介导的试验性结肠炎中发挥保护作用[38]。相反地,当AhR被激活可促进Treg细胞分化并且提高抗炎细胞因子(IL-10)的分泌,AhR过表达有助于减缓或抑制Th17的分化以及降低促炎症细胞因子(IL-17)的产生量[39-40]。Lanis等[41]研究发现,色氨酸的代谢物激活AhR后,使得肠上皮细胞的IL-10的表达上调。IL-10在肠道炎症及免疫反应方面的调节起着重要的作用,它可以作用于单核巨噬细胞,通过调节巨噬细胞的代谢进程来缓解机体的炎症反应[42]。由此可见,AhR可通过2种方式调节机体的免疫稳态,一是通过活化天然淋巴细胞[如天然淋巴细胞3 (group 3 innate lymphoid cell,ILC3)]促使相关细胞因子的分泌增多,进而调节相关抗微生物肽释放的途径来调节机体免疫;二是通过作用于上皮淋巴细胞、先天淋巴样细胞来防御病原微生物,从而促进肠道免疫稳态。色氨酸代谢物通过AhR调控宿主免疫过程见图2
图2 色氨酸代谢物通过AhR调控宿主免疫

Trp:色氨酸tryptophan;IDO:吲哚胺2,3双加氧酶indoleamine-2,3-dioxygenase;TDO:色氨酸-2,3-双加氧酶 tryptophan-2,3-dioxygenase;KYN:犬尿氨酸 kynurenine;KYNA:犬尿喹啉酸kynurenic acid;QA:喹啉酸quinolinic acid;XA:黄尿酸xanthurenic acid ;AhR:芳香烃受体Aryl hydrocarbon receptor;TH2:辅助型T细胞2 T helper 2 cell;TH17:辅助性T 细胞17 T helper cell 17;IL-4:白细胞介素-4 interleukin 4;IL-10:白细胞介素-10 interleukin 10;IL-17:白细胞介素-17 interleukin-17;IL-22:白细胞介素-22 interleukin-22。

Fig.2 Tryptophan metabolites regulate host immunity through AhR

2.1.1 微生物途径代谢物通过AhR调控宿主免疫

色氨酸在微生物途径下的代谢物——吲哚及其衍生物有助于胃肠道功能、炎症、免疫系统的调节。这些代谢产物进一步与AhR发生作用以促进抗炎细胞因子的分泌,从而有利于改善机体的炎症反应及免疫功能[43]。研究表明,吲哚类物质同样具有AhR配体特性,吲哚及其衍生物可以使AhR活化,以促进相关目标基因的表达,例如,IAA可以通过结合AhR来调节肠道中IL-22的表达[1]。IAA、吲哚-3-醛(indole-3-aldehyde,IAld)等可以通过刺激AhR以促进相关细胞因子(IL-6、IL-17、IL-22)的分泌,以此预防或者缓解机体的炎症反应[44-45]。Islam等[46]研究发现,饲喂色氨酸可上调小鼠AhR的mRNA表达,促进先天免疫细胞(ILCs)增殖,促使IL-22分泌增多,而IL-22分泌有利于组织和器官的损伤修复,同时还可抵抗病原体的侵袭进而增强免疫功能。然而,需要适当地控制AhR的活性,有研究表明,由于IAA的过表达引起的AhR途径的过度活化会加速小鼠胰腺肿瘤的生长,严重影响机体健康[47]。另外,AhR的过表达后还会抑制IL-17介导的趋化因子以及细胞因子IL-6的产生,进而影响宿主免疫功能[48]
除了能够与AhR作用以调控宿主免疫功能之外,吲哚类物质还能影响结肠癌细胞系中的炎性细胞因子(IL-10、IL-8)的mRNA表达,同时还可以激活由肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)所介导的核转录因子-κB(nuclear transcription factor-κB,NF-κB)通路来促进TNF-α、IL-1、IL-6等细胞因子的产生,并由此影响动物机体的免疫功能[49-50]。研究表明,适量的吲哚类物质不仅可以上调肠上皮细胞紧密连接蛋白、IL-10的生成量,还会显著降低促炎因子IL-8的表达水平,有助于改善肠道屏障功能[51]

2.1.2 KYN途径代谢物通过AhR调控宿主免疫

色氨酸-KYN途径产生的代谢物也可与AhR结合来调节宿主免疫功能及肠道健康。已有研究表明,机体可以通过补充XA和KYNA来影响肠上皮细胞、T细胞以及AhR的激活,从而缓解结肠炎,而KYN、KA、XA等都具有AhR配体特性,它们能通过与AhR作用进而刺激下游靶基因中IL的表达,这间接地通过调节免疫相关细胞因子的释放(例如IL-17、IL-22)来对机体的免疫应答产生影响[51-53]。KYN激活AhR促进IL-22、肠上皮细胞抗菌肽的分泌,从而改善肠道微生物环境,维护肠道免疫功能的稳定[51]。综上所述,色氨酸经KYN途径生成的KYN、KA等代谢物可以作为AhR的配体,通过AhR介导IL-22等细胞因子的分泌,进而调节机体的免疫功能。

2.2 通过5-HT直接调控宿主免疫

5-HT作为神经递质和外周激素发挥着众多的免疫功能,它可以通过与免疫细胞的5-HT受体结合,是先天性和适应性免疫系统的有效调节剂。作为色氨酸在5-HT途径的代谢产物之一,5-HT的浓度变化会对机体的炎症反应和免疫功能产生影响。Shajib等[54]通过试验发现,当结肠炎模型中5-HT的浓度下降的时候,促炎细胞因子的水平同样会下调,而恢复5-HT的浓度水平后发现由葡聚糖硫酸钠(dextran sulfate sodium,DSS)诱导的结肠炎会变得更加严重。5-HT有助于增强各类黏膜感染模型的免疫和炎症反应,它能与效应细胞上的5-HT受体(serotonin receptor,5-HTR)结合,刺激肠黏膜外源性神经,从而提高乙酰胆碱的释放量,进而引起肠道运动[25,55]。除此之外,5-HT可以作用于免疫细胞,当先天免疫细胞中的5-HT与5-HTR结合后可以使T细胞的数量变多,增强促炎T细胞的反应,而Th2细胞的生成在肠道炎症反应的过程中将进一步影响T细胞介导的免疫应答。Kanova等[56]的研究表明,5-HT对大部分的免疫反应具有调节作用,而且5-HT可能还是肥大细胞、巨噬细胞等各种免疫细胞的趋化因子,可以增加促炎细胞因子(IL-1、IL-6、NF-κB)分泌并增强免疫细胞对病原体的吞噬作用。综上所述,不仅5-HT浓度变化会影响到机体的免疫稳态,且5-HT本身可以和免疫细胞的相关受体相结合,从而发挥调控机体免疫功能的作用。

3 色氨酸代谢在猪生产上的应用

肠道是猪消化营养物质的主要场所,肠道健康在一定程度上标志着猪在生长发育过程中的健康。仔猪断奶时肠道尚未发育完全,容易受到外界因素的影响而发生应激反应,色氨酸作为断奶仔猪生长发育的重要营养物质,能有效缓解仔猪肠道的过激反应。除此之外,色氨酸及其代谢产物在猪的生长过程中具有重要作用。已有研究表明,在猪饲粮中适量地加入色氨酸能有效起到提升猪的肠道屏障功能、免疫功能、生长性能等方面的作用[57]。通过在饲粮中添加适量色氨酸,能调节血浆以及下丘脑血清素的浓度,缓解由于其他氨基酸摄入造成的不良影响,具有提高断奶仔猪生长性能的作用[58]。由此可知,在饲粮中添加适量的色氨酸有改善猪生长发育的效果,下面将主要围绕色氨酸在猪生产上的应用进行综述。

3.1 对猪生长性能的影响

作为断奶仔猪生长发育的重要营养物质,色氨酸及其代谢产物在猪的生长性能、肠道健康方面发挥着重要的作用[58]。断奶应激会导致仔猪肠道受损、肠道菌群失衡,进而引起腹泻等不良反应。色氨酸可促进仔猪重建胃肠道中的微生物生态群落。研究指出,在饲粮中添加适量色氨酸能减轻仔猪因群体转移而产生的不良应激反应,增加仔猪采食量,提升生长性能,同时还能改善仔猪的肠道形态[59-60]
色氨酸能提高断奶仔猪的日采食量、增加日增重、促进机体对氮的利用。在饲粮中添加0.35%的色氨酸对断奶仔猪的肠道微生物的多样性具有明显的调节作用,如增加了乳杆菌属、胞壁杆菌科等的丰度,降低了普雷沃氏菌属等菌属丰度,相较而言,在低蛋白质饲粮中添加0.21%色氨酸更有利于仔猪的生长,当饲粮中加入适量的色氨酸时能促进仔猪的生长发育,而加入的色氨酸过多可能会影响仔猪进食和生长发育[61]。除此之外,在猪生产中,色氨酸能与其他氨基酸共同加入饲粮中使用。Kwon等[58]在生长猪高亮氨酸饲粮中增加色氨酸,结果表明,色氨酸能缓解并且改善由于亮氨酸增加导致下丘脑5-HT浓度下降的情况,进而起到提高猪的采食量和生长性能的作用。在猪饲粮中添加的色氨酸与大分子中性氨基酸的比值保持在一定范围时不会对猪生长性能造成太大影响,而比值下降会导致猪生长性能下降[62]。Sterndale等[63]对感染肠毒素大肠杆菌的断奶仔猪进行试验,结果发现,无论仔猪是否感染,在饲粮中补充色氨酸并且减少大分子中性氨基酸(large neutral amino acid,LNAA)会使血液循环中色氨酸利用更充分,这可能导致血清5-HT浓度提高,从而有助于改善仔猪断奶后的表现。此外,Miao等[64]的研究表明,在饲粮中添加适量色氨酸除了能促进仔猪的生长之外,还可以提高母猪的繁殖性能。再进一步的研究表明,色氨酸摄入量增加能有效提升猪的进食量以及饲料转化率,进而提升猪日增重;在断奶仔猪的饲粮中补充0.19%和0.26%的色氨酸后发现,猪血浆生长素释放肽水平、十二指肠屏障蛋白mRNA表达水平比在饲粮中补充0.12%色氨酸的猪要高[65]。综上可知,适量色氨酸可能是通过改变仔猪肠道微生物的丰度来改善仔猪的肠道功能,且5-HT的浓度可能也会对猪的生长性能造成影响,并且有关色氨酸和其他氨基酸的最适用量比也有一定的研究,进一步探索色氨酸对猪生长性能的作用将有利于色氨酸在猪生产上的应用。

3.2 对猪肠道屏障的影响

肠道屏障关系着畜禽动物的健康生长。有研究发现,饲粮中添加0.15%和0.75%的色氨酸对断奶仔猪的生长性能没有显著影响,但可增加空肠的隐窝深度和绒毛高度与隐窝深度的比值,对肠道屏障功能造成一定的影响[66];当在饲粮中添加0.2%色氨酸可以使断奶仔猪及肥育猪的肠道紧密连接蛋白[闭锁小带蛋白-1(zona occludens-1,ZO-1)、紧密连接蛋白(Occludin)、封闭蛋白-1(Claudin-1)]的mRNA表达呈下降趋势,由此增加了肠道屏障的通透性[67];在饲粮中补充0.75%的色氨酸时,肠道紧密连接蛋白ZO-1和闭合蛋白的表达降低,导致断奶仔猪肠屏障功能受到负面影响[66]。当色氨酸与赖氨酸混合使用,其比例由0.15至0.18时,可以调节机体组织IDO和小肠紧密连接蛋白的mRNA丰度,同时影响机体的氮代谢状态[68]。另有研究表明,色氨酸可以通过促进断奶仔猪分泌肠道β-防御素来改善仔猪的肠道稳态[69]。微生物代谢色氨酸产生的吲哚丙酸会在血液中积累,这种作用可以增强动物肠道屏障功能,并因此在一定程度上缓解肠道损伤对机体带来的负面影响[70]。以上研究表明,适量的色氨酸对猪肠道屏障功能具有改善作用,然而当添加过量的色氨酸则可能起到反作用。

3.3 对猪免疫机能的影响

色氨酸具有改善猪免疫功能的作用,肠道微生物的色氨酸代谢物可通过作用于特定宿主受体来调节宿主的免疫防御机制[71]。色氨酸具有增强机体抗氧化功能的作用,色氨酸的氨基可以直接与氧化剂结合来发挥抗氧化作用,提高机体免疫防御能力。除此之外,在猪饲粮中添加色氨酸,可在一定程度上缓解猪的炎症反应。有研究报道,补充色氨酸可以增强脂多糖(lipopolysaccharide,LPS)刺激后的抗氧化状态,下调促炎细胞因子的mRNA表达,从而改善断奶仔猪的腹泻情况[23]。当内质网应激反应发生时,将会诱导大量内质网应激相关蛋白产生而导致细胞凋亡,饲粮中添加色氨酸则可以有效缓解内质网的应激反应[23]。此外,基础饲粮中加入色氨酸促进机体AhR的激活以及免疫应答基因细胞色素P450 1A1(CYP1A1)的表达,降低盲肠中TNF-αIL-8的mRNA表达水平,能在一定程度上缓解肠道炎症[72]。因此,色氨酸及其代谢物可通过提高机体抗氧化能力、缓解炎症反应,而且还可以通过AhR反应途径来提升猪的免疫机能。目前,已有较多关于色氨酸代谢介导AhR来影响机体免疫方面的研究,为色氨酸在猪生产中更加广泛的应用提供一定的理论基础。

4 小结

动物体内的色氨酸主要通过KYN、5-HT、微生物途径进行代谢,色氨酸代谢及产物可以从多方面调控机体的免疫功能。在猪生产中,色氨酸在肠道中经过代谢和吸收,对猪的生长性能、免疫机能等的提升具有积极作用。但是,关于色氨酸代谢的免疫调控机制和应用还有待进一步的探索,全面研究色氨酸对宿主的免疫调控机制以及在猪生产中的作用对于更好地应用色氨酸具有非常重要的意义。
[1]
XUE C, LI G L, ZHENG Q X, et al. Tryptophan metabolism in health and disease[J]. Cell Metabolism, 2023, 35(8):1304-1326.

[2]
DUDAKOV J A, HANASH A M, VAN DEN BRINK M R M. Interleukin-22:immunobiology and pathology[J]. Annual Review of Immunology, 2015,33:747-785.

[3]
LIANG H W, DAI Z L, KOU J, et al. Dietary L-tryptophan supplementation enhances the intestinal mucosal barrier function in weaned piglets:implication of tryptophan-metabolizing microbiota[J]. International Journal of Molecular Sciences, 2018, 20(1):20.

[4]
AGUS A, PLANCHAIS J, SOKOL H. Gut microbiota regulation of tryptophan metabolism in health and disease[J]. Cell Host & Microbe, 2018, 23(6):716-724.

[5]
朱艳芝, 马文锋, 陈晓晨, 等. 色氨酸分解代谢及其在猪饲粮中的应用进展[J]. 动物营养学报, 2020, 32(3):1019-1024.

DOI

ZHU Y Z, MA W F, CHEN X C, et al. Tryptophan catabolism and its application in pig diets[J]. Chinese Journal of Animal Nutrition, 2020, 32(3):1019-1024. (in Chinese)

[6]
DONG F C, HAO F H, MURRAY I A, et al. Intestinal microbiota-derived tryptophan metabolites are predictive of Ah receptor activity[J]. Gut Microbes, 2020, 12(1):1-24.

DOI PMID

[7]
HU Z G, FENG L Y, JIANG Q, et al. Intestinal tryptophan metabolism in disease prevention and swine production[J]. ANIMAL NUTRITION, 2023,15:364-374.

[8]
SEO S K, KWON B. Immune regulation through tryptophan metabolism[J]. Experimental and Molecular Medicine, 2023, 55(7):1371-1379.

[9]
WEI G Z, MARTIN K A, XING P Y, et al. Tryptophan-metabolizing gut microbes regulate adult neurogenesis via the aryl hydrocarbon receptor[J]. Proceedings of the National Academy of Sciences of the United States of America, 2021, 118(27):e2021091118.

[10]
WLODARSKA M, LUO C W, KOLDE R, et al. Indoleacrylic acid produced by commensal Peptostreptococcus species suppresses inflammation[J]. Cell Host & Microbe, 2017, 22(1):25-37.e6.

[11]
GAO J, XU K, LIU H N, et al. Impact of the gut microbiota on intestinal immunity mediated by tryptophan metabolism[J]. Frontiers in Cellular and Infection Microbiology, 2018,8:13.

[12]
LAMAS B, RICHARD M L, LEDUCQ V, et al. CARD9 impacts colitis by altering gut microbiota metabolism of tryptophan into aryl hydrocarbon receptor ligands[J]. Nature Medicine, 2016, 22(6):598-605.

DOI PMID

[13]
LI K Y, HAO Z H, DU J Y, et al. Bacteroides thetaiotaomicron relieves colon inflammation by activating aryl hydrocarbon receptor and modulating CD4+T cell homeostasis[J]. International Immunopharmacology, 2021,90:107183.

[14]
SAVITZ J. The kynurenine pathway:a finger in every pie[J]. Molecular Psychiatry, 2020, 25(1):131-147.

[15]
WYCKELSMA V L, LINDKVIST W, VENCKUNAS T, et al. Kynurenine aminotransferase isoforms display fiber-type specific expression in young and old human skeletal muscle[J]. Experimental Gerontology, 2020,134:110880.

[16]
CORREIA A S, VALE N. Tryptophan metabolism in depression:a narrative review with a focus on serotonin and kynurenine pathways[J]. International Journal of Molecular Sciences, 2022, 23(15):8493.

[17]
查翠芳. 色氨酸代谢物犬尿氨酸途径的调节和功能[J]. 广东饲料, 2019(3):51.

ZHA C F. Regulation and function of the tryptophan metabolite kynurenine pathway[J]. Guangdong Feed, 2019(3):51. (in Chinese)

[18]
KENNEDY P J, CRYAN J F, DINAN T G, et al. Kynurenine pathway metabolism and the microbiota-gut-brain axis[J]. Neuropharmacology, 2017,112:399-412.

[19]
HUNT C, MACEDO E, CORDEIRO T, et al. Effect of immune activation on the kynurenine pathway and depression symptoms-a systematic review and Meta analysis[J]. Neuroscience and Biobehavioral Reviews, 2020,118:514-523

[20]
欧阳经鑫, 李秋粉, 周华, 等. 维生素B6的生物学功能及其抗炎作用机制[J]. 动物营养学报, 2023, 35(5):2738-2747.

DOI

OU YANG J X, LI Q F, ZHOU H, et al. Biological function and anti-inflammatory mechanism of vitamin B6[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):2738-2747. (in Chinese)

[21]
SOLVAY M, HOLFELDER P, KLAESSENS S, et al. Tryptophan depletion sensitizes the AHR pathway by increasing AHR expression and GCN2/LAT1-mediated kynurenine uptake,and potentiates induction of regulatory T lymphocytes[J]. Journal for Immunotherapy of Cancer, 2023, 11(6):e006728.

[22]
NGUI I Q H, PERERA A P, ERI R. Does NLRP3 inflammasome and aryl hydrocarbon receptor play an interlinked role in bowel inflammation and colitis-associated colorectal cancer?[J]. Molecules, 2020, 25(10):2427.

[23]
LIU G M, TAO J Y, LU J J, et al. Dietary tryptophan supplementation improves antioxidant status and alleviates inflammation,endoplasmic reticulum stress,apoptosis,and pyroptosis in the intestine of piglets after lipopolysaccharide challenge[J]. Antioxidants, 2022, 11(5):872.

[24]
BOCHNIARZ M, PIECH T, KOCKI T, et al. Tryptophan,kynurenine and kynurenic acid concentrations in milk and serum of dairy cows with Prototheca mastitis[J]. Animals:an Open Access Journal From MDPI, 2021, 11(12):3608.

[25]
LIU N, SUN S Q, WANG P J, et al. The mechanism of secretion and metabolism of gut-derived 5-hydroxytryptamine[J]. International Journal of Molecular Sciences, 2021, 22(15):7931.

[26]
QIN H Y, XAVIER WONG H L, ZANG K H, et al. Enterochromaffin cell hyperplasia in the gut:factors,mechanism and therapeutic clues[J]. Life Sciences, 2019,239:116886.

[27]
BORGHI M, PUCCETTI M, PARIANO M, et al. Tryptophan as a central hub for host/microbial symbiosis[J]. International Journal of Tryptophan Research:IJTR, 2020,13:1178646920919755.

[28]
YANO J M, YU K, DONALDSON G P, et al. Indigenous bacteria from the gut microbiota regulate host serotonin biosynthesis[J]. Cell, 2015, 161(2):264-276.

DOI PMID

[29]
BRUMMELTE S, MC GLANAGHY E, BONNIN A, et al. Developmental changes in serotonin signaling:implications for early brain function,behavior and adaptation[J]. Neuroscience, 2017,342:212-231.

[30]
BERGER M, GRAY J A, ROTH B L. The expanded biology of serotonin[J]. Annual Review of Medicine, 2009,60:355-366.

[31]
NEUMANN J, HOFMANN B, DHEIN S, et al. Cardiac roles of serotonin (5-HT) and 5-HT-receptors in health and disease[J]. International Journal of Molecular Sciences, 2023, 24(5):4765.

[32]
WILLIAMS B B, VAN BENSCHOTEN A H, CIMERMANCIC P, et al. Discovery and characterization of gut microbiota decarboxylases that can produce the neurotransmitter tryptamine[J]. Cell Host & Microbe, 2014, 16(4):495-503.

[33]
吕品一, 刘国世, 胡艳欣, 等. 褪黑素对动物机体免疫调节的研究进展[J]. 中国兽医杂志, 2023, 59(10):88-94.

LV P Y, LIU G S, HU Y X, et al. Research progress on the immunomodulatory effects of melatonin in animal organisms[J]. Chinese Journal of Veterinary Medicine, 2023, 59(10):88-94. (in Chinese)

[34]
LERNER A B, CASE J D, TAKAHASHI Y, et al. Isolation of melatonin,the pineal gland factor that lightens melanocytes[J]. Journal of the American Chemical Society, 80(10):2587-2587.

[35]
ZHANG P, HU Y, ZHOU R, et al. The antioxidant system response to drought-stressed Diospyros lotus treated with exogenous melatonin[J]. PeerJ, 2022,10:e13936.

[36]
高文婷, 孙海基, 王德华, 等. 褪黑素延缓哺乳动物衰老的作用及其机制的研究进展[J]. 动物学杂志, 2020, 55(6):797-805.

GAO W T, SUN H J, WANG D H, et al. The role of melatonin in delaying aging and related mechanisms in mammals[J]. Chinese Journal of Zoology, 2020, 55(6):797-805. (in Chinese)

[37]
MAJOR J, CROTTA S, FINSTERBUSCH K, et al. Endothelial AHR activity prevents lung barrier disruption in viral infection[J]. Nature, 2023, 621(7980):813-820.

[38]
QIU J, GUO X H, CHEN Z M E, et al. Group 3 innate lymphoid cells inhibit T-cell-mediated intestinal inflammation through aryl hydrocarbon receptor signaling and regulation of microflora[J]. Immunity, 2013, 39(2):386-399.

DOI PMID

[39]
范丽萍, 孙凯, 张永为, 等. UC中芳香烃受体AHR的表达及其对IL-17信号效应调控的研究[J]. 浙江临床医学, 2018, 20(4):643-645.

FAN L P, SUN K, ZHANG Y W, et al. The expression of aromatic hydrocarbon receptor AHR in UC and its regulation of IL-17 signaling effect[J]. Zhejiang Clinical Medical Journal, 2018, 20(4):643-645. (in Chinese)

[40]
LIU C, LI Y A, CHEN Y P, et al. Baicalein restores the balance of Th17/Treg cells via Aryl hydrocarbon receptor to attenuate colitis[J]. Mediators of Inflammation, 2020,2020:5918587.

[41]
LANIS J M, ALEXEEV E E, CURTIS V F, et al. Tryptophan metabolite activation of the aryl hydrocarbon receptor regulates IL-10 receptor expression on intestinal epithelia[J]. Mucosal Immunology, 2017, 10(5):1133-1144.

DOI PMID

[42]
IP W K E, HOSHI N, SHOUVAL D S, et al. Anti-inflammatory effect of IL-10 mediated by metabolic reprogramming of macrophages[J]. Science, 2017, 356(6337):513-519.

DOI PMID

[43]
SZELEST M, WALCZAK K, PLECH T. A new insight into the potential role of tryptophan-derived AhR ligands in skin physiological and pathological processes[J]. International Journal of Molecular Sciences, 2021, 22(3):1104.

[44]
DANG G Q, WEN X B, ZHONG R Q, et al. Pectin modulates intestinal immunity in a pig model via regulating the gut microbiota-derived tryptophan metabolite-AhR-IL22 pathway[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):38.

DOI PMID

[45]
SHANG H T, HUANG C, XIAO Z L, et al. Gut microbiota-derived tryptophan metabolites alleviate liver injury via AhR/Nrf2 activation in pyrrolizidine alkaloids-induced sinusoidal obstruction syndrome[J]. Cell and BiosciencE, 2023, 13(1):127.

DOI PMID

[46]
ISLAM J, SATO S, WATANABE K, et al. Dietary tryptophan alleviates dextran sodium sulfate-induced colitis through aryl hydrocarbon receptor in mice[J]. Journal of Nutritional Biochemistry, 2017,42:43-50.

[47]
HEZAVEH K, SHINDE R S, KLÖTGEN A, et al. Tryptophan-derived microbial metabolites activate the aryl hydrocarbon receptor in tumor-associated macrophages to suppress anti-tumor immunity[J]. Immunity, 2022, 55(2):324-340.e8.

DOI PMID

[48]
范丽萍. 芳香烃受体AHR负向调控IL-17信号效应及机制探讨[D]. 硕士学位论文. 杭州: 浙江大学, 2014.

FAN L P. Negative regulation of IL-17-mediated signaling by the arylhydrocarbon receptor[D]. Master’s Thesis. Hangzhou: Zhejiang University, 2014. (in Chinese)

[49]
CHOI Y, ABDELMEGEED M A, SONG B J. Preventive effects of indole-3-carbinol against alcohol-induced liver injury in mice via antioxidant,anti-inflammatory,and anti-apoptotic mechanisms:role of gut-liver-adipose tissue axis[J]. Journal of Nutritional Biochemistry, 2018,55:12-25.

[50]
YU H, LIN L B, ZHANG Z Q, et al. Targeting NF-κB pathway for the therapy of diseases:mechanism and clinical study[J]. Signal Transduction and Targeted Therapy, 2020, 5(1):209.

[51]
SUN M G, MA N, HE T, et al. Tryptophan (Trp) modulates gut homeostasis via aryl hydrocarbon receptor (AhR)[J]. Critical Reviews in Food Science and Nutrition, 2020, 60(10):1760-1768.

DOI PMID

[52]
LUO Z Z, YONG K, DU Z L, et al. Association between tryptophan metabolism and inflammatory biomarkers in dairy cows with ketosis[J]. Metabolites, 2023, 13(3):333.

[53]
TANG Z R, SHI B S, SUN W Z, et al. Tryptophan promoted β-defensin-2 expression via the mTOR pathway and its metabolites:kynurenine banding to aryl hydrocarbon receptor in rat intestine[J]. RSC Advances, 2020, 10(6):3371-3379.

[54]
SHAJIB M S, KHAN W I. The role of serotonin and its receptors in activation of immune responses and inflammation[J]. Acta Physiologica, 2015, 213(3):561-574.

[55]
PLATTEN M, NOLLEN E A A, RÖHRIG U F, et al. Tryptophan metabolism as a common therapeutic target in cancer,neurodegeneration and beyond[J]. Nature Reviews Drug Discovery, 2019, 18(5):379-401.

[56]
KANOVA M, KOHOUT P. Serotonin-its synthesis and roles in the healthy and the critically ill[J]. International Journal of Molecular Sciences, 2021, 22(9):4837.

[57]
LIU G, LU J, SUN W, et al. Tryptophan supplementation enhances intestinal health by improving gut barrier function, alleviating inflammation,and modulating intestinal microbiome in lipopolysaccharide-challenged piglets[J]. Front Microbiol, 2022,13:919431.

[58]
KWON W B, SOTO J A, STEIN H H. Effects of dietary leucine and tryptophan on serotonin metabolism and growth performance of growing pigs[J]. Journal of Animal Science, 2022, 100(1):skab356.

[59]
ALVES DA CUNHA VALINI G, RIGHETTI ARNAUT P, FRANÇA I, et al. Increased dietary Trp,Thr,and Met supplementation improves growth performance and protein deposition of salmonella-challenged growing pigs under poor housing conditions[J]. Journal of Animal Science, 2023,101:skad141.

[60]
JANSMAN A J M, CIROT O, CORRENT E, et al. Interaction and imbalance between indispensable amino acids in young piglets[J]. Animal, 2019, 13(5):941-949.

DOI PMID

[61]
RAO Z B, LI J L, SHI B S, et al. Dietary tryptophan levels impact growth performance and intestinal microbial ecology in weaned piglets via tryptophan metabolites and intestinal antimicrobial peptides[J]. Animals:an Open Access Journal From MDPI, 2021, 11(3):817.

[62]
HENRY Y, SÈVE B, COLLÉAUX Y, et al. Interactive effects of dietary levels of tryptophan and protein on voluntary feed intake and growth performance in pigs,in relation to plasma free amino acids and hypothalamic serotonin[J]. Journal of Animal Science, 1992, 70(6):1873-1887.

[63]
STERNDALE S O, MILLER D W, MANSFIELD J P, et al. Increasing dietary tryptophan in conjunction with decreasing other large neutral amino acids increases weight gain and feed intake in weaner pigs regardless of experimental infection with enterotoxigenic Escherichia coli[J]. Journal of Animal Science, 2020, 98(8):skaa190.

[64]
MIAO J F, ADEWOLE D, LIU S X, et al. Tryptophan supplementation increases reproduction performance,milk yield,and milk composition in lactating sows and growth performance of their piglets[J]. Journal of Agricultural and Food Chemistry, 2019, 67(18):5096-5104.

[65]
ZHANG H W, YIN J D, LI D F, et al. Tryptophan enhances ghrelin expression and secretion associated with increased food intake and weight gain in weanling pigs[J]. Domestic Animal Endocrinology, 2007, 33(1):47-61.

PMID

[66]
TOSSOU M C B, LIU H N, BAI M M, et al. Effect of high dietary tryptophan on intestinal morphology and tight junction protein of weaned pig[J]. BioMed Research International, 2016,2016:2912418.

[67]
李小兰. 色氨酸对肠道屏障功能的作用[D]. 硕士学位论文. 南昌: 南昌大学, 2015.

LI X L. The effect of tryptophan on intestinal barrier function[D]. Master’s Thesis. Nanchang: Nanchang University, 2015. (in Chinese)

[68]
马文锋, 郭亮, 王占彬, 等. 饲粮色氨酸水平对断奶仔猪器官指数及小肠相关基因表达的影响[J]. 农业生物技术学报, 2021, 29(8):1538-1545.

MA W F, GUO L, WANG Z B, et al. Effects of dietary tryptophan levels on organ index and small intestine related gene expression in weaning pigs (Sus scrofa)[J]. Journal of agricultural biotechnology, 2021, 29(8):1538-1545. (in Chinese)

[69]
CHEN C, HU H, LI Z C, et al. Dietary tryptophan improves growth and intestinal health by promoting the secretion of intestinal β-defensins against enterotoxigenic Escherichia coli F4 in weaned piglets[J]. Journal of Nutritional Biochemistry, 2024,129:109637.

[70]
DODD D, SPITZER M H, VAN TREUREN W, et al. A gut bacterial pathway metabolizes aromatic amino acids into nine circulating metabolites[J]. Nature, 2017, 551(7682):648-652.

[71]
ZHANG J, ZHU S W, MA N, et al. Metabolites of microbiota response to tryptophan and intestinal mucosal immunity:a therapeutic target to control intestinal inflammation[J]. Medicinal Research Reviews, 2021, 41(2):1061-1088.

[72]
LIANG H W, DAI Z L, LIU N, et al. Dietary L-tryptophan modulates the structural and functional composition of the intestinal microbiome in weaned piglets[J]. Frontiers in Microbiology, 2018,9:1736.

文章导航

/