研究论文

饲粮中添加不同水平钙磷对断奶仔猪肠道微生物和肠道上皮屏障功能的影响

  • 苗振彦 , 1, 2 ,
  • 李英 2 ,
  • 孙焱杰 1 ,
  • 吴绮雯 1 ,
  • 邓东艳 1 ,
  • 唐佳希 1 ,
  • 杨雪芬 1 ,
  • 王丽 1 ,
  • 蒋宗勇 , 1, * ,
  • 易宏波 , 1, *
展开
  • 1 广东省农业科学院动物科学研究所,猪禽种业全国重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室,岭南现代农业科学与技术广东省实验室茂名分中心,广州 510640
  • 2 华南农业大学兽医学院,广州 510630
*蒋宗勇,研究员,博士生导师,E-mail: ;
易宏波,研究员,硕士生导师,E-mail:

苗振彦(1998—),男,内蒙古包头人,硕士研究生,研究方向为猪营养与饲料。E-mail:

Copy editor: 陈鑫

收稿日期: 2024-03-22

  网络出版日期: 2024-10-14

基金资助

国家“十四五”重点研发计划专项(2021YFD1300402)

国家现代农业产业技术体系(CAR-35)

广东省乡村振兴战略专项资金项目(2023TS-3)

岭南现代农业科学与技术广东省实验室茂名分中心基金资助课题(2022ZD003)

岭南现代农业科学与技术广东省实验室茂名分中心基金资助课题(2021TDQD002)

Effects of Dietary Supplementation with Different Levels of Calcium and Phosphorus on Gut Microbiota and Barrier Function in Weaned Piglets

  • MIAO Zhenyan , 1, 2 ,
  • LI Ying 2 ,
  • SUN Yanjie 1 ,
  • WU Qiwen 1 ,
  • DENG Dongyan 1 ,
  • TANG Jiaxi 1 ,
  • YANG Xuefen 1 ,
  • WANG Li 1 ,
  • JIANG Zongyong , 1, * ,
  • YI Hongbo , 1, *
Expand
  • 1 Lingnan Modern Agricultural Science and Technology Guangdong Provincial Laboratory Maoming Branch, Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition Research, Key Laboratory of Animal Nutrition and Feed in South China, Ministry of Agriculture and Rural Areas, National Key Laboratory of Swine and Poultry Breeding, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
  • 2 College of Veterinary Medicine, South China Agricultural University, Guangzhou 510630, China
*JIANG Zongyong, professor, E-mail: ;
YI Hongbo, professor, E-mail:

Received date: 2024-03-22

  Online published: 2024-10-14

摘要

本试验旨在探讨饲粮中添加不同水平钙磷对断奶仔猪肠道微生物和肠道上皮屏障功能的影响。144头断奶仔猪(杜×长×大,21日龄)随机分配到6个组,每组6个栏,每栏4头(公母各占1/2)。饲粮标准全消化道可消化钙(STTD Ca)和标准全消化道可消化磷(STTD P)比值固定为1.2,6个组(CAP1~6组)STTD Ca含量分别为0.216%、0.312%、0.408%、0.504%、0.600%、0.696%,对应的STTD P含量分别为0.18%、0.26%、0.34%、0.42%、0.50%、0.58%。试验期为42 d。结果表明:1)与CAP1组和CAP6组相比,CAP2组和CAP4组仔猪结肠微生物Chao1指数显著降低(P<0.05),Goods_coverage指数显著提高(P<0.05)。与CAP1组相比,CAP5组仔猪结肠中变形菌门(Proteobacteria)、狭义梭菌属1(Clostridium_sensu_stricto_1)相对丰度显著增加(P<0.05),拟杆菌门(Bacteroidota)、粪杆菌属(Faecalibacterium)的相对丰度显著降低(P<0.05);而CAP6组链球菌属(Streptococcus)、粪杆菌属的相对丰度显著降低(P<0.05),克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)的相对丰度显著增加(P<0.05)。2)CAP6组仔猪结肠内容物中乙酸含量最低,且显著低于CAP1组(P<0.05);同时,CAP1组仔猪结肠内容物中异丁酸和异戊酸含量显著低于其他5组(P<0.05),且相关性分析揭示异丁酸和异戊酸的含量变化与狭义梭菌属1、考拉杆菌属(Phascolarctobacterium)等微生物相对丰度密切相关。3)与CAP1组相比,CAP6组仔猪空肠闭锁蛋白-1(Claudin-1)基因相对表达量和蛋白表达水平降低,且回肠闭合蛋白(Occludin)和Claudin-1的蛋白表达水平显著降低(P<0.05);同时,CAP4组仔猪回肠Occludin基因相对表达量和空肠Claudin-1的蛋白表达水平显著低于CAP1组(P<0.05);此外,与CAP4组相比,CAP6组回肠Occludin和空肠Claudin-1的蛋白表达水平显著降低(P<0.05)。综上可知,饲粮中添加不同水平钙磷对仔猪肠道微生物及其肠道屏障功能具有重要调控作用,且0.504% STTD Ca和0.42% STTD P有利于维护肠道微生物稳态和肠道上皮屏障功能,而低钙磷(0.216% STTD Ca和0.18% STTD P)会抑制肠道微生物代谢物的产生,高钙磷(0.696% STTD Ca和0.58% STTD P)可能会损害仔猪肠道上皮屏障功能。

本文引用格式

苗振彦 , 李英 , 孙焱杰 , 吴绮雯 , 邓东艳 , 唐佳希 , 杨雪芬 , 王丽 , 蒋宗勇 , 易宏波 . 饲粮中添加不同水平钙磷对断奶仔猪肠道微生物和肠道上皮屏障功能的影响[J]. 动物营养学报, 2024 , 36(10) : 6293 -6306 . DOI: 10.12418/CJAN2024.536

Abstract

This study investigated the impact of varying levels of calcium and phosphorus supplementation on gut microbiota and barrier function in weaned piglets. A total of 144 weaned piglets (Duroc×Landrace×Large White, aged 21 days) were randomly allocated to six groups, with each group comprising six pens and four piglets (two males and two females) per pen. The dietary ratios of standardized total tract digestible calcium (STTD Ca) to standardized total tract digestible phosphorus (STTD P) were maintained at 1.2 across all treatments. The six groups, labeled CAP1 through CAP6, received STTD Ca concentrations of 0.216%, 0.312%, 0.408%, 0.504%, 0.600% and 0.696%, respectively. Corresponding STTD P concentrations were set at 0.18%, 0.26%, 0.34%, 0.42%, 0.50% and 0.58%, respectively. The trial period was 42 days. The results showed as follows:1) compared with CAP1 and CAP6 groups, the colon microbial Chao1 index of piglets in CAP2 and CAP4 groups was significantly decreased (P<0.05), and the Goods_coverage index was significantly increased (P<0.05). Compared with the CAP1 group, the relative abundances of Proteobacteria and Clostridium_sensu_stricto_1 and Bacteroidota and Faecalibacter in the colons in CAP5 group was significantly increased (P<0.05). The relative abundances of Streptococcus and Faecalibacter in CAP6 group were significantly decreased (P<0.05), while the relative abundances of Christensenellaceae_R-7_group were significantly increased (P<0.05). 2) The acetic acid content in colon contents of piglets in CAP6 group was the lowest, and significantly lower than that in CAP1 group (P<0.05); meanwhile, the contents of isobutyric acid and isovaleric acid in colon contents of piglets in CAP1 group were significantly lower than those in the other 5 groups (P<0.05), and correlation analysis revealed that the changes of isobutyric acid and isovaleric acid contents were closely related to the relative abundance of Clostridium_sensu_stricto_1 and Phascolarctobacterium.3) Compared with CAP1 group, the relative expression levels of jejunum Claudin-1 gene and protein expression of piglets in CAP6 group decreased, and the protein expression levels of ileum Occludin and Claudin-1 significantly decreased (P<0.05). Meanwhile, the relative expression levels of Occludin gene in ileum and Claudin-1 protein in jejunum in CAP4 group were significantly lower than those in CAP1 group (P<0.05). In addition, compared with CAP4 group, the protein expression level of ileum Occludin and jejunum Claudin-1 in CAP6 group was significantly decreased (P<0.05). In conclusion, varying levels of dietary calcium and phosphorus significantly influence gut microbiota and epithelial barrier function in piglets. A diet containing 0.504% STTD Ca and 0.42% STTD P supports the maintenance of intestinal flora homeostasis and enhances barrier function. Conversely, low levels of calcium and phosphorus (0.216% STTD Ca and 0.18% STTD P) inhibit the production of gut microbial metabolites, while high levels (0.696% STTD Ca and 0.58% STTD P) may compromise the intestinal epithelial barrier function in piglets.

钙磷是猪体重要的矿物元素,在生长发育、骨骼矿化、免疫信号传递等生理过程中发挥关键作用。由于钙磷价格低廉,实际生产中养殖企业经常出现过量添加。然而,饲粮钙含量过高会导致磷的消化率降低,还会降低猪的生长性能,造成粪中钙磷排放增加,加剧环境污染问题[1-4]。同时,饲粮中钙磷比例非常重要,因为钙和磷酸盐产物的溶解度是恒定的,如果其中一种被吸收过多,就会对另一种的吸收效率产生影响[5]。研究结果表明,在猪体重小于50 kg时,最适宜的标准全消化道可消化钙(STTD Ca)与标准全消化道可消化磷(STTD P)比值在1∶10~1.35∶1[6-7]。先前研究发现,当猪饲粮中STTD Ca:STTD P比值在1.25~1.66,且饲粮中的STTD Ca含量在0.14%~0.74%时,增加饲粮中STTD Ca会对肠道紧密连接蛋白(TJ)的表达产生负面影响[6]。此外,改变饲粮磷钙含量也是调节胃肠道微生物群的潜在策略,已经被证明饲喂高钙磷饲粮的仔猪肠道中病原体丰度降低,乳酸杆菌丰度上升[8-9]。肠道TJ和肠道微生物作为肠道屏障中的主要组成,在仔猪断奶阶段适应生理变化和环境变化发挥重要作用,有助于仔猪隔离病原体侵害和免疫系统成熟[10-11]。本团队前期研究表明,断奶仔猪的体成分钙磷的比值约为1.2[12],然而,尚缺乏此比值下不同钙磷水平饲粮对断奶仔猪肠道健康影响的研究。因此,本试验饲粮STTD Ca:STTD P比值固定为1.2,探讨饲粮中添加不同水平钙磷对断奶仔猪肠道微生物和肠道上皮屏障功能的影响,以期为生猪养殖业饲粮钙磷的合理使用提供基础数据。

1 材料与方法

1.1 试验动物与设计

试验遵循有关实验动物管理及使用机构和国家标准,通过广东省农业科学院动物科学研究所实验动物福利伦理委员会的审查,批准编号GDIAS20221103。将144头初始体重为(7.23±0.92) kg的断奶仔猪(杜×长×大,21日龄)随机分配到6个组,每组6个重复(栏),每栏4个断奶仔猪(去势公猪和母猪各2头)。试验分为2个阶段,7~11 kg阶段和12~25 kg阶段。本研究依据NRC(2012)的营养标准,调整饲粮中的钙磷含量,使STTD Ca与STTD P的比值恒定在1.2[13]。首先,使用NRC(2012)推荐的STTD P添加量(0.34%~0.42%)作为基准值,并以2个阶段推荐的STTD P添加量差值作为浓度梯度。6个组的STTD Ca:STTD P比值分别为0.216%:0.18%(CAP1)、0.312%:0.26%(CAP2)、0.408%:0.34%(CAP3)、0.504%:0.42%(CAP4)、0.600%:0.50%(CAP5)、0.696%:0.58%(CAP6),其中CAP3和CAP4为NRC(2012)推荐水平,具体饲粮组成及营养水平同本课题组已经发表文章[14]。依据NRC(2012)原料成分表中各原料的净能计算饲粮净能;依据NRC(2012)原料成分表中各原料标准回肠可消化氨基酸与总氨基酸的比例计算饲粮标准回肠可消化氨基酸含量;饲粮中粗蛋白质(CP)、钙(Ca)和总磷(TP)含量分别参考GB/T 6432—2018、GB/T 6436—2018和GB/T 6437—2018进行测定。饲粮为颗粒饲粮(制粒温度为80~83 ℃,孔膜直径为3.5 mm),且未添加植酸酶。试验期42 d,试验期间仔猪自由采食饮水。

1.2 样品采集

在试验第42天20:00开始空腹12 h,第43天08:00逐头称重后,36头仔猪屠宰后立即收集肠组织和食糜在液氮中快速冷冻,并于-80 ℃保存以供后续研究。将部分肠道组织固定在4%多聚甲醛中用于组织学观察。

1.3 微生物16S rRNA基因测序

结肠内容物微生物16S rRNA基因测序由北京诺禾致源科技股份有限公司进行检测。简而言之,使用DNA提取试剂盒(Omega Bio-Tek,美国,D5625-02)从结肠内容物样本中提取肠道微生物的总基因组DNA。使用2%琼脂凝胶电泳评估DNA的完整性。使用通用正向引物(5'-CCTAYGGGRBGCASCAG-3')和反向引物(5'-GGACTACNNGGGGTATCTAAT-3')扩增细菌16S rRNA基因的V3~V4区域。测序在Illumina MiSeq/NovaSeq平台上进行。使用QIIME2(QIIME2-202202版)软件中的DADA2模块进行降噪。使用QIIME和R软件分析微生物组成多样性和相关性分析。Tax4fun软件用于KEGG通路分析。

1.4 短链脂肪酸含量分析

采用气相色谱法测定结肠内容物中的短链脂肪酸含量。制备样品时,将50 mg结肠内容物与250 μL超纯水混合5 min。然后将悬浮液离心(2 400×g,30 min)。随后,将1 mL上清液转移到2 mL PE管中,与200 μL的42 mmol/L巴豆酸和200 μL的10%偏磷酸溶液混合。PE管在4 ℃下冷藏过夜,然后在4 ℃下以4 800×g离心10 min。所得上清液与等量乙醚混合并萃取5 min。用一次性注射器吸出乙醚层,用0.22 μm有机膜过滤,然后注入棕色注射小瓶中。使用气相色谱仪和质谱检测器(7890A和5975C Inert XL EI/CI Mass Detectors,Agilent Technologies,美国)测量短链脂肪酸(乙酸、丙酸、丁酸、戊酸、异丁酸和异戊酸,巴豆酸为内标)含量。

1.5 实时荧光定量PCR和肠道屏障基因表达分析

用TRIzol试剂(9109,TaKaRa Bio,日本)提取组织总RNA。然后根据试剂盒说明,使用带有cDNA Eraser的PrimeScript RT试剂盒(RR037A,TaKaRa Bio,日本)将1 μg RNA反转录为cDNA。用荧光定量试剂盒SYBR Premix Ex Taq(CN830A,TaKaRa Bio,日本)从组织中提取1 μg RNA,在CFX Connect检测系统(Bio-Rad,美国)上进行实时荧光定量PCR检测。20 μL的反应体系如下所示:SYBR Premix Ex Taq(10 μL)、上游引物(0.4 μL)、下游引物(0.4 μL)、ROX Ⅱ染料(0.4 μL)、cDNA样品(2 μL)和超纯水(6.8 μL)。实时荧光定量PCR反应条件为:95 ℃预变性5 min,95 ℃变性5 s,60 ℃退火34 s,95 ℃延伸15 s,扩增循环次数为40次。结果用2-ΔΔCt法计算,表1列出了本研究中实时荧光定量PCR所需的所有引物序列。
表1 肠道屏障功能相关基因引物序列

Table 1 Primer sequences of genes related to intestinal barrier function

基因
Genes
引物序列
Primer sequences(5'—3')
产物长度
Product length/bp
登录号
Accession number
闭锁蛋白-1
Claudin-1
F: ACGGCCCAGGCCATCTAC
R: TGCCGGGTCCGGTAGATG
221 AJ318102.1
闭锁小带蛋白-1
ZO-1
F: AGCCCGAGGCGTGTTT
R: GGTGGGAGGATGCTGTTG
147 XM_013993251
闭合蛋白
Occludin
F: GCACCCAGCAACGACAT
R: CATAGACAGAATCCGAATCAC
144 XM_005672525
黏蛋白-2
MUC-2
F: CTGCTCCGGGTCCTGTGGGA
R: CCCGCTGGCTGGTGCGATAC
100 XM_007465997.1
β-肌动蛋白
β-actin
F: CTGCGGCATCCACGAAACT
R: AGGGCCGTGATCTCCTTCTG
380 XM_003124280

1.6 蛋白质印迹

样品通过十二烷基硫酸钠聚丙烯酰氨凝胶(SDS-PAGE)分离,蛋白质转移到聚偏氟乙烯膜(PVDF)上。在蛋白质印迹中使用了以下抗体:闭合蛋白(Occludin,Abcam,ab31721,1∶1 000)、β-肌动蛋白(β-actin,Affinity,T0022,1∶3 000)以及闭锁蛋白-1(Claudin-1,Proteintech Group,13050-1-AP,1∶1 000)。

1.7 免疫组化染色

免疫组化(IHC)检测Claudin-1的表达。简而言之,在脱蜡和水合作用后,对4 μm的肠组织载玻片进行热诱导抗原修复。抗原修复后,将切片与3%过氧化氢溶液在室温下孵育15 min,以阻断内源性过氧化物酶活性。用10%正常山羊血清封闭切片60 min后,将组织与兔多克隆抗体Claudin-1在4 ℃下孵育过夜,然后在室温下将辣根过氧化物酶(HRP)偶联的二抗孵育60 min。二氨基联苯胺(DAB)试剂盒用于显色,切片用苏木精复染。在光学显微镜(徕卡,德国)下以400倍率对每张载玻片上的组织进行成像。使用ImageJ(开源 Java 图像处理程序, https://imagej.nih.gov/ij/)确定来自6个视野的阳性细胞的百分比。

1.8 数据统计分析

数据采用SPSS 25.0统计软件进行单因素方差分析(one-way ANOVA),Duncan氏法进行多重比较,结果用平均值±均值标准误(mean±SEM)表示;t检验对CAP1组和CAP6组的KEGG通路进行分析;GraphPad Prism10软件作图。P<0.05表示差异显著。

2 结果

2.1 饲粮钙磷水平对断奶仔猪肠道微生物多样性的影响

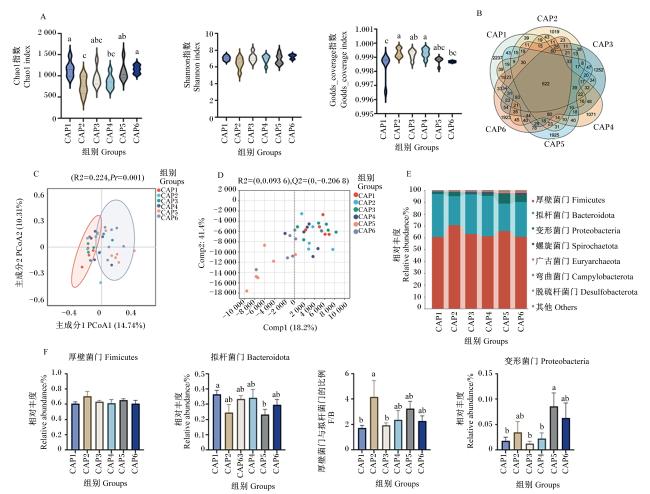
对断奶仔猪结肠内容物进行了16S rRNA基因扩增子测序。如图1-A显示,与CAP1组和CAP6组相比,CAP2组和CAP4组的Chao1指数显著降低(P<0.05),而CAP2组、CAP3组和CAP4组Goods_coverage指数显著升高(P<0.05)。各组间共有操作分类单元(OTU)622个(图1-B),CAP1组的独特OTU最多,同时CAP1组和CAP6组的OTU数目最多,与Chao1指数结果相符。对于物种水平上主坐标分析(PCoA)和正交偏最小二乘判别分析(PLS-DA)的β多样性,显示不同组微生物间有明显分离,其中CAP1组和CAP6组间显著分离(图1-C图1-D)。上述多样性结果表明,当饲粮STTD Ca:STTD P比值分别为0.216%:0.18%(CAP1组)与0.696%:0.58%(CAP6组)时,会增加断奶仔猪肠道微生物丰富度,并改变肠道微生物的组成结构。
图1 饲粮钙磷水平对断奶仔猪肠道微生物多样性的影响

A:α多样性分析;B:操作分类单元(OTU)水平物种韦恩图;C:主坐标分析;D:偏最小二乘判别分析;E:门水平相对丰度柱状图;F:在门水平上的差异微生物。柱状图上标不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of dietary calcium and phosphorus levels on diversity of gut microbiota in weaned piglets

A: α-diversity analysis; B: Venn diagram for species at OTU level; C: Principal coordinates analysis (PCoA); D: Partial least squares discriminant analysis (PLS-DA); E: Bar chart of relative abundance at the phylum level; F: Differential microbes at the phylum level. Different letters of bar chart superscript mean significant difference (P<0.05). The same as below.

在门水平上的微生物组成分析揭示(图1-E)6个组之间的肠道微生物相对丰度发生了显著变化。在所有组中厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidota)均为主要类群,但在CAP2组和CAP5组中尤为突出。进一步对特定菌群(图1-F)进行分析。与CAP5组相比,CAP1组的拟杆菌门相对丰度显著上升(P<0.05),而在其他组则保持相对稳定的分布。CAP2组的厚壁菌门与拟杆菌门的比例(F/B)与CAP1组和CAP3组相比显著上升(P<0.05)。此外,CAP5组中变形菌门(Proteobacteria)相对丰度与CAP1组、CAP3组和CAP4组相比显著上升(P<0.05)。上述门水平肠道微生物分析表明,当饲粮STTD Ca:STTD P比值为0.216%:0.18%(CAP1组)时,会增加拟杆菌门的相对丰度,从而导致F/B降低。
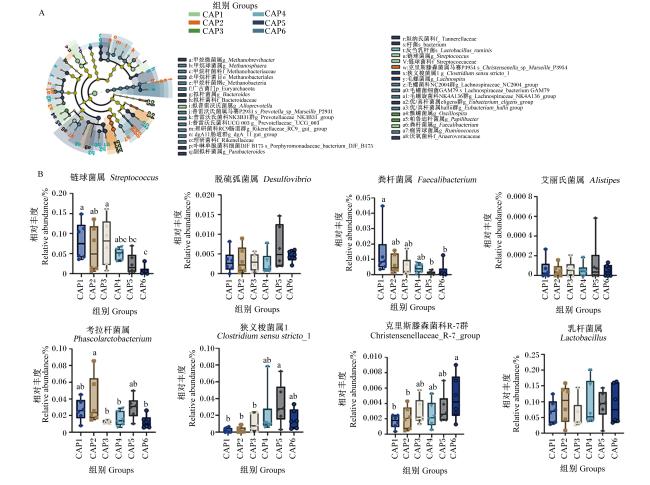
线性判别分析效应大小(LEfSe)进一步从门到物种水平进行分析,以筛选出群体间差异的分类群。线性判别分析(LDA)评分阈值设置为3.0,结果如图2-A所示。CAP1组中优势菌为链球菌属(Streptococcus)和拟普雷沃氏菌属(Alloprevotella)。CAP2组中优势菌为克里斯滕森菌属马赛P3954(Christensenella_sp_Marseille_P3954)。CAP3组中优势菌为颤螺菌属(Oscillospira)和帕鲁迪杆菌属(Papillibacter)。CAP4组中优势菌为反刍乳杆菌(Lactobacillus ruminis)。CAP5组中优势菌为甲烷微菌属(Methanobrevibacter)、拟杆菌属(Bacteroides)和土孢杆菌属(Terrisporobacter)。CAP6组中优势菌为普雷沃氏菌科NK3B31群(Prevotellaceae_NK3B31_group)、普雷沃氏菌属马赛P2931种(Prevotella_sp_Marseille_P2931)和硒单胞菌属(Selenomonas)。
图2 饲粮钙磷水平对断奶仔猪肠道微生物结构的影响

A:微生物差异分析条形图(线性判别分析>3.0);B:在属水平上的差异微生物。

Fig.2 Effects of dietary calcium and phosphorus levels on structure of gut microbiota in weaned piglets

A: Microbial difference analysis bar chart (LDA>3.0); B: Differential microbes at the genus level.

对属水平的潜在有害微生物分析发现,相对于CAP5组和CAP6组,CAP1组、CAP2组和CAP3组中潜在有害微生物链球菌属(Streptococcus)相对丰度显著升高(P<0.05)。其他潜在有害微生物脱硫弧菌属(Desulfovibrio)和艾丽氏菌属(Alistipes)相对丰度在各组间无显著差异(P>0.05)。对属水平的潜在有益微生物分析发现,CAP1组中的粪杆菌属(Faecalibacterium)的相对丰度显著高于CAP5组和CAP6组(P<0.05),同时考拉杆菌属(Phascolarctobacterium)在CAP2组中的相对丰度相较于CAP3组、CAP4组和CAP6组显著升高(P<0.05)。而克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)的相对丰度在CAP6组中相较于CAP1组和CAP2组显著上升(P<0.05)。CAP5组中潜在有益微生物狭义梭菌属1(Clostridium_sensu_stricto_1)的相对丰度相对于CAP1组、CAP2组和CAP3组显著升高(P<0.05)。综上所述,当饲粮中STTD Ca:STTD P比值在0.216%:0.18%(CAP1组)到0.408%:0.34%(CAP3组)范围内时,肠道内潜在有害微生物的相对丰度会增加,当饲粮中STTD Ca:STTD P比值为0.600%:0.50%(CAP5组)到0.696%:0.58%(CAP6组)范围内时,虽然可以降低肠道内潜在有害微生物的相对丰度,并提升潜在有益微生物丰度,但同时降低了产生短链脂肪酸相关菌群丰度。

2.2 饲粮钙磷水平对微生物功能的影响及功能分类群相关性分析

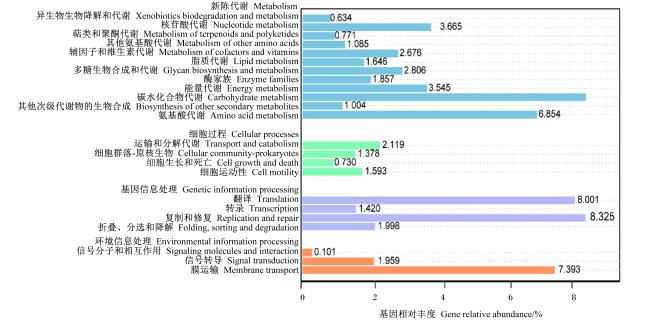
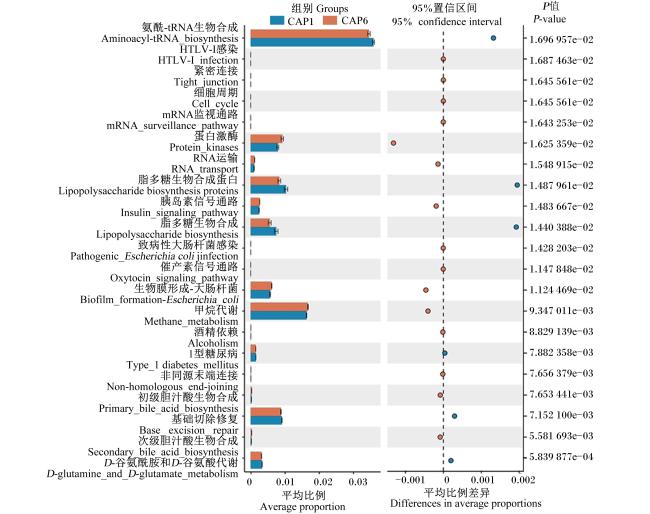
KEGG通路分析显示(图3),菌群主要参与碳水化合物代谢、运输和分解代谢、复制和修复以及膜运输。通过t检验对CAP1组和CAP6组的KEGG通路(3级)进行组间比较分析,差异最大的前30条通路如图4所示。相较于CAP6组,CAP1组的断奶仔猪中氨酰-tRNA生物合成、脂多糖生物合成蛋白、脂多糖生物合成以及D-谷氨酰胺和D-谷氨酸代谢明显提升。而相较于CAP1组,CAP6组蛋白激酶、紧密连接和甲烷代谢能力则显著提升(P<0.05)。
图3 KEGG通路富集分布

Fig.3 KEGG pathway enrichment distribution

图4 通过t检验对CAP1组和CAP6组的KEGG 通路(3级)进行分析

Fig.4 Analysis of KEGG pathways (level 3) between CAP1 group and CAP6 group using t-test

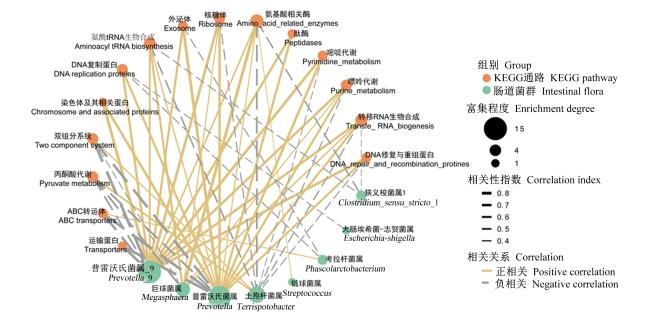
KEGG通路(3级)与属级分类群的相关性网络图如图5所示,是根据差异微生物群与上述KEGG通路(3级)之间的Spearman非参数秩相关系数构建的(|R|<0.5,P<0.05)。普雷沃氏菌属_9(Prevotella_9)的高相对丰度分类群与大多数途径相关,除与2组分系统、丙酮酸代谢、ABC转运蛋白和转运蛋白为负相关外,与其他功能均呈正相关。土孢杆菌属(Terrisporobacter)相对丰度仅与2组分系统和丙酮酸代谢呈正相关,与DNA修复和重组蛋白、tRNA生物合成、嘌呤代谢、嘧啶代谢、氨基酸相关酶、核糖体和氨酰tRNA生物合成呈负相关。
图5 KEGG通路(3级)与属级分类菌群的相关性网络图

Fig.5 Correlation network map of KEGG pathways (level 3) with genus-level microbial communities

2.3 饲粮钙磷水平对断奶仔猪肠道微生物代谢物的影响

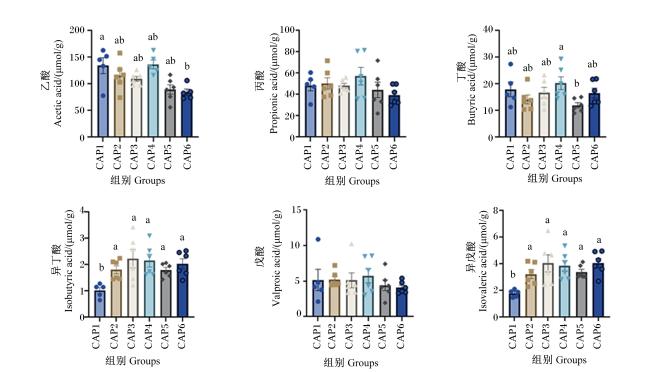
图6所示,CAP6组中的乙酸含量相较于CAP1组显著降低(P<0.05)。CAP5组中的丁酸含量显著低于CAP4组(P<0.05)。CAP1组中的异丁酸和异戊酸含量相较于其他5组显著降低(P<0.05)。综上所述,当饲粮中STTD Ca:STTD P比值为0.216%:0.18%(CAP1组)会显著降低肠道微生物代谢物异丁酸和异戊酸含量,而STTD Ca:STTD P比值为0.600%:0.50%(CAP5组)和0.696%:0.58%(CAP6组)时会降低乙酸和丁酸含量。
图6 饲粮钙磷水平对断奶仔猪肠道微生物代谢物的影响

Fig.6 Effects of dietary calcium and phosphorus levels on metabolites of gut microbiota in weaned piglets

2.4 饲粮钙磷水平对断奶仔猪肠道屏障的影响

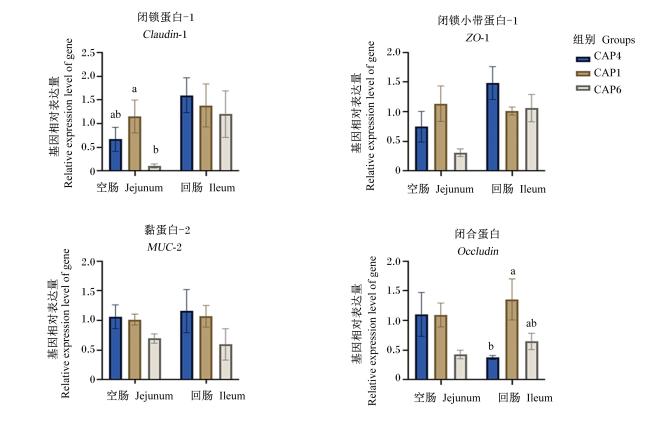
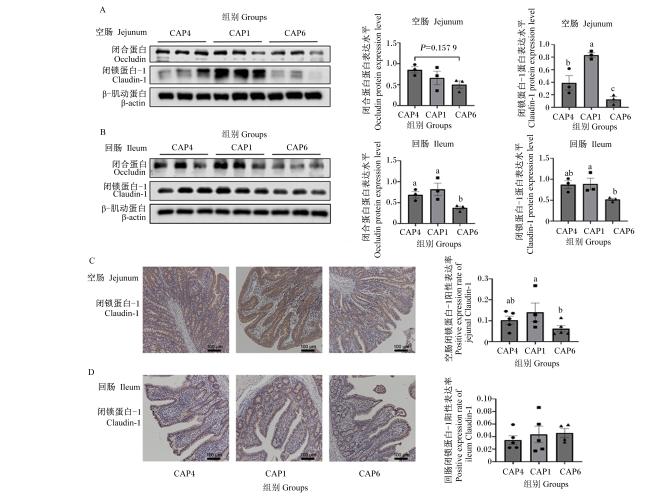
图7所示,相较于NRC(2012)推荐水平的CAP4组,CAP1组和CAP6组空肠Claudin-1的基因相对表达量没有显著差异(P>0.05),但CAP1组相较于CAP6组空肠Claudin-1的基因相对表达量显著上升(P<0.05)。与CAP4组相比,CAP1组回肠Occludin的基因相对表达量显著上升(P<0.05)。在空肠和回肠中闭锁小带蛋白-1(ZO-1)和黏蛋白-2(MUC-2)的基因相对表达量3组间均无显著差异(P>0.05),但CAP6组相较于其他2组有下降趋势。如图8所示,相较于CAP4组,CAP6组空肠Claudin-1和回肠Occludin蛋白表达水平均显著降低(P<0.05)。此外免疫组化验证Claudin-1表达结果显示,相较于CAP4组,CAP6组空肠Claudin-1阳性表达率有下降趋势但差异不显著(P>0.05),而在回肠3组间无显著差异(P>0.05)。综上所述,当饲粮中STTD Ca:STTD P比值为0.696%:0.58%(CAP6组)时,不利于肠组织完整性。
图7 饲粮钙磷水平对断奶仔猪肠道紧密连接基因表达的影响

Fig.7 Effects of dietary calcium and phosphorus levels on expression of tight junction genes in intestine in weaned piglets

图8 饲粮钙磷水平对断奶仔猪肠道紧密连接蛋白表达水平的影响

A和B:空肠和回肠紧密连接相关蛋白表达及定量;C和D:空肠和回肠闭锁蛋白-1免疫组织化学分析。

Fig.8 Effects of dietary calcium and phosphorus levels on expression levels of tight junction proteins in intestine in weaned piglets

A and B: expression and quantification of proteins associated with jejunal and ileal tight junctions; C and D: immunohistochemical analysis of jejunal and ileal Claudin-1.

2.5 相关性分析

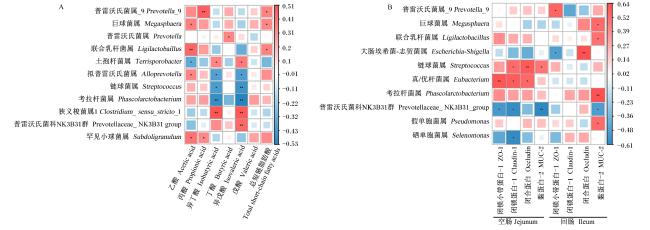
图9-A所示,为了确定属水平的肠道微生物相对丰度与短链脂肪酸含量之间的关联,进行了Spearman相关性分析。结果显示,联合乳杆菌属(Ligilactobacillus)、巨球菌属(Megasphaera)和罕见小球菌属(Subdoligranulum)相对丰度与乙酸含量呈显著正相关(P<0.05),而土孢杆菌属相对丰度与乙酸含量呈显著负相关(P<0.05)。普雷沃氏菌属_9相对丰度与丙酸和总短链脂肪酸含量呈显著正相关(P<0.05)。狭义梭菌属1相对丰度与异丁酸和异戊酸含量呈显著正相关(P<0.05),而考拉杆菌属、拟普雷沃氏菌属以及链球菌属相对丰度则与异丁酸和异戊酸含量呈显著负相关(P<0.05)。如图9-B所示,链球菌属和真/优杆菌属(Eubacterium)相对丰度与多个肠道屏障指标呈显著正相关(P<0.05),而普雷沃氏菌科NK3B31群相对丰度则与它们呈显著负相关(P<0.05)。
图9 不同饲粮钙磷水平下肠道微生物、肠道微生物代谢物以及肠道屏障的相关性分析

A:断奶仔猪肠道微生物群与短链脂肪酸的相关性分析热图;B:断奶仔猪肠道微生物群与肠道屏障指标的相关性分析热图。

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.9 Correlation analysis of gut microbiota, gut microbial metabolism and gut barrier under different dietary calcium and phosphorus levels

A: Heat map of correlation between gut microbiota and short-chain fatty acids in weaned piglets; B: Heat map of correlation between gut microbiota and intestinal barrier indexes in weaned piglets.

* indicates a significant correlation (P<0.05), ** indicates a very significant correlation (P<0.01).

3 讨论

3.1 饲粮钙磷水平对断奶仔猪肠道微生物结构的影响

肠道菌群有助于维持肠道生理结构和功能,这被认为与肠道炎症、屏障功能和宿主生长性能有关[10]。先前的研究得出结论,整体肠道微生物而非特定群组受到不同钙磷水平饲粮的影响[3,15],饲粮钙磷水平降低会导致微生物多样性的增加,而补充钙磷会减少这一变化[16-18]。在本研究中也观察到了肠道微生物的整体重塑,发现不同饲粮钙磷水平下的结肠微生物明显分离,其中当饲粮中STTD Ca:STTD P比值为0.216%:0.18%(CAP1组)和0.696%:0.58%(CAP6组)时,会显著增加肠道微生物丰富度并改变肠道微生物结构。研究指出,调节性T细胞(Treg)的减少会引起厚壁菌门数量的上升,进而触发肠道炎症反应[19]。值得注意的是,F/B的提高与宿主对营养及能量的需求,以及潘氏细胞的激活紧密相连[20]。潘氏细胞在肠道免疫防御中起着至关重要的作用,主要通过产生抗菌肽来协助免疫系统工作[21]。在本研究中,当饲粮STTD Ca:STTD P比值为0.216%:0.18%(CAP1组)时,通过增加拟杆菌门的相对丰度,从而导致F/B降低,可以推测在此饲粮钙磷水平时肠道免疫防御能力减弱。
当饲粮中STTD Ca:STTD P比值为0.60%:0.50%(CAP5组)到0.696%:0.58%(CAP6组)范围内时,断奶仔猪在属水平上有益细菌的丰度增加,包括普雷沃氏菌科NK3B31群、狭义梭菌属1和克里斯滕森菌科R-7群的相对丰度。研究表明,梭状芽孢杆菌能够在体外和体内通过阻断核因子-κB(NF-κB)的激活来预防炎症的发生[22]。本研究结果表明,钙磷的补充减少了断奶仔猪结肠中毛螺菌科和瘤胃球菌科的相对丰度,这2个科被认为是肠道中的潜在有益微生物,能够产生丁酸。特别地,毛螺菌科中的罗氏菌属和经黏液真杆菌属与肠道炎症的缓解有关,这可能是由于它们产生的丁酸具有抗炎作用[23]。而当饲粮中STTD Ca:STTD P比值在0.216%:0.18%(CAP1组)到0.408%:0.34%(CAP3组)范围内时,肠道内潜在有害微生物的丰度会增加,增加了包括潜在有害菌链球菌属的相对丰度。猪链球菌是养猪业的主要细菌性病原体,主要引起败血症、脑膜炎、关节炎和心内膜炎。它也是一种新出现的人畜共患病原体,可以通过口腔或皮肤损伤传播给人类[24],从而导致脑膜炎和败血性休克。综上所述,当饲粮中STTD Ca:STTD P比值在0.216%:0.18%(CAP1组)到0.408%:0.34%(CAP3组)范围内时,肠道内潜在有害微生物的相对丰度会增加,当饲粮中STTD Ca:STTD P比值为0.600%:0.50%(CAP5组)到0.696%:0.58%(CAP6组)范围内时,虽然可以降低肠道内潜在有害微生物的相对丰度,并提升潜在有益微生物丰度,但同时也降低了产生短链脂肪酸相关菌群的相对丰度。因此,饲粮中STTD Ca:STTD P比值在接近0.504%:0.42%(CAP4组)时更有利于维护肠道菌群稳定。

3.2 饲粮钙磷水平对断奶仔猪肠道微生物功能的影响

为了探究肠道微生物参与肠道屏障功能的机制,进一步使用Tax4fun来预测肠道微生物的功能谱。KEGG通路富集表示,肠道微生物的功能集中于碳水化合物代谢和膜运输中。有趣的是,几乎所有差异肠道微生物都参与碳水化合物相关途径,例如戊糖和葡萄糖醛酸的相互转化、甘油脂代谢、磷酸戊糖途径和半乳糖代谢。另外值得注意的是,当饲粮中STTD Ca:STTD P比值为0.696%:0.58%(CAP6组)时显著抑制了氨基酸生物合成相关的微生物途径,尤其是D-谷氨酰胺和D-谷氨酸代谢途径。这一发现暗示了这些代谢物可能是引发肠道通透性变化的关键因素。实际上,已有研究指出谷氨酸在维护肠黏膜完整性方面扮演着至关重要的角色,可能是通过激活表皮生长因子受体来促进肠上皮细胞的增殖,从而避免紧密连接的损伤[25]。此外,针对断奶仔猪的干预研究显示,补充基于谷氨酰胺的肠道配方饲粮对于肠道屏障功能具有积极影响[26-27]。在此基础上,一项研究表明,在低蛋白质饮食中,补充支链氨基酸(BCAA)能够显著提高钙的肠道消化吸收和肾脏重吸收,且影响肠道和肾脏中相关基因和蛋白质的表达,表明氨基酸生物与钙磷代谢紧密相关[28]。因此,本研究推测当饲粮中STTD Ca:STTD P比值为0.696%:0.58%(CAP6组)时,通过抑制氨基酸生物合成相关的微生物途径影响断奶仔猪肠道免疫防御能力,并可能影响钙磷代谢。

3.3 饲粮钙磷水平对断奶仔猪肠道微生物代谢物的影响

本研究推测,粪便微生物群是由钙磷水平的变化通过多种方式塑造的,从改变的物理化学环境到微生物与宿主之间关系的改变。微生物群通过其代谢物对宿主健康起到了关键作用,包括促进食物消化、代谢调节、免疫力增强及调节肠道屏障等[29]。本研究观察到当饲粮中STTD Ca:STTD P比值为0.216%:0.18%(CAP1组)时,会显著降低肠道微生物代谢物异丁酸和异戊酸含量,而STTD Ca:STTD P比值为0.600%:0.50%(CAP5组)和0.696%:0.58%(CAP6组)时会降低乙酸和丁酸含量。这一变化可能与肠道微生物结构的改变有关,特别是在STTD Ca:STTD P比值为0.600%:0.50%(CAP5组)和0.696%:0.58%(CAP6组)时粪杆菌属和考拉杆菌属2种产生短链脂肪酸微生物相对丰度的下降。先前的研究中,总钙为0.43%的低钙磷饲粮水平下短链脂肪酸的含量减少,特别是乙酸盐,但丁酸盐的浓度增加[3],与本研究在饲粮STTD Ca:STTD P比值为0.216%:0.18%(CAP1组)与0.696%:0.58%(CAP6组)时的乙酸盐变化相同,这可能由于乙酸被肠道菌群转化为丁酸,而丁酸在肉鸡中被证明通过增加小肠吸收表面积和刺激消化酶分泌,促进钙和磷的吸收与利用,从而改善肉鸡的骨矿化[30]。异丁酸和异戊酸在维持肠道健康、提供能量、抗炎和调节免疫以及促进肠道屏障功能的完整性中扮演着至关重要的角色[31]。总的来说,本研究结果表明,当饲粮STTD Ca:STTD P比值为0.216%:0.18%(CAP1组)或0.696%:0.58%(CAP6组)时会抑制SCFA产生,从而影响肠道免疫防御能力,其中CAP6组的比例也会抑制对饲粮钙磷的吸收。而当饲粮STTD Ca:STTD P比值为0.504%:0.42%(CAP4组)时,利于SCFA的产生。

3.4 饲粮钙磷水平对断奶仔猪肠道上皮屏障功能的影响

本研究评估了不同钙磷水平饲粮对断奶仔猪肠道紧密连接的影响,相较于STTD Ca:STTD P比值为0.504%:0.42%(CAP4组),比值为0.696%:0.58%(CAP6组)时空肠Claudin-1和回肠Occludin表达显著降低。此外,在肠道空肠与回肠中,钙磷的被动吸收过程依靠位于细胞间的微隙通道。因而,这种旁吸收方式与肠道内高钙磷含量形成的电化学差促使TJ改变。先前研究也指出,当STTD Ca:STTD P比值在1.25~1.66,且饲粮中的STTD Ca含量在0.14%~0.74%时,增加饲粮中STTD Ca会对十二指肠和回肠紧密结合蛋白的表达产生负面影响,意味着通过增加饲粮钙磷水平提升对钙磷的旁细胞吸收可能破坏肠道的结构完整性[6],这与本研究结果一致。而增加肠道通透性和损害肠道紧密连接蛋白,会直接影响钙和磷的吸收和代谢,肠道屏障的损害导致钙磷的肠道吸收能力下降,同时引发系统性炎症,进一步影响钙磷代谢。这种机制导致血液中钙、磷和相关维生素D代谢物的含量降低,进而影响整体生长和骨矿化过程[32]。因此,本研究猜测当饲粮中STTD Ca:STTD P比值为0.696%:0.58%(CAP6组)时导致的肠道上皮屏障受损和细菌易位可能会相互影响,共同影响肠道健康和钙磷吸收。所以对于肠道上皮屏障功能来说,当STTD Ca:STTD P比值不高于0.504%:0.42%时,有利于维护肠组织完整性。

4 结论

综上可知,饲粮中添加不同水平钙磷对仔猪肠道微生物及其代谢产物具有重要调控作用,且0.504% STTD Ca和0.42% STTD P有利于维护肠道微生物稳态和肠道上皮屏障功能,而低钙磷(0.216% STTD Ca和0.18% STTD P)会抑制肠道微生物代谢物的产生,高钙磷(0.696% STTD Ca和0.58% STTD P)可能会损害仔猪肠道上皮屏障功能和降低钙磷吸收能力。
[1]
VÖTTERL J, KLINSODA J, ZEBELI Q, et al. Dietary phytase and lactic acid-treated cereal grains differently affected calcium and phosphorus homeostasis from intestinal uptake to systemic metabolism in a pig model[J]. Nutrients, 2020, 12(5):1542.

[2]
WILLIAMS H R, TOKACH M D, WOODWORTH J C, et al. Impact of dietary analyzed calcium to phosphorus ratios and standardized total tract digestible phosphorus to net energy ratios on growth performance,bone,and carcass characteristics of pigs[J]. Journal of Animal Science, 2023,101:skad168.

[3]
TILOCCA B, BURBACH K, HEYER C M E, et al. Dietary changes in nutritional studies shape the structural and functional composition of the pigs’ fecal microbiome-from days to weeks[J]. Microbiome, 2017, 5(1):144.

[4]
LEE S A, LAGOS L V, MERRIMAN L A, et al. Digestibility of calcium in calcium-containing ingredients and requirements for digestible calcium by growing pigs[J]. Journal of Animal Science, 2023,101:skad328.

[5]
WU Y, ZHAO J F, XU C C, et al. Progress towards pig nutrition in the last 27 years[J]. Journal of the Science of Food and Agriculture, 2020, 100(14):5102-5110.

DOI PMID

[6]
LAGOS L V, LEE S A, FONDEVILA G, et al. Influence of the concentration of dietary digestible calcium on growth performance,bone mineralization,plasma calcium,and abundance of genes involved in intestinal absorption of calcium in pigs from 11 to 22 kg fed diets with different concentrations of digestible phosphorus[J]. Journal of Animal Science and Biotechnology, 2019,10:47.

[7]
GONZÁLEZ-VEGA J C, WALK C L, MURPHY M R, et al. Requirement for digestible calcium by 25 to 50 kg pigs at different dietary concentrations of phosphorus as indicated by growth performance,bone ash concentration,and calcium and phosphorus balances[J]. Journal of Animal Science, 2016, 94(12):5272-5285.

[8]
MANN E, SCHMITZ-ESSER S, ZEBELI Q, et al. Mucosa-associated bacterial microbiome of the gastrointestinal tract of weaned pigs and dynamics linked to dietary calcium-phosphorus[J]. PLoS One, 2014, 9(1):e86950.

[9]
WANG K J, YANG A Q, PENG X M, et al. Linkages of various calcium sources on immune performance,diarrhea rate,intestinal barrier,and post-gut microbial structure and function in piglets[J]. Frontiers in Nutrition, 2022,9:921773.

[10]
ZHAO X, JIANG L, FANG X Y, et al. Host-microbiota interaction-mediated resistance to inflammatory bowel disease in pigs[J]. Microbiome, 2022, 10(1):115.

DOI PMID

[11]
HU J, CHEN J W, XU X J, et al. Gut microbiota-derived 3-phenylpropionic acid promotes intestinal epithelial barrier function via AhR signaling[J]. Microbiome, 2023, 11(1):102.

DOI PMID

[12]
苏玲玲, 侯磊, 孙焱杰, 等. 无抗饲粮粗蛋白质水平对断奶仔猪机体钙磷沉积的影响[J]. 中国畜牧杂志, 2024, 60(4):263-270.

SU L L, HOU L, SUN Y J, et al. The effect of dietary crude protein levels without antibiotic resistance on calcium and phosphorus deposition in weaned piglets[J]. Chinese Journal of Animal Science, 2024, 60(4):263-270. (in Chinese)

[13]
NRC. Nutrient requirements of swine[S]. 11th ed.Washington,D.C.:the National Academies Press, 2012.

[14]
孙焱杰, 韦洋洋, 苗振彦, 等. 标准全消化道可消化钙、磷含量对断奶仔猪肠-肝-肾轴钙、磷吸收的影响及机制[J]. 动物营养学报, 2024, 36(7):4243-4257.

DOI

SUN Y J, WEI Y Y, MIAO Z Y, et al. Effects and mechanism of standard total tract digestibility calcium and phosphorus contents on calcium and phosphorus absorption in gut-liver-kidney axis of weaned piglets.[J]Journal of Animal Nutrition, 2024, 36(7):4243-4257. (in Chinese)

[15]
METZLER-ZEBELI B U, ZIJLSTRA R T, MOSENTHIN R, et al. Dietary calcium phosphate content and oat β-glucan influence gastrointestinal microbiota,butyrate-producing bacteria and butyrate fermentation in weaned pigs[J]. FEMS Microbiology Ecology, 2011, 75(3):402-413.

[16]
JIANG S, ZOU X Y, MAO M, et al. Low Ca diet leads to increased Ca retention by changing the gut flora and ileal pH value in laying hens[J]. Animal Nutrition, 2023,13:270-281.

[17]
ZHOU X J, ZOU Y W, XU Y H, et al. Dietary supplementation of 25-hydroxyvitamin D3 improves growth performance,antioxidant capacity and immune function in weaned piglets[J]. Antioxidants, 2022, 11(9):1750.

[18]
METZLER-ZEBELI B U, MANN E, SCHMITZ-ESSER S, et al. Changing dietary calcium-phosphorus level and cereal source selectively alters abundance of bacteria and metabolites in the upper gastrointestinal tracts of weaned pigs[J]. Applied and Environmental Microbiology, 2013, 79(23):7264-7272.

[19]
KEHRMANN J, EFFENBERG L, WILK C, et al. Depletion of Foxp3+ regulatory T cells is accompanied by an increase in the relative abundance of Firmicutes in the murine gut microbiome[J]. Immunology, 2020, 159(3):344-353.

[20]
HODIN C M, VISSCHERS R G J, RENSEN S S, et al. Total parenteral nutrition induces a shift in the Firmicutes to Bacteroidetes ratio in association with Paneth cell activation in rats[J]. Journal of Nutrition, 2012, 142(12):2141-2147.

DOI PMID

[21]
REN W K, DUAN J L, YIN J, et al. Dietary L-glutamine supplementation modulates microbial community and activates innate immunity in the mouse intestine[J]. Amino Acids, 2014, 46(10):2403-2413.

[22]
GUO P T, ZHANG K, MA X, et al. Clostridium species as probiotics:potentials and challenges[J]. Journal of Animal Science and Biotechnology, 2020,11:24.

[23]
HUANG S B, CHEN J Z, CUI Z J, et al. Lachnospiraceae-derived butyrate mediates protection of high fermentable fiber against placental inflammation in gestational diabetes mellitus[J]. Science Advances, 2023, 9(44):eadi7337.

[24]
SEGURA M, FITTIPALDI N, CALZAS C, et al. Critical Streptococcus suis virulence factors:are they all really critical?[J]. Trends in Microbiology, 2017, 25(7):585-599.

[25]
JI F J, WANG L X, YANG H S, et al. Review:the roles and functions of glutamine on intestinal health and performance of weaning pigs[J]. Animal, 2019, 13(11):2727-2735.

[26]
WELLINGTON M O, HULSHOF T G, ERNST K, et al. Impact of L-arginine and L-glutamine supplementation on growth performance and immune status in weanling pigs challenged with Escherichia coli F4[J]. Journal of Animal Science, 2023,101:skad138.

[27]
LUISE D, CORREA F, CHALVON-DEMERSAY T, et al. Supplementation of mixed doses of glutamate and glutamine can improve the growth and gut health of piglets during the first 2 weeks post-weaning[J]. Scientific Reports, 2022, 12(1):14533.

[28]
HABIBI M, SHILI C N, SUTTON J, et al. Dietary branched-chain amino acids modulate the dynamics of calcium absorption and reabsorption in protein-restricted pigs[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):15.

DOI PMID

[29]
MA J Y, PIAO X S, MAHFUZ S, et al. The interaction among gut microbes,the intestinal barrier and short chain fatty acids[J]. Animal Nutrition, 2022,9:159-174.

[30]
NARI N, GHASEMI H A. Growth performance,nutrient digestibility,bone mineralization,and hormone profile in broilers fed with phosphorus-deficient diets supplemented with butyric acid and Saccharomyces boulardii[J]. Poultry Science, 2020, 99(2):926-935.

[31]
CANFORA E E, JOCKEN J W, BLAAK E E. Short-chain fatty acids in control of body weight and insulin sensitivity[J]. Nature Reviews Endocrinology, 2015, 11(10):577-591.

DOI PMID

[32]
SAUVÉ B, CHORFI Y, MONTMINY M P L, et al. Vitamin D supplementation impacts calcium and phosphorus metabolism in piglets fed a diet contaminated with deoxynivalenol and challenged with lipopolysaccharides[J]. Toxins, 2023, 15(6):394.

文章导航

/